Questo protocollo descrive la produzione ricombinante e la purificazione dell'idrofobica SC16 da Escherichia coli e fornisce saggi basati su fluorescenza per monitorarne l'auto-assemblaggio.
Articolo metodologico
Produzione ricombinante e purificazione dell'idrofobina SC16 da Escherichia coli e monitoraggio del suo autoassemblaggio tramite sami di fluorescenza
In questo articolo
Sommario
Abstract
Le idrofobiche sono piccole proteine anfipatiche che si auto-assemblano alle interfacce idrofobiche–idrofile per formare rivestimenti impermeabili stabili sopra spore fungine. Le idrofobe di Classe I formano "rodlet" particolarmente stabili contenenti strutture ordinate simili all'amiloide che ricoprono le superfici. Questa insolita chimica superficiale offre loro potenziali applicazioni nella somministrazione di farmaci, stabilizzazione della schiuma, emulsificazione e modifica superficiale. Per produrre idrofobine, è necessario protocolli completi e ad alto rendimento provenienti da sistemi di espressione semplici. Inoltre, è necessario fornire metodi semplici per caratterizzare la funzione dell'idrofobina dopo la produzione e purificazione ricombinante. Qui descriviamo protocolli per la produzione e caratterizzazione di SC16, un'idrofobica di classe IB prodotta dal fungo Schizophyllum commune, che può essere espressa ricombinantemente in Escherichia coli e successivamente purificata in condizioni native non riducenti. Ciò comporta la trasformazione di un plasmide di espressione che codifica SC16 fuso a una proteina di fusione N-terminale in E. coli, l'induzione dell'espressione proteica, la lisi cellulare in condizioni native, la cromatografia di affinità e la rottura della proteasi per isolare l'idrofobica a rese di ≥5 mg. L'autoassemblaggio di SC16 può quindi essere monitorato tramite saggi a punto terminale o basati su fluorescenza cinetica utilizzando la tioflavina T. Entrambi i saghi prevedono l'incubazione di SC16 con miscelazione prolungata per favorire l'auto-assemblaggio alle interfacce aria–acqua e sono monitorati tramite misurazioni di fluorescenza. Insieme, questi approcci forniscono protocolli semplificati per purificare SC16 e monitorare il suo autoassemblaggio e possono essere estesi ad altri sistemi che coinvolgono autoassemblaggio di proteine simili.
Introduzione
Le idrofobiche sono proteine anfipatiche attive superficiali secrete da funghi che si auto-assemblano alle interfacce idrofobiche–idrofile (ad esempio, interfacce aria–acqua sulle strutture fungine). In natura, i loro ruoli sono rivestire spore e corpifruttiferi 1,2, rendendoli resistenti all'acqua, prevenendo l'allagamento dei canali d'aria e facilitando ladispersione 1. A causa della loro insolita chimica superficiale, le idrofobiche hanno applicazioni industriali diversificate, tra cui rivestimenti per aumentare la biocompatibilità di impianti e protesi 3,4,5, tensioattivi biocompatibili per la somministrazione di farmaci e trattamentimedici 6,7,8,9,10, e candidati per la cattura nanoplastica 11.
Le idrofobine possono essere suddivise in classe I e classe II, entrambe auto-assemblate alle interfacce idrofobiche–idrofile, tra cui aria–acqua, olio–acqua 12,13,14 e plastica–acqua 15,16,17. Una caratteristica distintiva delle idrofobine di classe I è che formano strutture a "rodlet" altamente stabili alle interfacce, contenenticaratteristiche ordinate simili all'amiloide (ricche di β fogli), rendendole particolarmente adatte per applicazioni che coinvolgono la modifica o la protezione della superficie. Al contrario, le idrofobine di classe II non formano strutture simili all'amiloide, ma invece formano film che possono essere facilmente dissociati. Curiosamente, esiste anche una terza classe di idrofobine, con caratteristiche strutturali mantenute delle classi I e II18,19. A causa di queste differenze, il monitoraggio dell'auto-assemblaggio delle idrofobine è importante per la classificazione e per valutare il corretto piegamento e la funzione delle idrofobine prodotte ricombinantemente.
L'auto-assemblaggio delle idrofobiche può essere facilmente monitorato con metodi fluorometrici utilizzando coloranti di legaggio dell'amiloide come la tioflavina T (ThT), che si lega alle strutture di β incrociata presenti negliamiloidi 20. ThT contiene un unico legame covalente che separa due anelli aromatici che normalmente ruotano liberamente. Al momento del lego alle strutture a β incrociate, questa rotazione diventa limitata, risultando in fluorescenza20. Grazie alla sua fluorescenza selettiva, il ThT è ampiamente utilizzato per monitorare l'auto-assemblaggio dell'idrofobina alle interfacce aria–acqua 21,22,23,24,25,26,27,28. Gli saggi ThT forniscono informazioni cinetiche dipendenti dal tempo sull'autoassemblaggio dell'idrofobina 23,27,28, offrendo vantaggi rispetto a tecniche come la microscopia a forza atomica (AFM) e le misurazioni dell'angolo di contatto, che sono a bassa portata e meno adatte all'analisi dipendente dal tempo. Inoltre, ThT mostra un forte potenziamento della fluorescenza quando si lega strutture β incrociate, con una fluorescenza minima nella sua formalibera 20. Queste proprietà rendono i saghi ThT metodi semplici e sensibili per monitorare l'auto-assemblaggio dell'idrofobia, che possono essere integrati da tecniche strutturali più intensive.
Data la diversa applicazione delle idrofobiche, è necessario un protocollo accessibile per monitorarne l'auto-assemblaggio. In particolare, il protocollo attuale fornisce un quadro per ottimizzare la purificazione e la caratterizzazione funzionale delle idrofobe ricombinanti. In precedenza, Morris e Sunde (2013) avevano delineato protocolli per l'espressione ricombinante in Escherichia coli, la purificazione e il monitoraggio basato su ThT dell'autoassemblaggio diidrofobina 21. Questo lavoro estende questi metodi descrivendo una procedura modificata per purificare l'idrofobina SC16. SC16 è un'idrofobina di classe I (proveniente da Schizophyllum commune) che può essere facilmente purificata da E. coli senza richiedere denaturazione, riduzione o riossidazione dei legami disolfuro. La proteina SC16 risultante è funzionale, come dimostrato da saggi di autoassemblaggio basati su ThT e ai punti terminali e cinetici che monitorano la formazione delle rodette. L'obiettivo di questo articolo è dettagliare un protocollo completo e semplificato per la produzione, purificazione e analisi funzionali basate su ThT ricombinanti della classe IB idrofobina SC16.
Protocollo
Questo studio non coinvolge partecipanti umani, animali vertebrati o campionamenti tessutiali. Pertanto, non era richiesta alcuna approvazione etica.
1. Espressione dell'idrofobina SC16 in E. coli
- Trasformare le cellule di E. coli espresse SHuffle T7 tramite shock termico a 42°C per 45 secondi utilizzando un plasmide di espressione pET-21 che codifica un dominio B1 della proteina G marcato con esistatidina, fuso a SC16 (H-GB1-SC16).
NOTA: Le cellule SHuffle T7 Express sono state selezionate per la loro capacità di promuovere la corretta formazione di legamidisolfuro 29. Il plasmide H-GB1-SC16 può essere generato tramite clonaggio enzimatico di restrizione come descrittoin precedenza 30. - Inoculare 2 mL di brodo di lisogenesi (LB) contenente 100 μg mL−1 di ampicillina con una singola colonia. Incubare durante la notte a 37°C con scuotere.
- Inoculare 1 L di LB (in una fiaschetta a fondo arrotondato da 2,8 L) con 1 mL di coltura notturna. Far crescere la coltura a 37°C con scuotimento (~120–135 rpm, orbita circolare di 19 mm) finché la densità ottica a 600 nm raggiunge 0,6 ± 0,1.
- Aggiungere isopropil-β-D-1-tiogalattipiranoside a una concentrazione finale di 0,5 mM per indurre l'espressione di H-GB1-SC16. Incubare durante la notte a 20°C con scuotere.
NOTA: Questa temperatura è stata scelta per ridurre il rischio di formazione di corpi di inclusione e di piegaturaimpropria 31. - Preleva le celle centrifugando a 4000 × g per 20 minuti. Versa via il soprantantante.
PUNTO DI PAUSA: Conservare il pellet cellulare a −20°C per un massimo di 3 settimane prima di procedere con la purificazione. Evita cicli ripetuti di congelamento-disgelo.
2. Purificazione dell'idrofobina SC16
- Risospendere il pellet cellulare in 30 mL di tampone di lisi (20 mM tris(idrossimetil)amminometano [Tris], pH 8, 250 mM NaCl).
- Lisa le cellule incubando la sospensione in un bagno d'acqua a 80°C per 15 minuti. Mescola delicatamente ogni 5 minuti durante l'incubazione.
NOTA: Questo passaggio si basa sulla stabilità termica di SC16 e potrebbe non essere adatto ad altre proteine.
ATTENZIONE: Usa guanti resistenti al calore quando maneggia tubi e bagni d'acqua a 80°C. Evita di schizzare liquido caldo durante la miscelazione e la rimozione del tubo. - Centrifuga il lisato cellulare a 25.000 × g per 20 minuti a 4°C. Carica il soprantantante su una colonna gravitazionale contenente 2–3 mL di resina di cromatografia metallica immobilizzata(IMAC) caricata 2+.
- Lavare la colonna con il tampone di lisi contenente 30 mM di imidazolo. Proteina eluta utilizzando 10 mL di tampone per lisi contenente 300 mM di imidazolo.
- Dialisi la frazione eluzionata contro 1 L di tampone contenente Tris (pH 8; 20 mM) e NaCl (50 mM) per 3 ore utilizzando tubi di dialisi a taglio di peso molecolare da 3500 kA, mescolare a 100 rpm.
NOTA: La velocità di mescolare durante la dialisi può variare a seconda dell'impianto (ad esempio, volume del tubo e geometria del becher). Mescola al minimo regime necessario per indurre una rotazione delicata della sacca di dialisi. - Aggiungere la proteasi della trombina (proteina di fusione 20 U mg−1 ) direttamente nella sacca della dialisi (volume totale di reazione di 10 mL) per tagliare la proteina di fusione. Sostituisci il buffer.
PUNTO DI PAUSA: Dopo l'aggiunta di proteasi e la sostituzione del tampon, proseguire la dialisi durante la notte a 4°C. Riprendi la purificazione il giorno dopo. Verifica il completamento della scissione tramite SDS-PAGE (prevedi la scomparsa della banda di ~18 kDa e la comparsa delle bande a ~10 e ~8 kDa). - Ricarica il campione dializzato sulla colonna IMAC caricata a2⁺ di Ni. Lavare ed eluire con circa 12 mL ciascuno di tampone contenente rispettivamente 30 mM e 300 mM di imidazolo.
- Analizzare le frazioni raccolte tramite elettroforesi in gel di dodecil solfato di sodio–poliacrilamide (SDS-PAGE) in condizioni riducenti (utilizzando β-mercaptoetanolo nel tampone di carico). Identificare SC16 dalla presenza di una banda nella frazione di lavaggio al peso molecolare atteso (~10 kDa). Dialisi la frazione di lavaggio contenente SC16 nella sua interezza rispetto a 1 L di tampone contenente Tris (pH 8; 20 mM) e NaCl (50 mM) per 3 ore per rimuovere l'imidazolo residuo.
NOTA: SC16 viene tipicamente rilevato nella frazione di lavaggio, mentre H-GB1 è tipicamente arricchito nell'eluato. Una piccola quantità di residuo di SC16 può essere presente anche nell'eluato. - Quantificare SC16 con un metodo preferito (ad esempio, analisi degli amminoacidi tramite cromatografia liquida ad alte prestazioni, saggio di Bradford o assorbanza a 280 nm). Con questo metodo, si prevedono rese di ≥5 mg di SC16 per litro di coltura.
NOTA: Il nostro gruppo quantifica regolarmente SC16 tramite assorbenza a 280 nm utilizzando un coefficiente di estinzione previsto di 3480 M−1 cm−1 32 Questo è il metodo preferito per la quantificazione di SC16 per la sua semplicità. - Raccogliere campioni durante la purificazione per l'analisi SDS-PAGE.
3. Test di fluorescenza al punto finale dell'autoassemblaggio SC16
- Preparare miscele di reazione triplicate contenenti 50 μg mL−1 di SC16, 50 mM di NaCl e 20 mM ciascuna di 2-(N-morfolino)acido etanosulfonico (MES), Tris e fosfato di sodio. Prepara in anticipo un tampone stock contenente MES, Tris e fosfato di sodio regolato a pH finale di 6,5 tramite aggiunta a goccia di HCl concentrato o 1 M NaOH. Aggiungi proteine e NaCl subito prima di iniziare il saggio.
NOTA: I controlli possono essere preparati in questa fase. Ad esempio, includere controlli positivi contenenti SC16 che non subiscono rotazione end-to-end e controlli negativi contenenti solo buffer. Sono state testate concentrazioni di SC16 da 25 a 100 μg mL−1 , con risultati più coerenti a 50 μg mL−1. Ottimizza questo parametro secondo necessità. - Trasferire le miscele in tubi da 2–5 mL.
NOTA: Assicurati che il tubo campione sia riempito al 50% della capacità per permettere una corretta miscelazione in caso di inversione. - Ruota i tubi a 20 giri/min per 2 ore. Trasferire 100 μL di ciascun campione in una piastra nera opaca a fondo opaco a 96 pozzi con pozzi rotondi a forma di camino.
- Aggiungere ThT filtrato a una concentrazione finale di 20 μM su tutti i campioni.
- Imposta il lettore di micropiastre su lunghezze d'onda di eccitazione ed emissione nell'intervallo appropriato per la fluorescenzaThT 33,34,35,36. Imposta il guadagno a 55 e il tempo di integrazione a 20 μs. Misurare l'intensità di fluorescenza per ogni campione immediatamente dopo il periodo di rotazione di 2 ore.
NOTA: I massimi di eccitazione ed emissione riportati di ThT sono rispettivamente 450 nm e 490nm 37. Questo esperimento utilizzò valori di eccitazione ed emissione rispettivamente di 438 e 494 nm, basati sulla disponibilità del filtro ottico. La rotazione end-to-end veniva effettuata utilizzando un dispositivo di rotazione fabbricato.
4. Saggio cinetico a fluorescenza dell'autoassemblaggio SC16
- Prepara miscele di reazione triplicate da 100 μL in una piastra nera a 96 pozzi.
- Includere 50 μg mL−1 SC16, 50 mM NaCl, 20 μM ThT filtrato e 20 mM ciascuno di MES, Tris e fosfato di sodio. Preparare controlli negativi contenenti solo ThT e buffer (senza SC16).
- Regola il pH del tampone (contenente Tris, MES e fosfato di sodio) a 5,5, 6,5, 7,5 o 8,5 usando HCl concentrato o 1 M NaOH prima dell'aggiunta di SC16 e ThT. Il sistema a buffer misto consente la regolazione del pH senza cambiare l'identità del buffer.
- Metti la piastra nel lettore di microplacche.
- Impostare lunghezze d'onda di eccitazione ed emissione nell'intervallo appropriato per la fluorescenzaThT 33,34,35,36.
- Programma il lettore per misurazioni cicliche ogni 70 secondi.
- Includere 60 secondi di scuotimento orbitale a 432 giri/min, seguiti da un periodo di riposo di 10 secondi per ciclo.
- Imposta il tempo di integrazione a 20 μs e il guadagno a 55.
- Esegui il test per 120 cicli per monitorare i cambiamenti di fluorescenza durante 2 ore di scuoti.
NOTA: Assicurarsi che venga selezionata la vibrazione orbitale; Scuotere lineari può produrre risultati di autoassemblaggio incoerenti o subottimali.
Risultati
La Figura 1 presenta un gel SDS-PAGE colorato con Coomassie che monitora la purificazione di SC16. I codici rappresentano il marcatore (M), prima dell'induzione (B), dopo l'induzione (A), la frazione solubile (S), il flusso attraverso (F), il lavaggio (W), l'eluato (E) e il dializzato (D). Nel primo eluato IMAC, una banda con un peso molecolare stimato di ~18 kDa corrisponde alla proteina H-GB1-SC16 prima della clivatura della trombonica. Dopo la cissione con la trombina, non c'è proteina nella seconda frazione di flusso attraverso IMAC, e una banda di ~10 kDa corrispondente a SC16 nel lavaggio. Nel secondo eluato IMAC, c'è un residuo di SC16 e una proteina più piccola di ~8 kDa corrispondente a H-GB1. Lo SC16 purificato veniva poi utilizzato per saggi di autoassemblaggio a punti terminali e cinetici. Questi risultati confermano una purificazione riuscita di SC16, come indicato dalla presenza della banda molecolare attesa e dalla separazione del partner di fusione H-GB1 dopo la clivaggiatura trombonica.
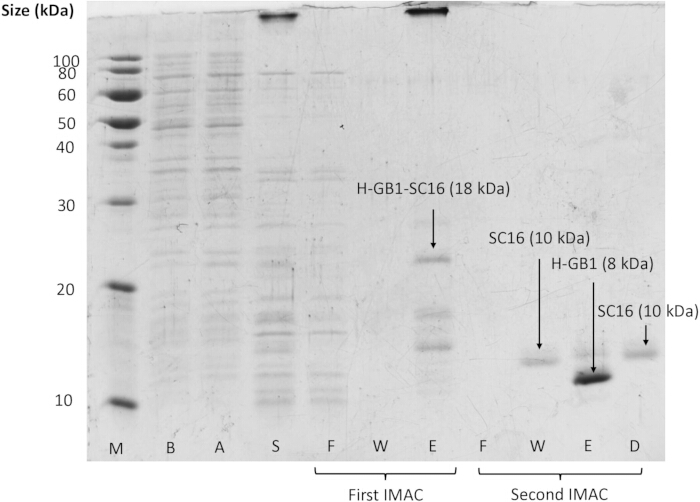
Figura 1. Analisi SDS-PAGE della purificazione di SC16 per la prima (prima della clivatura trombonica) e la seconda (prima della clivatura della trombona) separazioni IMAC. Viene mostrato un marcatore di peso molecolare (M), insieme a campioni raccolti prima dell'induzione (B), dopo l'induzione (A), il sovrantatore cellulare di lisi (S), il flusso attraverso (F), il wash (W) e le frazioni eluate (E), oltre al campione dializzato (D). Clicca qui per visualizzare una versione più grande di questa figura.
Il test ThT finale dell'autoassemblaggio di SC16 presentato nella Tabella 1 rivela un aumento di 11 volte dell'intensità di fluorescenza del ThT dopo 2 ore di rotazione in banco rispetto ai controlli contenenti proteine che non sono stati ruotati. Allo stesso modo, non si osservano cambiamenti significativi nell'intensità della fluorescenza alla rotazione dei campioni tampon. Questo aumento della fluorescenza del ThT durante l'agitazione di SC16 rappresenta la formazione di fogli di β simili a amiloidi che indicano l'auto-assemblaggio diSC16 24,25. Questi risultati dimostrano che il saggio a fluorescenza descritto monitora efficacemente l'auto-assemblaggio di SC16 nelle condizioni testate.
| Esempio | Fluorescenza ThT (conta ± SD) |
| SC16 senza rotazione | 2679 ± 177 |
| SC16 dopo la rotazione | 30315 ± 2141 |
| Buffer dopo la rotazione | 665 ± 888 |
Tabella 1. Misurazioni di fluorescenza ThT raccolte dopo la rotazione end-to-end dei campioni SC16. I campioni SC16 (50 μg mL−1) sono stati incubati senza agitazione o sottoposti a rotazione per 2 ore. Il ThT (20 μM) è stato aggiunto prima delle misurazioni di fluorescenza. La fluorescenza è stata misurata a lunghezze d'onda di eccitazione ed emissione rispettivamente di 438 e 494 nm, ed è riportata come conteggi grezzi. I valori sono presentati come media ± deviazione standard (SD).
Il saggio cinetico di autoassemblaggio di SC16, quando agitato in diversi tamponi per diverse ore, è presentato nella Figura 2. Le curve cinetiche tipiche di autoassemblaggio a forma di S per la fibrillazione amiloide includono i caratteristici periodi di ritardo, crescita e plateau38. Per SC16, non si osserva un periodo di ritardo sostanziale durante le letture iniziali, anche se questo comportamento è stato documentato per altre idrofobine, come EAS21,23. Le curve di autoassemblaggio per ogni pH sono comparabili, con forti pendenze positive corrispondenti alla formazione delle rodette. Dopo circa 20 minuti di agitazione, l'intensità della fluorescenza si stabilizza e poi si riduce lentamente. Nei campioni di controllo privi di SC16, non si osservano cambiamenti sostanziali nella fluorescenza durante l'esperimento.
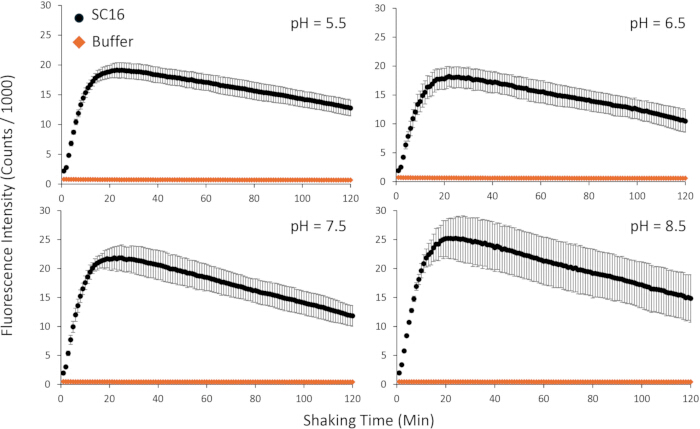
Figura 2. Curve di autoassemblaggio di SC16 misurate utilizzando un saggio cinetico di fluorescenza ThT. SC16 è stato preparato a 50 μg mL−1 in un tampone multicomponente contenente 20 μM di ThT, 50 mM di NaCl, 20 mM fosfato di sodio, 20 mM di MES e 20 mM Tris. Le misurazioni sono state effettuate dopo 60 secondi di scossione orbitale e un periodo di riposo di 10 s. L'asse x rappresenta il tempo di scuotimento (totale 2 ore). La fluorescenza è stata misurata utilizzando lunghezze d'onda di eccitazione ed emissione rispettivamente di 438 nm e 494 nm, e viene riportata come conteggi × 10−3. Le barre di errore rappresentano la deviazione standard (n = 3). I pannelli corrispondono a pH 5,5 (in alto a sinistra), 6,5 (in alto a destra), 7,5 (in basso a sinistra) e 8,5 (in basso a destra). Clicca qui per visualizzare una versione più grande di questa figura.
La Figura 3 mostra un esempio di risultati subottimali per il saggio cinetico di autoassemblaggio. In questo caso, il test veniva completato come descritto nella sezione protocollo, ma utilizzando un'impostazione di scuotimento "lineare" invece di quella "orbitale".
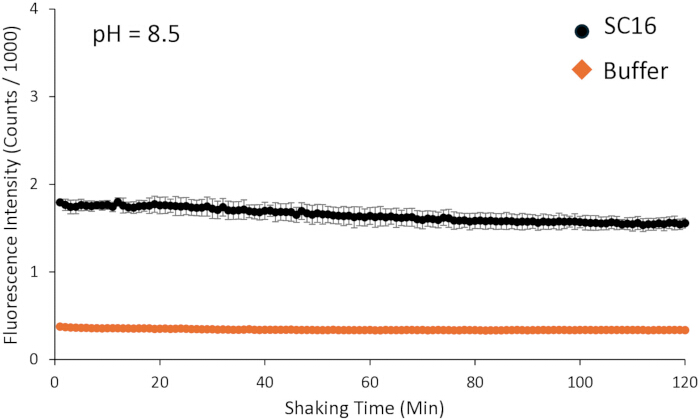
Figura 3. Esempio di dati di autoassemblaggio cinetico subottimali di SC16 ottenuti utilizzando il saggio cinetico di fluorescenza ThT. In questo caso, l'agitazione veniva eseguita utilizzando un'impostazione lineare invece che oscillante orbitale. I campioni sono stati preparati come descritto per la Figura 2. Le misurazioni sono state effettuate dopo 60 secondi di scuotimento lineare e un periodo di riposo di 10 secondi. L'asse x rappresenta il tempo di scuotimento (totale 2 ore). La fluorescenza è stata misurata utilizzando lunghezze d'onda di eccitazione ed emissione rispettivamente di 438 nm e 494 nm, e viene riportata come conteggi × 10−3. Le barre di errore rappresentano la deviazione standard (n = 3). Clicca qui per visualizzare una versione più grande di questa figura.
Discussione
Qui riassumiamo i protocolli per l'espressione e purificazione dell'idrofobina SC16, così come per i test di fluorescenza a basso e alto rendimento dell'autoassemblaggio SC16, ciascuno con vantaggi e svantaggi distinti. Questi flussi di lavoro possono essere applicati a sistemi correlati per monitorare l'auto-assemblaggio delle proteine. In questo protocollo, il calore viene utilizzato per lisare le cellule prima della purificazione di SC16, a differenza della maggior parte dei protocolli che utilizzano metodi più tradizionali per lisare E. coli. Abbiamo scoperto che H-GB1-SC16 è solubile e stabile al calore fino a 80°C, e che la lisi termica funge da fase iniziale di pulizia del campione precipitando proteasi non stabili al calore e altre proteine contaminanti all'interno del lisatocellulare 39. Tuttavia, SC16 rappresenta un caso particolare, poiché le idrofobine sono spesso espresse in modo insolubile nei corpi diinclusione 12,21,40. Quando espressi come corpi di inclusione, sono tipicamente richieste condizioni di denaturazione, seguite da un ripiegamento utilizzando i protocolliconsolidati 21,40,41.
In questo protocollo, SDS-PAGE viene utilizzata per valutare la purificazione di SC16 in ogni fase, inclusi il pellet cellulare prima e dopo l'induzione, la frazione solubile dopo la lisi cellulare e tutte le successive frazioni colonna. Questo è illustrato nella Figura 1; tuttavia, rispetto a H-GB1, la banda corrispondente a SC16 è relativamente debole. Abbiamo scoperto che, per molte idrofobine, inclusa SC16, ottenere una colorazione coerente e intensa con Coomassie è una sfida. SC16 appare tipicamente come banda a media intensità quando il β-mercaptoetanolo viene utilizzato come agente riducente (Figura 1). In alcuni casi, può essere necessario un coloramento d'argento per visualizzare più chiaramente le idrofobine.
Analisi a punto terminale e a fluorescenza cinetica possono essere utilizzate per monitorare l'autoassemblaggio di SC16. Il saggio ThT al punto finale è vantaggioso perché fornisce una valutazione rapida e semplice dell'autoassemblaggio. Oltre all'aumento della fluorescenza dopo 2 ore di rotazione sul banco, l'autoassemblaggio è spesso accompagnato da una visibile opacità bianca nel tubo di reazione. Questo saggio utilizza un semplice rotatore da banco per la miscelazione, che minimizza l'usura dei componenti del lettore di microplacche. Secondo la nostra esperienza, questo saggio è relativamente insensibile ai parametri strumentali, come le impostazioni di scuotimento in un lettore di microplacche.
Il saggio cinetico ThT fornisce informazioni più dettagliate sull'autoassemblaggio. Ad esempio, l'autoassemblaggio di SC16 non dipende in modo significativo dalle condizioni dibuffer 24, anche se si osserva una maggiore variazione tra repliche a valori di pH più alti. Tuttavia, questo comportamento non è universale tra le idrofobine, e fattori come la concentrazione di sale, il pH 24,27,42 e gli additivi (ad esempio, detergenti o alcoli) sono noti per influenzare l'auto-assemblaggio dell'idrofobina27,28. Ad esempio, l'idrofobina SLH4 mostra un autoassemblaggio più efficiente a bassa forza ionica e basso pH24, mentre l'autoassemblaggio HFBII è stato riportato indipendente da pH e concentrazione dielettroliti 42, simile a SC16. Altri studi hanno correlato gli effetti degli additivi sulla formazione delle rodelle con le variazioni della tensionesuperficiale 27,28. Date queste differenze, è importante considerare la composizione del tampone e il pH di ciascun sistema e monitorarne l'influenza sulla curva di autoassemblaggio, includendo la fase di rilag, la crescita e le regioni di altopiano.
Una limitazione importante è che il saggio cinetico ThT è altamente sensibile ai parametri strumentali del lettore di microplacche e può variare tra gli strumenti. Ad esempio, si osserva una differenza sostanziale nell'autoassemblaggio di SC16 tra le impostazioni di oscillazione orbitale (moto circolare) e lineari (avanti e indietro) (rispettivamente Figura 2 e Figura 3). Sebbene gli saggi basati su ThT forniscano un metodo efficace per modellare l'auto-assemblaggio dell'idrofobia, essi presentano limitazioni intrinseche dovute alla selettività variabile, che può portare a segnali falsi positivi ofalsi negativi 43. Inoltre, la diffusione della luce proveniente dagli aggregati di idrofobina può influenzare l'intensità di fluorescenzamisurata 44, riducendo la precisione delle misurazioni. La diluizione del campione e la riduzione della lunghezza del percorso possono aiutare a mitigare questi effetti.
I protocolli qui riassunti forniscono metodi efficaci per purificare e monitorare l'autoassemblaggio di SC16. Il saggio finale, che si svolge e dipende meno dall'instrumentazione, mentre il saggio cinetico fornisce informazioni dettagliate e risolte nel tempo, sebbene con maggiore sensibilità ai parametri strumentali. Questo protocollo delinea un approccio semplice per purificare SC16 e potrebbe essere applicabile ad altre idrofobine correttamente ripiegate espresse in E. coli. Sebbene i saggi ThT descritti abbiano limitazioni intrinseche, forniscono informazioni di autoassemblaggio dipendenti dal tempo accessibili rispetto a tecniche come AFM o misurazioni di angolo di contatto da sola. Questi flussi di lavoro possono essere adattati a proteine correlate e sono particolarmente rilevanti per applicazioni nello sviluppo di biomateriali, nella somministrazione di farmaci e in altri ambiti in cui comprendere l'auto-assemblaggio delle proteine è importante.
Dichiarazioni
Gli autori dichiarano di non avere interessi finanziari o non finanziari concorrenti.
Ringraziamenti
Gli autori riconoscono il finanziamento del New Frontiers in Research Fund (Exploration Stream; NFRFE-2023-00322) e il Consiglio per la Ricerca in Scienze Naturali e Ingegneria del Canada (NSERC; Discovery Grant; RGPIN-2024-06440). L'IED è sostenuto da una borsa di studio per magistrali – Programma di Master del Canada (NSERC). RH è supportata dai donatori del Molly Appeal attraverso il Programma di Borse di Studio Laureato 2024 della Facoltà di Medicina di Dalhousie e dalla Borsa di Studio per Laureati della Nova Scotia (livello dottorato).
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| 2-(N-morpholino)ethanesulfonic acid (MES) | Sigma-Aldrich | 145224-94-8 | Componente del buffer per i test di autoassemblaggio |
| 5 mL round bottom polystyrene tube | Falcon | 352054 | Usato per test di autoassemblaggio a basso rendimento |
| 96-well black polystyrene microplate | Grenier | 655076 | Usato per misurazioni di fluorescenza nel lettore di micropiastre |
| Acrylamide/Bis-acrylamide (29:1) solution (40%) | BioShop | ACR004.500 | Usato per preparare gel SDS-PAGE |
| Agar | BioShop | AGR002.1 | Agar usato per fare piastre LB resistenti all'ampicillina |
| Ampicillin | IBI Scientific | IB02040 | Antibiotico usato in piastre LB-agar |
| Baffled 2.8 L Fernbach flasks | Fisher Scientific | 955239 | Usato per la crescita di colture batteriche a grande volume |
| β-mercaptoethanol | TCI Chemicals | 60-24-2 | Agente riducente usato nella preparazione del campione SDS-PAGE |
| Column (1.5 cm diameter gravity column) | Bio-Rad | 7371522 | Usato per la purificazione con affinità al nichel |
| Dialysis tubing (3500 kDa MWCO) | BioDesign | D302 | Usato per lo scambio del buffer durante la purificazione |
| Emission filter | Edmund Optics | 84080 | Usato per i test ThT (494 nm, banda passante 20 nm) |
| Excitation filter | Edmund Optics | 67012 | Usato per i test ThT (438 nm, banda passante 24 nm) |
| Fluorescence microplate reader | Tecan | Infinite F200 Pro | Usato per misurare l'intensità della fluorescenza ThT |
| Hotplate | Lab Fish | HS5C | Usato per la configurazione del bagno d'acqua con monitoraggio della temperatura |
| Hydrochloric acid (HCl) | Fisher Chemical | A144-212 | Usato per la regolazione del pH dei buffer |
| Imidazole | TCI Chemicals | 288-32-4 | Usato nella purificazione IMAC (buffer di lavaggio ed eluizione) |
| Isopropyl β-D-1-thiogalactopyranoside (IPTG) | Sigma-Aldrich | 367-93-1 | Induce l'espressione delle proteine in E. coli |
| LB broth (Lennox) | BioShop | LBL405.5 | Medium di crescita per colture batteriche |
| Low-speed refrigerated centrifuge | Beckman Coulter | 360291 | Usato per pellettare le cellule prima della conservazione |
| Nickel NTA agarose beads | GoldBio | H-350-50 | Resina usata per la purificazione per affinità delle proteine taggate His |
| SC16 plasmid | BioBasic | N/A | Costruzione di DNA personalizzata che codifica la proteina di fusione H-GB1-SC16 |
| SHuffle T7 Express competent E. coli | New England Biolabs | C3029J | Stamma ospite usata per l'espressione di proteine ricombinanti |
| Sodium chloride (NaCl) | BioShop | SOD001.5 | Componente del buffer e regolatore della forza ionica |
| Sodium hydroxide (NaOH) | Fisher Chemical | SS255-1 | Usato per la regolazione del pH dei buffer |
| Sodium phosphate | BioShop | SPD579.1 | Componente del buffer per mantenere il pH |
| Spectrophotometer | Pharmacia Biotech | 5096 | Usato per la quantificazione di SC16 |
| Thioflavin T (ThT) | Acros Organics | 2390-54-7 | Colorante fluorescente usato per monitorare l'autoassemblaggio delle proteine |
| Thrombin protease | Sigma-Aldrich | 04-04-9002 | Usato per la scissione della proteina di fusione H-GB1-SC16 |
| Tris(hydroxymethyl)aminomethane (Tris) | BioShop | TRS001.5 | Buffer usato nella purificazione e nelle soluzioni per i test |
| High-speed refrigerated centrifuge | Sorvall | 46915 | Usato per chiarire il lisato dopo la lisi cellulare |
| SDS-PAGE setup | Bio-Rad | 1658000EDU | Usato per preparare ed eseguire gel SDS-PAGE |
Ristampe e permessi
