In questo studio, attraverso il confronto dei risultati di rilevamento di 24 sospensioni batteriche coltivate di Helicobacter pylori (H. pylori) ottenuti mediante metodi di rilevamento dell'antigene e di PCR digitale, abbiamo analizzato le loro correlazioni per valutarne il significato nella caratterizzazione dei materiali di riferimento per H. pylori e nella valutazione diagnostica in vitro.
Articolo di ricerca
Correlazione tra il Titolo dell'Antigene di H. pylori e la Quantificazione tramite Reazione a Catena Polimerica Digitale: Valutazione Analitica di Isolati Coltivati e Inattivati
In questo articolo
Sommario
Abstract
La standardizzazione della diagnosi di Helicobacter pylori (H. pylori) rimane una sfida a causa della eterogeneità dei saggi di rilevamento disponibili. L'immunocromatografia rileva antigeni specifici per H. pylori ma fornisce solo risultati qualitativi, soggetti a interferenze da proteine batteriche solubili non bersaglio attraverso legame non specifico o inibizione competitiva. Al contrario, la PCR digitale (dPCR) consente una quantificazione precisa del numero di copie di DNA genomico, identificando sia batteri vitali che non vitali. Questo studio ha confrontato i titoli finali ottenuti mediante immunocromatografia (valori semiquantitativi calcolati come reciproco della massima diluizione seriale raddoppiata rilevabile) con i numeri di copie di acido nucleico quantificati tramite dPCR. Ventiquattro sospensioni batteriche di H. pylori, coltivate per 72 h a 37 °C su agar Brucella supplementato con il 5% di sangue di pecora defibrinato in condizioni microaerofile (85% N2, 10% CO2, 5% O2), sono state sottoposte a test paralleli per antigeni e misurazione mediante dPCR. Sono state applicate correlazione di Pearson e regressione lineare per la valutazione statistica. È stata osservata una correlazione positiva significativa tra il titolo antigenico e il numero di copie genomiche (r = 0,536, n = 24, P = 0,007). Tuttavia, il basso coefficiente di determinazione (R2 = 0,287) ha dimostrato un potere predittivo limitato, poiché il titolo antigenico spiega soltanto il 29% della varianza misurata con dPCR e non consente previsioni affidabili per singoli campioni. Profili discordanti con alti valori di dPCR e bassi titoli potrebbero derivare da detriti batterici non vitali o da DNA genomico libero. I saggi basati su antigeni e quelli basati su acidi nucleici quantificano analiti biologicamente correlati ma non intercambiabili. Si raccomanda una caratterizzazione multiparametrica che combini unità formanti colonie, titoli antigenici e numeri di copie genomiche per lo sviluppo di materiali di riferimento e la validazione dei saggi diagnostici. Questo lavoro evidenzia la necessità di linee guida consensuali specifiche per H. pylori al fine di risolvere le discrepanze diagnostiche.
Introduzione
Helicobacter pylori (H. pylori) è un bacillo Gram-negativo microaerofilo che colonizza comunemente il tratto gastrointestinale umano, in particolare l'antro dello stomaco. Costituisce la causa principale della gastrite cronica, delle ulcere peptiche e del cancro gastrico1,2. La trasmissione di H. pylori tra gli esseri umani avviene principalmente attraverso vie orale-orale o fecale-orale ed è diffusa a livello globale, con tassi di infezione variabili in base alla regione. Nei paesi sviluppati, il tasso di infezione è di circa il 50%, mentre in alcuni paesi in via di sviluppo può raggiungere l'80%3. Nel 1994, l'Organizzazione Mondiale della Sanità (OMS) ha classificato H. pylori come agente cancerogeno di Gruppo 1 per il cancro gastrico4. Fattori chiave di virulenza come CagA (antigene associato alla citotossina A) e VacA (citotossina vacuolante A) inducono infiammazione cronica e danno epiteliale, contribuendo ai meccanismi patogenetici alla base della sua classificazione come cancerogeno di Gruppo 1. Nel 2018, il numero di casi di cancro attribuibili all'infezione da H. pylori ha raggiunto 810.000, superando il numero combinato di casi di cancro alla cervice e al fegato causati dal virus del papilloma umano (HPV), dal virus dell'epatite B (HBV) e dal virus dell'epatite C (HCV)5. Questa statistica evidenzia il rischio oncogeno significativo rappresentato da H. pylori, che, se non trattato, può portare al cancro gastrico con una probabilità stimata tra l'1% e il 3% secondo alcune ricerche. L'elevata prevalenza globale dell'infezione da H. pylori rende fondamentale, dal punto di vista della salute pubblica, una quantificazione precisa e non soltanto un rilevamento qualitativo, poiché una valutazione accurata del carico batterico può guidare le decisioni terapeutiche ed evitare terapie di erradicazione inutili o fallite. Pertanto, un rilevamento e una quantificazione accurati di H. pylori rivestono grande importanza per le indagini epidemiologiche, la scelta dei piani terapeutici e la valutazione dell'efficacia del trattamento.
Data l'importante incidenza tumorale attribuibile a H. pylori, un rilevamento accurato e una corretta quantificazione sono fondamentali per la sorveglianza epidemiologica, la scelta del trattamento e il monitoraggio terapeutico. I metodi attuali non invasivi includono il test antigenico nelle feci (SAT), il breath test all'urea e saggi molecolari. Sebbene la PCR digitale (dPCR) offra un'elevata precisione e una quantificazione assoluta, la sua applicazione clinica è limitata dai costi più elevati, dalla complessità tecnica e dai requisiti strumentali rispetto al SAT. È proprio questa disparità a rendere necessario lo studio della correlazione tra i due metodi, con l'obiettivo di migliorare la standardizzazione del SAT utilizzando la dPCR come riferimento quantitativo.
La PCR digitale (dPCR), una tecnologia emergente di quantificazione assoluta, può rilevare direttamente il numero di copie assoluto di geni bersaglio senza ricorrere a una curva standard. Nella ricerca su H. pylori, la dPCR è stata utilizzata per la quantificazione batterica in campioni di mucosa gastrica, saliva e feci6,7.
Nello sviluppo, nella valutazione della qualità e nella regolamentazione dei reagenti diagnostici in vitro, la preparazione e la taratura dei materiali di riferimento sono fondamentali per garantire l'accuratezza, la confrontabilità e la tracciabilità dei risultati. Per i reagenti diagnostici batterici in vitro (ad esempio reagenti per il rilevamento di antigeni/anticorpi di H. pylori), i materiali di riferimento devono spesso contenere ceppi o campioni clinici con concentrazioni ben definite o unità di attività. Il metodo tradizionale di quantificazione batterica è rappresentato dalle Unità Formanti Colonie (CFU/mL), che riflette direttamente il numero di batteri vitali con capacità proliferativa ed è comunemente utilizzato per la determinazione del valore delle sostanze standard batteriche, la valutazione della sensibilità dei reagenti e il confronto metodologico8. Sebbene il metodo CFU sia ancora ampiamente utilizzato, presenta evidenti limitazioni in termini di tempo di analisi, consumo di materiali e costi di manodopera9.
Con l'uso più diffuso delle tecnologie diagnostiche in vitro, metodi molecolari come la dPCR ora quantificano i patogeni con maggiore accuratezza e sensibilità. Allo stesso tempo, metodi immunologici come la titolazione degli antigeni vengono sempre più applicati nella pratica clinica. Tuttavia, nelle operazioni pratiche, la maggior parte degli isolati clinici raccolti o dei campioni standard preparati consiste in campioni inattivati o conservati a lungo termine, rendendo difficile o impossibile la coltivazione di batteri vivi e il conteggio delle UFC10. Nella preparazione dei materiali di riferimento, al fine di soddisfare i requisiti di biosicurezza e garantire la stabilità a lungo termine dei materiali, è necessario effettuare l'inattivazione. I metodi quantitativi basati su antigeni o acidi nucleici diventano quindi mezzi essenziali per la determinazione del valore8,11.
Questo solleva una domanda pratica riguardo alla correlazione e all'equivalenza di questi due approcci quantitativi distinti: utilizzando il rilevamento dell'antigene e la dPCR per valutare sostanze standard, esiste una relazione stabile e quantificabile tra i risultati di questi due metodi? Esperimenti preliminari condotti su un numero limitato di campioni di H. pylori inattivati hanno dimostrato una correlazione positiva costante tra l'intensità del segnale dei saggi immunocromatografici e il numero di copie di DNA quantificato tramite dPCR. Abbiamo ipotizzato che esista una correlazione positiva significativa e costante tra il titolo di antigene di H. pylori, misurato mediante saggi immunocromatografici, e il numero di copie di DNA, quantificato tramite dPCR, in campioni batterici inattivati. Se tale correlazione esiste, sarebbe possibile convertire risultati qualitativi basati sugli antigeni in equivalenti quantitativi di acidi nucleici. Ciò fornirebbe una base importante per la valutazione delle prestazioni dei reagenti, l'istituzione di standard, l'assegnazione di materiali di riferimento e l'interpretazione dei risultati dei test clinici quando la coltura tradizionale non è praticabile.
Attualmente, la ricerca sulla relazione tra H. pylori i risultati relativi agli antigeni e al contenuto di acidi nucleici sono inadeguati, e mancano dati sistematici a sostegno delle attività di revisione, regolamentazione e standardizzazione. Per verificare questa ipotesi, lo studio ha effettuato test paralleli su 24 sospensioni batteriche coltivate di H. pylori analizzare sistematicamente la correlazione tra il titolo dell'antigene rilevato mediante il metodo immunocromatografico colloidale e il risultato quantitativo assoluto della dPCR. Sulla base dei nostri risultati, formuliamo opinioni di riferimento sulla valutazione delle prestazioni di H. pylori reattivi di rilevamento e assegnazione dei valori del materiale standard.
Protocollo
Tutti gli isolati di Helicobacter pylori inclusi in questo studio sono stati inizialmente isolati da biopsie gastriche umane e campioni fecali dal Quinto Ospedale Affiliato dell'Università di Zhengzhou, che ha fornito sospensioni batteriche completamente processate e anonimizzate per i nostri esperimenti in vitro. Tutte le procedure originali (raccolta dei campioni clinici, isolamento batterico e criopreservazione iniziale) sono state approvate dal Comitato Etico del Quinto Ospedale Affiliato dell'Università di Zhengzhou (Numero di Approvazione Etica: KY2026080). Il consenso informato è stato ottenuto da tutti i partecipanti prima della raccolta dei campioni, e tutte le procedure hanno rigorosamente rispettato la Dichiarazione di Helsinki e le pertinenti linee guida nazionali per la ricerca biomedica. Tutte le informazioni identificabili relative ai pazienti sono state permanentemente rimosse dall'ospedale fornente prima del trasferimento dei campioni, e nessuna identità di paziente individuale può essere dedotta dai materiali sperimentali o dai risultati riportati in questo studio.
Lo studio attuale non richiede ulteriori approvazioni etiche indipendenti né consenso informato. Tutti gli esperimenti prevedono esclusivamente saggi in vitro che utilizzano sospensioni batteriche anonimizzate, senza accesso a campioni umani originali, cartelle cliniche dei pazienti o informazioni personali riservate. In conformità con le normative nazionali sull'etica della ricerca biomedica, la ricerca in vitro non interventistica che utilizza isolati microbici completamente anonimizzati soddisfa i criteri per l'esenzione etica. L'approvazione etica originale rilasciata dal Quinto Ospedale Affiliato dell'Università di Zhengzhou copre già tutte le legittime applicazioni accademiche secondarie di questi ceppi anonimizzati, come confermato ufficialmente dal comitato etico istituzionale.
Tutto H. pylori in vitro Gli esperimenti sono stati eseguiti in laboratori dotati di certificazione valida in materia di biosicurezza (Livello di Biosicurezza 2, BSL-2, Archiviazione della Biosicurezza dei Laboratori della Commissione Sanitaria del Distretto di Dongcheng, Pechino [2020] n. 059), seguendo le procedure operative standard istituzionali e soddisfacendo tutti i requisiti di revisione e autorizzazione in materia di biosicurezza. L'approvazione in materia di biosicurezza per questo studio comprende tutte le procedure che coinvolgono il virus inattivato termicamente H. pylori materiale, inclusi lavori con materiale non completamente inattivato (ovvero contenente organismi residui vitali, come caratterizzato dalla PCR di vitalità). È stata rigorosamente rispettata, per tutta la durata dello studio, la pratica microbiologica standard, i requisiti di protezione personale (DPI) e le procedure di decontaminazione dei rifiuti. Tutti i campioni batterici sono stati adeguatamente inattivati prima dello smaltimento, in conformità alle linee guida istituzionali per la gestione dei rifiuti biologici. I dettagli di tutti i reagenti, delle attrezzature e del software utilizzati per l'analisi statistica sono elencati nel Tabella dei materiali
Coltura e ceppo
AVVERTENZA: H. pylori è un agente patogeno umano del Gruppo di Rischio 2. Tutte le manipolazioni di colture vitali (inoculo, incubazione e preparazione delle sospensioni) devono essere eseguite all'interno di una cappa a sicurezza biologica certificata, in strutture BSL-2, indossando camice da laboratorio, guanti e protezione oculare.
L'inattivazione termica a 56 °C per 25 min riduce in modo significativo ma non elimina completamente gli organismi vitali (vedere sezione 1); le sospensioni parzialmente inattivate devono continuare a essere manipolate in condizioni di BSL-2. Tutti i rifiuti biologici e i materiali monouso contaminati devono essere sterilizzati in autoclave (121 °C, ≥30 min) o disinfettati secondo le procedure biosicurezza istituzionali prima dello smaltimento. Il lavoro in BSL-2 descritto in questo documento è stato autorizzato nell'ambito della stessa segnalazione di biosicurezza (Segnalazione di Biosicurezza per Laboratori della Commissione Sanitaria del Distretto di Dongcheng, Pechino [2020] n. 059).
Il Helicobacter pylori i ceppi utilizzati in questo studio erano 24 sospensioni batteriche coltivate, inizialmente ottenute da campioni gastrici e fecali umani presso il Quinto Ospedale Affiliato dell'Università di Zhengzhou e successivamente trasferite in forma di sospensione batterica alla collezione di ceppi del In Vitro Dipartimento Diagnostico di Malattie Infettive presso gli Istituti Nazionali per il Controllo dei Farmaci (NIDC), Pechino, Cina, e tutti i lavori sperimentali di questo studio sono stati eseguiti presso il NIDC (Pechino, Cina). Questi ceppi sono stati inoculati su piastre di terreno Brucella arricchito con il 5% di sangue di pecora defibrinato e coltivati in condizioni microaerofile (85% N₂, 10% CO₂₂, 5% O₂₂) a 37 °C per 72 h. Questo tempo di coltura corrisponde alla fase stazionaria di crescita, durante la quale l'espressione dell'antigene di ciascun ceppo è relativamente stabile. I sospensioni batteriche sono state quindi raccolte.
L'inattivazione termica è stata eseguita utilizzando un bagno termostatato digitale a 56 °C per 25 min. Questo trattamento è stato effettuato per soddisfare i requisiti di biosicurezza e garantire la stabilità a lungo termine dei materiali di riferimento. L'inattivazione termica a 56 °C per 25 min riduce drasticamente la vitalità batterica, ma non elimina completamente tutti gli organismi vitali, come confermato da successivi analisi di PCR per la vitalità, che hanno misurato una frazione mediana residua vitale del 4,6% (intervallo 0,00%–33,00%) su 24 sospensioni batteriche coltivate (vedi sezione Risultati 6 e Discussione). L'approvazione di biosicurezza per questo studio copre lavori con materiale non completamente inattivato (vedi Dichiarazione Etica e di Biosicurezza). L'impatto potenziale dell'inattivazione termica sulla rilevazione degli antigeni è considerato minimo, poiché il trattamento termico si mantiene al di sotto della soglia di denaturazione della maggior parte degli antigeni superficiali di H. pylori; tuttavia, potrebbe compromettere l'integrità di alcuni antigeni proteici termolabili. Per la quantificazione del DNA, l'inattivazione termica non degrada il DNA genomico e potrebbe effettivamente migliorare l'efficienza di estrazione rompendo le membrane cellulari.
Rilevamento dell'antigene
Le 24 sospensioni batteriche raccolte sono state diluite 100 volte con PBS per preparare i campioni per il rilevamento dell'antigene. Una diluizione iniziale 100 volte regola la concentrazione dell'antigene nel range lineare di rilevamento dei kit commerciali e riduce al minimo le interferenze della matrice, garantendo così risultati di rilevamento affidabili e accurati. La diluizione consente inoltre di preservare il volume del campione. Questi campioni sono stati testati utilizzando otto kit registrati per il rilevamento dell'antigene di H. pylori (Tabella 1), inclusi il metodo con oro colloidale, il metodo con lattice e il metodo immunocromatografico. Se il risultato era positivo, il campione diluito veniva ulteriormente diluito in serie (1:2, 1:4, 1:8, ecc.) e sottoposto a test fino a ottenere un risultato negativo. Il rapporto di diluizione più elevato che rimaneva positivo veniva registrato e definito come «rapporto finale di diluizione positiva dell'antigene» (ad esempio, 1:64). Le diluizioni in serie con fattore due venivano preparate in soluzione salina fosfato (PBS, 0,01 M, pH 7,2–7,4). Dopo l'applicazione del campione, ogni striscia veniva incubata a temperatura ambiente per 15–20 minuti prima della lettura; il risultato veniva letto visivamente da un operatore esperto confrontando la linea di controllo, e il punto finale veniva registrato come la diluizione più alta in cui si osservava una linea di test visibile. Poiché le strisce con oro colloidale vengono lette visivamente, la soglia di rilevamento dipende dall'operatore.
Per ogni campione analizzato utilizzando diversi kit commerciali di rilevamento degli antigeni, il titolo endpoint è definito come la mediana di tutti i titoli individuali dei kit. Poiché gli otto kit utilizzati in questo studio sono stati progettati con antigeni target e principi di rilevamento eterogenei, il coefficiente Kappa di Cohen o il CV% non sono stati impiegati per quantificare la coerenza tra i kit, poiché questi indicatori presuppongono l'esistenza di uno standard di riferimento comune. Pertanto, la variabilità osservata tra i kit riflette l'effettiva eterogeneità biologica e analitica piuttosto che errori di misurazione. La mediana, essendo una misura robusta della tendenza centrale, è in grado di resistere efficacemente alle deviazioni specifiche di ciascun kit. Nei 24 campioni analizzati, l'intervallo all'interno di ciascun campione tra il titolo più alto e quello più basso rilevato dai kit variava da 2 a 16 volte (mediana, 4 volte): sei campioni differivano di 2 volte, quattordici di 4 volte, tre di 8 volte e uno di 16 volte tra i kit. I titoli minimi, mediani e massimi per ciascun kit e per ogni campione sono riportati nella Tabella Supplementare 1.
Rilevamento quantitativo mediante PCR digitale
Le 24 sospensioni batteriche raccolte sono state diluite 500 volte con PBS e successivamente utilizzate come campioni per la rilevazione quantitativa mediante dPCR. La quantificazione assoluta di questi campioni diluiti è stata eseguita da quattro laboratori specializzati in dPCR (Tabella 2). La dPCR è stata effettuata utilizzando set di primer e sonde specifici per piattaforma, che mirano a sequenze genomiche conservate di H. pylori. I kit di rilevazione dPCR utilizzati in questo studio sono kit di reagenti universali applicabili a più patogeni e a più bersagli. Ogni piattaforma ha progettato e ottimizzato in modo indipendente le specifiche sequenze di primer/sonda e le regioni geniche bersaglio, che costituiscono la sua proprietà intellettuale principale. Queste sequenze non sono state divulgate agli utilizzatori finali. Siamo stati informati soltanto che il bersaglio specifico di rilevazione per H. pylori è una regione genomica conservata, la cui capacità di rilevazione specifica è stata verificata. Le sequenze del gene 23S rRNA di 24 ceppi di Helicobacter pylori sono state depositate in NCBI GenBank sotto l'accesso BioProject PRJNA1520048. Tali sequenze sono state depositate per la conferma dell'identità dei ceppi e non rappresentano il bersaglio di quantificazione mediante dPCR. Poiché la progettazione di primer/sonde, la chimica dell'amplificazione e il conteggio delle partizioni basato sulla distribuzione di Poisson sono proprietà esclusiva di ciascuna piattaforma, questi passaggi dipendono dalla piattaforma e non possono essere riprodotti senza accesso al produttore; al contrario, le procedure di diluizione del campione, di replicazione dell'estrazione e di aggregazione dei dati descritte in precedenza sono indipendenti dalla piattaforma e completamente specificate. I numeri assoluti di copie sono stati calcolati utilizzando l'algoritmo della distribuzione di Poisson implementato nel software di analisi proprietario dello strumento. I parametri computazionali specifici e il codice sorgente sono di proprietà esclusiva del produttore e non sono stati divulgati agli utilizzatori finali. Infine, il numero assoluto di copie (copie/mL) del gene bersaglio nella soluzione originale è stato calcolato sulla base della distribuzione di Poisson e del fattore di diluizione.
Quattro laboratori indipendenti di dPCR (Sniper, Jiangsu Bioperfectus Technologies Co., Ltd., Ustar Biotechnologies Ltd. e TargetingOne) hanno partecipato allo studio, ciascuno utilizzando kit di estrazione e reagenti dPCR proprietari ottimizzati per la propria piattaforma strumentale, tutti mirati a sequenze genomiche conservate di H. pylori. Ogni piattaforma ha ricevuto la sospensione batterica non diluita e ha preparato i campioni seguendo il proprio protocollo: Ustar ha utilizzato la sospensione non diluita direttamente, mentre Sniper, Jiangsu Bioperfectus Technologies Co., Ltd. e TargetingOne l'hanno diluita 500 volte in PBS prima dell'estrazione. Per ciascun isolato su ciascuna piattaforma, sono state effettuate due estrazioni indipendenti di acidi nucleici dalla stessa sospensione batterica diluita 500 volte, e ciascun estratto è stato analizzato in triplice replicazione, ottenendo sei misurazioni per isolato per piattaforma (con una sola eccezione per Ustar, in cui un'estrazione ha prodotto soltanto due replicati validi). Una reazione è stata classificata come non valida ed esclusa se il numero di droplets positivi era al di sotto del limite inferiore di rilevamento dello strumento o se il controllo senza template mostrava amplificazione non specifica; le reazioni non valide sono state ripetute una volta, e i fallimenti persistenti hanno portato all'esclusione dell'intera estrazione. I dati grezzi specifici per piattaforma sono riportati nella Tabella Supplementare 1.
L'aggregazione dei dati ha seguito una procedura a due livelli: innanzitutto, tutte le misurazioni grezze valide (copie/µL) all'interno di ciascuna piattaforma sono state mediate e convertite nella concentrazione originale della sospensione batterica non diluita (copie/mL) utilizzando formule di conversione specifiche per ciascuna piattaforma; in secondo luogo, le quattro concentrazioni ottenute da ciascuna piattaforma per ogni isolato sono state mediate (media aritmetica) per ottenere il valore finale unico del numero di copie. Questo approccio garantisce un contributo equo di ciascuna piattaforma, indipendentemente dalla variabilità dei replicati all'interno della piattaforma, riducendo al contempo i bias sistematici intrinseci a strumenti o sistemi di reagenti specifici.
Ogni sospensione batterica coltivata è stata quantificata in parallelo su quattro piattaforme di PCR digitale (dPCR), e il coefficiente di variazione (CV) dei numeri di copie trasformati in log₁₀ tra le piattaforme è stato calcolato per ciascun isolato al fine di valutare la variabilità interlaboratorio. I risultati corrispondenti sono riportati nella sezione Risultati.
Analisi statistica
Il H. pylori Il titolo dell'antigene è stato definito come il reciproco del maggiore fattore di diluizione del campione al quale è stato osservato un risultato positivo (ad esempio, una diluizione 1:64 corrisponde a un titolo di 64). Per ciascun isolato, gli otto titoli di antigene specifici dei kit sono stati aggregati mediante la loro mediana, mentre le quattro concentrazioni di dPCR specifiche della piattaforma sono state aggregate mediante la media aritmetica, al fine di ottenere un singolo valore rappresentativo per ciascun isolato da utilizzare nell'analisi di correlazione successiva. Questa strategia di riduzione dei dati è metodologicamente giustificata perché: (i) gli otto kit per l'antigene rilevano lo stesso analita utilizzando principi di immunodosaggio comparabili, e la mediana fornisce uno stimatore robusto, resistente a letture sporadiche anomale; (ii) ciascuna delle quattro piattaforme di dPCR quantifica un segmento conservato H. pylori locus genomico, e la media aritmetica di stime di concentrazione distribuite log-normalmente fornisce una tendenza centrale non distorta; e (iii) questa aggregazione è coerente con l'obiettivo principale dello studio—valutare la concordanza tra le modalità di quantificazione basate sul titolo dell'antigene e quelle basate sul DNA a livello di isolato—piuttosto che valutare le prestazioni analitiche tra kit o tra piattaforme. La correlazione tra il titolo dell'antigene e la quantificazione mediante dPCR (copie/mL) è stata inizialmente valutata mediante analisi di correlazione di Pearson. Entrambe le variabili sono approssimativamente distribuite in modo normale dopo la trasformazione logaritmica (asimmetria: log10 dPCR = −0,66; log2 titolo dell'antigene = −0,60; asimmetria dei residui della regressione = −0,16), soddisfacendo le assunzioni per la correlazione di Pearson. Il titolo dell'antigene è stato trasformato in log2 per riflettere la linearizzazione di una diluizione seriale a due raddoppi, mentre i risultati della dPCR sono stati trasformati in log10, il che è in accordo con il formato di reporting del carico batterico standard. Successivamente, per valutare l'associazione lineare, sono state eseguite analisi di correlazione di Pearson e di regressione lineare utilizzando il titolo dell'antigene trasformato in log2 e i risultati della dPCR trasformati in log10. Per tutte le analisi, è stato adottato un livello di significatività (α) di 0,05 è stato applicato, con P < 0,05 considerato statisticamente significativo. Tutte le analisi statistiche sono state effettuate utilizzando la piattaforma online di analisi statistica SPSSPRO.
Risultati
Comparison of H. pylori antigen titer and dPCR absolute quantification results
Among the total of 24 cultured bacterial suspensions, the antigen titer ranged from 8 to 256, with a median of 32 (Table 1). The dPCR quantification results ranged from 2.67 × 10⁷ copies/mL to 2.04 × 10⁹ copies/mL, with a median of log₁₀ = 8.61 (≈4.09 × 10⁸ copies/mL) (Table 2). The relationship exhibited non-linear characteristics in the raw data, suggesting a power-law or exponential association, which justified the subsequent logarithmic transformations applied to both antigen titer and dPCR quantification values.
Linear association between log-transformed antigen titer and dPCR quantitative results
To test whether there is a significant correlation between the results of the two detection methods, we applied logarithmic transformation and performed Pearson correlation analysis, as both variables are approximately normally distributed after log transformation. As shown in Figure 1, after transformation, the antigen titer (log2-transformed) and the absolute quantitative result of dPCR (log10-transformed) exhibited a significant moderate positive linear correlation (r = 0.536, n = 24, P = 0.007).
Quantitative modeling of the relationship between antigen titer and dPCR copy number
To quantify the relationship between the two detection methods and assess the potential for mutual prediction, we applied linear regression analysis to the log-transformed data, so as to utilize the regression model to predict bacterial load through antigen titer in the future. The analysis reveals a linear relationship between log2 (antigen titer) and log10 (dPCR), yielding the equation: log10(dPCR) = 0.1588 × log2(titer) + 7.7988 (R2 = 0.287). The regression coefficients (with standard errors and 95% confidence intervals) were: slope 0.1588 ± 0.053 (95% CI 0.048–0.270) and intercept 7.7988 ± 0.292 (95% CI 7.193–8.404); the residual standard error was 0.318 log10 units, and the overall regression was significant (F(1,22) = 8.84, P = 0.007). This indicates that for every doubling of the antigen titer, the dPCR copy number only increases by 1.441 times (100.1588). However, for a given antigen titer, the 95% prediction interval of the dPCR results can span nearly two orders of magnitude (for example, at a titer of 1:32, the prediction interval is approximately 8.3 × 10⁷ to 1.85 × 10⁹copies/mL). This indicates that in practical applications, the antigen titer alone cannot accurately predict the copy number of nucleic acid in a single sample, but using this model may provide a coarse estimation of the order of magnitude for group-level comparisons, though it is limited for individual sample prediction due to the moderate explanatory power (R2 = 0.287).
Inter-platform variability of dPCR quantification and sensitivity analysis of the correlation
Interlaboratory variability was assessed on log10-transformed concentrations to account for the log-normal distribution of microbial quantification data. The CV% across the four platform-derived log10 concentrations ranged from 0.9% to 8.3% (median 1.8%, mean 2.5%) across 24 isolates. One outlier (Hp06, CV = 8.3%) showed a >30-fold discrepancy between Sniper (5.93 × 10⁸ copies/mL) and TargetingOne (1.50 × 10⁷ copies/mL); excluding this isolate, CVs ranged from 0.9% to 6.4%. To ensure that this outlier did not drive the observed antigen–dPCR correlation, a sensitivity analysis was performed excluding Hp06, which yielded r = 0.479, R2 = 0.230, and P = 0.021 (n = 23) — comparable to the primary analysis including all 24 isolates — confirming that the headline correlation does not depend on this isolate. This dispersion reflects systematic differences among platforms in extraction efficiency, reagent sensitivity, and instrument calibration rather than random measurement error, which supports cross-platform averaging to reduce platform-specific bias.
Defining and classifying results using dual-method thresholds
Based on the analyses above and on exploratory, dataset-specific criteria, this study set the median titer of antigen detection at 1:32 as the threshold for high antigen detection, due to the non-normal distribution of antigen titer data, and selected the actual median log₁₀(dPCR) = 8.61 (≈4.09 × 10⁸ copies/mL) as the threshold for high nucleic acid content. These thresholds are exploratory, dataset-specific cutoffs derived from cultured isolate data and do not represent validated clinical diagnostic criteria. Consequently, any application of these cutoffs to other sample collections or analytical contexts would require re-derivation from the corresponding data rather than direct transfer.
Using the exploratory thresholds (antigen titer ≥ 1:32 as high, ≤ 1:16 as low; dPCR log₁₀ ≥ 8.61 as high nucleic acid load), the four-quadrant classification of the 24 cultured bacterial suspensions (Figure 2, Table 3) is as follows: 9 samples (Hp03, Hp04, Hp11, Hp13, Hp18, Hp19, Hp21, Hp22, Hp25) fall into the high antigen–high nucleic acid category (37.5%); 3 samples (Hp09, Hp26, Hp27) are classified as low antigen–high nucleic acid (12.5%); 8 samples (Hp01, Hp02, Hp05, Hp08, Hp10, Hp14, Hp15, Hp17) exhibit high antigen–low nucleic acid (33.3%); and 4 samples (Hp06, Hp07, Hp12, Hp20) belong to the low antigen–low nucleic acid category (16.7%). Because the 24 isolates were divided into six titer groups with an average of only 4 samples per group, formal inter-group comparison (e.g., Kruskal-Wallis testing) would lack sufficient statistical power; therefore, only descriptive summaries of dPCR quantitative results across titer groups are reported.
Residual viable fraction after heat inactivation (viability PCR)
To quantify residual viable bacteria following heat inactivation, a viability PCR reagent system was used for all 24 isolates. Briefly, each heat-inactivated suspension (200 µL) was incubated with the membrane-impermeable Viability PCR Reagent (10 µM final concentration) at 37 °C for 75 min, with a parallel reagent-omitted control (−VR) processed identically. The reagent was then chemically inactivated by adding Viability PCR Neutralization Buffer (20 µL, 10×) and incubating at room temperature for 15 min. Genomic DNA was extracted from both the +VR and −VR aliquots, and dPCR was performed on each extract; the viable fraction was calculated as the ratio of +VR to −VR copy numbers × 100%. The median viable fraction was 4.6% (range 0.00%–33.00%; full per-isolate results in Supplementary Table 2). The viable percentage did not correlate significantly with antigen titer (r = 0.03, P = 0.90) or with dPCR copy number (r = 0.37, P = 0.08).
DATA AVAILABILITY:
The 23S rRNA gene sequences of 24 Helicobacter pylori strains have been deposited in NCBI GenBank under BioProject accession PRJNA1520048. These sequences were used solely for strain identity confirmation and do not represent the dPCR quantification target, which is a manufacturer-proprietary conserved genomic region, as described in Protocol.
The raw kit-specific antigen titers from eight commercial colloidal gold immunochromatographic kits and the platform-specific dPCR quantitative values from four digital PCR instruments cannot be deposited in a public repository because of commercial sensitivity, manufacturer confidentiality agreements, and regulatory restrictions associated with CE-marked/National Medical Products Administration-approved in vitro diagnostic products.
Additional restricted data may be made available confidentially when necessary, subject to the applicable confidentiality and regulatory restrictions.
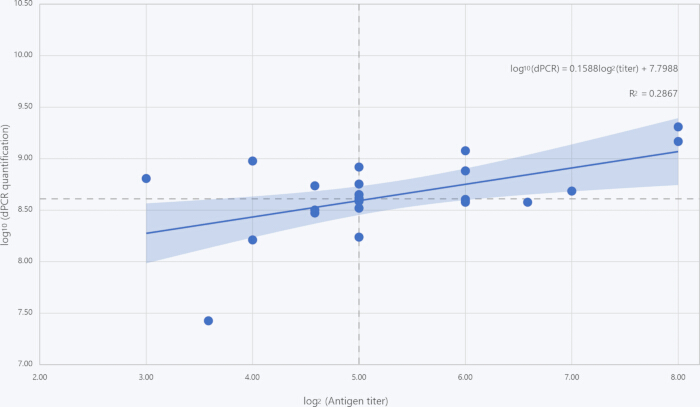
Figure 1: Correlation between Helicobacter pylori antigen titer and digital polymerase chain reaction (dPCR) quantification. A scatter plot with a regression line is presented to illustrate the relationship between antigen titer and DNA copy numbers in 24 cultured bacterial suspensions (n = 24). Antigen titers were ascertained via a colloidal gold immunochromatographic assay with visual reading. Serial dilutions of each sample were examined, and the titer is expressed as the highest dilution factor that yields a positive result (presented on the x-axis as log2-transformed, dimensionless values). DNA copy numbers were quantified through dPCR and are presented on the y-axis as log10-transformed concentrations (log10 copies/mL). Each dot represents an individual bacterial suspension sample. The blue solid line represents the linear regression fit. The shaded band around the regression line represents the 95% confidence interval of the fitted mean response. The dashed vertical and horizontal lines indicate the exploratory classification thresholds (log₂ titer = 5, i.e., 1:32; log₁₀ dPCR = 8.61, i.e., 4.09 × 10⁸ copies/mL) used in Figure 2 and Table 3. Correlation was evaluated using the Pearson correlation coefficient, resulting in r = 0.536, P = 0.007, R2 = 0.287, which indicates a statistically significant positive correlation between the two methods. Please click here to view a larger version of this figure.
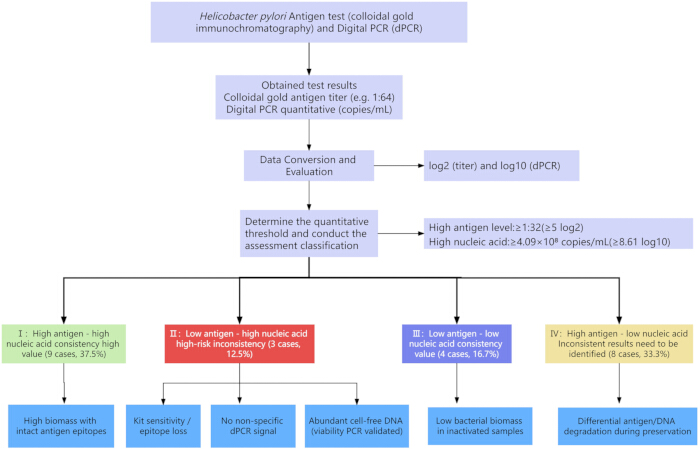
Figure 2: Analytical classification framework for H. pylori testing combining antigen test results with dPCR quantification. This figure depicts the four-quadrant classification of 24 cultured bacterial suspensions (n = 24) based on the concordance between immunochromatographic antigen titer and dPCR quantitative results. Using exploratory, dataset-specific thresholds (antigen titer ≥ 1:32 as high, ≤ 1:16 as low; dPCR log₁₀ ≥ 8.61 as high nucleic acid load), samples are classified into: high antigen–high nucleic acid (n = 9, 37.5%), high antigen–low nucleic acid (n = 8, 33.3%), low antigen–high nucleic acid (n = 3, 12.5%), and low antigen–low nucleic acid (n = 4, 16.7%). These thresholds are exploratory cutoffs derived from cultured isolate data and do not represent validated clinical diagnostic criteria. The classification framework illustrates the agreement and discordance between immunological and molecular detection methods. Categories with discrepancies may reflect factors such as antigen stability, bacterial viability, or DNA copy number variation. This framework is intended for analytical comparison purposes and does not constitute clinical diagnostic or treatment recommendations. Please click here to view a larger version of this figure.
| No. | Detection reagent | Manufacturer |
| 1 | Helicobacter pylori antigen detection kit (colloidal gold method) | Bioneovan Co., Ltd |
| 2 | Gastric Helicobacter pylori (HP) Antigen Detection Kit (Colloidal Gold Method) | Shanghai Chemtron BIOTECH Co., Ltd |
| 3 | Helicobacter pylori antigen detection kit (colloidal gold method) | Jiangsu Mole Bioscience Co., Ltd |
| 4 | Helicobacter pylori antigen detection kit (colloidal gold method) | Hangzhou Genesis Biodetecton & Biocontrol Ltd |
| 5 | Helicobacter pylori antigen detection kit (colloidal gold method) | JIANGSU COWIN BIOTECH CO., LTD |
| 6 | Helicobacter pylori antigen detection reagent (latex method) | ABON Biopharm (Hangzhou) Co. Ltd |
| 7 | Helicobacter pylori (HP) antigen detection reagent (immunochromatographic method) | GUANGZHOU WONDFO BIOTECH CO., LTD |
| 8 | Helicobacter pylori antigen detection kit (colloidal gold method) | Beijing Core Technology Co., Ltd |
Table 1: List of Helicobacter pylori Antigen Detection Reagents and Their Manufacturers. The table enumerates eight commercially accessible immunochromatographic assays for the detection of H. pylori antigen, which were assessed in this study. For each product, the No. (as supplied by the manufacturer), the commercial designation of the detection reagent, and the manufacturer's name are presented. These kits were chosen on the basis of their extensive utilization in clinical diagnostics and point-of-care testing. All information was retrieved from the manufacturers' product inserts and official websites (accessed in March 2026). The inclusion of these reagents does not signify an endorsement; they are representative of the diversity of available tests.
| No. | Instrument model | Digital PCR Platforms |
| 1 | DQ24 | Sniper |
| 2 | Bio Rad QX200 Droplet Digital PCR | Jiangsu Bioperfectus Technologies Co., Ltd |
| 3 | DQ24 Pro | Ustar Biotechnologies (Hangzhou) Ltd |
| 4 | TD-1 Digital PCR System | TargetingOne |
Table 2: List of Digital PCR (dPCR) Platforms and Instrument Models. This table enumerates four laboratory platforms equipped with dPCR systems, along with the corresponding instrument models employed for testing. These platforms were chosen in consideration of their technological diversity and representativeness of the current implementation of dPCR. All information is provided by each respective platform. The inclusion of these platforms does not signify an endorsement; they simply represent the scope of existing dPCR systems.
| Type | Number of cases | Proportion | Sample number |
| High antigen - High nucleic acid | 9 | 37.5% | Hp03, Hp04, Hp11, Hp13, Hp18, Hp19, Hp21, Hp22, Hp25 |
| Low antigen - High nucleic acid | 3 | 12.5% | Hp09, Hp26, Hp27 |
| Low antigen - Low nucleic acid | 4 | 16.7% | Hp06, Hp07, Hp12, Hp20 |
| High antigen - Low nucleic acid | 8 | 33.3% | Hp01, Hp02, Hp05, Hp08, Hp10, Hp14, Hp15, Hp17 |
Table 3: Classification and Proportion of Antigen Test and Nucleic Acid Test Results in This Study. This table classifies 24 cultured bacterial suspensions according to the concordance between antigen titer (determined by immunochromatographic assay, expressed as the highest dilution factor resulting in a positive result) and absolute quantitative digital polymerase chain reaction (dPCR) results (expressed as log₁₀ copies/mL). Using an antigen titer cutoff of 1:32 (high ≥ 1:32, low ≤ 1:16) and a dPCR quantification cutoff of 4.09 × 10⁸ copies/mL (log₁₀ = 8.61) as exploratory, dataset-specific thresholds, isolates were classified into four subgroups: High Antigen-High Nucleic Acid, Low Antigen–High Nucleic Acid, High Antigen–Low Nucleic Acid, and Low Antigen-Low Nucleic Acid. Among the 24 samples, 9 were categorized as High Antigen–High Nucleic Acid (37.5%; Hp03, Hp04, Hp11, Hp13, Hp18, Hp19, Hp21, Hp22, Hp25), 3 as Low Antigen–High Nucleic Acid (12.5%; Hp09, Hp26, Hp27), 8 as High Antigen–Low Nucleic Acid (33.3%; Hp01, Hp02, Hp05, Hp08, Hp10, Hp14, Hp15, Hp17), and 4 as Low Antigen–Low Nucleic Acid (16.7%; Hp06, Hp07, Hp12, Hp20). For each category, the table shows the number of cases (n), the proportion relative to the total sample size (%), and the sample numbers within each category. This classification illustrates the agreement and discordance between immunological and molecular detection methods; categories with discrepancies may reflect factors such as antigen stability, bacterial viability, or DNA copy number variation, offering insights for the interpretation of analytical test results.
Supplementary Table 1: Aggregated dataset of antigen detection and dPCR quantification for the 24 Helicobacter pylori isolates. Sheet 1 (Antigen Detection): per-kit endpoint titers from the eight commercial colloidal gold immunochromatographic kits for each isolate, with the per-sample minimum, median, and maximum titer and within-sample fold range. Sheet 2 (Digital PCR Quantitative Detection): platform-specific dPCR concentrations (copies/mL) for each isolate, with inter-platform summary statistics (median, minimum, maximum, and CV% of log₁₀-transformed concentrations). Sheet 3 (Correlation and Regression Analysis): strain-level log₂-transformed antigen titers and log₁₀-transformed dPCR concentrations, Pearson correlation and linear regression results (r, R2, regression equation), sensitivity analysis excluding the outlier Hp06, and detailed regression statistics (standard errors, 95% confidence intervals, residual standard error, F-statistic, and P-value). Kit-specific and platform-specific identifiers are anonymized for commercial confidentiality; the dataset contains all values required to reproduce Figures 1–2 and Table 3.Please click here to download this file.
Supplementary Table 2: Viability PCR results for the 24 Helicobacter pylori isolates. Per-isolate dPCR copy numbers of the viability reagent–treated (+VR) and reagent-omitted (−VR) aliquots after heat inactivation at 56 °C for 25 min, with the calculated viable fraction (%) and equivalent ΔCq for each isolate. The median viable fraction across all isolates was 4.6% (range 0.00%–33.00%).Please click here to download this file.
Discussione
In questo studio condotto su 24 isolati coltivati di H. pylori, il titolo dell'antigene immunocromatografico e il numero genomico di copie ottenuto tramite dPCR hanno mostrato una correlazione positiva moderata ma significativa (r = 0,536, P = 0,007); tuttavia, il titolo dell'antigene spiega solo il 29% della varianza nel numero di copie dPCR (R2 = 0,287), pertanto le due misurazioni sono correlate ma non intercambiabili. Il limite principale di questo studio è la ridotta dimensione del campione (n = 24), che limita la potenza statistica e giustifica la natura esplorativa delle soglie di classificazione utilizzate di seguito.
Questo studio ha analizzato in modo quantitativo il titolo antigienico nelle colture di H. pylori e il numero di copie di acido nucleico rilevato mediante dPCR, evidenziando una correlazione moderata ma significativa tra i risultati ottenuti con questi due metodi (r = 0.536, P = 0.007). Sebbene a livello di popolazione si osservi una correlazione significativa tra i due metodi, nella pratica clinica si riscontrano frequentemente discrepanze a livello individuale. Ciò accade perché diversi bersagli analitici riflettono tratti biologici distinti dei patogeni. In particolare, i test antigenici rilevano proteine che potrebbero persistere anche dopo l'eliminazione batterica, mentre i test di acido nucleico rilevano il DNA che può rimanere a livelli bassi anche dopo l'eradicazione dei batteri vitali. Tale discordanza è stata ampiamente documentata in diverse malattie infettive. Ad esempio, nella diagnosi clinica dell'infezione da Clostridioides difficile, alcuni portatori presentano risultati positivi nella ricerca del gene della tossina ma risultati negativi nella ricerca dell'antigene proteico della tossina, portando a una diagnosi errata di infezione e causando un trattamento eccessivo e l'insorgenza di resistenza ai farmaci. Pertanto, la Infectious Diseases Society of America (IDSA)12 ha chiaramente distinto, nelle linee guida, il significato clinico della "ricerca della tossina" e della "ricerca del gene della tossina" per Clostridioides difficile. Non è sufficiente diagnosticare l'infezione solo mediante test di acido nucleico, e si raccomanda l'adozione di metodi in grado di rilevare direttamente la tossina proteica attiva. Inoltre, nella polmonite acquisita in comunità dopo trattamento antibiotico, il carico di DNA batterico nell'espettorato del paziente diminuisce rapidamente, mentre l'antigene urinario rimane positivo dopo la guarigione e persiste per diverse settimane o mesi13. Fenomeni simili si osservano anche nella diagnosi e nel trattamento dell'infezione da H. pylori. Nel 2022, i Mayo Clinic Laboratories hanno valutato che, in 223 pazienti sottoposti a follow-up dopo trattamento antibiotico, il PCR risultava relativamente sensibile nel rilevare il DNA residuo a basso livello nei campioni fecali. Alcuni pazienti, sebbene clinicamente guariti e con risultato negativo all'antigene, presentavano ancora risultati positivi al PCR per diverse settimane14. Tutto ciò conferma ulteriormente le differenze biologiche tra diversi bersagli analitici.
In questo studio, l'identificazione di una correlazione quantitativa e di equivalenza tra il titolo antigene di H. pylori rilevato mediante metodo immunocromatografico e i valori di quantificazione ottenuti con dPCR offre indicazioni pratiche per la caratterizzazione dei materiali di riferimento per H. pylori e per la valutazione dei reagenti diagnostici in vitro. 1) Promuovere l'aggiornamento del modello di valutazione delle prestazioni del prodotto: attualmente, la valutazione clinica dei reagenti per il rilevamento dell'antigene di H. pylori prevede un confronto sincrono in cieco con i cosiddetti "standard aurei" clinici, come l'istologia, la coltura o il test del respiro al carbonio15. Questa ricerca propone che le autorità regolatorie richiedano alle aziende di fornire dati di correlazione pertinenti tra i risultati dei loro test e i metodi quantitativi basati sugli acidi nucleici all'interno della documentazione presentata durante il processo di revisione, definendo chiaramente le prestazioni dei prodotti nella "fascia di risultati discordanti", in modo da riflettere in modo più realistico la capacità di rilevamento del prodotto in scenari clinici complessi e definire in modo più completo il limite di rilevazione (LOD) del reagente. 2) Questo approccio fornisce una nuova metodologia per l'assegnazione di valori ai materiali di riferimento batterici: i materiali di riferimento per il controllo qualità e la calibrazione possono evolvere da un singolo valore espresso in "CFU" a "valori caratteristici multidimensionali"8 che includano il titolo antigene e il numero di copie di acido nucleico. Il modello di regressione sviluppato in questo studio può fornire una stima approssimativa dell'ordine di grandezza della relazione tra questi due parametri, offrendo una base quantitativa per l'utilizzo dei materiali di riferimento e per i confronti tra laboratori.
Si raccomanda che i produttori includano non solo il limite di rilevamento (LOD) in unità analitiche (ad esempio, UFC/mL o titolo dell'antigene), ma anche il suo equivalente in copie genomiche—determinato mediante PCR digitale (dPCR)—in modo che i risultati possano essere confrontati e allineati tra laboratori e piattaforme diverse. La segnalazione con doppia unità di misura è conforme ai requisiti di tracciabilità metrologica della norma ISO 175118 e al framework di valutazione della capacità di rilevamento del documento CLSI EP17-A216.
Le possibili ragioni per la comparsa di campioni con "basso antigene–alto acido nucleico" sono le seguenti: 1) Variazione genetica del ceppo: se l'amminoacido nell'epitopo antigenico viene sostituito o se la proteina di secrezione viene bloccata durante il trasporto e la secrezione, può verificarsi un fenomeno di "evasione" nella rilevazione dell'antigene17. 2) La dPCR è stata progettata per amplificare sequenze geniche conservate. Il gene specifico bersaglio della dPCR in questo studio non è stato indicato nella documentazione del produttore. Tuttavia, i kit commerciali per la rilevazione degli antigeni possono riconoscere diversi antigeni di H. pylori (ad esempio VacA, ureasi, proteine flagellari o antigeni di cellula intera), e ogni discrepanza tra il gene bersaglio della dPCR e l'antigene riconosciuto da un determinato kit potrebbe manifestarsi come una discordanza quantitativa nei quattro quadranti del grafico a dispersione—alta dPCR/basso antigene, bassa dPCR/alto antigene, concordanza alta-alta o concordanza bassa-bassa—piuttosto che come semplice discrepanza binaria positivo/negativo18. 3) Limitazioni del metodo di rilevazione: la tecnologia di rilevazione degli antigeni è limitata da concentrazioni estremamente basse o estremamente elevate di antigeni, che possono indebolire il segnale a causa di un'affinità insufficiente con gli anticorpi o di un'eccessiva saturazione, ed è inoltre influenzata dalla matrice del campione. 4) Asimmetria nelle prestazioni del limite di rilevazione: il limite inferiore di rilevazione (LOD) della dPCR può raggiungere 10–100 copie/mL, mentre il limite di rilevazione del metodo immunocromatografico colloidale per l'ureasi è di circa 104–105 UFC/mL. Quando la quantità batterica si trova in prossimità del valore critico, è probabile che si verifichi il fenomeno del "basso antigene–alto acido nucleico". 5) L'influenza dello stato di infezione sugli esiti clinici è significativa, in particolare nella distinzione tra infezioni batteriche e virali. Nel corso dell'infezione, il numero di copie geniche e il livello di espressione dell'antigene non mostrano una relazione costante. Dopo un trattamento efficace, i livelli di acido nucleico possono diminuire rapidamente, mentre l'eliminazione dell'antigene può essere ritardata per un certo periodo di tempo19.
Le sospensioni batteriche utilizzate in questo studio sono state ottenute sia da campioni bioptici gastrici che da campioni fecali, rappresentando ambienti matriciali distinti con diversi profili di interferenza. Gli isolati derivati da biopsie gastriche sono in gran parte privi di inibitori della PCR associati alle feci, ma possono essere soggetti a esposizione residua alla pepsina durante l'elaborazione del campione. Al contrario, i campioni fecali contengono inibitori della PCR (ad esempio, sali biliari, polisaccaridi complessi, prodotti di degradazione dell'emoglobina) che possono ridurre l'efficienza dell'amplificazione e portare a una sottostima della quantificazione mediante dPCR, nonché proteasi intestinali che potrebbero degradare gli antigeni bersaglio anche quando il DNA batterico rimane integro. Questi effetti specifici della matrice agiscono indipendentemente dai meccanismi di disallineamento della regione bersaglio descritti in precedenza e indicano che i protocolli di preparazione e la validazione dei metodi dovrebbero essere adattati al tipo di campione quando si interpretano discordanze quantitative tra diversi campioni clinici.
Per quantificare sperimentalmente il rapporto tra batteri vitali e non vitali dopo l'inattivazione termica, è stata eseguita una PCR di vitalità utilizzando un sistema di reagenti per PCR di vitalità su tutti e 24 gli isolati coltivati. Questo reagente funziona in modo analogo al monoesoazide di propidio (PMA): penetra selettivamente nelle cellule con membrane compromesse e modifica covalentemente il loro DNA genomico, impedendone la successiva amplificazione. La percentuale di batteri vitali è stata calcolata con la formula: Percentuale vitale = (copie di DNA/µL trattate con il reagente di vitalità (VR)) / (copie di DNA/µL senza VR) × 100. Per tutti gli isolati, la frazione mediana vitale dopo l'inattivazione termica è stata del 4,6% (intervallo: 0,00%–33,0%), confermando che la nostra inattivazione termica a 56 °C per 25 minuti riduce drasticamente la vitalità batterica senza tuttavia eliminare completamente gli organismi vitali. Questi dati di vitalità sostengono fortemente l'interpretazione secondo cui i profili discordanti con alta dPCR e basso titolo di antigene derivano principalmente da DNA cellulare libero e da DNA all'interno di particelle batteriche non vitali, piuttosto che da H. pylori vitali e integri. I risultati completi della quantificazione della vitalità per tutti e 24 i ceppi sono riassunti nella Tabella Supplementare 2.
In questo studio, la classificazione in quattro quadranti (basata su soglie esplorative specifiche per il dataset) ha rivelato che 8 campioni presentavano un alto livello di antigene e un basso contenuto di acido nucleico, e che 4 campioni appartenevano alla categoria basso antigene–basso acido nucleico, insieme a 9 categorie concordanti alto–alto e 3 basso–alto. La presenza di campioni con alto antigene e basso acido nucleico (n = 8) suggerisce che l'espressione dell'antigene e il contenuto di acido nucleico non corrispondono sempre, anche in colture pure. Tutti e 24 gli isolati sono stati raccolti nella fase stazionaria della crescita (coltura di 72 h; vedere la sezione 1 del Protocollo). Nella fase stazionaria, la replicazione del DNA è pressoché cessata, mentre gli antigeni strutturali e metabolici persistono o addirittura continuano ad accumularsi; questa disaccoppiamento legato alla fase di crescita offre una plausibile base biologica per l'asimmetria tra la numerosa classe con alto antigene e basso acido nucleico (n = 8) e la piccola classe con basso antigene e alto acido nucleico (n = 3), anche se da sola non esclude altri meccanismi, come differenze tra ceppi nell'espressione degli antigeni o una lisi parziale durante l'inattivazione termica. L'esistenza di campioni con basso antigene e alto acido nucleico (n = 3) conferma che un basso titolo di antigene non corrisponde inevitabilmente a un basso carico di acido nucleico, dimostrando che il test degli acidi nucleici integra il test degli antigeni in specifici scenari. Queste soglie sono esplorative e specifiche per il dataset, e non rappresentano criteri diagnostici clinici validati.
Lo studio è limitato dalla piccola dimensione del campione (n = 24), che determina un'insufficiente potenza statistica per sostenere un'analisi robusta di sottogruppi. Il campione è stato suddiviso in sei gruppi in base al titolo, con una media di soli 4 campioni per gruppo, pertanto i confronti formali tra gruppi non dispongono di potenza statistica sufficiente per rilevare differenze significative. Per questo motivo, non è stato applicato il test di Kruskal-Wallis, al fine di evitare la presentazione di risultati statistici inferenziali con potenza insufficiente. Inoltre, tutti i campioni erano isolati coltivati e non coprivano gli effetti di matrice più complessi riscontrabili in campioni clinici come mucosa gastrica, feci o saliva.
Dichiarazioni
Gli autori non hanno nulla da dichiarare.
Nessuno strumento di intelligenza artificiale è stato utilizzato nella stesura, modifica, analisi statistica, sviluppo di codice o preparazione delle figure di questo manoscritto.
CONTRIBUTI DEGLI AUTORI:
Tutti gli autori hanno confermato i rispettivi contributi a questo lavoro. I ruoli individuali degli autori sono elencati di seguito. Tutti gli autori hanno letto e approvato il manoscritto finale sottoposto e si assumono piena responsabilità per l'accuratezza e l'integrità dei dati di ricerca. Wenwen Sun: Indagine, Cura dei dati, Analisi formale, Metodologia, Stesura della bozza, Acquisizione di fondi; Xiaona Han: Indagine, Metodologia; Jin Zhang: Indagine, Metodologia; Xinxin Duan: Indagine, Metodologia; Tingting Li: Concettualizzazione, Supervisione; Manyu Li: Concettualizzazione, Supervisione, Revisione e modifica della stesura; Haiwei Zhou: Concettualizzazione, Supervisione, Revisione e modifica della stesura.
Ringraziamenti
Questo studio è finanziato dalla Youth Development Research Foundation degli Istituti Nazionali per il Controllo dei Farmaci (NIDC) (numero di concessione 2025C5).
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| Mixaggio maestro per probe dPCR 2X Plus (Rox) | Sniper | RT021096A | Reagente per rilevamento quantitativo PCR digitale |
| Kit per estrazione di DNA genomico batterico | Tiangen Biochemical Technology (Beijing) Co., Ltd. | Y2213/DP302-02 | Estrazione di acidi nucleici batterici |
| Sistema Bio-Rad QX200 Droplet Digital PCR | Jiangsu Bioperfectus Technologies Co., Ltd. | QX200 | Rilevamento quantitativo PCR digitale |
| Macchina integrata PCR digitale | Sniper | DQ24 | Rilevamento quantitativo PCR digitale |
| Macchina integrata PCR digitale | Ustar Biotechnologies (Hangzhou) Ltd. | DQ24 | Rilevamento quantitativo PCR digitale |
| Bagno termostatato digitale | Yiheng Scientific Instrument Co., Ltd. | DK-8D | Inattivazione termica di sospensioni batteriche a 56 °C |
| Primer forward | Sangon Biotechnology (Shanghai) Co., Ltd. | / | Amplificazione di acidi nucleici mediante PCR digitale |
| Kit per rilevamento dell'antigene gastrico di Helicobacter pylori (metodo a oro colloidale) | Shanghai Chemtron Biotech Co., Ltd. | B202301020 | Rilevamento dell'antigene di H. pylori |
| Mezzo agar per Helicobacter pylori (solido) | Qingdao Haibo Biotechnology Co., Ltd. | HB8647 | Mezzo di coltura per H. pylori |
| Kit per rilevamento dell'antigene di Helicobacter pylori (metodo a oro colloidale) | Bioneovan Co., Ltd. | 202403001 | Rilevamento dell'antigene di H. pylori |
| Kit per rilevamento dell'antigene di Helicobacter pylori (metodo a oro colloidale) | Jiangsu Mole Bioscience Co., Ltd. | 20240310 | Rilevamento dell'antigene di H. pylori |
| Kit per rilevamento dell'antigene di Helicobacter pylori (metodo a oro colloidale) | Hangzhou Genesis Biodetection & Biocontrol Ltd. | GG230601021 | Rilevamento dell'antigene di H. pylori |
| Kit per rilevamento dell'antigene di Helicobacter pylori (metodo a oro colloidale) | Jiangsu Cowin Biotech Co., Ltd. | 28223 | Rilevamento dell'antigene di H. pylori |
| Kit per rilevamento dell'antigene di Helicobacter pylori (metodo a oro colloidale) | Beijing Core Technology Co., Ltd. | 2415810 | Rilevamento dell'antigene di H. pylori |
| Reagente per rilevamento dell'antigene di Helicobacter pylori (metodo immunocromatografico) | Guangzhou Wondfo Biotech Co., Ltd. | W028402001 | Rilevamento dell'antigene di H. pylori |
| Reagente per rilevamento dell'antigene di Helicobacter pylori (metodo al lattice) | ABON Biopharm (Hangzhou) Co., Ltd. | 0000805308 | Rilevamento dell'antigene di H. pylori |
| Incubatore Heracell Tri-Gas | Thermo Fisher Scientific | N/A | Coltura microaerobica; composizione del gas: 5% O2, 10% CO2, 85% N2 |
| Provette microcentrifuga (1,5 mL / 2 mL) | Axygen Scientific Inc. | MCT-150-C / MCT-200-C | Diluizione del campione ed estrazione di acidi nucleici |
| Reagenti per estrazione o purificazione di acidi nucleici | Jiangsu Bioperfectus Technologies Co., Ltd. | SDK60105 | Estrazione di acidi nucleici batterici |
| Reagente per estrazione di acidi nucleici | TargetingOne | Pathogens TNA-B1 (11019) | Estrazione di acidi nucleici batterici |
| PBS, 1X (pH 7,2-7,4, 0,01 M, colture cellulari) | Solarbio Science & Technology Co., Ltd. | P1020 | Diluizione del campione |
| Piastre di Petri (90 mm) | Beekman Biotech | N/A | Piastre sterili per isolamento e subcoltura batterica |
| Punte per pipetta (10 µL / 200 µL / 1000 µL) | Axygen Scientific Inc. | T-300 / T-200-Y / T-1000-B | Punte sterili filtrate per diluizione del campione ed erogazione di reagenti |
| Probe | Sangon Biotechnology (Shanghai) Co., Ltd. | / | Amplificazione di acidi nucleici mediante PCR digitale |
| Primer reverse | Sangon Biotechnology (Shanghai) Co., Ltd. | / | Amplificazione di acidi nucleici mediante PCR digitale |
| Piattaforma online di analisi statistica SPSSPRO | SPSSPRO | Basata su web (https://www.spsspro.com/; accesso agosto 2026) | Analisi statistica: correlazione di Pearson, regressione lineare |
| Sangue di pecora sterile defibrinato | Solarbio Science & Technology Co., Ltd. | TX0030-100 mL | Supplemento per piastre di coltura di H. pylori |
| Sistema TD-1 PCR Digitale | TargetingOne | TD-1 | Rilevamento quantitativo PCR digitale |
| Sistema di reagenti per PCR di vitalità | Promega | A8881 | Valutazione mediante PCR di vitalità di H. pylori inattivato termicamente |
| Mixer a vortice | Scientific Industries Inc. | SI-0256 | Omotomizzazione di sospensioni batteriche |
Riferimenti
- Ndip RN, et al. Helicobacter pylori isolates recovered from gastric biopsies of patients with gastro-duodenal pathologies in Cameroon: current status of antibiogram. Trop Med Int Health. 2008;13(6):848-54.
- Malfertheiner P, et al. Management of Helicobacter pylori infection: the Maastricht VI/Florence consensus report. Gut. 2022;71(9):1724-62.
- Hooi JKY, et al. Global prevalence of Helicobacter pylori infection: systematic review and meta-analysis. Gastroenterology. 2017;153(2):420-9.
- International Agency for Research on Cancer. Schistosomes, liver flukes and Helicobacter pylori. IARC Monogr Eval Carcinog Risks Hum. 1994;61:1-241.
- de Martel C, et al. Global burden of cancer attributable to infections in 2018: a worldwide incidence analysis. Lancet Glob Health. 2020;8(2):e180-90.
- Wang YK, et al. Diagnosis of Helicobacter pylori infection: current options and developments. World J Gastroenterol. 2015;21(40):11221-35.
- Hindson BJ, et al. High-throughput droplet digital PCR system for absolute quantitation of DNA copy number. Anal Chem. 2011;83(22):8604-10.
- International Organization for Standardization. ISO 17511:2020, In vitro diagnostic medical devices—requirements for establishing metrological traceability of values assigned to calibrators, trueness control materials and human samples. International Organization for Standardization; Geneva; 2020.
- Morisset D, et al. Quantitative analysis of food and feed samples with droplet digital PCR. PLoS One. 2013;8(5):e62583.
- World Health Organization. WHO international standard for SARS-CoV-2 RNA, NIBSC code 20/146. World Health Organization; Geneva; 2020.
- Forootan A, et al. Methods to determine limit of detection and limit of quantification in quantitative real-time PCR (qPCR). Biomol Detect Quantif. 2017;12:1-6.
- Johnson S, et al. Clinical practice guideline by the Infectious Diseases Society of America (IDSA) and Society for Healthcare Epidemiology of America (SHEA): 2021 focused update guidelines on management of Clostridioides difficile infection in adults. Clin Infect Dis. 2021;73(5):e1029-44.
- Hyams C, Williams OM, Williams P. Urinary antigen testing for pneumococcal pneumonia: is there evidence to make its use uncommon in clinical practice? ERJ Open Res. 2020;6(1):00223-2019.
- Marrero Rolon R, et al. Erratum for Marrero Rolon et al., “Clinical evaluation of a real-time PCR assay for simultaneous detection of Helicobacter pylori and genotypic markers of clarithromycin resistance directly from stool.” J Clin Microbiol. 2022;60(2):e0245221.
- China Food and Drug Administration. Technical review guidelines for registration of Helicobacter pylori antigen/antibody detection reagents. China Food and Drug Administration; Beijing; 2018.
- Clinical and Laboratory Standards Institute. EP17-A2, Evaluation of detection capability for clinical laboratory measurement procedures; approved guideline. 2nd ed. Clinical and Laboratory Standards Institute; Wayne, PA; 2012.
- Yamaoka Y, Graham DY. Helicobacter pylori virulence and cancer pathogenesis. Future Oncol. 2014;10(8):1487-500.
- Leal YA, et al. Utility of stool sample-based tests for the diagnosis of Helicobacter pylori infection in children. J Pediatr Gastroenterol Nutr. 2011;52(6):718-28.
- Devonshire AS, et al. The use of digital PCR to improve the application of quantitative molecular diagnostic methods for tuberculosis. BMC Infect Dis. 2016;16:366.