Questo articolo descrive protocolli dettagliati per la gestione di una colonia di laboratorio di Carausius morosus, inclusi procedimenti chiave per l'allevamento degli animali, la manipolazione delle uova, le cure ai nascituri, metriche rappresentative delle prestazioni e una panoramica sulla durata della vita e sulle caratteristiche biologiche della specie.
Articolo metodologico
Un protocollo standardizzato per l'allevamento di Carausius morosus (Phasmatodea, Insecta) in condizioni di laboratorio
In questo articolo
Sommario
Abstract
Carausius morosus, l'insetto stecco indiano, è un insetto slanciato simile a un rametto, endemico dell'India. Sebbene sia stato ampiamente introdotto in cattività in tutto il mondo ed utilizzato comunemente nei laboratori o allevato come animale domestico, mancano protocolli standardizzati di allevamento in laboratorio. Qui riportiamo le condizioni dettagliate di coltura in laboratorio per C. morosus. Manteniamo le scorte a 23 °C, umidità relativa del 70% e fotoperiodo 12:12 h luce-buio. Questa coltura è stata mantenuta con successo in queste condizioni per oltre due anni, con protocolli standardizzati per l'alimentazione e l'allestimento delle gabbie. Riportiamo inoltre metodi per la cura di uova e nidiacei per sostenere esperimenti in corso con C. morosus. Nelle nostre condizioni di coltura, 105 lotti monitorati di uova deposte nello stesso periodo di 24 ore sono schiusi entro un intervallo costante di 12 giorni, e il 13,9% delle nateiole ha raggiunto con successo l'età adulta. Questi metodi standardizzati migliorano la riproducibilità e l'accessibilità, permettendo un uso più ampio di C. morosus come sistema modello in laboratorio per un'ampia gamma di studi, inclusi analisi dello sviluppo, del comportamento e della fisiologia.
Introduzione
Con l'aumentare dell'interesse verso sistemi modello alternativi non mammiferi, gli insetti offrono l'opportunità di esplorare un'ampia varietà di diversità biologica, fornendo al contempo modelli di ricerca a costo ridotto, esigenze di allevamento più semplici e minori ostacoli normativi rispetto ai modelli mammiferi1. I sistemi modello emergenti a base di insetti permettono di indagare fenomeni biologici unici, come ad esempio la partenogenesi negli insetti bastone del tipo Carausius morosus (Sinéty, 1901)2. Mentre il moscerino della frutta Drosophila melanogaster ha plasmato la nostra comprensione dei processi dello sviluppo e genetici fin dal principio del XX secolo3, altri sistemi modello a base di insetti come C. morosus rappresentano un'opportunità unica non soltanto per la biologia dello sviluppo, ma anche per lo studio del controllo motorio, della locomozione e dei sistemi regolati da neuroormoni4.
Inoltre, nel campo della biologia evolutiva dello sviluppo, gli insetti emimetaboli (a sviluppo diretto) rimangono sottorappresentati, con l'insetto D. melanogaster, che presenta sviluppo ometabolo (indiretto o con metamorfosi), come modello meglio studiato. Studiare specie di insetti a sviluppo diretto come C. morosus, che attraversa diverse mute ninfali prima di raggiungere la maturità sessuale5, ci permette di colmare importanti lacune filogenetiche nella ricerca di biologia evolutiva dello sviluppo. Ciò consente il confronto tra insetti emimetaboli e ometaboli, i quali si sono separati precocemente nell'evoluzione degli insetti ma non sono attualmente rappresentati in modo equilibrato nei modelli di laboratorio. L'uso più ampio di C. morosus come organismo di laboratorio è stato finora limitato da condizioni di allevamento inconsistenti e non riproducibili e dalla mancanza di parametri chiari per lo sviluppo e la sopravvivenza. Qui presentiamo un protocollo passo dopo passo con condizioni di coltura definite e risultati attesi, applicabile in diversi laboratori, che supporta molteplici applicazioni, tra cui il tracciamento dell'embriogenesi, lo studio longitudinale dello sviluppo e esperimenti sulla produttività riproduttiva.
C. morosus è facile da allevare in cattività, rendendolo particolarmente adatto sia alla ricerca di laboratorio sia agli ambienti didattici. La sua capacità di riprodursi per partenogenesi6 elimina la necessità di allestimenti complessi per l’accoppiamento, riducendo le esigenze di manutenzione e semplificando la gestione delle popolazioni. Sebbene un allevamento ottimale traggua beneficio da condizioni ambientali controllate, la gestione dell’animale rimane semplice ed economica rispetto a molti altri modelli di laboratorio. C. morosus si nutre facilmente di materiale vegetale comune, come edera (Hedera helix), rovo (Rubus fruticosus) o foglie di rosa (Rosa spp.). Altri vantaggi di questo sistema includono l’autotomia, la capacità di rigenerare le zampe7, le dimensioni corporee elevate e la possibilità di nutrirsi su una varietà di piante ospiti. Tuttavia, questa specie presenta anche alcune limitazioni, tra cui l’assenza di una sequenza genomica disponibile pubblicamente, un tempo di sviluppo relativamente lungo e un exocorio embrionale duro che può rendere difficili le iniezioni8. Nonostante questi limiti, C. morosus rappresenta un modello pratico ed efficace per applicazioni sia di ricerca sia didattiche.
Protocolli standardizzati per l'allevamento di C. morosus sono fondamentali per ottenere risultati costanti e riproducibili negli studi di ricerca. Sebbene siano stati riportati in letteratura diversi studi di laboratorio su C. morosus6,9,10,11,12, per quanto ne sappiamo, ad oggi non sono stati pubblicati protocolli dettagliati per l'allevamento in laboratorio di C. morosus. In questo studio, abbiamo stabilito con successo un insieme completo di protocolli standardizzati per le colture di C. morosus in laboratorio, inclusi l'allevamento di uova, di nidiacei e di adulti riproduttivamente maturi. Con questi metodi, intendiamo rendere questo insetto più accessibile alla più ampia comunità scientifica della biologia.
Protocollo
1. Environmental rearing conditions
- Maintain the laboratory culture in a climate-controlled room or incubator with environmental settings as follows: 23 °C, relative humidity 70%, light-dark photoperiod of 12:12 h.
NOTE: Under these conditions, C. morosus eggs are expected to hatch approximately 74-80 days after being laid.
2. Establishment and maintenance of mesh enclosures
NOTE: Mesh insect enclosures with fabric mesh ventilation on three sides are recommended for housing C. morosus. An enclosure measuring 61 x 61 x 91.5 cm is suitable for maintaining up to 50 adults or, when establishing a new colony, up to 500 hatchlings.
- Select a mesh enclosure of appropriate size. Ensure the container is clean and free of debris before introducing the animals.
- For establishing a new colony using mature adults, place 25–50 adult females into a clean 61 cm x 61 cm x 91.5 cm mesh enclosure.
NOTE: Mesh openings should be in the range of 0.2–1.0 mm to prevent escape of the small first instar hatchlings. - For establishing a new colony using hatchlings, transfer up to approximately 500 hatchlings into a clean 61 cm x 61 cm x 91.5 cm mesh enclosure.
3. Feeding and maintenance
- During cage cleanings, let the insects stay in the enclosure; gently take them off foliage and place them on the bottom of the mesh enclosure while cleaning around them.
NOTE: Expect cleaning to take roughly 10–20 min per cage. - Provide fresh foliage such as ivy, bramble, or rose once per week. Ensure all plant material is pesticide-free. Wash foliage with tap water prior to addition to cages to remove surface debris and contaminants.
- Trim stems to fit vessels (small jars or bottles) filled with tap water to maintain leaf hydration. Place the prepared foliage inside the enclosure, making sure leaves are elevated and accessible to the insects. Carefully close the enclosure after placement.
- During weekly cage cleanings, remove wilted or dried foliage and any accumulated excrement from the bottom of the enclosure.
NOTE: Replace foliage when leaves show signs of dehydration, such as dryness, brittleness, wilting, or discoloration. Maintaining a clean environment is essential for colony health and well-being. - Lightly mist each enclosure daily with 1–2 sprays of tap water from a 250 mL spray bottle to ensure proper hydration.
NOTE: This is especially crucial on the first day post-hatching. Reduce density if rapid food depletion occurs.
4. Collection and maintenance of Carausius morosus hatchlings
NOTE: In this study, we use “hatchling” to refer to individuals immediately after emerging from the egg (first instar), while “nymph” refers to juvenile stages following postembryonic molts.
- Gather 6 cm Petri dishes with newly emerged hatchlings.
- Using blunt plastic forceps, gently transfer no more than 500 hatchlings into a clean 61 cm x 61 cm x 91.5 cm mesh enclosure.
NOTE: Collect only fully emerged, stretched out nymphs that have completed exoskeleton expansion. Disturbing the nymphs before they have fully emerged from the egg may impair body extension and lead to premature death. For similar reasons, try to minimize direct handling of nymphs following transfer to the mesh enclosure. - Provide fresh foliage as described in section 3.
- Label new colony enclosures with the following information: egg batch collection date(s), date of hatching or range of hatching dates, and number of hatchlings added.
NOTE: This tracks enclosure age and predicts the start of reproductive maturity. - Lightly mist each enclosure immediately after hatchling transfer, and daily thereafter, with 1–2 sprays of tap water from a 250 mL spray bottle to ensure proper hydration.
NOTE: This is especially crucial on the first day post-hatching. Hatchlings may remain in the same enclosure throughout development until adulthood. Under the laboratory conditions described in section 1, approximately 13% of hatchlings survive to adulthood in 4–5 months (Table 1). - Remove any dead or damaged hatchlings during weekly cage cleaning to prevent contamination.
5. Collection and maintenance of C. morosus eggs
- Open an enclosure containing adult females.
- Using a gloved hand, gently sweep the substrates on the bottom of the cage, which contain both eggs and fecal matter, towards the front opening.
- Carefully transfer the material using a gloved hand to a 15 cm Petri dish for egg retrieval.
6. Termination of insects and disposal of enclosure waste
NOTE: When C. morosus are no longer needed for experiments, have died, or eggs are not required:
- Euthanasia/Disposal of insects: Transfer live or dead insects no longer needed for culture or experiments into an autoclavable waste bag, and store in a -20 °C freezer for at least 72 h.
- Egg destruction: To prevent overpopulation, remove any eggs not used for experiments from cages or Petri dishes, place them in an autoclavable waste bag, and store at -20 °C for at least 72 h.
- Waste handling: Place any contaminated waste from enclosures or materials used for egg or insect collection in an autoclavable waste bag, and store at -20 °C for at least 72 h.
- After freezing materials, transfer the autoclavable waste bag to a biohazard bin for proper disposal.
NOTE: As C. morosus is an invasive species outside of India, it is crucial that all materials are properly disposed of as described above to prevent accidental release into the environment.
7. Egg retrieval
- Using blunt plastic forceps, carefully pick up each egg and place it into a clean 6 cm Petri dish.
NOTE: Mature eggs are protected by a hardened exochorion and are dark brown, resembling plant seeds. Using a white background can help differentiate droppings from eggs when sorting. - Label the dish with the date and time of collection for tracking purposes. Keep the lid off during incubation to allow ventilation.
NOTE: A 6 cm Petri dish is sufficient for storing up to 200 eggs. - Approximately 1 week before the expected hatching window (74–80 days after egg laying; Kovacikova & Extavour, unpublished data), replace the Petri dish cover.
- Begin daily monitoring of egg containers before the expected hatching date to observe emerging hatchlings.
8. Life expectancy
- After hatching, monitor individuals as they undergo five to six molts before reaching reproductive maturity, which under the laboratory conditions described in Section 1, happens on average 139 days after hatching (Table 1).
- To follow this protocol, define developmental timing under these culture conditions as follows: embryogenesis duration (egg laying to hatching) is 74–80 days; time from hatching to sexual maturity (onset of oviposition) is approximately 135 days, corresponding to approximately 200 days from egg laying to sexual maturity, and total lifespan from egg laying to death is approximately 9.5 months.
Risultati
Abbiamo raccolto dati che documentano l’allevamento di successo in laboratorio di C. morosus dalle uova fino all’età adulta riproduttivamente matura tra settembre 2024 e novembre 2025. Durante questo periodo di 14 mesi, abbiamo allestito, mantenuto e monitorato cinque gabbie per uno o più dei seguenti parametri: mortalità degli adulti, uova deposte, tempistica della schiusa delle uova e sopravvivenza delle neoschiuse fino all’età adulta. Il nostro metodo consente il mantenimento a lungo termine della colonia senza segni evidenti di malattie correlate a patogeni o declino riproduttivo, entrambi fattori che costituirebbero esiti non ottimali. Durante oltre due anni di coltura continua, non abbiamo osservato decessi di massa chiaramente legati a patogeni, e la produzione di uova e di neoschiuse è rimasta stabile attraverso le generazioni.
I dati mostrati nella Figura 1 e nella Figura 2 presentano osservazioni relative alle cinque gabbie monitorate, dal montaggio fino all'età adulta dei nati, inclusi le uova deposte e la mortalità degli adulti per ciascuna gabbia. Dopo che gli individui fondatori in ciascuna gabbia hanno raggiunto la maturità sessuale e hanno iniziato a deporre le uova, abbiamo registrato il numero di adulti presenti in ciascuna gabbia per stabilire la popolazione iniziale all'inizio della ovodeposizione. Il numero di adulti in ciascuna gabbia nel tempo è riportato nella Figura 1 e nella Tabella 1. Interpretiamo il declino costante della sopravvivenza come mortalità legata all'età.
Abbiamo monitorato parallelamente la produzione di uova nelle stesse cinque gabbie osservate per la sopravvivenza degli adulti (Figura 1 e Figura 2). Il numero giornaliero di uova per gabbia è stato più elevato durante i primi 30–50 giorni di deposizione e successivamente è diminuito gradualmente. Sebbene la produzione totale di uova vari tra le gabbie (Tabella 2), questo andamento generale si è mantenuto costante in tutte e cinque le gabbie replicate. Abbiamo monitorato la dinamica di schiusa delle uova per un periodo di 50 giorni su un totale di 105 gruppi di uova, dove ciascun gruppo rappresenta un insieme di uova deposte nella stessa gabbia entro un periodo di 24 ore. Per le analisi sulla dimensione dei gruppi mostrate in Figura 3, 75 gruppi sono stati suddivisi in categorie di piccole, medie e grandi dimensioni. Abbiamo osservato che, una volta schiuso il primo uovo di un gruppo, il completamento della schiusa del 90% veniva raggiunto entro 12 giorni dall'emergenza del primo nato (Figura 3D), indipendentemente dalla dimensione del gruppo (Figura 3B). Utilizzando il termine “completamento della schiusa” per descrivere la proporzione di uova in un gruppo che si sono schiuse entro un determinato intervallo di tempo successivo all'emergenza del primo nato, notiamo che la distribuzione dei gruppi in base al giorno in cui si raggiunge il 90% di schiusa indica che la maggior parte dei gruppi supera questa soglia tra i giorni 10 e 14 dalla schiusa (Figura 3C) dopo l'emergenza del primo nato.
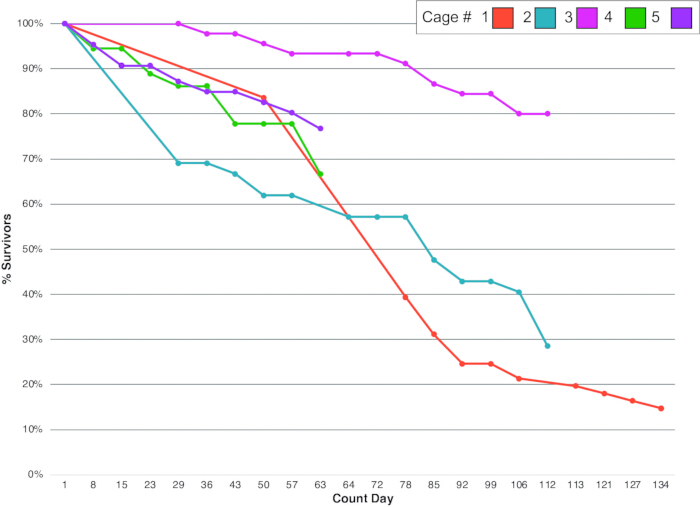
Figura 1. Dinamica della mortalità degli adulti. Traiettorie di sopravvivenza in cinque gabbie sperimentali replicate di C. morosus nel tempo. La percentuale di sopravvivenza è riportata in funzione del tempo per gli individui di ciascuna gabbia monitorata. Vedere le metriche riassuntive nella Tabella 1. Cliccare qui per visualizzare una versione ingrandita di questa figura.
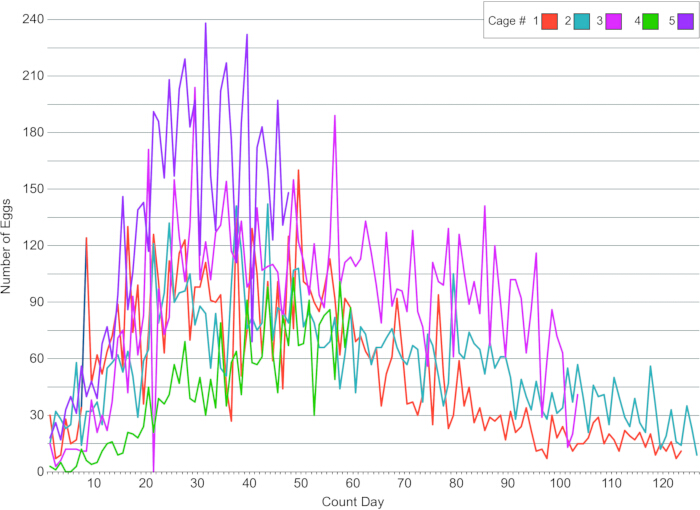
Figura 2. Dinamica della produzione di uova. Numero di uova raccolte dalle stesse cinque gabbie monitorate nella Figura 1. Le gabbie da 1 a 5 sono state monitorate giornalmente per 47, 58, 106, 129 e 132 giorni, rispettivamente. Il grafico mostra i dati relativi ai primi 126 giorni di ovodeposizione. Vedere le metriche riassuntive nella Tabella 2. Cliccare qui per visualizzare una versione ingrandita di questa figura.
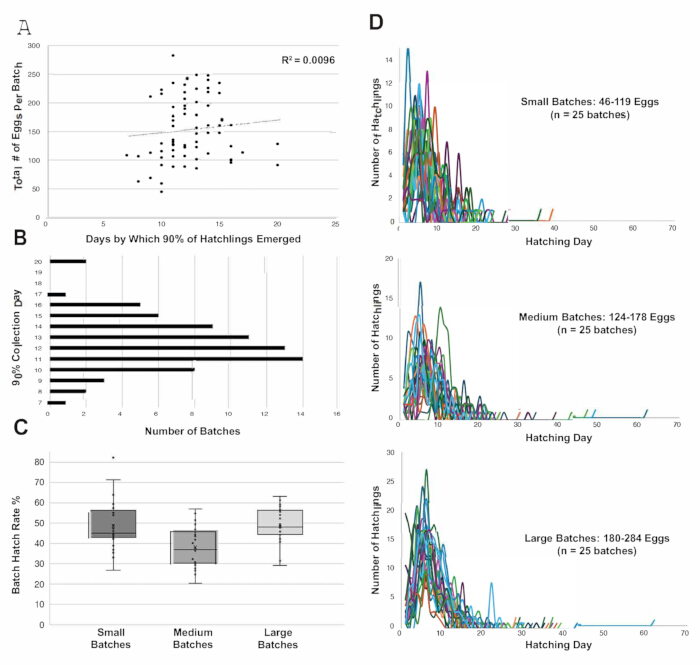
Figura 3. Dinamiche di schiusa delle uova. (A) Relazione tra il numero totale di uova per covata e il numero di giorni necessari per raggiungere il completamento della schiusa al 90%. (B) Distribuzione delle covate di uova in base al giorno in cui hanno raggiunto il completamento della schiusa al 90% nei giorni di schiusa dal 7 al 20. (C) Distribuzione della velocità di schiusa per covata tra covate di uova di piccole, medie e grandi dimensioni. n = 25 covate per categoria di dimensione della covata. (D) Traiettorie di schiusa durante un periodo di raccolta di 70 giorni per le 75 covate di uova utilizzate nell'analisi della dimensione della covata. Un totale di 105 covate di uova è stato monitorato; per le analisi mostrate qui, 75 covate sono state raggruppate in base al numero totale di uova utilizzando cutoff basati sui terzili. Cliccare qui per visualizzare una versione ingrandita di questa figura.
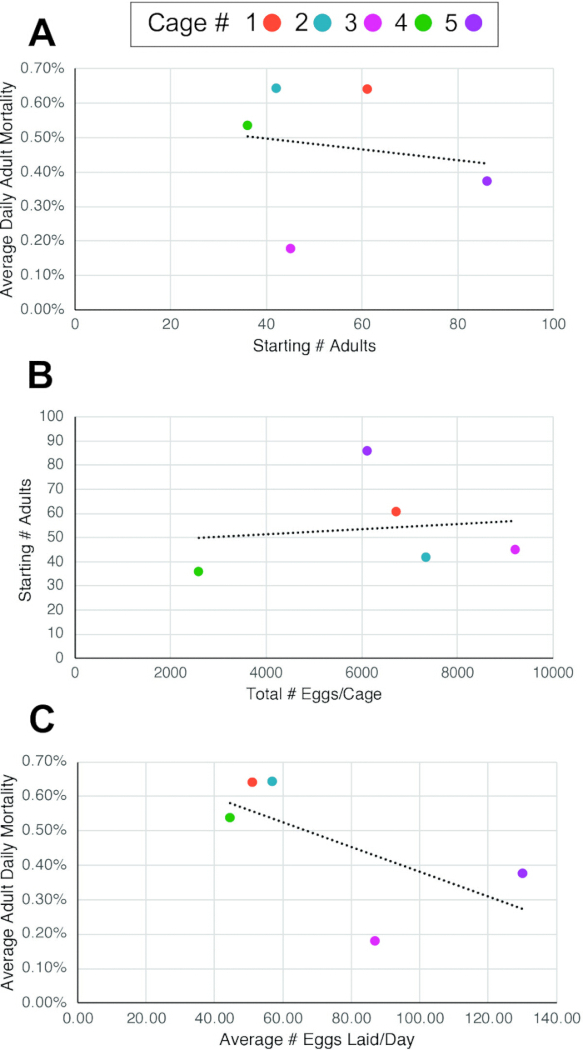
Figura 4. Relazioni tra numero di adulti, mortalità degli adulti e produzione di uova per gabbia. (A) Non esiste una relazione significativa (R2 = 0,025) tra la mortalità media giornaliera degli adulti e il numero di adulti fondatori in una gabbia. (B) Non esiste una relazione significativa (R2 = 0,017) tra la produzione totale di uova e il numero di adulti fondatori in una gabbia. (C) Esiste una correlazione negativa moderata (R2 = 0,411) tra la produzione media giornaliera di uova e la mortalità media giornaliera degli adulti. Mortalità media giornaliera degli adulti = (% mortalità totale) / (numero totale di giorni di monitoraggio). Cliccare qui per visualizzare una versione ingrandita di questa figura.
| Numero della gabbia # | vecchia gabbia n. | Schiusa del primo giorno cuccioli aggiunti alla gabbia fondatrice | Schiusa dell'ultimo giorno piccoli aggiunti alla gabbia dei fondatori | # Schiusa neonati aggiunti alla gabbia | Intervallo di giorni di schiusa furono aggiunti | Tempo Medio tra l'Inizio della Gabbia e il Conteggio degli Adulti # | Primo giorno del conteggio degli adulti | Primo giorno in cui gli adulti hanno iniziato a deporre uova | Tempo trascorso tra la schiusa e l'età adulta | Tempo trascorso tra la schiusa e la deposizione delle uova | Numero iniziale di adulti | Sopravvivenza dai nati adulti cappa | Ultimo giorno del conteggio degli adulti | Numero finale di adulti | Durata del tempo in cui l'adulto # è stato monitorato [gioni] | Mortalità media degli adulti durante il periodo monitorato [%] | Mortalità giornaliera media negli adulti [%] |
| 1 | 7 | 12/7/ 2024 | 12/21/ 2024 | ND | 14.00 | 166.00 | 5/29/ 2025 | 5/29/ 2025 | 173.00 | 173.00 | 61.00 | ND | 10/9/ 2025 | 9.00 | 133.00 | 85.25% | 0.64% |
| 2 | 8 | 2/10/ 2025 | 3/9/ 2025 | ND | 27.00 | 130.00 | 7/17 /2025 | 7/17/ 2025 | 157.00 | 157.00 | 42.00 | ND | 11/5/ 2025 | 12.00 | 111.00 | 71.43% | 0.64% |
| 3 | 9 | 4/5/ 2025 | 4/12/ 2025 | ND | 7.00 | 110.00 | 7/17/ 2025 | 7/27/ 2025 | 103.00 | 113.00 | 45.00 | ND | 11/5/ 2025 | 36.00 | 111.00 | 20.00% | 0.18% |
| 4 | 10 | 5/8/ 2025 | 5/22/ 2025 | 350 | 14.00 | 121.00 | 9/4/ 2025 | 9/13/2 025 | 119.00 | 128.00 | 36.00 | 10.29% | 11/5/ 2025 | 24.00 | 62.00 | 33.33% | 0.54% |
| 5 | 11 | 5/23/ 2025 | 6/6/ 2025 | 536 | 14.00 | 117.00 | 9/4/ 2025 | 9/24/ 2025 | 104.00 | 124.00 | 86.00 | 16.04% | 11/5/ 2025 | 66.00 | 62.00 | 23.26% | 0.38% |
| Medie | 15.20 | 128.80 | 131.20 | 139.00 | 54.00 | 13.17% | 29.40 | 95.80 | 46.65% | 0.48% |
Tabella 1: Dinamiche di sopravvivenza e mortalità degli adulti in diverse gabbie sperimentali. Risultati relativi alla sopravvivenza degli adulti in cinque gabbie sperimentali replicate. Per ogni gabbia, vengono riportati l'intervallo di date di allestimento della gabbia, il numero di nati utilizzati per l'allestimento (per 2 delle 5 gabbie), la sopravvivenza dei nati fino all'età adulta (per 2 delle 5 gabbie), il tempo trascorso tra l'allestimento della gabbia, l'inizio del conteggio degli adulti e l'inizio della deposizione delle uova, la durata del monitoraggio degli adulti, le dimensioni iniziali e finali della popolazione adulta, la mortalità degli adulti durante il periodo monitorato e la mortalità media giornaliera. La sopravvivenza dei nati fino all'età adulta è stata calcolata soltanto per le gabbie con numero iniziale di nati noto.
| Numero gabbia | Data inizio raccolta uova | Data fine raccolta uova | Durata raccolta uova [giorni] | Numero totale di uova/gabbia | Numero medio di uova deposte/giorno | Numero iniziale di adulti | Numero totale di uova/adulti iniziali | Numero medio di uova/adulto iniziale/giorno |
| 1 | 29/5/2025 | 8/10/ 2025 | 132.00 | 6721.00 | 50.92 | 61.00 | 110.18 | 0.83 |
| 2 | 4/7/2025 | 10/11/2025 | 129.00 | 7333.00 | 56.84 | 42.00 | 174.60 | 1.35 |
| 3 | 27/7/2025 | 10/11/2025 | 106.00 | 9198.00 | 86.77 | 45.00 | 204.40 | 1.93 |
| 4 | 13/9/2025 | 10/11/2025 | 58.00 | 2583.00 | 44.53 | 36.00 | 71.75 | 1.24 |
| 5 | 24/9/2025 | 10/11/2025 | 47.00 | 6104.00 | 129.87 | 86.00 | 70.98 | 1.51 |
| Medie | 94.40 | 6387.80 | 73.79 | 54.00 | 126.38 | 1.37 |
Tabella 2: Produzione di uova nelle gabbie sperimentali. Produzione di uova di cinque gabbie sperimentali replicate contenenti adulti maturi. Per ogni gabbia, vengono riportate le date di inizio e di fine della raccolta delle uova, la durata totale della raccolta, la produzione cumulativa di uova per gabbia e il numero medio di uova deposte al giorno.
Discussione
I metodi di allevamento descritti qui forniscono un quadro semplice e riproducibile per mantenere popolazioni di laboratorio di C. morosus. Sebbene C. morosus sia stato a lungo mantenuto nei laboratori o come animale domestico, i protocolli di allevamento per la ricerca sperimentale hanno mostrato variazioni tra diversi studi6,9,10,11,12. Garantire condizioni ambientali e pratiche alimentari costanti è fondamentale per rendere C. morosus un organismo modello affidabile per ricerche nel campo dello sviluppo, della fisiologia e dell'evoluzione.
Tempistica dello sviluppo in C. morosus in relazione ad altri insetti modello
Rispetto agli insetti oloemetaboli come il moscerino della frutta Drosophila melanogaster, C. morosus presenta tassi di sviluppo più lenti e una fase giovanile più prolungata. Mentre D. melanogaster completa l'embriogenesi in circa 24 ore e raggiunge la maturità riproduttiva entro 10–12 giorni a 25 °C13, nelle nostre condizioni di allevamento, C. morosus richiede 74–80 giorni per l'embriogenesi e circa 135–139 giorni dopo l'eclosione per raggiungere la maturità riproduttiva, corrispondenti a circa 200 giorni dalla deposizione delle uova alla maturità riproduttiva a 23 °C (dati non mostrati). Questo periodo più lungo riflette differenze fisiologiche ed evolutive fondamentali tra insetti emimetaboli e oloemetaboli14,15 e si riscontra ripetutamente tra i Phasmatodea16,17,18. Sebbene altri insetti emimetaboli, come il grillo Gryllus bimaculatus, completino l'embriogenesi e raggiungano la maturità sessuale in un arco di tempo più breve (rispettivamente dieci giorni e sei settimane a 29 °C19), lo sviluppo più lento di C. morosus offre un'opportunità unica per ricerche riproducibili e studi dettagliati e longitudinali dell'embriogenesi e dello sviluppo giovanile.
Fonte del fogliame e pratiche di alimentazione
In questo protocollo, descriviamo l'utilizzo dell'edera (Hedera helix) come fonte alimentare principale per la nostra colonia di C. morosus, con fogliame raccolto tutto l'anno da un sito costante all'interno del campus. Sebbene l'edera potrebbe non essere disponibile per tutti i laboratori, diverse fonti alimentari vegetali alternative sono state segnalate come adatte al mantenimento di colonie di C. morosus, tra cui rovo (Rubus spp.), ligustro (Ligustrum spp.), piretro (Pyracantha spp.), rosa (Rosa spp.), biancospino (Crataegus monogyna), quercia (Quercus spp.) e nocciolo (Corylus spp.)20. Un aspetto importante da considerare quando si utilizza fogliame raccolto da fonti esterne è che il contenuto nutrizionale è meno controllato rispetto ai sistemi di laboratorio che si basano su diete standardizzate (ad esempio, Drosophila melanogaster), con il potenziale di introdurre variabilità nutrizionale. Per limitare tale variabilità, abbiamo utilizzato la stessa specie vegetale proveniente dallo stesso sito in tutte le stagioni e fornito il fogliame a tutte le gabbie una volta alla settimana durante la manutenzione ordinaria. I rami di edera utilizzati per l'alimentazione presentavano tipicamente una miscela di foglie giovani e mature; non abbiamo selezionato rami in base a uno specifico stadio di sviluppo fogliare. Tutte le foglie sono state lavate prima di essere inserite nelle gabbie. Il nostro programma settimanale di sostituzione, che prevedeva la rimozione di tutto il fogliame e il suo rinnovo nello stesso giorno, è stato adottato per garantire coerenza e gestire efficacemente le dimensioni della colonia. Il fogliame di edera reciso è stato mantenuto all'interno delle gabbie in contenitori pieni d'acqua per preservarne l'idratazione durante la settimana. Nella maggior parte dei casi, le foglie sono rimaste in buone condizioni per l'intera settimana, anche se talvolta si verificavano essiccazione o esaurimento; in tali casi, sostituivamo il fogliame prima della settimana.
Dimensione delle colonie, tassi di sopravvivenza e riproduzione degli adulti
Un corretto allestimento della colonia e una gestione attenta della densità di popolazione sono stati fondamentali per mantenere gli stock in buona salute. Mantenere al massimo circa 500 avannotti o 50 adulti per ogni contenitore di 61 cm x 61 cm x 91,5 cm ha permesso di sostenere condizioni stabili, la manutenzione della colonia e osservazioni dello sviluppo riproducibili.
Il confronto tra la mortalità media giornaliera e il numero di adulti fondatori in una gabbia (Figura 4A e Tabella 1) non ha rivelato una relazione prevedibile tra questi due parametri. Analogamente, non è emersa una relazione predittiva significativa tra il numero totale di adulti fondatori e la produzione totale di uova (Figura 4B, Tabella 1 e Tabella 2). Al contrario, le gabbie con una mortalità media giornaliera più bassa hanno mostrato una leggera tendenza a presentare un’emissione media giornaliera di uova più elevata (Figura 4C). Tuttavia, le differenze tra le gabbie suggeriscono che la produzione di uova vari tra gli adulti (Tabella 1 e Tabella 2), il che potrebbe indicare che fattori oltre alla sopravvivenza degli adulti contribuiscono ai modelli di fecondità e che le singole femmine possono variare nel numero di uova deposte ogni giorno.
La produzione di uova in tutte le gabbie monitorate è generalmente diminuita nel corso dell'esperimento (Figura 2). La maggior parte delle gabbie ha mostrato i tassi giornalieri più elevati di deposizione delle uova all'inizio del periodo riproduttivo (primi 50 giorni), dopo di che la produzione è gradualmente diminuita (Figura 2). Questo andamento è coerente con l'osservazione secondo cui gli individui raggiungono tipicamente la maturità sessuale e iniziano a deporre uova circa 135 giorni dopo la schiusa e che la mortalità inizia circa 90 giorni dopo (~225 giorni dopo la schiusa; dati non mostrati).
Tempistica e dinamica della schiusa
Tra i lotti di uova monitorati, la maggior parte delle schiusure si è verificata entro un periodo costante di 12 giorni dall'inizio dell'emergenza (Figura 3D). Analogamente, non è stata osservata alcuna correlazione tra la dimensione del lotto e il momento in cui si raggiungeva il completamento della schiusura al 90% (Figura 3A), e la maggior parte dei lotti ha raggiunto il 90% di schiusura tra i giorni 10 e 14 dopo l'emergenza del primo ninfale (Figura 3B). Questo periodo di schiusura prevedibile rappresenta un aspetto utile nella gestione delle colonie di C. morosus, poiché consente di raggruppare i ninfali in coorti di età simile, migliorando lo staging dello sviluppo e riducendo la variabilità sperimentale. Sapere quando avverrà la schiusura di massa permette inoltre una migliore pianificazione del ricambio degli alloggiamenti e dell'allocazione delle risorse, inclusa la preparazione tempestiva di recinti, fogliame e materiali per il monitoraggio, aspetto particolarmente importante per studi su larga scala o a lungo termine. Sebbene siano state studiate sia specie di Phasmatodea sessuali che partenogenetiche, non risultano evidenze che il solo modo riproduttivo determini differenze nei tempi di embriogenesi. Al contrario, si è osservato che le variazioni nello sviluppo sono specifiche della specie e influenzate dalle condizioni ambientali2.
Manipolazione delle uova e considerazioni sul substrato
Il nostro metodo di manipolazione delle uova prevede il prelievo diretto delle uova dal fondo dell'allevamento e l'incubazione in piastre di Petri aerate. Questo approccio permette un'agevole osservazione delle uova, a differenza dei sistemi basati su grilli, in cui le uova vengono raccolte in substrati come fibra di cocco o stoppini di cotone21. L'exocorio duro delle uova di C. morosus offre protezione durante la manipolazione e contro la disidratazione, consentendo un'incubazione sicura in piastre di Petri senza l'aggiunta di ulteriore substrato nelle nostre condizioni di allevamento. Nel complesso, queste procedure standardizzate forniscono un approccio strutturato per mantenere popolazioni sane di C. morosus finalizzate a ricerche riproducibili nel campo dello sviluppo, del comportamento, della genetica o della fisiologia. Controlli ambientali costanti (23 °C, 70% UR, fotoperiodo 12:12 LD), una regolare manutenzione degli allevamenti e tempistiche di sviluppo prevedibili rendono C. morosus un sistema modello accessibile e a basso costo. In modo particolarmente rilevante, a differenza di alcuni sistemi con grilli in cui affollamento, cannibalismo o carica patogena possono destabilizzare rapidamente le colonie22, C. morosus è facile da mantenere, risultando quindi particolarmente adatto per esperimenti su larga scala e studi che coinvolgono molteplici generazioni. Man mano che C. morosus viene adottato sempre più ampiamente come specie modello emimetabola, l'uso di metodi standardizzati dovrebbe favorire la riproducibilità e la comparabilità tra studi in diversi ambiti della biologia degli insetti.
Sopravvivenza dalla schiusa all'età adulta
La sopravvivenza dalla schiusa all'età adulta nel nostro studio (~13%) è notevolmente inferiore rispetto a quanto riportato da un altro studio quantitativo sulla sopravvivenza delle ninfe di C. morosus in condizioni controllate di laboratorio, in cui il 68% degli individui è sopravvissuto fino all'età adulta con restrizione calorica e fino all'87% con alimentazione ad libitum23. Ipotesizziamo che la minore sopravvivenza osservata nella nostra colonia (~13%) rispetto al precedente studio sia dovuta a differenze nei metodi di allevamento, che riflettono a loro volta gli obiettivi diversi delle due colture. Il nostro protocollo era finalizzato a mantenere colonie di grandi dimensioni e continuamente riproducentisi, piuttosto che a massimizzare la sopravvivenza di singoli gruppi. Di conseguenza, abbiamo mantenuto gli animali a densità relativamente elevate, a differenza del precedente studio, che allevava animali isolati dalle uova fino all'età adulta in gabbiette individuali23. Riteniamo che il metodo di coltura ad alta densità da noi descritto possa aumentare la mortalità rispetto all'allevamento in isolamento, specialmente durante le prime fasi ninfali, quando gli individui potrebbero essere più sensibili all'affollamento o alla competizione. Nelle nostre gabbie più grandi, anche la variabilità nella qualità delle piante potrebbe aver avuto un ruolo, a differenza dell'approccio con allevamento individuale, che forniva agli individui dischi di dimensioni controllate ricavati da foglie di piante23. Tuttavia, nonostante il tasso di sopravvivenza relativamente più basso, la nostra colonia ha prodotto costantemente un elevato numero di uova ed è rimasta stabile nel tempo (Figura 1, Figura 3, Tabella 1 e Tabella 2). Ciò suggerisce che l'approccio da noi descritto sia efficace per mantenere una coltura di laboratorio a lungo termine.
Fattori che influenzano la sopravvivenza e limitazioni del protocollo
Diversi fattori in questo protocollo potrebbero influenzare la sopravvivenza e devono essere attentamente controllati. La densità di popolazione è un parametro importante, poiché l'affollamento può ridurre la sopravvivenza, in particolare durante le prime fasi degli stadi larvali. Un altro parametro che influisce sulla sopravvivenza è un'idratazione adeguata, specialmente durante le prime fasi larvali. Tutte le procedure e i tempi descritti nel protocollo si basano sulle specifiche condizioni ambientali utilizzate in questo studio. Tuttavia, variazioni di umidità, temperatura, flusso d'aria o tipo di pianta possono influire sulla frequenza della nebulizzazione d'acqua, sulla frequenza con cui il fogliame deve essere sostituito, sul tempo di schiusa delle uova e sulla sopravvivenza complessiva. Ad esempio, in condizioni di coltura più secche, potrebbe essere necessaria una nebulizzazione d'acqua e una sostituzione delle piante più frequenti per mantenere l'idratazione. Diverse specie vegetali possono inoltre influenzare l'alimentazione e lo sviluppo. Questi fattori devono essere regolati in base alle condizioni di allevamento e agli obiettivi sperimentali. Per applicazioni che richiedono un'elevata sopravvivenza giovanile, un monitoraggio individuale o saggi comportamentali, densità iniziali più basse potrebbero essere preferibili.
Dichiarazioni
Gli autori dichiarano di non avere conflitti di interessi.
Ringraziamenti
Questo progetto è stato sostenuto dal premio della National Science Foundation IOS 22207477 assegnato a CGE, che è un ricercatore dell'Howard Hughes Medical Institute. Riconosciamo che si ritiene che Carausius morosus abbia origine dal Tamil Nadu, in India, e che colture di laboratorio di questa specie siano state mantenute al di fuori dell'India fin dal 1908. Ringraziamo sinceramente Stanislav Gorb e Thies Büscher (Università di Kiel) per aver fornito il gruppo iniziale di adulti utilizzato per stabilire la nostra coltura, e tutti i membri del laboratorio Extavour per il loro supporto, inclusa l'ex membro del laboratorio la dottoressa Upendra Bhattarai (affiliazione attuale: Brown University), che ha allestito la colonia iniziale.
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| Buste in polipropilene autoclavabili, 30,5 cm × 61 cm | VWR | 95042-554 | Per lo smaltimento di insetti, uova e rifiuti provenienti dagli alloggiamenti |
| Contenitore per rifiuti biologici | N/D | N/D | Per lo smaltimento dopo il congelamento |
| Pinzette di plastica arrotondate | Amazon | B07YZ5FB27 | Per raccogliere e maneggiare uova e nidiacei |
| Stanza climatizzata o incubatrice | N/D | N/D | Per mantenere una temperatura di 23 °C, umidità relativa del 70% e un fotoperiodo di 12:12 h luce-buio |
| Guanti monouso | N/D | N/D | Per la raccolta delle uova e la gestione dei rifiuti |
| Piastre di Petri monouso, 150 × 15 mm | VWR | 25384-326 | Per la raccolta delle uova |
| Piastre di Petri monouso, 60 × 15 mm | VWR | 25384-092 | Per l'incubazione delle uova |
| Foglie fresche (edera, rovo o rose) | N/D | N/D | Fonte alimentare priva di pesticidi |
| Congelatore a -20 °C | N/D | N/D | Per l'eutanasia/lo smaltimento e per congelare uova o rifiuti prima dello smaltimento |
| Alloggiamenti per insetti in rete | Amazon | B09GS2CH1G | Utilizzati per ospitare gli insetti |
| Flacone spray da 250 mL | Amazon | B000H88PCU | Per nebulizzare gli alloggiamenti in rete |
| Contenitore di vetro alto, altezza 18–23 cm | N/D | N/D | Utilizzato per contenere acqua e steli di piante |
| Acqua del rubinetto | N/D | N/D | Per nebulizzare e mantenere idratate le foglie |
| Superficie o vassoio bianco per il setacciamento | N/D | N/D | Per distinguere le uova dagli escrementi durante la selezione |
Riferimenti
- Adamski Z, et al. Beetles as model organisms in physiological, biomedical and environmental studies: a review. Front Physiol. 2019;10:319.
- Schwander T, et al. On the repeated evolution of parthenogenesis in stick insects. Evolution. 2026;80(3):513-24.
- Arias AM. Drosophila melanogaster and the development of biology in the 20th century. Methods Mol Biol. 2008;420:1-25.
- Dürr V, König Y, Kittmann R. The antennal motor system of the stick insect Carausius morosus: anatomy and antennal movement pattern during walking. J Comp Physiol A Neuroethol Sens Neural Behav Physiol. 2001;187(2):131-44.
- Roth HL. XIX. Observations on the growth and habits of the stick insect, Carausius morosus, Br.; intended as a contribution towards a knowledge of variation in an organism which reproduces itself by the parthenogenetic method. Trans R Entomol Soc Lond. 1917;64(3-4):345-86.
- Pijnacker LP. The maturation divisions of the parthenogenetic stick insect Carausius morosus Br. (Orthoptera, Phasmidae). Chromosoma. 1966;19(1):99-112.
- Browaeys-Poly E. Extracellular matrix of the regeneration chamber and plasma membranes of the epidermis during leg regeneration in an insect Carausius morosus. Tissue Cell. 1991;23(1):41-55.
- Di Cristina G, et al. Pioneering genome editing in parthenogenetic stick insects: CRISPR/Cas9-mediated gene knockout in Medauroidea extradentata. Sci Rep. 2025;15(1):2584.
- Cavallin M. [“Substitutive polyembryony” and the problem of germinal line origin in the phasma Carausius morosus Br]. C R Acad Hebd Seances Acad Sci D. 1971;272(3):462-5.
- Giorgi F, Cecchettini A, Masetti M. Changes in the patterns of proteins stored and synthesized by developing embryos of the stick insect Carausius morosus Br. Comp Biochem Physiol B. 1990;95(1):107-13.
- Pijnacker LP, Godeke J. Development of ovarian follicle cells of the stick insect, Carausius morosus Br. (Phasmatodea), in relation to their function. Int J Insect Morphol Embryol. 1984;13(1):21-8.
- Pijnacker LP. Effect of centrifugation of the eggs on the sex of Carausius morosus Br. Nature. 1966;210(5041):1184-5.
- Hales KG, Korey CA, Larracuente AM, Roberts DM. Genetics on the fly: a primer on the Drosophila model system. Genetics. 2015;201(3):815-42.
- Truman JW, Riddiford LM. The evolution of insect metamorphosis: a developmental and endocrine view. Philos Trans R Soc Lond B Biol Sci. 2019;374(1783):20190070.
- Truman JW, Riddiford LM. The origins of insect metamorphosis. Nature. 1999;401(6752):447-52.
- Bedford GO. Description and development of the eggs of two stick insects (Phasmatodea: Phasmatidae) from New Britain. Aust J Entomol. 1977;15(4):389-93.
- Kim MJ, et al. Development of a phenology model for egg hatching of walking-stick insect, Ramulus mikado (Phasmatodea: Phasmatidae) in Korea. Forests. 2023;14(9):1710.
- Lee J, et al. Temperature-dependent development and oviposition models of Ramulus irregulariterdentatus (Phasmida: Phasmatidae). J Asia Pac Entomol. 2018;21(3):903-13.
- Donoughe S, Extavour CG. Embryonic development of the cricket Gryllus bimaculatus. Dev Biol. 2016;411(1):140-56.
- Conle O, Hennemann F, Riquelme PV, Kneubühler B. Phasmatodea [Internet]. 2000. Available from: https://www.phasmatodea.com/
- Ventura MK, Stull VJ, Paskewitz SM. Maintaining laboratory cultures of Gryllus bimaculatus, a versatile orthopteran model for insect agriculture and invertebrate physiology. J Vis Exp. 2022; (184):e63277.
- de Miranda JR, et al. Virus diversity and loads in crickets reared for feed: implications for husbandry. Front Vet Sci. 2021;8:642085.
- Roark AM, Bjorndal KA. Bridging developmental boundaries: lifelong dietary patterns modulate life histories in a parthenogenetic insect. PLoS One. 2014;9(11):e111654.
Ristampe e permessi
