Questo protocollo fornisce un approccio standardizzato di taglio all'interno della camera per risolvere l'inizio, il tempo di picco e la cinetica delle emissioni volatili indotte da ferite, insieme a misurazioni simultanee dello scambio gassoso.
Articolo metodologico
Un metodo di taglio all'interno della camera per la quantificazione in tempo reale dei volatili da ferita fogliare e dello scambio gassoso
31 visualizzazioni
⸱
11 settembre 2026
In questo articolo
Sommario
Abstract
I composti organici volatili (VOC) rilasciati dalle foglie delle piante svolgono ruoli fondamentali nella segnalazione da stress, nelle interazioni pianta-atmosfera e nella difesa vegetale. Tra questi, i composti organici volatili indotti da ferite (wVOC) vengono emessi entro pochi secondi da danni meccanici, attacchi di erbivori o perturbazioni ambientali. La dinamica delle loro emissioni dipende fortemente dal momento, dalla gravità e dal metodo di lesione del tessuto. Tuttavia, una quantificazione accurata rimane difficile a causa di artefatti meccanici, condizioni di esposizione variabili e ritardi tra la lesione e la misurazione. Questo studio presenta un protocollo standardizzato di escissione fogliare all'interno di una camera per il monitoraggio in tempo reale dei wVOC e degli scambi gassosi. Un taglierino di precisione è stato integrato in una camera portatile per lo scambio gassoso, consentendo tagli netti e controllati all'interno di una camera sigillata, in condizioni stabili di luce, umidità, CO2 e temperatura. Uno spettrometro di massa con trasferimento di protoni e tempo di volo (PTR-TOF-MS) ha misurato continuamente le emissioni volatili all'uscita della camera, riducendo al minimo ritardi e distorsioni del segnale. Questa configurazione permette di risolvere con elevata fedeltà temporale l'inizio dell'emissione, il momento del picco, la velocità massima di aumento e il rilascio totale. L'applicazione del metodo a Quercus rubra, Acer platanoides e Gossypium hirsutum ha dimostrato la capacità di distinguere diversi profili di emissione indotta da ferite in tipi fogliari differenti. Eliminando i ritardi associati ai metodi convenzionali di campionamento, questo approccio risolve l'intera traiettoria cinetica delle emissioni indotte da ferite, superando i principali limiti dei metodi precedenti. Fornisce un quadro solido per lo studio delle risposte rapide allo stress in fisiologia vegetale, biochimica ecologica e interazioni pianta-atmosfera.
Introduzione
Le piante rispondono a lesioni rilasciando un segnale chimico rapido, ma la registrazione accurata di tale segnale rimane tecnicamente complessa. Entro pochi secondi dall'attacco di erbivori, da danni provocati dal vento o da perturbazioni meccaniche, le piante emettono un breve picco di composti organici volatili (VOC) che attivano difese interne e predispongono le piante vicine1,2,3,4. Questi VOC indotti da ferite (wVOC) comprendono i composti volatili dell'erbaccia (GLVs), metanolo, alcoli e aldeidi a catena corta, terpenoidi e derivati degli ossilipini. Essi si originano o dalla sintesi de novo nelle cellule del mesofillo o dalla rottura di strutture di accumulo come dotti resiniferi e tricomi. In quanto segnali immediati di stress, i wVOC coordinano le difese fisiologiche, mediano la comunicazione tra piante e interagiscono con la chimica atmosferica1,5,6,7.
Poiché l'erbivoria naturale combina danni meccanici con elicitori salivari e microbici, negli studi sperimentali si utilizza la ferita simulata per isolare le risposte al solo danno fisico8. Tuttavia, la natura transitoria dei wVOCs li rende intrinsecamente difficili da catturare. I metodi convenzionali, come il campionamento in fase di testa statica abbinato a cromatografia gassosa-spettrometria di massa (GC-MS), spesso non registrano l'emissione iniziale e alterano il profilo cinetico9,10. I ritardi di equilibrazione, le temperature elevate di incubazione e le linee di campionamento prolungate aumentano il tempo di permanenza e distorcono il segnale registrato, in particolare per composti reattivi come i sesquiterpeni9,11,12. Complessivamente, questi artefatti riducono l'ampiezza del segnale e oscurano la dinamica temporale delle emissioni volatili indotte da ferita, complicando così l'interpretazione delle risposte delle piante allo stress.
Molti studi interrompono anche la misurazione per ferire le foglie all'esterno della camera. Questa interruzione destabilizza il flusso di gas, altera i tempi della ferita e riduce il controllo sulla precisione dell'incisione13,14,15. Di conseguenza, i primi minuti dopo la lesione vengono spesso persi o distorti13, proprio quando i tassi di emissione raggiungono il picco e si manifestano i caratteristici profili cinetici3,6,16,17. Alcuni approcci hanno spostato l'escissione della foglia all'interno di camere a grande volume utilizzando lame in teflon o perforatori meccanici12,18,19. Tuttavia, queste configurazioni spesso causavano instabilità nella tenuta, lunghezze di taglio non uniformi e incisioni irregolari a causa dello spostamento del taglierino o delle differenze nella resistenza delle foglie. Il grande volume della camera inoltre ritardava il ricambio dell'aria e allargava il segnale volatile16. Nel complesso, questi limiti sperimentali impediscono una caratterizzazione accurata della dinamica temporale delle emissioni indotte da ferita in condizioni fisiologiche stabili.
Per superare queste sfide, lo studio presenta un protocollo di ferita in tempo reale all'interno della camera che integra un cutter di grado chirurgico in un sistema di scambio gassoso abbinato a uno spettrometro di massa con trasferimento di protoni e tempo di volo (PTR-TOF-MS). Il protocollo consente di ferire le foglie e rilevare i composti volatili in modo sincrono in condizioni ambientali controllate, misurando contemporaneamente i flussi di volatili e lo scambio gassoso con elevata risoluzione temporale. Eseguendo l'escissione fogliare all'interno della camera di misura, il protocollo riduce al minimo i ritardi di campionamento associati agli approcci convenzionali, preserva la dinamica temporale dei composti volatili indotti dalla ferita e rapidamente emessi, e illustra una procedura di taglio standardizzata su foglie con diverse proprietà meccaniche. Questa risoluzione temporale permette una caratterizzazione diretta dell'insorgenza, del momento di picco e della cinetica specifica per specie delle emissioni di volatili indotte dalla ferita.
Il protocollo è stato valutato utilizzando tre specie con caratteristiche anatomiche e fisiologiche contrastanti (Quercus rubra, Acer platanoides e Gossypium hirsutum) per dimostrarne l'applicabilità su diversi tipi di foglie. Applicando condizioni di misurazione identiche su tutte le specie, si dimostra che il protocollo è in grado di risolvere la dinamica dei composti organici volatili (VOC) indotti da ferite su un'ampia gamma di profili di emissione, minimizzando al contempo la variabilità sperimentale. L'approccio è ampiamente applicabile a studi che richiedono misurazioni ad alta risoluzione temporale dei VOC indotti da ferite in condizioni ambientali controllate. Nel complesso, queste caratteristiche forniscono un quadro standardizzato per lo studio delle risposte rapide allo stress nelle piante e facilitano l'applicazione del protocollo su diverse specie e sistemi sperimentali.
Protocollo
Tutte le piante sono state coltivate in condizioni di ambiente controllato all'interno di camere di crescita. I reagenti e l'equipaggiamento utilizzati sono elencati nella Tabella dei materiali.
1. Costruzione e installazione del tagliatore di foglie all'interno della camera
- Realizzare un taglierino rotante progettato per adattarsi alle dimensioni interne (4 cm × 2 cm) della testa di misura standard.
- Applicare una lametta a una barretta in acciaio inossidabile (diametro 1 mm) utilizzando saldatura argentata per garantire stabilità meccanica.
ATTENZIONE: Le lamette sono estremamente taglienti. Indossare guanti resistenti ai tagli durante la manipolazione. Dopo l'uso, smaltire le lamette secondo le procedure di sicurezza del laboratorio istituzionale per oggetti taglienti. Eseguire la saldatura argentata in un ambiente adeguatamente ventilato e indossare protezioni per gli occhi. - Inserire la barretta portalametta in un ago per siringa in acciaio inossidabile (diametro esterno 1,6 mm) per consentire una libera rotazione assiale.
- Sigillare entrambe le estremità dell'ago con un tappo in politetrafluoroetilene (PTFE) a basse emissioni per mantenere condizioni ermetiche preservando al contempo la rotazione.
- Montare una manopola manuale di rotazione all'estremità prossimale della barretta per consentire una rotazione controllata del taglierino interno.
- Applicare due supporti flessibili realizzati in lamina di ottone elastico (spessore 0,2 mm) sulla superficie esterna dell'ago per fissare il taglierino alla metà inferiore della camera.
- Creare un'incisione triangolare nella guarnizione della camera inferiore per consentire l'inserimento della lametta senza contatto con la superficie della foglia.
- Sigillare il punto di inserimento utilizzando un mastice sigillante a basse emissioni per prevenire perdite di gas.
NOTA: Prima di procedere, verificare che l'installazione del taglierino non abbia compromesso la tenuta della camera. Accertarsi che la camera si chiuda completamente, che il termocoppia rimanga a contatto con la superficie della foglia e che il sistema di scambio gassoso indichi un flusso d'aria stabile senza evidenza di perdite. Procedere solo dopo aver confermato condizioni di camera stabili. Selezionare la lunghezza della lametta in modo da produrre un'incisione di circa 10 mm. Il meccanismo di taglio integrato e la sua posizione all'interno della camera per foglie sono mostrati in Figura 1B.
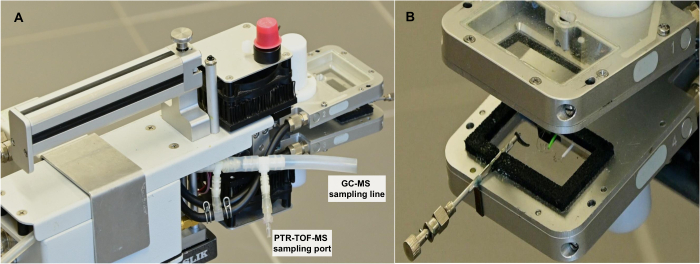
Figura 1: Sistema modificato di scambio gassoso con un taglierino per foglie integrato all'interno della camera e linee di campionamento per composti volatili. (A) Panoramica del sistema di scambio gassoso modificato, che mostra la porta di campionamento PTR-TOF-MS e la linea di campionamento GC–MS posizionata vicino all'uscita della camera per la raccolta di composti volatili. (B) Vista ravvicinata della camera aperta che mostra il meccanismo di taglio integrato e la zona in cui viene posizionata la foglia durante la ferita. Il taglierino è integrato ermeticamente nella camera, consentendo la ferita della foglia senza aprire l'involucro durante la misurazione. Questa configurazione permette il monitoraggio in tempo reale delle emissioni di composti volatili e dello scambio gassoso in condizioni ambientali controllate. Cliccare qui per visualizzare una versione ingrandita di questa figura.
2. Configurazione dei percorsi di campionamento dei composti volatili
- Installare un raccordo a T in teflon (1/16″ o 1/8″ di diametro interno) adiacente all'uscita della camera (Figura 1A) per ridurre al minimo la lunghezza del tubo tra la camera e l'analizzatore di composti volatili.
- Collegare l'uscita al sistema di raccolta dei VOC utilizzando un tubo inerte (ad esempio, FEP o PTFE; diametro interno di 1,6 mm). Installare il raccordo a T immediatamente adiacente all'uscita della camera per mantenere il tubo tra la camera e l'analizzatore di composti volatili il più corto possibile, riducendo così al minimo il volume interno, il tempo di permanenza e le perdite per adsorbimento.
- Mantenere il flusso d'aria nella camera a 750 µmol s-1.
NOTA: Un tubo inerte corto riduce l'adsorbimento e il tempo di permanenza per i composti reattivi.
3. Preparazione del materiale vegetale
- Coltivare Quercus rubra, Acer platanoides e Gossypium hirsutum in una camera a ambiente controllato a 25 °C di giorno / 20 °C di notte, umidità relativa del 60%, intensità luminosa di 1000 µmol m-2 s-1 e fotoperiodo di 16 h/8 h per 4 mesi.
- Mantenere le piante in condizioni di concentrazione atmosferica ambientale di CO2 (~430 ppm) per tutta la durata dell'esperimento.
- Annaffiare tutte le piante ogni due giorni fino a quando il terreno raggiunge la capacità di campo.
- Selezionare foglie completamente espanse e non senescenti per esperimenti a stadio di sviluppo comparabile.
4. Esperimenti di ferita delle foglie e raccolta di VOC
- Chiudere la foglia e impostare le condizioni ambientali
- Chiudere una foglia completamente espansa e ancora attaccata alla pianta nella cuvetta dotata di taglierina interna.
- Impostare la temperatura del blocco a 25 °C, l'umidità relativa dell'aria al 60%, l'intensità della luce attinica a 1000 µmol m-2 s-1 (90% rossa, 10% blu) e il flusso d'aria a 750 µmol s-1.
- Lasciare che la foglia si adatti alle condizioni ambientali selezionate finché non si raggiungono valori stazionari di assimilazione netta di CO2, conduttanza stomatica e segnali VOC di base, generalmente entro 20–30 minuti dalla chiusura della foglia.
- Eseguire il monitoraggio di scambi gassosi, fluorescenza e VOC
- Iniziare le misurazioni simultanee di scambi gassosi e VOC con risoluzione di 1 Hz.
- Al termine delle misurazioni degli scambi gassosi, registrare il rendimento di fluorescenza allo stato stazionario (Fs) e quindi applicare un impulso saturante (8000 µmol m-2 s-1, 0.6 s) tramite il fluorimetro della camera (3055-FL) per determinare il rendimento massimo di fluorescenza (Fm′) in foglie adattate alla luce.
- Spegnere la luce attinica e adattare la foglia al buio per 20 minuti.
- Registrare la respirazione notturna della foglia.
- Misurare la fluorescenza iniziale (F₀) utilizzando una debole luce modulata di misura (0.03 µmol m-2 s-1), seguita da un impulso saturante per ottenere la fluorescenza massima in foglie adattate al buio (Fm).
- Riaccendere la luce attinica.
- Continuare le misurazioni di VOC e scambi gassosi nelle stesse condizioni ambientali finché il valore di riferimento pre-trauma non risulti stabile.
NOTA: Prima del trauma, verificare che le condizioni ambientali selezionate rimangano stabili e che l'assimilazione netta di CO₂, la traspirazione e i segnali VOC di base abbiano raggiunto valori stazionari. Procedere solo dopo che queste condizioni siano state mantenute costanti con le impostazioni di misurazione selezionate.
- Trauma alla foglia e raccolta di VOC
- Inserire il primo cartuccia VOC nella linea di uscita e collegarla a una pompa portatile per campionamento d'aria a flusso costante. Far passare l'aria della camera attraverso la cartuccia a un flusso costante di 200 mL min-1. Utilizzare una cartuccia adsorbente in acciaio inossidabile con letto multiplo (lunghezza 10,5 cm, diametro interno 3 mm) adatta alla cattura di composti volatili da C3 a C17, riempita con Carbotrap C 20/40 mesh (0,2 g), Carbopack B 40/60 mesh (0,1 g) e Carbotrap X 20/40 mesh (0,1 g), disposti in ordine crescente di forza adsorbente nella direzione del campionamento.
NOTA: Prima del campionamento, condizionare le cartucce facendo passare elio ad alta purezza attraverso la cartuccia a 200 mL min-1 per 3 ore a 250 °C. La raccolta su cartuccia consente analisi offline mediante GC-MS per l'identificazione dei composti, quando richiesto dagli obiettivi sperimentali. Sebbene la raccolta su cartuccia faccia parte del flusso di lavoro descritto qui, i risultati rappresentativi presentati in questo studio derivano da misurazioni continue mediante PTR-TOF-MS. Scegliere l'adsorbente in base all'intervallo di volatilità e alla polarità dei VOC target, nonché alle condizioni di campionamento. - Raccogliere i VOC pre-trauma per 15 minuti a 200 mL min-1.
- Sostituire la cartuccia e raccogliere i VOC per 2 minuti.
- Ruotare la taglierina interna di 360° per asportare la foglia senza aprire la camera e riportare la lama alla posizione iniziale.
NOTA: Posizionare la foglia all'interno della camera in modo che l'incisione avvenga sulla lamina racchiusa, mantenendo una sigillatura completa della camera. Ogni volta che le dimensioni e la morfologia della foglia lo consentono, evitare di tagliare la nervatura principale e mantenere la posizione dell'incisione il più possibile costante tra i campioni. Poiché il danno alle nervature principali può aumentare notevolmente le emissioni di composti volatili indotte dal trauma, una posizione costante del trauma migliora la riproducibilità sperimentale5.
ATTENZIONE: Assicurarsi che la camera sia completamente sigillata prima di effettuare il taglio. - Continuare la raccolta di VOC con la stessa cartuccia per 13 minuti.
- Inserire una terza cartuccia e raccogliere i VOC per 15 minuti.
- Eseguire il PTR-TOF-MS in modo continuo durante tutti i periodi per la rilevazione in tempo reale.
NOTA: Prima e dopo ogni misurazione su pianta, raccogliere un campione di fondo della camera vuota nelle stesse condizioni ambientali. Utilizzare queste misurazioni di fondo per la correzione del livello di base dei dati di emissione VOC durante l'analisi.
- Inserire il primo cartuccia VOC nella linea di uscita e collegarla a una pompa portatile per campionamento d'aria a flusso costante. Far passare l'aria della camera attraverso la cartuccia a un flusso costante di 200 mL min-1. Utilizzare una cartuccia adsorbente in acciaio inossidabile con letto multiplo (lunghezza 10,5 cm, diametro interno 3 mm) adatta alla cattura di composti volatili da C3 a C17, riempita con Carbotrap C 20/40 mesh (0,2 g), Carbopack B 40/60 mesh (0,1 g) e Carbotrap X 20/40 mesh (0,1 g), disposti in ordine crescente di forza adsorbente nella direzione del campionamento.
5. Rilevamento dei composti volatili e funzionamento dello strumento
- Impostare la temperatura dell'ingresso e del tubo di deriva del PTR-TOF-MS a 80 °C, il flusso in ingresso a 100 mL min-1, il flusso di vapore acqueo a 4,0 mL min-1, la corrente ionica a 4,0 mA, la pressione nella camera di deriva a 2,1 mbar, il rapporto densità di campo del tubo di deriva a 115 Td e la pressione del modulo TOF-MS a 1,2 × 10⁻⁷ mbar.
- Registrare i segnali volatili con una risoluzione temporale di 1 Hz e un intervallo di campionamento di 400 ps.
- Calibrare il PTR-TOF-MS prima di ogni esperimento utilizzando una miscela standard certificata di gas contenente VOC rappresentativi delle principali classi di composti volatili vegetali. Elaborare i dati di calibrazione e calcolare le concentrazioni dei VOC mediante il software PTR-MS Viewer seguendo le procedure descritte13,16.
6. Analisi offline con GC-MS dei campioni da cartuccia
NOTA: La seguente procedura descrive l'analisi offline dei campioni di cartuccia raccolti durante il flusso di lavoro sopra indicato. L'analisi GC-MS fornisce un'identificazione complementare dei composti, mentre i risultati rappresentativi presentati in questo studio si basano su misurazioni continue con PTR-TOF-MS.
- Desorbire termicamente le cartucce utilizzando un'unità automatizzata di desorbimento termico accoppiata a un sistema GC-MS, seguendo la procedura descritta da Kännaste et al.20.
- Identificare i composti mediante confronto con standard autentici e con la libreria spettrale di massa NIST. Eseguire la rivelazione spettrometrica di massa utilizzando ionizzazione a impatto elettronico (70 eV) e confermare le identità dei composti confrontando sia i tempi di ritenzione sia gli spettri di massa con standard autentici, quando disponibili.
NOTA: Il campionamento con cartucce segue il protocollo modificato di Kännaste et al.20 per la cattura di composti volatili C3–C17.
7. Analisi dei dati
- Sottrarre il fondo della camera vuota da tutti i tracciati di emissione prima dell'analisi. Definire la linea di base pre-lesione per ogni massa monitorata come il segnale medio registrato durante un intervallo fisso immediatamente precedente al taglio.
- Utilizzare l'istante del taglio come punto di riferimento comune per tutte le masse monitorate. Determinare l'inizio dell'emissione come il primo aumento rilevabile del segnale VOC corretto rispetto alla linea di base dopo il taglio della foglia.
NOTA: L'inizio dell'emissione è stato definito come il primo aumento consecutivo al di sopra della linea di base pre-lesione che prosegue nella fase ascendente dell'impulso emissivo, escludendo così fluttuazioni isolate attribuibili al rumore strumentale. - Calcolare il tempo per raggiungere il picco come l'intervallo tra l'istante del taglio e il segnale massimo di emissione. Calcolare la pendenza massima dell'impulso emissivo a partire dalla derivata prima del segnale corretto rispetto alla linea di base, utilizzando la media delle pendenze in avanti e all'indietro tra punti dati adiacenti13. Definire l'ampiezza del picco come il valore massimo di emissione osservato durante l'impulso.
Risultati
Per valutare se la posizione di campionamento dei composti volatili influisce sulla rilevazione del segnale, abbiamo confrontato due configurazioni utilizzando iniezioni controllate di gas nella camera fogliare. In una configurazione, i composti volatili venivano campionati direttamente all'uscita della camera di scambio gassoso modificata (Figura 1). Al contrario, nell'altra configurazione, l'aria passava attraverso i tubi dell'analizzatore di scambio gassoso prima di raggiungere il rivelatore. La registrazione simultanea di entrambi i segnali ha permesso un confronto diretto delle loro dinamiche temporali.
L'iniezione di composti volatili puri ha prodotto risposte rapide del rivelatore con picchi di emissione distinti (Figura 2). Quando il campionamento è stato effettuato direttamente all'uscita della camera, i segnali sono aumentati immediatamente dopo l'iniezione, hanno raggiunto massimi netti e sono diminuiti rapidamente. Quando il campionamento è stato effettuato dopo il tubo dell'analizzatore, gli stessi composti hanno prodotto risposte ritardate e attenuate.
Per l'isoprene (m/z 69), il ritardo temporale tra le posizioni di campionamento è stato minimo e le ampiezze dei picchi sono rimaste simili (Figura 2A). Per il Z-3-esen-1-olo (m/z 83), il passaggio attraverso il tubo ha ridotto l'altezza del picco e allargato la curva di decadimento rispetto al campionamento diretto (Figura 2B). Questo effetto è stato più marcato per l'α-pinene (m/z 137), dove il passaggio attraverso il tubo ha fortemente attenuato il picco rispetto al segnale misurato direttamente all'uscita della camera (Figura 2C).
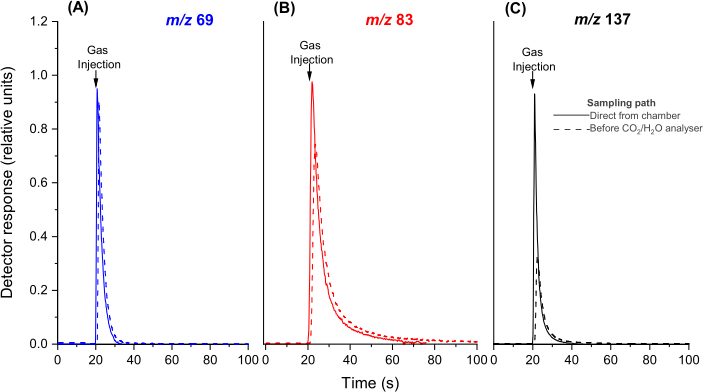
Figura 2: Effetto della posizione di campionamento sulla risposta temporale del rilevamento di composti volatili. Le risposte all'iniezione di (A) isoprene puro (m/z 69), (B) Z-3-esen-1-olo, rilevato principalmente come ione frammento m/z 83, e (C) α-pinene (m/z 137) sono state registrate in due posizioni di campionamento. Le linee continue rappresentano il campionamento immediatamente dopo l'uscita della camera, mentre le linee tratteggiate rappresentano la posizione standard di campionamento prima degli analizzatori di CO₂/H₂O, a seguito del passaggio attraverso i tubi del sistema di scambio gassoso. Le frecce indicano l'iniezione del gas. Le risposte sono state normalizzate al segnale massimo rilevato dal PTR-QMS campionato accanto alla camera. Per visualizzare le differenze nella forma della risposta, i tracciati temporali del campionamento standard sono stati anticipati di 0,9 s rispetto al campionamento diretto. Questa figura è stata modificata da Rasulov et al.16. Cliccare qui per visualizzare una versione ingrandita di questa figura.
Il taglio delle foglie ha innescato emissioni rapide di composti volatili specifici in tutte le specie (Quercus rubra, Acer platanoides e Gossypium hirsutum), e il sistema ha rilevato tali emissioni entro pochi secondi. Poiché la configurazione all'interno della camera ha permesso di risolvere direttamente sia l'inizio che il picco delle emissioni, è stato possibile quantificare la cinetica specifica per ciascun composto senza interrompere la misurazione.
In tutte le specie, il segnale dominante indotto dalla ferita rilevato mediante PTR-TOF-MS è stato osservato a m/z 99, attribuito in via preliminare a composti di tipo esenale derivati dalla LOX sulla base di precedenti studi con PTR-TOF-MS (Figura 3, Figura 4 e Figura 5). Le emissioni massime hanno oscillato tra 24–300 nmol m-2 s-1 nelle tre specie, dimostrando la capacità del protocollo di risolvere la dinamica dei composti organici volatili indotti dalla ferita in un ampio intervallo di intensità emissiva (Figura 3, Figura 4 e Figura 5). In tutti i casi, m/z 99 è aumentato entro pochi secondi dal taglio, ha raggiunto il picco entro circa 39–57 s ed ha mostrato l'incremento più ripido tra le masse monitorate (Tabella 1), identificandolo così come componente acuto dominante dell'emissione indotta dalla ferita.
La massa 69 è rimasta trascurabile prima del taglio in A. platanoides (Figura 4B) e in G. hirsutum (Figura 5B) ed è aumentata solo leggermente dopo la ferita. Al contrario, Q. rubra ha mostrato emissioni di base significative già prima del taglio, seguite da un lieve aumento transitorio e successiva stabilizzazione, coerente con un rilascio costitutivo di isoprene sovrapposto alla risposta alla ferita (Figura 3B).
Altre masse monitorate hanno rivelato una chiara sequenza temporale dopo il taglio. Tra le specie, i picchi a m/z 43, 57, 69 e 99 hanno definito la fase iniziale del burst, mentre i segnali a m/z 45 e 83 hanno raggiunto il massimo in un secondo momento (Figura 3, Figura 4 e Figura 5; Tabella 1). Questo andamento è risultato particolarmente marcato in A. platanoides, dove il segnale a m/z 45 iniziava a salire immediatamente dopo il taglio ma raggiungeva il picco solo dopo circa 155 s, indicando una risposta più lenta e prolungata rispetto ai frammenti iniziali associati alla LOX (Figura 4A; Tabella 1). Analogamente, il segnale a m/z 83 ha raggiunto il massimo più tardi rispetto ai frammenti iniziali in tutte le specie ed è stato particolarmente ritardato in G. hirsutum, dove ha raggiunto il valore massimo solo dopo circa 223 s (Figura 5A; Tabella 1).
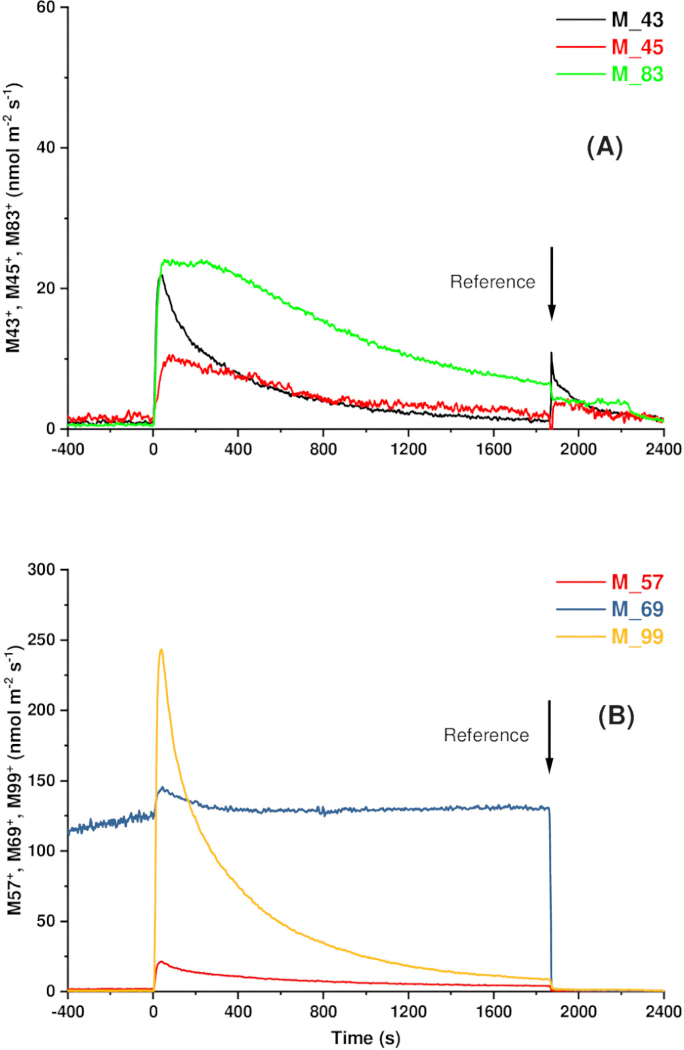
Figura 3: Emissioni volatili indotte da ferita con risoluzione temporale in una foglia rappresentativa di Quercus rubra. (A) m/z 43, 45 e 83. (B) m/z 57, 69 e 99. All'istante t = 0, la foglia è stata recisa utilizzando un tagliatore interno alla camera illustrato nella Figura 1, producendo un'incisione di 10 mm. Le emissioni volatili sono state monitorate continuamente mediante uno spettrometro di massa con reazione di trasferimento protonico e tempo di volo (PTR-TOF-MS), mentre i tassi di scambio gassoso sono stati misurati con un sistema Walz GFS-3000. I segnali sono mostrati come profili di emissione rappresentativi corretti rispetto alla linea di base, che illustrano la risoluzione temporale ottenibile con il protocollo. Si veda il Tavola 1 per descrittori cinetici rappresentativi estratti da questi profili di emissione. Cliccare qui per visualizzare una versione ingrandita di questa figura.
Nonostante queste caratteristiche comuni, le misurazioni rappresentative mostrano che le traiettorie di emissione possono differire tra le specie. In Q. rubra, i segnali a m/z 43 e 57 sono aumentati rapidamente ma si sono differenziati durante la fase di decadimento, con m/z 57 in declino più lento rispetto a m/z 43 (Figura 3A,B). In A. platanoides, questo andamento si è invertito, con m/z 43 che ha mostrato un declino più lento nella fase tardiva (Figura 4A). In G. hirsutum, tutti i segnali erano di entità inferiore e i profili di emissione combinavano picchi iniziali rapidi con un decadimento più graduale. In particolare, m/z 45 ha mostrato un lieve aumento secondario durante la fase di decadimento (Figura 5A).
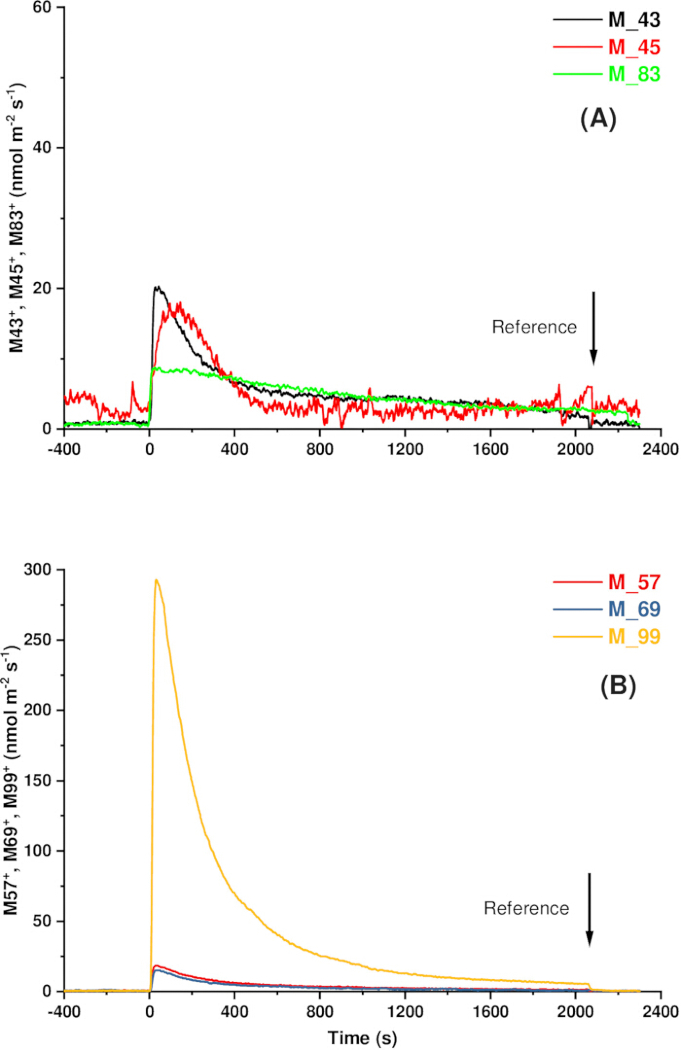
Figura 4: Emisioni volatili indotte da ferita con risoluzione temporale in una foglia rappresentativa di Acer platanoides. (A) m/z 43, 45 e 83. (B) m/z 57, 69 e 99. La foglia è stata recisa al tempo t = 0 utilizzando un taglierino interno alla camera (Figura 1; incisione di 10 mm). Le emissioni volatili sono state misurate continuamente mediante uno spettrometro di massa con reazione di trasferimento protonico e tempo di volo (PTR-TOF-MS), mentre lo scambio gassoso è stato misurato con un sistema Walz GFS-3000. I segnali sono mostrati come profili di emissione rappresentativi, corretti rispetto alla baseline, che illustrano la risoluzione temporale ottenibile con il protocollo. Si veda Tabella 1 per i descrittori cinetici rappresentativi estratti da questi profili di emissione. Cliccare qui per visualizzare una versione ingrandita di questa figura.
Nel complesso, questi schemi indicano che le emissioni indotte dalla ferita seguono una cascata specifica per composto piuttosto che un singolo rilascio sincrono, con componenti iniziali nette seguite da risposte più ampie e ritardate.
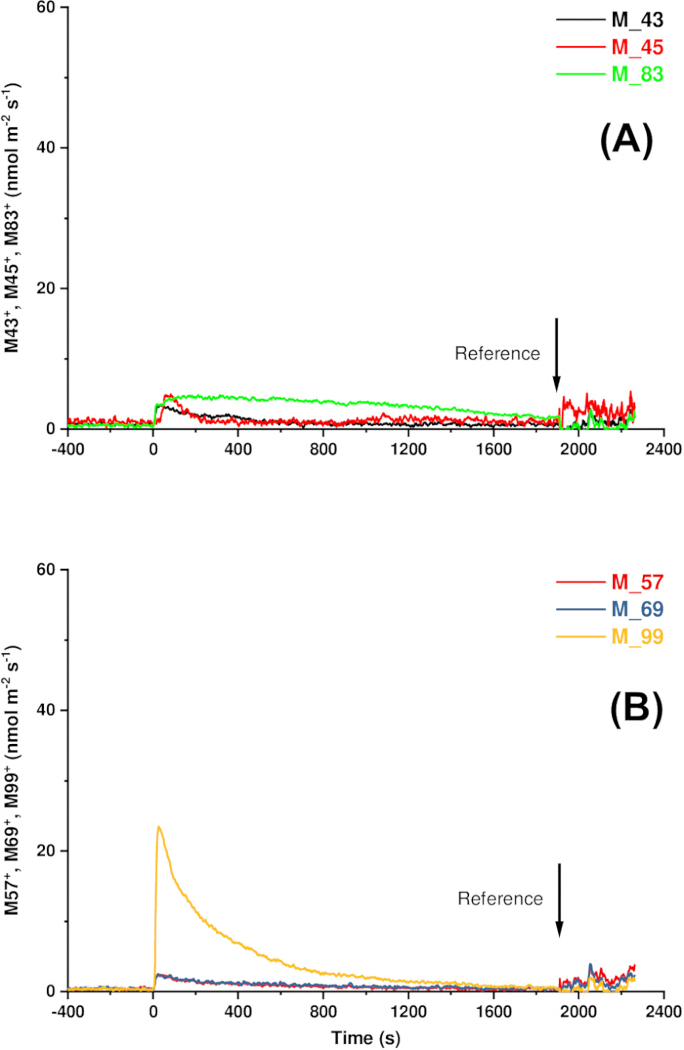
Figura 5: Emissioni volatili indotte da ferita risolte nel tempo in una foglia rappresentativa di Gossypium hirsutum. (A) m/z 43, 45 e 83. (B) m/z 57, 69 e 99. La foglia è stata tagliata al tempo t = 0 utilizzando un taglierino interno alla camera (Figura 1; incisione di 10 mm). Le emissioni volatili sono state misurate continuamente mediante uno spettrometro di massa con reazione di trasferimento protonico e tempo di volo (PTR-TOF-MS), mentre lo scambio gassoso è stato misurato con un sistema Walz GFS-3000. I segnali sono mostrati come profili di emissione rappresentativi corretti rispetto al baseline, che illustrano la risoluzione temporale ottenibile con il protocollo. Si veda il Tabella 1 per descrittori cinetici rappresentativi estratti da questi profili di emissione. Cliccare qui per visualizzare una versione ingrandita di questa figura.
Discussione
Il protocollo qui presentato consente un'analisi ad alta risoluzione temporale delle emissioni di composti volatili indotte da ferite in condizioni sperimentali controllate. Integrando direttamente l'evento di taglio nella camera fogliare e monitorando continuamente i segnali volatili (Figura 1), il sistema cattura la risposta emissiva senza le distorsioni introdotte da campionamenti ritardati, aperture della camera o manipolazioni della foglia al di fuori dell'apparato di misura. Questi disturbi possono alterare sia il tempo apparente sia l'entità dei picchi di emissione nelle misurazioni basate su camere chiuse3,6,13,17. Mantenendo la ferita e la misurazione all'interno della stessa camera, il protocollo preserva la cronologia delle emissioni e permette una quantificazione affidabile risolta nel tempo delle risposte volatili indotte da stress.
| Specie | Massa molecolare protonata | Ampiezza massima (nmol m-2 s-1) | Insorgenza dopo taglio(i) | Tempo del picco (s) | Pendenza massima (nmol m-2 s-2) |
| Quercus rubra | 43 | 21.91 | ~0.0 | 55.6 | 1.49 |
| 45 | 10.52 | 7 | 111.4 | 0.29 | |
| 57 | 21.27 | 20 | 55.6 | 1.37 | |
| 69 | 145.6 | 25 | 61 | 1.44 | |
| 83 | 24.13 | 21 | 71.8 | 1.39 | |
| 99 | 243.16 | 21 | 57.4 | 18.17 | |
| Acer platanoides | 43 | 20.26 | 5.4 | 54 | 1.59 |
| 45 | 18.06 | 1.8 | 154.8 | 0.55 | |
| 57 | 18.65 | 10.8 | 41.4 | 1.55 | |
| 69 | 15.15 | 10.8 | 41.4 | 1.13 | |
| 83 | 8.78 | 7.2 | 57.6 | 0.76 | |
| 99 | 292.86 | 10.8 | 43.2 | 23.62 | |
| Gossypium hirsutum | 43 | 3.5 | 5.4 | 48.6 | 0.19 |
| 45 | 4.98 | 9 | 95.4 | 0.29 | |
| 57 | 2.48 | 10.8 | 36 | 0.18 | |
| 69 | 2.42 | 12.6 | 37.8 | 0.17 | |
| 83 | 4.83 | 14.4 | 223.2 | 0.3 | |
| 99 | 23.47 | 12.6 | 39.6 | 1.95 |
Tabella 1: Valori rappresentativi dell'ampiezza del picco, dell'inizio dell'emissione, del tempo per raggiungere il picco e della pendenza massima estratti da misurazioni continue con PTR-TOF-MS dopo la ferita fogliare. I valori includono l'ampiezza del picco, l'inizio dell'emissione, il tempo per raggiungere il picco e la pendenza massima. Questi valori illustrano il tipo di descrittori cinetici generati dal protocollo e sono forniti come esempi dimostrativi piuttosto che come confronti statistici tra specie. L'inizio dell'emissione è stato definito come il primo aumento rilevabile rispetto al valore di base pre-ferita dopo il taglio, il tempo per raggiungere il picco come l'intervallo tra il taglio e il segnale massimo, e la pendenza massima come la massima derivata prima del segnale corretto per il valore di base.
Il confronto tra le posizioni di campionamento ha mostrato che la configurazione di campionamento influenzava in modo significativo il segnale registrato (Figura 2). Il campionamento diretto all'uscita della camera preservava la rapida formazione dei picchi, mentre il campionamento successivo al tubo dell'analizzatore ritardava la formazione dei picchi e attenuava l'intensità del segnale. Questo effetto era trascurabile per l'isoprene (m/z 69), moderato per m/z 83 e più marcato per l'α-pinene (m/z 137), in accordo con una distorsione crescente legata al trasporto per composti più pesanti o reattivi10,21. L'adsorbimento sulle superfici dei tubi, il trasporto ritardato attraverso la linea di campionamento e le interazioni chimiche durante il trasporto possono allargare o attenuare i picchi di emissione, alterando così l'interpretazione della cinetica dei composti volatili9,12,21.
Un vantaggio fondamentale del presente protocollo è la sua capacità di risolvere la fase iniziale delle emissioni di composti volatili indotte da ferite. In tutte le specie, questa fase iniziale è emersa entro pochi secondi dal taglio ed è stata dominata da un picco a m/z 99, che ha mostrato sia l'ampiezza massima del picco sia la pendenza massima più ripida (Figura 3, Figura 4 e Figura 5; Tabella 1). I massimi dei picchi si sono verificati entro circa 40–57 s dal taglio, notevolmente prima rispetto ai 100–280 s generalmente riportati negli studi precedenti13,19,22. Questo spostamento probabilmente riflette la sincronizzazione tra la ferita e il rilevamento all'interno della camera, riducendo al minimo i ritardi causati dalla manipolazione delle foglie e dal trasporto attraverso la linea di campionamento.
Sincronizzando il danneggiamento e il rilevamento all'interno dello stesso contenitore, il protocollo ha inoltre risolto una cascata a livello di frammento in cui i valori m/z 43 e 57 sono aumentati immediatamente dopo il taglio, mentre il picco di m/z 45 si è verificato in un secondo momento e ha mostrato dinamiche di decadimento più ampie (Figura 3, Figura 4 e Figura 5; Tabella 1). Questo ordine è coerente con studi precedenti basati su PTR, nonostante l'assenza di separazione a livello di singolo composto rispetto alla GC-MS, in cui le emissioni iniziali sono dominate da aldeidi C6 derivate dalla lipossigenasi, seguite da alcoli e prodotti correlati a valle19,22. In linea con studi precedenti effettuati con PTR-TOF-MS, il segnale dominante a m/z 99 corrisponde a composti di tipo esenale, il cui frammento per disidratazione a m/z 81 è stato identificato come un segnale precoce importante, mentre m/z 83 riflette contributi da esenoli ed esanale22. Questa sequenza supporta ulteriormente un'organizzazione gerarchica dipendente dalle dimensioni e dal percorso metabolico, in cui composti ossigenati più piccoli e rapidamente formati vengono rilasciati prima di molecole più grandi o più complesse13,23.
Oltre ai frammenti derivati dalla lipossigenasi, il segnale a m/z 69, attribuito in via preliminare all'isoprene, ha mostrato traiettorie di emissione distinte tra gli esempi rappresentativi (Figura 3, Figura 4, e Figura 5). Q. rubra hanno mostrato emissioni sostanziali a livello basale, mentre A. platanoides e G. hirsutum producevano solo livelli traccia, coerenti con le loro note caratteristiche di emissione24,25. Tra le diverse specie, l'isoprene ha mostrato una risposta solo debole alla ferita, in accordo con quanto osservato per il suo de novo sintesi tramite la via MEP, che dipende dal metabolismo fotosintetico e pertanto è influenzata indirettamente dal danno meccanico15.
Queste dinamiche rapide rispecchiano risposte biochimiche ben consolidate delle foglie al danno meccanico. Il danno meccanico attiva rapidamente la via della lipossigenasi, che produce impulsi transitori di composti volatili C6 e composti ossigenati correlati derivanti dall'ossidazione dei lipidi di membrana5,7,17,22,23. Queste emissioni mostrano dinamiche fortemente asimmetriche, con un rapido aumento dopo la rottura del tessuto, seguito da una fase di decadimento più lenta16. Questo andamento asimmetrico nel sistema in esame si sviluppa su una scala temporale di secondi a minuti, come illustrato dai descrittori cinetici rappresentativi riassunti in Tabella 1, mentre studi che provocano ferite alle foglie all'esterno della camera riportano picchi ritardati13. Questa risoluzione anticipata permette di catturare il segnale fin dall'inizio, riduce lo sfocamento temporale e consente la quantificazione diretta sia della fase di salita che di quella di decadimento. Queste caratteristiche cinetiche definiscono complessivamente l'intera traiettoria di emissione, che approcci basati su campionamenti discreti o ritardati spesso sottostimano5,15.
Standardizzare l'evento di taglio all'interno della camera migliora ulteriormente la riproducibilità sperimentale assicurando una geometria e una gravità della ferita costanti, entrambe determinate dalla lunghezza dell'incisione e che influenzano direttamente l'entità delle emissioni di composti organici volatili (VOC)5,18,22. Tuttavia, poiché la lama di taglio occupa una posizione fissa all'interno della camera, la posizione dell'incisione è influenzata dalle dimensioni e dalla morfologia della foglia, nonché dalla necessità di mantenere una sigillatura ermetica. Ogni volta che possibile, l'incisione dovrebbe essere posizionata nella lamina intercostale, evitando il midollo e le altre vene principali. Tuttavia, l'evitamento completo delle vene principali non può sempre essere garantito, in particolare per foglie strette o di piccole dimensioni. Poiché il danno alle vene principali può alterare in modo significativo le emissioni di VOC indotte dalla ferita5, la posizione dell'incisione deve essere mantenuta il più possibile costante tra i campioni all'interno dello stesso esperimento.
Mantenere condizioni ambientali stabili è altrettanto importante per ottenere misurazioni riproducibili dei composti organici volatili (VOC) indotti da ferite. Poiché la produzione, il rilascio e il trasporto dei VOC sono influenzati dalle condizioni ambientali, temperatura, umidità, irraggiamento, concentrazione di CO2 e flusso d'aria nella camera sono stati mantenuti costanti durante tutte le misurazioni. La standardizzazione di queste variabili riduce ulteriormente la variabilità sperimentale e migliora la riproducibilità della cinetica dei VOC indotti da ferite. Inoltre, poiché il protocollo è completamente compatibile con misurazioni simultanee dello scambio gassoso, applicazioni future potranno correlare direttamente la dinamica delle emissioni di VOC ai cambiamenti nella fotosintesi e nella traspirazione in condizioni sperimentali identiche26. Tali misurazioni potrebbero aiutare a distinguere la regolazione biochimica della produzione di VOC dai processi fisici che influenzano il rilascio di composti volatili, inclusa l'evaporazione aumentata di composti ossigenati solubili in acqua dai tessuti feriti16. Di conseguenza, le differenze tra trattamenti o specie devono essere interpretate solo quando le condizioni ambientali, la geometria della ferita e il materiale vegetale, inclusa la fase di sviluppo della foglia, sono standardizzati per tutta la durata dell'esperimento12.
Sebbene i precedenti approcci basati su camere dimostrino la fattibilità di misurazioni in tempo reale delle VOC indotte da ferite, hanno anche evidenziato importanti limitazioni tecniche. Tagli irregolari, dimensioni inconsistenti delle ferite e disturbi alla sigillatura della camera hanno introdotto variabilità tra le misurazioni18,19. Inoltre, questi approcci spesso si basavano su volumi relativamente grandi della camera, il che rallentava il ricambio dell'aria, ritardava la formazione del picco e allargava i profili del segnale volatile22,27. Tali effetti risultano più marcati per composti meno volatili e possono variare con la temperatura21. Al contrario, la camera più piccola utilizzata nel presente protocollo (~8 mL di volume interno) riduce il tempo di permanenza dell'aria, contribuendo all'insorgenza più rapida osservata nelle nostre misurazioni (Figura 1).
Il protocollo è stato sviluppato per esperimenti fisiologici controllati piuttosto che per il monitoraggio diretto in situ degli ecosistemi forestali. Le misurazioni vengono effettuate su foglie ancora attaccate a pianta in condizioni ambientali ben definite, riducendo così al minimo la variabilità sperimentale e permettendo una caratterizzazione precisa della cinetica dei composti organici volatili (VOC) indotta da ferite. Le applicazioni in campo dipenderanno dalla disponibilità di sistemi portatili per lo scambio gassoso e per il rilevamento dei VOC. Tuttavia, poiché il meccanismo integrato di taglio può essere adattato a diverse configurazioni della camera con solo lievi modifiche, l'approccio dovrebbe essere facilmente trasferibile a piattaforme portatili per lo scambio gassioso e ad altre piattaforme sperimentali non appena queste tecnologie saranno disponibili. Questa flessibilità amplia le possibilità di studiare le risposte rapide allo stress nelle piante, mantenendo la risoluzione temporale necessaria per una caratterizzazione accurata della dinamica delle emissioni di VOC, facilitando così studi meccanicistici sulle prime risposte fisiologiche e biochimiche al danno fogliare.
Dichiarazioni
Gli autori dichiarano di non avere conflitti di interessi.
Ringraziamenti
Ringraziamo per il finanziamento ricevuto dal Consiglio Estone per la Ricerca (PRG2207) e dal Ministero dell'Istruzione e della Ricerca dell'Estonia (Centro di Eccellenza Agro-CropFuture, „Agroecologia e nuove colture nei climi futuri“, TK200U1).
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| Sistema GC-MS con desorbente termico TD-20 | Shimadzu | GCMS-QP2010 Plus; TD-20 | Sistema GC-MS con desorbente termico TD-20. www.shimadzu.com |
| Sistema di scambio gassoso GFS-3000 | Walz GmbH | GFS-3000 | Misurazioni dello scambio gassoso fogliare. www.walz.com |
| Elio ad alta purezza (99,999%) | Fornitore locale | N/A | Utilizzato per il condizionamento del cartuccia adsorbente e per la desorbizione termica in GC-MS. www.airliquide.com (o fornitore equivalente). |
| Standard di calibrazione per l'isoprene | Sigma-Aldrich Chemie GmbH | Personalizzato | Standard di calibrazione personalizzato per l'isoprene (3,43 ppm). www.sigmaaldrich.com |
| Pasta sigillante a basse emissioni | Fornitore locale | N/A | Utilizzata per sigillare il punto di inserimento del taglierino nella camera. |
| Cartuccia adsorbente in acciaio inossidabile con letto multiplo | Supelco | Personalizzata | Lunghezza 10,5 cm × diametro interno 3 mm; riempita con Carbotrap C (0,2 g, 20–40 mesh), Carbopack B (0,1 g, 40–60 mesh) e Carbotrap X (0,1 g, 20–40 mesh). Utilizzata per l'identificazione facoltativa offline dei composti organici volatili mediante GC-MS. www.sigmaaldrich.com |
| Pompa portatile per campionamento dell'aria a flusso costante | SKC Inc. | 210-1003MTX | Pompa portatile per campionamento dell'aria a flusso costante. |
| Spettrometro di massa PTR-TOF 8000 | Ionicon Analytik GmbH | PTR-TOF 8000 | Rilevamento di composti organici volatili. www.ionicon.com |
| Filo per saldatura in argento | Fornitore locale | N/A | Utilizzato per fissare una lama di rasoio a un'asta in acciaio inossidabile. |
| Lamina flessibile in ottone (spessore 0,2 mm) | Fornitore locale | N/A | Sopporti flessibili utilizzati per fissare il taglierino. |
| Asta in acciaio inossidabile (diametro 1 mm) | Fornitore locale | N/A | Asta di supporto per il taglierino. |
| Ago per siringa in acciaio inossidabile (diametro esterno 1,6 mm) | Fornitore locale | N/A | Alloggiamento per una lama tagliente rotante. |
| Tappi in teflon | Fornitore locale | N/A | Utilizzati per sigillare l'alloggiamento del taglierino consentendone la rotazione. |
| Connettore a T in teflon | Fornitore locale | N/A | Installato vicino all'uscita della camera per ridurre la lunghezza dei tubi. |
| Tubi in teflon (FEP o PTFE) | Fornitore locale | N/A | Linea di campionamento dei composti organici volatili tra la camera e i rivelatori. |
| Miscela gassosa di calibrazione per VOC | Ionimed GmbH | Personalizzata | 1 ppm di ciascun composto in N2; utilizzata per la calibrazione del PTR-TOF-MS. www.ionimed.com |
Riferimenti
- Bergman ME, Huang XQ, Baudino S, Caissard JC, Dudareva N. Plant volatile organic compounds: emission and perception in a changing world. Curr Opin Plant Biol. 2025;85:102706.
- Luo R, Lun X, Gao R, Wang L, Yang Y, Su X, et al. A review of biogenic volatile organic compounds from plants: research progress and future prospects. Toxics. 2025;13(5):1-35.
- Molleman F, Mandal M, Sokół-Łętowska A, Walczak U, Volf M, Mallick S, et al. Simulated herbivory affects the volatile emissions of oak saplings, while neighbourhood affects flavan-3-ols content of their leaves. J Chem Ecol. 2024;50(5-6):250-261.
- Huang PC, Berg-Falloure KM, Gao X, Meeley R, Kolomiets MV. Pentyl leaf volatiles promote insect and pathogen resistance via enhancing ketol-mediated defense responses. Plant Physiol. 2025;197(2):1-18.
- Portillo-Estrada M, Niinemets Ü. Massive release of volatile organic compounds due to leaf midrib wounding in Populus tremula. Plant Ecol. 2018;219(9):1021-1028.
- Engelberth M, Engelberth J. Leaf developmental stages strongly modulate indole emissions in response to simulated insect herbivory. Plants (Basel). 2025;14:3761.
- Matsui K. How and why plants came to smell green: the origins, biosynthesis, and roles of green leaf volatiles. J Exp Bot. 2025;76:1-14.
- Waterman JM, Cazzonelli CI, Hartley SE, Johnson SN. Simulated herbivory: the key to disentangling plant defence responses. Trends Ecol Evol. 2019;34(5):447-458.
- Tholl D, Boland W, Hansel A, Loreto F, Röse USR, Schnitzler JP. Practical approaches to plant volatile analysis. Plant J. 2006;45(4):540-560.
- Ormeño E, Goldstein A, Niinemets Ü. Extracting and trapping biogenic volatile organic compounds stored in plant species. TrAC Trends Anal Chem. 2011;30(7):978-989.
- Chang YY, Huang YM, Chang HT. Using headspace gas chromatography-mass spectrometry to investigate the volatile terpenoids released from the Liquidambar formosana leaf and its essential oil. Forests. 2024;15(9):1-12.
- Niinemets Ü, Kuhn U, Harley PC, Staudt M, Arneth A, Cescatti A, et al. Estimations of isoprenoid emission capacity from enclosure studies: measurements, data processing, quality and standardized measurement protocols. Biogeosciences. 2011;8(8):2209-2246.
- Portillo-Estrada M, Kazantsev T, Talts E, Tosens T, Niinemets Ü. Emission timetable and quantitative patterns of wound-induced volatiles across different leaf damage treatments in aspen (Populus tremula). J Chem Ecol. 2015;41(12):1105-1117.
- Waterman JM, Cofer TM, Von Laue OM, Mateo P, Wang L, Erb M. Leaf size determines damage- and herbivore-induced volatile emissions in maize. Plant Cell Environ. 2025;48(5):3766-3777.
- Yuan Y, Mao Y, Yuan H, Guo M, Zhou G, Niinemets Ü, et al. Impacts of mechanical injury on volatile emission rate and composition in 45 subtropical woody broad-leaved storage and non-storage emitters. Plants (Basel). 2025;14(5):1-40.
- Rasulov B, Talts E, Niinemets Ü. A novel approach for real-time monitoring of leaf wounding responses demonstrates unprecedentedly fast and high emissions of volatiles from cut leaves. Plant Sci. 2019;283:256-265.
- Portillo-Estrada M, Okereke CN, Jiang Y, Talts E, Kaurilind E, Niinemets Ü. Wounding-induced VOC emissions in five tropical agricultural species. Molecules. 2021;26(9):1-20.
- Mithöfer A, Wanner G, Boland W. Effects of feeding Spodoptera littoralis on lima bean leaves. II. Continuous mechanical wounding resembling insect feeding is sufficient to elicit herbivory-related volatile emission. Plant Physiol. 2005;137(3):1160-1168.
- Brilli F, Ruuskanen TM, Schnitzhofer R, Müller M, Breitenlechner M, Bittner V, et al. Detection of plant volatiles after leaf wounding and darkening by proton transfer reaction time-of-flight mass spectrometry (PTR-TOF). PLoS One. 2011;6(5):e20419.
- Kännaste A, Copolovici L, Niinemets Ü. Gas chromatography-mass spectrometry method for determination of biogenic volatile organic compounds emitted by plants. In: Rodríguez-Concepción M, editor. Plant Isoprenoids Methods and Protocols. New York (NY): Humana Press; 2014. p. 161-169.
- Schaub A, Blande JD, Graus M, Oksanen E, Holopainen JK. Real-time monitoring of herbivore-induced volatile emissions in the field. Physiol Plant. 2010;138(2):123-133.
- Fall R, Karl T, Hansel A, Jordan A, Lindinger W. Volatile organic compounds emitted after leaf wounding: on-line analysis by proton-transfer-reaction mass spectrometry. J Geophys Res Atmos. 1999;104(D13):15963-15974.
- Kaur D, Schedl A, Lafleur C, Martinez Henao J, van Dam NM, Rivoal J, et al. Arabidopsis transcriptomics reveals the role of Lipoxygenase2 (AtLOX2) in wound-induced responses. Int J Mol Sci. 2024;25(11):5898.
- Gentner DR, Ormeño E, Fares S, Ford TB, Weber R, Park JH, et al. Emissions of terpenoids, benzenoids, and other biogenic gas-phase organic compounds from agricultural crops and their potential implications for air quality. Atmos Chem Phys. 2014;14(11):5393-5413.
- Harley P, Deem G, Flint S, Caldwell M. Effects of growth under elevated UV-B on photosynthesis and isoprene emission in Quercus gambelii and Mucuna pruriens. Glob Chang Biol. 1996;2(2):149-154.
- Lobo-do-Vale R, Schenk HJ, Kübert A, Lintunen A. Gas phase in plants: integrating physiology, ecology and environmental sciences. Tree Physiol. 2026;46(13):1-4.
- Niinemets Ü. Whole plant photosynthesis. In: Flexas J, Loreto F, Medrano H, editors. Terrestrial Photosynthesis in a Changing Environment A Molecular Physiological and Ecological Approach. Cambridge: Cambridge University Press; 2012. p. 399-423.
Ristampe e permessi
Questo articolo è stato pubblicato
Video in arrivo