Questo protocollo descrive l'interruzione mediata da CRISPR-Cas9 del locus nodC in Mesorhizobium ciceri mediante riparazione guidata dall'omologia e screening basato sulla GFP, al fine di generare mutanti difettivi nella simbiosi per studi di genomica funzionale in rizobi associati al cece.
Articolo metodologico
Modifica del genoma con CRISPR-Cas9 in Mesorhizobium ciceri mediante l'interruzione di nodC per studi sulla simbiosi con il cece
* These authors contributed equally
In questo articolo
Sommario
Abstract
Mesorhizobium ciceri, un simbionte fissatore di azoto del ceci (Cicer arietinum), rimane geneticamente difficile da manipolare utilizzando approcci convenzionali di ricombinazione omologa, che sono laboriosi e spesso lasciano marcatori di selezione indesiderati. In questo protocollo, descriviamo una strategia semplificata di editing del genoma che utilizza un sistema Clustered Regularly Interspaced Short Palindromic Repeats (CRISPR)-associated protein 9 (Cas9) a ampio spettro di ospite, adattato per M. ciceri. Dimostriamo l'efficacia di questo metodo rivolgendoci a nodC, che codifica la N-acetilglucosaminiltransferasi necessaria per la sintesi del filamento di chitina nei fattori N, le principali molecole segnale coinvolte nella comunicazione molecolare simbiotica. Questo protocollo descrive in modo sistematico la progettazione di RNA guida singoli (sgRNA) e la costruzione di un template di riparo mediato da ricombinazione omologa (HDR). Il template HDR è stato progettato per facilitare l'integrazione sito-specifica di un reporter proteico verde fluorescente (GFP) ai lati del nodC sito di taglio. Dopo il trasferimento del costrutto Cas9/sgRNA/HDR mediante incrocio biparentale, i mutanti presunti sono stati identificati utilizzando un approccio di screening basato sulla fluorescenza. L'interruzione con successo del frammento di 1,3 kb nodC locus all'interno della nodulazione (nodulo) è stata inizialmente selezionata mediante la visualizzazione dell'espressione di GFP in colonie mutanti utilizzando microscopia a fluorescenza. L'interruzione è stata ulteriormente confermata mediante digestione con enzimi di restrizione, amplificazione del cassette integrato da DNA genomico e sequenziamento di Sanger. L'espressione di GFP è stata inoltre quantificata mediante reazione a catena della polimerasi quantitativa in tempo reale con trascrizione inversa. Per validare l'impatto funzionale della mutazione, sono stati eseguiti saggi di infezione su ceci, che hanno dimostrato una nodulazione compromessa nelle piante inoculate con ΔnodC M. ciceri rispetto al ceppo di tipo selvatico. Nel complesso, questo protocollo fornisce un quadro efficiente e riproducibile per lo studio preciso dell'interruzione genica e della genomica funzionale in Mesorhizobium.
Introduzione
Il sistema della nucleasi Clustered Regularly Interspaced Short Palindromic Repeats (CRISPR)-associated protein 9 (Cas9), originariamente identificato come un meccanismo immunitario adattativo nei procarioti, è stato adattato in uno strumento efficace e affidabile per la modifica del genoma1,2. Il sistema utilizza un RNA guida sintetico (sgRNA) per identificare sequenze di DNA bersaglio attraverso l'appaiamento delle basi secondo Watson-Crick. L'sgRNA è composto da 20 nucleotidi complementari alla regione genomica adiacente al motivo protospacer adiacente (PAM) NGG. Cas9 genera un'interruzione a doppio filamento (DSB) in un sito specifico all'interno della sequenza bersaglio, generalmente 3 paia di basi (bp) a monte del sito PAM1. Le DSB risultanti possono essere riparate attraverso il meccanismo di riparazione non omologa delle estremità oppure mediante riparazione guidata dall'omologia (HDR) utilizzando un template donatore3,4. Questa strategia è stata ampiamente applicata per approcci di interruzione genica, knock-in e knock-out in batteri5,6,7,8. L'obiettivo principale di questo protocollo è sviluppare un metodo efficiente di editing genomico per Mesorhizobium ciceri utilizzando un sistema CRISPR-Cas9 a vasto spettro di ospiti.
M. ciceri è un batterio del suolo Gram-negativo che funziona come endosimbionte essenziale fissatore di azoto del cece (Cicer arietinum)9. Un ceppo, M. ciceri CC1192, mostra un'elevata efficienza di nodulazione e il suo genoma è stato sequenziato10. Nonostante la sua importanza agricola, la manipolazione genetica delle specie di Mesorhizobium rimane limitata. Sistemi basati su CRISPR sono stati precedentemente implementati in altri rizobi, tra cui l'interferenza CRISPR (CRISPRi) in Rhizobium etli11, la modifica del genoma in Sinorhizobium meliloti12 e la modifica di basi in S. meliloti13. Tuttavia, non è stato ancora descritto un sistema robusto per la modifica del genoma in M. ciceri. Gli approcci convenzionali si basano sulla ricombinazione omologa mediata da plasmidi suicidi, un metodo laborioso, che richiede ripetuti cicli di selezione e spesso lascia marcatori di resistenza agli antibiotici come lesioni genomiche14.
Per superare queste limitazioni, il sistema vettoriale pCasPP, inizialmente sviluppato per Paenibacillus polymyxa, è stato adattato per l'uso in M. ciceri15. Il sistema pCasPP utilizza una Cas9 di Streptococcus pyogenes ottimizzata per codoni in attinomiceti ad alto contenuto di GC e contiene una cassetta lacZ per la selezione blu-bianca del clonaggio dell'RNA guida sotto il promotore costitutivo gapdh8. È stato effettuato un incrocio biparentale tra il ceppo donatore di Escherichia coli e il ceppo ricevente di Mesorhizobium per trasferire il vettore di editing16. Per migliorare l'efficienza della selezione, la variante della proteina fluorescente verde (GFP) bjGFP, inizialmente ottimizzata per codoni in Bradyrhizobium diazoefficiens, è stata inserita nel modello donatore di riparazione mediante ricombinazione omologa (HDR)16. Questa strategia di screening basata sulla fluorescenza è stata applicata per colpire il locus essenziale nodC, necessario per le fasi iniziali della segnalazione simbiotica tra il batterio e il cece17,18.
Questo protocollo fornisce un'alternativa precisa ed efficiente ai metodi di mutagenesi chimica casuale o mediante ultravioletti (UV). Negli esperimenti di validazione, oltre l'80% delle colonie ottenute ha mostrato fluorescenza GFP, e colonie rappresentative modificate sono state ulteriormente confermate mediante reazione a catena della polimerasi (PCR) e sequenziamento di Sanger. I mutanti risultanti ΔnodC M. ciceri costituiscono una risorsa utile per lo studio della segnalazione simbiotica e delle interazioni ospite-microbo. Nel complesso, questo approccio offre alla comunità di ricerca sugli rhizobi un metodo efficiente e scalabile per studi di genomica funzionale in Mesorhizobium.
Protocollo
Tutti i protocolli sperimentali che prevedevano la crescita delle piante, l'inoculazione microbica e la manipolazione di batteri geneticamente modificati sono stati condotti in conformità con le linee guida e le normative istituzionali. La coltivazione delle piante e le inoculazioni batteriche sono state eseguite in condizioni controllate all'interno di camere di crescita. Il ceppo di M. ciceri utilizzato in questo studio è classificato come microorganismo di Livello di Sicurezza Biologica 1 (BSL-1). Poiché tutti gli esperimenti sono stati condotti in condizioni di laboratorio controllate, senza rilascio nell'ambiente, non è stata richiesta un'approvazione formale di biosicurezza da parte dell'istituzione, in conformità alle politiche istituzionali in materia di biosicurezza. Tutti i rifiuti biologici prodotti durante lo studio sono stati sterilizzati in autoclave prima dello smaltimento.
1. Preparazione di cellule competenti
I ceppi di E. coli DH5α e E. coli S17-1λpir chimicamente competenti sono stati preparati e convalidati secondo la procedura descritta nel File Supplementare 1.
2. Progettazione dell'RNA guida
- Progettazione delle RNA guida
- Aprire la piattaforma Benchling (https://benchling.com/). Accedere a un account Benchling esistente o crearne uno nuovo.
- Creare un nuovo progetto e aprire lo strumento di progettazione delle guide CRISPR.
- Caricare o incollare la sequenza completa di DNA bersaglio per la progettazione dell'RNA guida. Selezionare l'opzione di progettazione "Singola guida" e impostare la lunghezza della guida a 20 bp.
- Selezionare il genoma di riferimento tra le opzioni disponibili. Per la progettazione dell'RNA guida rivolto a M. ciceri, selezionare Bradyrhizobium diazoefficiens USDA 110 come genoma di riferimento. Utilizzare NGG come motivo protospaziale adiacente al PAM (PAM) richiesto per l'attività di Streptococcus pyogenes Cas9 (SpCas9).
- Utilizzare l'algoritmo di Hsu et al.19 per calcolare le frequenze previste di taglio fuori bersaglio. Mantenere un punteggio soglia di ≥50 per minimizzare il taglio non specifico sullo sfondo del genoma di riferimento.
- Utilizzare l'algoritmo Doench-Root20 per calcolare i punteggi previsti di efficienza sul bersaglio. Impostare una soglia di selezione del bersaglio di ≥60 per identificare le guide con un'efficienza prevista favorevole di scissione Cas9 nel locus bersaglio.
- Fare clic su "Fine" per generare l'elenco delle RNA guida candidate.
- Selezione delle RNA guida
- Aprire il pannello di output delle RNA guida.
- Dare priorità alle sgRNA candidate previste per generare una rottura a doppio filamento entro 100 bp dal codone di inizio della traduzione (ATG), aumentando la probabilità di produrre una proteina non funzionale.
- Valutare i punteggi fuori bersaglio e sul bersaglio. Dare priorità a un punteggio più alto fuori bersaglio rispetto a un punteggio leggermente più alto sul bersaglio per ridurre il rischio di scissione fuori bersaglio non intenzionale.
- Selezionare una o due RNA guida singole candidate (sgRNA) che soddisfano tutti i criteri di selezione.
- Preparazione degli oligonucleotidi gRNA
- Generare la sequenza complementare inversa dell'RNA guida selezionato.
- Aggiungere la sequenza 5′-ACGC all'estremità 5′ dell'RNA guida e aggiungere la sequenza 5′-AAAC all'estremità 5′ del filamento complementare inverso.
- Ordinare entrambi gli oligonucleotidi con fosforilazione 5′ e purificazione PAGE su scala di sintesi di 25 nmol.
- Appaiamento degli oligonucleotidi gRNA
- Preparare un tampone HEPES 30 mM sciogliendo 7,15 g di acido HEPES libero in circa 800 mL di acqua distillata. Regolare il pH a 7,8 utilizzando idrossido di sodio e portare il volume finale a 1 L.
- Risospenderе ciascun oligonucleotide fosforilato in acqua priva di nucleasi a una concentrazione finale di 100 µM. Combinare 5 µL di ciascun oligonucleotide con 90 µL di tampone HEPES 30 mM in una provetta sterile per microcentrifuga.
- Vortexare brevemente e centrifugare per raccogliere il liquido. Appaiare gli oligonucleotidi in un termociclatore incubando a 95°C per 5 min e raffreddando a 4°C con una velocità di rampa di 0,1°C/s.
- Diluire gli oligonucleotidi appaiati 10 volte utilizzando acqua priva di nucleasi.
- Assemblaggio della gRNA nel vettore pCasPP
- Reperire il vettore pCasPP descritto in precedenza da Rütering et al.15.
- La sequenza plasmidica è stata fornita da Jochen Schmid, e il costrutto utilizzato in questo studio è stato ottenuto tramite il dottor Syed Shams Yazdani (ICGEB).
- Assemblare una reazione Golden Gate contenente 100 ng di vettore pCasPP, 0,3 µL di inserto oligonucleotidico appaiato, 2 µL di tampone 10× per T4 DNA ligasi, 1 µL di T4 DNA ligasi, 1 µL di enzima di restrizione BbsI e acqua priva di nucleasi fino a un volume finale di 20 µL.
- Preparare una reazione di controllo negativo sostituendo l'inserto con acqua priva di nucleasi.
- Mescolare delicatamente le reazioni e centrifugare brevemente.
- Condizioni di termociclaggio per l'assemblaggio Golden Gate
- Caricare le provette della reazione in un termociclatore. Eseguire nove cicli costituiti da 37°C per 10 min seguiti da 16°C per 10 min.
- Incubare le reazioni a 50°C per 5 min e poi a 65°C per 20 min. Mantenere le reazioni a 4°C fino all'uso.
- Trasformazione delle reazioni di assemblaggio
- Scongelare 50 µL di cellule competenti di Escherichia coli DH5α sul ghiaccio per 10–15 min.
- Aggiungere 3 µL di ciascuna reazione di assemblaggio Golden Gate alle cellule competenti. Processare contemporaneamente la reazione di controllo negativo. Incubare le miscele sul ghiaccio per 30 min.
- Sottoporre le cellule a shock termico a 42°C per 45 s e riportare immediatamente le provette sul ghiaccio per 2 min. Aggiungere 950 µL di brodo Super Ottimale con repressione da cataboliti (SOC).
- Preparare il mezzo SOC contenente 0,5% estratto di lievito, 2% triptone, 10 mM NaCl, 2,5 mM KCl, 10 mM MgCl₂, 10 mM MgSO₄ e 20 mM glucosio. Sterilizzare il mezzo per filtrazione utilizzando un filtro a siringa da 0,4 µm in condizioni asettiche.
- Incubare le colture a 37°C e 180 rpm per 1 h.
- Selezione dei trasformanti positivi
- Preparare piastre di agar LB supplementate con 50 µg/mL di neomicina, 0,2 mM isopropil β-D-1-tiogalattopiranoside (IPTG) e 32 mg/L di 5-bromo-4-cloro-3-indolil β-D-galattopiranoside (X-gal). Seminare 100 µL della coltura di recupero sulle piastre selettive. Incubare le piastre a 37°C per 12–16 h.
- Selezionare le colonie bianche e scartare quelle blu. Verificare che la piastra di controllo negativo contenga meno di cinque colonie.
- Selezione e amplificazione dei cloni positivi
- Trasferire tre o quattro colonie bianche indipendenti su piastre fresche di agar LB selettivo.
- Incubare le piastre a 37°C per 12–16 h. Inoculare colonie singole in 10 mL di mezzo LB supplementato con 50 µg/mL di neomicina.
- Processare ciascun costrutto di RNA guida in modo indipendente durante tutto il flusso di lavoro successivo.
- Convalida dei costrutti pCasPP-gRNA
- Raccogliere le colture batteriche mediante centrifugazione. Isolare il DNA plasmidico utilizzando un kit di purificazione del plasmide basato su colonne in silice.
- Digerire il DNA plasmidico isolato con XbaI ed EcoRI nel tampone di reazione appropriato per 1 h a 37°C.
- Risolvere i prodotti di digestione su un gel di agarosio al 1% preparato in tampone 1× Tris-acetato-EDTA (TAE) contenente bromuro di etidio a una concentrazione finale di 0,5 µg/mL.
- Eseguire l'elettroforesi a 90–110 V fino a quando il fronte del colorante migra per circa il 70–80% della lunghezza del gel. Visualizzare i frammenti di DNA utilizzando un transilluminatore UV.
- Confermare i cloni positivi rilevando un frammento di 1.280 bp e identificare i controlli del vettore vuoto rilevando un frammento di 1.630 bp. Il vettore pCasPP vuoto è di circa 9.663 bp e contiene un gene lacZ; l'inserzione dell'oligonucleotide gRNA di 24 bp rimuove il frammento lacZ, producendo un costrutto pCasPP più piccolo contenente la gRNA. I siti di restrizione XbaI ed EcoRI che delimitano la regione lacZ vengono utilizzati per la conferma diagnostica del clonaggio della gRNA.
- Preparazione delle scorte glicerolate
- Coltivare un clone positivo confermato in mezzo LB selettivo.
- Preparare una scorta glicerolata mescolando 700 µL di coltura in fase logaritmica con 300 µL di glicerolo sterile al 50%. Trasferire la miscela in cryovials sterili. Conservare le scorte glicerolate a −80°C.
NOTA: Evitare cicli ripetuti di congelamento-scongelamento. Preparare più aliquote per mantenere la stabilità del plasmide e la vitalità batterica. La reazione di assemblaggio Golden Gate completata può essere conservata a 4°C per una notte o a −20°C per 1–2 settimane prima della trasformazione.
3. Assemblaggio del modello di riparazione guidata dall'omologia
- Preparazione del frammento di DNA contenente la proteina fluorescente verde (GFP)
- Ottenere il plasmide pRJPaph-bjGFP contenente la cassetta del reporter fluorescente16 (Tabella 1)10,15,16,21,22,23Il plasmide è stato fornito dal Prof. Hans-Martin Fischer (ETH Zurigo, Svizzera) ed è disponibile tramite Addgene (Plasmid #67032).
- Estrarre la cassetta gfp da pRJPaph-bjGFP mediante digestione di restrizione con SacI e KpnI come descritto in File Supplementare 2 (Step 3.1). La sequenza gfp in pRJPaph-bjGFP è un gene sintetico bjGFP ottimizzato nei codoni per Bradyrhizobium diazoefficiens.
- Purificare il frammento di gfp di 1081 bp previsto.
- Costruzione di pUC18-gfp
- Ottenere il vettore pUC18 (plasmide Addgene #50004)21.
- Linearizzare il pUC18 utilizzando SacI e KpnI come descritto in File Supplementare 2 (Passo 3.2).
- Ligare il frammento di gfp purificato nel vettore pUC18 linearizzato come descritto in File Supplementare 2 (Passo 3.2).
- Trasformare cellule competenti E. coli DH5α cellule utilizzando la procedura di trasformazione descritta al punto 2.7, sostituendo la miscela di ligazione ottenuta al punto 3.2.3 alla reazione di assemblaggio Golden Gate.
- Selezionare i transformanti positivi e verificare l'inserzione di gfp mediante reazione a catena della polimerasi (PCR) su colonie come descritto in File Supplementare 2 (Passo 3.2).
- Amplificazione dei Bracci di Omologia
- Progettare primer per amplificare bracci di omologia a monte (UHA) e a valle (DHA) di circa 400–500 pb dal DNA genomico di M. ciceri (Tabella 2).
- Incorporare i siti di restrizione SacI/EcoRI nei primer UHA e i siti di restrizione XbaI/KpnI nei primer DHA. Utilizzare i primer F_nodC_Up_EcoRI e R_nodC_Up_SacI per l'amplificazione dell'UHA e i primer F_nodCdown_KpnI e R_nodCdown_XbaI per l'amplificazione del DHA (Tabella 2).
- Isolare M. ciceri DNA genomico secondo Weerakkody et al.25.
- Amplificare e purificare i frammenti UHA e DHA come descritto in File Supplementare 2 (Passo 3.3).
- Costruzione di pUC18-UHA-gfp
- Clonare il frammento UHA in pUC18-gfp utilizzando EcoRI e SacI come descritto in File Supplementare 2 (Passo 3.4)
- Verificare l'assemblaggio corretto del plasmide mediante digestione di restrizione con XbaI e KpnI. Un assemblaggio corretto dovrebbe generare frammenti di circa 500 e 3725 pb.
- Procedere con una singola linea clonale verificata.
- Costruzione di pUC18-UHA-gfp-DHA
- Clonare il frammento DHA in pUC18-UHA-gfp utilizzando KpnI e XbaI come descritto in File Supplementare 2 (Passo 3.5).
- Verificare il corretto assemblaggio mediante digestione con SacI ed EcoRI. Un assemblaggio corretto dovrebbe generare frammenti di circa 400 e 4271 pa.
- Verificare 5-6 cloni candidati mediante sequenziamento Sanger utilizzando i primer F_nodC_Up_EcoRI, BjGFP_BP_F1 e R_nodCdown_XbaI (Tabella 2), che insieme coprono la maggior parte della sequenza del cassetto di riparazione mediata da ricombinazione omologa (Homology-Directed Repair, HDR).
- Amplificazione e Purificazione del Template Finale di HDR
- Amplificare l'intera cassetta HDR utilizzando i primer F_FL_nodCgfp_XbaI e R_nodCdown_XbaI (Tabella 2).
- Purificare il frammento HDR previsto di 2012 pb e digerire il prodotto PCR purificato con XbaI come descritto in File Supplementare 2 (Passo 3.6)
- Preparazione dei vettori pCasPP-gRNA
- Recuperare i plasmidi pCasPP-gRNA1 e pCasPP-gRNA2 generati al Passaggio 2.
- Linearizzare i plasmidi con XbaI e deprivare di fosfato il vettore come descritto in File Supplementare 2 (Passo 3.7)
- Clonaggio del modello HDR in vettori pCasPP-gRNA
- Ligare la cassetta HDR in pCasPP-gRNA1 o pCasPP-gRNA2 linearizzati con XbaI come descritto in File Supplementare 2 (Passo 3.8).
- Trasformare cellule competenti E. coli DH5α cellule e selezionare i trasformanti su agar LB contenente 50 µg/mL neomicina
- Selezione di Cloni Contenenti HDR
- Selezionare i trasformanti in base alla fluorescenza GFP utilizzando un microscopio stereoscopico a fluorescenza dotato di un set di filtri standard per GFP (eccitazione 470–488 nm; emissione 507–510 nm).
- Classificare le colonie come GFP-positive in base alla presenza di una fluorescenza verde distinta e uniforme, chiaramente superiore alla debole autofluorescenza osservata nelle colonie di controllo negative non modificate.
- Espandere le colonie positive per GFP e isolare il DNA plasmidico.
- Convalida dell'Assemblaggio del Vettore per la Ricombinazione Omologa
- Confermare l'inserzione HDR mediante digestione con l'enzima di restrizione XbaI.
- Verificare l'avvenuta assemblaggio mediante il rilascio del frammento HDR di 2012 pa previsto, insieme a un vettore pCasPP-gRNA di circa 9.300 pa.
NOTA: Dopo l'inattivazione termica delle enzimi di restrizione e della fosfatasi, le miscele di reazione possono essere conservate a 4°C per tutta la notte o a −20°C per un massimo di 1 mese. Conservare i costrutti plasmidici confermati a −20°C per la conservazione a lungo termine.
| Stirpe o plasmide | Descrizione | Riferimento | ||||
| Mesorhizobium ciceri CC1192 | Stirpe ricevente utilizzata per la modifica genomica mediante CRISPR-Cas9 e per i saggi di nodulazione del ceci | Haskett et al.10 | ||||
| pCasPP | Vettore per la modifica genomica mediante CRISPR-Cas9, utilizzato per il clonaggio dell'RNA guida e il trasferimento del modello HDR | Rütering et al.15 | ||||
| pRJPaph-bjGFP | Plasmide reporter GFP utilizzato come fonte del cassetta GFP (Addgene plasmid #67032) | Ledermann et al.16 | ||||
| pUC18 | Vettore generico per clonaggio utilizzato per l'assemblaggio del modello HDR (Addgene plasmid #50004) | Norrander et al.21 | ||||
| Escherichia coli S17-1λpir | Stirpe donatrice utilizzata per la coniugazione biparentale | Simon et al.22 | ||||
| Escherichia coli DH5α | Ceppo ospite per clonaggio utilizzato per la propagazione dei plasmidi | Hanahan et al.23 | ||||
Tabella 1: Stirpi batteriche e plasmidi utilizzati in questo studio. Questa tabella elenca le stirpi batteriche e i plasmidi utilizzati per la propagazione dei plasmidi, la modifica genomica mediata da CRISPR-Cas9, l'assemblaggio del template per la riparazione diretta da omologia (HDR), l'incrocio biparentale e l'etichettatura fluorescente di Mesorhizobium ciceri CC1192.
| Categoria | Nome | Sequenza (5′  3′) o descrizione |
| Stirpe batterica | Escherichia coli DH5α | Stirpe ospite per clonaggio |
| Stirpe batterica | Escherichia coli S17-1λpir | Stirpe donatrice per accoppiamento biparentale |
| Vettore di clonaggio | pUC18 | Vettore di base per clonaggio |
| Vettore CRISPR | pCasPP | Vettore CRISPR-Cas9 a ampio spettro di ospiti |
| Plasmide reporter | pRJPaph-bjGFP | Plasmide reporter GFP |
| Primer | F_guide1_BbsI | pACGCTGTTTACAGAGGCATGCAAG |
| Primer | R_guide1_BbsI | pAAACCTTGCATGCCTCTGTAAACA |
| Primer | F_guide2_BbsI | pACGCGCTTGTTCGGATCCGACCGT |
| Primer | R_guide2_BbsI | pAAACACGGTCGGATCCGAACAAGC |
| Primer | F_nodC_Up_EcoRI | AAAGAATTCCTCATTGCAAGCCAGCAGT |
| Primer | R_nodC_Up_SacI | AAAGAGCTCCGGAAAGCTTGTTTCGGATCC |
| Primer | F_nodCdown_KpnI | AAAGGTACCTCGAGAGCACCGCATAAGAC |
| Primer | R_nodCdown_XbaI | AATTCTAGATGGTTCGGTACTTTCGTGCA |
| Primer | F_FL_nodCgfp_XbaI | AAATTCTAGACTCATTGCAAGCCAGCCAGT |
| Primer | BjGFP_BP_F1 | GAAGTTCATCTGCACCACCG |
| Primer | BjGFP_BP_R1 | GTCCTTGAACGAGATGGTGC |
| Primer | BjGFP_BP_F2 | CCAACTTCAAGATCCGCCAC |
| Primer | GFP_R | CCAACTTCAAGATCCGCCAC |
| Primer | BjGFP_BP_R2 | CTTGTACAGCTCGTCCATGC |
| Primer | 16S_F1 | ATCCTGGCTCAGAACGAACG |
| Primer | 16S_R1 | ATTCCCACGCGTTACTCACC |
| Primer | 16S_F2 | AGTCCGAGAGGGTGAGTGG |
| Primer | 16S_R2 | GTCAGTACCGAGCCAGTGAG |
| Primer | F1_nodC | CGATTTCCAGAACCGTCGTC |
| Primer | nodC_R | CGATTTCCAGAACCGTCGTC |
| Primer | R1_nodC | TCCCCTGCTACAATGAGGAC |
| Primer | F2_nodC | AGTGACTCCGCAATTCCAGA |
| Primer | R2_nodC | TGTCGGTAAAAGTGTTTCCC |
| Primer | F1_nodB | TGGTTCGGTACTTTCGTGCA |
| Primer | R1_nodB | AGTCGCGTGGATCAATGGAC |
| Primer | F1_nodA | TGATCGTCGCTGAATTGGGC |
| Primer | R1_nodA | CAACTGATGGAGCACTGGGT |
| Primer | F1_nodD | TGGCCTTAAGAGACGTGTCG |
| Primer | R1_nodD | AAATGCCTGACCAGCCGTAA |
Tabella 2: Stirpi batteriche, plasmidi e primer oligonucleotidici utilizzati in questo studio. Questa tabella elenca le stirpi batteriche, i plasmidi e i primer oligonucleotidici utilizzati per la costruzione dell'RNA guida singolo (sgRNA), l'assemblaggio del template per la riparazione diretta dall'omologia (HDR), la reazione a catena della polimerasi (PCR) diagnostica, il sequenziamento Sanger e la reazione a catena della polimerasi quantitativa con trascrizione inversa (RT-qPCR). Le sequenze dei primer sono riportate in orientamento 5′ 3′. Nota: BjGFP_BP_F2 e GFP_R si riferiscono alla stessa sequenza oligonucleotidica ma sono elencati con nomi di primer diversi perché utilizzati in saggi sperimentali differenti.
4. Incrocio biparentale per il trasferimento del plasmide in M. ciceri CC1192
- Trasformazione delle cellule donatrici di E. coli
- Trasformare le cellule di E. coli S17-1λpir con i costrutti pCasPP-gRNA1-HDR o pCasPP-gRNA2-HDR seguendo la procedura descritta nel File Supplementare 3 (Passaggio 4.1).
- Selezionare i trasformanti su agar LB contenente 50 µg/mL di neomicina.
- Analizzare i trasformanti per la fluorescenza della GFP utilizzando un'illuminazione a circa 488 nm e rilevando l'emissione a circa 510–520 nm.
- Classificare le colonie come GFP-positive se mostrano una fluorescenza verde uniforme e distinta, assente nelle colonie di controllo di E. coli S17-1λpir non trasformato, quando esaminate con le stesse impostazioni del microscopio.
- Preparare stock glicerolati da cloni donatori GFP-positivi confermati.
- Preparazione delle colture seme e di avviamento
- Preparare le colture di avviamento di E. coli S17-1λpir donatore e di M. ciceri ricevente seguendo il File Supplementare 3 (Passaggio 4.2).
- Far crescere le colture di avviamento fino a un OD₆₀₀ di 0.3–0.4, corrispondente a una densità cellulare stimata di circa 1 × 10⁸ UFC/mL.
- Preparazione delle sottocolture per l'incrocio biparentale
- Preparare le sottocolture donatrici e riceventi e farle crescere fino alla fase esponenziale richiesta seguendo il File Supplementare 3 (Passaggio 4.3).
- Misurare la densità ottica a 600 nm (OD600) utilizzando uno spettrofotometro UV–visibile secondo la procedura di misurazione della densità ottica descritta nel File Supplementare 1 (Passaggio 1.2.3).
- Procedura di incrocio biparentale
- Eseguire l'incrocio biparentale mediante filtro membranoso seguendo il File Supplementare 3 (Passaggio 4.4).
- Piastrare quattro aliquote della sospensione di incrocio su un filtro membranoso sterile in poliviniliden fluoruro (PVDF) da 0,22 µm (diametro 47 mm), assicurandosi di mantenere un'adeguata distanza tra i punti per evitare mescolamenti.
- Ripristino e selezione dei transconuganti
- Ripristinare i transconuganti ed eseguire la selezione con doppio antibiotico seguendo il File Supplementare 3 (Passaggio 4.5).
- Passare ripetutamente i transconuganti su mezzo contenente solo carbenicillina per eliminare i plasmidi residui.
- Confermare l'eliminazione del plasmidica mediante l'assenza di crescita su mezzo contenente neomicina e mediante PCR diagnostica che dimostri la mancanza del backbone pCasPP, mantenendo però la cassetta HDR integrata nel cromosoma.
NOTA: È necessario effettuare passaggi successivi per verificare la stabilità della modifica integrata ed eliminare i plasmidi episomiali residui.
- Selezione delle colonie GFP-positive
- Analizzare i transconuganti purificati per la fluorescenza della GFP e confrontarli con i controlli di M. ciceri selvatico seguendo il File Supplementare 3 (Passaggio 4.6).
- Selezionare le colonie fluorescenti come ceppi putativamente positivi per HDR.
- Classificare le colonie come GFP-positive se mostrano una fluorescenza verde uniforme e distinta, assente nelle colonie di M. ciceri selvatico quando esaminate con le stesse impostazioni del microscopio e condizioni di esposizione.
- Confermare le colonie GFP-positive mediante PCR diagnostica prima di procedere alla validazione successiva.
- Conservare le colonie confermate su agar mannosio lievito (YM) a 4°C per la manutenzione a breve termine o come stock glicerolati contenenti 20%–25% di glicerolo a −80°C per la conservazione a lungo termine.
5. Convalida dei mutanti nodC
- Convalida dell'integrazione di GFP nel locus nodC
- Inoculare un singolo ceppo esprimente GFP M. ciceri colonia in 10 mL di brodo di lievito e mannitolo (YMB) integrato con 100 µg/mL carbenicillina24. Incubare la coltura a 28°C con agitazione a 180 giri/min per 20–24 h.
- Raccogliere le cellule batteriche mediante centrifugazione a 8.000 × g per 10 min a 25°C. Raccogliere il pellet cellulare e isolare il DNA genomico secondo Weerakkody et al.25.
- Eseguire una PCR diagnostica utilizzando il DNA genomico come stampo (Tabella 2). Preparare un 10 µL reazione PCR contenente 5 µL 2× PCR Master Mix, 0.2 µM Primers F1_nodB e nodC_R oppure primers F1_nodB e gfp_R, e 50 ng di DNA genomico.
- Programmare il termociclatore per una denaturazione iniziale a 95°C per 5 min, seguiti da 35 cicli di 95°C per 1 minuto, 62°C per 30 s, e 72°C per 45 s, con un'estensione finale a 72°C per 5 min.
- Separare i prodotti PCR su un gel di agarosio al 1% (p/v) come descritto in precedenza. Confermare l'integrazione di GFP rilevando un prodotto di circa 430 pb nel tipo selvatico (WT) e un prodotto di circa 1500 pb nel mutante interrotto utilizzando i primer F1_nodB/nodC_R, e un prodotto di circa 1000 pb nel mutante (nessun prodotto nel WT) utilizzando i primer F1_nodB/gfp_R.
- Includere controlli appropriati durante la validazione della PCR. Utilizzare un DNA plasmidico contenente la sequenza bersaglio come controllo positivo e un controllo senza stampo (NTC) contenente acqua priva di nucleasi come controllo negativo.
- Quantificazione dell'espressione di GFP mediante reazione a catena della polimerasi quantitativa con trascrizione inversa (RT-qPCR)
- Isolare l'RNA totale da WT e mutante M. ciceri colture utilizzando il reagente TRIzol seguendo le istruzioni del produttore.
- Trattare l'RNA con DNasi I seguendo le istruzioni del produttore per rimuovere il DNA genomico contaminante. Verificare la completa rimozione del DNA utilizzando un controllo senza trascrittasi inversa (−RT) durante la qPCR.
- Sintetizzare il cDNA del primo filamento da 1 µg RNA totale utilizzando un kit commerciale per la sintesi del primo filamento di cDNA seguendo le istruzioni del produttore. Preparare un 20 µL reazione contenente RNA, primer oligo(dT), dNTP, tampone di reazione, inibitore della RNasi e trascrittasi inversa
- Incubare la reazione di sintesi del cDNA a 42°C per 60 min seguito da inattivazione termica a 70°C per 5 min. Conservare il cDNA a −20°C fino all'uso.
- Preparare le reazioni di RT-qPCR in triplicato tecnico. Assemblare 10 µL reazioni contenenti 5 µL 2× SYBR Green Master Mix, 0.2 µM Primers BjGFP_BP_F1 e BjGFP_BP_R1 per l'amplificazione di GFP, oppure primers 16S_F1 e 16S_R1 per l'amplificazione del gene di riferimento (Tabella 2), 2 µL modello di cDNA (circa 20 ng) e acqua priva di nucleasi.
- Eseguire l'RT-qPCR utilizzando le seguenti condizioni di ciclaggio: denaturazione iniziale a 95°C per 2 min, seguiti da 40 cicli di 95°C per 15 s e 58°C per 45 s, seguito da analisi della curva di denaturazione da 65°C a 95°C.
- Eseguire una qRT-PCR utilizzando un sistema di rilevamento in tempo reale Bio-Rad CFX96. Analizzare i tracciati di amplificazione, i valori Ct valori e curve di denaturazione utilizzando il software Bio-Rad CFX Manager.
- Calcolare l'espressione genica relativa utilizzando il metodo 2−ΔΔCt metodo. Normalizzare l'espressione rispetto al gene di riferimento 16S rRNA e utilizzare il WT M. ciceri utilizzare ceppo come campione calibratore. Analizzare tre replicati biologici, ciascuno misurato in triplicato tecnico.
- Valutazione del Potenziale di Nodulazione
- Preparazione dell'inoculo batterico
- Inoculare singole colonie di ceppi WT e mutanti in YMB selettivo contenente 100 µg/mL carbenicillina. Incubare le colture a 28°C con agitazione a 180 giri/min per 30–36 h.
- Diluire le colture 1:100 in YMB selettivo fresco e monitorare la crescita misurando l'OD600 utilizzando uno spettrofotometro UV-Visibile. Azzerare lo strumento con YMB non inoculato e continuare l'incubazione fino a quando le colture raggiungono un OD600 compreso tra 0,3 e 0,4, corrispondente a circa 1 × 10⁸ UFC/mL
- Utilizzare 3 mL della sospensione batterica standardizzata per l'inoculazione di ogni pianta.
- Saggio di Infezione della Pianta di Ceci
- Ottenere semi di C. arietinum cultivar BDG25618,24 dall'ICAR–Indian Agricultural Research Institute (IARI), Nuova Delhi, India
- Lavare accuratamente i semi con acqua corrente del rubinetto, seguita da acqua purificata Milli-Q. Sterilizzare la superficie dei semi con ipoclorito di sodio al 1% per 5 minuti sotto agitazione, quindi risciacquare cinque volte con acqua purificata sterile.
- Trattare i semi con fungicida Bavistin allo 0,1% (polvere bagnabile al 50% di carbendazim) per 2–3 h a temperatura ambiente. Lavare i semi trattati due volte con acqua purificata sterile.
- Posizionare i semi su carta filtro sterile e umida in piastre di Petri sterili (110 mm) × 40 mm), sigillare con Parafilm e incubare al buio a 28°C ± 2°C per 3 giorni.
- Trasferire individualmente le piantine germinate nella sabbia sterile. Sterilizzare la sabbia a 121°C e 15 psi per 20 minuti prima dell'uso.
- Preparare la soluzione nutritiva priva di azoto di McKnight sciogliendo 6,0 g di CaSO₄, 1,0 g di MgSO₄₄·7H₂O, 1,0 g KH₂PO₄, 1,5 g di KCl, 14,3 mg di H₃BO₃, 0,4 mg di CuSO₄₄·5H₂O, 0,08 mg di MnSO₄₄·4H₂O, 0,45 mg H₂MoO₄e 1,1 mg di ZnSO₄·7H₂O in acqua distillata sterile fino a un volume finale di 5 L.
- Coltivare le piantine in vasi di 10 cm di diametro contenenti sabbia sterile, mantenendo quattro piante per vaso. Irrigare ogni vaso due volte alla settimana con 20 mL di soluzione di McKnight priva di azoto.
- Mantenere le piante in condizioni controllate di 22°C ± 2°C (giorno), 18°C ± 2°C (notte), umidità relativa del 55%–60%, fotoperiodo di 16 h di luce/8 h di buio e intensità luminosa di 200 µmol fotoni m⁻2 s⁻1. Coltivare le piantine per 6-7 giorni prima dell'inoculazione.
- Applicare direttamente 3 mL di sospensione batterica a ciascun seme germogliato. Mantenere i controlli trattati con soluzione fittizia applicando 3 mL di YMB sterile. Utilizzare 16 piante come repliche biologiche per ciascun gruppo di trattamento.
- Raccogliere radici e germogli 20 giorni dopo l'inoculazione. Contare manualmente i noduli e registrare immediatamente la biomassa fresca dopo il raccolto.
- Tessuti secchi a 65°C fino al raggiungimento di un peso costante. Definire peso costante come due misurazioni consecutive ottenute dopo intervalli di essiccazione di 24 h che differiscano tra loro di <0,01 g, quindi registrare la biomassa secca.
- Esprimere i risultati come media ± errore standard (ES). Eseguire un'ANOVA ad un fattore seguita dal test di confronto multiplo di Tukey utilizzando GraphPad Prism versione 10.0, considerando P < 0,05 significativo dal punto di vista statistico.
NOTA: Mantenere condizioni sterili durante tutta la sterilizzazione dei semi, la germinazione, l'inoculazione e la crescita delle piante.
ATTENZIONE: Manipolare le soluzioni di ipoclorito di sodio e i fungicidi utilizzando dispositivi di protezione individuale adeguati, inclusi guanti e protezione per gli occhi.
- Preparazione dell'inoculo batterico
Risultati
In questo protocollo, la modifica del genoma mediante CRISPR-Cas9 è stata adattata per M. ciceri CC1192 mirando il locus nodC. Per favorire la perdita di funzione, sono state progettate sgRNA per colpire la regione prossimale 5′ della sequenza codificante di nodC, introducendo così un'interruzione doppio filamento (DSB) nella regione iniziale codificante al fine di interrompere la traduzione della proteina codificata (Figura 1A).
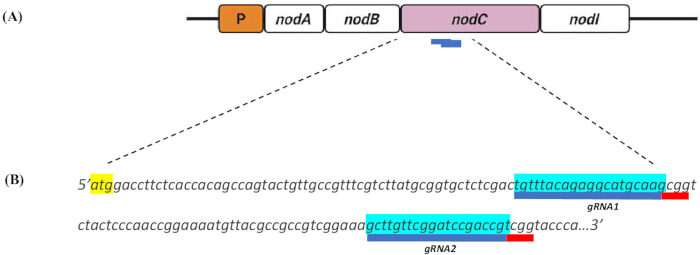
Figura 1. Progettazione di RNA guida singoli (sgRNA) che bersagliano il nodC locus in Mesorhizobium ciceri. (A) Rappresentazione schematica del M. ciceri nodC locus che mostra le posizioni dei due sgRNA di 20 bp progettati per il targeting mediato da CRISPR-Cas9. I siti bersaglio degli sgRNA sono indicati in blu. (B) Sequenze nucleotidiche di sgRNA1 e sgRNA2 mirate al nodC locus. Il motivo del protospacer adiacente (PAM; 5′-NGG-3′) è indicato in rosso, e il nodC il codone di inizio della traduzione (ATG) è evidenziato in giallo. Cliccare qui per visualizzare una versione ingrandita di questa figura.
Sono state identificate due sequenze bersaglio di 20 bp immediatamente a monte di un 5′-NGG-3′ sequenza PAM (Figura 1B). Analisi in silico di questi sgRNA candidati mediante l'algoritmo di Hsu et al.19 hanno prodotto punteggi di specificità pari a 100, indicando un'elevata specificità predetta del bersaglio, senza rilevare complementarietà significative fuori bersaglio all'interno del M. ciceri genoma. Sono state osservate lievi differenze nei punteggi di efficienza prevista in-target delle sgRNA selezionate (Tabella 3), che ha orientato la selezione delle guide per la successiva valutazione sperimentale.
| Posizione del target (bp) | Filo | Sequenza sgRNA (5′ 3′) | PAM | Punteggio di specificità | Punteggio di efficienza | |
| 77 | + | TGTTTACAGAGGCATGCAAG | CGG | 100 | 43.58 | |
| 139 | + | GCTTGTTCGGATCCGACCGT | TGG | 99.7 | 47.63 | |
Tabella 3: RNA guida singoli (sgRNA) candidati progettati per la modifica del gene nodC in Mesorhizobium ciceri mediante CRISPR-Cas9. Gli sgRNA candidati sono stati progettati utilizzando lo strumento di progettazione guide CRISPR di Benchling, con il genoma di riferimento di Bradyrhizobium diazoefficiens USDA 110. Le guide sono state ordinate in base ai punteggi previsti per specificità ed efficienza sul bersaglio, e sono state selezionate quelle che mirano a sequenze adiacenti al codone di inizio traduzionale di nodC e che contengono il motivo protospaziatore adiacente (PAM) NGG richiesto per la Cas9 di Streptococcus pyogenes (SpCas9).
Per facilitare la ricombinazione genica mediante riparazione del doppio filamento (HDR) e lo screening basato sulla fluorescenza di mutanti putativi, è stata assemblata una cassetta HDR utilizzando il vettore di clonaggio pUC18 (Figura 2). La cassetta reporter gfp è stata escissa da pRJPaph-bjGFP mediante digestione con gli enzimi di restrizione SacI e KpnI e legata nel vettore lineare pUC18 (Figura 2A). Dopo la trasformazione in E. coli, le clone putative positive sono state identificate mediante screening bianco-blu. L'integrazione dell'inserto gfp nel vettore pUC18 è stata ulteriormente confermata tramite amplificazione PCR con primer specifici per il gene, che ha prodotto un amplicone di 500 bp delle dimensioni previste nelle clone positive (Figura 2A).
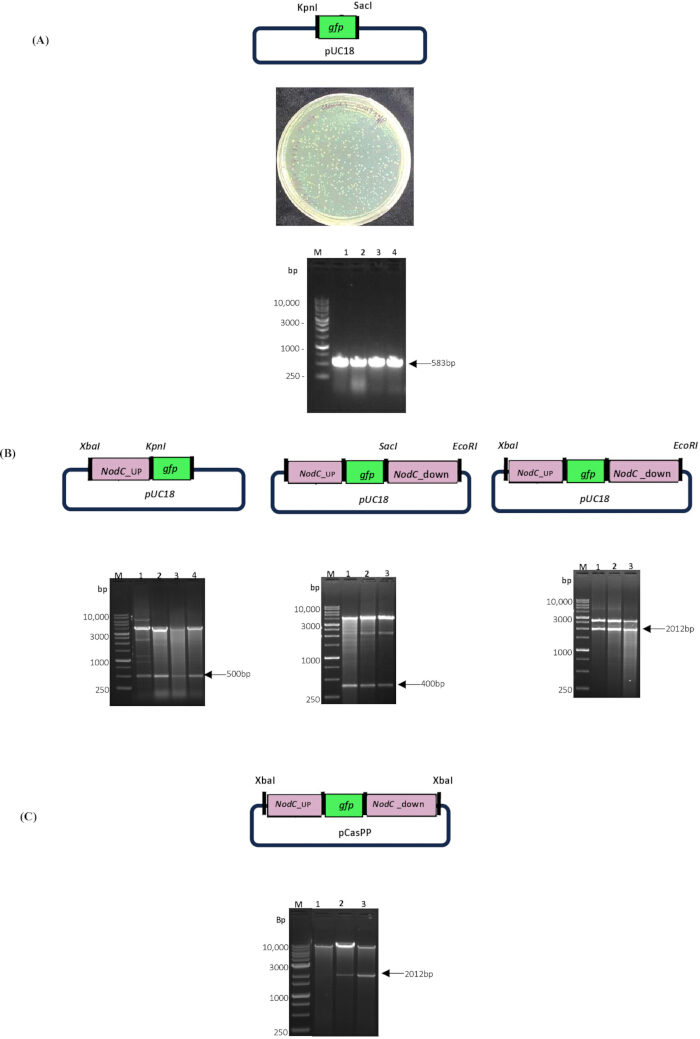
Figura 2. Costruzione del sistema di riparazione guidata da omologia (HDR) CRISPR-Cas9 per l'interruzione di nodC. (A) Costruzione e validazione del plasmide intermedio pUC18-gfp. Il pannello superiore mostra la mappa del plasmide pUC18-gfp ottenuta inserendo il cassetto della proteina fluorescente verde (gfp) nel vettore pUC18. Il pannello centrale mostra colonie rappresentative dopo lo screening bianco-blu. Il pannello inferiore mostra la validazione mediante reazione a catena della polimerasi (PCR) delle colonie, utilizzando la coppia di primer BjGFP_BP_F1 e BjGFP_BP_R2. (B) Assemblaggio sequenziale del modello HDR nel vettore pUC18. Le mappe plasmidiche e l'analisi mediante digestione con enzimi di restrizione confermano l'inserimento del braccio di omologia upstream (UHA), del braccio di omologia downstream (DHA) e dell'intero cassetto UHA-gfp-DHA per l'HDR. (C) Clonaggio e validazione del cassetto UHA-gfp-DHA per l'HDR nel vettore CRISPR-Cas9 pCasPP. Il pannello superiore mostra la mappa finale del plasmide pCasPP-HDR, mentre il pannello inferiore mostra la digestione con enzimi di restrizione che conferma l'inserimento del cassetto HDR. Cliccare qui per visualizzare una versione ingrandita di questa figura.
Il costrutto HDR è stato successivamente assemblato introducendo bracci di omologia nodC che delimitano il cassetto gfp. Un UHA di 500 bp e un DHA di 400 bp, posizionati adiacenti al sito previsto di scissione da parte di Cas9, sono stati clonati in modo sequenziale nel costrutto pUC18-gfp mediante digestione da enzimi di restrizione e legatura (Figura 2B). L'assemblaggio del cassetto UHA-gfp-DHA è stato confermato tramite analisi di digestione da enzimi di restrizione, che ha prodotto il frammento atteso di 2012 bp (Figura 2B). L'intero cassetto HDR è stato quindi sottoclonato nel vettore CRISPR a vasta ospite pCasPP (Figura 2C). L'analisi di digestione da enzimi di restrizione ha confermato l'integrità del costrutto finale e l'avvenuto assemblaggio del vettore di consegna per la modifica del genoma di M. ciceri (Figura 2C).
L'accoppiamento biparentale è stato eseguito tra il donatore E. coli S17-1λpir e il ceppo ricevente M. ciceri per trasferire il costrutto pCasPP-gRNA-HDR in M. ciceri (Figura 3A). Figura 3B illustra l'organizzazione dell'operone nod e la sostituzione prevista del locus nodC mediante inserzione del cassetto gfp attraverso ricombinazione omologa utilizzando il template HDR. Le colonie transcongiugate sono state inizialmente identificate mediante screening della fluorescenza GFP dopo l'accoppiamento biparentale (Figura 3B e 3C). Oltre l'80% delle colonie ottenute ha mostrato fluorescenza GFP con gRNA2, e oltre il 65% delle colonie ha mostrato fluorescenza dopo l'introduzione di gRNA1 (Figura 3C). Poiché lo screening della fluorescenza da solo non permette di distinguere l'espressione di GFP portata da un plasmide dall'integrazione genomica riuscita, è stata effettuata una validazione molecolare successiva per confermare l'inserzione specifica del cassetto reporter nel locus bersaglio.
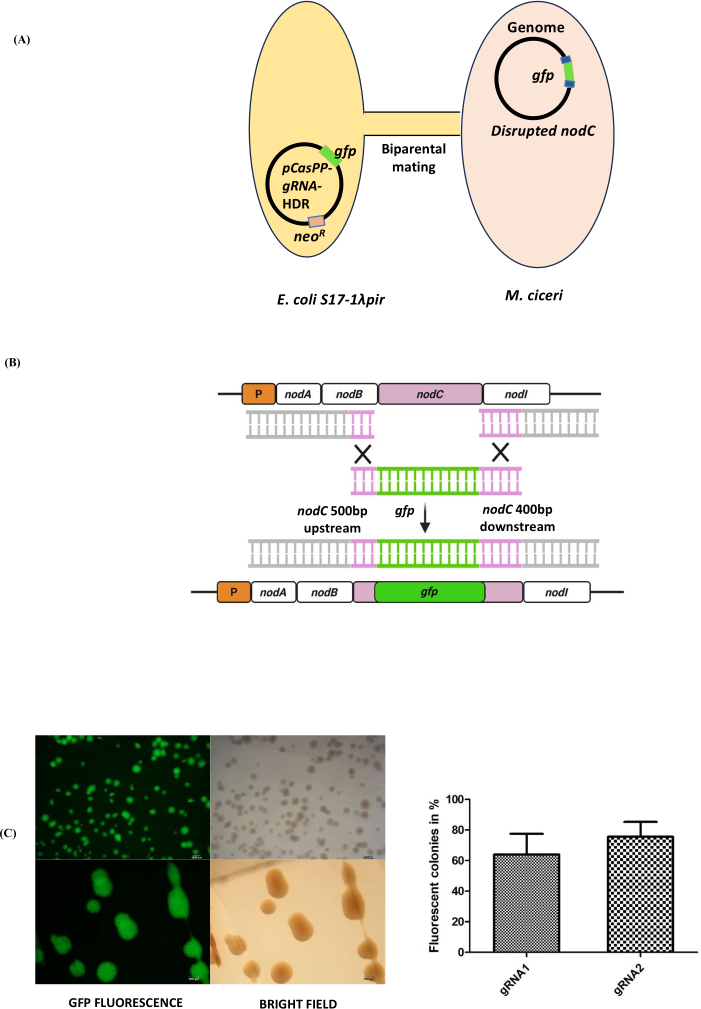
Figura 3. Interruzione mediata da CRISPR-Cas9 del locus nodC in Mesorhizobium ciceri. (A) Illustrazione schematica dell'incrocio biparentale utilizzato per trasferire il costrutto pCasPP-gRNA-HDR da cellule donatrici Escherichia coli S17-1λpir a cellule riceventi M. ciceri. (B) Diagramma che illustra la sostituzione del locus nodC con la cassetta gfp mediata da riparazione guidata dall'omologia (HDR) a seguito del taglio da parte di CRISPR-Cas9. Il modello HDR contiene bracci di omologia di circa 500 pb a monte e 400 pb a valle che delimitano la cassetta gfp. (C) Screening basato sulla fluorescenza delle colonie di M. ciceri transconjuganti. Sono mostrate immagini rappresentative ottenute mediante microscopia stereoscopica in fluorescenza e in campo chiaro di colonie positive per GFP, insieme alla percentuale di transconjuganti fluorescenti isolati dopo l'incrocio biparentale utilizzando costrutti contenenti sgRNA1 o sgRNA2. Le barre di errore rappresentano la deviazione standard. Cliccare qui per visualizzare una versione ingrandita di questa figura.
Per validare l'integrazione del cassetto gfp nel locus nodC, colonie rappresentative positive per GFP sono state sottoposte ad analisi PCR. L'amplificazione della regione genomica compresa tra nodB e nodC ha prodotto un frammento di 1511 bp nei cloni modificati, coerente con l'integrazione del cassetto del reporter, mentre il ceppo selvatico (WT) ha prodotto un amplicone di 430 bp (Figura 4A). L'amplificazione PCR utilizzando primer specifici per gfp e primer adiacenti a nodC ha generato un frammento distinto di 997 bp nei cloni modificati, mentre nessuna amplificazione è stata rilevata nel controllo WT, confermando l'inserzione specifica per locus. L'orientamento del cassetto del reporter è stato confermato mediante sequenziamento di Sanger. Inoltre, l'espressione di GFP nei ceppi modificati è stata valutata mediante RT-qPCR, che ha dimostrato un accumulo aumentato di trascritti GFP rispetto al ceppo WT (Figura 4B). I valori di espressione sono stati calcolati utilizzando il metodo 2−ΔΔCt e normalizzati al gene di riferimento 16s, con il ceppo WT come controllo. I dati rappresentano la media ± DS di tre replicati biologici (n = 3). La significatività statistica è stata determinata mediante ANOVA ad un fattore seguita dal test di Dunnett rispetto al controllo WT.
L'attuale limite dello studio è l'assenza di un vettore di controllo, come un pCasPP-HDR con gRNA vuoto, per stabilire il coefficiente di ricombinazione di base. Studi futuri dovrebbero includere un simile controllo.
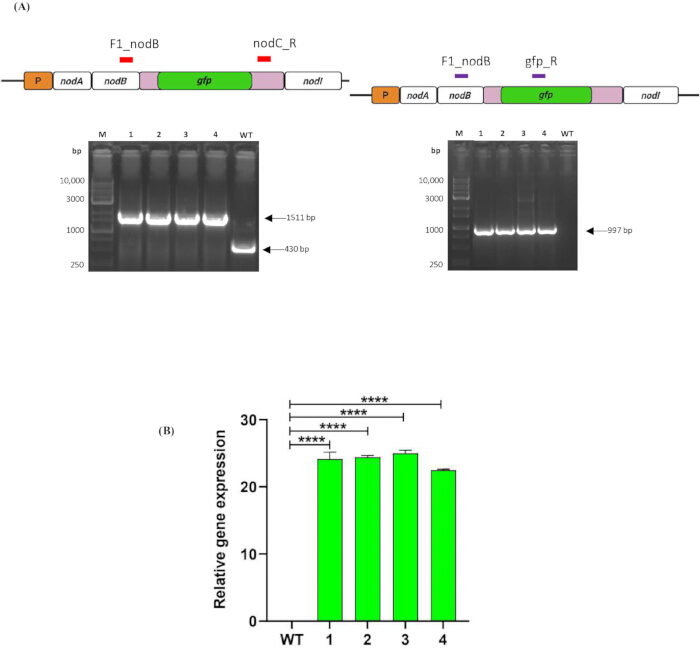
Figura 4. Convalida molecolare dei mutanti ΔnodC Mesorhizobium ciceri. (A) Conferma basata sulla PCR dell'interruzione di nodC. Il pannello sinistro mostra l'amplificazione utilizzando la coppia di primer F1_nodB e nodC_R. Linea M, scala di DNA; linee 1–4, mutanti ΔnodC M. ciceri; linea WT, M. ciceri di tipo selvatico. Il pannello destro mostra l'amplificazione utilizzando la coppia di primer F1_nodB e gfp_R. Linea M, scala di DNA; linee 1–4, mutanti ΔnodC M. ciceri; linea WT, M. ciceri di tipo selvatico. Le dimensioni attese degli ampliconi sono indicate. (B) Espressione relativa della proteina verde fluorescente (GFP) nei mutanti ΔnodC M. ciceri determinata mediante reazione a catena della polimerasi quantitativa in tempo reale con trascrizione inversa (RT-qPCR). L'espressione genica è stata normalizzata rispetto al gene di riferimento dell'RNA ribosomiale 16S (16S rRNA) di M. ciceri ed espressa in rapporto al controllo di tipo selvatico (WT) utilizzando il metodo 2^−ΔΔCt. Le barre di errore rappresentano la deviazione standard. La significatività statistica è stata determinata in confronto al controllo WT. Cliccare qui per visualizzare una versione ingrandita di questa figura.
L'impatto biologico di nodC la rottura è stata valutata mediante saggi di infezione su ceci. Piante inoculate con WT M. ciceri formavano noduli radicali visibili, mentre le piante inoculate con ΔnodC M. ciceri hanno mostrato una riduzione evidente o l'assenza di nodulazione (Figura 5A). Le piante del controllo non inoculato sono rimaste prive di noduli, a conferma del mantenimento delle condizioni sperimentali sterili (Figura 5A). L'analisi quantitativa dei parametri della crescita vegetale ha ulteriormente evidenziato differenze tra WT e ΔnodC M. ciceripiante inoculate, inclusi la lunghezza delle radici, il peso fresco delle radici, il peso secco delle radici, la lunghezza della parte aerea, il peso fresco della parte aerea, il peso secco della parte aerea e il numero di noduli (Figura 5B). Le piante inoculate con ceppo selvatico hanno mostrato un numero maggiore di noduli e parametri associati alla crescita migliorati rispetto a ΔnodC M. ciceripiante di controllo inoculate e non inoculate. Questi risultati sono coerenti con un'interruzione di nodC-associata alla nodulazione e supportano l'applicabilità di questo flusso di lavoro basato su CRISPR-Cas9 per studi di genomica funzionale in M. ciceri. I dati quantitativi relativi al fenotipo vegetale sono stati valutati per confrontare le differenze tra i gruppi sottoposti a trattamento. Un totale di 90 repliche biologiche è stato incluso nell'analisi (n = 30 piante per gruppo di trattamento). I dati sono presentati come media ± SD. La significatività statistica è stata valutata mediante analisi della varianza ad un fattore (ANOVA) seguita dal test post hoc di Tukey per confronti multipli. Le differenze sono state considerate statisticamente significative per P < 0.05.
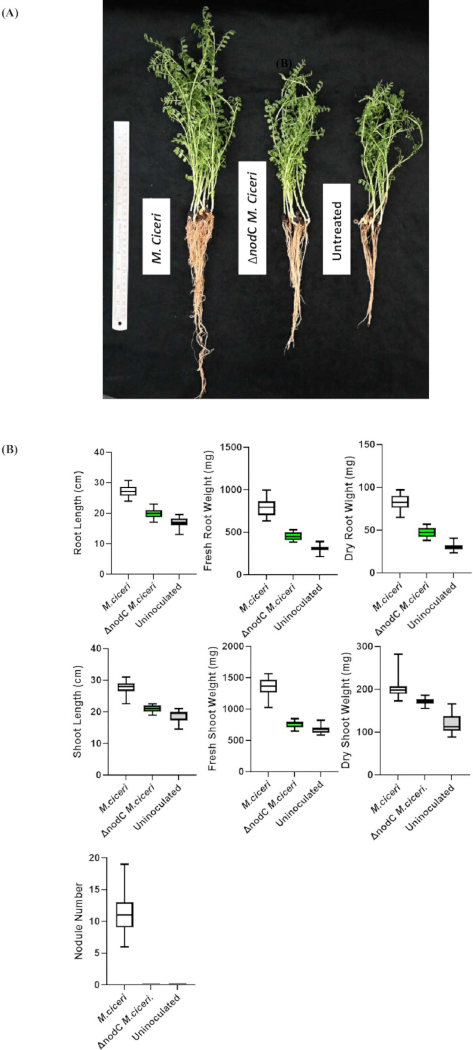
Figura 5. Convalida funzionale di mutanti ΔnodC Mesorhizobium ciceri mediante un saggio di infezione su ceci. (A) Piante rappresentative di cece (Cicer arietinum) a 20 giorni dall'inoculazione con M. ciceri di tipo selvatico, ΔnodC M. ciceri o controlli non inoculati. (B) Analisi quantitativa dei parametri di crescita della pianta e di nodulazione, inclusi la lunghezza della radice, il peso fresco della radice, il peso secco della radice, la lunghezza della parte aerea, il peso fresco della parte aerea, il peso secco della parte aerea e il numero di noduli. I dati sono riportati per piante inoculate con M. ciceri di tipo selvatico, ΔnodC M. ciceri o controlli non inoculati. Le barre di errore rappresentano la deviazione standard. La significatività statistica è stata determinata mediante analisi della varianza ad un fattore (ANOVA) seguita dal test di confronto multiplo di Tukey. Cliccare qui per visualizzare una versione ingrandita di questa figura.
File Supplementare 1. Protocollo dettagliato per la preparazione e la validazione di cellule di Escherichia coli chimicamente competenti. Questo file supplementare fornisce la procedura completa per la preparazione e la validazione di cellule di Escherichia coli DH5α e di E. coli S17-1λpir chimicamente competenti, inclusa la preparazione della coltura batterica, l'induzione della competenza, il raccolto cellulare, il lavaggio con tampone CaCl₂–glicerolo, l'allestimento di aliquote, la criopreservazione e la validazione mediante test di efficienza di trasformazione. Sono inoltre inclusi misure critiche di controllo qualità, raccomandazioni per lo stoccaggio e criteri di accettazione della competenza. Cliccare qui per scaricare il file.
File Supplementare 2. Protocollo dettagliato per la costruzione di modelli di riparazione guidata da omologia (HDR) e l'assemblaggio di vettori per la modifica del genoma mediante CRISPR-Cas9. Questo file supplementare fornisce procedure dettagliate per l'escissione del cassetto della proteina fluorescente verde (GFP), la costruzione del plasmide intermedio pUC18-gfp, l'amplificazione e il clonaggio dei bracci di omologia a monte e a valle, l'assemblaggio del modello completo di riparazione guidata da omologia (HDR), la preparazione dei vettori pCasPP-RNA guida (gRNA), l'inserimento dei modelli HDR nei plasmidi CRISPR-Cas9, lo screening dei cloni basato sulla fluorescenza e la validazione dei plasmidi ricombinanti mediante analisi con enzimi di restrizione e sequenziamento di Sanger. Cliccare qui per scaricare questo file.
File Supplementare 3. Protocollo dettagliato per l'incrocio biparentale e la generazione di transconjuganti di Mesorhizobium ciceri marcati con GFP. Questo file supplementare descrive la preparazione dei ceppi donatori e ricettori, l'incrocio biparentale mediante filtro membranoso, il recupero e la selezione antibiotica dei transconjuganti, le procedure di eliminazione del plasmide, lo screening basato sulla fluorescenza delle colonie ricombinanti, la conferma molecolare dei ceppi modificati a livello genomico e la conservazione a breve e a lungo termine dei transconjuganti di M. ciceri positivi al GFP. Vengono fornite condizioni di coltura, parametri di incrocio e procedure di selezione dettagliate. Cliccare qui per scaricare il file.
Discussione
L'istaurazione di un sistema di editing genomico CRISPR-Cas9 in M. ciceri affronta una limitazione tecnica fondamentale nella manipolazione genetica di questo simbionte fissatore di azoto, di importante rilevanza agricola. Interrompendo il locus nodC mediante un reporter gfp e la riparazione mediante ricombinazione omologa (HDR), questo protocollo fornisce un approccio assistito da fluorescenza per la modifica genomica mirata in M. ciceri.
I tradizionali approcci di manipolazione genetica nei rizobi si sono basati principalmente sulla mutagenesi casuale mediata da Tn5 o sullo scambio allelico mediato da sacB19,26,27. Sebbene questi approcci rimangano validi, sono laboriosi, spesso richiedono più cicli di contro-selezione e possono lasciare marcatori di resistenza agli antibiotici all'interno del genoma, complicando ulteriori round di modifica. Al contrario, la modifica del genoma mediata da CRISPR-Cas9 offre un'alternativa più mirata ed efficiente per l'ingegneria genomica. Studi recenti hanno riportato l'uso di sistemi basati su CRISPR per la modifica di basi e su Cas12e in S. meliloti al fine di ridurre la tossicità associata a Cas912,13, mentre la repressione trascrizionale mediata da dCas9 è stata esplorata in R. etli11. Per quanto ne sappiamo, questo studio rappresenta una delle prime applicazioni della perturbazione cromosomica mediata da CRISPR-Cas9 in M. ciceri. Il protocollo incorpora un indirizzamento guidato da sgRNA, il trasferimento del plasmide mediante doppia parentale e la ricombinazione mediata da HDR per una modifica specifica del locus. L'integrazione del reporter gfp all'interno del cassetto HDR facilita inoltre uno screening rapido basato sulla fluorescenza delle colonie potenzialmente modificate, riducendo così il numero di colonie che richiedono una successiva validazione molecolare.
Diversi fattori sono stati importanti per l'implementazione con successo del flusso di lavoro. La selezione di sgRNA con elevata specificità predetta ha ridotto al minimo gli effetti fuori bersaglio potenziali all'interno del genoma di M. ciceri, mentre il mantenimento dell'integrità dei bracci di omologia ha favorito l'efficienza della ricombinazione mediata da HDR. Inoltre, l'ottimizzazione delle condizioni di crescita del donatore e del ricevente durante l'incrocio biparentale ha migliorato il recupero dei transconjuganti. Lo screening basato sulla fluorescenza ha permesso l'identificazione rapida di mutanti putativi; tuttavia, la validazione molecolare mediante PCR e sequenziamento di Sanger è stata comunque necessaria per confermare l'integrazione specifica del cassetta reporter a livello del locus. Studi futuri potrebbero utilizzare un vettore controllo pCasPP-HDR con gRNA vuoto per quantificare il coefficiente di ricombinazione di base.
Oltre ai progressi metodologici, questa piattaforma potrebbe supportare futuri studi volti a indagare la segnalazione simbiotica e la genomica funzionale nei rizobi associati al ceci28. Ceci (Cicer arietinum L.) rappresenta una coltura leguminosa di importanza globale e un contributo fondamentale per sistemi agricoli sostenibili29,30. Il ΔnodC M. ciceri Il ceppo generato in questo studio fornisce un background genetico potenzialmente utile per lo studio della compatibilità ospite-microbo e delle vie di segnalazione associate alla nodulazione. Studi precedenti hanno suggerito che gli RNA di piccole dimensioni (sRNA) svolgono la funzione di effettori regolatori durante la simbiosi iniziale del nodulo radicale.31Di conseguenza, la nodulazione-deficiente ΔnodC M. ciceri Il ceppo descritto in questo studio potrebbe facilitare futuri studi incentrati sui meccanismi molecolari alla base della comunicazione rizosferica e della simbiosi fissatrice di azoto.
Dichiarazioni
Gli autori dichiarano di non avere interessi finanziari in conflitto o conflitti di interesse.
Ringraziamenti
Questo lavoro è sostenuto dal Dipartimento di Biotecnologia (DBT) tramite la borsa MK Bhan HRD-16016/15/2023-AFS-DBT assegnata alla dott.ssa Nandita Pasari. Il lavoro è inoltre sostenuto da una borsa fondamentale assegnata al dott. Senjuti Sinharoy dall'Istituto Nazionale di Ricerca sul Genoma delle Piante, Nuova Delhi, India.
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| Agarosio | Genetix | PG-40005 | Elettroforesi su gel |
| Foglio di alluminio | Rolia’s | GF83048115 | Uso generale in laboratorio |
| Agar batteriologico | HiMedia | GRM026 | Preparazione di terreni |
| Piattaforma per la progettazione di guide CRISPR Benchling | Benchling | N/A | Progettazione di RNA guida |
| Acido borico | HiMedia | PCT0102 | Preparazione della soluzione di McKnight’s |
| Beuta conica in vetro borosilicato | Sigma | CLS5100500 | Preparazione di colture |
| Tubi in vetro borosilicato | Sigma | DWK73500-1075 | Preparazione di colture |
| Cloruro di calcio diidrato | HiMedia | MB034 | Preparazione di cellule competenti |
| Solfato di calcio diidrato | HiMedia | GRM328 | Preparazione della soluzione di McKnight’s |
| Carbenicillina disodica | Duchefa Biochemie | DUC-C0109.005-18 | Utilizzata a 100 µg/mL |
| Kit per la sintesi di cDNA | Thermo Fisher Scientific | AB1543A | Sintesi di cDNA |
| Pellicola trasparente | OA | 10954049 | Uso generale in laboratorio |
| Kit di clonaggio/T4 DNA ligasi | Thermo Fisher Scientific | K1422 | Reazioni di ligazione |
| Rosso Congo | HiMedia | 573-58-0 | Lavorazione di colture microbiche |
| Pentaidrato di solfato di rame(II) | HiMedia | PCT0104 | Preparazione della soluzione di McKnight’s |
| Tubo per colture | Borosil | 9800U08 | Coltivazione di colture batteriche primarie; 15 cm × 2,5 cm |
| Phmetro digitale | Eutech Instruments | EC PH TUTOR DS | Regolazione del pH |
| Fosfato bicalico | HiMedia | TC596M | Preparazione di YMB |
| Scala molecolare per DNA | BIO-HELIX | DM015-R500 | Elettroforesi su gel |
| Kit per l'eliminazione della DNasi | Invitrogen | AM1907 | Rimozione del DNA dall'RNA isolato |
| Mix di dNTP | Thermo Scientific | R0181 | Amplificazione PCR |
| Etilene | Sigma-Aldrich | 1.00983.0511 | Utilizzato al 75% |
| Bromuro di etidio | Sigma-Aldrich | E1510 | Colorazione del DNA su gel |
| Fosfatasi alcalina termosensibile FastAP | Thermo Fisher Scientific | EF0651 | Deposforilazione del vettore durante il clonaggio |
| Buffer FastDigest | Thermo Fisher Scientific | B64 | Digestione con enzimi di restrizione |
| Cloruro ferrico anidro | HiMedia | TC583 | Preparazione della soluzione di McKnight’s |
| Stereo microscopio a fluorescenza | Nikon | SMZ25 | Selezione di GFP |
| Fungicida, Bavistin | Crystal Crop Protection | Bavistin Carbendazim 50% WP | Trattamento dei semi |
| Kit per estrazione da gel | QIAGEN | 28704 | Purificazione del DNA |
| Glicerolo | Thermo Fisher Scientific | Q24505 | Cellule competenti/banche di glicerolo |
| Incubatore con agitatore orbitale | MRC | LOM-150 | Coltura batterica |
| Guanti monouso | Kimtech | 97612 | Equipaggiamento di protezione individuale |
| HEPES | HiMedia | MB016 | Appaiamento di oligonucleotidi |
| IPTG | G Biosciences | RC1113D | Selezione bianco-blu |
| Cappa a flusso laminare | Biolink | BL-H1300 | Manipolazione sterile |
| Agar LB | HiMedia | M1151 | Piastre per colture batteriche |
| Brodo LB | HiMedia | G1245 | Coltura batterica |
| Solfato di magnesio | HiMedia | GRM1281-500G | Preparazione di YMB |
| Solfato eptaidrato di magnesio | HiMedia | PCT0008 | Preparazione della soluzione di McKnight’s |
| Tetraidrato di solfato di manganese(II) | Sigma-Aldrich | M3634 | Preparazione della soluzione di McKnight’s |
| Mannitolo | HiMedia | MB198 | Preparazione di YMB |
| Soluzione di McKnight’s | Preparata in laboratorio | N/A | Soluzione nutritiva per piante |
| Punte micro, 0,2–10 µL | Tarsons | 521000 | Maneggiamento di liquidi |
| Punte micro, 2–200 µL | Tarsons | 521010 | Maneggiamento di liquidi |
| Punte micro, 200–1000 µL | Tarsons | 521020X | Maneggiamento di liquidi |
| Microprovette, 0,5 mL | Tarsons | 500000 | Maneggiamento del campione |
| Microprovette, 1,5 mL | Tarsons | 500010 | Maneggiamento del campione |
| Microprovette, 2,0 mL | Tarsons | 500020 | Maneggiamento del campione |
| Acido molibdico | Sigma-Aldrich | 232084 | Preparazione della soluzione di McKnight’s |
| Spettrofotometro NanoDrop | Thermo Fisher Scientific | 13-400-519 | Quantificazione di DNA/RNA |
| Neomicina | Duchefa Biochemie | M0135 | Utilizzata a 50 µg/mL |
| Acqua priva di nucleasi | HiMedia | ML064-100ML | Uso in biologia molecolare |
| Master mix PCR | Thermo Fisher Scientific | K0171 | Master mix 2× |
| Strisce per provette PCR, 0,2 mL | Tarsons | 610040 | Impostazione della PCR |
| Piastre di Petri, 90 mm | PSC | 2041 | Piastre con agar |
| Pipetta, 0,1–2,5 µL | Eppendorf | N10178M | Maneggiamento di liquidi |
| Pipetta, 0,5–10 µL | Eppendorf | H40069L | Maneggiamento di liquidi |
| Pipetta, 2–20 µL | Eppendorf | H30046M | Maneggiamento di liquidi |
| Pipetta, 10–100 µL | Eppendorf | I00395M | Maneggiamento di liquidi |
| Pipetta, 20–200 µL | Eppendorf | M38186M | Maneggiamento di liquidi |
| Pipetta, 100–1000 µL | Eppendorf | N20610M | Maneggiamento di liquidi |
| Kit per estrazione di DNA plasmidico | QIAGEN | 12143 | Isolamento di plasmidi |
| Cloruro di potassio | HiMedia | TC010 | Preparazione della soluzione di McKnight’s |
| Fosfato monopotassico anidro | HiMedia | TC011M | Preparazione della soluzione di McKnight’s |
| Filtro in membrana PVDF, 0,22 µm, 47 mm | MilliporeSigma | GVWP04700 | Accoppiamento biparentale |
| Apparecchio per PCR quantitativa in tempo reale | Bio-Rad | CFX96 | RT-qPCR |
| Centrifuga da banco refrigerata | Eppendorf | 04-987-373 | Raccolta delle cellule |
| Enzima di restrizione, BbsI | Thermo Fisher Scientific | ER1011 | Clonaggio di gRNA |
| Enzima di restrizione, EcoRI | Thermo Fisher Scientific | FD0274 | Clonaggio |
| Enzima di restrizione, KpnI | Thermo Fisher Scientific | FD0524 | Clonaggio |
| Enzima di restrizione, SacI | Thermo Fisher Scientific | FD1133 | Clonaggio |
| Enzima di restrizione, XbaI | Thermo Fisher Scientific | FD0684 | Clonaggio |
| DNasi priva di RNasi | QIAGEN | 79254 | Purificazione dell'RNA |
| Sabbia | Ram Surat | Sand | Substrato per la crescita delle piante |
| Sequenziatore | Applied Biosystems | ABI3730xl DNA Analyzer | Sequenziamento Sanger |
| Mezzo SOC | Preparato in laboratorio | N/A | Ripresa dopo trasformazione |
| Cloruro di sodio | HiMedia | TC046 | Preparazione di terreni |
| Idrossido di sodio | HiMedia | PCT1325 | Regolazione del pH di HEPES |
| Lama chirurgica sterile | Medicare Surgical | 16020 | Escissione del gel/manipolazione dei tessuti |
| Siringa sterile | HMD Dispovan | 10ml syringe without needle | Filtrazione sterile |
| Filtro per siringa sterile, 0,22 µm | Merck Millex Durapore | 12766842 | Sterilizzazione per filtrazione |
| Master mix SYBR Green | New England Biolabs | M3003E | RT-qPCR |
| Tetraciclina | Duchefa Biochemie | T01050 | Utilizzata a 5 µg/mL |
| Ciclatore termico | Applied Biosystems | A24811 | Amplificazione PCR |
| Rotolo di carta assorbente | Rolia’s | 07AAECR4885K1ZT | Uso generale in laboratorio |
| Reagente TRIzol | Invitrogen | 15596026 | Isolamento di RNA |
| Transilluminatore UV | Analytik Jena | TW-43 | Visualizzazione del gel |
| Spettrofotometro UV-Vis | Eppendorf | D30 | Misurazione dell'OD600 |
| Cuvette per spettrofotometro visibile | Eppendorf | 30079345 | Misurazione dell'OD600 |
| Mixer vortex | Neuation | iSWIX-VT | Miscelazione del campione |
| X-gal | G Biosciences | RC1233 | Selezione bianco-blu |
| Estratto di lievito | HiMedia | RM668-500G | Preparazione di terreni |
| Setteidrato di solfato di zinco | Sigma-Aldrich | Z0251 | Preparazione della soluzione di McKnight’s |
Riferimenti
- Doudna JA, Charpentier E. The new frontier of genome engineering with CRISPR-Cas9. Science. 2014;346(6213):1258096.
- Jiang W, Bikard D, Cox D, Zhang F, Marraffini LA. RNA-guided editing of bacterial genomes using CRISPR-Cas systems. Nature biotechnology. 2013;31(3):233-9.
- Bertrand C, Thibessard A, Bruand C, Lecointe F, Leblond P. Bacterial NHEJ: a never ending story. Molecular microbiology. 2019;111(5):1139-51.
- Loureiro A, da Silva GJ. Crispr-cas: Converting a bacterial defence mechanism into a state-of-the-art genetic manipulation tool. Antibiotics. 2019;8(1):18.
- Altenbuchner J. Editing of the Bacillus subtilis genome by the CRISPR-Cas9 system. Applied and environmental microbiology. 2016;82(17):5421-7.
- Wang Y, et al. Bacterial genome editing with CRISPR-Cas9: deletion, integration, single nucleotide modification, and desirable “clean” mutant selection in Clostridium beijerinckii as an example. ACS synthetic biology. 2016;5(7):721-32.
- Oh J-H, van Pijkeren J-P. CRISPR–Cas9-assisted recombineering in Lactobacillus reuteri. Nucleic acids research. 2014;42(17):e131-e.
- Cobb RE, Wang Y, Zhao H. High-efficiency multiplex genome editing of Streptomyces species using an engineered CRISPR/Cas system. ACS synthetic biology. 2015;4(6):723-8.
- Wanjofu EI, et al. Nodulation and growth promotion of chickpea by Mesorhizobium isolates from diverse sources. Microorganisms. 2022;10(12):2467.
- Haskett T, et al. Complete genome sequence of Mesorhizobium ciceri strain CC1192, an efficient nitrogen-fixing microsymbiont of Cicer arietinum. Genome Announcements. 2016;4(3):10.1128/genomea. 00516-16.
- Bellahsen O, Díaz-Méndez R, Romero D. Genomic engineering in Rhizobium etli: implementation and evaluation of systems based on dCas9. Frontiers in Microbiology. 2025;16:1604430.
- Liu G, et al. An efficient CRISPR/Cas12e system for genome editing in Sinorhizobium meliloti. ACS Synthetic Biology. 2023;12(3):898-903.
- Wang L, Xiao Y, Wei X, Pan J, Duanmu D. Highly efficient CRISPR-mediated base editing in Sinorhizobium meliloti. Frontiers in Microbiology. 2021;12:686008.
- Schäfer A, et al. Small mobilizable multi-purpose cloning vectors derived from the Escherichia coli plasmids pK18 and pK19: selection of defined deletions in the chromosome of Corynebacterium glutamicum. Gene. 1994;145(1):69-73.
- Rütering M, et al. Tailor-made exopolysaccharides—CRISPR-Cas9 mediated genome editing in Paenibacillus polymyxa. Synthetic Biology. 2017;2(1):ysx007.
- Ledermann R, Bartsch I, Remus-Emsermann MN, Vorholt JA, Fischer H-M. Stable fluorescent and enzymatic tagging of Bradyrhizobium diazoefficiens to analyze host-plant infection and colonization. Molecular Plant-Microbe Interactions. 2015;28(9):959-67.
- Göttfert M. Regulation and function of rhizobial nodulation genes. FEMS microbiology reviews. 1993;10(1-2):39-63.
- Kant C, Pradhan S, Bhatia S. Dissecting the root nodule transcriptome of chickpea (Cicer arietinum L.). PLoS One. 2016;11(6):e0157908.
- Hsu PD, et al. DNA targeting specificity of RNA-guided Cas9 nucleases. Nature biotechnology. 2013;31(9):827-32.
- Doench JG, et al. Optimized sgRNA design to maximize activity and minimize off-target effects of CRISPR-Cas9. Nature biotechnology. 2016;34(2):184-91.
- Norrander J, Kempe T, Messing J. Construction of improved M13 vectors using oligodeoxynucleotide-directed mutagenesis. Gene. 1983;26(1):101-6.
- Simon R, Priefer U, Pühler A. A broad host range mobilization system for in vivo genetic engineering: transposon mutagenesis in gram negative bacteria. Bio/technology. 1983;1(9):784-91.
- Hanahan D, Jessee J, Bloom FR. [4] Plasmid transformation of Escherichia coli and other bacteria. Methods in enzymology. 1991;204:63-113.
- Alexandre A, et al. Natural populations of chickpea rhizobia evaluated by antibiotic resistance profiles and molecular methods. Microbial Ecology. 2006:128-36.
- Weerakkody LR, et al. A rapid, inexpensive and effective method for the efficient isolation of genomic DNA from Gram-negative bacteria. Molecular Genetics and Genomics. 2024;299(1):26.
- Selbitschka W, Niemann S, Pühler A. Construction of gene replacement vectors for Gram− bacteria using a genetically modified sacRB gene as a positve selection marker. Applied microbiology and biotechnology. 1993;38(5):615-8.
- Yadav A, Singh RP, Singh AL, Singh M. Identification of genes involved in phosphate solubilization and drought stress tolerance in chickpea symbiont Mesorhizobium ciceri Ca181. Archives of microbiology. 2021;203(3):1167-74.
- Dicenzo GC, et al. Multidisciplinary approaches for studying rhizobium–legume symbioses. Canadian Journal of Microbiology. 2019;65(1):1-33.
- Calia C, et al. A bibliometric analysis of chickpea agronomic practices in the world during 45 years of scientific research. Legume Science. 2024;6(1):e219.
- Sandhu J, Tripathi S, Chaturvedi S. Chickpea nutritional status and value chain for sustainable development. Sustainable food value chain development: Perspectives from developing and emerging economies: Springer; 2023. p. 175-83.
- Ren B, Wang X, Duan J, Ma J. Rhizobial tRNA-derived small RNAs are signal molecules regulating plant nodulation. Science. 2019;365(6456):919-22.
Ristampe e permessi
Questo articolo è stato pubblicato
Video in arrivo