Questo articolo presenta un protocollo di trasfezione inversa ottimizzato per il trasferimento efficiente di mRNA umano della telomerasi a trascrittasi inversa modificato a livello di nucleosidi (hTERT mRNA) in fibroblasti umani senescenti. Il pre-trattamento delle superfici di coltura con complessi mRNA hTERT-lipidi migliora l'assorbimento, consentendo l'attivazione della telomerasi, l'allungamento dei telomeri e un parziale ringiovanimento. Le colture rientrano infine in senescenza o in crisi senza raggiungere l'immortalizzazione.
Articolo metodologico
Protocollo di trasfezione inversa ottimizzato per l'erogazione di mRNA della telomerasi in fibroblasti umani in fase di senescenza precoce
* These authors contributed equally
In questo articolo
Sommario
Abstract
La senescenza cellulare è associata a profonde alterazioni della fisiologia cellulare, tra cui ridotta fluidità della membrana, alterato traffico endosomiale, capacità endocitica diminuita e aumento dell'attività di RNasi extracellulari, tutti fattori che ostacolano un efficiente trasferimento di mRNA. Queste barriere hanno limitato l'applicazione di approcci basati sull'RNA in cellule senescenti, in particolare per il trasferimento di trascritti terapeutici di grandi dimensioni. Questo protocollo descrive un metodo di transfezione inversa ottimizzato per il trasferimento efficiente di RNA messaggero (mRNA) modificato in fibroblasti umani senescenti. Sebbene sia stato utilizzato l'mRNA della telomerasi umana (hTERT) come trascritto modello, il flusso di lavoro è ampiamente applicabile ad altri mRNA. A differenza dei metodi convenzionali di transfezione, nei quali i complessi RNA-lipidi vengono aggiunti al mezzo di coltura dopo l'adesione cellulare, la transfezione inversa deposita i complessi sulla superficie della coltura prima della semina delle cellule, consentendo un'interazione diretta tra le cellule in adesione e i complessi di transfezione. Per massimizzare l'efficienza di transfezione, il protocollo prevede l'utilizzo di mRNA con nucleosidi modificati contenenti pseudouridina e 5-metilcitosina, code poli(A) prolungate, tempistiche ottimizzate per la formazione dei complessi, inibizione delle RNasi, aumento transitorio del pH endosomiale con cloroquina, densità di semina cellulare aumentata e periodi di incubazione prolungati. Con questo approccio, sono state raggiunte efficienze di transfezione di circa il 50%–80% in fibroblasti senescenti dopo il trasferimento di un trascritto di mRNA hTERT di 5 kb. L'attività telomerasica massima è stata rilevata 24–48 h dopo la transfezione. Un singolo ciclo di transfezione ha prodotto un allungamento misurabile dei telomeri, mentre tre transfezioni consecutive hanno determinato un'estensione telomerica sostanziale ma finita. È stata osservata una parziale inversione dei fenotipi associati alla senescenza entro 72–96 h, inclusa una riduzione dell'attività della β-galattosidasi associata alla senescenza, una diminuzione dell'espressione di p16 e p21, il ripristino della morfologia cellulare e un prolungamento della durata replicativa della cellula. L'mRNA trasferito è stato degradato entro 72–96 h e non è stata osservata immortalizzazione. Questo protocollo fornisce un approccio pratico per il trasferimento transitorio di mRNA in cellule senescenti e potrebbe essere adattato a un'ampia gamma di tipi cellulari e specie.
Introduzione
L'approccio della trasfezione inversa rappresenta un'adattazione metodologica fondamentale per le cellule senescenti, superando le barriere fondamentali che queste cellule oppongono ai metodi di trasfezione standard. A differenza della trasfezione diretta, in cui le cellule vengono seminate in anticipo e lasciate aderire prima dell'aggiunta dei complessi di trasfezione, la trasfezione inversa prevede l'aggiunta diretta di cellule in sospensione sui complessi preformati di mRNA di hTERT e lipidi. Questa tecnica aumenta notevolmente l'efficienza di trasfezione nelle cellule senescenti, massimizzando l'esposizione ai complessi di trasfezione durante la fase critica di adesione, quando il rimodellamento della membrana è più attivo.
Il cambiamento concettuale fondamentale del protocollo consiste nel considerare le cellule senescenti come un problema distinto di somministrazione, e non semplicemente come versioni difficili da trasfettare di cellule giovani. Nella senescenza, cambiamenti globali nella composizione lipidica della membrana, inclusi fosfolipidi, sfingolipidi e colesterolo, alterano la fluidità della membrana, la curvatura e le interazioni proteina-lipidi, contribuendo contemporaneamente al fenotipo secretorio associato alla senescenza1,2,3. Le cellule senescenti mostrano inoltre una ridotta endocitosi mediata da clatrina e caveole e un diverso indirizzamento endocitico, determinati in parte dalla down-regolazione dell'amphiphysin-1 e da cambiamenti compensativi nell'espressione della caveolina, che attenuano l'assorbimento e il segnale mediati dai recettori4,5,6. Parallelamente, l'asse dei late endosomi- lisosomi regolato da Rab7 e la più ampia rete endosomiale-autofagica-lisosomiale (EAL) diventano disregolati, con Rab7 che agisce come regolatore principale della maturazione endolisosomiale e della fusione autofagosoma-lisosoma, processi alterati nell'invecchiamento e nelle malattie neurodegenerative7.
Le cellule senescenti spesso aumentano l'espressione di diversi componenti del sistema di elaborazione e adattamento lisosomiale (LYPAS), inclusa la biogenesi lisosomiale mediata da TFEB/TFE3 e l'autofagia mediata da chaperoni, aumentando così la massa lisosomiale. Tuttavia, i singoli lisosomi mostrano frequentemente un pH luminale elevato, danni alla membrana e una capacità proteolitica alterata, contribuendo alla disfunzione lisosomiale nonostante il loro aumento di numero8,9,10,11. Nel complesso, questi cambiamenti possono indirizzare più efficientemente il materiale internalizzato verso compartimenti endolisosomiali degradativi, aumentando la probabilità che l'RNA o le proteine consegnati vengano degradati prima del rilascio produttivo nel citosol9,10,11. La trasfezione inversa mira direttamente alla fase iniziale in cui le membrane stanno subendo rimodellamento, durante l'adesione, imponendo un contatto sostenuto e ad alta affinità tra le cellule e i complessi mRNA-lipidi, aggirando almeno in parte l'endocitosi compromessa allo stato stazionario nelle cellule senescenti completamente aderenti4,5,6,12.
Per quanto riguarda la progettazione dell'RNA, il protocollo presuppone che, in un contesto di invecchiamento, una semplice cappuccio + coda poliadenilica di base sia insufficiente: la modifica completa dei nucleosidi (ad esempio, pseudouridina o N1-metilpseudouridina più 5-metilcitosina) è considerata imprescindibile per dissociare la traduzione dal riconoscimento da parte dei recettori Toll-like endosomiali e dall'induzione dell'interferone di tipo I. Studi fondamentali hanno dimostrato che l'incorporazione di nucleosidi modificati nell'RNA sopprime l'attivazione di TLR3, TLR7 e TLR8 e riduce in modo significativo la produzione di citochine da parte delle cellule dendritiche, fornendo una base meccanicistica alla ridotta immunogenicità innata delle attuali piattaforme di mRNA con nucleosidi modificati13. Recenti revisioni sui vaccini mRNA–LNP e sui farmaci a base di mRNA sottolineano l'ingegnerizzazione coordinata del cappuccio 5′, delle regioni non tradotte (UTR), della sequenza codificante e della coda poli(A) per aumentare la stabilità e la traduzione in vivo, minimizzando al contempo l'attivazione della risposta immunitaria innata14. In particolare, la lunghezza e l'architettura della coda poli(A) si sono rivelate determinanti chiave della stabilità e dell'efficienza traduzionale dell'mRNA trascritto in vitro, giustificando l'uso di code poli(A) allungate o ingegnerizzate nei mRNA terapeutici15.
Su questo strato, il protocollo incorpora esplicitamente protezioni contro le RNasi extracellulari ed endosomiali durante la formazione e l'assunzione dei complessi, insieme a una finestra definita di fuga dagli endosomi mediante l'uso di un agente lisosomotropo transitorio come la cloroquina16,17. La cloroquina è da tempo utilizzata come sonda funzionale per studiare le barriere endosomiali e può aumentare notevolmente l'interazione con il bersaglio e il silenziamento indotto da siRNA o oligonucleotidi antisenso, promuovendo la rottura della membrana endosomiale e il rilascio del carico di acidi nucleici nel citosol18. Allo stesso tempo, l'analisi mediante imaging in cellule vive e a super-risoluzione dell'mRNA veicolato da nanoparticelle lipidiche (LNP) ha dimostrato che il successo del rilascio è fortemente limitato da rari eventi di fuga dagli endosomi precoci o di recupero, piuttosto che dall'assunzione iniziale in sé, sottolineando l'importanza di progettare in modo mirato un passaggio di fuga dagli endosomi per i farmaci a base di mRNA19.
Collettivamente, queste alterazioni associate alla senescenza nella dinamica della membrana, nel traffico endocitico, nell'elaborazione lisosomiale e nell'attivazione dell'immunità innata creano barriere sostanziali per una consegna efficiente dell'mRNA. La strategia di retro-trasfezione qui descritta è stata sviluppata per superare tali limitazioni combinando un'ingegnerizzazione ottimizzata dell'mRNA, la protezione dalle RNasi, un migliorato rilascio endosomiale e l'esposizione diretta delle cellule in adesione a complessi preformati di mRNA e lipidi. Sebbene l'mRNA di hTERT venga utilizzato come carico modello, il flusso di lavoro è ampiamente applicabile alla consegna di altri trascritti terapeutici di grandi dimensioni in popolazioni cellulari senescenti e difficili da trasfettare20,21,22.
Protocollo
1. Trascrizione in vitro dell'mRNA di hTERT
- Trascrizione in vitro (IVT) con ARCA e ΨUTP
- Preparare una reazione IVT di 20 µL secondo la Tabella 1. Aumentare linearmente la scala della reazione se è richiesta una resa maggiore.
- Combinare tutti i componenti della reazione tranne la polimerasi T7 in una provetta priva di RNasi. Aggiungere la polimerasi T7 per ultima, mescolare delicatamente e centrifugare brevemente la provetta.
- Incubare la reazione a 37 °C per 0,5–4 h.
NOTA: Regolare il tempo di incubazione in base alla lunghezza del template. Incubare le reazioni contenenti template più corti (circa 500 bp) per circa 30 min e quelle contenenti template più lunghi (circa 4 kb) per 3–4 h.
- Trattamento con DNasi
- Aggiungere direttamente 1 µL di DNasi I priva di RNasi alla miscela di reazione IVT.
- Incubare la reazione a 37 °C per 15 min.
NOTA: Il trattamento con DNasi deve essere eseguito direttamente nella reazione IVT senza purificazione preliminare dell'mRNA sintetizzato.
- Purificazione dell'mRNA
- Aggiungere 115 µL di H₂O priva di nucleasi per diluire la miscela di reazione.
- Purificare l'mRNA utilizzando un kit di pulizia dell'RNA seguendo le istruzioni del produttore.
- Eluire l'mRNA purificato in 20–30 µL di H₂O priva di nucleasi.
- Verificare la purezza dell'mRNA mediante spettrofotometria e controllare l'integrità dell'RNA mediante elettroforesi su gel di agarosio denaturante al 1,0–1,5% o su gel di poliacrilammide a bassa percentuale.
- Aggiunta della coda poli(A)
- Preparare una reazione di poliadenilazione di 50 µL secondo la Tabella 2. Mescolare delicatamente i componenti della reazione e incubare a 37 °C per 30–60 min.
NOTA: Regolare il tempo di incubazione in base alla quantità di RNA in ingresso. - Terminare la reazione aggiungendo 2 µL di EDTA 0,5 M (pH 8,0).
- Preparare una reazione di poliadenilazione di 50 µL secondo la Tabella 2. Mescolare delicatamente i componenti della reazione e incubare a 37 °C per 30–60 min.
- Purificazione finale e controllo di qualità
- Purificare l'mRNA con coda poli(A) utilizzando un kit di pulizia dell'RNA seguendo le istruzioni del produttore.
- Eluire l'mRNA purificato in 20–30 µL di H₂O priva di nucleasi.
- Valutare la qualità dell'mRNA prima di procedere con la trasfezione
- Misurare la concentrazione dell'mRNA a 260 nm e determinare la purezza utilizzando i rapporti A260/A280 e A260/A230. Utilizzare preparazioni di mRNA con valori di A260/A280 di circa 2,0 e valori di A260/A230 superiori a 2,0.
- Valutare l'integrità dell'mRNA mediante elettroforesi su gel o un sistema di analisi dell'RNA seguendo le istruzioni del produttore.
- Confermare la lunghezza della coda poli(A) mediante RT-PCR o analisi con Bioanalyzer. Verificare che la lunghezza della coda poli(A) sia compresa tra 120 e 200 nucleotidi.
- Aliquotare l'mRNA purificato e conservare le aliquote a −80 °C per ridurre al minimo i cicli di congelamento-scongelamento.
2. Trasfezione inversa
- Giorno −1: Preparazione pre-trasfezione
- Verificare il fenotipo senescente
- Eseguire la colorazione per la β-galattosidasi associata alla senescenza (SA-β-gal) su un campione rappresentativo di cellule. Verificare che oltre il 70% delle cellule sia positivo.
- Confermare l'espressione dei marcatori di senescenza (p16 e p21) mediante qRT-PCR o immunofluorescenza.
- Determinare la vitalità cellulare e verificare che superi il 90%.
- Preparare i reagenti
- Riscaldare in anticipo il mezzo di coltura completo a 37 °C.
- Riscaldare in anticipo il tampone salino fosfato (PBS) a 37 °C.
- Preparare del mezzo Opti-MEM I fresco.
NOTA: Non aggiungere inibitore di RNasi all'Opti-MEM I prima dell'uso.
- Verificare il fenotipo senescente
- Giorno 0: Giorno della trasfezione
NOTA: Prevedere circa 3 h tra la preparazione dei reagenti e l'incubazione delle cellule trasfettate.- Preparazione dell'mRNA di hTERT
- Scongelare l'mRNA di hTERT sul ghiaccio. Misurare la concentrazione di mRNA e utilizzare preparazioni con concentrazioni comprese tra 0,5 e 1,0 µg/µL.
- Diluire la quantità desiderata di mRNA di hTERT in Opti-MEM I in base al formato di coltura utilizzato (Tabella 3). Aggiungere l'inibitore di RNasi a una concentrazione finale di 0,5–1,0 U/µL e mescolare delicatamente.
- Mantenere l'mRNA diluito sul ghiaccio fino alla formazione del complesso.
NOTA: Aggiungere l'inibitore di RNasi immediatamente prima dell'uso. Non conservare l'mRNA con l'inibitore di RNasi, poiché la sua attività diminuisce dopo il congelamento.
- Preparazione del reagente di trasfezione
- Mescolare 6,0 µL di reagente di trasfezione con 100 µL di Opti-MEM I in un tubo sterile privo di RNasi. Mescolare delicatamente mediante pipettaggio.
- Incubare la miscela a temperatura ambiente per 5 min.
NOTA: Per costrutti di mRNA di hTERT di grandi dimensioni (~5 kb), ottimizzare i rapporti tra reagente e mRNA tra 0,4 e 0,6 µL di reagente per 100 ng di mRNA.
- Formazione del complesso mRNA-lipidico
- Aggiungere la soluzione di mRNA di hTERT diluito (100 µL) alla soluzione di reagente di trasfezione diluito (106 µL). Mescolare delicatamente mediante 5–6 pipettaggi.
- Incubare la miscela a temperatura ambiente per 15–20 min.
- Non superare i 30 min di complessazione.
- Verificare il corretto completamento della formazione del complesso osservando l'aspetto di una soluzione leggermente torbida.
NOTA: Eseguire la preparazione delle cellule durante il periodo di complessazione.
- Preparazione delle cellule per la trasfezione inversa
- Aspirare il mezzo di coltura dalle colture cellulari senescenti.
- Lavare le cellule una volta con PBS preriscaldato (2 mL per pozzetto di una piastra a 6 pozzetti).
- Aggiungere 500 µL di tripsina-EDTA allo 0,05% per pozzetto.
- Incubare le cellule a 37 °C per 3–5 min.
- Neutralizzare la tripsina con 3 mL di mezzo completo contenente siero.
- Triturare delicatamente le cellule per ottenere una sospensione monocellulare.
- Determinare il numero di cellule utilizzando un emocitometro o un contatore cellulare automatico.
- Preparare una sospensione contenente 2,0–2,5 × 10⁵ cellule per pozzetto in mezzo completo.
NOTA: Evitare una prolungata tripsinizzazione poiché le cellule senescenti sono altamente suscettibili allo stress meccanico. Mantenere le cellule in sospensione; non pre-piastrellare prima della trasfezione inversa.
- Trasfezione inversa
- Preparazione della piastra per la coltura
- Aggiungere 500 µL di poli-L-lisina allo 0,01% in ogni pozzetto di una piastra a 6 pozzetti e incubare per 30 min a temperatura ambiente.
- Aspirare immediatamente la soluzione di rivestimento prima dell'uso.
- Aggiungere 200 µL del complesso mRNA di hTERT-lipidico al centro di ogni pozzetto.
- Incubare la piastra a 37 °C e 5% CO₂ per 30 min.
NOTA: Eseguire il rivestimento della piastra in parallelo alla formazione del complesso e alla preparazione delle cellule.
- Preparazione della sospensione cellulare
- Sospendere 2,0–2,5 × 10⁵ cellule in 1800 µL di mezzo completo senza antibiotici.
- Risospenderle delicatamente per ottenere una sospensione monocellulare uniforme.
NOTA: Utilizzare mezzo senza antibiotici durante la trasfezione.
- Seeding delle cellule sui complessi
- Aggiungere direttamente 1800 µL della sospensione cellulare sui complessi preformati di mRNA di hTERT-lipidico.
- Inclinare delicatamente la piastra 2–3 volte in ogni direzione per distribuire uniformemente le cellule.
NOTA: Non pipettare la sospensione dopo l'aggiunta delle cellule, poiché ciò potrebbe alterare i complessi mRNA-lipidici.
- Incubazione delle cellule
- Incubare le cellule a 37 °C in un incubatore umidificato contenente 5% CO₂ per 6–8 h.
- Monitorare l'adesione cellulare mediante microscopia ottica 2–3 h dopo la trasfezione.
- Verificare che le cellule siano distribuite uniformemente e stiano iniziando ad aderire alla superficie di coltura.
NOTA: Un numero eccessivo di cellule in sospensione o di detriti cellulari potrebbe indicare citotossicità associata alla trasfezione.
- Preparazione della piastra per la coltura
- Preparazione dell'mRNA di hTERT
3. Mitigazione della citotossicità
- Ridurre il periodo di esposizione alla trasfezione a 48 h se la perdita cellulare supera il 20%.
- Integrare le colture con 10 µM di inibitore ROCK Y-27632 durante il periodo di trasfezione per migliorare la sopravvivenza cellulare.
- Dopo 6–8 h di trasfezione, aspirare con attenzione il mezzo di trasfezione minimizzando il disturbo delle cellule parzialmente aderenti. Lasciare circa 100 µL di mezzo residuo in ogni pozzetto.
- Aggiungere 1 mL di mezzo di crescita completo fresco, pre-riscaldato e integrato con il 15% di FBS, in ogni pozzetto.
- Aggiungere cloroquina a una concentrazione finale di 10–20 µM immediatamente dopo la sostituzione del mezzo.
- Incubare le colture per ulteriori 2 h a 37 °C in un incubatore umidificato contenente 5% di CO₂.
- Sostituire il mezzo contenente cloroquina con mezzo di crescita completo fresco.
- Riposizionare le colture nell'incubatore per la prosecuzione della crescita.
NOTA: Monitorare la morfologia cellulare e la vitalità durante tutto il periodo di recupero. Un’eccessiva distacco cellulare o la presenza di detriti possono indicare citotossicità associata alla trasfezione.
4. Analisi post trasfezione
- Valutare l'espressione della proteina TERT 24–48 h dopo la trasfezione.
- Misurare i livelli della proteina TERT mediante western blotting o colorazione immunofluorescente seguendo le procedure standard di laboratorio.
- Misurare l'attività della telomerasi nello stesso intervallo utilizzando un saggio appropriato per l'attività della telomerasi.
NOTA: L'attività della telomerasi di solito diminuisce dopo 48 h a causa della degradazione dell'mRNA di hTERT espresso in modo transitorio. - Valutare la lunghezza dei telomeri 48–72 h dopo la trasfezione utilizzando la PCR quantitativa monocroma multiplex (MMqPCR) o un metodo equivalente di analisi della lunghezza dei telomeri.
NOTA: Un allungamento dei telomeri rilevabile può essere osservato dopo una corretta somministrazione dell'mRNA di hTERT. - Valutare i fenotipi associati alla senescenza e quelli associati al ringiovanimento 7 giorni dopo la trasfezione
- Misurare l'attività della β-galattosidasi associata alla senescenza (SA-β-gal).
- Misurare i livelli di espressione di p16 e p21.
- Valutare l'espressione di Ki67.
- Esaminare la morfologia cellulare mediante microscopia ottica.
NOTA: Confrontare le colture trattate con controlli senescenti non trattati o sottoposti a trasfezione fittizia per valutare i cambiamenti nei fenotipi associati alla senescenza e nelle caratteristiche proliferative.
5. Protocollo di somministrazione ripetuta (Opzionale)
- Eseguire la trasfezione iniziale come descritto nei paragrafi da 2 a 4.
- Ripetere le trasfezioni secondo il seguente programma: Giorno 0: prima trasfezione; Giorno 5: seconda trasfezione; Giorni 10–12: terza trasfezione.
- Mantenere le cellule come colture aderenti e non trattare con tripsina prima delle trasfezioni successive.
- Preparare complessi freschi di mRNA di hTERT con lipidi come descritto nei paragrafi da 2.2.1 a 2.2.3.
- Aspirare il mezzo di coltura da ogni pozzetto.
- Aggiungere direttamente 200 µL di complessi di mRNA di hTERT con lipidi a ogni pozzetto.
- Aggiungere immediatamente dopo l'aggiunta dei complessi 800 µL di mezzo F-10 completo fresco.
- Incubare le cellule per 4–6 h a 37 °C in un incubatore umidificato contenente 5% di CO₂.
- Sostituire il mezzo di trasfezione con mezzo completo fresco.
NOTA: Limitare il trattamento a un massimo di tre cicli di trasfezione per minimizzare la citotossicità cumulativa associata alla trasfezione.
6. Protocollo di trasfezione diretta (2 µg/mL, formato a pozzetti da 6)
- Giorno −1: Semina delle cellule
- Staccare i fibroblasti senescenti o in fase precoce di senescenza utilizzando tripsina-EDTA al 0,05%.
- Neutralizzare la tripsina con mezzo di coltura completo.
- Determinare il numero e la vitalità cellulare.
- Sezionare le cellule in piastre a 6 pozzetti a una densità di 2,0–2,5 × 10⁵ cellule per pozzetto.
- Incubare le cellule per tutta la notte a 37 °C in un'incubatrice umidificata contenente 5% di CO₂ fino al raggiungimento di una confluenza pari a circa il 60–80%.
- Giorno 0: Preparazione dei complessi mRNA-hTERT–reattivo
- Scongelare un'aliquote di mRNA-hTERT modificato con nucleosidi su ghiaccio.
- Diluire l'mRNA-hTERT in Opti-MEM fino a una concentrazione finale di 2 µg/mL in un tubo sterile privo di RNasi (Tubo A).
- Aggiungere l'inibitore di RNasi al Tubo A fino a una concentrazione finale di 0,5–1,0 U/µL e mescolare delicatamente.
- Diluire il reattivo di trasfezione in Opti-MEM in un secondo tubo privo di RNasi (Tubo B), utilizzando da 0,4 a 0,6 µL di reattivo per ogni 100 ng di mRNA.
- Aggiungere il contenuto del Tubo B al Tubo A, goccia a goccia, mescolando delicatamente.
- Incubare la miscela a temperatura ambiente per 15–20 min.
- Giorno 0: Trasfezione diretta
- Verificare che le cellule abbiano raggiunto una confluenza del 60–80% e presentino una morfologia sana.
- Aspirare il mezzo di coltura.
- Lavare le cellule una volta con 1–2 mL di PBS preriscaldato.
- Aggiungere 0,5 mL di mezzo completo o con ridotto contenuto di siero, preriscaldato, in ogni pozzetto.
- Opzionalmente, aggiungere clorochina fino a una concentrazione finale di 10–20 µM.
- Aggiungere 0,5 mL dei complessi mRNA-hTERT–reattivo preparati al punto 6.2.6 in ogni pozzetto.
- Ruotare delicatamente la piastra per distribuire uniformemente i complessi.
- Incubare le cellule per 4–6 h a 37 °C in un'incubatrice umidificata contenente 5% di CO₂.
NOTA: Se necessario, estendere il periodo di incubazione a 6–8 h per le cellule senescenti. - Aspirare il mezzo di trasfezione.
- Aggiungere 2,0 mL di mezzo completo fresco in ogni pozzetto.
- Eseguire le analisi post-trasfezione come descritto nella Sezione 4.
NOTA: Utilizzare lo stesso lotto di mRNA-hTERT, lo stesso reattivo di trasfezione e la stessa dose nominale quando si confrontano le condizioni di trasfezione diretta e inversa.
Risultati
Il modRNA d2EGFP-T2A-hTERT è stato progettato come un'unità di lettura ibrida in cui un reporter di EGFP destabilizzato (d2EGFP) è collegato alla telomerasi umana (hTERT) tramite un peptide auto-cleavante T2A. Le sequenze complete di nucleotidi e proteiche di tutti i costrutti sono riportate nel File Supplementare 1. La sequenza codificante era delimitata da una regione non tradotta (UTR) 5′ sintetica e dall'UTR 3′ della β-globina umana, per aumentare l'efficienza traduzionale e la stabilità dell'mRNA (Figura 1A). La cassetta di espressione conteneva inoltre una sequenza sintetica stabilizzatrice enzimatica (Es) e una sequenza sintetica potenziatrice della trascrizione (TEs), progettate per migliorare la processività della polimerasi T7 e ridurre la terminazione prematura della trascrizione. Dopo il clonaggio a valle di un promotore T7, è stata effettuata una trascrizione in vitro utilizzando un analogo del cap anti-inversione (ARCA) e nucleotidi modificati (m5CTP e ΨUTP), seguita da poliadenilazione enzimatica (circa 120–200 nt) per generare un modRNA d2EGFP-T2A-hTERT capped, poliadenilato e ad alta integrità (Figura 1A).
L'analisi elettroforetica automatizzata dell'RNA ha confermato una sintesi efficiente del trascritto, rivelando una specie di RNA predominante della dimensione prevista con prodotti di degradazione minimi su diversi quantitativi in ingresso, coerente con la corretta generazione di modRNA a lunghezza intera (Figura 1B). Dopo la trasfezione di fibroblasti LF1 in stadio precoce di senescenza con 2 µg/mL di modRNA d2EGFP-T2A-hTERT, la proteina hTERT è diventata rilevabile entro 24 ore ed è rimasta elevata per 48–96 ore, indicando una traduzione sostenuta del trascritto sintetico (Figura 1C). L'analisi del reporter d2EGFP accoppiato ha dimostrato una fluorescenza intensa dopo la trasfezione inversa, mentre una fluorescenza notevolmente inferiore è stata osservata dopo la trasfezione diretta (Figura 1D,E). Questi risultati indicano un miglioramento nella consegna e nell'espressione del modRNA hTERT mediante l'approccio di trasfezione inversa in fibroblasti LF1 in stadio precoce di senescenza.
La trasfezione ripetuta in avanti (FT) di fibroblasti LF1 in fase di senescenza precoce con modRNA d2EGFP-T2A-hTERT a intervalli di 5 giorni ha determinato un aumento progressivo della lunghezza media dei telomeri (rT/S) rispetto ai controlli trasfettati con placebo, misurato mediante PCR quantitativa multiplex monocromatica (MMqPCR) (Figura 2A). Il rapporto rT/S è aumentato dopo ogni ciclo di FT, con significatività statistica che è migliorata da *P < 0,05 a **P < 0,01.
L'applicazione dello stesso schema posologico mediante transfezione inversa (RT) ha determinato un aumento più pronunciato della lunghezza dei telomeri. Il rapporto rT/S è aumentato dopo ogni ciclo di RT, raggiungendo differenze altamente significative rispetto ai controlli transfezionati con veicolo (*P < 0,05 fino a ****P < 0,0001) (Figura 2B). Il confronto diretto tra FT e RT dopo tre cicli di trattamento ha dimostrato che entrambi gli approcci aumentano significativamente i valori di rT/S rispetto ai controlli transfezionati con veicolo; tuttavia, RT ha prodotto un incremento maggiore rispetto a FT nelle medesime condizioni di dosaggio e tempistica (*P < 0,05, ***P < 0,001, ****P < 0,0001) (Figura 2C).
L'analisi della crescita a lungo termine ha ulteriormente dimostrato che la somministrazione ripetuta di modRNA per hTERT ha prolungato la durata replicativa (Figura 2D). Le cellule sottoposte a uno, due o tre cicli di trattamento hanno mostrato un numero progressivamente maggiore di raddoppiamenti cellulari cumulativi rispetto ai controlli transfettati con placebo. Le colture sottoposte a tre cicli di trattamento con modRNA per hTERT, in particolare mediante RT, hanno mostrato la maggiore divergenza rispetto alle curve di crescita dei controlli nel periodo di circa 250 giorni (fino a ****P < 0,0001). I calcoli relativi ai raddoppiamenti cellulari sono riportati nel File Supplementare 2.
I fibroblasti LF1 in stadio di senescenza precoce trasfettati con modRNA d2EGFP-T2A-hTERT hanno mostrato un intenso pattern a scalino nel saggio TRAP a 48 h dalla trasfezione, mentre le cellule trattate con modRNA di controllo (mock) o con modRNA-eGFP presentavano soltanto un segnale di fondo, indicando che l'attività della telomerasi derivava dall'espressione esogena di hTERT (Figura 3A). Il trattamento termico ha abolito il pattern a scalino, confermando la specificità del saggio (Figura 3B).
L'analisi temporale ha dimostrato che l'attività della telomerasi ha raggiunto il picco tra 24 e 48 ore dopo la trasfezione, per poi diminuire, tornando a livelli prossimi al basale entro 72–96 ore (Figura 3C). Aumentando la concentrazione di modRNA per hTERT da 50 a 3.000 ng/mL si è osservato un corrispondente incremento nell'intensità del segnale TRAP, dimostrando un'attivazione della telomerasi dipendente dalla dose (Figura 3D).
L'analisi funzionale mediante costrutti di hTERT di tipo selvaggio, privi di attività catalitica (CI) e privi del segnale di localizzazione nucleare (ΔNLS) ha dimostrato che solo l'hTERT di tipo selvaggio genera un'attività telomerasica robusta. Entrambi i varianti, CI e ΔNLS, non sono riusciti a indurre un'attività comparabile nonostante condizioni di somministrazione simili (Figura 3E). In linea con questi risultati, l'analisi MMqPCR ha rivelato un marcato aumento della lunghezza media dei telomeri (rT/S ≈ 1,4) solo nelle cellule trattate con modRNA di hTERT di tipo selvaggio. Le cellule trattate con hTERT-CI, hTERT-ΔNLS o con trattamento fittizio sono rimaste prossime ai livelli basali (rT/S ≈ 0,3; ****P < 0,0001) (Figura 3F).
Tre cicli sequenziali di reverse transfezione con modRNA di hTERT a intervalli di 5 giorni hanno ridotto in modo significativo la proporzione di cellule positive per la β-galattosidasi associata alla senescenza. La percentuale di cellule positive è diminuita da circa l'85% nelle colture trattate con controllo a circa il 40% nelle colture trattate con hTERT a 15 giorni dalla transfezione finale (***P < 0,001) (Figura 4A).
L'immunomarcatura confocale ha rivelato un'espressione aumentata di Ki67 nelle cellule sottoposte a tre cicli di transfezione inversa di hTERT rispetto ai controlli trattati con finto trattamento, indicando un'attività proliferativa maggiore (Figura 4B). L'analisi RT-qPCR ha inoltre dimostrato una ridotta espressione dei marcatori associati alla senescenza p16 e p21 dopo il trattamento con hTERT. Rispetto alle cellule in fase precoce di senescenza trattate con finto trattamento, l'espressione di p16 è diminuita da circa 2,3 volte a 0,7 volte, e l'espressione di p21 è diminuita da circa 11 volte a 6 volte (**P < 0,01; ****P < 0,0001) (Figura 4C,D). Figura Supplementare 1 dimostra ulteriormente che il trattamento con cloroquina (CQ) o Y-27632 da soli non ha alterato in modo significativo l'espressione di p16 o p21 nelle cellule transfettate con finto trattamento. Al contrario, la combinazione di CQ e Y-27632 durante tre cicli di transfezione inversa di hTERT ha prodotto la maggiore riduzione sia dell'espressione di p16 che di p21 rispetto alla sola transfezione inversa di hTERT o all'uso di ciascun agente singolarmente, mentre il trattamento con un singolo agente ha prodotto effetti intermedi. Questi risultati indicano che l'uso combinato di CQ e Y-27632 potenzia la riduzione dell'espressione dei marcatori associati alla senescenza dopo la transfezione inversa con mRNA di hTERT. Nel complesso, questi risultati dimostrano che la transfezione ripetuta di mRNA di hTERT promuove l'allungamento dei telomeri, riduce i marcatori associati alla senescenza e migliora le caratteristiche proliferative nei fibroblasti LF1 in fase precoce di senescenza.
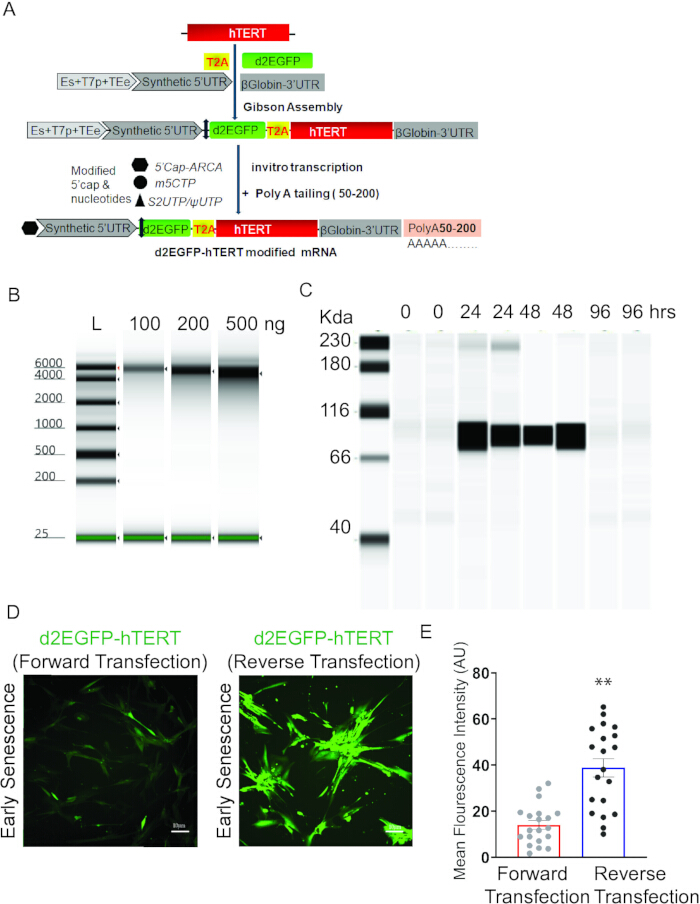
Figura 1: Progettazione, sintesi e validazione funzionale dell'mRNA d2EGFP‑T2A‑hTERT in fibroblasti LF1 in fase precoce di senescenza. (A) Schema di progettazione del costrutto ibrido di mRNA hTERT contenente la cassetta d2EGFP legata al peptide T2A per l'espressione simultanea di hTERT e EGFP destabilizzato. L'ORF d2EGFP-T2A-hTERT è delimitato dalla regione UTR 3’ del gene della β-globina umana (HBB) e dalla regione UTR 5’ sintetica. L'mRNA è stato sintetizzato utilizzando nucleotidi modificati e una coda poli(A) è stata aggiunta alla fine. (B) Sintesi efficace di mRNA d2EGFP-T2A-hTERT ad alta integrità mediante trascrizione in vitro, analizzata tramite analisi elettroforetica automatizzata dell'RNA. (C) Analisi temporale dell'espressione proteica di hTERT mediante saggio immunoanalitico automatizzato basato su capillari dopo trasfezione con 2 µg/mL di mRNA d2EGFP-T2A-hTERT. (D) L'efficacia e l'espressione della trasfezione con mRNA d2EGFP-T2A-hTERT, valutate mediante espressione di EGFP in seguito a trasfezione diretta (FT) o inversa (RT), sono state esaminate in fibroblasti primari diploidi in fase precoce di senescenza (LF1). Barra della scala = 10 µm. (E) Quantificazione dell'intensità media di fluorescenza (MFI) del segnale eGFP dopo trasfezione diretta o inversa. Sono state analizzate complessivamente 20 immagini singole per ogni condizione, comprendenti 4 aree distinte da 5 replicati biologici. I dati rappresentano le medie ± DS. **P < 0,01; valutato con il test t non appaiato con correzione di Welch. Cliccare qui per visualizzare una versione ingrandita di questa figura.
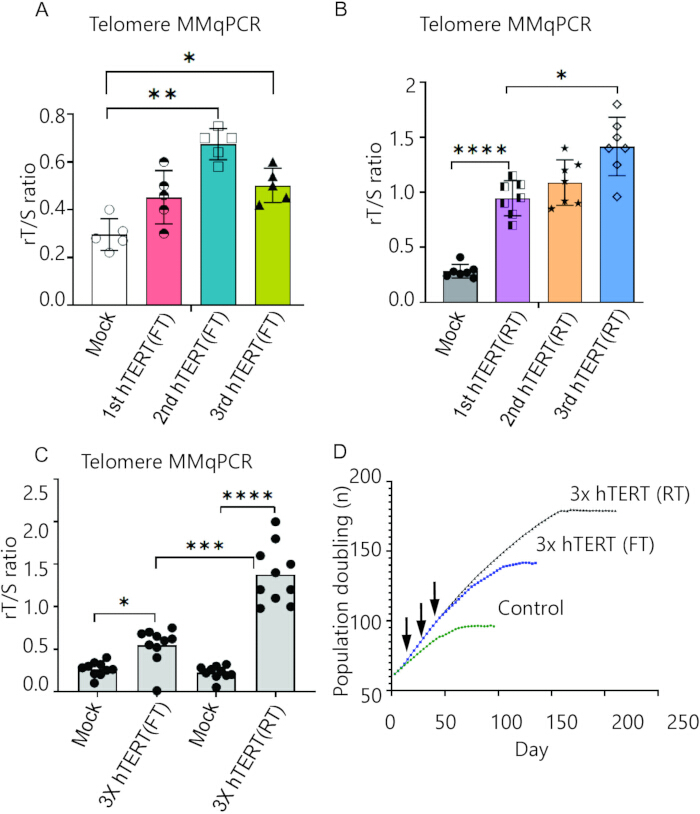
Figura 2: Dinamiche della lunghezza dei telomeri e durata proliferativa dopo trasfezioni ripetute di mRNA hTERT in senso diretto o inverso in fibroblasti LF1 in fase precoce di senescenza. (A) Le lunghezze medie dei telomeri (rT/S) sono state determinate mediante MMqPCR per telomeri. I fibroblasti in fase precoce di senescenza sono stati trasfettati in senso diretto (FT) con mRNA d2EGFP-T2A-hTERT per tre volte consecutive a intervalli di 5 giorni, a partire dal Duplicazione della Popolazione (PD) #76. La barra di errore indica SEM; n = 5 replicati biologici; *P < 0,05, **P < 0,01 rispetto alle cellule trattate solo con mock. (B) Analogamente a (A), i valori di rT/S sono stati valutati quando cellule senescenti precoci sono state trasfettate ripetutamente (RT) con mRNA d2EGFP-T2A-hTERT per tre volte consecutive a intervalli di 5 giorni, a partire dal Duplicazione della Popolazione (PD) #76. La barra di errore rappresenta SEM; n = 7 replicati biologici; *P < 0,05, ****P < 0,0001 rispetto alle cellule trattate esclusivamente con mock. (C) Confronto della lunghezza media dei telomeri (rT/S) dopo 3 trasfezioni consecutive in senso diretto e inverso a intervalli di 5 giorni, o solo mock. La barra di errore rappresenta SEM; n = 10 replicati biologici; *P < 0,05, ***P < 0,001, ****P < 0,0001. (D) Curve di crescita dei fibroblasti LF1 trasfettati con 2 µg/ml di mRNA d2EGFP-T2A-hTERT o solo mock, una, due o tre volte consecutive a intervalli di 5 giorni a partire da PD# 76. Le frecce nere indicano i tempi di trattamento. Le curve di crescita sono state replicate tre volte, con ogni popolazione coltivata in triplice replicato. 3 replicati tecnici per campione biologico; i dati rappresentano la media ± DS. *P < 0,05, **P < 0,01; ****P < 0,0001, valutato mediante test ANOVA di Brown-Forsythe e Welch Cliccare qui per visualizzare una versione ingrandita di questa figura.
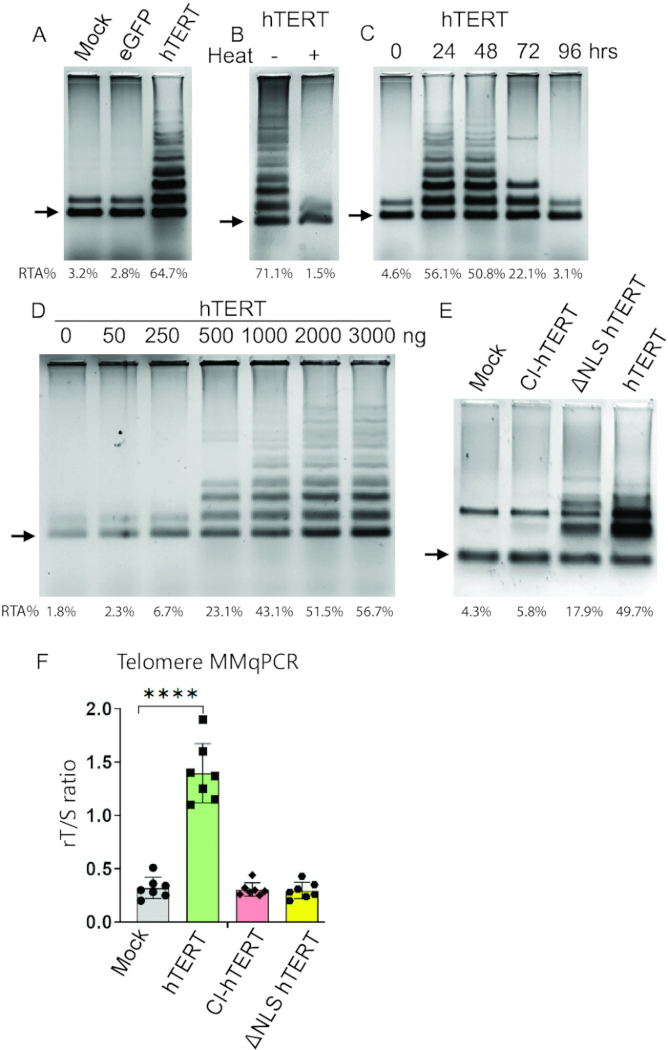
Figura 3: L'mRNA di hTERT cataliticamente attivo e localizzato nel nucleo induce un aumento transitorio e dipendente dalla dose dell'attività telomerasica, sufficiente da solo a promuovere un allungamento misurabile dei telomeri nei fibroblasti LF1 in fase precoce di senescenza. (A) Cellule in senescenza precoce sono state trasfettate con mRNA mock, eGFP o d2EGFP-T2A-hTERT. A 48 h dalla trasfezione, è stato preparato un estratto cellulare da 20.000 cellule e sottoposto al saggio TRAP. I prodotti della reazione sono stati analizzati mediante elettroforesi su gel nativo e colorati con SYBR Green. (B) Inattivazione della telomerasi indotta dal calore, misurata mediante il saggio TRAP. (C) L'analisi dell'attività telomerasica nel tempo in cellule LF1 in senescenza precoce dopo la trasfezione con mRNA di hTERT ha mostrato che l'attività ritorna ai livelli di base entro 72 h, indicando un'attivazione enzimatica transitoria. (D) Cellule LF1 senescenti precocemente hanno ricevuto quantità variabili di mRNA d2EGFP-T2A-hTERT (0–3.000 ng/mL), mostrando un aumento dell'attività telomerasica proporzionale alla dose. (E) La somministrazione di 2 µg/ml di TERT ha aumentato l'attività telomerasica nelle cellule LF1 in senescenza precoce. ΔNLS ha parzialmente potenziato l'attività telomerasica senza indurre allungamento dei telomeri, poiché agisce nel citoplasma senza traslocare nel nucleo, mentre l'mRNA di TERT cataliticamente inattivo (CI) non ha prodotto questo effetto, indicando risultati funzionali distinti. (F) Effetto della trasfezione inversa di TERT funzionale, di TERT privo del segnale di localizzazione nucleare (ΔNLS) e di TERT cataliticamente inattivo (CI) sulla lunghezza media dei telomeri (rT/S) delle cellule LF1 in senescenza precoce, evidenziando l'importanza del TERT cataliticamente attivo e localizzato nel nucleo per l'allungamento dei telomeri. La barra di errore rappresenta la DS; n = 7 replicati biologici; ****P < 0,0001 rispetto alle cellule trattate solo con mock, valutato mediante ANOVA a un fattore con correzione di Welch. L'RTA% (attività telomerasica relativa, % del controllo) è indicata in fondo a ogni corsia. Il rapporto tra i livelli di intensità delle scale del campione TRAP e della banda ITAS (controllo interno - IC) è stato calcolato con la seguente formula per ogni corsia: Attivitànormalizzata = Intensità della scala / Intensità IC; ogni campione è stato normalizzato rispetto al controllo positivo in percentuale (controllo positivo: H1299, 2.500 cellule) utilizzando la seguente formula: Attività relativa (%) = Attivitànormalizzata (campione) / Attivitànormalizzata (riferimento). È stata applicata la sottrazione del fondo a ogni passaggio. Cliccare qui per visualizzare una versione ingrandita di questa figura.
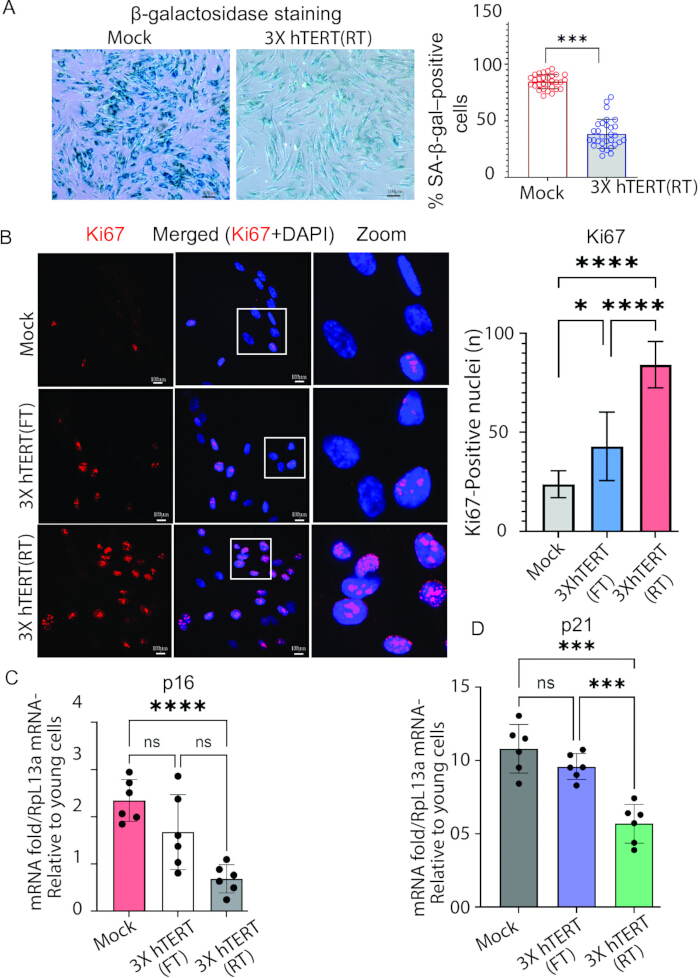
Figura 4: La transfezione inversa ottimizzata con mRNA di hTERT inverte parzialmente i fenotipi associati alla senescenza e ripristina i marcatori della proliferazione in fibroblasti LF1 in fase iniziale di senescenza. (A) Immagini rappresentative di cellule LF1 in senescenza precoce che esprimono β-gal dopo transfezione modificata con mRNA di hTERT ripetuta tre volte consecutivamente a intervalli di 5 giorni. Barra della scala = 100 µm. L'espressione di β-gal è stata analizzata a 15 giorni dall'ultima transfezione. Gli esperimenti sono stati eseguiti tre volte, con valutazione manuale di >100 cellule per campione. (B) Immagini rappresentative ottenute mediante microscopia confocale (ingrandimento 20x) di cellule LF1 in senescenza precoce, colorate per il marcatore di proliferazione Ki67. Barra della scala = 100 µm. Aumento significativo dell'espressione di Ki-67 dopo tre cicli di transfezione inversa con hTERT. La percentuale di nuclei positivi per Ki67 aumenta significativamente dopo 3× hTERT (RT). Il grafico mostra la media ± DS del conteggio dei nuclei positivi per Ki67, normalizzata rispetto alla condizione di mock-transfezione. Per ogni condizione sono state analizzate un totale di 18 immagini, selezionando 6 campi distinti da ciascun replicato biologico, per un totale di n = 3 replicati biologici. ****P < 0,0001. (C) Espressione dei marcatori di senescenza dopo il ringiovanimento parziale indotto da 3× hTERT, valutata mediante RT-qPCR (n = 6). Tutti i dati rappresentano la media ± DS. **P < 0,01; ****P < 0,0001, valutato mediante test t non appaiato con correzione di Welch. Cliccare qui per visualizzare una versione ingrandita di questa figura.
| Componente | Volume/Concentrazione finale |
| DNA stampo per PCR | 200 –1000 ng |
| Buffer IVT 10× | 2 μL |
| ATP (100 mM) | 2 μL (10 mM finale) |
| GTP (100 mM) | 1,5 μL (7,5 mM finale) |
| CTP (100 mM) | 2 μL (10 mM finale) |
| m1Ψ-5′-TP (100 mM) | 2 μL (10 mM finale) (È possibile aumentare l'incorporazione di pseudo-UTP aggiungendo UTP normale in un rapporto da 1:4 a 2:2 (m1Ψ-5′-TP:UTP).) |
| ARCA (10 mM) | 4 μL (2 mM finale) |
| Inibitore della RNasi (40 U/μL) | 0,5 μL (20 U) |
| Polimerasi T7 dell'RNA (50 U/μL) | 2 μL (100 U) |
| H₂O priva di nucleasi | 20 μL |
Tabella 1: Composizione della reazione di trascrizione in vitro (IVT) per la sintesi di mRNA di hTERT modificato con nucleosidi. Sono elencati i componenti della reazione e le quantità finali utilizzate per la sintesi IVT con cap ARCA.
| Componente | Volume/Concentrazione finale |
| mRNA purificato fino a 5 μg | ≤20 μL |
| Buffer 10× per la coda di poli(A) | 5 μL |
| ATP (10 mM) | 5 μL (concentrazione finale 1 mM) (Anche se è già presente nel buffer, l'aggiunta extra favorisce la stabilizzazione della coda di poli A.) |
| Polimerasi della poli(A) (5 U/μL) | 1 μL (5 U) |
| H₂O priva di nucleasi | Fino a un volume totale di 50 μL |
Tabella 2: Composizione della reazione di aggiunta della coda poli(A) utilizzata per la modificazione post-trascrizionale dell'mRNA di hTERT. Sono riportati i volumi dei reagenti e le condizioni di reazione per la generazione di una coda poli(A) lunga 120–200 nucleotidi.
| Parametro | Formato a 12 pozzetti | Formato a 6 pozzetti |
| Superficie di crescita | ~3.8 cm² | ~9.5 cm² |
| Mezzo per pozzetto | 1,0 mL | 2,0 mL |
| Numero di cellule da seminare | 5× 10⁴–6,5× 10⁴ cellule/ml | 2,0–2,5 × 10⁵ |
| Numero medio di cellule (a confluenza del 100%) | 5,7× 10⁴–7,2× 10⁴ cellule/ml | 2,9–3 × 10⁵ |
| Quantità di transfezione di mRNA | 750–1000 ng | 2000–3500 ng |
| Agente di transfezione dell'mRNA | 1,5–3,0 µL | 4,75–7 µL |
| Volume finale di mRNA + agente di transfezione in Opti-MEM | 50 µL | 200 µL |
Tabella 3: Parametri raccomandati per la transfezione nell'invio di mRNA per hTERT in formati di coltura a 6 pozzetti e a 12 pozzetti. Sono riassunte le densità di semina delle cellule, le quantità di mRNA, i volumi del reagente di transfezione e i volumi di formazione del complesso utilizzati negli esperimenti di transfezione diretta e inversa.
Figura supplementare 1: Effetto della cloroquina e di Y-27632 sull'espressione di p16 e p21 associata alla senescenza dopo ripetute retrotrasfezioni con mRNA di hTERT. (A) Analisi di RT-PCR quantitativa dell'espressione di mRNA di p16 in fibroblasti LF1 trattati con finto trattamento e retrotrasfettati 3 volte con hTERT (RT), dopo trattamento con cloroquina (CQ), Y-27632 o la loro combinazione, come indicato. (B) Analisi di RT-PCR quantitativa dell'espressione di mRNA di p21 nelle stesse condizioni sperimentali. I livelli dei trascritti sono stati normalizzati rispetto a RpL13a ed espressi in rapporto alle cellule di controllo giovani (PD#12). Ogni punto dati rappresenta un replicato biologico. I dati rappresentano le medie ± DS da n = 2 replicati biologici, con 5 replicati tecnici per ogni replicato biologico. La significatività statistica è indicata nella figura; ns, non significativo. *P < 0,05, **P < 0,01, ****P < 0,0001, determinata mediante ANOVA di Brown–Forsythe e Welch. Abbreviazioni: CQ, cloroquina; RT, retrotrasfezione; Y-27632, inibitore della chinasi associata a Rho (ROCK).Cliccare qui per scaricare questo file.
File supplementare 1: Sequenze di DNA e proteine dei costrutti di espressione di hTERT.Cliccare qui per scaricare il file.
File Supplementare 2: Calcolo del raddoppio cellulare (PD). I raddoppi cellulari (PD) sono stati calcolati utilizzando la formula PD = log₂ (Nf/N₀), dove N₀ è il numero di cellule seminate e Nf è il numero di cellule vitali raccolte. Il PD cumulativo è stato determinato sommando i valori di PD ottenuti nei diversi passaggi.Clicca qui per scaricare questo file.
Discussione
Questo studio riformula la senescenza cellulare come un problema distinto di consegna, piuttosto che come una semplice variazione della fisiologia proliferativa, e sviluppa una strategia di trasfezione dell'mRNA della telomerasi adattata ai vincoli biofisici e immunologici dello stato senescente. Le cellule senescenti presentano membrane rigide e ricche di colesterolo, nonché un'attività endocitica ridotta, creando una barriera sostanziale alla consegna efficiente di acidi nucleici. Adottando un approccio di trasfezione inversa, questo protocollo sfrutta il periodo transitorio di adesione durante il quale le cellule senescenti subiscono un rimodellamento della membrana e mostrano una maggiore plasticità membranaria, sincronizzando così il contatto tra cellula e complesso con un periodo di potenziata capacità di assorbimento3,4. I risultati rappresentativi dimostrano che questa strategia migliora la consegna e l'espressione dell'mRNA modificato di hTERT rispetto alla trasfezione diretta convenzionale, portando a un allungamento maggiore dei telomeri e a fenotipi associati al ringiovanimento più marcati.
Un aspetto fondamentale del metodo è una strategia ingegnerizzata multilivello dell'mRNA progettata per affrontare tre principali ostacoli presenti nelle cellule senescenti: segnalazione immunitaria innata elevata, aumento della degradazione dell'RNA e capacità traduzionale compromessa23,24,25. L'incorporazione di pseudouridina e 5-metilcitosina riduce l'attivazione delle vie di segnalazione TLR3, TLR7/8 e RIG-I, migliorando contemporaneamente la stabilità dell'RNA messaggero e l'efficienza traduzionale13,26. La capsulazione con ARCA e l'ottimizzazione della coda poli(A) migliorano ulteriormente la stabilità del trascritto e l'output traduzionale, consentendo un'espressione robusta ma transitoria di hTERT. In linea con studi precedenti, queste modifiche supportano un'espressione efficiente della telomerasi minimizzando l'attivazione del sistema immunitario innato associata al rilascio di RNA esogeno.
Il protocollo affronta anche l'ambiente extracellulare ricco di RNasi, caratteristico delle colture senescenti27. La protezione dell'RNA è potenziata mediante la modifica dei nucleosidi, la formazione di complessi lipidici e l'aggiunta immediata, prima della trasfezione, di un inibitore delle RNasi. Inoltre, i tempi della trasfezione inversa sono adattati alla cinetica di adesione più lenta delle cellule senescenti, consentendo un'interazione prolungata tra le cellule e i complessi mRNA-lipidi durante l'adesione cellulare. Queste modifiche migliorano complessivamente la probabilità di un efficace incorporazione del carico in una popolazione cellulare altrimenti difficile da trasfettare.
L'uscita endosomiale rappresenta un secondo collo di bottiglia fondamentale per il trasferimento di mRNA nelle cellule senescenti. Le cellule senescenti mostrano un aumento del contenuto lisosomiale e un traffico potenziato del carico endocitato verso compartimenti degradativi17,28. Un'esposizione transitoria alla cloroquina durante il periodo post-trasfezione iniziale migliora il trasferimento funzionale promuovendo l'uscita endosomiale e riducendo la degradazione lisosomiale dell'mRNA internalizzato. Sebbene la dose ottimale e la durata dell'esposizione possano variare a seconda del tipo cellulare, i risultati presentati in questo studio indicano che il potenziamento dell'uscita endosomiale migliora in modo sostanziale l'efficienza del trasferimento nei fibroblasti senescenti.
A livello funzionale, la somministrazione ripetuta di modRNA di hTERT ha determinato incrementi cumulativi della lunghezza relativa dei telomeri, un allungamento della durata replicativa e una riduzione di diversi fenotipi associati alla senescenza. Le cellule sottoposte a trattamento ripetuto con hTERT hanno mostrato un'attività ridotta di SA-β-gal, una diminuzione dell'espressione di p16 e p21, un aumento dell'espressione di Ki67 e una maggiore capacità proliferativa rispetto ai controlli transfettati con placebo. È importante sottolineare che l'attività della telomerasi è rimasta transitoria, tornando a livelli prossimi alla baseline entro pochi giorni dalla transfezione. Questo profilo di espressione transitorio evita modificazioni genetiche permanenti pur fornendo un'attività della telomerasi sufficiente a indurre effetti biologici misurabili. Va tuttavia precisato che le misurazioni della lunghezza relativa dei telomeri ottenute mediante MMqPCR non quantificano direttamente l'allungamento assoluto dei telomeri. Studi futuri che impiegheranno l'analisi dei frammenti di restrizione terminali, ibridazione fluorescente in situ quantitativa, Flow-FISH o metodologie TeSLA forniranno una valutazione più precisa della dinamica della lunghezza dei telomeri dopo la somministrazione di mRNA di hTERT.
Diversi limiti meritano di essere considerati. Le popolazioni di cellule senescenti sono intrinsecamente eterogenee e possono variare nella loro risposta alla consegna di mRNA a seconda del metodo di induzione della senescenza, della fonte del donatore e della storia di coltura. Di conseguenza, l'efficienza di trasfezione e gli esiti di ringiovanimento potrebbero differire tra i diversi sistemi sperimentali. Inoltre, la riattivazione della telomerasi affronta principalmente gli aspetti dell'invecchiamento cellulare dipendenti dai telomeri e non corregge direttamente tutti i segni distintivi della senescenza. Alterazioni associate all'invecchiamento, come la deriva epigenetica, la disfunzione mitocondriale, l'alterato proteostasi e i segnali infiammatori cronici, potrebbero persistere nonostante un allungamento dei telomeri di successo29,30. Pertanto, questo protocollo dovrebbe essere considerato uno strumento mirato per lo studio e l'inversione parziale della senescenza guidata dai telomeri, piuttosto che una strategia di ringiovanimento completa.
I parametri descritti in questo protocollo sono intesi come linee guida pratiche per cellule umane senescenti e sono stati sviluppati attraverso un'ottimizzazione iterativa basata su studi pubblicati ed esperienza sperimentale. Fattori come la densità cellulare, il rapporto tra reagente di trasfezione e mRNA, il tempo di complessazione e le condizioni di fuga endosomiale potrebbero richiedere aggiustamenti in base al tipo cellulare e alle specifiche condizioni sperimentali. I ricercatori dovrebbero pertanto considerare le condizioni riportate come un punto di partenza per l'ottimizzazione, piuttosto che come risultati definitivi universalmente applicabili.
In sintesi, questo protocollo fornisce un quadro riproducibile per il rilascio di mRNA modificato di hTERT in cellule umane senescenti, mediante una strategia di transfezione inversa ottimizzata per le caratteristiche fisiologiche della senescenza. L'approccio consente una riattivazione transitoria della telomerasi, un allungamento misurabile dei telomeri, un prolungamento della durata replicativa e un parziale ripristino dei fenotipi associati alla senescenza. Studi futuri dovrebbero valutare l'applicabilità di questa strategia ad altri tipi di cellule senescenti, indagare approcci combinati con interventi complementari di ringiovanimento e analizzare la traduzione in piattaforme di somministrazione in vivo. Pertanto, questo metodo rappresenta uno strumento prezioso per lo studio della biologia dei telomeri, del ringiovanimento cellulare e dei meccanismi della senescenza nella ricerca sull'invecchiamento.
Dichiarazioni
J.M.S. è cofondatore e presidente del comitato scientifico di Transposon Therapeutics.
Ringraziamenti
Questo lavoro è stato sostenuto da finanziamenti degli Istituti Nazionali di Sanità (NIH) P01 AG051449, R01 AG016694 e R01 AG078925 a JS.
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| Ham's F-10 Nutrient Mix | Thermo Fisher | 11550043 | Mezzo di coltura cellulare. |
| 3´-O-Me-m7G(5')ppp(5')G RNA Cap Structure Analog | New England Biolab | S1411L | Per la maggior parte degli RNA, la struttura di cap aumenta la stabilità, riduce la suscettibilità alla degradazione da parte delle esonucleasi e favorisce la formazione di complessi di inizio dell'mRNA. |
| 5-Methyl-Cytidine-5´-Triphosphate (5-Methyl-CTP) | New England Biolab | N0432S | I NTP modificati sono comunemente utilizzati per ridurre l'immunogenicità dell'RNA ottenuto per trascrizione in vitro. |
| 6 Well Plate | Corning | 351146 | Per coltivare e trattare volumi medi o grandi di cellule aderenti o in sospensione in condizioni sperimentali indipendenti. |
| Anti-Ki67 antibody (SP6) | abcam | ab16667 | Ki67 è espressa principalmente nelle cellule in proliferazione. |
| Cellular Senescence Assay Kit (SA-beta-gal Staining) | cellbiolabs | CBA-230 | Identificazione delle cellule senescenti mediante saggio di colorazione SA-β-gal |
| DNA LoBind 0.5ml Tubes | Eppendorf | 022431005 | Per recuperare in modo efficiente DNA e RNA senza alcuna perdita |
| DNA LoBind 1.5ml Tubes | Eppendorf | 22431021 | Per recuperare in modo efficiente DNA e RNA senza alcuna perdita |
| DNase I, RNase-free (1 U/μL) | Thermo Fisher | EN0521 | La DNase I, priva di RNasi, è un'endonucleasi che digerisce il DNA a singolo e doppio filamento. |
| E. coli Poly(A) Polymerase | New England Biolab | M0276S | In Escherichia coli, la Poli(A) Polimerasi I (PAP I) funge principalmente da catalizzatore per l'aggiunta indipendente dal modello di residui di adenosina monofosfato (AMP) all'estremità 3' delle molecole di RNA. |
| Fetal Bovine Serum | Thermo Fisher | A5256701 | Supplemento per colture cellulari |
| HiScribe T7 ARCA mRNA Kit | New England Biolab | E2065S | Il HiScribe T7 ARCA mRNA Kit (con tailing) è progettato per la rapida produzione in vitro di mRNA capped con coda di poli(A). Gli mRNA capped vengono sintetizzati mediante incorporazione co-trascrizionale di Anti-Reverse Cap Analog (ARCA) utilizzando la T7 RNA Polimerasi. |
| HiScribe T7 mRNA Kit with CleanCap Reagent AG | New England Biolab | E2080S | il HiScribe T7 mRNA Kit con CleanCap Reagent AG consente la produzione rapida e semplificata di uno o più trascritti con rese tipiche di ≥90 μg per reazione, |
| LongAmp Hot Start Taq DNA Polymerase | New England Biolab | M0534S | La LongAmp Hot Start Taq DNA Polimerasi offre prestazioni eccezionali con amplificoni lunghi. |
| M-MuLV Reverse Transcriptase | New England Biolab | M0253L | La M-MuLV Reverse Trascrittasi sintetizza un filamento complementare di DNA a partire da un primer utilizzando come stampo o RNA (sintesi di cDNA) o DNA a singolo filamento. |
| Monarch Spin RNA Cleanup Kit (50 μg) | New England Biolab | T2040L | La funzione principale del Monarch® Spin RNA Cleanup Kit (50 μg) è purificare e concentrare fino a 50 μg di RNA di alta qualità proveniente da reazioni enzimatiche o miscele di estrazione. |
| NEBuilder HiFi DNA Assembly Master Mix | New England Biolab | E2621L | La NEBuilder HiFi DNA Assembly Master Mix consente l'assemblaggio senza interruzioni di più frammenti di DNA, indipendentemente dalla lunghezza del frammento o dalla compatibilità degli estremi. È utile per la comunità di biologia sintetica, nonché per il clonaggio in un unico passaggio di più frammenti grazie alla sua facilità d'uso, flessibilità e semplice formato di master mix. |
| Opti-MEM -Reduced Serum Medium | Thermo Fisher | 31985070 | Per massimizzare l'efficienza di trasfezione cellulare durante la formazione del complesso lipidico-carico. Funge da ambiente ottimizzato e chimicamente definito che mantiene le cellule mammifere altamente vitali riducendo la necessità di supplementazione standard con siero |
| PBS, pH 7.4 | Thermo Fisher | 10010023 | L'utilizzo principale del Phosphate-Buffered Saline (PBS) a pH 7,4 è mantenere un pH stabile e un equilibrio osmotico per le cellule e le molecole biologiche di mammifero. |
| PCR Strips | Thermo Fisher | AB0776 | L'utilizzo principale delle strip PCR (generalmente in formato 8-strip o 12-strip) è contenere reazioni liquide in piccolo volume durante cicli termici ad alta produttività. |
| Poly-L-Lysine Hydrobromide | Millipore Sigma | P4707-50ML | L'utilizzo principale del Poly-L-Lysine (PLL) Hydrobromide per l'adesione cellulare è rivestire superfici solide cariche negativamente (come vetro o plastica) per creare un substrato altamente adesivo e carico positivamente. |
| Pseudouridine-5´-Triphosphate (Pseudo-UTP- ΨUTP) | New England Biolab | N0433S | Il Pseudouridine-5´-Triphosphate (Pseudo-UTP) è comunemente utilizzato per ridurre l'immunogenicità dell'RNA ottenuto per trascrizione in vitro. |
| Ribonucleotide Solution Set | New England Biolab | N0450L | Quattro soluzioni separate di ATP, GTP, CTP e UTP |
| ROCK inhibitor Y-27632 (Dihydrochloride) | Stem cell technologies | 72302 | Y-27632 è un inibitore permeabile alle cellule, altamente potente e selettivo della chinasi associata a Rho, contenente coil-coil (ROCK). Y-27632 inibisce sia ROCK1 (Ki = 220 nM) che ROCK2 (Ki = 300 nM) competendo con l'ATP per il legame al sito catalitico |
| RT-PCR Grade Water | Thermo Fisher | AM9935 | L'utilizzo principale dell'acqua di grado RT-PCR (spesso indicata come acqua priva di nucleasi) è fungere da solvente ultra puro per saggi enzimatici sensibili in cui qualsiasi contaminazione degraderebbe il campione o inibirebbe l'amplificazione. |
| SUPERase·In RNase Inhibitor | Thermo Fisher | AM2694 | SUPERase In RNase Inhibitor è un inibitore proteico di origine non umana che si lega in modo non covalente e inibisce le RNasi più comuni e problematiche, inclusi RNase A, B, C, 1 e T1. |
| SYBR Green I Nucleic Acid Gel Stain | Thermo Fisher | S7563 | L'utilizzo principale del colorante gel per acidi nucleici SYBR™ Green I è visualizzare e quantificare il DNA a doppio filamento (dsDNA) in gel di agarosio o poliacrilamide. |
| TransIT-mRNA Transfection Kit | Mirusbio/ Millipore Sigma | MIR 2250 | Un reagente di trasfezione ad alta efficienza e bassa tossicità per RNA di grandi dimensioni |
| TRAPeze Telomerase Detection Kit | Millipore Sigma | S7700 | Il saggio TRAP (Telomeric Repeat Amplification Protocol) è un metodo sensibile e ampiamente utilizzato basato su PCR per rilevare e misurare l'attività della telomerasi in cellule e campioni di tessuti di mammifero. Comprende tre fasi principali: estensione delle ripetizioni telomeriche da parte della telomerasi, amplificazione di questi prodotti mediante PCR e successivo rilevamento. |
| Trypsin-EDTA (0.05%), phenol red | Thermo Fisher | 25300054 | Per staccare le cellule mammifere aderenti dai contenitori di coltura durante il passaggio routinario (sottocoltura) e il raccolto. |
Riferimenti
- Millner A, Atilla-Gokcumen GE. Lipid players of cellular senescence. Metabolites. 2020;10(9):339.
- Hamsanathan S, Gurkar AU. Lipids as regulators of cellular senescence. Front Physiol. 2022;13:796850.
- Das UN. Cell membrane theory of senescence and the role of bioactive lipids in aging and aging-associated diseases and their therapeutic implications. Biomolecules. 2021;11(2):241.
- Shin EY, Soung NK, Schwartz MA, Kim EG. Altered endocytosis in cellular senescence. Ageing Res Rev. 2021;68:101332.
- Park JS, et al. Down-regulation of amphiphysin-1 is responsible for reduced receptor-mediated endocytosis in senescent cells. FASEB J. 2001;15(9):1625-1627.
- Park SC. Functional recovery of senescent cells through restoration of receptor-mediated endocytosis. Mech Ageing Dev. 2002;123(8):917-926.
- Stroupe C. This is the end: regulation of Rab7 nucleotide binding in endolysosomal trafficking and autophagy. Front Cell Dev Biol. 2018;6:129.
- Curnock R, et al. TFEB-dependent lysosome biogenesis is required for senescence. EMBO J. 2023;42(9):e111241.
- Guerrero-Navarro L, Jansen-Durr P, Cavinato M. Age-related lysosomal dysfunctions. Cells. 2022;11(12):1977.
- Tan JX, Finkel T. Lysosomes in senescence and aging. EMBO Rep. 2023;24(11):e57265.
- Rovira M, et al. The lysosomal proteome of senescent cells contributes to the senescence secretome. Aging Cell. 2022;21(10):e13707.
- Kilroy G, Burk DH, Floyd ZE. High-efficiency lipid-based siRNA transfection of adipocytes in suspension. PLoS One. 2009;4(9):e6940.
- Kariko K, Buckstein M, Ni H, Weissman D. Suppression of RNA recognition by Toll-like receptors: the impact of nucleoside modification and the evolutionary origin of RNA. Immunity. 2005;23(2):165-175.
- Freund I, Eigenbrod T, Helm M, Dalpke AH. RNA modifications modulate activation of innate Toll-like receptors. Genes (Basel). 2019;10(2):92.
- Chen H, et al. Branched chemically modified poly(A) tails enhance the translation capacity of mRNA. Nat Biotechnol. 2025;43(2):194-203.
- Alshehri A, Grabowska A, Stolnik S. Pathways of cellular internalisation of liposome-delivered siRNA and effects on siRNA engagement with target mRNA and silencing in cancer cells. Sci Rep. 2018;8(1):3748.
- Paramasivam P, et al. Endosomal escape of delivered mRNA from endosomal recycling tubules visualized at the nanoscale. J Cell Biol. 2022;221(2):e202110137.
- Pandey E, Harris EN. Chloroquine and cytosolic galectins affect endosomal escape of antisense oligonucleotides after Stabilin-mediated endocytosis. Mol Ther Nucleic Acids. 2023;33:430-443.
- Bettinger T, et al. Peptide-mediated RNA delivery: a novel approach for enhanced transfection of primary and post-mitotic cells. Nucleic Acids Res. 2001;29(18):3882-3891.
- Granados-Riveron JT, Aquino-Jarquin G. Engineering of the current nucleoside-modified mRNA-LNP vaccines against SARS-CoV-2. Biomed Pharmacother. 2021;142:111953.
- Hou X, Shi J, Xiao Y. mRNA medicine: recent progresses in chemical modification, design, and engineering. Nano Res. 2024;17(10):9015-9030.
- Ramunas J, et al. Transient delivery of modified mRNA encoding TERT rapidly extends telomeres in human cells. FASEB J. 2015;29(5):1930-1939.
- Majewska J, Krizhanovsky V. Immune surveillance of senescent cells in aging and disease. Nat Aging. 2025;5(8):1415-1424.
- Ajoolabady A, et al. Hallmarks and mechanisms of cellular senescence in aging and disease. Cell Death Discov. 2025;11(1):364.
- Lin J, et al. RNA and protein degradation in the aging process. Cell Signal. 2025;136:112166.
- Anderson BR, et al. Incorporation of pseudouridine into mRNA enhances translation by diminishing PKR activation. Nucleic Acids Res. 2010;38(17):5884-5892.
- Sugawara S, et al. RNaseH2A downregulation drives inflammatory gene expression via genomic DNA fragmentation in senescent and cancer cells. Commun Biol. 2022;5(1):1420.
- Chatterjee S, Kon E, Sharma P, Peer D. Endosomal escape: a bottleneck for LNP-mediated therapeutics. Proc Natl Acad Sci U S A. 2024;121(11):e2307800120.
- Li YY, Tay FR. The epigenetic rejuvenation promise: partial reprogramming as a therapeutic strategy for aging and disease. Ageing Res Rev. 2026;115:103009.
- Zhang W, Qu J, Liu GH, Belmonte JCI. The ageing epigenome and its rejuvenation. Nat Rev Mol Cell Biol. 2020;21(3):137-150.