Questo protocollo mira a valutare lo sviluppo del melanoma negli xenoinnesti di pesce zebra utilizzando la risonanza elettronica paramagnetica in vivo (spettroscopia per rilevare e analizzare i radicali melaninici), offrendo un approccio innovativo per la ricerca preclinica sul melanoma e la valutazione terapeutica.
Articolo metodologico
Risonanza paramagnetica elettronica in banda X per il monitoraggio dei cambiamenti radicali associati alla melanina in xenoinnesti di melanoma zebra
In questo articolo
Sommario
Abstract
Questo protocollo presenta una nuova applicazione in vivo della spettroscopia di risonanza paramagnetica elettronica in banda X (9,5 GHz) per il monitoraggio della dinamica dei radicali associati alla melanina nei modelli di xenoinnesti di melanoma del pesce zebra (Danio rerio). L'obiettivo di questo metodo è consentire una valutazione diretta, senza etichette e quantitativa dei cambiamenti redox associati alla melanina durante lo sviluppo embrionale e delle interazioni tumore-ospite in un modello vertebrato fisiologicamente rilevante.
Sfruttando le proprietà paramagnetiche intrinseche della melanina, questo approccio fornisce informazioni biochimiche complementari che non possono essere ottenute solo con l'imaging convenzionale basato sulla fluorescenza. È importante sottolineare che il segnale di risonanza paramagnetica elettronica rilevato riflette la frazione redox attiva del polimero melaninico e quindi funge da lettura sensibile al redox piuttosto che come misura diretta dell'abbondanza totale del pigmento.
La performance del metodo è stata validata tramite la rilevazione selettiva di radicali associati alla melanina in embrioni di tipo selvatico pigmentato, assenza di segnale nei controlli albino, cambiamenti statisticamente significativi nello sviluppo del segnale di risonanza paramagnetica elettronica normalizzato tra repliche biologiche indipendenti, e risultati comparabili ottenuti utilizzando portacampioni alternativi e campioni congelati.
Combinando la spettroscopia di risonanza paramagnetica elettronica in banda X con modelli di xenoinnesti di pesce zebra, questo protocollo fornisce una piattaforma scalabile, eticamente favorevole e trasferibile per la ricerca preclinica sul melanoma, studi di biologia redox e la valutazione di interventi modulanti della melanogenesi.
Introduzione
L'obiettivo generale di questo studio è sviluppare e convalidare un metodo affidabile in vivo per la rilevazione e quantificazione dei radicali melaninici nel modello xenoinnesto di embrioni di pesce zebra (Danio rerio) combinato con spettroscopia di risonanza paramagnetica elettronica in banda X (9,5 GHz). Questo approccio mira a consentire una valutazione diretta e quantitativa dei processi redox associati alla melanina durante lo sviluppo del melanoma e in risposta agli interventi farmacologici.
La melanina è un gruppo eterogeneo di biopolimeri responsabili della pigmentazione della pelle, dei capelli e degli occhi in una vasta gamma di organismi. Tra le sue forme, eumelanina e feomelanina svolgono ruoli distinti in biologia. L'eumelanina presenta proprietà antiossidanti e fotoprotettive, mentre la feomelanina può favorire la generazione di specie reattive dell'ossigeno (ROS), in particolare sotto esposizione ai raggiUV 1,2,3. Sia le azioni antiossidanti che proossidanti sono correlate alla formazione dei radicali melaninici. A livello molecolare, la melanina è un polimero eterogeneo redox attivo composto da subunità indoliche e contenenti chinone che possono esistere in molteplici stati fisicochimici, tra cui le forme di chinone completamente ossidata, semichinone parzialmente ridotta e idrochinone completamente ridotto 4,5,6. L'abbondanza relativa delle specie di radicali semichinone è dinamica e dipende dalle condizioni fisicochimiche locali, tra cui la disponibilità di ossigeno, le specie reattive di ossigeno (ROS), le interazioni tra ioni metallici, il pH, il grado di polimerizzazione e la maturazione deimelanosomi 7,8,9.
Pertanto, sono necessari metodi che permettano la valutazione quantitativa di queste concentrazioni radicali per una migliore comprensione dei cambiamenti nello stato redox della melanina. Nel melanoma, la disregolazione della melanogenesi nei melanociti contribuisce all'inizio e alla progressione del melanoma. Questa disregolazione è spesso collegata a spostamenti di stato redox, dipendenti dalle condizioni microambientali locali. Questo rende l'attività redox della melanina un fattore importante nella biologiatumorale 10. Pertanto, i metodi che permettono la valutazione diretta dei radicali melaninici sono essenziali per comprendere la patogenesi e la risposta terapeutica del melanoma.
Gli embrioni di pesce zebra rappresentano un potente modello in vivo per studiare la pigmentazione e il melanoma. Fino a 5 giorni dopo la feconditazione (120 ore dopo la fecondazione, hpf), non sono classificati come animali protetti secondo la Direttiva 2010/63/UE, permettendo esperimenti ad alto rendimento senza un'approvazione etica formale. Lo sviluppo rapido, la trasparenza ottica e i protocolli consolidati rendono il pesce zebra altamente adatto per studi tossicologicie farmacologici 11,12. È importante notare che questo pesce condivide significative somiglianze genetiche e fisiologiche con gli esseri umani, e i principali percorsi coinvolti nella melanogenesi sonoconservati 13. Mentre i pesci zebra di tipo selvatico producono prevalentemente eumelanina e fungono da modello per la pigmentazione fisiologica, i modelli xenoinnesti — basati sull'impianto di linee cellulari di melanoma che producono eumelanina e feomelanina — permettono di indagare la progressione tumorale dei mammiferi e le risposte farmacologiche in un microambiente fisiologicamenterilevante 14,15.
Attualmente, l'imaging basato sulla fluorescenza è il metodo standard utilizzato negli studi con xenoinnesti del melanoma zebra. Questo approccio consente la visualizzazione in tempo reale della crescita, migrazione e risposta al trattamento dei tumori tramite coloranti fluorescenti, ad esempio dichlorodiidrofluoresceina diacetato (DCFDA) o linee transgeniche (Grx1-roGFP2, HyPer)16,17. Tuttavia, le tecniche di fluorescenza forniscono principalmente informazioni morfologiche e spaziali e sono limitate nella loro capacità di catturare processi biochimici e correlati al redox. Inoltre, le loro letture possono essere influenzate da fotosbiancamento, perdite di colorante, interferenze di composti fluorescenti e potenziali alterazioni nella fisiologia cellulare causate dall'etichettatura. Fondamentalemente, i metodi basati sulla fluorescenza non forniscono informazioni dirette sui radicali melaninici o sul loro comportamento redox dinamico.
La spettroscopia della risonanza paramagnetica elettronica offre un approccio analitico unico e potente, poiché consente la rilevazione e la quantificazione diretta delle specie paramagnetiche, inclusi i radicali stabili associati alla melanina. Sia eumelanina che feomelanina contengono semichinone che generano segnali caratteristici di risonanza paramagnetica elettronica, e il contributo relativo di questi segnali è stato esplorato come biomarcatore dello stato di pigmentazione e della progressione delmelanoma 18,19. È importante sottolineare che, poiché solo la frazione di semichinone redox attiva contribuisce direttamente al segnale rilevato, la spettroscopia di risonanza paramagnetica elettronica fornisce informazioni complementari agli saggi convenzionali correlati alla melanogenesi, come la quantificazione del contenuto di melanina, l'attività della tirosinasi o l'analisi della pigmentazione. Di conseguenza, l'intensità del segnale di risonanza paramagnetica elettronica dovrebbe essere interpretata come una lettura sensibile al redox dello stato funzionale della melanina, influenzata dalle condizioni fisicochimiche locali, piuttosto che come una misura diretta dell'abbondanza totale di pigmento.
Sebbene la maggior parte degli studi in vivo sulla risonanza paramagnetica elettronica sia stata condotta utilizzando sistemi in banda L (una forma di spettroscopia di risonanza paramagnetica elettronica che utilizza microonde a bassa frequenza (circa 1–2 GHz) per studiare specie paramagnetiche, in particolare in campioni più grandi dove è necessaria una penetrazione più profonda del segnale)20— La risonanza paramagnetica elettronica in banda X fornisce una risoluzione e sensibilità spettrali più elevate per campioni di piccolo volume, rendendolo particolarmente adatto agli embrioni di pesce zebra. Inoltre, sviluppi tecnici recenti, inclusi sistemi di rilevamento multiarmonico, migliorano significativamente la qualità del segnale e consentono misurazioni affidabili in campioni biologici difficili (piccoli e più idratati) 21,22. La dimensione del risonatore in banda X è la dimensione corretta per pochi embrioni di pesci zebra, che, combinata con una risoluzione superiore rispetto al sistema in banda L, consente di ridurre il numero di animali utilizzati. Questo è particolarmente importante quando si lavora con modelli di xenoinnesti.
Nonostante questi vantaggi, l'applicazione della risonanza paramagnetica elettronica in banda X agli embrioni viventi di pesce zebra e agli xenoinnesti di melanoma in questo modello rimane in gran parte inesplorata. Studi in vitro utilizzando linee cellulari di melanoma, come B16F10, hanno fornito preziose intuizioni sulle proprietà dei radicali melaninici; tuttavia, mancano del complesso contesto fisiologico di un organismovivente 23,24. In particolare, il microambiente del pesce zebra introduce fattori critici—come gradienti di ossigeno, interazioni cellula-cellula e attività metabolica dinamica—che possono influenzare in modo significativo il comportamento dei radicalimelaninici 25,26. Pertanto, è chiaro necessario sviluppare e convalidare una metodologia in vivo che consenta la misurazione diretta dei radicali della melanina in condizioni fisiologicamente rilevanti.
In questo studio, presentiamo un protocollo dettagliato per l'applicazione della spettroscopia di risonanza paramagnetica elettronica in banda X agli embrioni di pesci zebra, inclusi modelli xenoinnesti contenenti linee cellulari di melanoma B16F10 e B16F1. Questo metodo offre un approccio complementare all'imaging basato sulla fluorescenza consentendo una valutazione quantitativa del contenuto di radicali melaninici, fornendo così una visione della dinamica redox. Integrando informazioni strutturali e spaziali delle tecniche di fluorescenza con intuizioni biochimiche derivanti dalla risonanza paramagnetica elettronica, questa strategia combinata potenzia la potenza analitica dei modelli di pesci zebra per la ricerca preclinica sul melanoma. È importante sottolineare che il segnale di risonanza paramagnetica elettronica rilevato in questo protocollo riflette la frazione redox-attiva del polimero melaninico. Di conseguenza, l'intensità del segnale dovrebbe essere interpretata come una lettura sensibile al redox piuttosto che come una misura diretta del contenuto totale di melanina, e considerata in combinazione con il contenuto totale di pigmento come un'indicazione di spostamenti redox associati alla melanina. A causa dell'approccio di misurazione dell'organismo completo e del numero limitato di cellule di melanoma iniettate, il segnale rilevato rappresenta principalmente cambiamenti radicali globali associati alla melanina a livello dell'intero embrione/larva del pesce zebra, piuttosto che un segnale specifico del melanoma proveniente esclusivamente dallo xenoinnesto. Questa distinzione è particolarmente rilevante nei sistemi biologici dinamici, dove variazioni nello stato di ossidazione della melanina possono verificarsi indipendentemente dalle variazioni della quantità complessiva di pigmento.
Protocollo
In questo studio sono stati utilizzati embrioni di pesce zebra (Danio rerio) fino a 5 giorni dopo la fecondazione (120 hpf). In questa fase di sviluppo, gli embrioni non sono considerati animali protetti ai sensi della Direttiva 2010/63/UE e quindi gli esperimenti non richiedono un'autorizzazione formale da parte di un comitato etico. Tuttavia, tutto il lavoro è stato condotto in conformità con le buone pratiche di laboratorio e le linee guida istituzionali per la cura e l'uso dei pesci zebra.
1. Preparazione dei reagenti e mantenimento delle linee cellulari del melanoma topino B16F1 e B16F10
- Preparazione del mezzo completo
- Aggiungi 50 mL di siero bovino fetale (FBS) e 5,5 mL di soluzione di penicillina e streptomicina a 500 mL di Modified Eagle Medium (DMEM) di Dulbecco.
- Riscalda l'intero mezzo a 37 °C prima dell'uso.
NOTA: Utilizzare soluzioni preriscaldate per minimizzare lo stress termico durante la gestione delle celle.
- Scongelamento e inizio della coltura da cellule congelate
- Scongela rapidamente la fiala congelata con le cellule in un bagno d'acqua a 37 °C (~1–2 min).
- Disinfettare l'esterno della fiala con etanolo al 70%. Esegui tutti i passaggi successivi in condizioni asettiche.
- Trasferire la sospensione della cella in un tubo conico da 15 mL contenente 9 mL di mezzo completo preriscaldato. Conserva una piccola aliquota della sospensione originale per il test del micoplasma.
- Centrifuga le celle nel tubo a 200 × g per 5 minuti a temperatura ambiente.
- Aspirare il soprandanante per rimuovere residui di dimetilsolfosida (DMSO; dal mezzo di congelamento).
- Risospendere il pellet cellulare in 10 mL di mezzo completo fresco e preriscaldato.
- Trasferire le cellule in una piastra di Petri di ⌀�9 cm e ruotare delicatamente a otto per distribuire uniformemente le cellule.
- Incubare le cellule a 37°C, 5% di CO₂ e ≥95% di umidità durante la notte.
- Sostituire il substrato di coltura con un mezzo completo fresco e preriscaldato dopo 16–24 ore.
- Continuare l'incubazione finché le cellule non raggiungono l'>80% di confluenza. Procedere alla subcultura (vedi passo 1.3).
NOTA: In alternativa alle piastre di Petri, possono essere utilizzati recipienti sterili per la coltura (ad esempio, fiaschette a T). Se si preferiscono piatti o fiaschette più piccole, dividere le cellule proporzionalmente per mantenere la stessa superficie relativa della coltura.
- Subcultura delle cellule
- Rimuovi il mezzo di coltura dal monostrato cellulare. Conserva una piccola aliquota per il test del micoplasma.
- Aggiungi 10 mL di soluzione salina tamponata con fosfato (PBS) al piatto di coltura.
- Lasciare che il PBS riposi sulle cellule a temperatura ambiente per 3–5 minuti per consentire la completa rimozione delle proteine sieriche.
- Aspira delicatamente il PBS, facendo attenzione a non spostare le cellule.
- Aggiungi 1 mL di reagente di dissociazione cellulare e incuba a 37°C finché le cellule non si radunano e si staccano (non superare i 5 minuti di incubazione).
- Aggiungi 1 mL di mezzo completo preriscaldato per fermare la dissociazione enzimatica.
- Pipetta delicatamente la sospensione a celle su e giù più volte per ottenere una sospensione a singola cella.
- Trasferire le cellule in una nuova piastra di Petri o in una fiaschetta a T contenente un mezzo completo preriscaldato con un rapporto di divisione di 1:4 a 1:10. Ruota delicatamente a otto per distribuire uniformemente le cellule.
- Incubare le cellule a 37 °C, 5% di CO₂ e ≥95% di umidità.
NOTA: Utilizzare soluzioni preriscaldate (37 °C) e eseguire tutte le procedure in condizioni asettiche in un armadietto di sicurezza biologica di Classe II indossando l'attrezzatura di protezione individuale appropriata. Cellule in subcoltura ogni 2–3 giorni o con confluenza dell'80–90%. Utilizzare cellule a basso passaggio (
- Criopreservazione (Bancamento) delle celle
- Utilizzare cellule sane a crescita esponenziale (~70%–80% confluente).
- Prelevare le cellule come descritto nei passaggi 1.3.1–1.3.7 e trasferire la sospensione cellulare in un tubo conico da 15 mL.
- Centrifuga le celle a 300 × g per 2 minuti.
- Rimuovere il soprantantante e risospendere le celle in mezzo di crioconservazione a 1–5 × 10⁶ cellule/mL.
- Sospensione cellulare aliquota in cryovial marcati (linea cellulare, numero di passaggio, data).
- Congelare le fiale durante la notte a -80°C utilizzando un contenitore di congelamento a tasso controllato.
- In alternativa, si utilizza un metodo di isolamento annidato: inserire le fiale in un piccolo rack in polistirolo progettato per tubi da 1,5/2,0 mL, che viene poi situato all'interno di una scatola più grande in polistirene.
NOTA: Questa configurazione a doppio strato è progettata per fornire il buffering termico necessario a raggiungere un tasso di raffreddamento graduale, fondamentale per una crioconservazione efficace.
NOTA: I materiali criogenici devono essere trattati con guanti isolati e protezioni facciali. Segui le linee guida istituzionali per la gestione dell'azoto liquido e dei rifiuti pericolosi.
- In alternativa, si utilizza un metodo di isolamento annidato: inserire le fiale in un piccolo rack in polistirolo progettato per tubi da 1,5/2,0 mL, che viene poi situato all'interno di una scatola più grande in polistirene.
- Dopo un'incubazione notturna a -80 °C, trasferire le fiale in azoto liquido per la conservazione a lungo termine. I Cryovials possono essere conservati a -80 °C per la conservazione a breve termine.
- Test per Mycoplasma
- Raccogliere una piccola aliquota di substrato o sospensione cellulare durante lo scongelamento, la sottocoltura o la crioconservazione.
- Valuta la contaminazione da micoplasmi utilizzando un kit di rilevamento di micoplasmi basato su PCR o enzimatico validato secondo le istruzioni del produttore.
- Usa colture a micoplasma-negative per esperimenti o per il banking delle linee cellulari.
- Registra i risultati e scarta o isola qualsiasi coltura contaminata fino a quando non viene liberata.
NOTA: Effettuare test regolari per la contaminazione da micoplasmi.
2. Trapianto di cellule tumorali nelle larve di pesce zebra
- Preparare le cellule tumorali per il trapianto
- Fai crescere le cellule fino all'~80% di confluenza.
- Prelevare le cellule come descritto nei passaggi 1.3.1–1.3.7.
- Trasferire la sospensione della cella su un tubo microcentrifuga da 2 mL.
- Centrifuga le celle a 300 × g per 2 minuti a temperatura ambiente.
- Rimuovere il surnadante e lavare la pellet cellulare con 1 mL di PBS sterile.
- Ripeti il passo 2.1.4–2.1.5 e risospezioni le celle nel PBS residuo. Una sospensione più densa fornirà meno sedimentazione.
- Pipetta delicatamente la sospensione su e giù fino a ottenere una sospensione omogenea a singola cella.
NOTA: Utilizzo di punta di pipetta da 200 μL pre-umidida (preparata) con una soluzione di polivinilpiroldone (PVP) al 45% poiché aiuta a prevenire la sedimentazione cellulare all'interno del microago di iniezione. - Tieni la sospensione cellulare sul ghiaccio fino all'iniezione.
NOTA: Se si verifica un aggregamento cellulare, far passare la sospensione cellulare attraverso un colino cellulare da 35–40 μm e/o trattare le cellule con 0,01–0,05 mg/mL di DNasi I.
- Produzione di uova di pesce zebra
- La sera prima della prevista raccolta delle uova, posizionare il pesce zebra adulto in vasche di riproduzione contenenti acqua del sistema (preparate per la deposizione delle uova).
- Tieni i serbatoi in totale oscurità durante la notte; Questo garantisce che la deposizione delle uova venga attivata la mattina del giorno successivo, quando si accendono le luci.
- I pesci si riprodurranno dopo l'inizio della leggera esorgere il giorno seguente. Raccogli le uova versando l'acqua della vasca attraverso un colino da tè.
- Risciacquate accuratamente le uova con medium E3 (5 mM NaCl, 0,17 mM KCl, 0,33 mMCaCl 2, 0,33 mMMgSO 4).
- Trasferire le uova fecondate in piastre di Petri da 9 cm contenenti 20–25 mL di mezzo E3. Inserire non più di 50 embrioni in ogni piatto.
- Incubare gli embrioni a 28 °C fino a un ulteriore utilizzo.
NOTA: Fai attenzione a mantenere le uova sempre umide.
- Preparazione dell'embrione di pesce zebra
- Rimuovere manualmente i corioni dagli embrioni a circa 36 hpf.
- Usa due paia di pinze ultra-fine Jewelry No. 5. Con una coppia, pizzica fermamente ma delicatamente il corione per stabilizzare l'uovo. Usa la seconda coppia di pinze per afferrare il corione vicino al primo paio.
- Tira delicatamente la pinza in direzioni opposte per creare una piccola lacerazione. Allargare con attenzione l'apertura finché l'embrione non scivola fuori.
- Anestesiare le larve dechorionate con una soluzione di tricaina fresca preparata secondo i protocolli stabiliti per il pescezebra 27.
NOTA: Gli embrioni senza corioni sono fragili, appiccicosi e devono essere impediti di essere esposti all'aria. Usa pipette di vetro e piastre di Petri rivestite di agarosio mentre lavori con pesci zebra <3 dpf.
- Rimuovere manualmente i corioni dagli embrioni a circa 36 hpf.
- Prepara aghi di microiniezione
- Estrai i capillari di vetro privi di filamento utilizzando un tiratore con parametri impostati secondo le linee guida del produttore.
- Usando le pinze fine, rompi la punta dell'ago in due passaggi: prima, fai una piccola rottura alla punta fine. Poi, esegui una seconda rottura esattamente dove le cellule si bloccano. Questo crea un'apertura ottimale appena abbastanza grande per far passare le cellule, pur rimanendo il più piccola possibile.
- Riempi l'ago con la sospensione a celle usando un microlader lungo - una punta per riempire i microcapillari di vetro. Evita di introdurre bolle d'aria.
- Utilizzare la massima densità cellulare possibile (concentrazione massima) per la sospensione; La dose specifica della cellula è controllata tramite le impostazioni dell'iniettore.
- Carica spesso l'ago con piccole aliquote, limitando la colonna di sospensione all'interno dell'ago a un'altezza massima di 2 mm. Questo minimizza la sedimentazione cellulare all'interno dell'ago, garantendo una distribuzione più omogenea e una consegna costante durante le iniezioni.
- Monta l'ago caricato su un supporto dell'apparecchio di microiniezione.
- Regolare la pressione di iniezione e la durata dell'impulso per somministrare il numero desiderato di cellule per iniezione (il volume totale della sospensione cellulare iniettata non deve superare la dimensione dell'occhio dell'embrione di pesce zebra al momento dell'iniezione).
NOTA: Esempi dettagliati di metodologie di microiniezione di xenoinnesti da pesci zebra sono stati descritti in precedenza da altriautori 28.
- Procedura di microiniezione
- Iniettare la sospensione cellulare sia nel sacco vitellino che nella circolazione secondo il disegno sperimentale.
- Somministrare più di 1000 cellule per embrione in condizioni di iniezione calibrate.
NOTA: Includere embrioni iniettati con soluzione salina tamponata con fosfato (PBS) come controlli negativi.
- Manipolazione post-iniezione
- Mantenere embrione/larve iniettate a 28-32 °C
- Monitorare quotidianamente la sopravvivenza larvale e la progressione dello sviluppo sotto un microscopio dissezionale.
- Valutare la proliferazione e la migrazione delle cellule tumorali nei momenti sperimentali selezionati.
- Procedere con la misurazione della risonanse elettronica paramagnetica (EPR) come descritto nella sezione 3.1 oppure immagazzino il campione come descritto nella sezione 2.7
NOTA: Scartare le larve con trauma da iniezione o iniezione impropria. Segui tutte le linee guida istituzionali sulla biosicurezza e sulla cura degli animali. Maneggiare la tricaina e i rifiuti biologici secondo i protocolli di sicurezza. Smaltire i materiali pericolosi secondo le normative.
- Raccolta di campioni per il congelamento
- Eutanasia le larve tramite immersione in una soluzione di tricaina raffreddata per almeno 3 minuti.
- Trasferire gruppi di 10 larve in tubi microcentrifughe da 1,5 mL. Rimuovi il mezzo in eccesso da ogni provetta.
- Conservare i campioni a -20 °C fino all'analisi della risonanza paramagnetica elettronica.
3. Rilevamento dei radicali melaninici tramite spettroscopia di risonanza paramagnetica elettronica
- Rilevamento dei radicali melaninici nelle larve di pesce zebra in vivo
- Attiva lo spettrometro di risonanza paramagnetica elettronica in banda X e lascia stabilizzare il sistema secondo le istruzioni del produttore.
- Trasferire 20–30 larve di pesce zebra (3–5 giorni dopo la fecondazione, dpf) in un tubo microcentrifuga da 1,5 mL.
- Riempire il capillare piatto per le larve di pesce zebra con 100 μL di mezzo E3.
- Sigilla un'estremità del capillare con un tappo di plastica e assicurati che la colonna liquida rimanga confinata nella camera piatta.
- Trasferire diverse larve insieme a un piccolo volume di mezzo E3 in un capillare ematocrito da 100 μL.
- Deposano delicatamente le larve dal capillare dell'ematocrito nella parte superiore della parte piatta.
NOTA: Fai attenzione a preservare la continuità della soluzione. Non dovrebbero esserci bolle d'aria nella parte piatta o vicino alla parte superiore della parte piatta. - Rimuovere il liquido in eccesso dalla sezione tubolare esterna del capillare mantenendo un contatto continuo con il liquido all'interno della camera piatta.
- Ripetere i passaggi 3.1.5–3.1.7 finché 20–30 larve non sono caricate nel capillare piatto.
- Rimuovere il liquido residuo dalle sezioni tubolari del capillare.
- Inserire il capillare nello spettrometro di risonanza paramagnetica elettronica e posizionare il campione al centro del risonatore.
- Impostare i parametri di acquisizione nel software dello spettrometro come segue: campo centrale = 335 mT; larghezza di sfreccia = 10 mT; ampiezza di modulazione = 500 μT; potenza a microonde = 1,6 mW; numero di scansioni = 32; tempo di spazzamento = 11 s; costante temporale = 0.
- Acquisire lo spettro di risonanza paramagnetica degli elettroni.
- Rimuovere il capillare dal risonatore e liberare le larve in un mezzo E3 fresco in una piastra di Petri.
NOTA: Evitare di introdurre bolle d'aria durante il carico del campione, poiché le discontinuità nella colonna del liquido possono ridurre la riproducibilità del segnale. Se non è disponibile il rilevamento multiarmonico, si riduce l'ampiezza di modulazione e si ottimizzano i parametri di acquisizione per massimizzare l'intensità del segnale senza distorsioni spettrali.
- Rilevamento del radicale melaninico nelle larve di pesce zebra congelate
- Scongelare un campione congelato contenente 10 larve di pesci zebra soppresse a temperatura ambiente per 5–10 minuti.
- Aggiungere 100 μL di mezzo E3 al campione scongelato.
- Trasferire le larve insieme al mezzo in un capillare ematocrito da 100 μL.
- Si rimuove il liquido in eccesso dal capillare finché il campione non occupa solo il volume del risonatore attivo (circa 1 cm di lunghezza).
- Sigilla il capillare con un composto sigillante.
- Inserire il capillare nello spettrometro di risonanza paramagnetica elettronica e posizionare il campione al centro del risonatore.
- Impostare i parametri di acquisizione nel software dello spettrometro come segue: campo centrale = 335 mT; larghezza di sfreccia = 10 mT; ampiezza di modulazione = 500 μT; potenza a microonde = 1,6 mW; numero di scansioni = 32; tempo di spazzamento = 11 s; costante temporale = 0.
- Acquisire e salvare lo spettro di risonanza paramagnetica degli elettroni.
NOTA: Assicurarsi che il bordo superiore del campione rimanga sotto quello superiore del risonatore per evitare distorsioni del segnale. Se non è disponibile la rilevazione multiarmonica, si riduce l'ampiezza di modulazione e si ottimizza la potenza delle microonde per massimizzare l'intensità del segnale senza distorsione spettrale.
- Estrazione di dati di risonanza paramagnetica elettronica da software di analizzatori multiarmonici e post-elaborazione degli spettri
- Apri lo spettro di risonanza paramagnetica elettronica registrata nel software di analisi multiarmonica.
- Abilita l'elaborazione del segnale a doppio canale selezionando Usa due canali.
- Imposta il numero di armoniche elaborate a 30.
- Regolare il parametro fase/gradi delle microonde fino a ottenere componenti simmetriche di assorbimento e dispersione.
- Regolare il parametro fase/gradi di modulazione finché il Canale 1 non mostra un segnale di assorbimento puro e il Canale 2 un segnale di dispersione pura.
- Regolare il parametro di ampiezza/G di modulazione fino a ottenere la linea spettrale più stretta e non distorta.
- Imposta il parametro passa-basso/Hz per ridurre il rumore ad alta frequenza mantenendo la forma della linea spettrale.
- Seleziona la scheda Soppressione del rumore e clicca su Abilita soppressione rumore. Regolare il fattore di levigamento e i parametri di raffinamento della linea stretta finché il rapporto segnale-rumore non è migliorato senza distorsioni visibili della linea spettrale.
- Seleziona la scheda Artefatti e abilita la correzione Outlier e la correzione della larghezza di banda.
- Salva gli spettri in un formato utilizzato dal software di analisi dei dati per ulteriori analisi.
- Calcola l'intensità del segnale doppiamente integrata utilizzando l'integrazione numerica in un software di analisi dati adeguato.
NOTA: Quando si lavora con risonatori ad alta Q, la correzione della larghezza di banda migliora la ricostruzione delle componenti armoniche più elevate. La ricostruzione multiarmonica consente il recupero di spettri non distorti da dati grezzi sovramodulati e migliora il rapporto segnale/rumore nei campioni biologici a bassa intensità.
Risultati
Una panoramica schematica del flusso di lavoro sperimentale è presentata nella Figura 1. Gli embrioni di pesci zebra sono stati raccolti, trapiantati con cellule di melanoma B16F10, incubati in condizioni controllate e monitorati tramite microscopia a campo chiaro o fluorescenza prima dell'analisi della risonanza paramagnetica elettronica in banda X. Gli embrioni viventi venivano successivamente caricati in un capillare/supporto campione piatto per misurazioni della risonanza paramagnetica elettronica dell'organismo intero, permettendo la rilevazione non invasiva dei segnali radicali associati alla melanina. Dopo l'acquisizione della risonanza paramagnetica elettronica, gli embrioni venivano rilasciati in un nuovo mezzo E3, permettendo misurazioni longitudinali sugli stessi campioni biologici.
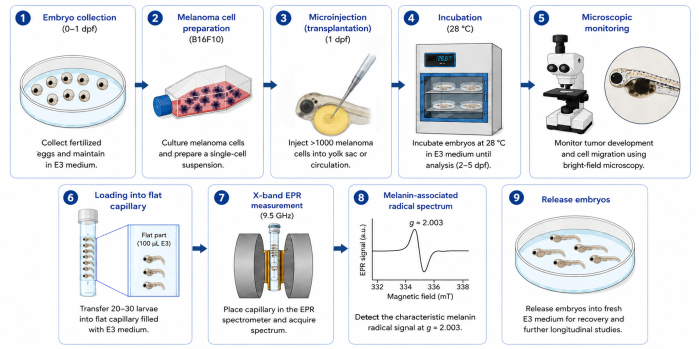
Figura 1: Panoramica grafica del flusso di lavoro sperimentale per il monitoraggio in vivo dei radicali associati alla melanina nei xenoinnesti di melanoma zebra utilizzando spettroscopia a risonanza paramagnetica elettronica (EPR) in banda X. Gli embrioni di pesce zebra vengono raccolti, trapiantati con cellule di melanoma, incubati e monitorati microscopicamente prima di caricarli in un capillare piatto su misura per le misurazioni EPR dell'organismo intero. Dopo la rilevazione del segnale radicale associato alla melanina caratteristico (g ≈ 2.003), le larve vengono rilasciate per misurazioni longitudinali di follow-up. Clicca qui per visualizzare una versione più grande di questa figura.
Per convalidare la specificità del metodo, sono state effettuate misurazioni su embrioni di pesce zebra di tipo selvatico (WT) e albino. Gli embrioni WT iniziano a sviluppare pigmentazione visibile a circa 27 hpf. Di conseguenza, gli spettri di risonanza paramagnetica elettronica acquisiti dagli embrioni WT mostrano un segnale caratteristico a linea singola centrato su g ≈ 2,003, coerente con i radicali semichinone derivati dall'eumelanina (ad esempio, DHI/DHICA). Al contrario, gli embrioni albini, che non hanno sintesi funzionale della melanina, non mostrano alcun segnale rilevabile di risonanza paramagnetica elettronica nella stessa regione spettrale nemmeno a 5 giorni dalla fecondazione (dpf). Ciò conferma che il segnale osservato proviene specificamente dai radicali melaninici e rappresenta una selettività del metodo di validazione del controllo negativo (Figura 2).
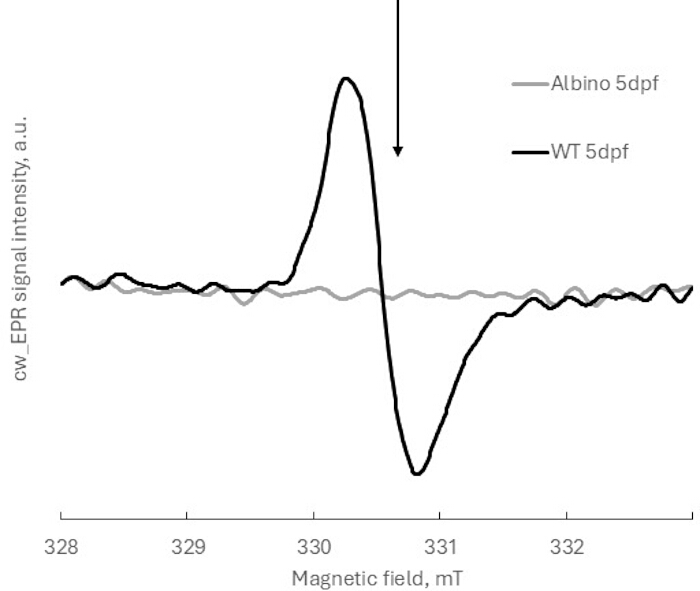
Figura 2: Spettri rappresentativi di risonanza paramagnetica elettronica in banda X di embrioni di tipo selvatico (WT) e albino di pesce zebra a 5dpf. La freccia indica la posizione di risonanza (g ≈ 2.003) del segnale radicale associato alla melanina dagli embrioni di pesce zebra a 5dpf WT. Clicca qui per visualizzare una versione più grande di questa figura.
Il metodo consente un monitoraggio quantitativo della formazione dei radicali melaninici durante lo sviluppo. Con il progredire della pigmentazione, si osserva un chiaro aumento dell'intensità del segnale di risonanza paramagnetica elettronica. Il confronto degli embrioni WT da 2 dpf a 5 dpf mostra un aumento sostanziale del segnale di risonanza elettronica paramagnetica doppiamente integrato normalizzato per embrione. La normalizzazione è stata effettuata dividendo le intensità grezze del segnale di risonanza paramagnetica degli elettroni per il numero di embrioni nel campione prima di calcolare il doppio integrale (Figura 3A).
L'analisi statistica è stata effettuata utilizzando il test di Kruskal–Wallis seguito dal test di confronto multiplo di Dunn. L'analisi su sei repliche biologiche indipendenti (ciascuna composta da 7–10 embrioni) ha mostrato differenze statisticamente significative nel segnale di risonanza paramagnetica elettronica normalizzato tra le fasi di sviluppo (p < 0,05), confermando la sensibilità del metodo.
Il doppio integrale degli spettri di risonanza paramagnetica degli elettroni è proporzionale al numero di spin elettronici non spariati. Pertanto, il suo aumento indica un incremento della popolazione di radicali associati alla melanina durante lo sviluppo. È importante sottolineare che questo aumento riflette probabilmente cambiamenti nell'equilibrio redox della melanina associati a melanogenesi progressiva, piuttosto che solo all'accumulo di pigmento.
La riproducibilità del protocollo è stata ulteriormente valutata confrontando spettri rappresentativi di risonanza paramagnetica elettronica acquisiti da campioni contenenti diversi numeri di embrioni (7 contro 10) nello stesso stadio di sviluppo (5 dpf). Come previsto, gli spettri grezzi hanno mostrato differenze nell'ampiezza del segnale proporzionali alla dimensione del campione (Figura 3B). Dopo la normalizzazione di ciascun spettro al numero di embrioni per campione, gli spettri si sovrappongono quasi completamente (Figura 3C) e la variabilità tra i lotti rimase sotto il 10%. Questi risultati evidenziano l'importanza della normalizzazione per embrione e confermano la robustezza del metodo per studi comparativi.
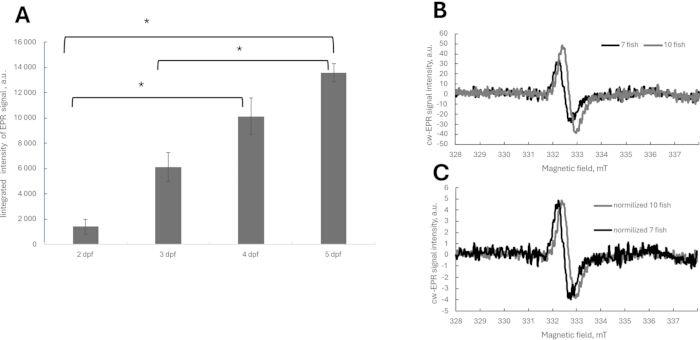
Figura 3: Monitoraggio quantitativo delle dinamiche di sviluppo associate ai radicali alla melanina e normalizzazione degli spettri di risonanza paramagnetica elettronica. (A) Segnale di risonanza paramagnetica elettronica in banda X doppiamente integrato ottenuto da embrioni di pesce zebra di tipo selvatico (WT) a 2, 3, 4 e 5 giorni dopo la fecondazione (dpf). L'intensità del segnale è stata normalizzata al numero di embrioni per campione. I dati rappresentano la media ± SD di sei replicazioni biologiche indipendenti, ciascuna composta da 7 a 10 embrioni. Differenze statisticamente significative - *p < 0,05. (B) Spettri rappresentativi di risonanza paramagnetica di elettroni grezzi acquisiti da embrioni di 5 dpf WT utilizzando campioni contenenti 7 e 10 embrioni. L'ampiezza del segnale aumenta proporzionalmente al numero di embrioni nel campione. (C) Gli stessi spettri di risonanza paramagnetica elettronica mostrati nel pannello B dopo la normalizzazione, cioè le intensità spettrali grezze, sono divise per il numero di embrioni nel capillare. Clicca qui per visualizzare una versione più grande di questa figura.
Per valutare se il protocollo dipende dal capillare piatto personalizzato utilizzato per le misurazioni in vivo del pesce zebra, è stata effettuata la rilevazione dei radicali associati alla melanina utilizzando sia il capillare piatto personalizzato sia un capillare standard commercialmente disponibile per l'analisi ex vivo . Gli spettri rappresentativi di risonanza paramagnetica elettronica acquisiti utilizzando entrambi i portacampioni hanno mostrato una forma lineare e una posizione di risonanza altamente comparabili (Figura 4A), indicando che una rilevazione affidabile dei radicali associati alla melanina non è limitata al design capillare personalizzato. I segnali dai capillari piatti, dopo la normalizzazione per embrione, erano 2 volte inferiori rispetto a quelli ricalcolati dal capillare standard.
Per valutare ulteriormente la flessibilità della manipolazione del campione, gli embrioni di pesce zebra sono stati misurati immediatamente dopo la raccolta e dopo il congelamento, seguiti da un'analisi ex vivo utilizzando capillari standard. Non sono state osservate differenze statisticamente significative tra campioni freschi e congelati in sei repliche biologiche indipendenti (Figura 4B). Questi risultati dimostrano che il protocollo può essere adattato ai contenitori di campioni per risonanza paramagnetica elettronica comunemente disponibili e supporta analisi ex vivo ritardata, aumentando significativamente l'accessibilità, la flessibilità e la riproducibilità del metodo in laboratori con diversi spettrometri di risonanza paramagnetica elettronica.
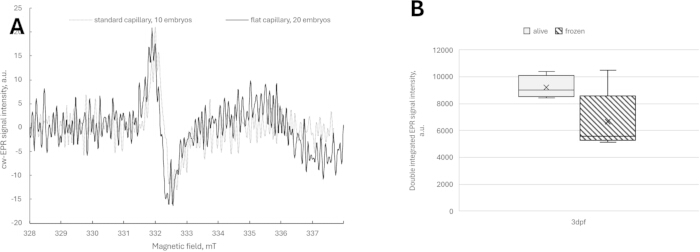
Figura 4: Compatibilità del protocollo. (A) Spettri grezzi di risonanza paramagnetica elettronica misurati in capillari standard e piatti di pesci zebra WT a 2dpf. (B) Confronto delle stesse repliche biologiche (pesci zebra WT 3 dpf) misurate vive e congelate in capillari standard. Clicca qui per visualizzare una versione più grande di questa figura.
Per determinare se il segnale di risonanza paramagnetica elettronica rilevato potesse essere attribuito direttamente ai radicali melaninici derivati dal melanoma, embrioni di pesce zebra albini sono stati utilizzati come fondo privo di melanina e iniettati con cellule di melanoma B16F10. Le misurazioni della risonanza paramagnetica elettronica sono state effettuate 4 giorni dopo la fecondazione (dpf) nelle stesse condizioni di acquisizione usate per embrioni di tipo selvatico. Come previsto, gli embrioni albini non iniettati non hanno mostrato alcun segnale rilevabile di risonanza paramagnetica elettronica nella regione spettrale specifica della melanina. È importante sottolineare che non è stato osservato alcun segnale rilevabile di risonanza paramagnetica elettronica associato alla melanina negli embrioni albini con cellule B16F10 iniettate (Figura 5A), nonostante il successo dell'ingrimpianto cellulare confermato dalla microscopia luminosa (Figura 5B).
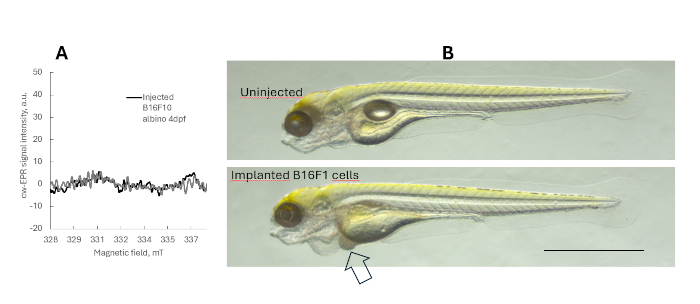
Figura 5: Valutazione della rilevazione di radicali associati alla melanina derivati direttamente dal melanoma negli xenoinnesti di B16F10 di pesce zebra albino. (A) Segnale di risonanza paramagnetica elettronica associata alla melanina nelle misurazioni di xenoinnesti albini albino e albino B16F10 a 4df, misurato con uno spettrometro di risonanza paramagnetica elettronica in banda X. Sono stati utilizzati tre repliche biologiche di 10 embrioni ciascuno. (B) Immagine in campo chiaro di 4 dpf albini e xenoinnesto albino con B16F10 tre giorni dopo l'impianto delle cellule tumorali. Clicca qui per visualizzare una versione più grande di questa figura.
Questi risultati indicano che, nelle attuali condizioni sperimentali, il numero di cellule di melanoma iniettate è inferiore alla soglia di rilevamento diretto della risonanza paramagnetica elettronica in banda X. Pertanto, il segnale associato alla melanina rilevato nelle misurazioni dell'organismo intero riflette principalmente cambiamenti globali nello stato redox della melanina dell'embrione/larva del pesce zebra, piuttosto che un segnale specifico del melanoma che origina esclusivamente dallo xenoinnesto.
Negli esperimenti di xenoinnesti, l'efficienza dell'innestamento e della crescita delle cellule del melanoma dipendeva fortemente dal sito di iniezione. L'iniezione nella circolazione (flusso sanguigno) ha portato a uno sviluppo tumorale più costante e ha permesso una rilevazione affidabile del segnale di risonanza paramagnetica elettronica associata alle cellule del melanoma. Al contrario, l'iniezione nel sacco vitellino ha portato a uno sviluppo embrionale compromesso e a una scarsa crescita tumorale, con conseguente segnale deboli o incoerenti. Pertanto, si raccomanda l'iniezione nel flusso sanguigno per ottenere risultati robusti e interpretabili (Figura 6).
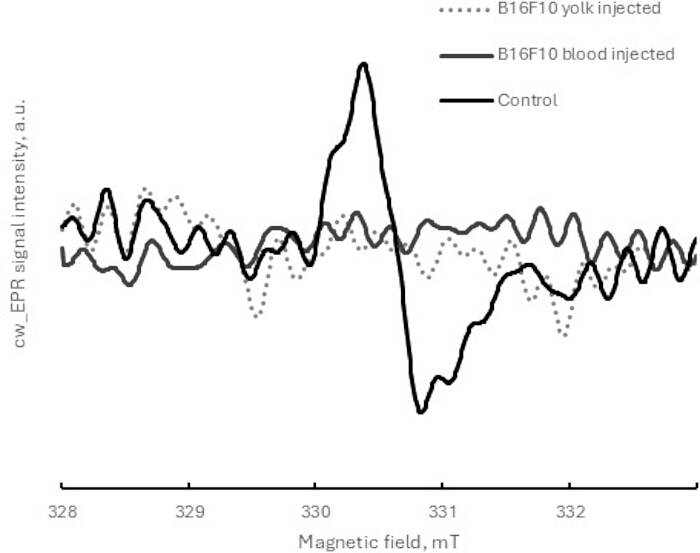
Figura 6: Effetto del sito di iniezione delle cellule di melanoma sullo sviluppo di embrioni e xenoinnesti di 2 dpf misurato con risonanza paramagnetica elettronica in banda X. Spettri rappresentativi di risonanza paramagnetica elettronica provenienti da embrioni di pesce zebra iniettati con cellule di melanoma B16F10 nel sacco vitellino o nella circolazione. Clicca qui per visualizzare una versione più grande di questa figura.
Per dimostrare ulteriormente l'applicabilità del metodo nei modelli di melanoma, abbiamo confrontato il segnale di risonanza paramagnetica elettronica ottenuto da embrioni di pesce zebra di tipo selvatico (WT) e da embrioni WT iniettati con cellule di melanoma B16F10 in diversi momenti di sviluppo.
Negli embrioni WT, il segnale di risonanza paramagnetica elettronica aumentava progressivamente nel tempo, riflettendo l'accumulo naturale di eumelanina durante lo sviluppo. Al contrario, gli embrioni portanti xenoinnesti B16F10 hanno mostrato dinamiche del segnale alterate, con un segnale di risonanza paramagnetica elettronica modificato rispetto a WT nei corrispondenti momenti temporali (Figura 7). Queste differenze probabilmente riflettono la modulazione indotta dal tumore della melanogenesi dell'ospite e delle condizioni redox sistemiche, piuttosto che la rilevazione diretta dei radicali melaninici derivati dal melanoma da isola. Poiché le cellule B16F10 producono principalmente eumelanina, non è stato rilevato alcun segnale di feomelanina.
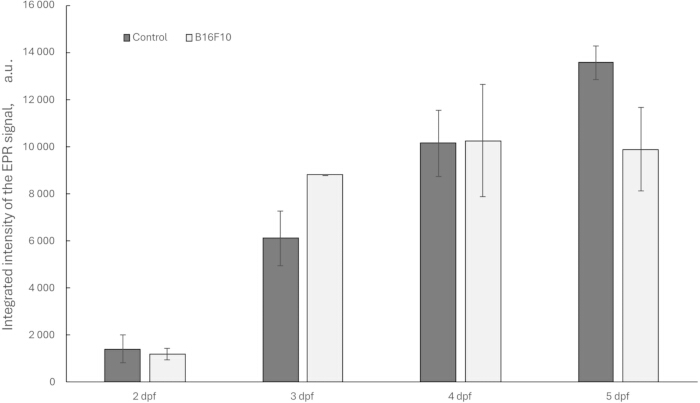
Figura 7: Confronto rappresentativo delle dinamiche del segnale EPR dell'organismo intero negli embrioni di pesce zebra portanti WT e WT B16F10. Segnale di risonanza paramagnetica elettronica a banda X doppiamente integrato ottenuto da pesci zebra di tipo selvatico (WT) di controllo e xenoinnesti WT B16F10 a 2, 3, 4 e 5 giorni dopo la feconditazione (dpf). L'intensità del segnale è stata normalizzata al numero di embrioni per campione. I dati rappresentano la media ± SD di sei repliche biologiche indipendenti (per il controllo) e tre per xenoinnesti di B16F10, ciascuno composto da 7–10 embrioni. Clicca qui per visualizzare una versione più grande di questa figura.
Nel complesso, il successo di questo protocollo è indicato da: (i) rilevamento di un chiaro segnale di risonanza paramagnetica elettronica a linea singola a g ≈ 2 negli embrioni pigmentati, (ii) assenza di segnale nei controlli albino, (iii) aumento dell'intensità del segnale con lo stadio di sviluppo e (iv) riproducibilità tra repliche biologiche dopo la normalizzazione.
Discussione
Questo studio presenta un protocollo robusto e sensibile per la rilevazione in vivo di radicali associati alla melanina negli embrioni di pesce zebra utilizzando spettroscopia di risonanza paramagnetica elettronica in banda X. Il metodo consente un monitoraggio non invasivo e senza marcature delle variazioni redox associate alla melanina durante la melanogenesi fisiologica, lo sviluppo di xenoinnesti di melanoma e l'intervento farmacologico. Combinando l'elevata sensibilità della spettroscopia a risonanza paramagnetica elettronica in banda X con la piattaforma xenoinnesta zebrafish, questo approccio estende le capacità analitiche degli attuali modelli di melanoma zebra al di là dell'imaging morfologico convenzionale, verso la caratterizzazione biochimica diretta delle specie di melanina redox-attiva. A differenza dell'imaging basato sulla fluorescenza, che fornisce principalmente informazioni strutturali e spaziali, la spettroscopia a risonanza paramagnetica elettronica rileva direttamente i radicali semichinone paramagnetici stabili, fornendo una comprensione funzionale complementare della biologia redox della melanina.
Il flusso di lavoro presentato ha ampia applicabilità nella ricerca sulla pigmentazione e sul melanoma. Le applicazioni potenziali includono la valutazione di terapie anti-melanoma, l'indagine dei cambiamenti indotti da farmaci nell'equilibrio redox, la valutazione di composti modulanti della melanogenesi come agenti depigmentanti o di risposta UV, e l'analisi delle interazioni tumore-ospite in vivo. Inoltre, l'integrazione con imaging a fluorescenza e altri saggi fenotipici può fornire una piattaforma multimodale che combina informazioni spaziali, morfologiche e biochimiche, aumentando così il valore predittivo dei modelli di pesce zebra nella ricerca preclinica e nello sviluppo terapeutico.
Diversi parametri sperimentali sono fondamentali per ottenere risultati affidabili. Negli esperimenti di xenoinnesti, l'iniezione nella circolazione ha fornito misurazioni di intrazione elettronica più coerenti e riproducibili della risonanza paramagnetica rispetto all'iniezione del sacco vitellino, che è in accordo con studiprecedenti 29,30. La scelta della temperatura di incubazione gioca un ruolo importante. Sebbene gli xenoinnesti di pesci zebra possano tipicamente essere mantenuti a 32 °C per favorire la cinetica cellularedei mammiferi 31, le linee di melanoma murino B16F10 impiegate in questo studio appaiono sufficientemente aggressive da dimostrare robuste capacità proliferative e migratorie a 28 °C. Poiché un ambiente a 32 °C potrebbe accelerare significativamente lo sviluppo del pesce zebra—potenzialmente portando a un comportamento alimentare indipendente prima del quinto giorno dopo la fecondazione—mantenere le larve a 28 °C garantirebbe che gli organismi rimangano all'interno delle fasi di svilupponon protette 32. Di conseguenza, questa scelta di temperatura potrebbe consentire l'osservazione efficace della progressione e della metastasi tumorale, rimanendo al contempo conforme alle normative sul benessere animale che proteggono le larve una volta raggiunta la fase di alimentazione indipendente. Un altro punto critico è che una normalizzazione accurata del numero di embrioni e una fase di sviluppo coerente sono essenziali per minimizzare la variabilità biologica. Segnali deboli o incoerenti possono derivare da pigmentazione insufficiente, basso carico tumorale, posizionamento subottimale del campione all'interno del risonatore o otturazione capillare incompleta. In tali casi, aumentare il numero di embrioni per campione, ottimizzare l'efficienza del trapianto e verificare la collocazione del campione all'interno del volume del risonatore attivo può migliorare la rilevazione del segnale. Sono necessari numeri più elevati di embrioni per le misurazioni in vivo in un capillare piatto a causa delle perdite dielettriche e del minore fattore di riempimento associato alle misurazioni su organismo intero nei campioni biologici acquoso. Tuttavia, questo metodo poteva essere utilizzato con capillari standard ex vivo. Questi risultati dimostrano che il protocollo è compatibile con le configurazioni di spettroscopia di risonanza paramagnetica elettronica in banda X comunemente disponibili e supporta l'analisi ex vivo ritardata, aumentando l'accessibilità e la riproducibilità tra laboratori che utilizzano diversi strumenti.
Nonostante i suoi vantaggi, il metodo presenta diverse limitazioni. Una considerazione biologica importante è che il segnale di risonanza paramagnetica elettronica rilevato riflette la frazione redox-attiva del polimero di melanina piuttosto che il contenuto totale di pigmentoda solo 15,21,33. Di conseguenza, le variazioni nell'intensità del segnale di risonanza paramagnetica elettronica dovrebbero essere interpretate come variazioni nell'equilibrio redox associato alla melanina, piuttosto che come un surrogato diretto dell'abbondanza di melanina. Gli esperimenti con xenoinnesti albini hanno inoltre dimostrato che, nelle attuali condizioni sperimentali, il numero di cellule di melanoma iniettate rimaneva al di sotto della soglia di rilevamento diretto della spettroscopia di risonanza paramagnetica elettronica in banda X. Pertanto, il segnale dell'organismo intero rilevato nelle larve portanti xenoinnesti riflette principalmente cambiamenti globali nello stato redox associato alla melanina dell'ospite indotti dalle interazioni tumore-ospite, piuttosto che dal segnale specifico del melanoma originato esclusivamente dallo xenoinnesto. È importante sottolineare che il microambiente del pesce zebra introduce gradienti dinamici di ossigeno, interazioni metaboliche e condizioni di stress ossidativo che possono inoltre modulare in vivo le popolazioni di radicali melaninici 19,20. Nelle applicazioni con xenoinnesti, il metodo è attualmente limitato a modelli di melanoma altamente pigmentati, poiché è necessaria una concentrazione sufficiente di melanina per una rilevazione affidabile del segnale. I tumori amelanotici o debolmente pigmentati potrebbero non produrre segnalirilevabili 27. Inoltre, le linee cellulari del melanoma utilizzate in questo studio (B16F10) producono prevalentemente eumelanina, risultando in una singola linea di risonanza paramagnetica elettronica. Nei modelli con contributo significativo di feomelanina, la sovrapposizione spettrale puòverificarsi 13. In tali casi, sarebbe necessaria una simulazione spettrale avanzata e una deconvoluzione per distinguere tra segnali di eumelanina e feomelanina.
Tuttavia, il flusso di lavoro presentato offre un ampio potenziale per studiare la biologia del melanoma, la modulazione indotta da farmaci della melanogenesi, lo stress ossidativo e le interazioni tumore-ospite in vivo. L'integrazione della spettroscopia di risonanza paramagnetica elettronica con imaging a fluorescenza, reporter genetici e altri saggi fenotipici può ulteriormente potenziare il valore predittivo dei modelli di pesce zebra nella ricerca preclinica sul melanoma e nello sviluppo terapeutico.
Dichiarazioni
L'autore Mikołaj Baranowski lavora presso Novilet, che produce componenti dello spettrometro utilizzato in questo studio (analizzatore multiarmonico). Gli autori rimanenti dichiarano di non avere interessi concorrenti.
Ringraziamenti
Il progetto "Un nuovo capillare e un metodo per determinare il radicale melaninico da utilizzare in studi preclinici di potenziali farmaci per il melanoma nel modello embrionale di Danio rerio " FENG.02.07-IP.05-0059/23 è stato realizzato nell'ambito del programma FENG POC della Fondazione per la Scienza Polacca, cofinanziato dall'Unione Europea nell'ambito dei Fondi Europei per l'Economia Intelligente 2021–2027 (FENG). Questa ricerca è stata sostenuta dall'Unione Europea nell'ambito del Programma di Operazioni per la Crescita Intelligente (numero di progetto POIR.01.02.00-00-0077/18).
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| 1.5 mL or 0.5 mL eppendorf tubes | Eppendorf | 0030120086, 0030121023 | Per il trasferimento di larve di zebrafish in capillari |
| 3 mL pipette Pasteur monouso | Medlab Products | 76-1303-2 | Per la selezione e il trasferimento di embrioni e larve |
| Spettrometro EPR X-band da banco MiniScope MS200 | Magnettech | Bruker.com | Registrazione spettri EPR |
| Cloruro di calcio, diidrato | Chempur | 363-118748706 | Per preparare il mezzo E3 |
| Lamelle per conteggio cellulare (es. EVE o EVE PLUS) | Nanoentek Inc | NC2200445 | Per il contatore cellulare |
| CellTracker Green | Thermo Fisher | C2925 | Colorante fluorescente per tracciare le cellule, per marcare le cellule |
| CM-DiI | Thermo Fisher | C7000 | Colorante fluorescente per tracciare le cellule, per marcare le cellule |
| Incubatore CO2 ICO240med | Memmert | N/A | Per la manutenzione delle cellule, impostato a 37°C, 5% CO2, ≥95% umidità |
| Contatore cellulare automatico Countess II | Invitrogen | AMQAX1000 | Per contare le cellule e la densità cellulare |
| Scatole di stoccaggio criogenico CryoKING | Biologix | BGX-ID81 | Per la conservazione di zebrafish con xenotrapianti |
| Mezzo di crioconservazione CM-1 | Cytion | #800150 | Per congelare le cellule tumorali |
| Mezzo di Dulbecco's Modified Eagle (DMEM), glucosio alto, glutammina, senza piruvato sodico | Gibco | #11965-092 | per la manutenzione della coltura cellulare |
| Mezzo E3 | In house | N/A | Per la conservazione degli embrioni/larve di zebrafish, preparato secondo Cold Spring Harb Protoc 2011, doi: 10.1101/pdb.rec066449 |
| Incubatrice per uova | Incubato | 10130024 | Per l'incubazione di embrioni/larve di zebrafish, impostato a 28–32°C |
| Software eSpect+ | Novilet | https://novilet.eu/products/espect/ | Per l'analizzatore multiarmonico |
| Siero fetale bovino (FBS) | Gibco | A5256701 | Integratore per DMEM |
| Forcipi fini, rivestiti in ceramica, Dumont #5, 11 cm | Dumont SA | 11252-50 | Per la decorionazione degli embrioni di zebrafish |
| Capillari di vetro piatti progettati per zebrafish (Numero di Applicazione: 21 736) | N/A | N/A | Per le misurazioni EPR degli embrioni di zebrafish |
| Aghi capillari in vetro | Harvard Apparatus | GB100-10 | Privi di filamenti, per microiniezioni |
| Capillari per ematocrito (pipette micrometriche disponibil BRAND BLAUBRAND), volume 50 e 100 μL | BRAND | 41121500 | Per le misurazioni EPR o per il trasferimento di larve di zebrafish in capillari piatti |
| Cloruro di magnesio, esaidrato | Chempur | 363-116120500 | Per preparare il mezzo E3 |
| Sistema di microiniezione con micromanipolatore FemtoJet | Eppendorf | EPE5252000021 | Per caricare le cellule in microaghi |
| Punta Microloader per il carico dell'ago | Eppendorf | #5242956003 | Per il sistema di microiniezione |
| Linea cellulare di melanoma murino B16-F1 | Cytion | CLS-400122 | Per xenotrapianti |
| Linea cellulare di melanoma murino B16-F10 | Cytion | 305157 | Per xenotrapianti |
| Analizzatore multiarmonico eSpect+ | Novilet | https://novilet.eu/products/espect/ | Per lo spettrometro EPR, per aumentare la sensibilità |
| Soluzione di penicillina-streptomicina | Sigma | P0781-50ml | Opzionale, integratore per DMEM per la coltura cellulare |
| Piatto Petri, 55 mm | Medlab Products | 51-0056-0A-NX | Per l'incubazione di uova, embrioni e larve di zebrafish |
| Soluzione tampone fosfato (PBS), priva di calcio e magnesio | Sigma | D8537-500ml | Per sciacquare le cellule |
| Cloruro di potassio | Chempur | 363-117397402 | Per preparare il mezzo E3 |
| Kit di sigillatura per capillari per ematocrito - Critoseal | Noxygen | NOX-A.3-VPC | Per le misurazioni EPR degli embrioni di zebrafish |
| Cloruro di sodio | Chempur | 363-117941206 | Per preparare il mezzo E3 |
| Contenitore statico per la conservazione di azoto liquido | Biobase | YDS-47-127-FS | Per la conservazione delle colture cellulari |
| Stereomicroscopio | Optatech | SK Series | Per la valutazione dello sviluppo degli embrioni di zebrafish |
| Tubi Falcon sterili da 15 mL | SPL Life Sciences | S50015 | Per la raccolta delle cellule (centrifugazione) |
| Piastrelle Petri sterili da 90 nm | Googlab Scientific | GP508 | Per le colture cellulari |
| Criovie sterili: CryoPure Tube 1.0 mL | Sarstedt | 72.377 | Per congelare le cellule |
| Pipette Pasteur sterili per colture tissutali (Corning Falcon Pipette Serologiche), volume 5, 10, 25 mL | Corning | 357543, 356551, 356535 | Per le colture cellulari |
| Tricaine (MS-222) | Sigma | 886-86-2 | Soluzione 4 g/L preparata di recente, per l'anestesia e l'eutanasia dei zebrafish |
| TrypLE Express (1×) o Tripsina-EDTA (0,05%) | Gibco | #12605-010 | Per la separazione delle cellule durante il passaggio |
Riferimenti
- Karkoszka, M., Rok, J., Wrześniok, D. Melanin biopolymers in pharmacology and medicine–skin pigmentation disorders, implications for drug action, adverse effects and therapy. Pharmaceuticals. 17 (4), 521(2024).
- Song, W., et al. Melanin: Insights into structure, analysis, and biological activities for future development. J Mater Chem B. 11 (32), 7528-7543 (2023).
- Terranova, M. L. Physiological roles of eumelanin- and melanogenesis-associated diseases: A look at the potentialities of engineered and microbial eumelanin in clinical practice. Bioengineering. 11 (8), 756(2024).
- Mostert, A. B. Melanin, the what, the why and the how: An introductory review for materials scientists interested in flexible and versatile polymers. Polymers. 13 (10), 1670(2021).
- Mostert, A. B. On the free radical redox chemistry of 5,6-dihydroxyindole. Chem Phys. 546, 111158(2021).
- Sealy, R. C. Radicals in melanin biochemistry. Methods Enzymol. 105, 479-483 (1984).
- Seagle, B. -L. L., et al. Time-Resolved Detection of Melanin Free Radicals Quenching Reactive Oxygen Species. J Am Chem Soc. 127 (32), 11220-11221 (2005).
- Qin, W., et al. Evidence for the generation of reactive oxygen species from hydroquinone and benzoquinone: Roles in arsenite oxidation. Chemosphere. 150, 71-78 (2016).
- Slominski, R. M., et al. Melanoma, melanin, and melanogenesis: The yin and yang relationship. Front Oncol. 12, 842496(2022).
- Becker, A. L., Indra, A. K. Oxidative stress in melanoma: Beneficial antioxidant and pro-oxidant therapeutic strategies. Cancers (Basel). 15 (11), 3038(2023).
- Cassar, S., et al. Use of zebrafish in drug discovery toxicology. Chem Res Toxicol. 33 (1), 95-118 (2020).
- Horzmann, K. A., Freeman, J. L. Making waves: New developments in toxicology with the zebrafish. Toxicol Sci. 163 (1), 5-12 (2018).
- Van Rooijen, E., Fazio, M., Zon, L. I. From fish bowl to bedside: The power of zebrafish to unravel melanoma pathogenesis and discover new therapeutics. Pigment Cell Melanoma Res. 30 (4), 402-412 (2017).
- Tao, J., et al. Apoptosis-sensing xenograft zebrafish tumor model for anticancer evaluation of redox-responsive cross-linked pluronic micelles. ACS Appl Mater Interfaces. 14 (35), 39775-39786 (2022).
- Hason, M., Bartůněk, P. Zebrafish models of cancer–new insights on modeling human cancer in a non-mammalian vertebrate. Genes (Basel). 10 (11), 935(2019).
- Hamre, K., et al. Systemic and strict regulation of the glutathione redox state in mitochondria and cytosol is needed for zebrafish ontogeny. Biochim Biophys Acta Gen Subj. 1868 (6), 130603(2024).
- Gauron, G., et al. Hydrogen peroxide (H2O2) controls axon pathfinding during zebrafish development. Dev Biol. 414 (2), 133-141 (2016).
- Cesareo, E., et al. An endogenous electron spin resonance (ESR) signal discriminates nevi from melanomas in human specimens: A step forward in its diagnostic application. PLoS One. 7 (11), e48849(2012).
- Nakagawa, K., Minakawa, S., Sawamura, D., Hara, H. Characterization of melanin radicals in paraffin-embedded malignant melanoma and nevus pigmentosus using X-band EPR and EPR imaging. Anal Sci. 33 (12), 1357-1361 (2017).
- Mignion, L., et al. Noninvasive detection of the endogenous free radical melanin in human skin melanomas using electron paramagnetic resonance (EPR). Free Radic Biol Med. 190, 226-233 (2022).
- Wehbi, M., Mignion, L., Joudiou, N., Harkemanne, E., Gallez, B. Highly sensitive detection of melanin in melanomas using multi-harmonic low frequency EPR. Mol Imaging Biol. 26 (3), 484-494 (2024).
- Chlewicki, W., Baranowski, M., Czechowski, T., Szczepanik, P. Performance of image reconstrucion algorithms in electron paramagnetic resonance tomography with multiharmonic analysis. 2017 IEEE 37th International Conference on Electronics and Nanotechnology (ELNANO), , 292-295 (2017).
- Beaumont, K. A., Mohana-Kumaran, N., Haass, N. K. Modeling melanoma in vitro and in vivo. Healthcare (Basel). 2 (1), 27-46 (2014).
- Marconi, A., Quadri, M., Saltari, A., Pincelli, C. Progress in melanoma modelling in vitro. Exp Dermatol. 27 (5), 578-586 (2018).
- Yin, J., et al. Zebrafish patient-derived xenograft model as a preclinical platform for uveal melanoma drug discovery. Pharmaceuticals. 16 (4), 598(2023).
- Fazio, M., Ablain, J., Chuan, Y., Langenau, D. M., Zon, L. I. Zebrafish patient avatars in cancer biology and precision cancer therapy. Nat Rev Cancer. 20 (5), 263-273 (2020).
- The Zebrafish Information Network (ZFIN) Community. Tricaine. , ZFIN. Available from: https://zfin.atlassian.net/wiki/spaces/prot/pages/362220023/TRICAINE (2026).
- Martinez-Lopez, M., Póvoa, V., Fior, R. Generation of zebrafish larval xenografts and tumor behavior analysis. J Vis Exp. (172), e62373(2021).
- Vargas-Patron, L. A., et al. Xenotransplantation of human glioblastoma in zebrafish larvae: In vivo imaging and proliferation assessment. Biol Open. 8 (5), bio043257(2019).
- Schueler, J., et al. Impact of the injection site on growth characteristics, phenotype and sensitivity towards cytarabine of twenty acute leukaemia patient-derived xenograft models. Cancers (Basel). 12 (5), 1349(2020).
- Cabezas-Sáinz, P., Pensado-López, A., Sáinz, B. Jr, Sánchez, L. Modeling cancer using zebrafish xenografts: Drawbacks for mimicking the human microenvironment. Cells. 9 (9), 1978(2020).
- Miller, A., et al. Temperature-dependence of early development of zebrafish and the consequences for laboratory use and animal welfare. PLoS One. 20 (12), e0340193(2025).
- Godechal, Q., Ghanem, G. E., Cook, M. G., Gallez, B. Electron paramagnetic resonance spectrometry and imaging in melanomas: Comparison between pigmented and nonpigmented human malignant melanomas. Mol Imaging. 12 (4), 218-223 (2013).
Ristampe e permessi
Questo articolo è stato pubblicato
Video in arrivo