Questo protocollo descrive la preparazione in laboratorio delle griglie di affinità dei monolayer lipidici Ni-NTA per la microscopia elettronica criogenica (crio-EM). Questa modifica della superficie della griglia tramite microscopia elettronica a trasmissione (TEM) cattura selettivamente complessi proteici solubili marcati con poliistidina, migliorando così la determinazione strutturale concentrando campioni diluiti e ancorando particelle lontano dall'interfaccia aria–acqua.
Articolo metodologico
Preparazione dettagliata delle griglie di affinità monolayer lipidici Ni-NTA per l'analisi strutturale crio-EM di complessi proteici solubili marcati con poliistidina
In questo articolo
Sommario
Abstract
La preparazione del campione criogenico rimane una sfida tecnica importante per la determinazione strutturale ad alta risoluzione dei complessi proteici. Le interazioni all'interfaccia aria-acqua possono indurre denaturazione proteica o orientamento preferito, limitando così la risoluzione raggiungibile. Inoltre, campioni diluiti o target a bassa abbondanza spesso mostrano una densità di particelle insufficiente, il che ostacola la raccolta efficiente dei dati. Le griglie di affinità basate sui lipidi forniscono una strategia efficace per affrontare queste limitazioni. Questo articolo presenta un protocollo passo dopo passo per preparare griglie di affinità dei monolayer lipidici Ni-NTA per l'analisi strutturale di complessi proteici solubili marcati con poliistidina. Le fasi principali del protocollo includono la preparazione di una miscela lipidica, la fusione della miscela lipidica sulla superficie di un serbatoio tampon, il trasferimento del monostrato lipidico risultante su griglie TEM, l'essiccazione opzionale e la conservazione opzionale delle griglie lipidiche per fino a 1 settimana, e la criogenia delle griglie lipidiche con il campione. L'implementazione con successo di questo protocollo produce crio-griglie contenenti un singolo strato di particelle ben disperse con maggiore densità di particelle rispetto alle griglie preparate senza un monostrato lipidico. La procedura può essere completata in poche ore in un laboratorio dotato di uno sturalavandini criogenici, una cappa chimica e strumenti standard comunemente utilizzati per la preparazione dei campioni criogenici. Combinando istruzioni scritte dettagliate con dimostrazioni video, questo lavoro mira a migliorare l'accessibilità, la riproducibilità e l'adozione più ampia delle griglie di affinità dei monolayer lipidici Ni-NTA all'interno della comunità crio-EM.
Introduzione
Le tecniche sperimentali per la determinazione della struttura delle proteine, tra cui la cristallografia a raggi X, la risonanza magnetica nucleare (NMR) e la microscopia elettronica criogenica (crio-EM), si basano tutte su un'attenta preparazione del campione. Nell'analisi a particella singola (SPA) crio-EM, la qualità del campione è spesso il fattore principale che limita la risoluzione della ricostruzione finale. Con i progressi tecnologici nei microscopi elettronici a crio-trasmissione (crio-TEM) e nei rivelatori di elettroni diretti a migliorare l'efficienza della raccolta dati e la risoluzione raggiungibile, la principale sfida nella crio-EM ad alta risoluzione si sposta sempre più dall'acquisizione dell'immagine alla preparazione e qualità delcampione 1,2,3,4,5,6,7.
La preparazione tradizionale della crio-griglia generalmente consiste nell'applicazione di alcuni microlitri di campione sulla superficie di una griglia di microscopia elettronica a trasmissione (TEM), la tamponamento della griglia con carta filtrante e l'immersione rapida in un criogeno, tipicamente etanolo liquido o una miscela propano-etano. Idealmente, la griglia criogenica risultante contiene un sottile ghiaccio vitreo con particelle monodisperse. In pratica, raggiungere questo risultato è spesso difficile e può richiedere più turni di ottimizzazione per generare griglie adatte alla determinazione strutturale ad alta risoluzione. I problemi comuni includono la denaturazione delle proteine all'interfaccia aria-acqua (AWI)8,9, l'orientamentopreferito 10 e la bassa densità particellare all'interno dello strato dighiaccio 11,12. Quest'ultima sfida è particolarmente significativa per complessi proteici altamente dinamici, di breve durata o difficili da isolare a concentrazioni micromolari. Sono state sviluppate diverse strategie per affrontare queste limitazioni, tra cui ossido digrafene 13,carbonio 14 ultrasnello continuo e nanoperle rivestite di streptavidina per catturare bersaglibiotinilati 15.
Un approccio alternativo prevede la modifica delle griglie TEM con superfici di affinità progettate per legare selettivamente le molecole bersaglio. Queste griglie di affinità possono concentrare particelle sulla superficie della griglia riducendo l'esposizione all'AWI, migliorando così la distribuzione delle particelle e preservando l'integrità strutturale. Inoltre, l'effetto concentrazione può arricchire complessi macromolecolari a bassa abbondanza da campioni diluiti o eterogenei.
Nell'ultimo decennio, sono state sviluppate diverse strategie di griglia di affinità per la SPA cryo-EM. Questi approcci possono essere categorizzati in base alla modifica della superficie della griglia TEM e alla corrispondente strategia di funzionalizzazione. Le superfici comunemente utilizzate includono monostrati lipidici di grafene14 o ossido di grafene 13,16 amorfo ultrasottili o nanotubilipidici 17,18 e cristalli bidimensionali di streptavidina coltivati su monostratilipidici 19,20. Tra questi approcci, le griglie bidimensionali di affinità per streptavidina sono state particolarmente efficaci nel consentire la determinazione della struttura proteica ad altarisoluzione 21,22,23,24,25,26,27,28,29 . Metodologie correlate includono l'uso di streptavidina monodispersa a particella singola legata a monostrati lipidici, recentemente applicata per determinare la struttura del complesso di mantenimento dei mini-cromosomi legato al DNA a doppio filamento (dsDNA)30.
Nonostante questi progressi, i metodi accessibili e riproducibili per la preparazione della griglia di affinità rimangono limitati. Ogni tecnica ha requisiti unici per il legame selettivo del bersaglio, e nessuno è disponibile commercialmente, richiedendo protocolli di fabbricazione specializzati e modifiche chimiche. Questi passaggi aggiuntivi possono aumentare notevolmente la complessità tecnica dei flussi di lavoro CRYO-EM SPA. Di conseguenza, questo articolo presenta un protocollo dettagliato passo dopo passo volto a facilitare la preparazione della tecnologia della griglia di affinità descritta qui. Il protocollo Ni-NTA di griglia di affinità dei monostrati lipidici è stato implementato regolarmenteda 17 anni e può essere facilmente adottato per studi strutturali crio-EM di complessi proteici solubili marcati con poliistidina che coprono un'ampia gamma di peso molecolare (97–470 kDa) (Figura 1). Il metodo è compatibile con concentrazioni proteiche che vanno da 0,05 a 0,2 mg/mL in tamponi privi di detersivo.
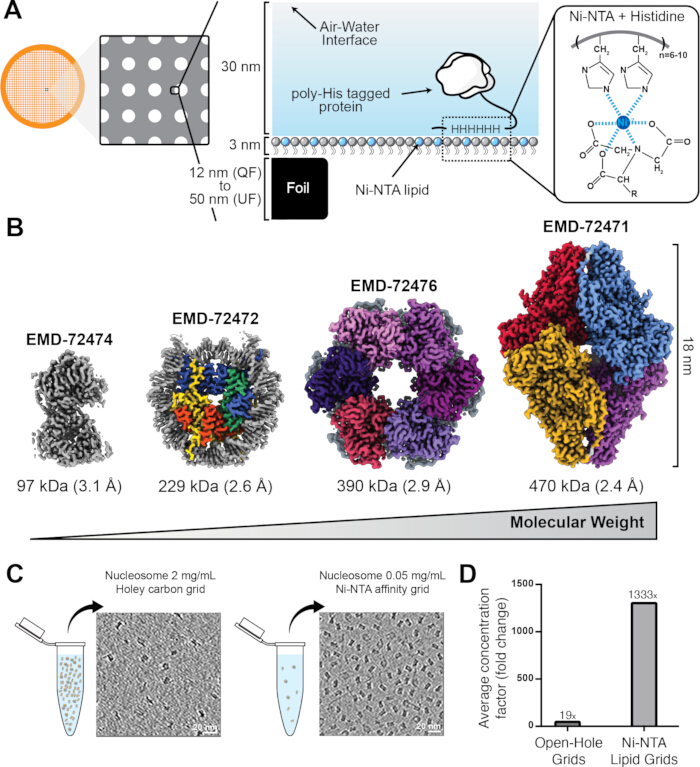
Figura 1: Panoramica del design della griglia di affinità lipidica Ni-NTA. (A) Schema di una criogenica griglia lipidica Ni-NTA al 20%. La griglia criogenica è mostrata a sinistra, con una vista trasversale del monostrato lipidico che illustra le dimensioni del film di carbonio, del monostrato lipidico, del ghiaccio vitreo e delle particelle attaccate (al centro). L'interazione tra le catene laterali di istidina e i lipidi Ni-NTA è rappresentata a destra. (B) Esempi di proteine marcate con poliistidine risolti utilizzando griglie di affinità lipidica. Le mappe vengono disegnate in scala l'una rispetto all'altra, con peso molecolare, dimensione, risoluzione e numero di accessione EMDB indicati. (C) Fette tomografiche rappresentative di nucleosomi marcati con poliistidina preparate utilizzando griglie criogeniche non lipidiche a 2 mg/mL (destra) e griglie criogeniche di affinità lipidica Ni-NTA a 0,05 mg/mL (sinistra). (D) Fattore di concentrazione medio delle griglie criogeniche non lipidiche rispetto alle griglie criogeniche di affinità lipidica Ni-NTA, dimostrando la capacità del film lipidico di concentrare proteine marcate con poliistidine lontano dall'interfaccia aria-acqua (AWI). Alcune parti di questa figura sono state adattate dalle Figure 1A, B e 2A,B di Skrajna et al.17 con il permesso di Elsevier. Clicca qui per visualizzare una versione più grande di questa figura.
Protocollo
Questo studio non ha coinvolto partecipanti umani, dati clinici o animali vivi. I reagenti e le attrezzature utilizzate sono elencati nella Tabella dei Materiali.
NOTA: DOPC si riferisce a 18:1 (Δ9-cis) PC. Il lipido Ni-NTA si riferisce a 18:1 DGS-NTA(Ni). Il tampone a basso contenuto di sale si riferisce a 10 mM di HEPES (pH 7,4) con 50 mM di NaCl. Il tampone di diluizione si riferisce a 20 mM HEPES (pH 7,4) con 150 mM di NaCl.
1. Lavaggio di vetri riutilizzabili (~30 min)
- Raccogli due piccole piastre di Petri, due piccoli copricepiatti per piastre di Petri, una fiaschetta volumetrica da 25 mL con tappo e una fiaschetta volumetrica da 1 mL con tappo. Metti gli oggetti vicino al lavandino.
- Sciogli una polvere di tensioativo anionico in acqua tiepida del rubinetto in una vasca di plastica da 11,4 L.
- Immergi delicatamente la vetreria nella soluzione di tensioattivo.
- Indossando i guanti in nitrilo, strofina tutte le superfici accessibili con una spazzola per oggetti da laboratorio. Risciacqua accuratamente con acqua ultrapura.
- Rimuovi l'acqua residua battendo delicatamente i bicchieri sui tovaglioli di carta.
- Asciuga la vetrina con un phon finché non rimane più umidità visibile.
NOTA: Conserva la vetrina lavata in un ambiente pulito e privo di polvere.
2. Equilibrio dei lipidi alla temperatura ambiente (1–4 h)
NOTA: Se le scorte lipidiche erano già preparate, saltare questa sezione.
- Metti una fiala sigillata di 25 mg di polvere DOPC e una fiala sigillata di 1 mg di polvere lipidica Ni-NTA in una cappa chimica.
- Bilancia i lipidi alla temperatura ambiente per almeno 1 ora.
3. Allestimento della stazione di pulizia dei solventi (~10 min)
ATTENZIONE: Il cloroformio è un liquido pericoloso e volatile che agisce come depressore del sistema nervoso centrale e irritante per la pelle, gli occhi e le vie respiratorie. Eseguire tutti i passaggi che coinvolgono più di 100 μL di cloroformio in una cappa chimica indossando l'attrezzatura di protezione individuale (DPI) appropriata, inclusi guanti, camice da laboratorio e protezione oculare. Rimuovere e gettare i guanti in nitrile contaminati entro 1 minuto dall'esposizione, poiché il cloroformio penetra rapidamente nel nitrile. Non combinare i rifiuti del cloroformio con altri flussi di rifiuti chimici.
- Raccogli il 99,8% di cloroformio, una bottiglia di rifiuti di cloroformio con coperchio, il 99,5% etanolo, una bottiglia di rifiuti di etanolo con coperchio, un contenitore per oggetti taglienti, due piccole piastre di Petri, due piccole coperture per piastre di Petri, una grande piastra di Petri contenente carta filtrante di grado 1, tre o più 1–2 cm di film auto-sigillante e carta assorbente. Disporre tutti i materiali nella cappa chimica (Figura 2).
- Risciacqua le piastre di Petri con 20–30 mL di cloroformio. Getta il risciacquo nella bottiglia di rifiuti appropriata. Ripeti con etanolo. Asciuga i piatti all'aria.
- Riempi una piccola piastra di Petri con cloroformio e l'altra con etanolo. Copri entrambi i piatti per minimizzare l'evaporazione.
- Riempi le piastre di Petri durante l'esperimento, soprattutto quando il cloroformio diventa visibilmente torbido a causa dei contaminanti.
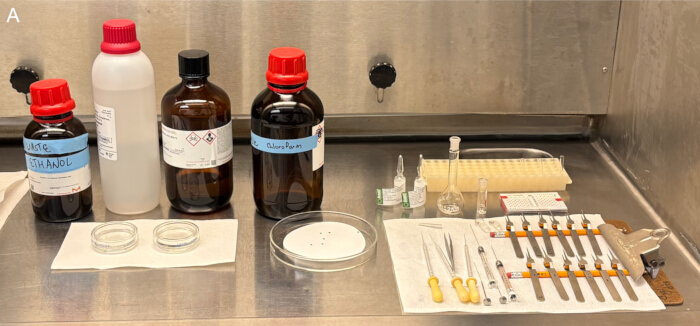
Figura 2: Cappa chimica contenente utensili e reagenti per la preparazione della miscela lipidica. Immagine della stazione di pulizia con solventi e degli attrezzi puliti, vetri e griglie TEM. Bottiglie da sinistra a destra: rifiuti di etanolo, etanolo, cloroformio e rifiuti di cloroformio. Piastre di Petri da sinistra a destra: etanolo, cloroformio e griglie TEM su carta filtrante. Altri oggetti da sinistra a destra e dall'alto verso il basso includono tubetti di coltura in un rack per tubi, fiale lipidiche, fiaschette volumetriche con tappi, griglie TEM conservate, pipette di vetro con bulbi, pinzette a punta fine, siringhe di vetro e pinzette anticapillari con distanziatori (tronchi a matita) inseriti. Clicca qui per visualizzare una versione più grande di questa figura.
4. Utensili per la pulizia, vetri e griglie TEM con solventi (~20 min)
- Raccogli una coppia di pinzette a punta fine, dodici coppie di pinzette anticapillari autochiusibili, tre pipette di vetro, una siringa di vetro da 25 μL, una siringa da 2,5 μL, tre tubetti per la coltura in un rack per tubi, una fiaschetta volumetrica da 25 mL con tappo, una fiaschetta volumetrica da 1 mL con tappo, venticinque a venticinque fiale di vetro da 3,7 mL con tappi fenolici, e dodici griglie TEM in rete dorata con fori e carbonio. Posizionare i materiali vicino alla stazione di pulizia dei solventi nella cappa chimica.
NOTA: Tieni inserito uno distanziatore, come un tronco a matita, in ogni paio di pinzette anticapillari quando non viene usato per prevenire malformazioni e disallineamenti della punta. Butta via le pinzette piegate. - Pulisci la pinzetta immergendo le punte nel cloroformio più volte. Ripeti con etanolo. Asciugare all'aria.
- Pulisci le pipette di vetro aspirando e dispensando cloroformio più volte. Ripeti con etanolo. Asciugare all'aria.
- Pulisci le siringhe aspirando e dispensando cloroformio finché lo sturalavandini non si muove in modo fluido. Ripeti con etanolo. Rimuovi lo sturalavandini dalla canna della siringa e asciuga all'aria.
- Pulisci i tubetti di coltura aggiungendo e rimuovendo il cloroformio più volte con una pipetta di vetro. Ripeti con etanolo. Rimuovi il liquido residuo invertendo i tubi e tamburellandoli delicatamente su carta assorbente. Asciugare all'aria.
- Pulisci le fiaschette volumetriche aggiungendo cloroformio con una pipetta di vetro, tapponando la fiaschetta e agitando delicatamente per risciacquare le superfici interne. Getta il solvente nella bottiglia di scarto. Ripeti con etanolo. Lascia le fiaschette senza tappi e asciutte all'aria.
- Pulisci le fiale aggiungendo cloroformio con una pipetta di vetro, tapponendo la fiala e agitando delicatamente per risciacquare le superfici interne. Getta il solvente. Ripeti con etanolo. Lascia le fiale senza tappi e asciutta all'aria.
- Pulisci le griglie TEM afferrando il bordo esterno rinforzato con pinzette a punta fine, evitando però danni alla pellicola di carbonio. Immergi le griglie verticalmente nel cloroformio tre volte, poi tre volte nell'etanolo.
- Metti la griglia TEM con il lato carbone rivolto sulla carta filtrante e lasciali asciugare all'aria.
5. Raffreddamento del tampone di lancio (>20 min)
- Metti almeno 50 mL di tampone a basso contenuto di sale sul ghiaccio.
- Raffredda il buffer per almeno 20 minuti.
6. Preparazione di soluzioni separate di cloroformio da 1 mg/mL di DOPC e lipidi Ni-NTA (~20 min)
NOTA: Se le scorte lipidiche erano già preparate, saltare alla Sezione 8, "Preparazione della miscela lipidica 80% DOPC/20% Ni-NTA."
- Assicurati che le polveri lipidiche DOPC e Ni-NTA si siano equilibrate a temperatura ambiente.
ATTENZIONE: Rasoii e vetri rotti sono pericoli taglienti. Fai attenzione quando usi un rasoio e rompi ampole di vetro. - Per migliorare la visibilità della polvere DOPC, rimuovere l'etichetta dell'ampola tagliandola con un rasoio e staccandola. Ripeti per l'ampolla lipidica Ni-NTA.
- Con entrambe le mani e lavorando sul contenitore per oggetti taglienti, apri con cura l'ampolla contenente 25 mg di DOPC. Getta il collo dell'ampolla nel contenitore per gli oggetti taglienti. Posiziona il corpo dell'ampolla vicino al piatto del cloroformio. Ripeti per l'ampola lipidica Ni-NTA da 1 mg.
- Spostate con cura frammenti di vetro da guanti e superfici di lavoro nel contenitore per oggetti taglienti. Sostituisci immediatamente i guanti danneggiati.
- Etichetta una pipetta di vetro per il cloroformio, una per DOPC e una per i lipidi di Ni-NTA.
- Riempi una piccola piastra di Petri pulita con solvente con cloroformio.
- Usa la pipetta DOPC per trasferire 2–5 mL di cloroformio nell'ampola DOPC. Aspira e dispensa la soluzione finché il lipido sul fondo e sui lati non si dissolve completamente.
- Trasferire la soluzione DOPC nella fiaschetta volumetrica da 25 mL utilizzando la pipetta DOPC. Porta la fiaschetta a un volume finale di 25 mL con cloroformio usando la pipetta al cloroformio.
- Getta la fiala DOPC nel contenitore per oggetti taglienti.
- Trasferire meno di 1 mL di cloroformio nella fiaschetta volumetrica da 1 mL utilizzando la pipetta al cloroformio.
- Usa la pipetta lipidica Ni-NTA per trasferire il cloroformio dalla fiaschetta volumetrica da 1 mL all'ampola lipidica Ni-NTA. Aspira e dispensa la soluzione finché il lipido sul fondo e sui lati non si dissolve completamente.
- Trasferire la soluzione lipidica Ni-NTA nella fiaschetta volumetrica da 1 mL utilizzando la pipetta lipidica Ni-NTA. Porti la fiaschetta a un volume finale di 1 mL con cloroformio usando la pipetta al cloroformio.
- Getta l'ampolla lipidica Ni-NTA nel contenitore per i taglienti.
7. Preparazione di piccole aliquote di lipidi per la conservazione a lungo termine (~15 min)
- Usa la pipetta DOPC per aliquotare 1–2 mL di calcio DOPC in diverse fiale di vetro. Tappa e etichetta le fiale.
- Usa la pipetta lipidica Ni-NTA per aliquotare 0,2–0,5 mL di stock lipidico Ni-NTA in diverse fiale di vetro. Tappa e etichetta le fiale.
ATTENZIONE: L'azoto liquido (LN2) è un criogeno che può inizialmente produrre un breve effetto Leidenfrost prima di provocare dolore intenso, intorpidimento, vesciche e congelamento. La gravità delle lesioni aumenta con la durata dell'esposizione e può progredire da ustioni di primo fino a quarto grado in meno di 1 minuto. Gli oggetti raffreddati da LN2 possono causare lesioni simili. Fai attenzione alla conduzione termica tramite strumenti per campioni criogenici mentre li manipolassi in LN2. Indossa una visiera per proteggerti dagli schizzi. Non immergere le mani nel LN2, nemmeno indossando guanti crioprotettivi, perché il LN2 intrappolato potrebbe rimanere a contatto con la pelle. Non confondere il vapore acqueo atmosferico condensato con il vapore LN2. LN2 si espande di circa il 700× di volume quando viene trasmesso in un asfissante gassoso invisibile e inodore. Assicurati che tutti i serbatoi e i dewar di LN2 siano ben ventilati per prevenire l'accumulo di pressione. Usa LN2 solo in aree ben ventilate ed evapora LN2 non utilizzato in una cappa chimica. - Riempi un piccolo dewar criogeno con LN2.
- Rimuovi il tappo da una fiala aliquota, versa vapore di azoto nella fiala, ricappa la fiala e sigillala con un film autosigillante. Ripeti per tutte le fiale di aliquota.
NOTA: Conservare le scorte di lipidi aliquote a −20 °C per un massimo di 3 mesi.
8. Preparazione della miscela di lipidi 80% DOPC/20% Ni-NTA (~15 min)
- Assicurarsi che le aliquote lipidiche del DOPC e del Ni-NTA siano equilibrate alla temperatura ambiente.
- Etichetta un tubo di vetro per la coltura per DOPC, uno per i lipidi di Ni-NTA e uno per la miscela lipidica.
- Utilizzare la pipetta DOPC per trasferire 50–100 μL (2–3 gocce) di materiale DOPC nel tubo di coltura DOPC. Sigilla il tubo con pellicola auto-sigillante.
- Utilizzare la pipetta lipidica Ni-NTA per trasferire 20–50 μL (1–2 gocce) di stock lipidico Ni-NTA nel tubo della coltura lipidica Ni-NTA. Sigilla il tubo con pellicola auto-sigillante.
- Usa la siringa da 25 μL per prelevare 20 μL di DOPC aliquota nella canna della siringa. Conferma che la botte non contenga bolle e riestrai il campione se necessario. Dispensa l'aliquota nel tubo della miscela lipidica. Ripeti una volta per un volume totale di 40 μL.
- Pulisci la siringa con cloroformio seguito da etanolo.
- Usa la siringa per prelevare 10 μL di aliquota lipidica Ni-NTA. Conferma che la botte non contenga bolle e riestrai il campione se necessario. Erogare l'aliquota nel tubo della miscela lipidica, portando il volume totale finale a 50 μL.
- Mescola i lipidi aspirando e dispensando la soluzione più volte. Sigilla il tubo con pellicola auto-sigillante.
- Pulisci la siringa con cloroformio seguito da etanolo. Asciugare all'aria.
9. Fusione di un monostrato lipidico e trasferimento sulle griglie TEM (~10 min)
- Assicurati che il tampone a basso contenuto di sale sia raffreddato.
- Raccogli una piccola lampada LED, il tampone raffreddato a basso contenuto di sale, una bottiglia tampone di scarti con coperchio, etanolo per reagenti, una bottiglia di rifiuti di etanolo, una bottiglia di olio di ricino con contagocce, la miscela lipidica, una piccola piastra di Petri, una siringa da 2,5 μL, dodici paia di pinzette anticapillari, dodici griglie TEM e fazzoletti a basso lanugine. Disposizionete i materiali su un piano nero ben illuminato (Figura 3).
- Orienta il braccio piatto di ogni coppia di pinzette anticapillari verso il lato carbonio di una griglia TEM. Fissa la griglia lungo il bordo esterno rinforzato. Ripeti per tutte le griglie.
- Riempi la piccola piastra di Petri fino all'orlo con un tampone raffreddato a basso contenuto di sale (Figura 4A). Posizionare una goccia di olio di ricino al centro della superficie tampone (Figura 4B, 4C).
NOTA: Procedere rapidamente attraverso i seguenti passaggi perché il monostrato lipidico si allontana gradualmente dal centro dell'olio di ricino nel tempo, riducendo l'efficienza di trasferimento. Le fluttuazioni di temperatura e le vibrazioni accelerano questo processo. - Usa la siringa da 2,5 μL per prelevare 1 μL di miscela lipidica. Abbassa la punta dell'ago della siringa al centro dell'olio di ricino. Erogare la miscela lipidica come una goccia appesa alla smussatura appena sopra la superficie, poi toccare delicatamente la goccia con l'olio di ricino (Figura 4D).
- Usa la lampada LED per confermare la formazione di un cerchio lipidico piatto di 2–3 cm di diametro circondato da un anello di olio di ricino (Figura 4E). Se questa morfologia non viene osservata, si resetta la piastra di colata scartando il tampone, risciacquando la piastra con etanolo reattivo, asciugandola con tessuti a basso contenuto di lanugge e riapplicando una miscela di tampone a basso contenuto di sale, olio di ricino e lipidi.
NOTA: L'eccesso di olio di ricino ostacola la formazione del monostrato lipidico, mentre l'insufficiente olio di ricino non contiene il monostrato. La fluidità lipidica dipende dalla temperatura. Se il tampone è troppo freddo, il lipide non si diffonde in un monostrato. Se il tampone è troppo caldo, i lipidi e l'olio di ricino migrano verso il bordo della piastra e collassono. Versa un tampone raffreddato in una piastra di Petri a temperatura ambiente per ottenere una diffusione ottimale dei lipidi. Ripristina la piastra di lancio secondo necessità dopo ogni trasferimento della griglia. Assicurati che la piastra di getto sia completamente priva di olio prima di aggiungere un nuovo tampone. - Trasferire il monostrato lipidico su una griglia TEM abbassando la griglia TEM fissata al centro della colla lipidica con il lato in carbonio rivolto verso il basso. Tocca delicatamente l'intera superficie del carbonio con il monostrato lipidico senza immergere o rilasciare la griglia (Figura 4F).
- Ispezionare la griglia lipidica per confermare la copertura completa del liquido e l'assenza di olio di ricino (Figura 5). Scartate le griglie oleose.
- Ripeti la procedura di trasferimento per tutte le griglie TEM.
NOTA: Le griglie lipidiche serrate possono asciugarsi entro 5–10 minuti. Le griglie lipidiche possono rimanere bloccate sul piano di lavoro durante la notte prima della reidratazione. In alternativa, le griglie lipidiche essiccate possono essere inserite in una scatola a griglia e conservate in un essiccatore a temperatura ambiente per fino a 1 settimana prima di essere riprese e reidratate.
CRITICO: Procedere solo se il congelamento a immersione si verifica entro 2 ore. Altrimenti, ritardare i passaggi rimanenti.
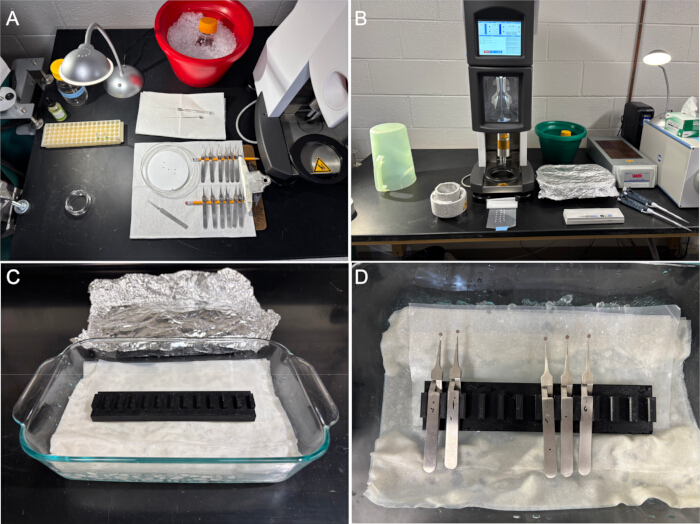
Figura 3: Configurazione del banco per la fusione di monostrati lipidici e il congelamento a immersione. (A) Gli elementi mostrati da sinistra a destra e dall'alto verso il basso includono una bottiglia contagocce per olio di ricino, una bottiglia di scarti tamponi, una lampada LED, un tampone raffreddato a basso contenuto di sale su ghiaccio, una rastrelliera per tubi contenente aliquote lipidiche e miscela lipidica, siringa di vetro da 2,5 μL, piastra di Petri vuota, piastra di Petri con griglie TEM su carta filtrante, pinzette a punta fine e pinzette anti-capillari con distanziatori inseriti. (B) Gli oggetti mostrati includono un cryo-plunger raffreddato e umidificato, una pentola crio-pistone assemblata, un secchio di ghiaccio contenente tampone diluizione e campione, una camera di umidità rivestita con carta stagnola, un film sigillato e auto-sigillante con linee di gocce tampone di diluizione, pinzette crio-sturalavandi e micropipette. (C) Camera di umidità sul piano contenente ghiaccio, asciugamani di carta bagnati, film auto-sigillante e un supporto per pinzette da banco da banco. (D) Griglie lipidiche bloccate da pinzette anti-capillari all'interno della camera di umidità sul piano di lavoro. Clicca qui per visualizzare una versione più grande di questa figura.
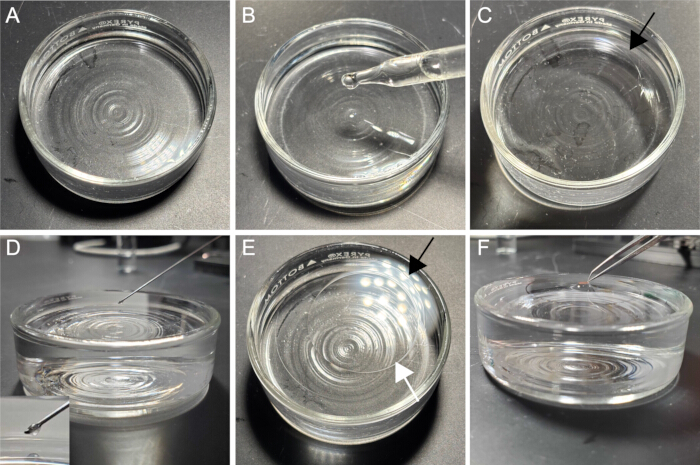
Figura 4: Fusione di un monostrato lipidico e trasferimento su griglie TEM. (A) Vaso di lancio riempito con tampone a basso contenuto di sale. (B) Distribuzione di 1 goccia di olio di ricino al piatto di colata. (C) Cerchio di olio di ricino che galleggia sulla superficie tampone; La freccia nera indica il confine dell'olio di ricino. (D) Ago della siringa centrato sopra l'olio di ricino con il bisello rivolto verso il basso; 1 μL di goccia di miscela lipidica sospesa dalla punta dell'ago. (E) Miscela lipidica diffusa all'interno di un anello di olio di ricino; La freccia nera indica il confine dell'olio di ricino, mentre la freccia bianca indica il confine del monostrato lipidico. (F) Trasferimento del monostrato lipidico sul lato carbonio di una griglia TEM. Clicca qui per visualizzare una versione più grande di questa figura.
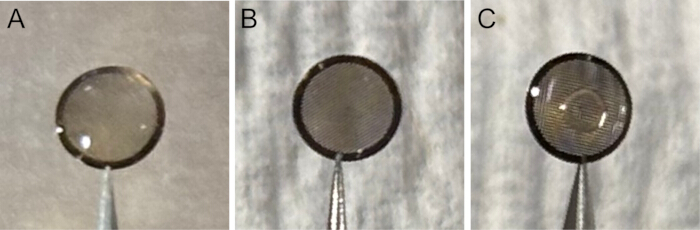
Figura 5: Esempi di griglie TEM dopo il trasferimento di monostrato lipidico. (A) Trasferimento di lipidi riuscito con buffer distribuito su tutta la superficie della griglia. (B) Trasferimento di lipidi riuscito dopo l'asciugatura all'aria per 1 ora. (C) Trasferimento lipidico contaminato con olio di ricino, visibile al centro della griglia. Clicca qui per visualizzare una versione più grande di questa figura.
10. Incubazione della carta blot in un crio-pistone a 4 °C e umidità al 100% (>1 h)
- Imposta la camera di umidità del crio-sturalavandini a 4 °C e al 100% di umidità.
- Installa la carta con macchie sui tappetini. Incuba la carta a macchie ad alta umidità per almeno 1 ora.
11. Raffreddamento del tampone di diluizione (~20 min)
- Metti almeno 20 mL di tampone di diluizione sul ghiaccio.
- Raffredda il buffer per almeno 20 minuti.
12. Tampone di diluizione incubante sulle griglie lipidiche (>15 min)
- Raccogli una teglia da forno, una versione di un portapinzette stampato in 3D (File Supplementari 1–3), una striscia di pellicola autosigillante larga 10 cm da 25–35 cm, una striscia di carta stagnola larga 30,4 cm, ghiaccio e carta assorbente. Posizionare i materiali vicino al crio-pistone (Figura 3).
- Posiziona la teglia da forno longitudinalmente accanto al crio-sturalavando. Riempi la ciotola a metà con ghiaccio, poi coprila con carta assorbente. Bagna leggermente la carta assorbente con acqua del rubinetto.
- Posiziona la striscia di pellicola auto-sigillante longitudinalmente sulla metà opposta della teglia direttamente sopra la carta assorbente bagnata.
- Posiziona il supporto per pinzetta stampato in 3D longitudinalmente al centro della teglia da forno, direttamente sulla carta assorbente bagnata e sulla pellicola auto-sigillante.
- Copri la teglia da forno con carta stagnola (Figura 3).
- Sostituisci il ghiaccio fuso durante l'esperimento.
- Posizionare le griglie lipidiche serrate nella camera di umidità sul piano sopra il film auto-sigillante con il lato lipidico rivolto verso l'alto (Figura 3).
NOTA: Evita di spostare la camera di umidità del piano o di toccare le griglie lipidiche con una punta di pipetta, perché queste azioni potrebbero spostare le griglie. Recupera eventuali griglie che cadono sulla pellicola auto-sigillante se le griglie rimangono intatte. - Applicare 2 μL di tampone di diluizione campione su ciascuna superficie lipidica. Copri la camera con della lamina per minimizzare l'evaporazione.
- Mantenere l'idratazione di ogni griglia lipidica applicando ulteriori 2 μL di tampone di diluizione ogni volta che rimane meno di 1 μL di liquido sulla griglia.
- Bilancia le griglie lipidiche idratate nella camera di umidità raffreddata sul piano per almeno 15 minuti.
13. Incubazione del campione sulle griglie lipidiche (>15 min)
- Assicurati che le griglie lipidiche siano state idratate con un tampone di diluizione in modo continuo per almeno 15 minuti.
- Assicurati che il buffer di diluizione di stock sia completamente raffreddato.
- Applicare 3 μL di campione marcato con poliistidina su ogni griglia lipidica idratata. Copri la camera con della lamina per minimizzare l'evaporazione.
- Mantieni l'idratazione di ogni griglia lipidica applicando ulteriori 2 μL di tampone diluizione ogni volta che restano meno di 2 μL di liquido sulla griglia.
- Incuba le griglie per almeno 15 minuti.
14. Preparazione del pentola crio-sturalavandi (>15 min)
- Assemblare il vaso crio-sturalavando, incluso il fuso usato per il raffreddamento indiretto della coppa di ottone.
- Etichetta le scatole della griglia criogenica e mettile all'interno del vaso cryo-plunger.
- Riempi il vaso crio-pistone con LN2. Copri la pentola per minimizzare l'inquinamento da ghiaccio.
- Mantieni il livello LN2 sopra le scatole della crio-griglia aggiungendo periodicamente ulteriori LN2.
- Raffredda i componenti metallici e le scatole della griglia criogenica alla temperatura LN2 per almeno 10 minuti.
ATTENZIONE: Il propano liquido e l'etano sono criogeni altamente infiammabili che causano lesioni simili a LN2 ma privano di un evidente effetto Leidenfrost. Di conseguenza, il contatto può causare lesioni immediate e persistenti. Evita schizzi durante la manovrazione. Se il propano-etano contamina LN2, maneggiare il LN2 contaminato con le stesse precauzioni elevate del propano liquido e dell'etano. Dopo l'uso, posizionare il pentolino criogenico in una cappa chimica per permettere ai criogeni di evaporare in sicurezza. - Riempi il bicchiere di ottone con una miscela liquida di propano-etano 60:40.
- Bilancia la miscela di propano-etano alla temperatura LN2 per almeno 5 minuti.
15. Congelamento a immersione delle griglie lipidiche (~1 h)
- Assicurati che la carta per tagli sia rimasta equilibrata a 4 °C e 100% di umidità per almeno 1 ora.
- Assicurati che le griglie lipidiche siano state incubate con il campione marcato con poliistidina per almeno 15 minuti.
- Confermare che la temperatura propano-etano sia inferiore a −190 °C, poi rimuovere il fuso.
- Distribuire tre gocce da 50 μL di tampone diluizione in una linea suun pezzo di film autosigillante da 10 cm e 2 (Figura 3).
- Lavare una griglia lipidica serrata toccando sequenzialmente la superficie lipidica a ogni goccia tampone di diluizione e rilasciando la griglia sull'ultima goccia.
- Usa la pinzetta crio-sturalavandini per raccogliere la griglia lipidica fluttuante. Monta la griglia nel crio-pistone.
- Assorbi le gocce tampone usate con un fazzoletto privo di pelucchi e scarta.
- Applicare le seguenti impostazioni crio-sturalavandini sulla griglia lipidica prima di congelare in immersione nella miscela propano-etano: tempo di attesa, 0 s; totale blott, 1; forza di blot, −10; tempo di blot, 4 s; e tempo di drenaggio, 0 s.
- Trasferire la griglia criogenica dalla coppa propano-etano in uno slot disponibile in una scatola della griglia criogenica.
- Ripeti la procedura di congelamento a immersione per tutte le griglie lipidiche.
Risultati
Per illustrare i risultati attesi di questo protocollo, è stata condotta una serie di esperimenti. Le griglie TEM Holey-carbon R1.2/1.3 con e senza monostrati lipidici Ni-NTA al 20% sono state congelate in immersione con campione e fotografate utilizzando un crio-TEM da 200 keV. Per ogni condizione, sono state immagini da 3 a 9 quadrati della griglia. Lo spessore del ghiaccio variava tra singole griglie e quadrati di griglia, con regioni ottimali contenenti ghiaccio vitreo sottile e particelle ben incorporate, come verificato dagli anelli caratteristici di Thon nella trasformata di Fourier veloce (FFT)31.
Nel primo esperimento, Staphylococcus aureus glutammate sintasi (saGS) con marcare poliistidina purificata è stata utilizzata per dimostrare la preparazione ottimale e la prestazione attesa delle griglie di affinità dei monostrati lipidici Ni-NTA al 20% (Figura 6). I monostrati lipidici sono stati trasferiti su griglie TEM a rete dorata. Le griglie lipidiche sono state essiccate e conservate in un essiccatore per una settimana prima della reidratazione. Dopo una completa reidratazione, il saGS a 0,1 mg/mL è stato incubato sulle griglie per 15–30 minuti per permettere il legame delle particelle. Le particelle SaGS, con un conteggio medio di 274 particelle per micrografia (N = 7), apparivano distribuite uniformemente lungo il monostrato lipidico con sovrapposizione minima o nulla.
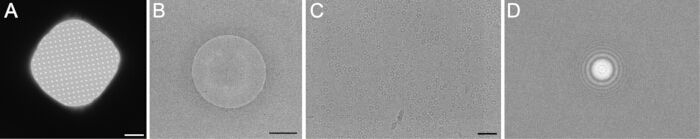
Figura 6: Immagini crio-TEM rappresentative di una griglia di affinità lipidica Ni-NTA al 20%. Il monostrato lipidico è stato essiccato per 1 settimana e reidratato con un tampone a basso contenuto di sale come descritto nel protocollo. Sono state raccolte immagini rappresentative con ingrandimento basso (A), intermedio (B) e alto (C), con corrispondenti FFT mostrate in (D). Le particelle, con una media di 274 particelle per micrografia (N = 7), sono distribuite uniformemente sulla superficie della griglia all'interno di uno strato sottile di ghiaccio vitreo. Barre di scala: 10 μm, 500 nm e 50 nm. Clicca qui per visualizzare una versione più grande di questa figura.
Nel secondo esperimento, campioni di SaGS che mostrano impilamento di particelle sono stati utilizzati per dimostrare gli effetti delle griglie lipidiche sull'aggregazione proteica (Figura 7). Sono state esaminate quattro condizioni di cryo grid: saGS a 1,0 mg/mL su griglie a rete di rame senza lipidi, saGS a 0,1 mg/mL su griglie a rete di rame senza lipidi, saGS a 0,1 mg/mL su griglie a rete d'oro con lipidi mai essiccati, e saGS a 0,1 mg/mL su griglie a rete d'oro con lipidi essiccati per 1 settimana prima della reidratazione. Le griglie lipidiche hanno mostrato una densità di particelle più elevata, con medie di 40 o 46 particelle per micrografo (N = 12), rispetto alle griglie non lipidiche preparate alla stessa concentrazione proteica, che hanno avuto una media di 2 particelle per micrografia (N = 12). Questi risultati hanno dimostrato un chiaro effetto di concentrazione rispetto alle griglie TEM non modificate, confermando che il monostrato lipidico Ni-NTA al 20% è rimasto intatto. Sebbene l'impilamento di particelle fosse ancora osservato, le particelle sulle griglie lipidiche mostravano una sovrapposizione minima e rimanevano all'interno di un piano focale simile. Al contrario, le particelle su griglie non lipidiche sono apparse a profondità focali sostanzialmente diverse, con particelle aggregate osservate a concentrazioni più elevate di 1 mg/mL.
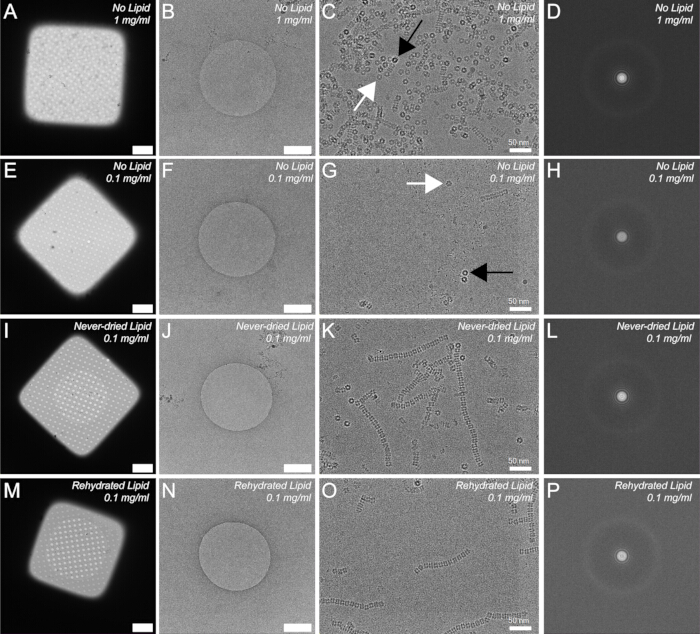
Figura 7: Immagini crio-TEM di saGS impilati contrassegnati con poliistidina su griglie lipidiche e non lipidiche Ni-NTA al 20%. (A–D) Griglia non lipidica preparata con saGS a 1,0 mg/mL, mostrata a bassa (A), intermedia (B) e alta (C) ingrandimento, con corrispondente FFT (D). (E–H) Griglia non lipidica preparata con saGS a 0,1 mg/mL. (I–L) Griglia lipidica mai essiccata preparata con saGS a 0,1 mg/mL.
(M–P) Griglia lipidica reidratata preparata con saGS a 0,1 mg/mL. La densità delle particelle sulle griglie non lipidiche era inferiore a quella osservata sulle corrispondenti griglie di affinità lipidica, con una media di 2 particelle per micrografia rispetto a 46 e 47 particelle per micrografo rispettivamente (N = 12). Le frecce nere indicano particelle fortemente sfocate. Le frecce bianche indicano particelle vicino alla messa a fuoco. Barre di scala: 10 μm, 500 nm e 50 nm. Clicca qui per visualizzare una versione più grande di questa figura.
Nel terzo esperimento, le griglie lipidiche sono state esposte a N-dodecil-β-D-maltoside (DDM). È stato utilizzato un saGS purificato a 0,1 mg/mL come campione. Il detersivo ha interrotto il monostrato lipidico. Le griglie criogeniche lipidiche contenenti lo 0,05% di DDM nel buffer (Figura 8) mostravano lacune nel monostrato lipidico, micelle lipidiche sulla superficie della griglia e una riduzione della densità delle particelle rispetto alla condizione di controllo.
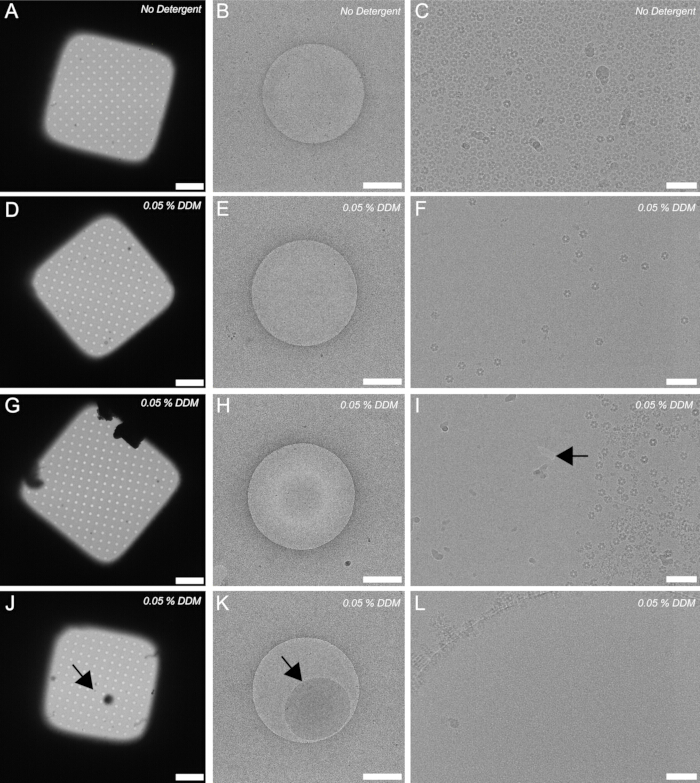
Figura 8: Immagini rappresentative di griglie lipidiche Ni-NTA al 20% esposte allo 0,05% di N-dodecil-β-D-maltoside (DDM). Le griglie criogeniche venivano visualizzate a basso, intermedio e alto ingrandimento. (A–C) Immagini di una griglia di affinità lipidica Ni-NTA al 20% reidratata con tamponamento di diluizione campione. (D–L) Immagini di una griglia di affinità lipidica Ni-NTA al 20% reidratata con un buffer di diluizione campione contenente 0,05% di DDM. La densità di particelle saGS era inferiore sulle griglie TEM trattate con detersivo. La freccia nel pannello I indica un foro nel monostrato lipidico. Le frecce nei pannelli J e K indicano la stessa micelle lipidica. Barre di scala: 10 μm, 500 nm e 50 nm. Clicca qui per visualizzare una versione più grande di questa figura.
Lo spessore del ghiaccio variava sia tra le griglie che all'interno delle singole quadrate della griglia. In alcuni casi, il ghiaccio era troppo sottile o assente da alcune parti del quadrato della griglia (Figura 9A), distribuito in modo irregolare (Figura 9B) o eccessivamente spesso per l'imaging (Figura 9C). In alcune regioni, lo spessore del ghiaccio era inferiore al diametro del complesso proteico. Le aree aride o le regioni contenenti ghiaccio molto sottile, definite come più sottili del diametro delle particelle, dovrebbero essere evitate durante la raccolta dei dati perché le proteine in queste regioni sono probabilmente denaturate. Sulla base dell'esperienza con questo protocollo, si prevede che circa il 25%–50% delle crio-reti contenga ghiaccio sufficientemente sottile adatto alla raccolta dati SPA su più quadrati di griglia. Lo spessore del ghiaccio può essere ottimizzato regolando il tempo di blotting o modificando il volume tampone finale sulla griglia prima del congelamento a immersione.
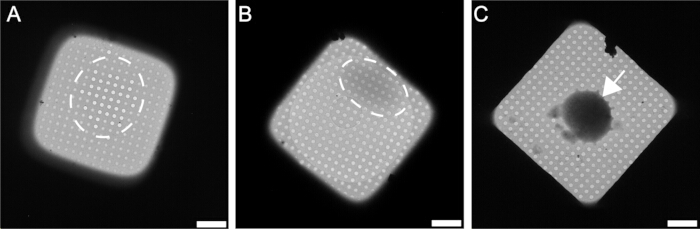
Figura 9: Esempi di griglie di affinità Ni-NTA subottimali. Micrografie crio-TEM rappresentative di griglie criogeniche con affinità Ni-NTA subottimali al 20%. (A) Assenza di pellicola lipidica dal centro del quadrato della griglia, indicata dal cerchio bianco tratteggiato che circonda i fori vuoti. (B) Quadrato a griglia contenente ghiaccio irregolare, con ghiaccio più spesso vicino alla regione indicata dal cerchio bianco tratteggiato. (C) Quadrato della griglia contenente ghiaccio troppo spesso per l'imaging, indicato dalla freccia. Barre di scala: 10 μm. Clicca qui per visualizzare una versione più grande di questa figura.
Quando preparate correttamente, le griglie di affinità contengono un monostrato lipidico con uno strato predominantemente singolo di particelle adsorbite sulla pellicola. Si prevede che la densità delle particelle superi quella osservata sulle griglie non lipidiche preparate utilizzando concentrazioni campionari simili. Il mancato trasferimento del monostrato lipidico su una griglia TEM produce crio-griglie contenenti fori vuoti (Figura 10A) o fori contenenti ghiaccio vitreo privo di film lipidico e poche o nessuna particella (Figura 10B, C).
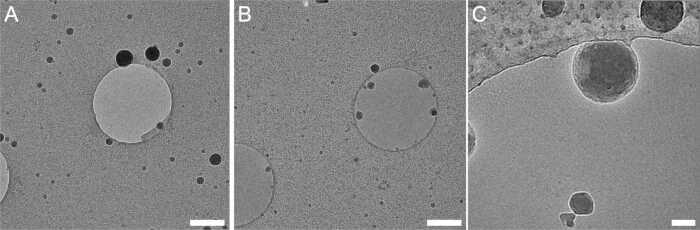
Figura 10: Esempio di una griglia TEM priva di un monostrato lipidico. Immagini crio-TEM che mostrano il fallimento del trasferimento del monostrato lipidico sulla superficie della griglia TEM. I nucleosomi umani marcati con poliistitidina vengono adsorbiti sul film di carbonio. (A) Regione del quadrato della griglia contenente fori vuoti. (B) Diverse regioni della stessa griglia contenenti fori riempiti di ghiaccio vitreo ma privi di particelle visibili o film lipidico. (C) Immagine ad alto ingrandimento di un foro privo di film lipidico ma contenente ghiaccio vitreo; le particelle sono visibili sulla spessa pellicola di supporto in carbonio. Barre: 1 μm e 50 nm. Clicca qui per visualizzare una versione più grande di questa figura.
File supplementare 1: Istruzioni per la stampa 3D del portapinzette. Questo file supplementare contiene istruzioni dettagliate per la stampa 3D di portapinzette personalizzate utilizzate durante l'idratazione della griglia lipidica e l'incubazione del campione. Clicca qui per scaricare questo file.
File supplementare 2: File STL per stampa 3D portapinze da banco da banco. Questo file supplementare contiene il file stereolitografia (STL) necessario per la stampa 3D della versione con pinzetta usata per incubare griglie lipidiche idratate in una camera di umidità da banco (Figura 3C, 3D). Clicca qui per scaricare questo file.
File supplementare 3: File STL per la stampa 3D del portapinze crio-sturalavandi. Questo file supplementare contiene il file di stereolitografia (STL) necessario per la stampa 3D della versione del supporto pinzetta usata per incubare griglie lipidiche idratate in una camera di umidità criogenica. Clicca qui per scaricare questo file.
Discussione
Questo studio presenta un protocollo dettagliato passo dopo passo per preparare le griglie di affinità dei monostrati lipidici Ni-NTA e evidenzia importanti considerazioni pratiche e vantaggi di questo approccio per la determinazione strutturale di routine crio-EM di complessi proteici solubili marcati con poliistidina. Diversi passaggi del protocollo sono tecnicamente impegnativi e suscettibili di errori dell'utente, in particolare per chi lo usa per la prima volta.
La modifica del monostrato lipidico può essere completata in circa 2 ore, e le griglie lipidiche risultanti possono essere essiccate e conservate per un uso successivo. Con 2 ore aggiuntive e accesso a un cryo-plunger, si possono successivamente preparare le griglie criogeniche. Di conseguenza, questo metodo è particolarmente adatto a strutture multiutente e laboratori crio-EM. Utilizzando questo approccio, sono state determinate strutture di complessi proteici solubili che vanno da 97 a 470 kDa con risoluzione inferiore a3 Å 17. Il legame efficiente al monostrato lipidico Ni-NTA richiede un componente marcato con poliistidine contenente un linker flessibile. Sebbene sia stato osservato un certo grado di orientamento preferito rispetto al monostrato per alcuni campioni, inclusi nucleosomi e glutammato sintasi, tali orientamenti non hanno limitato la risoluzione né introdotto artefatti di stiramento nelle ricostruzioni finali. L'interazione tra il monostrato lipidico Ni-NTA e le proteine marcate con poliistidine favorisce una cattura efficiente delle particelle sulla superficie della griglia TEM. Di conseguenza, l'analisi strutturale può essere eseguita utilizzando campioni relativamente diluiti e pipeline standard di elaborazione crio-EM, come RELION e cryoSPARC, senza ulteriori fasi di preparazione del campione.
Una gestione attenta delle griglie TEM e la preparazione di miscele lipidiche sono essenziali per ottenere risultati riproducibili. I monostrati lipidici sono altamente sensibili ai contaminanti, inclusi detersivi residui, oli e polvere. Una pulizia accurata di tutta la vetreria è quindi fondamentale. Si consiglia vivamente di lavare con un tensioattivo anionico, seguito da un risciacquo esteso con acqua ultrapura e un'asciugatura accurata all'aria prima di un successivo risciacquo con cloroformio ed etanolo immediatamente prima dell'uso.
Il protocollo utilizza griglie TEM gold-mesh perché non sono reattive su un'ampia gamma di condizioni di campione e buffer. Per accogliere diversi campioni, i tamponi utilizzati durante il getto lipidico, la reidratazione a griglia lipidica, l'incubazione del campione e il lavaggio prima del congelamento a immersione possono essere modificati secondo necessità. I campioni di tamponi contenenti glicerolo o altri additivi possono essere rimossi durante la fase di lavaggio prima della vitrificazione. I tamponi contenenti ditiotreitolo (DTT) dovrebbero essere evitati perché la DTT riduce ilnichel 32 e interferisce con il legame tra proteine marcate con poliistidina e il monostrato lipidico Ni-NTA. I detersivi non sono raccomandati perché lo 0,05% di N-dodecil-β-D-maltoside (DDM) ha disturbato il monostrato lipidico, e altri detergenti comunemente utilizzati per studi strutturali delle proteine a membrana dovrebbero produrre effetti simili (Figura 8D–L). Resta da determinare se concentrazioni di detersivi più basse o detergenti a bassa concentrazione di micellela critica compromettano allo stesso modo l'integrità dei monostrati.
La parte più tecnicamente impegnativa del protocollo è la fusione e il trasferimento del monostrato lipidico sulla griglia TEM. Questo passaggio è altamente sensibile alla temperatura, alle vibrazioni e alle tecniche di maneggevolezza. I risultati ottimali sono stati ottenuti fondendo film lipidici a temperatura ambiente (~22 °C) utilizzando tampone preraffreddato. Le perturbazioni meccaniche dovrebbero essere minimizzate perché le vibrazioni possono destabilizzare il monostrato. Di conseguenza, la piastra di Petri dovrebbe rimanere ferma dopo la fusione dei lipidi. Durante il trasferimento, il monostrato di olio di ricino e lipidi può migrare gradualmente sulla superficie tamponante, aumentando la probabilità di trasferimento di olio di ricino invece del monostrato lipidico (Figura 5C). È necessario un corretto riempimento della piastra di Petri e un attento controllo dell'orientamento della griglia per garantire un trasferimento monostrato completo e uniforme. Il mancato trasferimento della pellicola lipidica sulla superficie della griglia TEM produce una superficie idrofobica, causando la formazione di gomme del tampone sulla superficie del carbonio.
In questo studio, è stato valutato solo un crio-sturalavandini con blotting a due lati. Tuttavia, altri metodi di blotting, tra cui il manuale o quello unilaterale, sono previsti per ottenere risultati comparabili a condizione che il film lipidico rimanga intatto. Durante l'adattamento di questo protocollo, le griglie lipidiche dovrebbero essere gestite in modo simile alle griglie TEM standard, con diverse considerazioni importanti. La pulizia al plasma dovrebbe essere evitata e le griglie lipidiche dovrebbero rimanere continuamente idratate per almeno 15 minuti prima dell'applicazione del campione. I campioni devono essere incubati sulla griglia lipidica per almeno 15 minuti per consentire l'adsorbimento superficiale, e la griglia deve essere contattata con almeno una goccia di tampone diluizione prima di fare il blot per normalizzare il volume finale del tampone sulla superficie della griglia. Mantenere l'idratazione del monostrato lipidico Ni-NTA durante l'incubazione del campione è fondamentale, poiché l'evaporazione può aumentare le concentrazioni locali di sale e potenzialmente alterare la struttura proteica o l'assemblaggio complesso. Tempi di incubazione più lunghi (>30 min) possono aumentare la densità delle particelle sulla griglia, anche se un'incubazione prolungata dovrebbe essere bilanciata con la possibile degradazione del campione. La miscela liquida 60:40 di propano-etano descritta in questo protocollo è raccomandata, ma non strettamente obbligatoria. Rapporti alternativi propano-etano o etanolo puro possono essere utilizzati in combinazione con uno sturalavandini criogenico dotato di un sistema di riscaldamento a coppa di etano per mantenere il criogeno in stato liquido per tutto l'esperimento. Infine, la distribuzione delle particelle è influenzata dallo spessore del ghiaccio. In alcuni casi, le particelle possono essere escluse da regioni contenenti ghiaccio particolarmente sottile, in particolare vicino al centro dei quadrati della griglia. Le condizioni di blotting potrebbero quindi dover essere ottimizzate per ogni dispositivo di vitrificazione. Nel complesso, le griglie di affinità monostrato lipidici Ni-NTA forniscono una strategia robusta e accessibile per la determinazione strutturale di complessi proteici solubili marcati con poliistidina. Con un'attenta implementazione della procedura passo dopo passo descritta qui, questo metodo può essere facilmente integrato nei workflow standard crio-EM.
Ringraziamenti
Gli autori ringraziano Caleb Fisher, Rob McGinty, Nicholas Wright, Blake Fordyce e Bryan Roth dell'Università della Carolina del Nord a Chapel Hill per aver fornito i buffer utilizzati in questi esperimenti. La struttura centrale UNC-Chapel Hill CryoEM e il Comitato per la Difesa della Struttura Centrale UNC sono riconosciuti per il supporto tecnico e finanziario. La Struttura di Microscopia Crio-Elettronica Biomolecolare del Dipartimento di Chimica e Biochimica dell'Università della California, Santa Cruz (RRID: SCR_021755), è riconosciuta per l'assistenza tecnica. Questo lavoro è stato sostenuto dal National Cancer Institute dei National Institutes of Health con il numero di premi P30CA016086 e da una sovvenzione dei National Institutes of Health R35GM150960 assegnata a Richard W. Baker.
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| 1 mL volumetric flask with stopper | Avantor | 10124-382 | Flacone volumetrico VWR, vetro trasparente, Classe A, serializzato, con tappo in vetro a testa di penny, 1 mL |
| 2.5 µL glass syringe | Hamilton | 7632-01 | Siringa da 2.5 microlitri, ago rimovibile (RN), senza ago incluso |
| 3.7 mL threaded glass vial with phenolic cap | Fisher Scientific | 03338A | Fisherbrand Fiala in vetro filettato Classe B trasparente con chiusura attaccata, 3.7 mL |
| 4-slot cryo-grid box | MiTeGen | 71166-10 | Scatola per griglie cryo rotonda con coperchio |
| 11.4 L plastic tub | Sterilite 12 qt lavandino, vasca di lavaggio in plastica multiuso | ||
| 25 µL glass syringe | Hamilton | 80430 | Siringa da 25 microlitri, ago rimovibile (RN), include ago curvato smussato da 22s, 52 mm |
| 25 mL volumetric flask with stopper | Avantor | 10123-994 | Flacone volumetrico VWR, vetro trasparente, Classe A, serializzato, con tappo in vetro a testa di penny, 25 mL |
| 99.5% pure ethanol | Thermo Fisher Scientific | 615090040 | Etanolo, 99.5%, reagente ACS, assoluto, 200 proof |
| 99.8% pure chloroform | Fisher Scientific | AA32614K2 | Cloruro di metile, ACS, 99.8+% |
| Aluminum foil | Walmart | Carta stagnola, larghezza 30,4 cm | |
| Anionic surfactant powder | Fisher Scientific | 50-997-492 | Detergente in polvere anionico Electron Microscopy Sciences Alconox, 4 libbre |
| Baking dish | Walmart | Piatto da forno in vetro profondo Pyrex 232-D da 3 litri | |
| Blot paper | Ted Pella | 47000-100 | Carta filtro standard Vitrobot, Ø55/20 mm, Grado 595 |
| Bottle of castor oil with dropper | Walmart | Olio di ricino organico con contagocce, 1 fl oz | |
| Cryo-plunger | Thermo Fisher Scientific | 1151972 | FEI Vitrobot Mark IV |
| DOPC | Avanti Polar Lipids | 850375P-25mg | PC (DOPC) 18:1 (Δ9-Cis), 1,2-dioleoyl-sn-glycero-3-phosphocholine in polvere, 25 mg |
| Fine-tip tweezers | Ted Pella | 505 | Pinzette DUMONT Biology Grade, stile 5, in acciaio inossidabile lucidato |
| Glass culture tube | Fisher Scientific | 14958A | Tubo in vetro flint Fisherbrand monouso con estremità piatta, 1 mL |
| Glass pipet | Fisher Scientific | 13-678-20A | Pipetta Pasteur Fisherbrand monouso in vetro borosilicato, 14,6 cm |
| Gold-mesh holey-carbon TEM grid | Quantifoil | N1-C14nAu30-01 | QUANTIFOIL R 1.2/1.3 Au 300 mesh |
| Grade 1 filter paper | Sigma-Aldrich | WHA1001150 | Carta filtro qualitativa Whatman, Grado 1, diametro 150 mm |
| Large petri dish with cover | Fisher Scientific | 08747E | Piatto di Petri riutilizzabile Corning PYREX con coperchio, diametro 150 mm, altezza 15 mm |
| Low-lint tissues | Fisher Scientific | 06-666 | Salviettine delicate Kimtech Science Kimwipes, 1 stratificata |
| Ni-NTA lipid | Avanti Polar Lipids | 790404P-5mg | DGS-NTA(Ni) 18:1, 1,2-dioleoyl-sn-glycero-3-[(N-(5-amino-1-carboxipentil)iminodiacetic acid)succinyl] (sale di nichel) |
| Pipet bulb | Fisher Scientific | S32325 | Gomma bulb Fisherbrand, naturale, 2 mL |
| Reagent ethanol | Sigma-Aldrich | 362808-1L | Alcool reattivo ≥89% (GC), contiene 5% di alcol isopropilico e 5% di alcol metilico |
| Self-closing anti-capillary tweezers | Ted Pella | 510-5 | Pinzette anti-capillare DUMONT a chiusura automatica, Grado Biology, stile 5ACN, in acciaio inossidabile |
| Self-sealing film | Fisher Scientific | S47529 | Film avvolgente Parafilm M, 10 cm |
| Small petri dish with cover | Fisher Scientific | 08747A | Piatto di Petri riutilizzabile Corning PYREX con coperchio, diametro 60 mm, altezza 15 mm |
| Syringe needle | Hamilton | 7803-01 | Ago rimovibile (RN) da 27 gauge a piccolo hub, smussato, lunghezza 75 mm, angolo 45° |
Riferimenti
- Chan, L. M., et al. High-resolution single-particle imaging at 100–200 keV with the Gatan Alpine direct electron detector. J Struct Biol. 216 (3), 108108(2024).
- Efremov, R. G., Stroobants, A. Coma-corrected rapid single-particle cryo-EM data collection on the CRYO ARM 300. Acta Crystallogr D Struct Biol. 77 (Pt 5), 555-564 (2021).
- Frechin, L., et al. High-resolution cryo-EM performance comparison of two latest-generation cryo electron microscopes on the human ribosome. J Struct Biol. 215 (1), 107905(2023).
- Herzik, M. A. Jr, Wu, M., Lander, G. C. High-resolution structure determination of sub-100 kDa complexes using conventional cryo-EM. Nat Commun. 10 (1), 1032(2019).
- Karia, D., et al. Sub-3 Å resolution protein structure determination by single-particle cryo-EM at 100 keV. Structure. 33 (10), 1717-1727.e4 (2025).
- McMullan, G., et al. Structure determination by cryoEM at 100 keV. Proc Natl Acad Sci U S A. 120 (49), e2312905120(2023).
- Peng, R., et al. Characterizing the resolution and throughput of the Apollo direct electron detector. J Struct Biol X. 7, 100080(2023).
- D’Imprima, E., et al. Protein denaturation at the air-water interface and how to prevent it. eLife. 8, (2019).
- Noble, A. J., et al. Routine single-particle cryoEM sample and grid characterization by tomography. eLife. 7, (2018).
- Tan, Y. Z., et al. Addressing preferred specimen orientation in single-particle cryo-EM through tilting. Nat Methods. 14 (8), 793-796 (2017).
- Snijder, J., et al. Vitrification after multiple rounds of sample application and blotting improves particle density on cryo-electron microscopy grids. J Struct Biol. 198 (1), 38-42 (2017).
- Cianfrocco, M. A., Kellogg, E. H. What could go wrong? A practical guide to single-particle cryo-EM: From biochemistry to atomic models. J Chem Inf Model. 60 (5), 2458-2469 (2020).
- Cheng, H., et al. Dual-affinity graphene sheets for high-resolution cryo-electron microscopy. J Am Chem Soc. 145 (14), 8073-8081 (2023).
- Yu, G., Li, K., Jiang, W. Antibody-based affinity cryo-EM grid. Methods. 100, 16-24 (2016).
- Arimura, Y., Konishi, H. A., Funabiki, H. MagIC-Cryo-EM, structural determination on magnetic beads for scarce macromolecules in heterogeneous samples. eLife. 13, (2025).
- Zhao, Q., et al. An immobilized antibody-based affinity grid strategy for on-grid purification of target proteins enables high-resolution cryo-EM. Commun Biol. 7 (1), 715(2024).
- Skrajna, A., et al. Nickel-NTA lipid-monolayer affinity grids allow for high-resolution structure determination by cryo-EM. J Struct Biol. 217 (4), 108253(2025).
- Esfahani, B. G., et al. SPOT-RASTR—A cryo-EM specimen preparation technique that overcomes problems with preferred orientation and the air/water interface. PNAS Nexus. 3 (8), pgae284(2024).
- Cookis, T., et al. Streptavidin-affinity grid fabrication for cryo-electron microscopy sample preparation. J Vis Exp. (202), e66197(2023).
- Han, B. G., et al. Long shelf-life streptavidin support-films suitable for electron microscopy of biological macromolecules. J Struct Biol. 195 (2), 238-244 (2016).
- Song, J., et al. Structural basis for inactivation of PRC2 by G-quadruplex RNA. Science. 381 (6664), 1331-1337 (2023).
- Cookis, T., et al. Structural basis for the inhibition of PRC2 by active transcription histone posttranslational modifications. Nat Struct Mol Biol. 32 (2), 393-404 (2025).
- Gillies, J. P., et al. Structural basis for cytoplasmic dynein-1 regulation by Lis1. eLife. 11, (2022).
- Sauer, P. V., et al. Structural and quantum chemical basis for OCP-mediated quenching of phycobilisomes. Sci Adv. 10 (14), eadk7535(2024).
- Sauer, P. V., et al. Activation of automethylated PRC2 by dimerization on chromatin. Mol Cell. 84 (20), 3885-3898.e8 (2024).
- Ciapponi, M., et al. Structural basis of the histone ubiquitination read-write mechanism of RYBP-PRC1. Nat Struct Mol Biol. 31 (7), 1023-1027 (2024).
- Dominguez-Martin, M. A., et al. Structures of a phycobilisome in light-harvesting and photoprotected states. Nature. 609 (7928), 835-845 (2022).
- Marechal, N., Serrano, B. P., Zhang, X., Weitz, C. J. Formation of thyroid hormone revealed by a cryo-EM structure of native bovine thyroglobulin. Nat Commun. 13 (1), 2380(2022).
- Kasinath, V., et al. JARID2 and AEBP2 regulate PRC2 in the presence of H2AK119ub1 and other histone modifications. Science. 371 (6527), (2021).
- Ma, J., et al. Open architecture of archaea MCM and dsDNA complexes resolved using monodispersed streptavidin affinity CryoEM. Nat Commun. 15 (1), 10304(2024).
- Kim, L. Y., et al. Benchmarking cryo-EM single-particle analysis workflow. Front Mol Biosci. 5, 50(2018).
- Zhou, Z., Jin, J., Deng, X., Jia, Z. Protein purification via consecutive histidine-polyphosphate interaction. Protein Sci. 33 (6), e5021(2024).
Ristampe e permessi
Tag
BiochimicaFascicolo 234Fascicolo 234TuttiFascicoloTuttiFascicoloTuttiFascicoloTuttiFascicoloTuttiFascicoloTuttiFascicoloTuttiQuesto mese in JoVEFascicolocrio-microscopia elettronicasingola particellacryoEMpreparazione del campionegriglia di affinitàbiologia strutturalebiochimicabiofisicamicroscopia elettronica
Questo articolo è stato pubblicato
Video in arrivo