L'immunoblotting di LC3 è un metodo ampiamente utilizzato per monitorare l'autofagia, ma richiede un'attenta ottimizzazione. Questo protocollo descrive un approccio solido per il rilevamento e la quantificazione di LC3-II in cellule tumorali pancreatiche derivate da KPC, inclusi i principali aspetti tecnici e un flusso di lavoro standardizzato per l'analisi densitometrica mediante Fiji.
Articolo metodologico
Analisi mediante Western Blot della proteina associata ai microtubuli Light Chain 3 per monitorare la dinamica autofagosomiale in cellule di carcinoma pancreatico derivate da topo
In questo articolo
Sommario
Abstract
L'autofagia svolge un ruolo complesso nel carcinoma duttale pancreatico (PDAC), contribuendo alla progressione tumorale, all'adattamento allo stress e alla resistenza alle terapie. Una valutazione accurata della dinamica autofagosomale è quindi essenziale per gli studi di biologia del cancro. Tra i metodi disponibili, l'immunoblotting della catena leggera della proteina associata ai microtubuli 3 (LC3) è ampiamente utilizzato per monitorare la dinamica autofagosomale, distinguendo tra la forma citosolica (LC3-I) e quella lipidata, associata agli autofagosomi (LC3-II). Tuttavia, il basso peso molecolare della LC3 e la minima differenza nella mobilità elettroforetica tra queste isoforme presentano sfide tecniche che richiedono un'accurata ottimizzazione. Viene qui presentato un protocollo riproducibile per l'analisi semi-quantitativa dei livelli di LC3-II mediante Western blot in cellule murine di cancro al pancreas derivate da KPC. Il metodo incorpora condizioni ottimizzate per la lisi cellulare, l'elettroforesi, il trasferimento proteico e la rilevazione basata su anticorpi, al fine di garantire una separazione e rilevazione affidabili delle isoforme di LC3. Inoltre, viene fornito un flusso di lavoro standardizzato per l'analisi densitometrica delle bande di LC3-II mediante Fiji (ImageJ). La sensibilità del metodo è dimostrata attraverso il rilevamento dell'aumento dei livelli di LC3-II in condizioni di induzione dell'autofagia (trattamento con gemcitabina) e di flusso autofagico compromesso (silenziamento di VMP1). Vengono inoltre esaminati parametri tecnici critici che influenzano l'interpretazione dei dati, tra cui la composizione del buffer di lisi e la specificità dell'anticorpo, insieme agli errori sperimentali più comuni. Sebbene l'immunoblotting della LC3 da solo non sia sufficiente a definire completamente il flusso autofagico, quando combinato con saggi complementari fornisce un approccio robusto e accessibile per monitorare l'attività autofagica. Il protocollo può essere adattato ad altri contesti sperimentali, facilitando studi meccanicistici dell'autofagia nei modelli di cancro.
Introduzione
La macroautofagia (di seguito indicata come autofagia) è un percorso degradativo regolato attraverso il quale le cellule degradano materiale citoplasmatico, inclusi proteine e organelli disfunzionali. Un tratto distintivo dell'autofagia è la formazione di una struttura a doppia membrana nota come autofagosoma, che isola il carico cellulare e successivamente lo trasporta nei lisosomi per la degradazione1,2,3. In condizioni normali, l'autofagia contribuisce al turnover controllato di proteine e organelli, limitando così lo stress ossidativo e riducendo il rischio di sviluppo tumorale. Tuttavia, nelle cellule tumorali, questo processo può essere sfruttato per favorire la sopravvivenza in condizioni di elevata richiesta metabolica, carenza di nutrienti e ipossia. Facilitando l'adattamento a un microambiente ostile, l'autofagia contribuisce anche alla resistenza alla chemioterapia, in parte mitigando i danni cellulari indotti dal trattamento4,5.
Il cancro del pancreas è la terza causa principale di mortalità correlata al cancro negli Stati Uniti. Circa il 90% dei tumori pancreatici è classificato come adenocarcinoma duttale pancreatico (PDAC). A differenza di diversi altri tipi di neoplasie, per i quali la diagnosi precoce e i progressi terapeutici hanno migliorato la sopravvivenza dei pazienti, il PDAC viene diagnosticato in uno stadio avanzato in oltre l'80% dei casi. Questa presentazione tardiva, unita alla biologia aggressiva del tumore e alla marcata resistenza alle terapie, determina un tasso di sopravvivenza complessivo a 5 anni di circa l'11%6.
Il modello murino KPC, basato sull'attivazione specifica per il pancreas del Kras oncogenico e sulla delezione condizionale di Trp53 mediata da ricombinasi Cre, è uno dei modelli di adenocarcinoma duttale pancreatico geneticamente modificati più utilizzati. Questi topi sviluppano spontaneamente tumori che assomigliano strettamente alla malattia umana, con una progressione da neoplasia intraepiteliale pancreatica (PanIN) a carcinoma invasivo. In modo significativo, questo modello riproduce caratteristiche chiave del cancro del pancreas, inclusi uno stroma desmoplastico denso e un microambiente tumorale immunosoppressivo. Le cellule tumorali isolate da topi KPC (cellule derivate da KPC) costituiscono un sistema complementare in vitro che mantiene molte delle caratteristiche genetiche e fenotipiche dei tumori originali, consentendo studi meccanicistici e una valutazione controllata delle risposte terapeutiche7,8.
VMP1 è una proteina essenziale legata all'autofagia che inizia il processo attraverso l'interazione con Beclin-1 e il reclutamento del complesso PI3KC39,10. Oltre alla fase iniziale, VMP1 partecipa a più stadi dell'autofagia, inclusa la formazione dell'autofagosoma10, la chiusura11 e processi selettivi come la mitofagia12 e la zimofagia13. VMP1 rimane coinvolto per tutto il flusso autofagico e potrebbe svolgere ulteriori funzioni come scramblasi dei fosfolipidi14. Nel pancreas, l'espressione di VMP1 è generalmente bassa, ma viene fortemente indotta in condizioni di stress, come nella pancreatite e nella trasformazione oncogenica, dove promuove l'autofagia a valle del segnale derivante da KRAS mutato15,16. VMP1 è sovraespresso nel cancro del pancreas17 e modelli sperimentali su topi hanno dimostrato che l'autofagia dipendente da VMP1 coopera con KRAS per favorire l'insorgenza tumorale e la formazione di lesioni PanIN18. Inoltre, VMP1 contribuisce alla resistenza chemioterapica poiché il suo aumento indotto da agenti come la gemcitabina19 stimola l'autofagia19 e sostiene la sopravvivenza delle cellule tumorali17, evidenziandone il ruolo protumorale15.
Gli autofagosomi sono caratterizzati dalla presenza della proteina legata all'autofagia, la catena leggera 3 del microtubulo-associato alle proteine (LC3)20. In condizioni basali, LC3 è prevalentemente presente in forma solubile (LC3-I), distribuita in tutto il citoplasma e nel nucleo. Quando l'autofagia viene attivata, LC3 subisce una lipidazione attraverso il legame con la fosfatidiletanolammina, generando la forma associata alle membrane LC3-II1,21. Sebbene LC3-II abbia un peso molecolare maggiore rispetto a LC3-I a causa di questa modificazione, migra più rapidamente durante l'elettroforesi su gel in presenza di SDS-PAGE, probabilmente a causa dell'aumentata idrofobicità. Di conseguenza, la conversione di LC3-I in LC3-II riflette un processo di lipidazione piuttosto che una proteolisi, con LC3-I che di solito viene rilevato a circa 16 kDa e LC3-II a circa 14 kDa. Poiché i livelli di LC3-II sono correlati all'abbondanza di autofagosomi, l'immunoblotting per LC3 è ampiamente utilizzato per monitorare l'attività autofagica22. Una valutazione accurata della dinamica di LC3 è quindi essenziale per interpretare i risultati sperimentali legati all'autofagia.
Questo studio descrive la standardizzazione e l'ottimizzazione tecnica di un protocollo classico di immunoblot per LC3 in una linea cellulare di carcinoma pancreatico derivata da KPC. L'ottimizzazione è particolarmente importante perché LC3 è una proteina a basso peso molecolare, le forme LC3-I e LC3-II differiscono di soli circa 2 kDa nella mobilità elettroforetica e LC3-II è una specie lipidata21,22. Di conseguenza, piccole variazioni procedurali possono compromettere il rilevamento di LC3 e portare a risultati subottimali. Inoltre, l'origine specifica dei campioni rappresenta un aspetto fondamentale per ottenere un'immunoreattività ottimale. Il protocollo ottimizzato è sufficientemente sensibile da rilevare l'aumento dei livelli di LC3-II dopo il trattamento con l'agente chemioterapico gemcitabina e dopo il silenziamento di VMP1, condizioni note per stimolare l'autofagia e compromettere rispettivamente il flusso autofagico. Infine, vengono evidenziati due potenziali errori tecnici per dimostrarne l'impatto sulla qualità dei dati e sull'interpretazione dei risultati. Una panoramica di questo flusso sperimentale è illustrata in Figura 1.
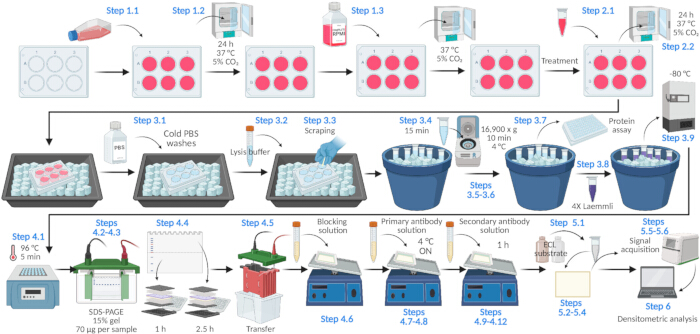
Figura 1: Rappresentazione schematica del protocollo di immunoblotting per LC3 in cellule derivate da KPC. Panoramica schematica del protocollo utilizzato per rilevare e quantificare i livelli di LC3-II mediante immunoblotting. Le cellule tumorali pancreatiche derivate da KPC vengono coltivate e sottoposte a trattamenti sperimentali, seguiti da lisi cellulare, quantificazione delle proteine, elettroforesi su SDS-PAGE, trasferimento su membrana, rilevamento anticorpale di LC3, acquisizione del segnale chemiluminescente e analisi densitometrica delle bande di LC3-II normalizzate rispetto a un controllo di caricamento. Il flusso di lavoro evidenzia i principali passaggi procedurali e le fasi critiche necessarie per una valutazione affidabile della dinamica di LC3. Creata con BioRender.com. Cliccare qui per visualizzare una versione ingrandita di questa figura.
Protocollo
Tutte le procedure che coinvolgono animali sono state eseguite in conformità con le linee guida istituzionali e approvate dal Comitato istituzionale per la cura e l'uso degli animali (IACUC) del Massachusetts General Hospital secondo il protocollo #2019N000111. La linea cellulare di carcinoma pancreatico derivata da KPC utilizzata in questo studio è stata precedentemente stabilita nel laboratorio Mostoslavsky seguendo questo protocollo approvato. L'elenco dei reagenti, dei prodotti chimici e delle informazioni sugli strumenti è riportato nella Tabella dei materiali.
1. Preparazione delle cellule
- Sezionare cellule tumorali pancreatiche derivate da KrasG12D; Trp53f/+; p48-Cre (in seguito indicato come KPC) in una piastra a 6 pozzetti utilizzando il mezzo Roswell Park Memorial Institute (RPMI 1640) contenente 10% di siero fetale bovino, 100 U/mL di penicillina e 100 µg/mL di streptomicina. Regolare la densità di semina in modo da ottenere una confluenza del 70%–90% nel giorno del lisato.
NOTA: Una densità di semina di 3,5 × 10⁵ cellule per pozzetto ha determinato una confluenza di circa l’80% dopo 72 h. Poiché la crescita può variare tra laboratori e modelli KPC, determinare empiricamente la densità di semina ottimale prima di eseguire l’esperimento.
NOTA: Per generare linee cellulari stabili con silenziamento di VMP1, produrre particelle lentivirali mediante co-trasfezione di cellule HEK293T con plasmidi di impacchettamento e il rispettivo vettore lentivirale utilizzando polietilenimina (PEI). Raccogliere i supernatanti lentivirali 72 h dopo la trasfezione, centrifugare a 300 × g per 10 min a 4 °C per rimuovere i detriti cellulari e filtrare attraverso un filtro siringa da 0,45 µm. Sottoporre le cellule KPC a un singolo ciclo di trasduzione con i supernatanti virali raccolti. Selezionare le cellule stably trasdotte trattandole con 2,5 µg/mL di puromicina (diluizione 1:4.000 da una soluzione madre da 10 mg/mL) per 72 h. - Coltivare le cellule a 37 °C in un incubatore umidificato con 5% di anidride carbonica (CO₂).
- Sostituire il mezzo con mezzo fresco e proseguire l’incubazione nelle stesse condizioni.
2. Trattamento con 20 µM di gemcitabina
- Preparare una soluzione di gemcitabina 10 mM nel mezzo RPMI un giorno prima della lisi. Trattare ogni pozzetto con 4 µL della soluzione 10 mM per ottenere una concentrazione finale di 20 µM.
- Incubare le cellule per 24 h a 37 °C in un incubatore umidificato con 5% di anidride carbonica (CO₂).
3. Lisati cellulari
- Posizionare la piastra sul ghiaccio e lavare tre volte con soluzione salina fosfato tamponata fredda (PBS; 137 mM NaCl, 2.7 mM KCl, 8 mM Na₂HPO₄ e 2 mM KH₂PO₄).
- Aggiungere 80 µL di buffer di lisi (50 mM Tris-HCl, pH 8.0, 150 mM NaCl, 1% Triton X-100 e 0.1% SDS) arricchito con inibitori di proteasi.
NOTA: Se si osservano livelli diversi di confluenza tra i pozzetti, regolare il volume del buffer di lisi per ottenere concentrazioni proteiche comparabili. Come riferimento, utilizzare ~10 µL di buffer di lisi per ogni 10% di confluenza (ad esempio, 70 µL per una confluenza del 70% e 90 µL per una confluenza del 90%). - Utilizzando l'estremità larga (prossimale) di una punta per pipetta P200, raschiare accuratamente l'intera superficie di ciascun pozzetto per staccare e raccogliere le cellule nel buffer di lisi.
- Raccogliere il lisato in una provetta da microcentrifuga e mantenerlo sul ghiaccio per 15 minuti.
- Centrifugare i campioni a 16.900 × g a 4 °C per 10 minuti.
- Trasferire il soprannatante in una provetta da microcentrifuga pulita.
- Prelievarne un'aliquote per la quantificazione delle proteine e mantenerla sul ghiaccio fino all'analisi.
NOTA: Per la quantificazione proteica, diluire 2,5 µL di lisato in 7,5 µL di buffer di lisi e mescolare con 200 µL di reagente bicinconinico. Possono essere utilizzati anche altri metodi di quantificazione proteica. - Aggiungere il buffer campione 4× Laemmli (250 mM Tris-HCl, pH 6.8, 8% SDS, 40% glicerolo, 0,04% blu di bromofenolo e 20% β-mercaptoetanolo) ai lisati e mescolare accuratamente. Per 77,5 µL di lisato, aggiungere 25,8 µL di buffer campione Laemmli.
- Conservare i campioni a −80 °C.
NOTA: Il protocollo può essere interrotto a questo punto. I campioni possono essere conservati a −80 °C fino a due settimane prima dell'elettroforesi SDS–PAGE.
4. SDS-PAGE e Western blot
- Riscaldare i campioni a 96 °C per 5 min.
- Caricare 70 µg di ogni campione su un gel SDS–PAGE al 15% (spessore 1,5 mm) ed eseguire l'elettroforesi a 90 V finché il fronte colorante non entra nel gel risolutivo. Utilizzare un gel risolutivo autocostruito al 15% di poliacrilamide contenente 15% acrilamide/bis-acrilamide, 375 mM Tris-HCl (pH 8,8) e 0,1% SDS.
- Aumentare la tensione a 120 V e proseguire l'elettroforesi finché il fronte colorante non raggiunge o fuoriesce dal fondo del gel. Arrestare la corsa prima che il marcatore di 10 kDa della scala molecolare fuoriesca dal gel.
- Tagliare il gel a circa 25 kDa per separare la parte superiore da quella inferiore.
- Trasferire le proteine su una membrana PVDF da 0,2 µm preattivata con metanolo in tampone di trasferimento (25 mM Tris base, 192 mM glicina e 20% [v/v] metanolo) a 200 mA per 1 h per la parte inferiore del gel (<25 kDa) e per 2,5 h per la parte superiore del gel (>25 kDa).
- Bloccare la membrana per 1 h nel tampone di bloccaggio con agitazione delicata.
- Preparare una soluzione 1:1.000 di anticorpo primario anti-LC3 nel tampone di bloccaggio contenente 0,1% di Tween-20.
NOTA: L'anticorpo primario anti-LC3 è stato utilizzato a un diluizione 1:1.000, e l'anticorpo di controllo di carico anti-actina è stato utilizzato a una diluizione 1:4.000. - Incubare la membrana tutta la notte a 4 °C con l'anticorpo primario anti-LC3 sotto agitazione delicata.
- Lavare la membrana quattro volte per 5 min con TBS-T (0,1% Tween-20 in TBS; 20 mM Tris-HCl, pH 7,6, e 150 mM NaCl).
- Preparare una soluzione 1:2.000 di anticorpo secondario anti-coniglio coniugato con perossidasi di rafano in tampone di bloccaggio.
- Incubare la membrana con l'anticorpo secondario per 1 h a temperatura ambiente sotto agitazione delicata.
- Lavare la membrana quattro volte per 5 min con TBS-T.
- Lavare la membrana due volte con TBS.
5. Rilevamento chemiluminescente
- Preparare il substrato chemiluminescente bicomponente potenziato mescolando volumi uguali del Reagente A (soluzione di luminolo/potenziatore) e del Reagente B (soluzione di perossido) immediatamente prima dell'uso.
- Asciugare delicatamente il liquido in eccesso dalla membrana utilizzando un fazzoletto da laboratorio.
- Posizionare la membrana in una scatola opaca.
- Aggiungere la soluzione chemiluminescente potenziata sulla membrana, chiudere la scatola e incubare per 5 min.
- Lasciare scolare il liquido in eccesso dalla membrana e posizionare la membrana nel sistema di acquisizione immagini per la rilevazione del segnale.
- Acquisire le immagini seguendo le istruzioni del produttore relative al sistema di acquisizione.
6. Analisi densitometrica utilizzando Fiji
- Trascinare e rilasciare il file dell'immagine nella finestra di Fiji per aprirlo.
- Convertire l'immagine in scala di grigi a 8 bit (Image → Type → 8-bit).
- Se necessario, ruotare l'immagine per allineare le bande in orizzontale (Image → Transform → Rotate).
- Abilitare l'anteprima e impostare la griglia su un numero appropriato di linee (ad esempio, 20).
- Regolare l'angolo di rotazione finché le bande non sono correttamente allineate.
- Utilizzare lo strumento di selezione rettangolare per definire un'area di interesse (ROI) attorno alla prima corsia, includendo solo la banda corrispondente alla LC3-II.
NOTA: La selezione non dovrebbe essere più larga del doppio rispetto all'altezza. Utilizzare le stesse dimensioni di ROI per tutte le bande incluse nell'analisi. - Selezionare Analyze → Gels → Select First Lane.
- Spostare la stessa ROI sulla corsia successiva e posizionarla attorno alla banda corrispondente.
- Selezionare Analyze → Gels → Select Next Lane.
- Ripetere i passaggi 6.6 e 6.7 fino a quando non viene selezionata l'ultima corsia.
- Generare i profili di intensità (Analyze → Gels → Plot Lanes).
- Utilizzare lo strumento linea retta per definire la baseline di ciascun picco e quantificare l'intensità della banda utilizzando lo strumento bacchetta magica.
- Normalizzare i valori rispetto a un controllo di caricamento.
Risultati
Questo protocollo descrive il metodo del Western blot per monitorare la dinamica della LC3 in una linea cellulare di cancro al pancreas derivata da KPC in diverse condizioni sperimentali. Il protocollo genera immagini chemiluminescenti della LC3 e di un controllo di caricamento. In questo studio, l'actina è stata utilizzata come controllo di caricamento.
Vengono mostrate due applicazioni rappresentative del protocollo. Innanzitutto, cellule KPC di controllo sono state confrontate con cellule KPC trattate con gemcitabina. La gemcitabina è un agente chemioterapico precedentemente riportato per indurre l'autofagia nelle cellule del cancro al pancreas19. Figura 2A mostra un immunoblot rappresentativo per LC3, con actina utilizzata come controllo di caricamento. La quantificazione ottenuta mediante analisi densitometrica in Fiji è presentata in Figura 2B. I livelli di LC3-II sono stati normalizzati rispetto all'actina. È stato osservato un aumento significativo del 59% nei livelli di LC3-II nelle cellule trattate con gemcitabina, in accordo con l'induzione dell'autofagia.
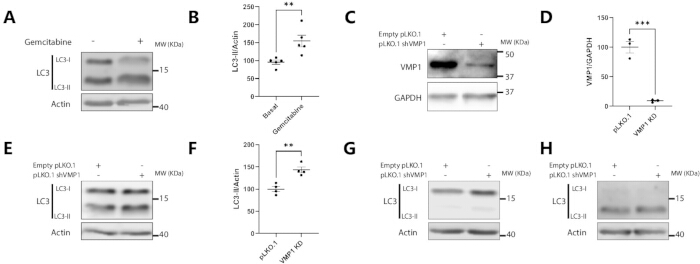
Figura 2: Analisi immunoblot di LC3 in cellule tumorali pancreatiche derivate da KPC: (A-B) effetti della gemcitabina, (C-F) silenziamento di VMP1 e (G-H) condizioni tecniche subottimali. (A–B) Livelli di LC3 in condizioni basali e dopo trattamento con gemcitabina. Le cellule tumorali pancreatiche derivate da KPC sono state trattate con 20 µM di gemcitabina per 24 ore o lasciate non trattate. I lisati cellulari sono stati immunomarcare per LC3 e actina, utilizzata come controllo di caricamento. (A) Sono mostrate immagini rappresentative di immunoblot per LC3 e actina. (B) Il grafico mostra la quantificazione della densitometria della banda LC3-II normalizzata rispetto all'actina. I dati sono espressi come media ± SEM. **p < 0,01 mediante test t di Student non appaiato. n = 4 per ogni condizione. (C–D) Convalida del silenziamento di VMP1 mediato da shRNA. Le cellule che esprimono costitutivamente un plasmide pLKO.1 vuoto (pLKO.1) o un plasmide pLKO.1 contenente uno shRNA mirato alla sequenza murina di VMP1 (VMP1 KD) sono state lisate e analizzate. (C) Immagine rappresentativa di Western blot per VMP1, con GAPDH come controllo di caricamento. (D) Quantificazione dei livelli di espressione di VMP1, che mostra una riduzione di circa il 90% nelle cellule VMP1 KD. I dati sono espressi come media ± SEM. ***p < 0,001 mediante test t di Student non appaiato. n=3 per ogni condizione. (E–F) Effetto del silenziamento di VMP1 sull'accumulo di LC3-II. Le cellule tumorali pancreatiche derivate da KPC che esprimono costitutivamente il plasmide pLKO.1 vuoto o plasmidi shVMP1 sono state lisate e immunomarcate per LC3 e actina, utilizzata come controllo di caricamento. (E) Sono mostrate immagini rappresentative di immunoblot per LC3 e actina. (F) Il grafico mostra la quantificazione della densitometria della banda LC3-II normalizzata rispetto all'actina. I dati sono espressi come media ± SEM. **p < 0,01 mediante test t di Student non appaiato. n = 5 per ogni condizione. (G-H). Esperimenti subottimali. Le cellule tumorali pancreatiche derivate da KPC che esprimono costitutivamente un plasmide pLKO.1 vuoto o un plasmide shVMP1 sono state lisate e immunomarcate per LC3 e actina, utilizzata come controllo di caricamento. (G) Immagini rappresentative di immunoblot per LC3 e actina ottenute da lisati preparati utilizzando un buffer di lisi con bassa concentrazione di detergente. (H) Immagini rappresentative di immunoblot per LC3 e actina, in cui LC3 è stata rilevata utilizzando un anticorpo primario che non garantisce reattività con il topo. Cliccare qui per visualizzare una versione ingrandita di questa figura.
È stato eseguito un secondo esperimento utilizzando cellule tumorali pancreatiche derivate da KPC che esprimono costitutivamente o un plasmide pLKO.1 vuoto (pLKO.1) o un plasmide pLKO.1 che codifica per un shRNA mirato alla sequenza murina di VMP1 (VMP1 KD). Inizialmente è stata verificata con successo la riduzione dell'espressione di VMP1. Figura 2C mostra un immunoblot rappresentativo per VMP1 con GAPDH come controllo di caricamento, e Figura 2D quantifica una riduzione del 90% dell'espressione di VMP1 nelle cellule VMP1 KD. I livelli di LC3-II sono stati quindi valutati in queste cellule. Era previsto un aumento dell'accumulo di LC3-II poiché VMP1 è necessario per la formazione dell'autofagosoma. Sebbene la riduzione di VMP1 non impedisca la conversione di LC3-I in LC3-II, essa compromette la formazione dell'autofagosoma e la successiva degradazione del carico, causando l'accumulo di LC3-II11,15. Gli immunoblot rappresentativi per LC3 e actina sono mostrati in Figura 2E, e la quantificazione del rapporto LC3-II/actina è riportata in Figura 2F. È stato osservato un aumento significativo del 43% dei livelli di LC3-II nelle cellule VMP1 KD rispetto ai controlli pLKO.1.
Questi risultati dimostrano che il protocollo consente una rilevazione e quantificazione affidabile dei livelli di LC3-II in un modello di cellule tumorali pancreatiche derivate da KPC. Tuttavia, piccole deviazioni dal protocollo possono portare a risultati subottimali.
Poiché LC3-II è la forma lipidata di LC3, un'estrazione efficiente richiede un buffer di lisi contenente una concentrazione adeguata di detergenti. Figura 2G mostra immunoblot rappresentativi di LC3 e actina ottenuti dallo stesso modello sperimentale descritto in Figura 2E–F (pLKO.1 versus VMP1 KD), ma utilizzando un buffer di lisi con bassa concentrazione di detergente (50 mM Tris-HCl, pH 7.4, 250 mM NaCl, 25 mM NaF, 2 mM EDTA e 0,1% Triton X-100). Sebbene il segnale dell'actina fosse rimasto accettabile, il segnale di LC3 risultava subottimale. Solo la banda LC3-I era chiaramente visibile, mentre la banda LC3-II era appena rilevabile e notevolmente ridotta rispetto a LC3-I.
Un'altra variabile importante nell'immunoblotting di LC3 è la selezione dell'anticorpo primario. Gli immunoblot mostrati in Figure 2A, 2B, 2E, 2F, e 2G sono stati ottenuti utilizzando un anticorpo primario che ha prodotto una rilevazione robusta di LC3 in questo sistema sperimentale. Al contrario, la Figura 2H mostra un immunoblot di LC3 generato con un differente anticorpo primario, che ha fornito risultati subottimali. In queste condizioni, LC3-I era appena rilevabile e il segnale di LC3-II era sostanzialmente più debole rispetto a quello ottenuto con l'anticorpo utilizzato negli esperimenti precedenti.
Discussione
Questo articolo descrive l'ottimizzazione tecnica e la standardizzazione di un protocollo classico di immunoblotting per LC3 in cellule tumorali pancreatiche derivate da KPC. Considerato il ruolo sempre più riconosciuto dell'autofagia e delle proteine ad essa correlate nello sviluppo e nella progressione del cancro del pancreas23, questo flusso di lavoro standardizzato fornisce un approccio affidabile per monitorare la dinamica di LC3. Il protocollo può essere applicato per valutare il comparto autofagosomiale in diverse condizioni sperimentali, tra cui chemioterapia, stress ossidativo, ipossia, stress del reticolo endoplasmatico e manipolazioni genetiche come sovraespressione genica, silenziamento, knockout o mutazione. Oltre alla valutazione della dinamica di LC3, il protocollo può essere adattato per studiare interazioni dirette o indirette tra LC3 e proteine di interesse. Ad esempio, è possibile eseguire l'immunoprecipitazione di una proteina bersaglio seguita dalla rilevazione di LC3 nell'eluito utilizzando questo flusso di lavoro. Inoltre, l'immunoblotting di LC3 può essere impiegato nell'analisi delle vescicole extracellulari nel contesto dell'autofagia secretoria, un campo emergente di crescente rilevanza nel carcinoma adenocarcinoma duttale del pancreas24,25.
Come illustrato in Figura 2G–H, diverse fasi critiche devono essere attentamente controllate poiché piccole deviazioni possono portare a risultati subottimali. Una delle considerazioni più importanti è la composizione del buffer di lisi. Per estrarre in modo efficiente LC3-II è necessario un buffer con una concentrazione relativamente elevata di detergente, come il buffer RIPA o una formulazione simile. I buffer con contenuto più basso di detergente, comunemente utilizzati nei protocolli di immunoprecipitazione per preservare le interazioni proteina-proteina, potrebbero non solubilizzare adeguatamente LC3-II. In queste condizioni, LC3-I potrebbe rimanere rilevabile, mentre LC3-II potrebbe diventare difficile o impossibile da rilevare, compromettendo l'interpretazione dei dati.
Un altro fattore critico è la selezione di un anticorpo primario validato per il sistema sperimentale in esame. La valutazione tecnica presentata qui si è limitata al confronto di due anticorpi dello stesso produttore e non costituisce una validazione completa su più cloni o fornitori. Tuttavia, i risultati illustrano come le prestazioni di un anticorpo possano variare notevolmente tra diversi sistemi sperimentali. Sebbene da questo confronto limitato non si possano trarre conclusioni definitive sulla specificità di specie, le prestazioni subottimali dell'anticorpo alternativo valutato in questo modello evidenziano l'importanza di una validazione sperimentale piuttosto che basarsi sulla previsione di reattività incrociata. Secondo la scheda tecnica del produttore, questo anticorpo è validato per campioni umani, mentre la reattività nei confronti del topo è prevista in base all'omologia di sequenza. Sebbene sia stata osservata una debole rilevazione di LC3 in cellule murine (Figura 2H), lo stesso anticorpo in precedenza non era riuscito a generare segnali rilevabili nel tessuto del pancreas di ratto e in cellule AR42J derivate da ratto (dati non mostrati). Queste osservazioni sottolineano l'importanza di validare le prestazioni dell'anticorpo all'interno del modello biologico specifico oggetto di studio.
Ulteriori parametri che richiedono un'ottimizzazione includono la composizione del gel e le condizioni di elettroforesi. Un gel risolutivo al 15% garantisce una separazione adeguata di LC3-I e LC3-II quando l'elettroforesi viene interrotta tra il momento in cui il fronte del colorante raggiunge il fondo del gel e prima che il marcatore di peso molecolare di 10 kDa migri fuori dal gel. Al contrario, gel con percentuale inferiore, come quelli al 7%, non offrono una risoluzione sufficiente. Anche le condizioni di trasferimento sono fondamentali poiché LC3 è una proteina a basso peso molecolare. Un tempo o una corrente di trasferimento insufficienti possono ridurre l'efficienza del trasferimento, mentre un tempo o una corrente eccessivi possono causare una perdita proteica attraverso la membrana. L'uso di membrane con dimensioni dei pori più grandi può ulteriormente aumentare questo rischio.
Sono accettabili diverse modifiche al protocollo. Per la raccolta delle cellule, è possibile utilizzare raschietti per cellule commerciali al posto delle punte per pipetta P200. I campioni possono essere processati immediatamente dopo la lisi anziché essere congelati, purché siano mantenuti sul ghiaccio. Possono essere utilizzati anche gel di poliacrilammide disponibili in commercio, inclusi gel gradienti 4–20%. Reagenti alternativi per il bloccaggio, come latte di grado laboratorio o BSA al 1% in TBS-T, possono sostituire la soluzione di bloccaggio qui descritta. Analogamente, possono essere utilizzati buffer alternativi per l'incubazione degli anticorpi, a condizione che l'azide di sodio sia escluso dalle soluzioni contenenti anticorpi secondari coniugati con perossidasi di rafano, poiché inibisce l'attività della perossidasi.
Il protocollo può inoltre essere adattato ad altri sistemi sperimentali, inclusi lignaggi cellulari derivati da tessuti diversi e lisati di tessuto. Tuttavia, poiché il flusso di lavoro è stato ottimizzato principalmente in cellule di carcinoma pancreatico derivate da KPC, la sua applicabilità più ampia deve essere valutata attentamente. Differenze nel tipo cellulare, nei livelli basali di autofagia, nei profili di espressione proteica e nella composizione del campione possono influenzare significativamente il rilevamento di LC3. Di conseguenza, l'adattamento a sistemi alternativi richiederà probabilmente un'ulteriore ottimizzazione, e la compatibilità degli anticorpi con la specie in esame deve essere sempre verificata.
Deve essere inoltre sottolineata una limitazione fondamentale dell'immunoblotting di LC3. L'accumulo di LC3-II da solo non è sufficiente per determinare in modo definitivo lo stato di autofagia, né per distinguere tra un aumento dell'induzione autofagica e un alterato smaltimento degli autofagosomi. Sebbene la formazione di LC3-II avvenga durante l'induzione dell'autofagia, questa viene anche degradata all'interno dei lisosomi come parte del processo autofagico. Di conseguenza, sia un'attivazione potenziata dell'autofagia sia un difetto nel flusso autofagico a valle della coniugazione di LC3 possono portare all'accumulo di LC3-II26.
Questa limitazione è illustrata dagli esperimenti mostrati nella Figura 2A, B e nella Figura 2E, F, in cui sono stati osservati livelli elevati di LC3-II in condizioni biologiche distinte. Nelle cellule trattate con gemcitabina, l'accumulo di LC3-II riflette l'induzione attiva dell'autofagia associata all'aumento dell'espressione di VMP1 e alla maggiore conversione di LC3-I in LC3-II11,19. Al contrario, la riduzione di VMP1 compromette la maturazione e la rimozione dell'autofagosoma. In queste condizioni, la lipidazione di LC3 rimane intatta, ma il degrado di LC3-II è alterato a causa di un flusso autofagico difettoso, con conseguente accumulo di LC3-II nonostante il progresso autofagico sia compromesso22. Poiché questi distinti stati biologici non possono essere differenziati unicamente tramite immunoblotting di LC3, sono necessari approcci complementari come l'analisi di SQSTM1/p62 e saggi di inibizione lisosomiale per una valutazione rigorosa del flusso autofagico26.
Quando combinata a questi approcci complementari, la immunoblotting di LC3 rimane uno dei metodi più accessibili e informativi per monitorare l'autofagia. Anche le tecniche alternative presentano limitazioni. La quantificazione delle puncta di LC3 mediante immunofluorescenza27 non riesce a distinguere in modo affidabile un aumento dell'autofagia da un flusso compromesso ed è spesso difficile da standardizzare e automatizzare. Tuttavia, l'immunofluorescenza richiede una minore quantità di materiale biologico e può quindi risultare vantaggiosa per campioni clinici limitati, come biopsie umane. Inoltre, la immunoblotting di LC3 non richiede sistemi reporter basati sulla trasfezione, evitando così artefatti associati alla sovraespressione proteica. Infine, la citometria a flusso convenzionale non dispone di risoluzione sufficiente per distinguere LC3-I da LC3-II, limitandone l'utilità nella valutazione dell'attività autofagica.
Dichiarazioni
Gli autori dichiarano di non avere conflitti di interessi.
Ringraziamenti
This work was supported by grants from the Consejo Nacional de Investigaciones Científicas y Técnicas (CONICET) [PIP 2021–2023 GI-11220200101549CO], the Agencia Nacional de Promoción de la Investigación, el Desarrollo Tecnológico y la Innovación (Agencia I+D+i) [PICT-2021-I-A-00328], the Universidad de Buenos Aires [UBACyT 2023–2025, 20020220300232BA], and the Fundación Norberto Quirno, Ciudad de Buenos Aires.
The authors gratefully acknowledge The Company of Biologists for financial support through a Traveling Fellowship awarded by Disease Models & Mechanisms. This support contributed to the work arising from the funded visit. Further information about the charity is available at https://www.biologists.com/.
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| Scanner C-DiGit Blot | LI-COR BioScience | 3600 | Utilizzato per la rivelazione chemiluminescente al Passaggio 5.6 |
| Soluzione salina fosfato tampone 10x (PBS) | Corning | 46-013-CM | Utilizzata per preparare PBS sterile 1x per il lavaggio delle cellule prima del passaggio al Passaggio 1.1. |
| 2-Mercaptoetanolo (β-mercaptoetanolo) | Sigma-Aldrich (Merck) | M3148 | Utilizzato per preparare il tampone campione Laemmli 4× per la preparazione dei campioni SDS-PAGE al Passaggio 3.8. |
| Agitatore 3D | DLAB | SK-D1807-E | Utilizzato per l'incubazione delle membrane nelle soluzioni di bloccaggio, di anticorpo primario e secondario, nonché durante i passaggi di lavaggio (Passaggi 4.6, 4.8, 4.9, 4.11, 4.12 e 4.13). |
| Piastra per colture cellulari a 6 pozzetti | SORFA | SCP-11-006 | Utilizzata per seminare le cellule al Passaggio 1.1. |
| Acrylamide | Sigma-Aldrich (Merck) | A8887 | Utilizzata per preparare il gel SDS-PAGE al 15% necessario per i Passaggi 4.2–4.5. |
| Anticorpo monoclonale anti-Gliceraldeide-3-fosfato deidrogenasi, topo, clone 6C5 | Merck Millipore | MAB374 | RRID:AB_2107445 Reattività: umana, felina, suina, murina, conigliera, ittica, canina, ratto. Utilizzato come controllo di caricamento per valutare l'efficienza di silenziamento (Figure 2C e 2D). |
| Anticorpo secondario anti-topo IgG, coniugato con HRP | Cell Signaling Technology | 7076 | RRID: AB_330924. Utilizzato per preparare la soluzione di anticorpo secondario al Passaggio 4.10. |
| Anticorpo secondario anti-coniglio IgG, coniugato con HRP | Cell Signaling Technology | 7074 | RRID: AB_2099233. Utilizzato per preparare la soluzione di anticorpo secondario al Passaggio 4.10. |
| Anticorpo anti-β-Actina (ACTB), monoclonale topo, AC-15 | Sigma-Aldrich (Merck) | A1978 | RRID:AB_476744 Reattività: ovina, carpa, felina, pollo, ratto, topo, Hirudo medicinalis, coniglio, cane, suino, umana, bovina, cavia. Utilizzato come controllo di caricamento nelle Figure 2A, 2B, 2E, 2F, 2G e 2H. |
| Blu di bromofenolo | Sigma-Aldrich (Merck) | B0126 | Utilizzato per preparare il tampone campione Laemmli 4× per la preparazione dei campioni SDS-PAGE al Passaggio 3.8. |
| Acido etilendiamminotetraacetico (EDTA) | Sigma-Aldrich (Merck) | E9884 | Utilizzato per preparare il tampone di lisi a basso contenuto di detergente (Figure 2G e 2H). |
| Siero fetale bovino | NATOCOR | Lintc-634 | Utilizzato per preparare il mezzo completo per la coltivazione cellulare (Passaggi 1 e 2). |
| Fiji | Software open-source | N/A | Software per analisi delle immagini |
| Glicerolo | Sigma-Aldrich (Merck) | G5516 | Utilizzato per preparare il tampone campione Laemmli 4× per la preparazione dei campioni SDS-PAGE al Passaggio 3.8. |
| Glicina | Sigma-Aldrich (Merck) | G7126 | Utilizzata per preparare il tampone di trasferimento al Passaggio 4.5. |
| Membrana PVDF Immun-Blot, rotolo, 0,2 µm, 26 cm x 3,3 m | Bio-Rad | 1620177 | Utilizzata per il trasferimento al Passaggio 4.5. |
| Tampone di bloccaggio Intercept (TBS) | LI-COR BioScience | 927-60001 | Utilizzato per il bloccaggio al Passaggio 4.6 e per preparare le soluzioni di anticorpo primario e secondario ai Passaggi 4.7 e 4.10. |
| Anticorpo monoclonale coniglio LC3 A/B (D3U4C) | Cell Signaling Technology | 12741 | RRID: AB_2617131 Reattività: umana, murina, conigliera. Utilizzato per preparare la soluzione di anticorpo primario al Passaggio 4.7. |
| Anticorpo monoclonale coniglio LC3B (D11) | Cell Signaling Technology | 3868S | RRID: AB_2137707 Reattività: Umana. Utilizzato come anticorpo primario LC3 nella Figura 2H. |
| Metanolo | Anedra | 6197 | Utilizzato per attivare la membrana PVDF e preparare il tampone di trasferimento al Passaggio 4.5. |
| Unità filtro siringa Millex-HV, 0,45 μm PVDF | Merck Millipore | SLHV033RS | Utilizzata per filtrare il mezzo contenente lentivirus (Passaggio 1.1). |
| Bagno a secco digitale mini | Labnet International, Inc. | D 5060075 | Utilizzato per riscaldare i campioni al Passaggio 4.1. |
| Sistema elettroforetico Mini-PROTEAN Tetra | Bio-Rad | 1658025FC | Utilizzato per SDS-PAGE e trasferimento ai Passaggi 4.2, 4.3 e 4.5. |
| MISSION shRNA targeting mouse Vmp1 (TRCN0000279038) | Sigma-Aldrich (Merck) | SHCLND-NM_029478 | Utilizzato per generare linee cellulari stabili con silenziamento di VMP1 (Passaggio 1.1). |
| N,N'-Metilen-bisacrilamide (Bis-acrilamide) | Sigma-Aldrich (Merck) | M7279 | Utilizzata per preparare il gel SDS-PAGE al 15% necessario per i Passaggi 4.2–4.5. |
| Nabigem 1g Gemcitabina | Microsules Argentina | M3060584-3 | Utilizzato per il trattamento con gemcitabina al Passaggio 2. |
| Soluzione Pen-Strep | Sartorius | 03-031-1B | Utilizzata per preparare il mezzo completo per la coltivazione cellulare (Passaggi 1 e 2). |
| Kit Pierce BCA per dosaggio proteico | Thermo Fisher Scientific | 23227 | Utilizzato per la quantificazione proteica (Passaggio 3.7). |
| Compresse Pierce inibitore di proteasi | Thermo Fisher Scientific | A32953 | Utilizzate per preparare il tampone di lisi al Passaggio 3.2. |
| Polyetilenimina HCl MAX, lineare (PEI MAX), PM 40.000 | Polysciences | 24765-1 | Utilizzata per la trasfezione con plasmidi lentivirali (Passaggio 1.1). |
| Cloruro di potassio (KCl) | Sigma-Aldrich (Merck) | P9333 | Utilizzato per preparare il PBS al Passaggio 3.1. |
| Fosfato monobasico di potassio (KH2PO4) | Sigma-Aldrich (Merck) | P5655 | Utilizzato per preparare il PBS al Passaggio 3.1. |
| Alimentatore PowerPac Basic | Bio-Rad | 1645050 | Utilizzato per SDS-PAGE e trasferimento ai Passaggi 4.2, 4.3 e 4.5. |
| Scala proteica precolorata | Genbiotech | PM201 | Utilizzata per SDS-PAGE ai Passaggi 4.2 - 4.4. |
| Puromicina (soluzione 10 mg/mL) | InvivoGen | ant-pr-1 | Utilizzata per la selezione di cellule stably transdotte (Passaggio 1.1). |
| RPMI 1640 | Genbiotech | MC2012L | Utilizzato per preparare il mezzo completo per la coltivazione cellulare (Passaggi 1 e 2). |
| Cloruro di sodio (NaCl) | Sigma-Aldrich (Merck) | S9888 | Utilizzato per preparare il PBS al Passaggio 3.1, i tamponi di lisi al Passaggio 3.2 e il TBS al Passaggio 4.9. |
| Sodio dodecilsolfato (SDS) | Sigma-Aldrich (Merck) | L3771 | Utilizzato per preparare il tampone di lisi al Passaggio 3.2 e il gel SDS-PAGE al 15% necessario per i Passaggi 4.2–4.5. |
| Fluoruro di sodio (NaF) | Sigma-Aldrich (Merck) | S7920 | Utilizzato per preparare il tampone di lisi a basso contenuto di detergente (Figure 2G e 2H). |
| Fosfato dibasico di sodio (Na2HPO4) | Sigma-Aldrich (Merck) | S9763 | Utilizzato per preparare il PBS al Passaggio 3.1. |
| Centrifuga Sorval ST 16R | Thermo Fisher Scientific | 75004380 | Utilizzata per centrifugare le cellule al Passaggio 1.1 e i lisati al Passaggio 3.5. |
| Substrato chemiluminescente SuperSignal West Pico PLUS | Thermo Fisher Scientific | 34577 | Utilizzato per la rivelazione chemiluminescente al Passaggio 5.1. |
| Cappa di sicurezza di Classe II, Tipo A2, serie Thermo Scientific 1300 A2 | Thermo Fisher Scientific | 1386 | Utilizzata per le operazioni sterili di coltura cellulare ai Passaggi 1.1, 1.3 e 2.1. |
| Incubatore Thermo Scientific BB 150 CO2 | Thermo Fisher Scientific | BB150-2TCS-L | Utilizzato per la coltivazione cellulare ai Passaggi 1.2 e 2.2. |
| Anticorpo monoclonale coniglio TMEM49/VMP1 (D1Y3E) | Cell Signaling Technology | 12929 | RRID: AB_2714018 Reattività: umana, murina, ratto. Utilizzato come anticorpo primario per verificare l'efficienza di silenziamento di VMP1 nelle Figure 2C e 2D. |
| Tris base | Sigma-Aldrich (Merck) | T1503 | Utilizzato per preparare il tampone di trasferimento al Passaggio 4.5. |
| Cloridrato di Tris (Tris-HCl) | Sigma-Aldrich (Merck) | T3253 | Utilizzato per preparare i tamponi di lisi al Passaggio 3.2, il tampone campione Laemmli 4× al Passaggio 3.8, il gel SDS-PAGE al 15% necessario per i Passaggi 4.2–4.5 e il TBS al Passaggio 4.9. |
| Triton X-100 | Sigma-Aldrich (Merck) | T8787 | Utilizzato per preparare i tamponi di lisi al Passaggio 3.2. |
| Tripsina EDTA | Gibco | 11570626 | Utilizzata per il passaggio delle cellule al Passaggio 1.1. |
Riferimenti
- Grasso D, Renna FJ, Vaccaro MI. Initial steps in mammalian autophagosome biogenesis. Front Cell Dev Biol. 2018;6:146.
- Galluzzi L, et al. Molecular definitions of autophagy and related processes. EMBO J. 2017;36(13):1811–1836.
- Wang Q, Sun Y, Li TY, Auwerx J. Mitophagy in the pathogenesis and management of disease. Cell Res. 2026;36(1):11–37.
- Debnath J, Gammoh N, Ryan KM. Autophagy and autophagy-related pathways in cancer. Nat Rev Mol Cell Biol. 2023;24(8):560–575.
- Altalbawy FMA, et al. Deciphering autophagy signaling in cancer: A paradigm shift from molecular classifications to clinical innovations. Semin Oncol. 2025;52(5):152397.
- Stoffel EM, Brand RE, Goggins M. Pancreatic cancer: Changing epidemiology and new approaches to risk assessment, early detection, and prevention. Gastroenterology. 2023;164(5):752–765.
- Kugel S, et al. SIRT6 suppresses pancreatic cancer through control of Lin28b. Cell. 2016;165(6):1401–1415.
- Hingorani SR, et al. Trp53R172H and KrasG12D cooperate to promote chromosomal instability and widely metastatic pancreatic ductal adenocarcinoma in mice. Cancer Cell. 2005;7(5):469–483.
- Molejon MI, Ropolo A, Re AL, Boggio V, Vaccaro MI. The VMP1-Beclin 1 interaction regulates autophagy induction. Sci Rep. 2013;3:1055.
- Ropolo A, et al. The pancreatitis-induced vacuole membrane protein 1 triggers autophagy in mammalian cells. J Biol Chem. 2007;282(51):37124–37133.
- Zhao YG, et al. The ER-localized transmembrane protein EPG-3/VMP1 regulates SERCA activity to control ER-isolation membrane contacts for autophagosome formation. Mol Cell. 2017;67(6):974–989.e6.
- Vanasco V, Ropolo A, Grasso D, Alvarez S, Vaccaro MI. VMP1-dependent selective mitophagy and mitochondrial fragmentation are protective cellular mechanisms in pancreatitis. Pancreatology. 2018;18(4 Suppl):S86–S87.
- Grasso D, et al. Zymophagy, a novel selective autophagy pathway mediated by VMP1-USP9x-p62, prevents pancreatic cell death. J Biol Chem. 2011;286(10):8308–8324.
- Ghanbarpour A, Valverde DP, Melia TJ, Reinisch KM. A model for a partnership of lipid transfer proteins and scramblases in membrane expansion and organelle biogenesis. Proc Natl Acad Sci U S A. 2021;118(16):e2101562118.
- Renna FJ, Gonzalez CD, Vaccaro MI. Decoding the versatile landscape of autophagic protein VMP1 in cancer: A comprehensive review across tissue types and regulatory mechanisms. Int J Mol Sci. 2024;25(7):3758.
- Lo Ré AE, et al. Novel AKT1-GLI3-VMP1 pathway mediates KRAS oncogene-induced autophagy in cancer cells. J Biol Chem. 2012;287(30):25325–25334.
- Gilabert M, et al. Novel role of VMP1 as modifier of the pancreatic tumor cell response to chemotherapeutic drugs. J Cell Physiol. 2013;228(9):1834–1843.
- Loncle C, et al. The pancreatitis-associated protein VMP1, a key regulator of inducible autophagy, promotes Kras(G12D)-mediated pancreatic cancer initiation. Cell Death Dis. 2016;7(7):e2295.
- Ropolo A, et al. A novel E2F1-EP300-VMP1 pathway mediates gemcitabine-induced autophagy in pancreatic cancer cells carrying oncogenic KRAS. Front Endocrinol (Lausanne). 2020;11:411.
- Tanida I, Ueno T, Kominami E. LC3 and autophagy. Methods Mol Biol. 2008;445:77–88.
- Kabeya Y, et al. LC3, a mammalian homologue of yeast Apg8p, is localized in autophagosome membranes after processing. EMBO J. 2000;19(21):5720–5728.
- Mizushima N, Yoshimori T. How to interpret LC3 immunoblotting. Autophagy. 2007;3(6):542–545.
- Li J, Chen X, Kang R, Zeh HJ, Klionsky DJ, Tang D. Regulation and function of autophagy in pancreatic cancer. Autophagy. 2021;17(11):3275–3296.
- Moresco P, et al. Signal peptide-independent secretion of keratin-19 by pancreatic cancer cells. Proc Natl Acad Sci U S A. 2025;122(27):e2426218122.
- Gonzalez CD, Resnik R, Vaccaro MI. Secretory autophagy and its relevance in metabolic and degenerative disease. Front Endocrinol (Lausanne). 2020;11:266.
- Klionsky DJ, et al. Guidelines for the use and interpretation of assays for monitoring autophagy (4th edition). Autophagy. 2021;17(1):1–382.
- Renna FJ, Herrera Lopez M, Manifava M, Ktistakis NT, Vaccaro MI. Evaluating autophagy levels in two different pancreatic cell models using LC3 immunofluorescence. J Vis Exp. 2023;(194):e65005. doi:10.3791/65005.
Ristampe e permessi
Questo articolo è stato pubblicato
Video in arrivo