Questo protocollo descrive procedure dettagliate per valutare la resistenza dell'intero organismo allo stress termico, allo stress ossidativo, allo stress del reticolo endoplasmatico e allo stress mitocondriale. Fornisce inoltre metodi per valutare se i neuroni svolgono un ruolo nella resistenza allo stress.
Articolo metodologico
Metodi per la Misurazione della Resistenza a Multipli Stressori in Caenorhabditis elegans
In questo articolo
Sommario
Abstract
Gli organismi sono esposti a una varietà di stress ambientali e cellulari durante la loro vita. La capacità di resistere a diversi stress è strettamente correlata alla durata della salute e alla longevità degli organismi. Caenorhabditis elegans (C. elegans) è un organismo modello ideale per la misurazione della resistenza allo stress, utile per facilitare la ricerca sui meccanismi molecolari conservati alla base della resistenza allo stress. C. elegans possiede inoltre un sistema nervoso semplificato, fondamentale per comprendere le basi neurali della resistenza allo stress. In questo lavoro presentiamo metodi per misurare la resistenza allo stress di C. elegans in quattro diverse condizioni di stress: stress termico, stress del reticolo endoplasmatico (ER), stress mitocondriale e stress ossidativo. Coorti di vermi vengono posizionate su piastre solide in agar e sottoposte a temperature elevate per lo stress termico, oppure a agar contenente diverse concentrazioni di composti che inducono stress del reticolo endoplasmatico, mitocondriale o ossidativo. Come esempio, abbiamo impostato dosi crescenti di ciascuno stress e determinato la dose ottimale per rilevare differenze nella resistenza allo stress in una linea con ablazione dei neuroni RIC rispetto alla linea selvatica. In condizioni di stress, la sopravvivenza di C. elegans viene monitorata ogni ora o ogni giorno, e vengono tracciate e confrontate curve di sopravvivenza per identificare diverse capacità di resistenza allo stress in diverse linee di C. elegans. Questi metodi forniscono un approccio riproducibile per valutare la resistenza a multipli stress in un intervallo di dosi e scale temporali in C. elegans di tipo selvatico, mutanti o linee con manipolazioni neuronali, contribuendo inoltre a svelare i meccanismi molecolari e neurali alla base di diversi stress.
Introduzione
Gli organismi sperimentano una varietà di stress ambientali durante la loro vita. La maggior parte degli agenti stressanti, tra cui calore, ipossia, radiazioni, stress ossidativo, stress osmotico e stress da patogeni, provoca disfunzioni cellulari e squilibri dell'omeostasi che attivano risposte intracellulari allo stress. Gli organismi sviluppano vie di risposta allo stress altamente conservate per far fronte a sfide e stress ambientali dinamici. Queste vie di risposta conservate includono la risposta allo shock termico (HSR)1, la risposta a proteine non correttamente ripiegate (UPR) nel reticolo endoplasmatico (ER) e nei mitocondri2, e la risposta allo stress ossidativo3. I regolatori principali delle diverse vie di risposta allo stress, solitamente fattori di trascrizione, inducono l'espressione di geni responsivi per ripristinare la proteostasi e promuovere la sopravvivenza cellulare4. Queste risposte comprendono la sintesi di chaperoni che ripiegano le proteine mal ripiegate e la rimozione delle proteine danneggiate mediante degradazione proteica4. Il mancato attivamento delle risposte allo stress porta all'accumulo di proteine danneggiate nel citoplasma o negli organelli, causando disfunzioni cellulari e tissutali. Uno squilibrio nella risposta cellulare allo stress è stato associato a diverse malattie croniche, che vanno dalla neurodegenerazione al sindrome metabolica5,6. Al contrario, l'attivazione appropriata delle vie di risposta allo stress porta a un miglioramento del periodo di buona salute e a un significativo allungamento della durata della vita7. È quindi importante studiare i meccanismi molecolari della resistenza allo stress per sfruttare la risposta protettiva allo stress ai fini del miglioramento della salute. È pertanto necessario stabilire metodi e tecniche riproducibili per quantificare con precisione la resistenza allo stress in animali vivi.
Le scoperte degli ultimi 15 anni hanno evidenziato un ruolo della segnalazione neuronale nel migliorare la resistenza allo stress in molteplici specie8. Le osservazioni iniziali hanno mostrato che la risposta allo shock termico (HSR) e la risposta allo stress del reticolo endoplasmatico (ER UPR) nei neuroni sono sufficienti ad attivare la risposta allo stress in tessuti non neuronali, stabilendo così il concetto di regolazione non autonoma cellulare della resistenza allo stress8,9,10. Da questa scoperta iniziale, crescenti evidenze hanno dimostrato che diversi percorsi di resistenza allo stress rispondono a stimoli ambientali e promuovono la resistenza allo stress attraverso la segnalazione neuronale. In particolare, l'HSR10,11, l'ER UPR12,13, la risposta allo stress mitocondriale per proteine mal ripiegate (UPRmt) 14,15 e la risposta allo stress ossidativo3 promuovono ciascuna la resistenza allo stress in modo non autonomo cellulare attraverso i neuroni. Il meccanismo di regolazione non autonoma cellulare della resistenza allo stress è conservato in organismi diversi, inclusi il moscerino della frutta D. melanogaster16,17,18,19 e i topi20,21.
Per facilitare la ricerca sul ruolo dei neuroni nella resistenza allo stress in presenza di multipli fattori di stress, presentiamo qui un protocollo sistematico per testare la resistenza a quattro tipi di stress regolati a livello neuronale: stress termico, stress del reticolo endoplasmatico, stress mitocondriale e stress ossidativo. C. elegans, un organismo modello facilmente manipolabile, è stato utilizzato per misurare la resistenza allo stress nei confronti di questi quattro fattori. L'uso di C. elegans nei saggi di resistenza allo stress consente non solo di studiare l'attivazione delle risposte allo stress a livello cellulare, ma anche a livello dell'intero organismo.
I percorsi di risposta allo stress attivati dallo stress termico, dallo stress del reticolo endoplasmatico, dallo stress mitocondriale e dallo stress ossidativo sono conservati e funzionalmente importanti in organismi diversi, inclusi gli esseri umani22,23,24,25. Lo stress termico provoca il malfunzionamento e l'aggregazione delle proteine e attiva la risposta allo shock termico, fondamentale per il mantenimento dell'omeostasi proteica26. La temperatura ambientale fisiologica di C. elegans è di 20 °C e temperature superiori a 25 °C inducono stress termico in C. elegans27. Induciamo lo stress termico a tre temperature elevate e sfidanti: 30 °C, 35 °C e 37 °C.
Il reticolo endoplasmatico è il sito principale per la sintesi e il ripiegamento delle proteine28. L'accumulo di proteine non ripiegate o malripiegate nella cavità del reticolo endoplasmatico attiva le risposte alla proteina non ripiegata per ripristinare l'omeostasi proteica29. Lo stress del reticolo endoplasmatico può essere indotto da un agente chimico, la tunicamicina, che blocca la glicosilazione N-legata e provoca l'accumulo di proteine malripiegate nella cavità del reticolo endoplasmatico30. Un aumento della resistenza allo stress da malripiegamento proteico nella cavità del reticolo endoplasmatico indica una maggiore sopravvivenza12. Esponiamo i vermi a diverse concentrazioni di tunicamicina (25–200 µg/mL) e valutiamo la loro sensibilità misurandone la sopravvivenza.
I mitocondri sono il centro metabolico cellulare e le "centrali energetiche" della cellula. Le specie reattive dell'ossigeno (ROS) e le proteine non correttamente ripiegate nei mitocondri innescano le risposte al disordine proteico mitocondriale e inducono lo stress mitocondriale31. Lo stress mitocondriale può essere indotto dall'antimicina A, un inibitore del complesso III mitocondriale che blocca il trasferimento degli elettroni e provoca la produzione di ROS32. Utilizziamo diverse concentrazioni di antimicina A (5–80 µg/mL) per identificare una dose ottimale per il saggio di resistenza allo stress mitocondriale.
Lo stress ossidativo è generalmente indotto da tossine ambientali e da radicali liberi cellulari prodotti dal metabolismo. Lo stress ossidativo provoca danni a proteine, lipidi e DNA in tutti gli organismi33. Il paraquat, un composto erbicida che trasferisce elettroni all'ossigeno generando elevate quantità di radicali superossido, è un potente induttore di stress ossidativo34. Applichiamo quattro dosi crescenti di paraquat (2,5–20 mM) e mostriamo un intervallo di sopravvivenza massima compreso tra 3 e 12 giorni in C. elegans.
Queste quattro condizioni di stress sono semplici da realizzare e consentono di ottenere risultati altamente riproducibili riguardo alla resistenza allo stress in C. elegans. I metodi per valutare la resistenza allo stress sono stati descritti in precedenza35,36,37,38,39,40. Rispetto a una revisione pubblicata in precedenza che riassumeva diversi agenti stressanti e analisi di sopravvivenza35, questo articolo stabilisce protocolli dettagliati e fattibili, suddivisi in passaggi, per eseguire saggi di stress riproducibili e coerenti. Diversi protocolli pubblicati in precedenza si sono concentrati su un singolo saggio specifico di stress, come lo shock termico36 o lo stress ossidativo38; al contrario, questo protocollo illustra tutti e quattro i diversi saggi di stress: termico, del reticolo endoplasmatico, mitocondriale e ossidativo. I protocolli per saggi di stress precedentemente descritti prevedono anche analisi finali basate su reporter fluorescenti, come reporter trascrizionali fluorescenti specifici per percorsi associati allo stress del reticolo endoplasmatico, mitocondriale e ossidativo40, oppure per la risposta allo shock termico39; al contrario, questo protocollo utilizza saggi di sopravvivenza per misurare efficacemente lo stato di salute complessivo di C. elegans. In particolare, questo protocollo presenta una titolazione delle dosi in tutti e quattro i saggi, fornendo riferimenti per l'intervallo di dose efficace selezionabile nei saggi di stress; il protocollo ottimizza la scala temporale (da ore a giorni) nei diversi saggi di stress; inoltre, viene presentato un nuovo ruolo di un neurone nel regolare molteplici risposte allo stress, come esempio per verificare se i neuroni modulano la resistenza allo stress.
Lo sviluppo di un saggio per la resistenza allo stress richiede la selezione di un agente stressante appropriato e di una metrica di valutazione affidabile. I saggi di sopravvivenza in C. elegans si sono rivelati strumenti potenti per misurare processi fisiologici, tra cui la durata della vita, la resistenza allo stress e le infezioni patologiche. Un vantaggio fondamentale dell'utilizzo di C. elegans nei saggi di sopravvivenza è che vermi sincronizzati della stessa età sono semplici da preparare e sottoporre a saggio, grazie alla loro autofecondazione, alla grande fecondità e al breve ciclo di sviluppo di tre giorni dalle uova a giovani adulti. I maschi sono rari in popolazioni naturali di C. elegans coltivati e pertanto non vengono generalmente utilizzati nei saggi di sopravvivenza, inclusi questo protocollo, e sono usati principalmente per incroci genetici35. Rispetto ad altri metodi di valutazione finale (ad esempio, reporter fluorescenti, accumulo di proteine e lipidi), i saggi di sopravvivenza sono efficaci nel misurare la salute complessiva di C. elegans e richiedono un tempo relativamente breve per essere completati, solitamente da alcune ore a diverse settimane a seconda della dose degli agenti stressanti. Utilizziamo i tassi di sopravvivenza come indicatore principale della resistenza allo stress in diverse ceppi di C. elegans. La sopravvivenza viene determinata in base alla motilità e alla risposta a una stimolazione meccanica delicata; l'assenza di risposta alla stimolazione viene utilizzata per definire la mortalità nei saggi di stress in C. elegans. I saggi di sopravvivenza in C. elegans possono essere eseguiti sia su mezzo solido che liquido con cibo batterico35. Tuttavia, il mezzo liquido non rappresenta l'habitat naturale dei vermi, e questi sono costretti a dimenarsi continuamente nella coltura liquida, il che porta a una curva di sopravvivenza più breve41. In questo caso, utilizziamo il mezzo solido per valutare gli effetti di diverse concentrazioni di agenti stressanti sulla sopravvivenza di vermi selvatici e di vermi mutanti con ablazione neuronale. Questi dati di titolazione in funzione della concentrazione possono fornire indicazioni utili ad altri ricercatori che eseguono saggi comparabili di resistenza allo stress.
Protocollo
Gli esperimenti che coinvolgevano C. elegans sono stati condotti alla Kansas State University, Manhattan, KS, USA, in conformità con le linee guida istituzionali sulla sicurezza biologica e di laboratorio. Poiché C. elegans è un organismo modello invertebrato, non è stata richiesta l'approvazione del comitato etico per gli animali vertebrati per questo studio. I dettagli di tutti i reagenti, l'equipaggiamento, il software e i ceppi utilizzati sono elencati nella Tabella dei Materiali.
1. Preparare le piastre di NGM (mezzo di crescita per nematodi) e preparare Escherichia coli OP50
- Preparare le piastre NGM
- pesare 3 g di NaCl, 17 g di Agar (in polvere) e 2,5 g di Peptone, aggiungere 900 mL di acqua deionizzata ultrapura (dd) H2O e portare a un volume finale di 1 L, quindi sterilizzare in autoclave. Raffreddare il mezzo a circa 60 °C in un bagno d'acqua a 60 °C.
- Aggiungere 1 mL di CaCl2 1 M (preparato in ddH2O e sterilizzato per filtrazione), 1 mL di colesterolo 5 mg/mL (preparato in etanolo e sterilizzato per filtrazione), 1 mL di MgSO4 1 M (preparato in ddH2O e sterilizzato per filtrazione) e 25 mL di tampone KP 1 M.
Per preparare il tampone KP, mescolare 130 mL di K2HPO4 1 M con 870 mL di KH2PO4 1 M preparati in ddH2O. Dopo aver mescolato accuratamente, regolare il pH a 6,0. Dopo la preparazione, il pH misurato è tipicamente vicino a 6,0 e non è necessario alcun ulteriore aggiustamento. L'intervallo di pH accettabile per il tampone KP è 5,8–6,2, con un valore obiettivo di pH 6,0. Verificare che il pH finale sia approssimativamente 6,0 prima dell'uso. Se necessario, regolare a pH 6,0 utilizzando K2HPO4 1 M o KH2PO4 1 M. - Mescolare accuratamente e versare il mezzo (NGM) nelle piastre (pietra di Petri). Per piastre da 60 mm, versare 10 mL di mezzo NGM per piastra; per piastre da 35 mm, versare 3 mL di mezzo NGM per piastra. Lasciare le piastre in agar NGM a temperatura ambiente (22–25 °C) su un banco piano per almeno 24 ore prima di seminare il cibo batterico.
ATTENZIONE: Durante la preparazione e il travaso dell'agar NGM fuso, utilizzare guanti resistenti al calore e dispositivi di protezione individuale (DPI) adeguati per il laboratorio per prevenire ustioni ed esposizione a liquidi caldi.
- Preparare il cibo batterico Escherichia coli OP50 per Caenorhabditis elegans
- Effettuare un’isolazione di Escherichia coli OP50 su una piastra in agar Luria-Bertani (LB) e incubare a 37 °C per tutta la notte (piastre in agar LB: aggiungere 1 g di NaCl, 1 g di triptone, 0,5 g di estratto di lievito e 1,5-2,0 g di agar in polvere a 100 mL di ddH2O, sterilizzare in autoclave per 20 minuti, raffreddare a 50-60 °C e versare il mezzo nelle piastre. Posizionare su un banco pulito e piano e lasciare asciugare).
- Innestare una singola colonia in 100 mL di mezzo liquido LB (mezzo LB: aggiungere 1 g di NaCl, 1 g di triptone e 0,5 g di estratto di lievito a 100 mL di ddH2O, sterilizzare in autoclave per 20 minuti. Raffreddare a temperatura inferiore a 37 °C prima dell'inoculo).
- Coltivare i batteri in un incubatore agitato a 37 °C fino a quando la sospensione batterica raggiunge una densità ottica a 600 nm (OD600) di circa 0,3 in una diluizione 10 volte della sospensione batterica (100 µL di sospensione batterica mescolati con 900 µL di mezzo LB). Raccogliere e conservare la sospensione batterica a 4 °C. Il cibo batterico può essere conservato fino a una settimana prima della semina su una piastra NGM40.
- Utilizzare una pipetta ripetitiva per seminare i batteri OP50 sulle piastre NGM. Seminare 200 µL per piastre in agar da 60 mm e 100 µL per piastre in agar da 35 mm. Lasciare le piastre seminate a temperatura ambiente (~22–25 °C) su un banco piano per almeno 24 ore prima dell'uso. Non lasciare le piastre a temperatura ambiente per più di 48 ore. Disporre le piastre seminate in una scatola di plastica pulita e conservarle a 4 °C.
NOTA: Se si utilizzano piastre non aerate, potrebbe essere necessario più tempo per l'essiccazione dell'OP50 seminato.
ATTENZIONE: Manipolare le colture di E. coli OP50 seguendo adeguate pratiche microbiologiche e indossare camice da laboratorio, guanti e protezione oculare. Disinfettare le superfici di lavoro e smaltire i rifiuti batterici secondo le procedure di biosicurezza istituzionali.
2. Mantenimento e sincronizzazione di C. elegans
Il flusso di lavoro di questa sezione è riassunto in Figura 1A.
- Mantenere i vermi a 20 °C su piastre NGM seminate con OP50 trasferendo gli adulti su nuove piastre NGM seminate con OP50 due volte alla settimana per evitare la fame dei vermi. Posizionare 20–40 vermi adulti gravidi su una piastra NGM fresca seminata con OP50 utilizzando un’ansa di platino, e rimuovere eventuali larve e uova trasferite insieme agli adulti gravidi dalla piastra originale. L’uso di un numero noto di vermi gravidi facilita una registrazione accurata e garantisce la rimozione completa degli stessi nel passaggio successivo (sezione 1.2).
NOTA: Un totale di 20–40 vermi gravidi è sufficiente per produrre 80–120 uova in 2 h, sulla base delle condizioni di un ceppo di tipo selvatico (N2). La deposizione delle uova è nella sua finestra ottimale quando gli adulti gravidi si trovano al primo giorno (giorno 1) dell’età adulta. Per ceppi con fertilità inferiore o superiore, regolare il numero di vermi gravidi di conseguenza. L’obiettivo di questo passaggio è ottenere un numero sufficiente di uova che si svilupperanno in vermi sincronizzati per saggi successivi di stress. - Dopo circa 2 h, rimuovere i vermi gravidi dalla piastra. Contare il numero di vermi gravidi rimossi in questo passaggio e verificare che tutti i 20–40 vermi gravidi posizionati sulla piastra siano stati rimossi.
- Incubare le piastre contenenti le uova a 20 °C fino a quando i vermi raggiungono lo stadio L4 tardivo per i saggi di stress. Sincronizzare i vermi allo stadio L4 per minimizzare la variabilità introdotta dalle differenze nell’età adulta e nello stato riproduttivo12,35,37,38,40,42,43. A 20 °C, i vermi raggiungono lo stadio L4 tardivo uniformemente sincronizzato approssimativamente 54–58 h dopo la deposizione delle uova su piastre di agar solido nel ceppo di tipo selvatico (Nostre osservazioni e 36,40).
NOTA: Per ceppi con sviluppo ritardato, regolare i tempi di sincronizzazione allo stadio L4 tardivo in base ai loro tassi di sviluppo specifici.
ATTENZIONE: Manipolare C. elegans seguendo adeguate pratiche microbiologiche e indossare camice da laboratorio e guanti per minimizzare l’esposizione a materiale biologico e prevenire contaminazioni.
3. Condizione di stress e raccolta dei dati
- Saggio di stress termico
Il flusso di lavoro di questa sezione è riassunto in Figura 1B.- Sincronizzare i vermi allo stadio L4 avanzato (sezione 2) e mantenerli a 20 °C. Trasferire i vermi sincronizzati allo stadio L4 su piastre NGM da 35 mm seminate con OP50 (sezione 1), utilizzando 4 piastre per gruppo come repliche tecniche, con 30–35 vermi per piastra. Fare riferimento alla sezione 4 per l’impostazione delle repliche biologiche.
- Posizionare le piastre con i vermi allo stadio L4 avanzato in un incubatore a 30, 35 o 37 °C. Assicurarsi che l’incubatore raggiunga la temperatura impostata prima di inserire le piastre con i vermi da sottoporre al saggio. La sopravvivenza media dei vermi di tipo selvatico a 30, 35 o 37 °C varia da circa 4 h a 3 giorni (Figura 2B–D) rispetto a una sopravvivenza media non stressata fisiologicamente di circa 20 giorni (Figura 2A).
FASE CRITICA: Posizionare tutte le piastre del saggio con l’agar rivolto verso il basso come singolo strato nell’incubatore a 35 °C per consentire un’equilibratura termica rapida e uniforme.
NOTA: Durante i saggi di stress termico a 30, 35 o 37 °C, la maggior parte dei vermi non depone uova. Nei rari casi in cui vengono deposte uova, nessuna di esse schiude. Pertanto, non è necessario trasferire i vermi su piastre fresche. - Registrare il numero di vermi morti in ogni punto temporale per ciascuna piastra di replica tecnica e annotare il numero su un foglio di raccolta dati. La sopravvivenza dei vermi viene valutata ogni ora in condizioni di stress termico a 35 °C o 37 °C e una volta al giorno in condizioni di stress termico a 30 °C. La valutazione viene effettuata al microscopio stereoscopico a temperatura ambiente. Durante la valutazione, rimuovere dall’incubatore solo la piastra da esaminare; tutte le altre piastre devono rimanere alla temperatura di stress termico prestabilita per minimizzare l’interruzione dell’esposizione allo stress termico. Questa pratica aiuta a mantenere condizioni sperimentali costanti per tutti i campioni.
FASE CRITICA: Per minimizzare l’interruzione dell’esposizione allo stress termico, mantenere ciascuna piastra fuori dall’incubatore per non più di 3 minuti durante ogni sessione di valutazione. A seconda della sopravvivenza dei vermi in diversi punti temporali durante il saggio di stress, la valutazione di una piastra a temperatura ambiente richiede tipicamente da 30 secondi a 3 minuti. L’ordine di valutazione è importante considerando il tempo impiegato per la valutazione manuale. Si raccomanda di valutare una replica tecnica per ogni condizione fino al completamento di tutte le repliche tecniche in tutte le condizioni. Ad esempio, in tre condizioni/gruppi (A, B e C) con 4 piastre di replica tecnica, organizzare l’ordine di valutazione come: A1, B1, C1 → A2, B2, C2 → A3, B3, C3 → A4, B4, C4. - Valutare la sopravvivenza dei vermi in base alla presenza o assenza di una risposta motoria a una leggera stimolazione fisica. I vermi che si muovono attivamente vengono considerati vivi e non richiedono stimolazione fisica. Per i vermi che non mostrano movimento spontaneo, stimolarli delicatamente toccando due volte la regione posteriore del corpo con un ago di platino. L’assenza di risposta motoria viene registrata come morte e il verme morto viene rimosso dalla piastra dopo la registrazione. Un’osservazione di circa 2 secondi dopo ogni tocco è sufficiente per determinare la presenza di una risposta motoria. Si raccomanda l’uso di un contatore manuale per registrare il numero di vermi vivi e morti durante il conteggio e ridurre gli errori di conteggio. Per assicurarsi che tutti i vermi vengano contati una sola volta e non ripetutamente, posizionare un foglio di plastica trasparente a griglia sotto la piastra o disegnare una griglia sul fondo della piastra per dividere la superficie in sezioni a griglia per il conteggio.
NOTA: Riposizionare immediatamente le piastre nell’incubatore con le condizioni di stress termico dopo la valutazione. - Monitorare la sopravvivenza dei vermi a intervalli regolari fino a quando tutti gli animali sono morti o censurati secondo criteri predeterminati. Raccogliere i dati di sopravvivenza registrati e utilizzarli per generare curve di sopravvivenza per l’analisi successiva.
- Saggio di stress del reticolo endoplasmatico
Il flusso di lavoro di questa sezione è riassunto in Figura 1C.- Preparare le piastre per il saggio di stress del reticolo endoplasmatico. Aggiungere la soluzione stock di tunicamicina (10 mg/mL in dimetilsulfossido (DMSO), conservata a –20 °C) nel mezzo NGM liquido (dalla sezione 1.1.2) fino a una concentrazione finale di 25, 50, 100 o 200 µg/mL. Ad esempio, per 1 L di mezzo per saggio di stress del reticolo endoplasmatico, aggiungere 2,5, 5, 10 o 20 mL di soluzione stock di tunicamicina (10 mg/mL in DMSO) per ottenere una concentrazione finale di 25, 50, 100 o 200 µg/mL di tunicamicina nelle piastre di mezzo. Se nel saggio è incluso un controllo non trattato, aggiungere la stessa quantità di DMSO (2,5, 5, 10 o 20 mL) al mezzo di controllo corrispondente.
FASE CRITICA: Raffreddare il mezzo NGM autoclavato a circa 55 °C sotto agitazione e aggiungere la tunicamicina alla concentrazione finale desiderata. Mescolare accuratamente prima di versare 3 mL di mezzo NGM con tunicamicina in ciascuna piastra da 35 mm. Seminare ciascuna piastra in agar da 35 mm con 100 µL di batteri OP50 (sezione 1.2). Le piastre NGM seminate con OP50 e contenenti tunicamicina possono essere conservate a 4 °C fino a una settimana prima dell’uso.
ATTENZIONE: La tunicamicina è pericolosa e deve essere manipolata in una cappa chimica indossando camice da laboratorio, guanti e protezione oculare. Evitare inalazione e contatto con pelle o occhi. - Sincronizzare i vermi allo stadio L4 avanzato (sezione 2) e mantenerli a 20 °C. Trasferire i vermi sincronizzati allo stadio L4 su piastre NGM da 35 mm seminate con OP50 e contenenti tunicamicina, utilizzando 4 piastre per gruppo come repliche tecniche, con 30–35 vermi per piastra. Fare riferimento alla sezione 4 per l’impostazione delle repliche biologiche.
- Incubare tutte le piastre a 20 °C. Registrare il numero di vermi morti ogni giorno. La sopravvivenza media dei vermi di tipo selvatico in presenza di 25, 50, 100 o 200 µg/mL di tunicamicina varia da circa 8 a 11 giorni (Figura 2E,F) rispetto a una sopravvivenza media non stressata fisiologicamente di circa 20 giorni (Figura 2A).
NOTA: Nel saggio di stress del reticolo endoplasmatico indotto da tunicamicina, vengono deposte uova, ma queste non schiudono sulle piastre in agar contenenti tunicamicina. Pertanto, non è necessario trasferire i vermi su piastre fresche. - Registrare ogni giorno il numero di vermi morti su ciascuna piastra di replica tecnica e annotare il numero su un foglio di raccolta dati. La valutazione viene effettuata manualmente al microscopio stereoscopico sul banco a temperatura ambiente. I vermi che si muovono attivamente vengono considerati vivi e non richiedono stimolazione fisica. Per i vermi che non mostrano movimento spontaneo, stimolarli delicatamente toccando due volte la regione posteriore del corpo con un ago di platino. L’assenza di risposta viene registrata come morte e il verme morto viene rimosso dalla piastra dopo la registrazione. Si raccomanda l’uso di un contatore manuale per garantire un conteggio accurato. Per assicurarsi che tutti i vermi vengano contati una sola volta e non ripetutamente, posizionare un foglio di plastica trasparente a griglia sotto la piastra o disegnare una griglia sul fondo della piastra per dividere la superficie in sezioni a griglia per il conteggio.
NOTA: Riposizionare immediatamente le piastre nell’incubatore dopo la valutazione. Mantenere i vermi nell’incubatore per circa 24 ore prima della successiva valutazione. - Monitorare la sopravvivenza dei vermi ogni giorno fino a quando tutti gli animali sono morti o censurati secondo criteri predeterminati. Raccogliere i dati di sopravvivenza registrati e utilizzarli per generare curve di sopravvivenza per l’analisi successiva.
- Preparare le piastre per il saggio di stress del reticolo endoplasmatico. Aggiungere la soluzione stock di tunicamicina (10 mg/mL in dimetilsulfossido (DMSO), conservata a –20 °C) nel mezzo NGM liquido (dalla sezione 1.1.2) fino a una concentrazione finale di 25, 50, 100 o 200 µg/mL. Ad esempio, per 1 L di mezzo per saggio di stress del reticolo endoplasmatico, aggiungere 2,5, 5, 10 o 20 mL di soluzione stock di tunicamicina (10 mg/mL in DMSO) per ottenere una concentrazione finale di 25, 50, 100 o 200 µg/mL di tunicamicina nelle piastre di mezzo. Se nel saggio è incluso un controllo non trattato, aggiungere la stessa quantità di DMSO (2,5, 5, 10 o 20 mL) al mezzo di controllo corrispondente.
- Saggio di stress mitocondriale
Il flusso di lavoro di questa sezione è riassunto in Figura 1D.- Preparare le piastre per il saggio di stress mitocondriale. Aggiungere la soluzione stock di antimicina A (5 mg/mL in DMSO, conservata a –20 °C) nel mezzo NGM liquido (dalla sezione 1.1.2) fino a una concentrazione finale di 5, 10, 20, 40 o 80 µg/mL. Ad esempio, per 1 L di mezzo per saggio di stress mitocondriale, aggiungere 1, 2, 4, 8 o 16 mL di soluzione stock di antimicina A (5 mg/mL in DMSO) per ottenere una concentrazione finale di 5, 10, 20, 40 o 80 µg/mL di antimicina A nelle piastre di mezzo. Se nel saggio è incluso un controllo non trattato, aggiungere la stessa quantità di DMSO (1, 2, 4, 8 o 16 mL) al mezzo di controllo corrispondente.
FASE CRITICA: Raffreddare il mezzo NGM autoclavato a circa 55 °C sotto agitazione e aggiungere l’antimicina A alla concentrazione finale desiderata. Mescolare accuratamente prima di versare 3 mL di mezzo NGM con antimicina A in ciascuna piastra da 35 mm. Seminare ciascuna piastra in agar da 35 mm con 100 µL di batteri OP50 (sezione 1.2). Le piastre NGM seminate con OP50 e contenenti antimicina A possono essere conservate a 4 °C fino a una settimana prima dell’uso.
ATTENZIONE: L’antimicina A è pericolosa e deve essere manipolata in una cappa chimica indossando camice da laboratorio, guanti adeguati e protezione oculare. Evitare inalazione e contatto con pelle o occhi. - Sincronizzare i vermi allo stadio L4 avanzato (sezione 2) e mantenerli a 20 °C. Trasferire i vermi sincronizzati allo stadio L4 su piastre NGM da 35 mm seminate con OP50 e contenenti antimicina A, utilizzando 4 piastre per gruppo come repliche tecniche, con 30–35 vermi per piastra. Fare riferimento alla sezione 4 per l’impostazione delle repliche biologiche.
- Incubare tutte le piastre a 20 °C. Registrare il numero di vermi morti ogni giorno.
FASE CRITICA: A causa di problemi legati alla schiusa delle uova e allo sviluppo delle larve, trasferire i vermi su piastre fresche ogni due giorni durante i primi 10 giorni. Interrompere i trasferimenti quando non si osservano ulteriori larve o uova nuove sulla piastra. Tutte le repliche tecniche devono subire lo stesso numero di trasferimenti. Ad esempio, quando solo una piastra richiede il trasferimento, tutte le piastre in questa replica biologica devono essere trasferite contemporaneamente. La sopravvivenza media dei vermi di tipo selvatico in presenza di 5, 10, 20, 40 o 80 µg/mL di antimicina A varia da circa 1,5 a 5 giorni (Figura 2G,H) rispetto a una sopravvivenza media non stressata fisiologicamente di circa 20 giorni (Figura 2A).
NOTA: Il saggio di stress mitocondriale indotto da antimicina A richiede il trasferimento dei vermi su piastre fresche ogni due giorni durante i primi 10 giorni. I trasferimenti vengono effettuati per prevenire l’affollamento e la fame e per distinguere i vermi sperimentali dalla loro prole. - Registrare ogni giorno il numero di vermi morti su ciascuna piastra di replica tecnica e annotare il numero su un foglio di raccolta dati. La valutazione viene effettuata manualmente al microscopio stereoscopico sul banco a temperatura ambiente. I vermi che si muovono attivamente vengono considerati vivi e non richiedono stimolazione fisica. Per i vermi che non mostrano movimento spontaneo, stimolarli delicatamente toccando due volte la regione posteriore del corpo con un ago di platino. L’assenza di risposta viene registrata come morte e il verme morto viene rimosso dalla piastra dopo la registrazione. Si raccomanda l’uso di un contatore manuale per garantire un conteggio accurato. Per assicurarsi che tutti i vermi vengano contati una sola volta e non ripetutamente, posizionare un foglio di plastica trasparente a griglia sotto la piastra o disegnare una griglia sul fondo della piastra per dividere la superficie in sezioni a griglia per il conteggio.
NOTA: Riposizionare immediatamente i vermi nell’incubatore dopo la valutazione. Mantenere i vermi nell’incubatore per circa 24 ore prima della successiva valutazione. - Monitorare la sopravvivenza dei vermi ogni giorno fino a quando tutti gli animali sono morti o censurati secondo criteri predeterminati. Raccogliere i dati di sopravvivenza registrati e utilizzarli per generare curve di sopravvivenza per l’analisi successiva.
- Preparare le piastre per il saggio di stress mitocondriale. Aggiungere la soluzione stock di antimicina A (5 mg/mL in DMSO, conservata a –20 °C) nel mezzo NGM liquido (dalla sezione 1.1.2) fino a una concentrazione finale di 5, 10, 20, 40 o 80 µg/mL. Ad esempio, per 1 L di mezzo per saggio di stress mitocondriale, aggiungere 1, 2, 4, 8 o 16 mL di soluzione stock di antimicina A (5 mg/mL in DMSO) per ottenere una concentrazione finale di 5, 10, 20, 40 o 80 µg/mL di antimicina A nelle piastre di mezzo. Se nel saggio è incluso un controllo non trattato, aggiungere la stessa quantità di DMSO (1, 2, 4, 8 o 16 mL) al mezzo di controllo corrispondente.
- Saggio di stress ossidativo
Il flusso di lavoro di questa sezione è riassunto in Figura 1E.- Preparare le piastre per il saggio di stress ossidativo. Aggiungere la soluzione stock di paraquat (0,5 M in ddH2O, conservata a –20 °C) nel mezzo NGM liquido (dalla sezione 1.1.2) fino a una concentrazione finale di 2,5, 5, 10 o 20 mM.
FASE CRITICA: Raffreddare il mezzo NGM autoclavato a circa 55 °C sotto agitazione e aggiungere il paraquat alla concentrazione finale desiderata. Mescolare accuratamente prima di versare 3 mL di mezzo NGM con paraquat in piastre da 35 mm. Seminare ciascuna piastra in agar da 35 mm con 100 µL di batteri OP50 (sezione 1.2). I batteri OP50 possono essere seminati 2–3 giorni prima dell’esecuzione del saggio. Le piastre NGM seminate con OP50 e contenenti paraquat possono essere conservate a 4 °C fino a una settimana prima dell’uso.
ATTENZIONE: Il paraquat è altamente tossico e deve essere manipolato in una cappa chimica con guanti adeguati, camice da laboratorio e protezione oculare. Evitare inalazione, ingestione e contatto con pelle o occhi. - Sincronizzare i vermi allo stadio L4 avanzato (sezione 2) e mantenerli a 20 °C. Trasferire i vermi sincronizzati allo stadio L4 su piastre NGM da 35 mm seminate con OP50 e contenenti paraquat, utilizzando 4 piastre per gruppo come repliche tecniche, con 30–35 vermi per piastra. Fare riferimento alla sezione 4 per l’impostazione delle repliche biologiche.
- Incubare tutte le piastre a 20 °C. Registrare il numero di vermi morti ogni giorno. La sopravvivenza media dei vermi di tipo selvatico in presenza di 2,5, 5, 10 o 20 mM di paraquat varia da circa 2,5 a 5 giorni (Figura 2I,J), rispetto a una sopravvivenza media non stressata fisiologicamente di circa 20 giorni (Figura 2A).
NOTA: Nel saggio di stress ossidativo indotto da paraquat, non è necessario trasferire i vermi su piastre fresche. Un numero limitato di larve è presente sulle piastre con paraquat e queste rimangono arrestate allo stadio di sviluppo pari o precedente allo stadio L2 per tutta la durata del saggio. Non interferiscono con l’identificazione dei cohort sincronizzati né causano fame. Considerando lo stress fisico che potrebbe essere introdotto dal trasferimento dei vermi, non si raccomanda di trasferirli durante il saggio. - Registrare ogni giorno il numero di vermi morti su ciascuna piastra di replica tecnica e annotare il numero su un foglio di raccolta dati. La valutazione viene effettuata manualmente al microscopio stereoscopico sul banco a temperatura ambiente. I vermi che si muovono attivamente vengono considerati vivi e non richiedono stimolazione fisica. Per i vermi che non mostrano movimento spontaneo, stimolarli delicatamente toccando due volte la regione posteriore del corpo con un ago di platino. L’assenza di risposta viene registrata come morte e il verme morto viene rimosso dalla piastra dopo la registrazione. Si raccomanda l’uso di un contatore manuale per garantire un conteggio accurato. Per assicurarsi che tutti i vermi vengano contati una sola volta e non ripetutamente, posizionare un foglio di plastica trasparente a griglia sotto la piastra o disegnare una griglia sul fondo della piastra per dividere la superficie in sezioni a griglia per il conteggio.
NOTA: Riposizionare immediatamente i vermi nell’incubatore dopo la valutazione. Mantenere i vermi nell’incubatore per circa 24 ore prima della successiva valutazione. - Monitorare la sopravvivenza dei vermi ogni giorno fino a quando tutti gli animali sono morti o censurati secondo criteri predeterminati. Raccogliere i dati di sopravvivenza registrati e utilizzarli per generare curve di sopravvivenza per l’analisi successiva.
- Preparare le piastre per il saggio di stress ossidativo. Aggiungere la soluzione stock di paraquat (0,5 M in ddH2O, conservata a –20 °C) nel mezzo NGM liquido (dalla sezione 1.1.2) fino a una concentrazione finale di 2,5, 5, 10 o 20 mM.
4. Analisi dei dati
- Registrare il numero di vermi morti su ciascuna piastra di replica tecnica a ogni punto temporale. I dati sulla mortalità vengono registrati in un foglio di valutazione organizzato per punto temporale (ore o giorni dopo l'inizio della condizione di stress), gruppo sperimentale (ceppi diversi o condizioni di trattamento diverse) e replica tecnica (piastra 1, 2, 3 o 4). A ogni intervallo di valutazione (orario o giornaliero, a seconda del saggio), il numero di vermi morti viene registrato separatamente per ciascuna piastra e la mortalità cumulativa viene monitorata fino al completamento del saggio.
- Inserire i dati sulla mortalità relativi a ciascun punto temporale di valutazione in OASIS 2 (applicazione online per l'analisi della sopravvivenza 2)44 per la generazione delle curve di sopravvivenza di Kaplan-Meier e l'analisi statistica log-rank. In alternativa, la mortalità può essere calcolata come percentuale di vermi morti in singoli punti temporali e confrontata tra i gruppi mediante un test t di Student a due code non appaiato t-test (per due gruppi) o ANOVA a un fattore seguita dal test di confronti multipli di Tukey (per tre o più gruppi).
NOTA: I vermi che presentano rottura o schiusa matricida (bagging) vengono considerati morti al momento dell'osservazione, al fine di riflettere la sopravvivenza complessiva. I vermi rotti e quelli con schiusa matricida sono stati inclusi nelle curve di sopravvivenza riportate nei risultati rappresentativi riportati di seguito. Il numero di vermi censurati provenienti da diverse condizioni è stato registrato in Tabella supplementare 1. I vermi che escono dalla piastra dell'assay, si disseccano sulla parete della piastra o risultano mancanti durante la valutazione sono considerati osservazioni censurate ed esclusi dall'analisi successiva della sopravvivenza. Gli animali che mostrano un movimento compromesso ma rispondono a un tocco delicato vengono registrati come vivi. I vermi che presentano difetti nella deposizione delle uova prima dell'inizio dell'assay sono esclusi dall'analisi della sopravvivenza. - Eseguire tutti i saggi di stress in almeno tre replicati biologici indipendenti condotti in giorni diversi. Ogni replicato biologico comprende quattro piastre di replicazione tecnica contenenti vermi. I dati provenienti dai replicati tecnici all'interno di un replicato biologico vengono raggruppati per generare una singola curva di sopravvivenza. I replicati biologici indipendenti vengono analizzati separatamente e presentati come dataset individuali, anziché essere combinati. Ogni replicato biologico viene eseguito utilizzando mezzi appositamente preparati e nuovi lotti di composti induttori di stress. I protocolli descritti sopra rappresentano le fasi necessarie per ottenere un singolo replicato biologico per ciascun saggio di stress. I maschi sono esclusi e nel presente protocollo vengono inclusi e analizzati soltanto gli ermafroditi.
NOTA: L'umidità degli incubatori in questo protocollo non è controllata, mentre la temperatura degli incubatori è rigorosamente mantenuta alla temperatura sperimentale. Gli esperimenti descritti in questo lavoro non sono stati eseguiti in condizioni di cecità, e l'operatore era a conoscenza del genotipo e delle condizioni di trattamento durante la valutazione. Si raccomanda, ove possibile, l'adozione di condizioni di cecità riguardo al genotipo e alle condizioni di trattamento al fine di minimizzare potenziali bias nella valutazione.
Risultati
Utilizzando i protocolli descritti in precedenza, abbiamo innanzitutto impiegato vermi di tipo selvatico (WT) N2 per esaminare la sopravvivenza dei vermi sotto una serie di dosi crescenti di quattro diversi stressori: stress termico, dello stress reticolo endoplasmatico, mitocondriale e ossidativo. Successivamente, abbiamo utilizzato una linea con ablazione neuronale per verificare il ruolo dell'interneurone RIC nella resistenza allo stress, in confronto ai vermi WT.
Titolazione della dose di stress termico e confronto della resistenza allo stress termico nella linea con ablazione di RIC
Alla temperatura fisiologica di 20 °C, i vermi di tipo selvatico (WT) presentano una longevità media di 20,67 giorni (Figura 2A). Seguendo i passaggi del saggio di stress termico descritti nella sezione 3.1, abbiamo misurato la sopravvivenza dei vermi WT a temperature elevate di 30, 35 e 37 °C come dosi crescenti di stress termico. I dati hanno mostrato che i vermi WT presentano una longevità media di 3,11 giorni a 30 °C (Figura 2B); e una sopravvivenza media di 5,36 h a 35 °C e di 4,89 h a 37 °C (Figura 2C). Questi risultati indicano una riduzione significativa della sopravvivenza a temperature più elevate. Le analisi statistiche e i valori di P sono riportate in dettaglio nella Tabella Supplementare 2 e nelle legende delle figure. Questi dati forniscono informazioni affidabili ai ricercatori per scegliere una temperatura di stress e una scala temporale ottimali nella progettazione di un saggio di stress termico. I ricercatori possono utilizzare 30 °C per esaminare la sopravvivenza dei vermi nell'arco di diversi giorni, mentre possono impiegare 35 °C o 37 °C per ottenere una valutazione più rapida della sopravvivenza dei vermi entro poche ore.
Abbiamo successivamente utilizzato 35 °C come condizione di stress termico per valutare l'effetto dell'ablazione dei neuroni RIC sulla sopravvivenza rispetto agli animali WT. Questa temperatura induce un livello intermedio di stress termico, evitando la gravità estrema di 37 °C pur producendo una risposta più marcata rispetto a 30 °C, e consente di ottenere un saggio completo di sopravvivenza in circa 12 h.
I neuroni RIC sono una coppia di interneuroni octopaminergici localizzati nella regione cefalica di C. elegans9,10. La linea con ablazione dei neuroni RIC è stata generata esprimendo il gene della caspasi-3 sotto il controllo del promotore del gene tbh-1 ed è stata utilizzata in precedenti studi45. In breve, il promotore tbh-1 è stato inserito nei plasmidi donatori mec-18p::caspase-3 (p12)::nz e mec-18p cz::caspase-3 (p17), sostituendo così il promotore mec-18. Tre costrutti, tbh-1p::caspase-3(p12)::nz (20 ng/µL), tbh-1p::cz::caspase-3(p17) (20 ng/µL) e tbh-1p::GFP (20 ng/µL, come marcatore dei neuroni RIC per verificare l’ablazione), sono stati co-iniettati insieme al marcatore fluorescente di co-iniezione myo-3p::GFP (5 ng/µL) nella linea selvatica N2 per generare ceppi con ablazione genetica dei neuroni RIC. Tre linee ottenute da iniezioni indipendenti sono state mantenute come ceppo con ablazione dei neuroni RIC. Le linee transgeniche sono state mantenute selezionando i vermi che esprimevano il marcatore fluorescente myo-3p::GFP. I risultati di ciascun saggio di stress sono stati confermati utilizzando due o tre linee indipendenti. L’ablazione riuscita dei neuroni RIC è stata verificata dall’assenza di fluorescenza di tbh-1p::GFP nel ceppo con ablazione dei neuroni RIC, mentre l’espressione di GFP è stata osservata nei neuroni RIC del ceppo di controllo reporter tbh-1p::GFP (Supplementary Figure 1).
Utilizzando i passaggi del saggio di stress termico presentati nella sezione 3.1, abbiamo esaminato la sopravvivenza di entrambe le ceppi WT e con ablazione dei neuroni RIC in condizioni di stress termico a 35 °C (Figura 2D). Utilizzando i passaggi di analisi dei dati presentati nelle sezioni 4.1–4.3, i risultati hanno mostrato che non è stata riscontrata alcuna differenza significativa tra il ceppo con ablazione dei neuroni RIC e il gruppo di controllo wild-type N2 in condizioni di stress termico a 35 °C (Figura 2D).
Tutti i risultati rappresentativi ottenuti dai saggi di stress termico sono stati eseguiti con tre replicati biologici indipendenti condotti in giorni diversi (Supplementary Figure 2). Il numero di animali (valore di n indicato nelle legende delle figure) che contribuisce alla curva di sopravvivenza mostrata nei risultati rappresentativi e nelle figure supplementari corrisponde al numero totale proveniente dai quattro replicati tecnici all'interno di un singolo replicato biologico.
Titolazione del dosaggio dello stress del reticolo endoplasmatico e confronto della resistenza allo stress del reticolo endoplasmatico nella linea con ablazione di RIC
Utilizzando i passaggi del saggio per lo stress del reticolo endoplasmatico descritti nella sezione 3.2, abbiamo misurato la sopravvivenza del tipo selvatico a 25, 50, 100 o 200 µg/mL di tunicamicina come dosi crescenti di stress del reticolo endoplasmatico (Figura 2E). Rispetto a una sopravvivenza media fisiologica non stressata di circa 20 giorni (Figura 2A), la sopravvivenza media dei vermi di tipo selvatico è di 10,74 giorni a 25 µg/mL, 9,13 giorni a 50 µg/mL, 9,3 giorni a 100 µg/mL e 8,93 giorni a 200 µg/mL di tunicamicina (Figura 2E). L'aumento della dose di tunicamicina non ha modificato significativamente la sopravvivenza a questi dosaggi. Le analisi statistiche e i valori P sono riportate in dettaglio nella Tabella Supplementare 2 e nelle legende delle figure. Questi dati forniscono informazioni affidabili ai ricercatori per scegliere un dosaggio ottimale di tunicamicina in un saggio per lo stress del reticolo endoplasmatico.
Successivamente abbiamo utilizzato 50 µg/mL di tunicamicina, una dose intermedia tra quelle testate, come condizione di stress del reticolo endoplasmatico per valutare l'effetto dell'ablazione dei neuroni RIC sulla sopravvivenza rispetto agli animali WT. Utilizzando i passaggi del saggio di stress del reticolo endoplasmatico descritti nella sezione 3.2, abbiamo esaminato la sopravvivenza sia di ceppi WT che di ceppi con ablazione dei neuroni RIC in condizioni di stress del reticolo endoplasmatico indotto da 50 µg/mL di tunicamicina (Figura 2F). Applicando i passaggi di analisi dei dati presentati nelle sezioni da 4.1 a 4.3, la curva di sopravvivenza del ceppo con ablazione dei neuroni RIC ha mostrato uno spostamento significativo verso destra rispetto al controllo WT N2, indicando una sopravvivenza prolungata in condizioni di stress del reticolo endoplasmatico. Questo risultato suggerisce che l'ablazione dei neuroni RIC aumenta la resistenza allo stress del reticolo endoplasmatico (Figura 2F).
Tutti i risultati rappresentativi ottenuti dai saggi di stress del reticolo endoplasmatico sono stati eseguiti con tre replicati biologici indipendenti effettuati in giorni diversi (Supplementary Figure 3). Il numero di animali (valore di n indicato nelle legende delle figure) che contribuisce alla curva di sopravvivenza mostrata nei risultati rappresentativi e nelle figure supplementari corrisponde al numero combinato proveniente dai quattro replicati tecnici all'interno di un singolo replicato biologico.
Titolazione del dosaggio dello stress mitocondriale e confronto della resistenza allo stress mitocondriale nella linea con ablazione di RIC
Utilizzando i passaggi del saggio di stress mitocondriale descritti nella sezione 3.3, abbiamo misurato la sopravvivenza del tipo selvatico (WT) in presenza di 5, 10, 20, 40 o 80 µg/mL di antimicina A come dosi crescenti di stress mitocondriale (Figura 2G). Le curve di sopravvivenza dei vermi WT hanno mostrato variazioni significative in modo dose-dipendente. Rispetto a una sopravvivenza media non stressata fisiologicamente di circa 20 giorni (Figura 2A), la sopravvivenza media dei vermi di tipo selvatico è di 4,96 giorni a 5 µg/mL, 3,77 giorni a 10 µg/mL, 2,68 giorni a 20 µg/mL, 1,65 giorni a 40 µg/mL e 1,4 giorni a 80 µg/mL di antimicina A (Figura 2G). Le analisi statistiche e i valori di P sono riportati in dettaglio nella Tabella Supplementare 2 e nelle legende delle figure. Questi dati forniscono informazioni affidabili ai ricercatori per scegliere un dosaggio ottimale di antimicina A e una scala temporale adeguata nella progettazione di un saggio di stress mitocondriale. I ricercatori possono scegliere 5 µg/mL per valutare la sopravvivenza dei vermi per circa 10 giorni oppure utilizzare concentrazioni più elevate di antimicina A per ottenere risultati sulla sopravvivenza in pochi giorni. Si noti che concentrazioni più elevate accelerano la mortalità, mentre concentrazioni più basse producono un declino più graduale della sopravvivenza, consentendo di distinguere più facilmente le differenze sottili tra le linee.
Successivamente abbiamo utilizzato 5 µg/mL di antimicina A, che ha prodotto un calo più graduale della sopravvivenza tra le dosi testate, come condizione di stress mitocondriale per valutare l'effetto dell'ablazione dei neuroni RIC sulla sopravvivenza rispetto agli animali WT. Utilizzando i passaggi del saggio di stress mitocondriale descritti nella sezione 3.3, abbiamo esaminato la sopravvivenza sia di ceppi WT che di ceppi con ablazione dei neuroni RIC in condizioni di stress mitocondriale indotto da 5 µg/mL di antimicina A (Figura 2H). Applicando i passaggi di analisi dei dati presentati nelle sezioni 4.1–4.3, la curva di sopravvivenza del ceppo con ablazione dei neuroni RIC ha mostrato uno spostamento significativo verso destra rispetto al controllo WT N2, indicando una sopravvivenza prolungata in condizioni di stress mitocondriale. Questo risultato suggerisce che l'ablazione dei neuroni RIC aumenta la resistenza allo stress mitocondriale (Figura 2H).
Tutti i risultati rappresentativi ottenuti dai saggi di stress mitocondriale sono stati eseguiti con tre replicati biologici indipendenti effettuati in giorni diversi (Figura supplementare 4). Il numero di animali (valore di n indicato nelle legende delle figure) che contribuisce alla curva di sopravvivenza mostrata nei risultati rappresentativi e nelle figure supplementari corrisponde al numero totale proveniente dai quattro replicati tecnici all'interno di un singolo replicato biologico.
Titolazione del dosaggio dello stress ossidativo e confronto della resistenza allo stress ossidativo nella linea con ablazione di RIC
Utilizzando i passaggi del saggio di stress ossidativo descritti nella sezione 3.4, abbiamo misurato la sopravvivenza del tipo selvatico (WT) in presenza di paraquat a concentrazioni crescenti di 2,5, 5, 10 o 20 mM come dosi crescenti di stress ossidativo (Figura 2I). Le curve di sopravvivenza dei vermi WT hanno mostrato variazioni significative in modo dose-dipendente. Rispetto a una sopravvivenza media in condizioni fisiologiche non stressate di circa 20 giorni (Figura 2A), la sopravvivenza media dei vermi di tipo selvatico è di 4,92 giorni a 2,5 mM, 3,81 giorni a 5 mM, 2,93 giorni a 10 mM e 2,81 giorni a 20 mM di paraquat (Figura 2I). Le analisi statistiche e i valori di P sono riportati in dettaglio nella Tabella Supplementare 2 e nelle legende delle figure. Questi dati forniscono informazioni affidabili ai ricercatori per scegliere un dosaggio ottimale di paraquat e una scala temporale appropriata nella progettazione di un saggio di stress ossidativo. I ricercatori possono scegliere 2,5 mM per valutare la sopravvivenza dei vermi per circa 10 giorni oppure utilizzare concentrazioni più elevate di paraquat per ottenere risultati sulla sopravvivenza in pochi giorni. Si noti che concentrazioni più elevate (10 mM e 20 mM) accelerano la mortalità, mentre concentrazioni intermedie e più basse (2,5 mM e 5 mM) determinano un declino più graduale della sopravvivenza, consentendo di distinguere più facilmente le differenze sottili tra le linee.
Successivamente abbiamo utilizzato il paraquat 5 mM, una dose intermedia tra quelle testate, come condizione di stress ossidativo per valutare l'effetto dell'ablazione dei neuroni RIC sulla sopravvivenza rispetto agli animali WT. Utilizzando i passaggi del saggio di stress ossidativo presentati nella sezione 3.4, abbiamo esaminato la sopravvivenza sia di ceppi WT che di ceppi con ablazione dei neuroni RIC in condizioni di stress ossidativo indotto da paraquat 5 mM (Figura 2J). Applicando i passaggi di analisi dei dati presentati nelle sezioni da 4.1 a 4.3, i risultati hanno mostrato che non è stata riscontrata alcuna differenza significativa tra il ceppo con ablazione dei neuroni RIC e il gruppo di controllo wild-type N2 in condizioni di stress ossidativo indotto da paraquat 5 mM (Figura 2J).
Tutti i risultati rappresentativi ottenuti dai saggi di stress ossidativo sono stati eseguiti con tre replicati biologici indipendenti effettuati in giorni diversi (Supplementary Figure 5). Il numero di animali (valore di n indicato nelle legende delle figure) che contribuisce alla curva di sopravvivenza mostrata nei risultati rappresentativi e nelle figure supplementari corrisponde al numero totale ottenuto dai quattro replicati tecnici all'interno di un singolo replicato biologico.
Risoluzione dei problemi
Un problema ricorrente nei saggi di stress ossidativo indotto da paraquat è che i vermi scappano dalle piastre in agar, causando perdita di animali e una riduzione del numero di vermi disponibili per l'analisi. Una barriera di acido palmitico o un altro tipo di “recinzione” può essere aggiunta alle piastre del saggio per ridurre parzialmente questo comportamento di fuga46,47, anche se il miglioramento è modesto e non elimina completamente il problema. Nessuna differenza significativa è stata osservata nella salute e nell'aspettativa di vita di C. elegans dopo il trattamento con acido palmitico48. La barriera di acido palmitico agisce come una “recinzione” avversiva sulle piastre NGM per impedire a C. elegans di fuggire a causa di stress, fame o patogeni. Per ridurre al minimo la fuga dei vermi, applicare 30 µL di acido palmitico al 10 mg/mL in etanolo (aggiungere 0,5 g di acido palmitico a 50 mL di EtOH al 100%) lungo il bordo della piastra da saggio da 35 mm e ruotare delicatamente la piastra per formare un anello continuo. Una volta evaporato l'etanolo, l'anello di acido palmitico agisce come una barriera fisica e chimica per ridurre la fuga dei vermi. I vermi che muoiono a contatto con l'anello di acido palmitico vengono censurati ed esclusi dall'analisi della sopravvivenza.
ATTENZIONE: L'acido palmitico e le sue soluzioni devono essere manipolati utilizzando dispositivi di protezione individuale adeguati per il laboratorio, inclusi guanti, camice da laboratorio e protezione oculare, e si deve fare attenzione ad evitare il contatto con la pelle e gli occhi.
DISPONIBILITÀ DEI DATI
I dati di sopravvivenza alla base della Figura 2 e delle figure supplementari, inclusi i dati per tutti i replicati biologici e i risultati statistici, si trovano nelle Figure Supplementari 1–5, Tabelle Supplementari 1–2 e File Supplementare 1.
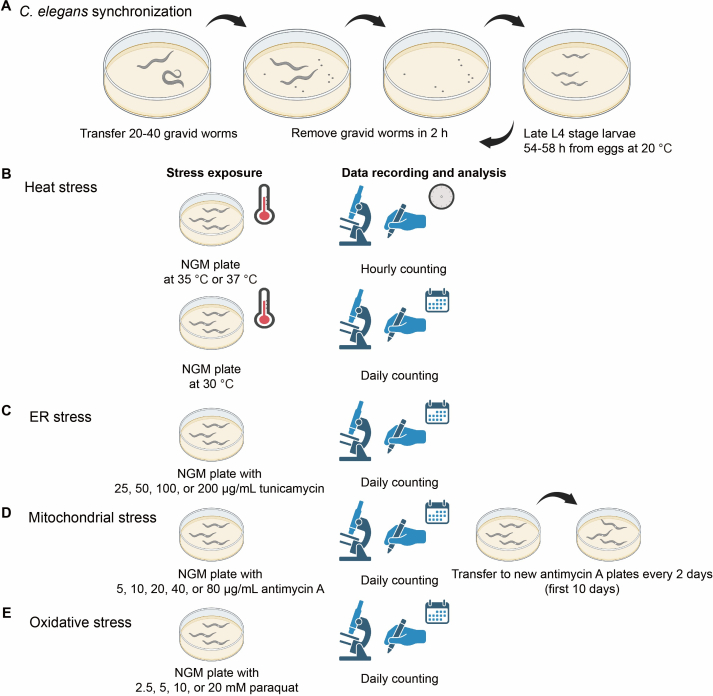
Figura 1: Flusso di lavoro dei saggi di stress. (A) I vermi sincronizzati si ottengono raccogliendo le uova deposte entro un periodo di 2 ore da vermi gravidi. I vermi sincronizzati vengono utilizzati per tutti i saggi di stress e trasferiti su piastre o condizioni di stress allo stadio L4 avanzato dopo 54-58 ore di sviluppo dalle uova a 20 °C. (B) Nel saggio di stress termico, i vermi sincronizzati vengono trasferiti su piastre NGM in un incubatore a 35 °C o 37 °C, e i vermi morti vengono conteggiati ogni ora. Per il saggio di stress termico in un incubatore a 30 °C, i vermi morti vengono conteggiati giornalmente. (C) Nel saggio di stress del reticolo endoplasmatico, i vermi sincronizzati vengono trasferiti su piastre NGM contenenti 25, 50, 100 o 200 µg/mL di tunicamicina. I vermi morti vengono conteggiati giornalmente. (D) Nel saggio di stress mitocondriale, i vermi sincronizzati vengono trasferiti su piastre NGM contenenti 5, 10, 20, 40 o 80 µg/mL di antimicina A, e la sopravvivenza viene valutata mediante conteggio giornaliero. Per evitare interferenze dovute alla prole, i vermi vengono trasferiti su piastre fresche contenenti antimicina A ogni due giorni durante i primi 10 giorni del saggio. (E) Nel saggio di stress ossidativo, i vermi sincronizzati vengono trasferiti su piastre NGM contenenti 2,5, 5, 10 o 20 mM di paraquat, e la sopravvivenza viene valutata mediante conteggio giornaliero. La resistenza allo stress viene valutata confrontando le curve di sopravvivenza di Kaplan-Meier generate da ciascun saggio. Cliccare qui per visualizzare una versione ingrandita di questa figura.
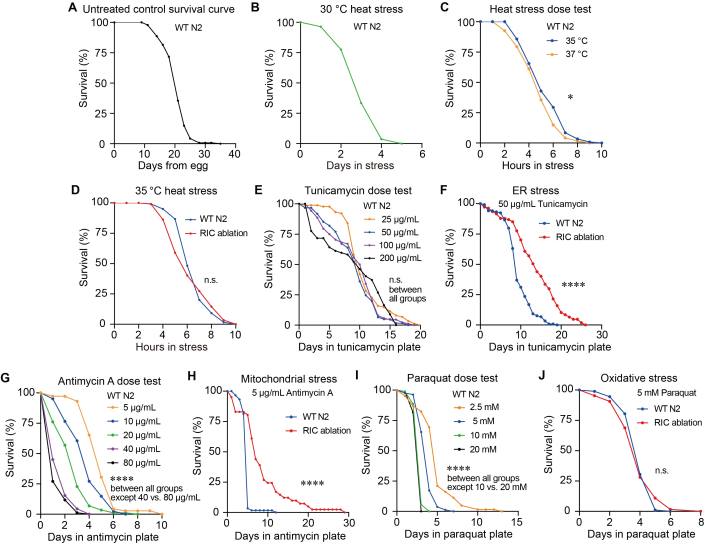
Figura 2: Titolazione della dose di stress termico, del reticolo endoplasmatico, mitocondriale e ossidativo e confronto della resistenza allo stress nei neuroni RIC ablatai ceppo (A) Curva di sopravvivenza rappresentativa di Kaplan-Meier della linea WT N2 in condizioni non stressanti (n = 141, sopravvivenza media = 20,67 giorni). (B) Rappresentativo Curva di sopravvivenza di Kaplan-Meier della linea WT N2 in condizioni di 30 °C stress termico (n = 111, sopravvivenza media = 3,11 giorni). (CCurva di sopravvivenza di Kaplan-Meier rappresentativa della ceppa WT N2 in condizioni di 35 °C e 37 °C stress da calore (n = 119, 121); test log-rank, P = 0,0244, * indica P < 0.05. (DCurva di sopravvivenza di Kaplan-Meier rappresentativa di ceppi WT N2 e RIC con ablazione neuronale 35 °C stress termico (n = 117, 120); test log-rank, P = 0,4972, n.s. indica nessuna differenza significativa. WT N2 è stato utilizzato come controllo. (ECurve di sopravvivenza dose-risposta della linea selvatica N2 in seguito a concentrazioni crescenti di trattamento con tunicamicina (n = 88, 61, 88, 67); test log-rank, P = 0.6472 (25 µg/mL contro 100 µg/mL), P = 0.1473 (25 µg/mL contro 50 µg/mL), P = 0.6581 (50 µg/mL contro 200 µg/mL), P = 1 (25 µg/mL contro 200 µg/mL; 50 µg/mL contro 100 µg/mL; 100 µg/mL contro 200 µg/mL), n.s. indica nessuna differenza significativa. (FCurva di sopravvivenza di Kaplan-Meier rappresentativa di WT N2 e RIC ceppo con ablazione neuronale sotto 50 µg/mL stress reticolare indotto da tunicamicina (n = 119, 107); test log-rank, **** indica P < 0.0001. (GCurve di sopravvivenza di Kaplan-Meier rappresentative della ceppa WT N2 trattata con concentrazioni crescenti di antimicina A (n = 72, 81, 88, 91, 85); test del log-rank, P = 0.000038 (5 µg/mL contro 10 µg/mL), P = 0.00002 (10 µg/mL contro 20 µg/mL), P = 1.60 × 10⁻8 (20 µg/mL contro 40 µg/mL), P < 0.0001 (5 µg/mL contro 20 µg/mL; 5 µg/mL contro 40 µg/mL; 5 µg/mL contro 80 µg/mL; 10 µg/mL contro 40 µg/mL; 10 µg/mL contro 80 µg/mL; oppure 20 µg/mL contro 80 µg/mL), P = 0.189 (40 µg/mL contro 80 µg/mL), **** indica P < 0.0001. (HCurva di sopravvivenza di Kaplan-Meier rappresentativa di ceppi WT N2 e RIC con ablazione neuronale sotto 5 µg/mL stress mitocondriale indotto da antimicina A (n = 59, 41); test log-rank, P = 3,2 × 10⁻9, **** indica P < 0.0001. (ICurve di sopravvivenza di Kaplan-Meier rappresentative della linea WT N2 con diversi dosaggi di paraquat (n = 62, 81, 88, 93); test del log-rank, P = 1.80 × 10⁻7 (2,5 mM contro 5 mM), P < 0,0001 (2,5 mM contro 10 mM; 2,5 mM contro 20 mM; 5 mM contro 10 mM; 5 mM contro 20 mM) P = 0,1445 (10 mM vs 20 mM), **** indica P < 0.0001. (JCurve di sopravvivenza di Kaplan-Meier rappresentative di ceppi WT N2 e con ablazione neuronale RIC sotto stress ossidativo indotto da paraquat 5 mM (n = 92, 64); test del log-rank, P = 0,9817, n.s. indica nessuna differenza significativa. Tutti gli esperimenti sono stati eseguiti con tre replicati biologici indipendenti. In questa figura sono mostrati i risultati rappresentativi di un replicato biologico. Ogni replicato biologico consiste di quattro piastre di replicato tecnico con vermi. Numero di animali (n) contribuenti al curve di sopravvivenza in questa figura corrisponde il numero aggregato delle quattro repliche tecniche all'interno di una singola replica biologica. Le repliche biologiche indipendenti sono state analizzate separatamente anziché aggregate e sono presentate come dataset individuali nelle Figure supplementari da 2 a 5. La significatività è stata valutata mediante test del log-rank per il confronto delle distribuzioni di sopravvivenza. Statistica dettagliata P i valori, la sopravvivenza media e l'errore standard tra i replicati tecnici sono riportati nella Tabella Supplementare 2. Cliccare qui per visualizzare una versione ingrandita di questa figura.
Figura supplementare 1: Assenza di fluorescenza tbh-1p::GFP nel ceppo con ablazione dei neuroni RIC, mentre l'espressione di GFP è stata osservata nei neuroni RIC del ceppo controllo reporter tbh-1p::GFP. (A) Immagini fluorescenti del ceppo con ablazione dei neuroni RIC tbh-1p::caspase-3(p12)::nz; tbh-1p::cz::caspase-3(p17); tbh-1p::GFP; myo-3p::GFP e di un ceppo controllo reporter tbh-1p::GFP OH16150 tbh-1p::GFP; tdc-1p::mCherry. I vermi allo stadio L4 tardivo sono stati immaginati utilizzando un'eccitazione a 488 nm con un tempo di esposizione di 800 ms per il canale GFP e di 176 ms per il canale in campo chiaro. Le frecce gialle indicano la posizione dei neuroni RIC nel ceppo controllo reporter tbh-1p::GFP o la posizione attesa dei neuroni RIC, assente nel ceppo con ablazione dei neuroni RIC. Il segnale tbh-1p::GFP non è stato rilevato nella posizione dei neuroni RIC nel ceppo con ablazione dei neuroni RIC, mentre il segnale tbh-1p::GFP è stato osservato nei neuroni RIC del ceppo controllo reporter tbh-1p::GFP OH16150. La fluorescenza dei muscoli della parete corporea nel ceppo con ablazione dei neuroni RIC deriva da myo-3p::GFP, un marcatore di co-iniezione. (A) n = 14 per OH16150; n = 20 per il ceppo con ablazione dei neuroni RIC. (B, C) Risultati rappresentativi di altri due replicati biologici. I vermi allo stadio L4 tardivo sono stati immaginati utilizzando un'eccitazione a 488 nm con un tempo di esposizione di 1007 ms (B) o 1998 ms (C) per il canale GFP e di 176 ms (B e C) per il canale in campo chiaro. (B) n = 8 per OH16150; n = 17 per il ceppo con ablazione dei neuroni RIC. (C) n = 14 per OH16150; n = 13 per il ceppo con ablazione dei neuroni RIC. Cliccare qui per scaricare questo file.
Figura supplementare 2: Replicati biologici delle curve di sopravvivenza in condizioni di non stress o stress termico. (A, B) Curve di sopravvivenza di Kaplan-Meier ottenute da due replicati biologici indipendenti in condizioni di non stress. (A) n = 123, sopravvivenza media = 20,52 giorni; (B) n = 130, sopravvivenza media = 22,74 giorni. (C, D) Curve di sopravvivenza di Kaplan-Meier del ceppo WT N2 in condizioni di stress termico a 30 °C. I dati provengono da due replicati biologici indipendenti. (C) n = 130, sopravvivenza media = 3,72 giorni. (D) n = 98, sopravvivenza media = 3,77 giorni. (E, F) Curve di sopravvivenza di Kaplan-Meier in condizioni di stress termico a 35 °C o 37 °C. I dati provengono da due replicati biologici indipendenti. (E) n = 118, 121; test log-rank, P = 0,0409, * indica P < 0,05; (F) n = 122, 120; test log-rank, P = 0,0251, * indica P < 0,05. (G, H) Curve di sopravvivenza di Kaplan-Meier dei ceppi WT N2 e con ablazione dei neuroni RIC in condizioni di stress termico a 35 °C. I dati provengono da due replicati biologici indipendenti. (G) n = 79, 76; test log-rank, P = 0,2217, n.s. indica nessuna differenza significativa. (H) n = 77, 81; test log-rank, P = 0,1881, n.s. indica nessuna differenza significativa. La significatività è stata valutata mediante test log-rank per confrontare le distribuzioni di sopravvivenza. I valori dettagliati di P, la sopravvivenza media e l'errore standard (S.E.) tra i replicati tecnici sono riportati nella Tabella supplementare 2. Cliccare qui per scaricare il file.
Figura supplementare 3: Replicati biologici delle curve di sopravvivenza in condizioni di stress del reticolo endoplasmatico. (A, B) Curve di sopravvivenza di Kaplan-Meier della linea WT N2 in diverse concentrazioni di trattamento con tunicamicina. I dati provengono da due replicati biologici indipendenti. (A) n = 110, 102, 100, 96; (B) n = 88, 77, 75, 69. I valori di P statistici tra i diversi gruppi (A e B) sono indicati nella Tabella supplementare 2. (C, D) Curve di sopravvivenza di Kaplan-Meier della linea WT N2 e della linea con ablazione dei neuroni RIC in condizioni di stress del reticolo endoplasmatico indotto da 50 µg/mL di tunicamicina. I dati provengono da due replicati biologici indipendenti. (C) n = 104, 55; test del log-rank, P = 0,012, * indica P < 0,05; (D) n = 85, 109; test del log-rank, P = 0,0001, *** indica P < 0,001. La significatività è stata valutata mediante test del log-rank per confrontare le distribuzioni di sopravvivenza. I valori dettagliati di P statistico , la sopravvivenza media e l'errore standard (S.E.) tra i replicati tecnici sono riportati nella Tabella supplementare 2. Cliccare qui per scaricare il file.
Figura supplementare 4: Replicati biologici delle curve di sopravvivenza in condizioni di stress mitocondriale. (A, B) Curve di sopravvivenza di Kaplan-Meier della linea WT N2 in diverse concentrazioni di trattamento con antimicina A. I dati provengono da due replicati biologici indipendenti. (A) n = 71, 80, 81, 88, 90. (B) n = 71, 85, 83, 88, 87. I valori di P statistici tra i diversi gruppi (A e B) sono indicati nella Tabella supplementare 2. (C, D) Curve di sopravvivenza di Kaplan-Meier della linea WT N2 e della linea con ablazione dei neuroni RIC in condizioni di stress mitocondriale indotto da antimicina A. I dati provengono da due replicati biologici indipendenti. (C) n = 105, 78; test del log-rank, P = 0,000004, **** indica P < 0,0001. (D) n = 89, 73; test del log-rank, **** indica P < 0,0001. La significatività è stata valutata mediante test del log-rank per confrontare le distribuzioni di sopravvivenza. I valori dettagliati di P statistico , la sopravvivenza media e l'errore standard (S.E.) tra i replicati tecnici sono riportati nella Tabella supplementare 2. Cliccare qui per scaricare il file.
Figura supplementare 5: Replicati biologici delle curve di sopravvivenza in condizioni di stress ossidativo. (A, BCurve di sopravvivenza di Kaplan-Meier della linea WT N2 in condizioni di trattamento con diverse concentrazioni di paraquat. I dati provengono da due repliche biologiche indipendenti.A) n = 38, 63, 60, 31. (B) n = 55, 77, 86, 107. Statistica P valori tra gruppi diversi (A e B) sono indicati nella Tabella Supplementare 2. (C, DCurve di sopravvivenza di Kaplan-Meier della linea WT N2 e della linea con ablazione neuronale di RIC in condizioni di stress ossidativo indotto da paraquat 5 mM. I dati provengono da due repliche biologiche indipendenti.C) n = 87, 82; test log-rank, P = 0,2629, n.s. indica nessuna differenza significativa. (D) n = 116, 118; test log-rank, P = 0,1184, n.s. indica nessuna differenza significativa. La significatività è stata valutata mediante un test log-rank per il confronto delle distribuzioni di sopravvivenza. Analisi statistica dettagliata P i valori, la sopravvivenza media e l'errore standard tra i replicati tecnici sono riportati nella Tabella Supplementare 2. Fare clic qui per scaricare questo file.
Tabella supplementare 1: Riassunto del numero di vermi inclusi in tutte le curve di sopravvivenza. La tabella riporta il numero iniziale di vermi e i numeri di vermi rotti, incapsulati e censurati. Cliccare qui per scaricare il file.
Tabella supplementare 2: Analisi statistiche dettagliate di tutte le curve di sopravvivenza, inclusi i valori di P, la sopravvivenza media e l'errore standard. Cliccare qui per scaricare il file.
File supplementare 1: Dati a supporto dei risultati di questo studio.
Include la verifica dell'ablazione riuscita dei neuroni RIC e i risultati di tutti i replicati biologici alla base dei dati presentati nelle figure principali. Cliccare qui per scaricare questo file.
Discussione
In questo studio abbiamo descritto passaggi standardizzati per saggi di stress riproducibili in condizioni di stress termico, del reticolo endoplasmatico, mitocondriale e ossidativo in C. elegans (Figura 1). Abbiamo esaminato una serie di dosi crescenti di ciascuno dei quattro agenti stressanti sull'aspettativa di vita di vermi di tipo selvatico (WT) (Figura 2). Inoltre, abbiamo presentato un esempio di studio del ruolo di un interneurone nella resistenza allo stress nei confronti di tutti e quattro gli agenti stressanti, utilizzando una linea con ablazione neuronale (Figura 2).
Per impiegare con successo il protocollo del saggio di stress qui presentato, è necessario tenere presenti alcuni aspetti fondamentali durante il processo. A causa della variabilità tra laboratori dovuta a differenze quali il tipo di agar in polvere, il mezzo di coltura, la temperatura e l'umidità ambiente, si raccomanda di titolare ogni concentrazione di agente stressante o di sostanza induttrice di stress seguendo la procedura di titolazione e i passaggi descritti nelle sezioni Protocollo e Risultati. Una condizione di stress adeguata dovrebbe produrre una risposta di sopravvivenza riproducibile e intermedia nei vermi di controllo di tipo selvatico, consentendo un'ampia dinamica per rilevare sia un aumento che una diminuzione della resistenza allo stress. Vanno evitate condizioni che determinino una sopravvivenza quasi completa o una letalità quasi totale. In secondo luogo, è essenziale assicurarsi che i vermi siano sincronizzati alla stessa fase di sviluppo per tutti i replicati biologici e tecnici. La sincronizzazione dei vermi può essere ottenuta utilizzando la procedura descritta nei punti 2.1–2.3. Si raccomanda la sincronizzazione alla fase L4 tardiva. L'avvio dei saggi di stress alla fase L4 è una pratica ben consolidata nel campo della ricerca sulla risposta allo stress in C. elegans, e numerosi studi hanno utilizzato animali sincronizzati alla fase L4 per saggi di resistenza allo stress ossidativo42, termico40,43 e ad altri tipi di stress35. Iniziare alla fase L4 garantisce la sincronizzazione dello sviluppo riducendo al minimo la variabilità introdotta dalle differenze nell'età adulta e nello stato riproduttivo, inclusi l'inizio della produzione di uova e il trattenimento degli embrioni, entrambi fattori che possono influenzare le misurazioni della resistenza allo stress12,37,38,40. Poiché tutti i gruppi sperimentali del nostro studio sono stati sincronizzati e trattati in modo identico, questo approccio fornisce una base coerente e appropriata per confrontare la resistenza allo stress. Infine, se i vermi sono stati sottoposti a digiuno o stress prima dell'inizio del saggio, la loro progenie deve essere recuperata per diverse generazioni in condizioni di alimentazione senza stress prima di essere utilizzata come vermi gravidi per generare progenie sincronizzata per i saggi di stress.
La variabilità tra esperimenti indipendenti condotti su replicati biologici può derivare da differenze nella preparazione e conservazione delle piastre, inclusa la durata della conservazione delle piastre contenenti composti induttori di stress a 4 °C e dal momento dell'inoculo batterico OP50. Per migliorare la riproducibilità tra esperimenti effettuati in giorni diversi, è necessario standardizzare i passaggi critici della preparazione delle piastre seguendo il protocollo descritto per la preparazione delle piastre NGM nella sezione 1.1, delle piastre per lo stress reticolare indotto da tunicamicina nella sezione 3.2.1, delle piastre per lo stress mitocondriale indotto da antimicina A nella sezione 3.3.1 e delle piastre per lo stress ossidativo indotto da paraquat nella sezione 3.4.1. In particolare, le piastre in agar devono essere essiccate a temperatura ambiente per circa 24 h dopo il versamento e successivamente inoculate con OP50 una volta che l'agar si è completamente solidificato. Dopo l'inoculo con OP50, le piastre NGM devono essere lasciate essiccare ulteriormente a temperatura ambiente per altre 24 h prima di essere conservate a 4 °C. Il tempo ottimale di essiccazione può variare in base all'uso di piastre con o senza ventilazione e alle condizioni ambientali locali, come temperatura e umidità. Pertanto, ogni laboratorio dovrebbe ottimizzare questo passaggio in base alle proprie condizioni e mantenere un tempo di essiccazione costante in tutti i replicati biologici indipendenti per garantire riproducibilità. Le piastre per i saggi di stress devono essere utilizzate entro una settimana dalla preparazione per minimizzare il degrado dei composti induttori di stress e la crescita eccessiva di batteri, entrambi fattori che potrebbero influenzare la coerenza del saggio.
Questo protocollo ha inoltre mostrato un esempio di indagine sul ruolo di un interneurone nella risposta allo stress a tutti e quattro gli agenti stressanti, utilizzando una linea con ablazione neuronale (Figura 2). Il promotore di un gene espressi specificamente in un neurone può essere utilizzato per indurre l'espressione della caspasi-3 e ablatiare il neurone bersaglio. In questo caso abbiamo utilizzato il promotore di tbh-1, che guida l'espressione genica specificamente nei neuroni RIC, al fine di ablatiare questi ultimi. Il promotore di tbh-1 è stato ampiamente validato per la manipolazione genetica diretta ai neuroni RIC ed è comunemente impiegato per l'espressione cellulare specifica, il recupero fenotipico, l'immagine del calcio e il silenziamento neuronale45,49,50. In accordo con le caratterizzazioni precedentemente riportate per tbh-1, abbiamo osservato l'espressione di tbh-1p::GFP limitata ai neuroni RIC, senza rilevare fluorescenza in altri tessuti (Figura Supplementare 1). Non abbiamo esaminato specificamente la fecondità o la morfologia della linea germinale nella linea con ablazione dei neuroni RIC; tuttavia, non abbiamo osservato difetti fisiologici evidenti in questa linea. È stato riportato che il marcatore di tbh-1 presenta un'espressione aggiuntiva nelle cellule somatiche della guaina gonadica, che sono cellule somatiche del sistema riproduttivo51,52. Sebbene non possiamo escludere del tutto la possibilità di un'espressione a basso livello al di fuori dei neuroni RIC, riteniamo improbabile che l'espressione non-RIC di tbh-1 possa spiegare l'aumentata resistenza allo stress osservata negli animali con ablazione dei neuroni RIC. Sebbene questo metodo sia ben consolidato49,50, esso è limitato dalla possibile espressione in cellule esterne al neurone bersaglio. Sono necessarie altre metodologie per confermare il ruolo di un neurone, ad esempio il monitoraggio dell'attività neuronale in risposta agli agenti stressanti o la valutazione del ruolo dei neurotrasmettitori rilasciati da questo neurone nei saggi di stress.
I saggi di sopravvivenza di C. elegans sono strumenti potenti per misurare la resistenza allo stress grazie alla brevità relativa della vita dei vermi (circa 20-30 giorni, Figura 2) e alla rapida mortalità indotta da diversi agenti stressanti, che di solito si verifica nell'arco di ore o giorni (Figura 2). Tuttavia, una limitazione dei saggi di sopravvivenza è che utilizzano un endpoint binario (vivo/morto) e quindi non rilevano il declino fisiologico progressivo che si verifica durante l'esposizione allo stress. Saggi complementari, come i saggi di movimento ondulatorio o le misurazioni automatizzate della locomozione (velocità) effettuate in diversi punti temporali, possono fornire ulteriori informazioni sulla perdita graduale della funzione neuromuscolare durante lo stress. Un’altra limitazione consiste nel fatto che la morte viene determinata dall’assenza di risposta a una stimolazione fisica delicata, il che potrebbe sottostimare la vitalità negli animali con locomozione gravemente compromessa. Inoltre, la valutazione manuale introduce variabilità dipendente dall’osservatore e potenziali bias. Per ridurre al minimo questi effetti, tutti i punteggi all’interno di un replicato biologico indipendente dovrebbero essere assegnati dallo stesso ricercatore, il quale deve essere cieco rispetto al genotipo e alle condizioni sperimentali. Condizioni di valutazione costanti, compreso l’utilizzo dello stesso ingrandimento al microscopio e delle stesse impostazioni di illuminazione in ogni punto temporale, sono inoltre fondamentali per ridurre la variabilità tra piastre e tra esperimenti. Nei risultati rappresentativi, abbiamo presentato un esempio in cui una linea con ablazione dei neuroni RIC mostrava una maggiore resistenza allo stress del reticolo endoplasmatico e mitocondriale, ma non allo stress termico e ossidativo, rispetto ai vermi di tipo selvatico (Figura 2). Una differenza di sopravvivenza in due dei quattro agenti stressanti non stabilisce di per sé un ruolo specifico del neurone in una via particolare; la conclusione biologica presentata in questo manoscritto è offerta come dimostrazione del metodo e dell’osservazione, piuttosto che come affermazione meccanicistica.
Oltre ai saggi di sopravvivenza in condizioni di stress descritti qui, sono state sviluppate diverse piattaforme automatizzate per misurare la sopravvivenza di C. elegans. La valutazione automatizzata aumenta notevolmente la produttività, consente un monitoraggio continuo o ad alta frequenza e riduce i bias legati all'osservatore e lo sforzo richiesto dalla valutazione manuale53,54,55. Questi sistemi sono particolarmente vantaggiosi per schermate genetiche o chimiche su larga scala. Tuttavia, la maggior parte dei metodi automatizzati inferisce la morte dall'arresto del movimento, il che può portare a un'errata classificazione di vermi in stato di quiescenza o con locomozione gravemente compromessa in condizioni di stress, a seconda dell'algoritmo di imaging e della soglia di rilevamento. Il rilevamento automatico può inoltre essere influenzato da fattori ambientali, tra cui temperatura, condensa, contaminazione fungina o batterica e variazioni nelle condizioni di coltura, tutti fattori che possono interferire con il rilevamento dei vermi e alterare le misurazioni di sopravvivenza. Al contrario, la valutazione manuale consente al ricercatore di identificare fenotipi anomali, come il bagging, l'eclosione interna o animali rotti, che potrebbero richiedere criteri specifici di valutazione o di esclusione. Sebbene la valutazione manuale sia più laboriosa e soggetta a variabilità legata all'osservatore, questi limiti possono essere ridotti mediante valutazione in cieco, criteri di valutazione standardizzati e un'analisi coerente effettuata dallo stesso ricercatore. Di conseguenza, i saggi di sopravvivenza manuali e automatizzati presentano ciascuno vantaggi e limitazioni distinti, e la scelta del metodo deve essere guidata dagli obiettivi sperimentali, dalla produttività richiesta e dalla natura del paradigma di stress.
Nel complesso, i metodi qui descritti forniscono un quadro standardizzato e riproducibile per valutare le risposte di C. elegans a diversi stress ambientali, tra cui stress termico, mitocondriale, del reticolo endoplasmatico e ossidativo. Valutare la resistenza a diversi agenti stressanti è essenziale perché alterazioni genetiche o fisiologiche potrebbero aumentare la resistenza a un tipo di stress mentre incrementano la suscettibilità a un altro, rivelando così meccanismi sia specifici per lo stress sia condivisi nell'adattamento allo stress. Questi saggi permettono confronti quantitativi della resistenza allo stress tra diversi genotipi e condizioni sperimentali e possono essere facilmente applicati per indagare il ruolo di geni, neuroni e vie metaboliche nel mantenimento della resistenza allo stress e dell'omeostasi fisiologica. Più in generale, questi metodi offrono una piattaforma solida per identificare i meccanismi che promuovono la salute e la sopravvivenza dell'organismo in condizioni ambientali avverse.
Dichiarazioni
Gli autori non hanno conflitti di interessi da dichiarare.
Ringraziamenti
La ricerca descritta in questa pubblicazione è stata sostenuta dal Kansas Idea Network of Biomedical Research Excellence (K-INBRE, P20 GM103418), dal Center of Biomedical Research Excellence (COBRE, P20 GM113109) e dal Johnson Cancer Research Center della Kansas State University (Cancer Research Expansion Award) a favore di S.H. per il finanziamento.
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| Tunicamicina | Sigma-Aldrich | T7765 | Induttore dello stress del reticolo endoplasmatico |
| Antimicina A | Sigma-Aldrich | A8674 | Induttore dello stress mitocondriale |
| Cloruro di metilviologeno diidrato (paraquat) | Sigma-Aldrich | 856177 | Induttore dello stress ossidativo |
| Acido palmitico | MP Biomedicals, LLC | 100905 | Inibisce il comportamento di fuga di C. elegans |
| Colesterolo | MP Biomedicals, LLC | 101382 | Per NGM |
| Cloruro di calcio | Thermo Fisher Scientific Inc. | C79-500 | Per NGM |
| Solfato di magnesio anidro | Mallinckrodt Pharmaceuticals plc | 6070 | Per NGM |
| Agar | Apex Chemicals Co., Ltd | 20-273 | Per NGM |
| Peptone | Apex Chemicals Co., Ltd | 20-260 | Per NGM |
| Fosfato monobasico di potassio | Thermo Fisher Scientific Inc. | P285-3 | Per NGM |
| Cloruro di sodio | Thermo Fisher Scientific Inc. | S640-3 | Per NGM |
| Fosfato dibasico di potassio | Allied Chemical, General Chemical Division | Code 2131 | Per NGM |
| Piastre di Petri (35 mm) | Genesee Scientific, LLC | 32-103 | Piastre per saggio di stress |
| Piastre di Petri (60 mm) | Genesee Scientific, LLC | 32-105 | Per mantenere C. elegans |
| mec-18p cz::caspase-3 (p17) | Addgene | TU#814 | |
| mec-18p::caspase-3 (p12)::nz | Addgene | TU#813 | |
| New Brunswick Scientific (Eppendorf) C24KC Refrigerated Incubator Shaker | Eppendorf / New Brunswick Scientific | C24KC | Incubatore a 37 °C |
| DigiTherm® 38-liter Heating/Cooling Incubator | Tritech Research Inc. | DT2-MP-47L | Incubatore a 35 °C |
| Fisher Scientific Isotemp Low Temperature Incubator | Fisher Scientific | 146E | Incubatore a 30 °C |
| SHELab SRI20P Refrigerated Incubator | Sheldon Manufacturing Inc. | SRI20P | Incubatore a 20 °C |
| Leica M165 FC Research Stereo Microscope | Leica Microsystems | M165 FC | Microscopio per l'acquisizione di immagini |
| ACCU-SCOPE 3075-DIA Zoom Stereo Microscope | ACCU-SCOPE Inc. | 3075-DIA | Microscopio per il manipolamento e il punteggio dei vermi |
| Microsoft Excel 2019 | Microsoft Corporation | Rappresentazione grafica dei dati grezzi | |
| GraphPad Prism 8.0.2 | GraphPad Software Inc. | Visualizzazione dei dati | |
| OASIS 2 | POSTECH, PMID: 27528229 | Analisi statistica | |
| BioRender | Science Suite Inc. | Illustrazione schematica | |
| ImageJ | National Institutes of Health (NIH) | Elaborazione delle immagini | |
| Adobe Illustrator 2021 | Adobe Inc. | Composizione delle figure e layout | |
| di tipo selvatico | Caenorhabditis Genetics Center, CGC | N2 | |
| tbh-1p::caspase-3(p12)::nz; tbh-1p::cz::caspase-3(p17); tbh-1p::GFP; myo-3p::GFP | autocostruito | ablazione di RIC | |
| nIs107 [tbh-1::GFP] III. zfIs10 [tdc-1::mCherry] IV. I neuroni RIC sono marcati sia con GFP che con mCherry | Caenorhabditis Genetics Center, CGC | OH16150 |
Riferimenti
- Morimoto RI, Santoro MG. Stress-inducible responses and heat shock proteins: new pharmacologic targets for cytoprotection. Nat Biotechnol. 1998;16(9):833-838.
- Hetz C, Chevet E, Oakes SA. Proteostasis control by the unfolded protein response. Nat Cell Biol. 2015;17(7):829-838.
- Blackwell TK, et al. SKN-1/Nrf, stress responses, and aging in Caenorhabditis elegans. Free Radic Biol Med. 2015;88(Pt B):290-301.
- Lamech LT, Haynes CM. The unpredictability of prolonged activation of stress response pathways. J Cell Biol. 2015;209(6):781-787.
- Balch WE, Morimoto RI, Dillin A, Kelly JW. Adapting proteostasis for disease intervention. Science. 2008;319(5865):916-919.
- Powers ET, et al. Biological and chemical approaches to diseases of proteostasis deficiency. Annu Rev Biochem. 2009;78:959-991.
- Soo SK, et al. Biological resilience and aging: activation of stress response pathways contributes to lifespan extension. Ageing Res Rev. 2023;88:101941.
- Ma Z, et al. The integrated stress response protects against ER stress but is not required for altered translation and lifespan from dietary restriction in Caenorhabditis elegans. Front Cell Dev Biol. 2023;11:1263344.
- Horikawa M, Sakamoto K. Fatty-acid metabolism is involved in stress-resistance mechanisms of Caenorhabditis elegans. Biochem Biophys Res Commun. 2009;390(4):1402-1407.
- Prahlad V, Cornelius T, Morimoto RI. Regulation of the cellular heat shock response in Caenorhabditis elegans by thermosensory neurons. Science. 2008;320(5877):811-814.
- Prahlad V, Morimoto RI. Neuronal circuitry regulates the response of Caenorhabditis elegans to misfolded proteins. Proc Natl Acad Sci U S A. 2011;108(34):14204-14209.
- Taylor RC, Dillin A. XBP-1 is a cell-nonautonomous regulator of stress resistance and longevity. Cell. 2013;153(7):1435-1447.
- Ozbey NP, et al. Tyramine acts downstream of neuronal XBP-1s to coordinate inter-tissue UPR(ER) activation and behavior in C. elegans. Dev Cell. 2020;55(6):754-770.e6.
- Durieux J, Wolff S, Dillin A. The cell-non-autonomous nature of electron transport chain-mediated longevity. Cell. 2011;144(1):79-91.
- Berendzen KM, et al. Neuroendocrine coordination of mitochondrial stress signaling and proteostasis. Cell. 2016;166(6):1553-1563.e10.
- Shaposhnikov M, et al. Lifespan and stress resistance in Drosophila with overexpressed DNA repair genes. Sci Rep. 2015;5:15299.
- Jia J, et al. A pair of dopamine neurons mediate chronic stress signals to induce learning deficit in Drosophila melanogaster. Proc Natl Acad Sci U S A. 2021;118(42):e2023674118.
- Solovev I, et al. Neuron-specific overexpression of core clock genes improves stress-resistance and extends lifespan of Drosophila melanogaster. Exp Gerontol. 2019;117:61-71.
- Shuai Y, Zhang Y, Gao L, Zhong Y. Stress resistance conferred by neuronal expression of dominant-negative Rac in adult Drosophila melanogaster. J Neurogenet. 2011;25(1-2):35-39.
- Williams KW, et al. Xbp1s in Pomc neurons connects ER stress with energy balance and glucose homeostasis. Cell Metab. 2014;20(3):471-482.
- Kim JG, Ea JY, Yoon BJ. Orexinergic neurons modulate stress coping responses in mice. Front Mol Neurosci. 2023;16:1140672.
- Jovaisaite V, Mouchiroud L, Auwerx J. The mitochondrial unfolded protein response, a conserved stress response pathway with implications in health and disease. J Exp Biol. 2014;217(Pt 1):137-143.
- Richter K, Haslbeck M, Buchner J. The heat shock response: life on the verge of death. Mol Cell. 2010;40(2):253-266.
- Hetz C, Zhang K, Kaufman RJ. Mechanisms, regulation and functions of the unfolded protein response. Nat Rev Mol Cell Biol. 2020;21(8):421-438.
- Finkel T. Signal transduction by reactive oxygen species. J Cell Biol. 2011;194(1):7-15.
- Hu C, et al. Heat shock proteins: biological functions, pathological roles, and therapeutic opportunities. MedComm (2020). 2022;3(3):e161.
- Lithgow GJ, White TM, Hinerfeld DA, Johnson TE. Thermotolerance of a long-lived mutant of Caenorhabditis elegans. J Gerontol. 1994;49(6):B270-6.
- Krshnan L, van de Weijer ML, Carvalho P. Endoplasmic reticulum-associated protein degradation. Cold Spring Harb Perspect Biol. 2022;14(12):a041247.
- Naidoo N. ER and aging-protein folding and the ER stress response. Ageing Res Rev. 2009;8(3):150-159.
- Heifetz A, Keenan RW, Elbein AD. Mechanism of action of tunicamycin on the UDP-GlcNAc:dolichyl-phosphate Glc-NAc-1-phosphate transferase. Biochemistry. 1979;18(11):2186-2192.
- Guo Y, et al. Mitochondrial dysfunction in aging. Ageing Res Rev. 2023;88:101955.
- Murphy MP. How mitochondria produce reactive oxygen species. Biochem J. 2009;417(1):1-13.
- Xu X, Pang Y, Fan X. Mitochondria in oxidative stress, inflammation and aging: from mechanisms to therapeutic advances. Signal Transduct Target Ther. 2025;10(1):190.
- Bus JS, Gibson JE. Paraquat: model for oxidant-initiated toxicity. Environ Health Perspect. 1984;55:37-46.
- Park HH, Jung Y, Lee SV. Survival assays using Caenorhabditis elegans. Mol Cells. 2017;40(2):90-99.
- Zevian SC, Yanowitz JL. Methodological considerations for heat shock of the nematode Caenorhabditis elegans. . 2014;68(3):450-457.
- Keith SA, Amrit FR, Ratnappan R, Ghazi A. The C. elegans healthspan and stress-resistance assay toolkit. . 2014;68(3):476-486.
- Senchuk MM, Dues DJ, Van Raamsdonk JM. Measuring oxidative stress in Caenorhabditis elegans: paraquat and juglone sensitivity assays. Bio Protoc. 2017;7(1):e2086.
- Golden NL, Plagens RN, Kim Guisbert KS, Guisbert E. Standardized for measuring induction of the heat shock response in Caenorhabditis elegans. J Vis Exp. 2020;(161):e61030.
- Bar-Ziv R, et al. Measurements of physiological stress responses in C. elegans. J Vis Exp. 2020;(159):e61001.
- Rahman M, et al. NemaLife chip: a micropillar-based microfluidic culture device optimized for aging studies in crawling C. elegans. Sci Rep. 2020;10(1):16190.
- Rafikova A, Hu Q, Kubiseski TJ. The SEM-4 transcription factor is required for regulation of the oxidative stress response in Caenorhabditis elegans. G3 (Bethesda). 2020;10(9):3379-3385.
- Liang J, et al. Chloride intracellular channel proteins respond to heat stress in Caenorhabditis elegans. PLoS One. 2017;12(9):e0184308.
- Han SK, et al. OASIS 2: online application for survival analysis 2 with features for the analysis of maximal lifespan and healthspan in aging research. Oncotarget. 2016;7(35):56147-56152.
- Kitto ES, et al. The hypoxic response extends lifespan through a bioaminergic and peptidergic neural circuit. eLife. 2025;14:RP107651.
- Miller DL, Roth MB. C. elegans are protected from lethal hypoxia by an embryonic diapause. Curr Biol. 2009;19(14):1233-1237.
- Miller HA, et al. Serotonin and dopamine modulate aging in response to food odor and availability. Nat Commun. 2022;13(1):3271.
- Beydoun S, Sridhar A, Bhandari M, Kitto ES, Leiser SF. Polyethylene glycol as an improved barrier to prevent fleeing in C. elegans. MicroPubl Biol. 2024.
- Sellegounder D, et al. Octopaminergic signaling mediates neural regulation of innate immunity in Caenorhabditis elegans. mBio. 2018;9(5):e01645-18.
- Wang X, et al. Dimorphic neural network architecture prioritizes sexual-related behaviors in male Caenorhabditis elegans. eLife. 2026;14:RP102309.
- Alkema MJ, Hunter-Ensor M, Ringstad N, Horvitz HR. Tyramine functions independently of octopamine in the Caenorhabditis elegans nervous system. Neuron. 2005;46(2):247-260.
- Wang C, et al. A neurotransmitter atlas of C. elegans males and hermaphrodites. eLife. 2024;13:RP95402.
- Stroustrup N, et al. The Caenorhabditis elegans lifespan machine. Nat. 2013;10(7):665-670.
- Felker DP, Robbins CE, McCormick MA. Automation of C. elegans lifespan measurement. Transl Med Aging. 2020;4:1-10.
- Banse SA, et al. Automated lifespan determination across Caenorhabditis strains and species reveals assay-specific effects of chemical interventions. Geroscience. 2019;41(6):945-960.
Ristampe e permessi
Questo articolo è stato pubblicato
Video in arrivo