Vengono descritti due approcci di co-coltura senza contatto per la valutazione qualitativa e quantitativa delle risposte morfologiche fungine durante interazioni interspecifiche. Il protocollo illustra come fattori intrinseci influenzino la crescita ifale, utilizzando un saggio interspecifico su Candida come esempio. Questi metodi possono essere facilmente adattati per studiare la comunicazione interspecifica tra microrganismi in organismi diversi.
Articolo metodologico
Saggi di co-coltura senza contatto per studi morfometrici durante le interazioni interspecifiche nei funghi
In questo articolo
Sommario
Abstract
Il comportamento cellulare e la morfologia sono solitamente influenzati da vari fattori intra- ed extracellulari all'interno di una comunità microbica. Gli approcci disponibili per lo studio della comunicazione microbica possono risultare laboriosi e/o richiedere strutture specializzate e competenze specifiche. Di seguito vengono descritti due approcci complementari di co-coltura senza contatto: il saggio di co-coltura in piastre con inserti a membrana e il saggio basato sul sopranatante privo di cellule (CFS), entrambi basati sulla transizione morfologica come risposta misurabile per indagare il ruolo di diversi fattori in una data interazione interspecifica. Il sistema di piastre con inserti a membrana, pur consentendo la diffusione di molecole extracellulari, permette un'interazione in tempo reale tra specie fisicamente separate. Al contrario, il saggio basato sul CFS fornisce un approccio semplificato e scalabile per valutare le risposte a mezzi condizionati. Il protocollo qui presentato include procedure standardizzate per la preparazione delle colture, la generazione di sopranatanti condizionati, l'allestimento del saggio, la microscopia, l'acquisizione delle immagini, l'analisi morfometrica quantitativa mediante Fiji e la valutazione statistica. Tale procedura è stata illustrata con un esempio di risposta morfologica fungina a fattori intrinseci ed estrinseci. I metodi qui descritti offrono strumenti alternativi accessibili e adattabili per lo studio di nuove interazioni microbiche all'interno di una comunità e potrebbero essere facilmente estesi per indagare i meccanismi alla base della coesistenza multispecifica in un ambiente comunitario.
Introduzione
Negli ecosistemi naturali e clinici, i microrganismi risiedono tipicamente all'interno di comunità polimicrobiche strutturate, governate da complesse reti di comunicazione intra- e inter-specie 1. Questi consorzi utilizzano diversi segnali chimici, tra cui molecole di quorum sensing, composti organici volatili e peptidi e proteine secretori, per coordinare comportamenti a livello di popolazione2. La mappatura di queste dinamiche comunicative è fondamentale, poiché interazioni di nicchia cooperative, competitive o predatrici alterano in modo significativo il metabolismo microbico, l'architettura spaziale e l'adattamento allo stress3. Dal punto di vista clinico, queste reti polimicrobiche (come consorzi batteri-funghi a due specie o consorzi fungo-fungo inter-specie) mostrano frequentemente una virulenza sinergica, un'accelerata colonizzazione dei tessuti e una maggiore resistenza agli antimicrobici, rispetto alle colture pure4,5. La decifrazione dei determinanti molecolari delle comunicazioni microbiche è quindi essenziale per superare i modelli tradizionali e sviluppare nuove strategie anti-infettive in grado di interrompere la stabilità della comunità6.
Per analizzare i diversi modi di interazione microbica, i ricercatori utilizzano svariate configurazioni sperimentali, principalmente impiegate nella biologia delle cellule mammifere, nell'immunologia e nell'oncologia7,8,9. Ad esempio, i modelli di co-coltura con contatto diretto costituiscono lo standard per lo studio della segnalazione juxtacrina e degli interazioni fisiche tra cellula e cellula10. Configurazioni simili, con opportune modifiche, vengono utilizzate anche per studiare le interazioni fisiche tra microrganismi, al fine di comprendere l'inibizione crociata tra microrganismi o la risposta ai farmaci9,11,12. Tuttavia, risulta difficile distinguere i meccanismi sottostanti, poiché sia i segnali dipendenti dal contatto sia quelli diffusibili contribuiscono alla risposta osservata. Sebbene i tradizionali saggi basati sul contatto possano fornire informazioni spaziali, sono laboriosi e/o richiedono l'etichettatura di ceppi distinti, il che può risultare difficoltoso per organismi non modello. Al contrario, i saggi con dispositivi Transwell (piastre con inserti a membrana) vengono utilizzati, principalmente negli studi su cellule mammifere, per distinguere il contributo dei segnali dipendenti dal contatto e di quelli diffusibili13,14,15,16. Questo metodo risulta particolarmente utile quando la comunicazione cellulare è mediata da molecole secrete, consentendo l'analisi in tempo reale della dinamica di segnalazione tra popolazioni cellulari17. Inoltre, i saggi senza contatto offrono il vantaggio della separazione tramite membrana, che può essere integrata con modelli computazionali per tracciare dinamicamente i microrganismi che i metodi tradizionali non riescono a rilevare18. Questo approccio viene talvolta impiegato per studiare simultaneamente la cinetica dello sviluppo di diverse specie batteriche19.
Un'alternativa più economica e ad alto rendimento al saggio con piastre a pozzetti con inserti a membrana è il saggio basato sul supernatante cellulare libero (CFS) o su mezzo condizionato. È noto che questo metodo viene utilizzato in medicina rigenerativa e biologia vascolare per isolare i secretomi necessari per comprendere la riparazione tissutale mediata dalle cellule staminali e/o l'angiogenesi indotta da tumori20. Analogamente, negli studi microbiologici, i modelli basati sul CFS si sono rivelati utili per decifrare la competizione polimicrobica. Ad esempio, filtrati batterici (come gli acil-omoserina lattoni di Pseudomonas aeruginosa o i metaboliti di Lactobacillus ) sono stati utilizzati per modulare la maturazione del biofilm fungino21,22. Di recente, le piattaforme microfluidiche hanno permesso una biomimesi fisiologica ad alta fedeltà grazie alle tecnologie organo-su-un-chip23,24. Sebbene i sistemi microfluidici siano stati impiegati per il rilevamento simultaneo della risposta della comunità microbica ai propri secretomi, richiedono strumentazione specializzata e competenze specifiche, e potrebbero non essere facilmente implementabili in tutti i contesti25,26,27. Pertanto, i saggi con piastre a pozzetti con inserti a membrana e quelli basati sul CFS rappresentano in molti casi i metodi preferibili. La scelta tra questi due saggi dipenderà dalla natura della molecola secretoria. Se la molecola secretoria è instabile, ovvero ha un'emivita breve, e richiede la misurazione dell'attività in tempo reale, il saggio con piastre a pozzetti con inserti a membrana è più adatto. D'altro canto, se la molecola secretoria è stabile e l'esperimento è su larga scala, un saggio basato sul CFS risulterà più economico.
L'obiettivo principale di questo protocollo è presentare una metodologia qualitativa e quantitativa passo dopo passo per il tracciamento delle caratteristiche morfologiche, utilizzando le piastre a pozzetti con inserti di membrana e le piattaforme CFS (Figura 1). Qui, tale metodologia è stata dimostrata utilizzando come esempio la comunicazione mediata da fattori secreti tra Candida albicans e Candida glabrata. Inoltre, questi strumenti possono anche quantificare gli effetti di variabili genetiche intrinseche (ploidia e stato del locus di accoppiamento) sulla modifica dello sviluppo geometrico assoluto (lunghezza, volume e diametro) dei filamenti di C. albicans quando esposti a molecole segnale secretorie. Questo protocollo consolidato fornisce una piattaforma semplice, economica e senza contatto, adatta allo studio della dinamica di segnalazione interspecie.
Protocollo
Sia C. albicans che C. glabrata sono classificati come patogeni opportunisti per l'uomo di Livello di Sicurezza Biologica 2 (BSL-2). Tutte le procedure sperimentali devono essere eseguite all'interno di cappucci di sicurezza biologica certificati, rispettando rigorosamente le Buone Pratiche Microbiologiche (GMP) e le procedure istituzionali di contenimento. Durante le operazioni devono essere indossati dispositivi di protezione individuale (DPI), inclusi camici da laboratorio, doppi guanti e occhiali protettivi. Tutti i materiali monouso contaminati, le plastiche e le colture liquide devono essere sottoposti a sterilizzazione in autoclave (121 °C, 15 psi, per 20 min) o a disinfezione chimica mediante una soluzione di ipoclorito di sodio al 10% appena preparata, prima dello smaltimento finale (Consigliato: Guida allo Smaltimento dei Rifiuti dei National Institutes of Health (NIH) 2022). Tutti i reagenti standard, i prodotti chimici di grado analitico e le attrezzature utilizzati in questo metodo sono descritti nella Tabella dei Materiali. Le caratteristiche dei ceppi fungini e i genotipi di riferimento sono riportati nella Tabella 1. L'elenco dei terreni utilizzati in questo studio, con relative composizioni, è fornito nel File Supplementare 1.
1. Preparazione del sopranatante privo di cellule (CFS)
- Avvio e incubazione della coltura
- Utilizzando un’ansa di plastica sterile, prelevare una singola colonia isolata di C. glabrata CBS138 appena cresciuta su una piastra di agar di Mezzo Minimo di Glucosio (GMM) 28. Inoculare la colonia in un tubo di vetro sterile contenente 10 mL di brodo standard Yeast Peptone Dextrose (YPD) (1% p/v estratto di lievito, 2% p/v peptone, 2% p/v D-glucosio)29.
- Fissare il tubo all’interno di un incubatore con agitazione orbitale. Incubare la coltura a una temperatura costante di 37 °C con agitazione continua a 200 giri/min per 18 h.
- Verificare che la coltura sia uniformemente entrata nella fase stazionaria tardiva controllando che la densità ottica (OD600) rientri in un intervallo stabile compreso tra 12,0 e 14,0. Esaminare le cellule al microscopio per assicurarsi che siano in forma di lievito e prive di contaminazioni. Questa finestra di sviluppo è necessaria per garantire un accumulo ottimale di componenti stabili del secretoma extracellulare.
- Separazione cellulare e filtrazione
- Trasferire asetticamente la coltura liquida di C. glabrata di 18 h in un tubo conico sterile in polipropilene da 15 mL.
- Bilanciare i tubi e centrifugare la coltura a 5.000 x g per esattamente 5 min a temperatura ambiente controllata di 25 °C, al fine di compattare la biomassa in un pellet denso.
- Versare il sopranatante liquido grezzo in una siringa sterile pulita da 20 mL. Applicare con attenzione la siringa a un filtro sterile con membrana in polietersulfone (PES) da 0,22 µm a basso legame proteico.
- Applicare una pressione meccanica costante per far passare il liquido attraverso il filtro PES in un tubo di raccolta sterile da 15 mL, ottenendo il Sopranatante Cell-Free (CFS) di lavoro. Se durante la filtrazione si avverte resistenza, non applicare pressione eccessiva, poiché potrebbe causare la rottura della membrana. In tal caso, utilizzare un filtro con membrana nuovo.
NOTA: Non sottoporre il CFS appena raccolto a cicli rapidi di congelamento-scongelamento o a temperature di conservazione inferiori a 4 °C prima di impostare il saggio, poiché la precipitazione a freddo potrebbe destabilizzare fattori proteici a bassa abbondanza. - Conservare il pellet cellulare compatto nel tubo iniziale di raccolta, qualora si proceda direttamente all’esperimento di co-coltura in piastra con inserti a membrana (Passaggio 4).
2. Preparazione del sospensione iniziale di Candida albicans per saggi di induzione delle ife
- Preparazione e mantenimento dell'inoculo
- Recuperare direttamente i ceppi target di C. albicans (fare riferimento alla Tabella 1 per i genotipi) dai ceppi madre in glicerolo conservati a -80 °C. Seminare le cellule su piastre solide di GMM (0,67% p/v base di azoto per lieviti senza aminoacidi, 2% p/v D-glucosio, 2% p/v agar) per ottenere colonie di lavoro.
- Per ceppi diploidi (SC5314, RBY1132, RBY1133): inoculare una singola colonia in 5 mL di GMM liquido. Incubare il tubo per 12 h a 37 °C sotto agitazione costante a 200 rpm.
NOTA: L'uso di un mezzo minimo (GMM) per la preparazione notturna delle cellule diploidi è fondamentale per inibire l'autofilamentazione spontanea che si verifica spesso in mezzi ricchi di nutrienti. - Per ceppi aploidi (GZY896, GZY803): inoculare una colonia isolata in 5 mL di brodo YPD integrato con 0,1 mg/mL di uridina (YPDU). Incubare il tubo per 12 h a 37 °C con agitazione continua a 200 rpm.
- Per preservare la stabilità morfologica e garantire coerenza, limitare il numero di subcolture liquide consecutive a un massimo di tre passaggi. Se l'autofilamentazione o l'aggregazione in forma pseudomifalica supera il 2% nel pool di controllo iniziale, scartare il ceppo e risvegliare cellule fresche dai ceppi madre congelati.
- Normalizzazione
- Aliquotare 1 mL dalle colture liquide notturne in cuvette sterili. Misurare l'assorbanza esatta a 600 nm (OD600) mediante uno spettrofotometro UV-Vis calibrato, utilizzando come controllo zero brodo GMM o YPDU fresco.
NOTA: L'OD600 (densità cellulare) delle colture liquide notturne, specialmente quelle cresciute in YPDU, supererebbe la gamma di sensibilità dello spettrofotometro. In tali casi, diluire adeguatamente le colture (10–20 volte) prima di effettuare le misurazioni. - Calcolare il volume di coltura concentrata necessario per ottenere una sospensione standardizzata. Diluire le cellule con GMM liquido preriscaldato (37 °C) in un tubo sterile per ottenere un'inoculo di lavoro da 1 mL con un valore finale assoluto di OD600 = 0,1.
- Aliquotare 1 mL dalle colture liquide notturne in cuvette sterili. Misurare l'assorbanza esatta a 600 nm (OD600) mediante uno spettrofotometro UV-Vis calibrato, utilizzando come controllo zero brodo GMM o YPDU fresco.
3. Saggio di induzione ifalica basato su CFS (formato piastra a 96 pozzetti)
- Impostazione del saggio
- Prendere una piastra sterile in polistirene per microtiter a 96 pozzetti, otticamente trasparente e con fondo piatto.
- Configurazione dei pozzetti di prova: Dispensare direttamente 45 µL di CFS di C. glabrata appena filtrato (dal Passo 1.2.4) nei pozzetti designati. Aggiungere 45 µL di brodo GMM sterile (oppure brodo YPDU se si stanno valutando ceppi bersaglio aploidi).
- Controlli negativi del mezzo: Aggiungere 90 µL di brodo GMM nei pozzetti di controllo. Inoltre, in un pozzetto separato, mescolare 45 µL di brodo GMM sterile con 45 µL di brodo YPD sterile non inoculato per monitorare i componenti di fondo del mezzo.
- Controlli positivi di induzione: Aggiungere 80 µL di brodo GMM combinati con 10 µL di siero fetale bovino (FBS; concentrazione finale del 10% v/v).
- Inoculo: Dispensare esattamente 10 µL dell'inoculo lavorativo di C. albicans normalizzato a OD600 = 0.1 (dal Passo 2.2.2) in 90 µL di mezzo appropriato in tutti i pozzetti sperimentali e di controllo.
- Incubazione e raccolta dati
- Coprire la piastra a 96 pozzetti con il suo coperchio di plastica adatto per ridurre al minimo l'evaporazione. Posizionare la piastra in un incubatore statico mantenuto a 37 °C per esattamente 3 h. Evitare di spostare o agitare la piastra durante questo periodo per consentire una filamentazione stabile.
- Al termine dell'incubazione, posizionare la piastra multi-pozzetto in posizione verticale sullo stagecchio di un microscopio ottico invertito dotato di ottica a campo chiaro e modulo integrato di fotocamera digitale CCD.
- Catturare sistematicamente immagini automatiche o manuali in almeno cinque campi visivi distinti per pozzetto.
- Eseguire questa configurazione del saggio con chiare duplicazioni tecniche per ogni condizione, effettuando almeno tre ripetizioni biologiche completamente indipendenti preparate in giorni separati.
4. Saggio di coltura in co-coltura con piastra a pozzetti con inserti di membrana
- Configurazione del compartimento abluminale (inferiore)
- Prendere una piastra sterile per colture cellulari da 24 pozzetti.
- Aggiungere esattamente 1,0 mL della sospensione cellulare normalizzata di C. albicans con OD600 = 0,1 (ottenuta al passaggio 2.2.2) nei pozzetti inferiori abluminali.
- Configurazione del compartimento luminale (superiore)
- Riprendere il pellet cellulare di C. glabrata messo da parte al passaggio 1.2.5. Ri-sospendere il pellet in 1 mL di brodo GMM sterile, centrifugare a 5000 x g per 3 minuti e decantare il liquido. Ripetere questo lavaggio due volte per rimuovere i componenti nutrienti residui o elementi del vecchio mezzo.
- Ri-sospendere il pellet lavato finale in brodo GMM fresco e regolare la densità ottica finale a un valore altamente concentrato di OD600 = 5,0.
- Utilizzando pinze sterili, prendere un inserto sterile con membrana in policarbonato da 0,4 µm con pori ottenuti per incisione. Inserire delicatamente l'inserto nel pozzetto occupato della piastra da 24 pozzetti, fissando le sue flange superiori nelle posizioni intermedie delle scanalature.
- Aggiungere esattamente 750 µL della coltura concentrata di C. glabrata con OD600 = 5,0 nell'inserto superiore luminale.
NOTA: Mantenere un rapporto iniziale tra le cellule di circa 1:50 (C. albicans rispetto a C. glabrata) attraverso la barriera della membrana garantisce un accumulo sufficiente di ligandi segnali, evitando al contempo artefatti di retroazione localizzati.
- Incubazione e acquisizione delle immagini
- Coprire l'assiemaggio della piastra con inserti a membrana e incubare in condizioni statiche o con agitazione orbitale delicata (30 rpm) a 37 °C per esattamente 3 ore.
- Al termine dell'incubazione, utilizzare pinze sterili per sollevare ed estrarre con attenzione l'inserto luminale superiore da ciascun pozzetto. Smaltire gli inserti nei rifiuti biologici pericolosi.
NOTE: La rimozione completa della membrana dell'inserto superiore prima dell'acquisizione delle immagini è necessaria per eliminare ombre rifrattive, schemi di dispersione della luce e artefatti della griglia di fondo durante l'analisi microscopica ad alta risoluzione. - Posizionare la piastra da 24 pozzetti sul palchetto del microscopio invertito per la valutazione morfologica. In questo studio, è stato utilizzato un microscopio invertito dotato di obiettivi 10x/0,30NA, 20x/0,50NA oppure 40x/0,60NA con distanza lavorativa extra-lunga, insieme a un filtro DIC.
5. Microscopia ad alta risoluzione e analisi digitale delle immagini
- Acquisizione di immagini digitali
- Scansionare i fondi delle pozzette utilizzando un obiettivo a basso ingrandimento (10x) per verificare una distribuzione uniforme delle cellule e identificare eventuali errori localizzati nel tracciamento o aggregazioni cellulari anomale.
- Acquisire almeno 10 campi di osservazione distinti utilizzando un obiettivo calibrato da 20x. Queste immagini costituiscono il dataset principale per il monitoraggio del numero standard di filamenti e delle distribuzioni di popolazione.
- Per un'analisi fenotipica fine e misurazioni dettagliate dei contorni cellulari, acquisire microfotografie utilizzando un obiettivo a immersione con distanza lavorativa extra-lunga 40x. Salvare tutti i file immagine grezzi.
- Percorso di fenotipizzazione quantitativa (Fiji)
- Avviare il Fiji (versione 1.54p o successiva) per l'elaborazione. Aprire la microfotografia bersaglio navigando fino a File > Aperto oppure trascinando il file direttamente nell' Fiji pannello di controllo
- Monitoraggio della lunghezza delle ife (L): fare clic con il tasto destro sull'icona di selezione della linea nella schermata principale Fiji barra degli strumenti e selezionare il Strumento Linea Segmentata dal menu a tendina. Posizionare il cursore nel punto esatto di giunzione in cui il filamento in movimento emerge dal confine della parete cellulare della cellula madre di lievito.
- Fare clic con il pulsante sinistro in modo continuo per tracciare l'asse longitudinale centrale dell'ifa, posizionando punti di ancoraggio per adattarsi a eventuali curve o pieghe, e terminare la linea all'estremità apicale assoluta. Fare clic su Misurare per registrare la lunghezza in micrometri (µm). Premere Ctrl+M (Windows) oppure Cmd+M (Mac OS) per registrare la lunghezza totale (L) in micrometri (µm) all'interno della finestra dei Risultati.
- Per evitare misurazioni duplicate dello stesso filamento, utilizzare lo strumento ‘Pennello’ integrato per evidenziare ogni cellula completata.
- Profilazione della cellula madre di lievito: individuare il corpo della cellula madre di lievito attaccata corrispondente al filamento ifale precedentemente tracciato. Utilizzare il Strumento Linea Segmentata tracciare una linea retta lungo l'asse longitudinale massimo del corpo cellulare per misurare il suo asse maggiore (asse maggiore, definito come variabile 'a') ed eseguire il Misurare comando
- Tracciare una linea secondaria rigorosamente perpendicolare all'asse maggiore attraverso l'espansione trasversale più ampia del corpo cellulare per misurare il corrispondente asse trasversale perpendicolare (asse minore, definito come variabile ‘b’) ed eseguire il Misurare comando
- Calcolare il volume totale della cellula madre di lievito (CV, espresso in micrometri cubi) µm3) applicando il modello geometrico standard per un sferoide prolato utilizzando le variabili trasformate in logaritmo per «a» e «b»: CV = 4/3 π ab2.
- Spessore Strutturale dell'Ifea (d): Selezionare il Strumento Linea Segmentata. Misurare la distanza esterna da parete a parete ovvero, linea tracciata perpendicolarmente all'asse longitudinale. Effettuare queste misurazioni in tre punti distinti ed equidistanti lungo la lunghezza del filamento per tenere conto delle variazioni strutturali naturali, registrando ciascuna misurazione tramite il Misurare comando
- Calcolare la media aritmetica di questi tre punti dati distinti per determinare un valore medio accurato dello spessore (d). Dividere questo valore medio calcolato per due per ottenere la variabile strutturale raggio (r = d/2).
- Calcolare il volume totale del filamento ifale (HV, espresso in µm3) trattando il filamento come un cilindro geometrico regolare e non ramificato. Applicare la lunghezza del filamento rilevata (L) e il raggio strutturale derivato (r) al seguente modello di calcolo: HV = π r2 L.
6. Progettazione statistica
- Replicati biologici
- Eseguire tutti i layout dei test individuali in almeno tre ripetizioni biologiche indipendenti utilizzando colture di avviamento fresche e preparate separatamente.
- All'interno di ogni replica biologica, assegnare un minimo di due pozzetti tecnici identici per ogni condizione per tenere conto di eventuali effetti localizzati ai bordi dei pozzetti o di variazioni nella pipettaggio.
- Definizione dell'unità sperimentale: per garantire la validità statistica ed evitare artefatti, includere un minimo di tre ripetizioni tecniche per ogni esperimento. Le singole cellule misurate all'interno di un singolo pozzetto costituiscono sottocampioni tecnici; analogamente, tre pozzetti di questo tipo corrispondono a tre ripliche tecniche. Inoltre, si raccomandano tre ripliche biologiche (esperimenti indipendenti) per ogni campione (N = 3).
- Per ogni condizione distinta all'interno di una replica biologica, misurare casualmente tra 50 e 100 cellule singole in più campi visivi. Per ogni replica biologica, calcolare il valore medio o mediano di queste misurazioni cellulari. Utilizzare i valori medi o mediani ottenuti dalle repliche biologiche per tutti i successivi test statistici comparativi.
- Analisi del profilo di distribuzione e verifica delle ipotesi
- Sottoporre i dataset delle repliche biologiche alla valutazione della normalità utilizzando i test di Shapiro-Wilk o di D’Agostino-Pearson prima di applicare metodi parametrici (ad esempio, confronto delle medie).
- Confronti tra due gruppi: Quando si confronta un singolo gruppo sperimentale direttamente con un unico gruppo di controllo (ad esempio, di tipo selvaggio) C. albicans crescita in mezzo puro versus crescita in isolato C. glabrata CFS), applicare un test t di Student non appaiato a due codele t-test, a condizione che il dataset segua una distribuzione normale.
- Se i dati si discostano significativamente da una distribuzione normale, passare a un'alternativa non parametrica, come il test U di Mann-Whitney (test della somma dei ranghi di Wilcoxon), che confronta i valori mediani di dati ordinati per rango e non dipende dai valori assoluti dei dati. Si sa inoltre che i test non parametrici sono insensibili ai valori anomali.
- Valutazioni con più gruppi: quando si valutano contemporaneamente tre o più linee genetiche o combinazioni di trattamenti (ad esempio, monitorando le variazioni morfologiche in diversi gruppi) MATa/a, MATα/αe MATa/α ceppi), eseguire un'analisi della varianza standard a un fattore (ANOVA) seguita dal test post-hoc di Tukey per confronti multipli a coppie. Se l'ipotesi di normalità non è rispettata, sostituire il modello parametrico con un test non parametrico di Kruskal-Wallis seguito dall'analisi post-hoc di Dunn per confronti multipli.
- Rappresentazione grafica e visualizzazione dei dati: eseguire tutte le analisi statistiche e le rappresentazioni grafiche utilizzando software statistici e di grafica.
NOTA: può essere utilizzato software equivalente per eseguire analisi statistiche e preparare rappresentazioni grafiche. I dati ottenuti dal saggio con piastre a pozzetti con inserti di membrana e dal saggio CFS possono essere rappresentati mediante grafici a colonne con dispersione, grafici a violino con dispersione o grafici a scatola con dispersione, che mostrano la mediana (linea centrale) e l'intervallo di confidenza al 95% (utilizzato in questo studio), oppure la mediana (linea centrale) e il primo e il terzo quartile (rispettivamente linee superiore e inferiore). - Impostare la soglia di significatività statistica formale a un livello alfa di p < 0,05. Mantenere configurazioni convenzionali di notazione in tutte le figure e tabelle dei dati generati. Ad esempio: ns: p > 0.05; *: p < 0.05; **: p < 0.01; ***: p < 0.001; ****: p < 0.0001.
Risultati
Saggi di co-coltura senza contatto per esplorare le interazioni interspecifiche
Le molecole segnale extracellulari solubili e a bassa abbondanza spesso mediano eventi chiave di comunicazione durante la convivenza mista di microrganismi. Tali dinamiche sono state valutate utilizzando due configurazioni cellulari senza contatto, progettate per analizzare i modelli di interazione tra C. albicans e C. glabrata, impedendo al contempo il contatto fisico diretto tra cellula e cellula. La prima configurazione ha utilizzato un sistema di coltura a pozzetti con inserti a membrana integrati, in cui le due popolazioni erano fisicamente separate da una membrana in policarbonato inerte e porosa di 0,4 µm, che permetteva la diffusione bidirezionale non ostacolata delle molecole secrete attraverso la barriera. La seconda configurazione ha monitorato la crescita delle cellule lievitarie di C. albicans coltivate direttamente in piastre microtitolabili contenenti il surnatante privo di cellule ottenuto da colture di C. glabrata in fase stazionaria (CgCFS).
In linea con gli schermi precedenti30, le cellule diploidi eterozigote di tipo selvatico di C. albicans (SC5314) hanno sviluppato facilmente vere ife in risposta sia a cellule di C. glabrata separate dal diaframma della piastra a inserto, sia al CgCFS filtrato. Al contrario, le cellule mantenute in un mezzo negativo di controllo puro (GMM o YPD) sono rimaste prevalentemente in forma di lievito gemmante e pseudofila (Figura 2A). Le analisi comparative hanno dimostrato coerenza tra le due configurazioni del saggio. Entrambi i saggi hanno prodotto valori comparabili per tutti i parametri strutturali, inclusi lunghezza, volume e spessore dei filamenti (Figura 2). La differenza nei parametri morfologici è stata considerata significativa se il valore di p ottenuto dai test statistici appropriati, seguiti da test post-hoc per confronti multipli, soddisfaceva il criterio di 0,05. Queste osservazioni hanno mostrato che le cellule di C. albicans non presentavano differenze significative nella lunghezza delle vere ife indotte da cellule di C. glabrata nel sistema della piastra a inserto (39,66 µm ± 6,81 µm) o quando esposte al CgCFS filtrato (37,13 µm ± 6,50 µm; Figura 2B). Analogamente, i volumi di questi filamenti indotti nel sistema della piastra a inserto (112,10 µm3 ± 22,59 µm3) non differivano significativamente da quelli osservati nel mezzo condizionato con CgCFS (109,78 µm3 ± 34,69 µm3; Figura 2C). Inoltre, le misurazioni del diametro dei filamenti hanno confermato che lo spessore medio delle ife rimaneva costante tra le due configurazioni, con valori di 1,89 ± 0,10 µm per la piastra a inserto e di 1,92 µm ± 0,23 µm per il trattamento con CgCFS (Figura 2D).
Gli stati di ploidia e le configurazioni del tipo di accoppiamento alterano le dimensioni morfologiche in vitro
I ruoli dei livelli di ploidia e delle architetture del locus di accoppiamento nel dirigere le transizioni dimorfiche sono stati stabiliti in diversi sistemi fungini modello. Qui, la pipeline analitica di tracciamento è stata applicata per quantificare parametri di filamentazione, in particolare lunghezza ifalica, volume strutturale, spessore e volume corrispondente della cellula madre in forma lievito, in un insieme di ceppi di C. albicans aploidi (MATa o MATα) e diploidi (MATa/a, MATα/α o MATa/α).
L'analisi strutturale ha rivelato che, a seguito dell'esposizione al secretoma induttivo di CgCFS o al siero positivo di controllo, il ceppo diploide omozigote alfa (MATα/α) ha formato filamenti con assi significativamente più lunghi (45,56 µm ± 9,24 µm e 46,62 µm ± 9,07 µm) e volume maggiore (125,24 µm3 ± 39,94 µm3 e 119,45 µm3 ± 37,32 µm3), rispetto al ceppo diploide omozigote MATa/a (Figura 3A,C). Sebbene gli isolati clinici standard di C. albicans esistano prevalentemente come diploidi eterozigoti, il ceppo di riferimento MATa/α ha mostrato filamenti più lunghi e volumi maggiori rispetto al ceppo MATa/a dopo l'induzione (in particolare con siero). Tuttavia, questi valori erano significativamente inferiori rispetto al ceppo omozigote MATα/α (Figura 3B,D).
Contemporaneamente, i ceppi aploidi hanno mostrato un andamento inverso: il ceppo aploide MATa ha evidenziato un aumento significativo della lunghezza ifale rispetto al ceppo aploide MATα in entrambe le condizioni di induzione (CgCFS: 22,06 µm ± 5,41 µm contro 17,58 µm ± 4,12 µm; Siero: 23,71 µm ± 6,59 µm contro 21,00 µm ± 5,29 µm; Figura 4A). In modo interessante, quest’aumento della lunghezza nel contesto aploide si è tradotto in un incremento del volume ifale (38,84 µm3 ± 19,58 µm3 contro 34,25 µm3 ± 19,62 µm3) soltanto in risposta a CgCFS (Figura 4B). Queste misurazioni iniziali in vitro suggeriscono un'interazione complessa tra gli stati di ploidia e le configurazioni del locus del tipo di accoppiamento, indicando che i loci MATa e MATα contribuiscono probabilmente in modo diverso alla dinamica della filamentazione.
Per studiare le relazioni statistiche tra queste metriche strutturali nei dataset combinati, sono state eseguite analisi di correlazione dei ranghi di Spearman (ρ) e di regressione lineare di Pearson (R2), che comprendevano tutte le varianti di ploidia e di tipo di accoppiamento testate. Sono state osservate correlazioni positive per tutte le coppie analizzate: lunghezza ifalica rispetto al volume ifalico, lunghezza ifalica rispetto allo spessore ifalico, lunghezza ifalica rispetto al volume della cellula madre e volume totale ifalico rispetto al volume della cellula madre in forma lievito (Figura 5, Tabella Supplementare 1 e Tabella Supplementare 2).
La relazione più forte è stata osservata tra la lunghezza delle ife e il volume fungino calcolato (ρ = 0,91; Figura 5A). Al contrario, la correlazione più debole è stata riscontrata tra il volume iniziale della cellula madre lievito e il volume delle ife emergenti (ρ = 0,63; Figura 5C). Inoltre, lo spessore delle ife non ha mostrato una correlazione altrettanto forte con la lunghezza delle ife quanto il volume delle ife (Figura 5A,D). Il volume della cellula madre, la lunghezza delle ife e lo spessore delle ife non hanno mostrato differenze statisticamente significative nelle loro correlazioni (Figura 5B,D). Queste distribuzioni geometriche suggeriscono che un volume iniziale maggiore della cellula madre lievito non deve necessariamente portare a ife più lunghe o a un volume maggiore.
In sintesi, questi risultati dimostrano l'utilità sia della piastra con pozzetti a inserto a membrana sia dei saggi basati sul CFS per visualizzare e quantificare le variazioni morfogenetiche in C. albicans senza alcun contatto fisico. I dati generati da questo protocollo rivelano diverse caratteristiche morfologiche in diversi contesti di ploidia e configurazioni del tipo di accoppiamento. Queste configurazioni sperimentali senza contatto offrono una metodologia flessibile e scalabile che può essere adattata per indagare la dinamica del segnale interspecie in diverse combinazioni microbiche.
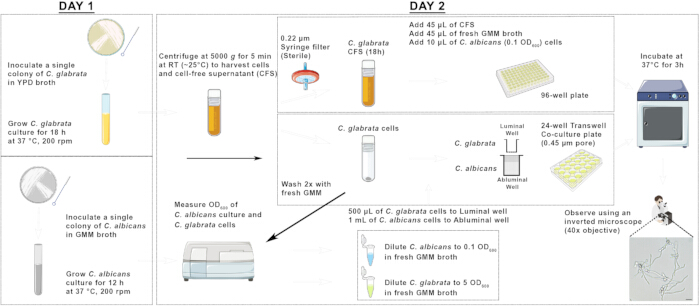
Figura 1: Rappresentazione schematica del saggio di cocoltura in piastra con inserto a membrana e dei saggi di induzione dell'ifalizzazione basati sul CFS con specie di Candida. Cliccare qui per visualizzare una versione ingrandita di questa figura.
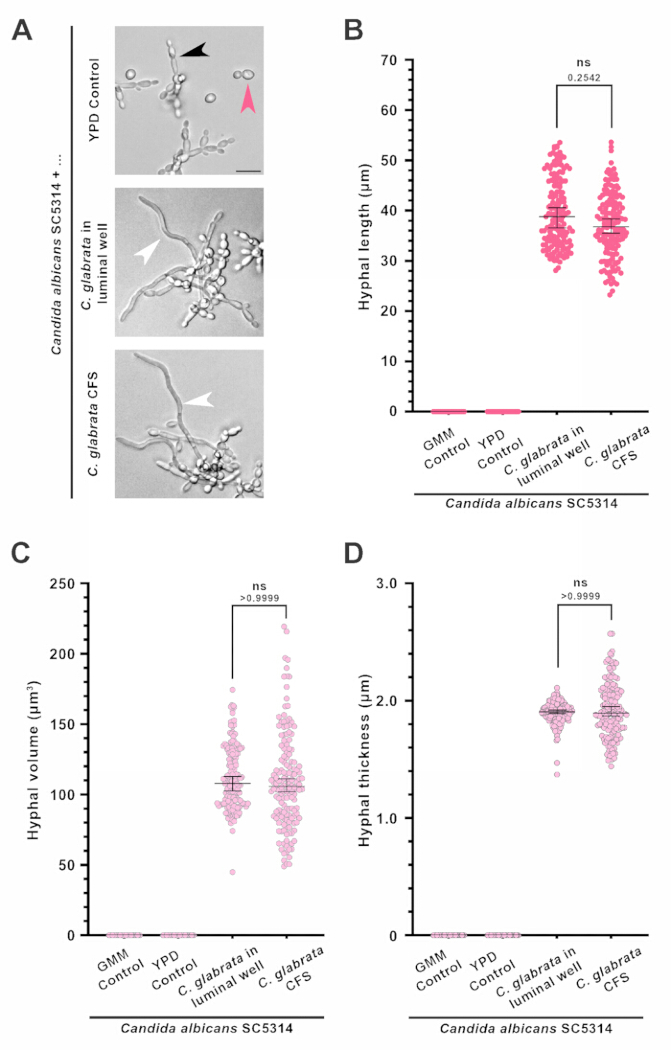
Figura 2: Confronto delle morfologie ifali osservate tra il saggio con piastra a pozzetti con inserto a membrana e i saggi senza contatto basati sul CFS. (A) Micrografie rappresentative in campo chiaro che mostrano la risposta morfologica di C. albicans a YPD (controllo), C. glabrata in un sistema con piastra a pozzetti con inserto a membrana, oppure al mezzo condizionato con il sopranatante privo di cellule di C. glabrata (CFS). Le frecce rosa, nere e bianche indicano rispettivamente lievito, pseudofe e ife vere. Barra della scala: 10 µm. Lunghezza delle ife (B), volume delle ife (C) e spessore delle ife (D) di un ceppo diploide eterozigote di C. albicans (SC5314) osservati in risposta a cellule di C. glabrata in un sistema con piastra a pozzetti con inserto a membrana o al CFS di C. glabrata. I dati rappresentano la mediana ± intervalli di confidenza al 95%, ottenuti da tre esperimenti biologici indipendenti, con n = 50 cellule. ns, non significativo: p > 0,05. Cliccare qui per visualizzare una versione ingrandita di questa figura.
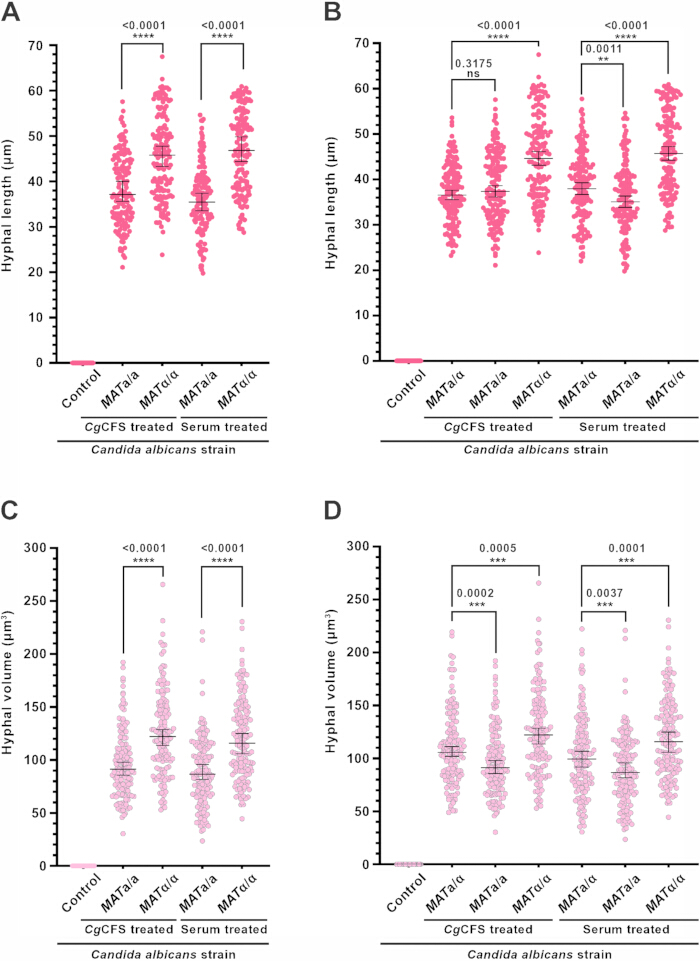
Figura 3: Il tipo di accoppiamento e lo stato di zigosità hanno effetti significativi sulla morfologia ifale nei diploidi di C. albicans. Grafici che mostrano il confronto tra le lunghezze ifali in risposta alla molecola induttrice indicata, tra diploidi omozigoti (A) e tra diploidi etero- e omozigoti (B) di C. albicans. Analogamente, i volumi ifali comparativi, in risposta alle molecole induttrici menzionate, sono mostrati tra diploidi omozigoti (C) e tra diploidi etero- e omozigoti (D). Controllo: YPD, terreno non induttivo per la formazione di ife. I dati rappresentano la mediana ± intervalli di confidenza al 95%, derivati da tre esperimenti biologici indipendenti, con n = 50 cellule. I valori p indicati in alto nel grafico sono stati determinati mediante test del rango con somma di Wilcoxon. **: p < 0,01, ***: p < 0,001, ****: p < 0,0001, statisticamente significativo; ns, non significativo: p > 0,05. Cliccare qui per visualizzare una versione ingrandita di questa figura.
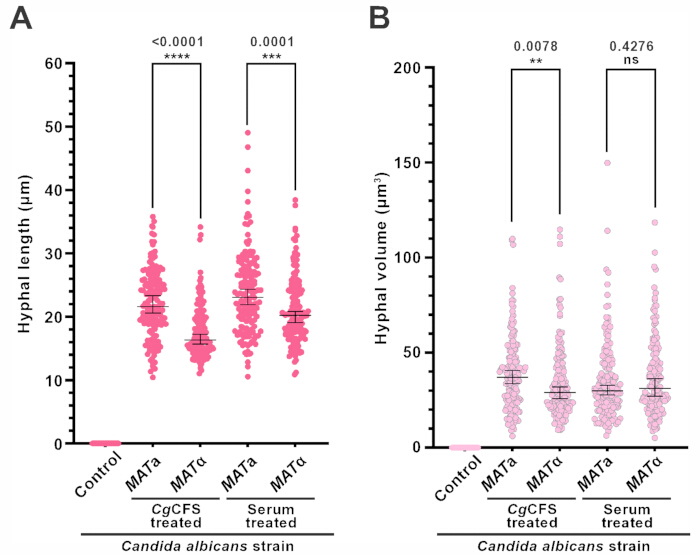
Figura 4: Caratteristiche ifali di C. albicans aploide in risposta a diversi induttori molecolari. I grafici mostrano la lunghezza degli ife (A) e il volume degli ife (B) in ceppi aploidi di C. albicans in risposta all'induttore indicato. Controllo: YPD, mezzo di controllo non induttivo per la formazione di ife. I dati rappresentano la mediana ± intervallo di confidenza al 95%, ottenuti da tre esperimenti biologici indipendenti, con n = 50 cellule. I numeri indicati riportano i valori di p, calcolati tramite il test di Wilcoxon. **: p < 0,01, ***: p < 0,001, ****: p < 0,0001, statisticamente significativo; ns, non significativo: p > 0,05. Cliccare qui per visualizzare una versione ingrandita di questa figura.
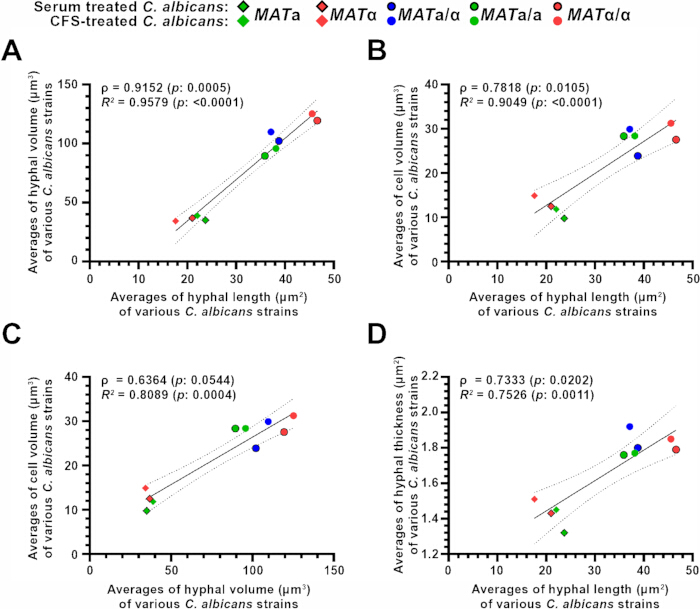
Figura 5: Correlazione tra i parametri morfologici in relazione alla ploidia di C. albicans. I grafici mostrano la correlazione di Spearman e la regressione lineare tra i parametri morfologici utilizzati in questo studio, ovvero volume delle ife e lunghezza delle ife (A), volume cellulare e lunghezza delle ife (B), volume cellulare e volume delle ife (C), e spessore delle ife e lunghezza delle ife (D). ρ: coefficiente di correlazione di Spearman; R2: coefficiente di determinazione ottenuto dall'analisi di regressione lineare; p: valore p. Cliccare qui per visualizzare una versione ingrandita di questa figura.
| Stirpe | Specie | Ploidia | Genotipo | Fonte |
| CBS138 | Candida glabrata | Aploide (1n) | MATα | ATCC 2001 |
| SC5314 | Candida albicans | Diploide (2n) | Eterozigote (MATa/α) | ATCC MYA-2876 |
| RBY1132 | Candida albicans | Diploide (2n) | Omozigote (MATa/a); arg4Δ/arg4Δ, leu2Δ/leu2Δ, his1Δ/his1Δ, URA3/ura3Δ | Schaefer, D., Côte, P., Whiteway, M., Bennett, R.J. Barrier Activity in Candida albicans Mediates Pheromone Degradation and Promotes Mating. Eukaryotic Cell. 6 (6), 907–918, doi: 10.1128/ec.00090-07 (2007). |
| RBY1133 | Candida albicans | Diploide (2n) | Omozigote (MATα/α); arg4Δ/arg4Δ, leu2Δ/leu2Δ, his1Δ/his1Δ, URA3/ura3Δ | |
| GZY896 | Candida albicans | Aploide (1n) | Omozigote (MATa); ura3∆::imm434 his4 gal1∆::ura3∆::HIS4 | Hickman, M.A. et al. The ‘obligate diploid’ Candida albicans forms mating-competent haploids. Nature. 494 (7435), 55–59, doi: 10.1038/nature11865 (2013). |
| GZY803 | Candida albicans | Aploide (1n) | Omozigote (MATα); his4 ura3Δ::HIS4 |
Tabella 1: Ceppi di Candida albicans e Candida glabrata utilizzati in questo studio. La tabella riporta le denominazioni, i genotipi specifici, gli stati di ploidia e la zigosità del tipo di coniugazione dei ceppi fungini valutati nei saggi di co-coltura in piastre con inserti a membrana senza contatto e basati su supernatante privo di cellule (CFS).
Tabella supplementare 1: Dati delle analisi statistiche effettuate su vari parametri morfologici di C. albicans. Cliccare qui per scaricare il file.
Tabella Supplementare 2: Valori grezzi di tutti i replicati biologici dei vari parametri morfologici di C. albicans valutati in questo studio.Cliccare qui per scaricare il file.
File Supplementare 1: Elenco dei mezzi utilizzati in questo studio con le relative composizioni.Cliccare qui per scaricare il file.
Discussione
Un rapporto precedente, che utilizzava una piastra con pozzetti a inserto a membrana e un saggio basato sul CFS, ha mostrato che C. albicans sviluppa ife in risposta a cellule di C. glabrata o al loro CFS. Tuttavia, questa risposta non è stata indotta da altri lieviti, come Saccharomyces cerevisiae e Candida dubliniensis30. Inoltre, questa risposta ifale non si è limitata soltanto al ceppo di riferimento di laboratorio C. albicans SC5314, ma si è verificata anche in altri contesti genomici, inclusa la linea clinica WUM5A30. In questo protocollo, un flusso di lavoro standardizzato è stato sviluppato sulla base di questi risultati per quantificare tre parametri morfologici: lunghezza degli ife, volume degli ife e spessore degli ife. Inoltre, questi parametri morfologici sono stati utilizzati per valutare come le variazioni nel grado di ploidia e nello stato del locus del tipo di accoppiamento influenzino le caratteristiche morfologiche di C. albicans in risposta a una molecola induttrice secreta.
Le metodologie senza contatto descritte qui forniscono un semplice schema sperimentale per visualizzare e analizzare gli esiti morfometrici di segnali solubili interspecifici. Mentre la piastra con pozzetti a inserto membranoso permette una diffusione bidirezionale tra colture attive, il saggio basato sul CFS offre un formato scalabile poiché i componenti induttivi richiesti vengono raccolti indipendentemente dalla coltura bersaglio finale. È necessario mantenere un rapporto di circa 1:50 (C. albicans rispetto a C. glabrata) nell’impostazione della piastra con pozzetti a inserto membranoso per garantire la coerenza del saggio. Questo gradiente di concentrazione assicura un flusso adeguato di molecole induttive solubili attraverso la barriera membranosa, rimanendo al di sotto delle soglie di accumulo degli inibitori endogeni del quorum sensing, come il farnesolo, che possono inibire la cinetica di filamentazione di C. albicans31,32. Analogamente, un passaggio fondamentale nel saggio basato sul CFS è il periodo di incubazione di 18 ore necessario affinché la coltura di C. glabrata raggiunga uniformemente la fase stazionaria tardiva. Se il periodo di incubazione della coltura di C. glabrata è inferiore a 12 ore o superiore a 24 ore, il CFS raccolto avrà meno probabilità di contenere una concentrazione ottimale della molecola induttrice specifica oggetto dello studio, portando a un’induzione subottimale delle ife. Lo stadio di crescita appropriato per raccogliere il CFS o il rapporto tra le colture deve essere standardizzato per ogni nuovo obiettivo sperimentale e/o per nuove combinazioni di specie microbiche.
Per massimizzare la riproducibilità del saggio in diversi contesti di laboratorio, si raccomandano le seguenti affinazioni procedurali chiave. Si raccomanda l'uso del mezzo minimo di glucosio (GMM) per la coltivazione notturna di tutte le linee diploidi di C. albicans. L'uso del GMM sopprime l'autofilamentazione di fondo spesso osservata nel mezzo ricco di nutrienti YPD. Tale autofilamentazione è stata osservata anche in altri studi, sebbene il meccanismo sottostante non sia ancora chiaro33. Si raccomanda inoltre la rimozione fisica completa dell'inserto in membrana di policarbonato prima dell'acquisizione delle immagini, per eliminare la dispersione della luce e le aberrazioni ottiche che potrebbero interferire durante la microscopia in campo chiaro ad alto ingrandimento.
Sebbene queste configurazioni senza contatto aiutino a separare i ruoli dei componenti solubili del segnale, presentano specifiche difficoltà sperimentali. Ad esempio, i saggi senza contatto sono soggetti a rischi minori, come la rottura della membrana dovuta a un manipolamento improprio e, di conseguenza, al passaggio di microrganismi da un compartimento all'altro. Pertanto, è necessario prestare attenzione durante la posizionatura delle punte della pipetta, accertandosi che tocchino le pareti della camera degli inserti e non la membrana, durante il campionamento. Inoltre, può verificarsi una cross-contaminazione fisica tra i compartimenti a causa di dimensioni dei pori non corrette (troppo grandi), problema facilmente risolvibile utilizzando inserti con una dimensione adeguata dei pori della membrana. La sovracrescita fungina o un'eccessiva deposizione di biofilm può ricoprire la membrana porosa. Questo inconveniente viene affrontato limitando l'inoculo iniziale a un OD600 = 0,1 e non incubando per più di 12 ore. Inoltre, i microrganismi potrebbero non distribuirsi in modo omogeneo all'interno delle pozzette del dispositivo, tendendo spesso ad aggregarsi o ad aderire in prossimità della membrana, il che può portare a bias imprevisti nelle misurazioni della densità ottica. Inoltre, poiché questi sistemi separano fisicamente le due popolazioni, non possono replicare o valutare interazioni che dipendono dal contatto diretto tra cellule. Ad esempio, la maturazione di biofilm misti, la co-aggregazione meccanica o il segnale mediato da adesine della parete cellulare ancorate alla superficie. Sebbene questi saggi su piastre forniscono un'istantanea efficace della cinetica iniziale della filamentazione (a 3 h), non riescono a catturare la dinamica della crescita a lungo termine né il comportamento spaziale. Per ricercatori che necessitano di un monitoraggio continuo in tempo reale per periodi prolungati, canali di perfusione microfluidici specializzati o camere per imaging cellulare vitale automatizzate potrebbero rappresentare un'alternativa più adatta.
La geometria cellulare è fondamentalmente collegata all'efficienza metabolica, con il rapporto tra area superficiale e volume (SA/V) che funge da fattore chiave per l'acquisizione di nutrienti e il trasporto intracellulare. Nei funghi dimorfi e filamentosi, la transizione verso un morfotipo iflico allungato rappresenta un adattamento strutturale per mantenere un rapporto SA/V ottimizzato. Ciò consente un assorbimento distribuito dei nutrienti lungo la parete allungata del filamento, sostenendo al contempo processi metabolici diretti verso l'apice dell'ifite34,35,36,37. Tuttavia, il nostro studio dimostra che la scala morfometrica non è proporzionalmente uniforme tra diversi stati di ploidia e configurazioni del locus del tipo di accoppiamento.
I set di dati morfometrici generati tramite questo protocollo di tracciamento rivelano chiari trend di scala strutturale correlati alla ploidia, con linee aploidi che mostrano costantemente valori assoluti inferiori rispetto ai ceppi corrispondenti diploidi in tutte le metriche geometriche (Figura 5). All'interno dello sfondo diploide, la configurazione omozigote MATα/α ha mostrato un'accelerazione della cinetica di filamentazione (lunghezza e volume) rispetto ai ceppi MATa/a o MATa/α in queste condizioni in vitro. Considerando che una filamentazione potenziata è spesso associata a una maggiore capacità di penetrazione, non è chiaro perché gli isolati clinici di C. albicans vengano prevalentemente ottenuti come diploidi eterozigoti (MATa/α). È possibile che, all'interno di un ospite immunocompetente, lo stato eterozigote conferisca un vantaggio di fitness più ampio per la colonizzazione commensale a lungo termine. In altre parole, le caratteristiche strutturali del morfotipo MATa/α sono ottimizzate per la sopravvivenza contro il sistema immunitario dell'ospite. Pertanto, studi futuri dovrebbero sfruttare questi sistemi standardizzati di co-coltura per valutare sistematicamente il fitness comparativo dei diversi omozigoti per tipo di accoppiamento sotto diverse pressioni selettive.
Studi precedenti hanno dimostrato che la morfologia vacuolare, la dinamica di fissione e fusione e l'espansione strutturale svolgono un ruolo importante nella gestione del volume interno e della pressione di turgore dei filamenti fungini in allungamento. Ad esempio, nel patogeno del brusone del riso Magnaporthe oryzae, le transizioni distinte tra ife vegetative sottili e strutture invasive bulbiformi sono strettamente coordinate con cambiamenti nell'organizzazione vacuolare38,39,40. Tuttavia, il presente protocollo non ha monitorato direttamente la dinamica vacuolare durante la filamentazione di C. albicans; l'analisi di questi cambiamenti negli organelli interni in relazione al volume strutturale totale rappresenta una direzione interessante per futuri studi. Inoltre, sono necessarie ulteriori ricerche per determinare perché specifici componenti del secretoma fungino inducono cinetiche di scala morfologica diverse rispetto agli induttori chimici di origine ospite, come il siero.
I metodi di co-colture senza contatto descritti in questo protocollo possono essere adattati per studiare interazioni interspecifiche e trans-regno, come la dinamica di segnalazione tra popolazioni batteriche opportuniste e funghi dimorfi. Inoltre, poiché questi formati da 96 e da 24 pozzetti sono scalabili, questa piattaforma quantitativa può essere utilizzata per schermate chimiche. Tra questi esempi vi è l'identificazione di inibitori a basso peso molecolare o di nuovi composti antifungini in grado di interrompere selettivamente le vie di filamentazione stimolate dal secretoma, senza influire direttamente sulla vitalità cellulare di base.
Dichiarazioni
Gli autori dichiarano di non avere interessi concorrenti o in conflitto.
Ringraziamenti
Questo lavoro è stato sostenuto dalla borsa di studio intermedia DBT-Wellcome Trust India Alliance (IA/I/19/1/504294) assegnata a RNP. KBSS è stato sostenuto dal contributo speciale per la ricerca dell'Università di Ahmedabad (AU/SRG/SAS/20-21/07_KS_03.25) e dal contributo SERB per la ricerca fondamentale (URBSASE23A6/SERB/23-24/KS_02.27). Le icone utilizzate nella Figura 1 sono state adattate da Servier Medical Art (https://smart.servier.com/), con licenza CC BY 4.0 (https://creativecommons.org/licenses/by/4.0/), e da BioArt Source, NIAID, NIH.
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| Filtro per siringa PES da 0,22 μm | Millipore (Merck) | SLGPR33RS | |
| Agar agar | HiMedia | GRM666 | |
| Glucosio | HiMedia | GRM016 | |
| Piastra portante Nunc da 24 pozzetti con inserti per coltura cellulare (0,4 μm) | Thermo Scientific | 141002 | |
| Nunc BioLite Multidish da 96 pozzetti, trattata per coltura cellulare, fondo piatto | Thermo Scientific | 130188 | |
| Peptone proteoso | HiMedia | RM005 | |
| Uridina | Sigma | U6381 | |
| Estratto di lievito | HiMedia | RM027 | |
| Base di azoto per lieviti, con solfato di ammonio, senza aminoacidi | HiMedia | M878 |
Riferimenti
- Peleg AY, Hogan DA, Mylonakis E. Medically important bacterial-fungal interactions. Nat Rev Microbiol. 2010;8(5):340-349.
- Waters CM, Bassler BL. Quorum sensing: cell-to-cell communication in bacteria. Annu Rev Cell Dev Biol. 2005;21:319-346.
- Foster KR, Bell T. Competition, not cooperation, dominates interactions among culturable microbial species. Curr Biol. 2012;22(19):1845-1850.
- Carolus H, Van Dyck K, Van Dijck P. Candida albicans and Staphylococcus species: a threatening twosome. Front Microbiol. 2019;10:2162.
- Pasman R, et al. Candida albicans and Staphylococcus aureus reciprocally promote their virulence factor secretion and pro-inflammatory effects. Front Cell Infect Microbiol. 2025;15:1629373.
- Grandclément C, Tannières M, Moréra S, Dessaux Y, Faure D. Quorum quenching: role in nature and applied developments. FEMS Microbiol Rev. 2016;40(1):86-116.
- Goers L, Freemont P, Polizzi KM. Co-culture systems and technologies: taking synthetic biology to the next level. J R Soc Interface. 2014;11(96):20140065.
- Burmeister A, Grünberger A. Microfluidic cultivation and analysis tools for interaction studies of microbial co-cultures. Curr Opin Biotechnol. 2020;62:106-115.
- Kapoore RV, Padmaperuma G, Maneein S, Vaidyanathan S. Co-culturing microbial consortia: approaches for applications in biomanufacturing and bioprocessing. Crit Rev Biotechnol. 2022;42(1):46-72.
- Kalluri R. The biology and function of fibroblasts in cancer. Nat Rev Cancer. 2016;16(9):582-598.
- Deveau A, et al. Bacterial-fungal interactions: ecology, mechanisms and challenges. FEMS Microbiol Rev. 2018;42(3):335-352.
- Temkin MI, Carlson CM, Stubbendieck AL, Currie CR, Stubbendieck RM. High throughput co-culture assays for the investigation of microbial interactions. J Vis Exp. 2019;(152). doi:10.3791/60275.
- Cecchelli R, et al. A stable and reproducible human blood-brain barrier model derived from hematopoietic stem cells. PLoS One. 2014;9(6):e99733.
- Wodzanowski KA, Cassel SE, Grimes CL, Kloxin AM. Tools for probing host-bacteria interactions in the gut microenvironment: from molecular to cellular levels. Bioorg Med Chem Lett. 2020;30(10):127116.
- Luo Y, McAuley DF, Fulton CR, Pessoa JS, McMullan R, Lundy FT. Targeting Candida albicans in dual-species biofilms with antifungal treatment reduces Staphylococcus aureus and MRSA in vitro. PLoS One. 2021;16(4):e0249547.
- Justus CR, Marie MA, Sanderlin EJ, Yang LV. Transwell in vitro cell migration and invasion assays. Methods Mol Biol. 2023;2644:349-359.
- McCarty NS, Ledesma-Amaro R. Synthetic biology tools to engineer microbial communities for biotechnology. Trends Biotechnol. 2019;37(2):181-197.
- Virgo M, Mostowy S, Ho BT. Emerging models to study competitive interactions within bacterial communities. Trends Microbiol. 2025;33(6):688-700.
- Moutinho TJ, Panagides JC, Biggs MB, Medlock GL, Kolling GL, Papin JA. Novel co-culture plate enables growth dynamic-based assessment of contact-independent microbial interactions. PLoS One. 2017;12(8):e0182163.
- Gnecchi M, Zhang Z, Ni A, Dzau VJ. Paracrine mechanisms in adult stem cell signaling and therapy. Circ Res. 2008;103(11):1204-1219.
- Hogan DA, Vik Å, Kolter R. A Pseudomonas aeruginosa quorum-sensing molecule influences Candida albicans morphology. Mol Microbiol. 2004;54(5):1212-1223.
- Poon Y, Hui M. Inhibitory effect of lactobacilli supernatants on biofilm and filamentation of Candida albicans, Candida tropicalis, and Candida parapsilosis. Front Microbiol. 2023;14. doi:10.3389/fmicb.2023.1105949.
- Huh D, Matthews BD, Mammoto A, Montoya-Zavala M, Hsin HY, Ingber DE. Reconstituting organ-level lung functions on a chip. Science. 2010;328(5986):1662-1668.
- Huh D, et al. Microfabrication of human organs-on-chips. Nat Protoc. 2013;8(11):2135-2157.
- Bhatia SN, Ingber DE. Microfluidic organs-on-chips. Nat Biotechnol. 2014;32(8):760-772.
- Itani A, Shida Y, Ogasawara W. A microfluidic device for simultaneous detection of enzyme secretion and elongation of a single hypha. Front Microbiol. 2023;14:1125760.
- Beneyton T, Thomas S, Griffiths AD, Nicaud JM, Drevelle A, Rossignol T. Droplet-based microfluidic high-throughput screening of heterologous enzymes secreted by the yeast Yarrowia lipolytica. Microb Cell Fact. 2017;16:18.
- Xu XL, et al. Bacterial peptidoglycan triggers Candida albicans hyphal growth by directly activating the adenylyl cyclase Cyr1p. Cell Host Microbe. 2008;4(1):28-39.
- Yeast extract-peptone-dextrose (YPD) medium (liquid or solid). Cold Spring Harb Protoc. 2017;2017(8):pdb.rec090563.
- Parnandi VA, Trivedi PM, Panchal H, Suryawanshi G, Patkar RN. A small Candida glabrata protein promotes hyphal growth in C. albicans during mixed-species invasive candidiasis. Curr Biol. 2026;36(1):1-15.e9.
- Davis-Hanna A, Piispanen AE, Stateva LI, Hogan DA. Farnesol and dodecanol effects on the Candida albicans Ras1-cAMP signalling pathway and the regulation of morphogenesis. Mol Microbiol. 2008;67(1):47-62.
- Polke M, et al. A functional link between hyphal maintenance and quorum sensing in Candida albicans. Mol Microbiol. 2017;103(4):595-617.
- Su C, Yu J, Sun Q, Liu Q, Lu Y. Hyphal induction under the condition without inoculation in Candida albicans is triggered by Brg1-mediated removal of NRG1 inhibition. Mol Microbiol. 2018;108(4):410-423.
- Senesi N, Wilkinson KJ. Biophysical Chemistry of Fractal Structures and Processes in Environmental Systems. Chichester: John Wiley & Sons; 2008: ISBN: 978-0-470-01474-5.
- Bayry J, Aimanianda V, Guijarro JI, Sunde M, Latgé JP. Hydrophobins—unique fungal proteins. PLoS Pathog. 2012;8(5):e1002700.
- Ojkic N, Serbanescu D, Banerjee S. Surface-to-volume scaling and aspect ratio preservation in rod-shaped bacteria. eLife. 2019;8:e47033.
- Li X, de Souza RA, Heinemann M. The rate of glucose metabolism sets the cell morphology across yeast strains and species. Curr Biol. 2025;35(4):788-798.e4.
- Mochizuki S, Minami E, Nishizawa Y. Live-cell imaging of rice cytological changes reveals the importance of host vacuole maintenance for biotrophic invasion by blast fungus, Magnaporthe oryzae. MicrobiologyOpen. 2015;4(6):952-966.
- Fernandez J, Orth K. Rise of a cereal killer: the biology of Magnaporthe oryzae biotrophic growth. Trends Microbiol. 2018;26(7):582-597.
- Wengler MR, Talbot NJ. Mechanisms of regulated cell death during plant infection by the rice blast fungus Magnaporthe oryzae. Cell Death Differ. 2025;32(5):793-801.
Ristampe e permessi
