Questa revisione sintetizza le evidenze sul controllo della qualità mitocondriale (biogenesi, dinamica e mitofagia) attraverso le fasi della spermatogenesi, collegando i cambiamenti metabolici e la rimodellazione strutturale all'infertilità maschile e identificando lacune metodologiche per indirizzare ricerche future.
Articolo di revisione
Controllo della qualità mitocondriale: un guardiano della spermatogenesi
In questo articolo
Sommario
Abstract
L'infertilità maschile è in aumento a livello mondiale. La spermatogenesi richiede un elevato dispendio energetico ed è strettamente collegata al controllo della qualità mitocondriale (MQC), che comprende biogenesi, dinamica di fusione–fissione e mitofagia. In questo articolo sintetizziamo le evidenze attuali relative alle diverse fasi di sviluppo delle cellule germinali, evidenziando i passaggi specifici per ciascuna fase, dal metabolismo supportato dalla glicolisi alla produzione di ATP dominata dalla fosforilazione ossidativa (OXPHOS), nonché la riorganizzazione della struttura mitocondriale in una guaina del pezzo intermedio. Riassumiamo dati genetici e funzionali che implicano OPA1/MFN1-2 nella fusione delle membrane interna ed esterna, DRP1/FIS1/MFF nella fissione e nell'organizzazione della guaina, e i ruoli della mitofagia dipendente e indipendente dal complesso PINK1–Parkin nel controllo della qualità mitocondriale, pur riconoscendo che la rimozione del citoplasma e il mantenimento dell'acrosoma durante la spermiogenesi potrebbero coinvolgere l'autofagia generale piuttosto che specificamente la mitofagia. Un malfunzionamento mitocondriale—eccessiva produzione di specie reattive dell'ossigeno (ROS), collasso del potenziale della membrana mitocondriale (MMP), dinamiche deregolate o mitofagia difettosa—compromette la spermatogenesi e la funzionalità degli spermatozoi. Identifichiamo inoltre lacune metodologiche che limitano la traslazione dei risultati, in particolare la mancanza di fenotipizzazione standardizzata e di evidenze genetiche umane. Chiarire la causalità e la farmacologia del MQC potrebbe sostenere future ricerche diagnostiche o terapeutiche nell'ambito dell'infertilità maschile.
Introduzione
La qualità dello sperma sta diminuendo a livello globale e l'incidenza dell'infertilità maschile causata da una qualità spermatica anomala è in aumento1. Una recente meta-analisi ha mostrato che tra il 1973 e il 2011, il numero di spermatozoi negli uomini provenienti da Nord America, Europa, Australia e Nuova Zelanda è diminuito del 50–60%2, e questo declino si è accelerato dal 20003. Il calo accelerato della qualità dello sperma è stato riportato in tutto il mondo2,3,4,5,6. Le cause di questo declino richiedono ulteriori studi e misure mirate per proteggere la fertilità maschile.
La spermatogenesi avviene nei tubuli seminiferi del testicolo. Si tratta di un processo ondulatorio che coinvolge specifiche combinazioni di cellule spermatogenetiche lungo l'asse longitudinale dei tubuli seminiferi, portando infine le cellule staminali spermatogoniali (SSCs) a proliferare e differenziarsi in spermatozoi7. La spermatogenesi nei mammiferi è uno dei processi di differenziazione biologici più complessi e lunghi. Negli esseri umani, un ciclo completo di spermatogenesi dura da 64 a 74 giorni, con ciascun ciclo dell'epitelio seminifero che ha una durata di 16 giorni. Questo processo intricato comporta notevoli cambiamenti nella forma, nel numero e nella distribuzione dei mitocondri8.
Il controllo della qualità mitocondriale (MQC) — i processi coordinati di biogenesi mitocondriale, fusione, fissione e mitofagia selettiva — mantiene l'integrità dell'organello in risposta a richieste bioenergetiche variabili8,9. Nel testicolo, il MQC è specifico per stadio e supporta la transizione da spermatogoni in proliferazione alla meiosi e alla spermiogenesi, culminando nell'assemblaggio di una guaina mitocondriale strettamente compatta nella parte mediale dello spermatozoo9. Figura 1 illustra il meccanismo del MQC durante la spermatogenesi. L'alterazione dei componenti del MQC può portare a una spermatogenesi difettosa e a subfertilità in diversi organismi modello e nell'uomo. Questa revisione integra le attuali conoscenze meccanicistiche e delinea opportunità di traslazione clinica.
Revisione e prospettiva
Spermatogenesi e metabolismo energetico mitocondriale
La spermatogenesi comprende tre fasi sequenziali: proliferazione mitotica, meiosi e spermiogenesi, che coinvolgono la proliferazione degli spermatogoni, la loro differenziazione in spermatociti, la divisione meiotica, la maturazione degli spermatidi e la spermiazione nel lume dei tubuli seminiferi. Gli spermatogoni sono classificati in tipi di riserva e di rinnovamento. Alcuni spermatogoni vengono mantenuti come cellule staminali, mentre altri partecipano alla spermatogenesi attraverso la differenziazione. Inoltre, alcuni subiscono morte cellulare programmata, come l'apoptosi. Gli spermatociti primari diploidi subiscono due cicli di divisione meiotica per differenziarsi in spermatidi aploidi. Durante la spermiogenesi, gli spermatidi rotondi non si dividono più e si trasformano in spermatidi altamente allungati, che infine si sviluppano in spermatozoi maturi.
La spermatogenesi richiede interazioni coordinate tra le cellule germinali (inclusi spermatogoni, spermatociti, spermatidi e spermatozoi) e le cellule di Sertoli di sostegno, nonché il mantenimento dell'integrità della barriera emato-testicolare10,11. La barriera emato-testicolare, formata da giunzioni strette tra cellule di Sertoli adiacenti, divide l'epitelio seminifero in compartimenti basale e adluminale, creando e mantenendo così un microambiente specializzato essenziale per lo sviluppo delle cellule germinali11,12. Di conseguenza, la spermatogenesi—da cellule staminali spermatogoniali a spermatozoi maturi—avviene all'interno di questo microambiente testicolare unico. Il processo di produzione dello sperma dipende fortemente dalla funzione mitocondriale13. In quanto centro del metabolismo energetico nelle cellule eucariotiche, i mitocondri sono considerati essenziali per la produzione dello sperma. La generazione di spermatozoi è altamente dipendente dall'apporto energetico e dalle funzioni di segnalazione dei mitocondri. Nelle cellule germinali in via di sviluppo, i mitocondri non solo forniscono l'ATP essenziale per la spermatogenesi, ma influenzano anche il processo partecipando alla segnalazione intracellulare, alla regolazione del ciclo cellulare e alla morte cellulare programmata13. Nelle cellule di Leydig, i mitocondri svolgono un ruolo cruciale nella produzione di ormoni steroidei, e la sintesi mitocondriale di ATP è necessaria per la produzione di testosterone in queste cellule interstiziali testicolari14. Inoltre, essendo l'unico organulo dotato di DNA indipendente, il DNA mitocondriale è strettamente correlato alla qualità dello sperma. Pertanto, comprendere lo stato mitocondriale e i suoi meccanismi regolatori è fondamentale per svelare il processo della spermatogenesi e mantenere la fertilità maschile.
Il metabolismo energetico è fondamentale per la spermatogenesi, processo che richiede una notevole quantità di ATP. Le due vie principali di produzione dell'ATP sono la fosforilazione ossidativa mitocondriale (OXPHOS) e la glicolisi. L'apporto di ATP dipende dalla fase; mentre la OXPHOS diventa sempre più importante durante la meiosi e la formazione del pezzo intermedio, la glicolisi contribuisce in modo significativo alla produzione di ATP, in particolare negli spermatozoi maturi. La glicolisi sostiene inoltre la maturazione spermatica, la motilità e il passaggio attraverso il tratto riproduttivo femminile fornendo un'energia flessibile e rapidamente disponibile.
Tuttavia, negli spermatogoni e negli spermatociti precoci, i mitocondri sono relativamente piccoli e mostrano un'attività OXPHOS limitata. Man mano che la spermatogenesi progredisce verso stadi più avanzati, come spermatociti, spermatidi e spermatozoi, i mitocondri subiscono un rimodellamento e la loro attività OXPHOS diventa più concentrata spazialmente ed efficiente. Inoltre, a causa della barriera emato-testicolare, i substrati disponibili variano tra gli stadi. Gli spermatogoni, situati nel compartimento basale dell'epitelio seminifero, possono accedere al glucosio circolante e produrre energia attraverso la glicolisi. Al contrario, gli spermatociti e gli spermatidi nel compartimento adluminale sono separati dal sangue e dall'interstizio dalla barriera emato-testicolare e dipendono dalle cellule di Sertoli per assorbire il glucosio tramite trasportatori del glucosio (GLUT), convertendolo in piruvato mediante glicolisi. Il piruvato viene poi convertito in lattato dalla lattato deidrogenasi (LDH). Il lattato è trasportato negli spermatociti tramite trasportatori di monocarbossilati (MCT), dove viene riconvertito in piruvato da LDH, che può quindi essere convertito in acetil-CoA dalla piruvato deidrogenasi (PDH) per entrare nel ciclo dell'acido tricarbossilico (TCA). Infine, il piruvato viene trasportato nei mitocondri tramite il trasportatore mitocondriale del piruvato per favorire l'OXPHOS.
Danno alla spermatogenesi dovuto a disfunzione mitocondriale
Durante la spermiazione, gli spermatozoi maturi vengono rilasciati dalle cellule di Sertoli nella cavità dei tubuli seminiferi e successivamente trasportati nell'epididimo. Questo processo richiede un notevole apporto energetico proveniente dai mitocondri. Quando la funzione mitocondriale è compromessa, la spermatogenesi viene ostacolata. I segni principali della disfunzione mitocondriale includono la produzione eccessiva di specie reattive dell'ossigeno (ROS), alterazioni del potenziale della membrana mitocondriale (MMP), squilibri nella dinamica di fissione e fusione mitocondriale, biogenesi mitocondriale compromessa, mitofagia difettosa e alterazione dell'omeostasi degli ioni calcio.
Il processo attraverso cui i mitocondri producono ATP mediante la fosforilazione ossidativa è accompagnato anche dalla produzione di specie reattive dell'ossigeno (ROS). I mitocondri rappresentano la principale fonte di ROS, che vengono generati principalmente nei complessi I e III della catena di trasporto degli elettroni mitocondriale (ETC)15. In condizioni fisiologiche normali, livelli appropriati di ROS partecipano a vie di segnalazione che regolano la spermatogenesi. Tuttavia, un'eccessiva produzione di ROS può portare a uno squilibrio redox, causando stress ossidativo e compromettendo la spermatogenesi. Pertanto, l'equilibrio tra il metabolismo energetico mitocondriale e la produzione di ROS è un fattore chiave per garantire la spermatogenesi.
Un'efficiente OXPHOS mitocondriale richiede l'ingresso di substrati carboniosi respiratori (ad esempio, piruvato, acidi grassi) attraverso la membrana mitocondriale esterna nello spazio intermembrana. Questi substrati vengono quindi trasportati nella matrice tramite trasportatori localizzati nella membrana mitocondriale interna, dove partecipano al ciclo dell'acido tricarbossilico (TCA). Nel ciclo TCA, questi substrati carboniosi subiscono una degradazione ossidativa, producendo nicotinammide adenina dinucleotide (NADH) e flavina adenina dinucleotide (FADH2). Questi prodotti donano elettroni alla catena di trasporto degli elettroni (ETC), alimentando l'OXPHOS per la sintesi di ATP da ADP e fosfato inorganico (Pi). Interruzioni nel ciclo TCA o nei percorsi della catena di trasporto degli elettroni possono compromettere la produzione degli spermatozoi16. Il potenziale di membrana mitocondriale (MMP), come indicatore dello stato energetico cellulare e della funzione mitocondriale, è stato associato alla motilità spermatica17 e alla capacità fecondante complessiva18.
Sotto stress mitocondriale, la fissione può isolare segmenti mitocondriali danneggiati, mentre la fusione può favorire il mescolamento del contenuto e il complemento funzionale. I mitocondri danneggiati o in eccesso possono quindi essere degradati e riciclati attraverso la mitofagia. Insieme, la biogenesi mitocondriale, la fissione, la fusione e la mitofagia costituiscono il controllo della qualità mitocondriale (MQC), che sostiene la funzione e il rimodellamento mitocondriali19.
La spermatogenesi comporta la differenziazione degli spermatogoni negli spermatozoi, processo che non solo determina notevoli cambiamenti nella morfologia cellulare, ma richiede anche il supporto e la regolazione del metabolismo energetico. Essendo le centrali energetiche della cellula, i mitocondri svolgono un ruolo fondamentale in aspetti chiave della spermatogenesi, tra cui l’approvvigionamento energetico, la trasduzione del segnale e la morte cellulare programmata. Durante la spermatogenesi, le richieste metaboliche delle cellule germinali variano in base alle diverse fasi dello sviluppo. Il numero e la morfologia dei mitocondri subiscono cambiamenti significativi nel corso della spermatogenesi. Durante la formazione degli spermatozoi, molti mitocondri vengono eliminati, mentre quelli mantenuti si organizzano nel pezzo intermedio dello spermatozoo per formare una guaina mitocondriale attorno all’assonema e alle strutture associate del flagello. Pertanto, durante la spermatogenesi, i mitocondri nelle varie cellule testicolari subiscono continuamente processi di fusione e fissione, richiedendo un meccanismo di controllo della qualità mitocondriale (MQC) efficiente e preciso per garantirne il normale funzionamento e sostenere le elevate richieste energetiche della spermatogenesi. Con la produzione degli spermatozoi, sia la morfologia che il numero dei mitocondri subiscono cambiamenti significativi, e il controllo della qualità mitocondriale svolge un ruolo cruciale in questo processo. Le principali proteine bersaglio coinvolte nel MQC sono elencate nella Tabella 1.
Spermiogenesi e dinamica mitocondriale
I mitocondri sono organelli altamente dinamici la cui morfologia, dimensione e distribuzione subcellulare vengono continuamente rimodellate attraverso la fusione e la fissione coordinate—un processo complessivamente definito dinamica mitocondriale. In condizioni fisiologiche normali, fusione e fissione esistono in un equilibrio dinamico che mantiene l'omeostasi mitocondriale, favorisce il complemento funzionale e assicura un corretto ereditarietà mitocondriale durante la divisione cellulare. L'alterazione di questo equilibrio—sia per ablazione genetica, difetti di modificazione post-traduzionale o stress patologici—compromette la funzione mitocondriale, riduce la produzione di energia e, in ultima analisi, ostacola la spermatogenesi. La regolazione precisa della dinamica mitocondriale è particolarmente critica nelle cellule germinali, poiché la spermatogenesi comporta forti cambiamenti metabolici ed estesi rimodellamenti morfologici che richiedono un adattamento specifico per ogni stadio della struttura e dell'attività mitocondriale.
La fusione mitocondriale è mediata da MFN1 e MFN2 sulla membrana mitocondriale esterna e da OPA1 sulla membrana interna, facilitando il mescolamento del contenuto, il complemento funzionale e il mantenimento dell'integrità del DNA mitocondriale. La fusione non è semplicemente una risposta difensiva, ma un meccanismo dipendente dal contesto che supporta l'ereditarietà mitocondriale e l'adattamento metabolico durante la differenziazione delle cellule germinali. Durante la differenziazione degli spermatogoni, l'espressione di MFN aumenta e la perdita di MFN1 o MFN2 provoca ossidazione del DNA e apoptosi negli spermatogoni e negli spermatociti, causando infertilità maschile20,21. Le mutazioni di MFN1 provocano atrofia testicolare nei topi, con una marcata riduzione degli spermatociti e un fallimento nella produzione di spermatozoi, mentre gli spermatogoni indifferenziati rimangono inalterati, suggerendo che MFN1 sia necessario per il progresso meiotico20. MFN2, al contrario, regola sia le funzioni mitocondriali che quelle del reticolo endoplasmatico, svolgendo un ruolo distinto nella spermatogenesi21.
La fissione mitocondriale è regolata da DRP1, che viene reclutato sulla membrana mitocondriale esterna tramite proteine adattatrici come FIS1, MFF, MID49 e MID51. Una volta reclutato, DRP1 si assembla in oligomeri a forma di anello che stringono e dividono i mitocondri in maniera dipendente dal GTP. Il processo comprende tre fasi principali: l'attivazione di DRP1 mediante fosforilazione, il reclutamento sulla membrana esterna attraverso interazioni con FIS1, MFF, MID49 e MID51, e l'assemblaggio in una struttura ad anello che circonda e stringe i mitocondri, consumando GTP e generando due organelli separati. La fissione non è semplicemente un meccanismo per eliminare i mitocondri depolarizzati o soddisfare un aumento della richiesta energetica; piuttosto, si tratta di un processo coordinato che regola la distribuzione mitocondriale, la segregazione di componenti danneggiati, l'ereditarietà durante la divisione cellulare e il rimodellamento dell'architettura mitocondriale. I topi privi di DRP1 muoiono in fase embrionale22,23; i topi carenti di MFF mostrano ridotta fertilità e conteggio spermatico, fornendo un modello prezioso per lo studio della fissione mitocondriale nello sviluppo delle cellule germinali maschili24. La fissione mitocondriale è essenziale per la corretta formazione della guaina mitocondriale durante la spermiogenesi.
La spermatogenesi richiede un notevole dispendio energetico, basandosi principalmente sulla glicolisi negli spermatogoni e sull'OXPHOS negli spermatociti e negli spermatidi. L'OXPHOS è particolarmente critico durante la meiosi, e la sua efficienza dipende da dinamiche mitocondriali integre25,26. Dopo la meiosi, MFF e altre proteine della fissione regolano la fissione mitocondriale e partecipano alla formazione della guaina mitocondriale dello spermatozoo24. Durante la spermiogenesi, alcuni mitocondri vengono selezionati e rimodellati per formare la guaina, mentre i mitocondri in eccesso e i componenti citoplasmatici vengono eliminati tramite autofagia27. Proteine come OPA1, DRP1 e MFF potrebbero rappresentare potenziali bersagli di ricerca per migliorare la funzione spermatica, ma la loro rilevanza terapeutica richiede ulteriori conferme. Un'ulteriore indagine sul controllo della qualità mitocondriale (MQC) nella spermatogenesi umana potrebbe facilitare future ricerche diagnostiche o terapeutiche nell'infertilità maschile.
Spermatogenesi e autofagia mitocondriale
La mitofagia svolge un ruolo fondamentale nella spermatogenesi28. La mitofagia implica principalmente l'inglobamento dei mitocondri danneggiati da parte degli autofagosomi. Gli autofagosomi contenenti mitocondri danneggiati si fondono successivamente con i lisosomi, e i mitocondri vengono degradati grazie all'azione lisosomiale, eliminando così i mitocondri danneggiati e assicurando un controllo di qualità. Il percorso classico dell'autofagia mitocondriale è il percorso PINK1/Parkin, ma sono stati descritti anche percorsi indipendenti da PINK1/Parkin29.
L'autofagia contribuisce al mantenimento dell'integrità dell'acrosoma, della polarizzazione degli spermatidi e della degradazione dei componenti citoplasmatici durante la spermatogenesi, anche se questi processi riflettono un'autofagia generale piuttosto che una mitofagia selettiva, a meno che non venga specificamente dimostrata l'eliminazione dei mitocondri. Studi hanno evidenziato che la mitofagia è strettamente correlata alla dinamica mitocondriale e che la fissione mitocondriale può favorire la mitofagia al fine di rimuovere mitocondri in eccesso o danneggiati30. FIS1, sebbene sia una proteina coinvolta nella fissione mitocondriale, partecipa anche alla mitofagia durante la spermatogenesi31. RAB7A è implicata nella formazione del mitofagosoma e nella maturazione dell'autofagosoma32. FIS1 interagisce con la proteina mitocondriale GTPasi-attivatrice TBC1D1533,34. TBC1D15 regola l'attività di RAB7A, che è coinvolta nella fusione delle vescicole con i lisosomi e nella maturazione degli autofagosomi34,35. Quando FIS1 è inattivato, RAB7A può rimanere attiva sulla superficie mitocondriale, causando una crescita e una tubulazione deregolata della membrana dell'autofagosoma; l'aggregazione di LC3 può essere osservata mediante microscopia ottica35. La mitofagia può inoltre verificarsi indipendentemente dalla fissione mitocondriale mediata da DRP1, pertanto la fissione non deve essere considerata obbligatoria per l'eliminazione dei mitocondri35.
Durante la spermiogenesi, gli spermatidi vengono privati di componenti cellulari in eccesso e studi hanno dimostrato che gli autofagosomi sono particolarmente abbondanti negli spermatidi36. Il gene centrale dell'autofagia Atg7 è stato associato alla polarizzazione degli spermatidi e alla rimozione del citoplasma durante la spermatogenesi; tuttavia, in questo contesto i tipi cellulari germinali precoci sembrano meno coinvolti27,36. Inoltre, la mitofagia è potenziata in modelli testicolari danneggiati, inclusi le cellule di Leydig29, le cellule staminali/sprogenitrici degli spermatogoni37,38, le cellule di Sertoli39 e i testicoli immaturi di ratto esposti a sostanze tossiche40. Nella spermatogenesi, l'autofagia mitocondriale è collegata all'apoptosi e ad altri tipi di morte cellulare programmata, influenzando così la produzione di spermatozoi nel testicolo41,42.
Contesto bibliometrico
È stata eseguita un'analisi bibliometrica mirata della Web of Science Core Collection dal 1970 al 2023 utilizzando i termini di ricerca “spermatogenesi” e “MQC”; sono stati esclusi gli studi non mammiferi e i record irrilevanti, e per la visualizzazione è stato utilizzato VOSviewer 1.6.2043. Dopo il controllo, sono stati selezionati 1.019 articoli provenienti da 1.217 istituzioni di 66 paesi e da 5.705 autori. Il numero di pubblicazioni è aumentato costantemente (Figura 2A). Gli Stati Uniti e la Cina hanno contribuito con il maggior numero di articoli (212 e 196, rispettivamente) e gli Stati Uniti hanno ottenuto il numero più alto di citazioni (12.295; Figura 2B). Le reti istituzionali e degli autori sono riassunte nelle Figure 2C,D.
L'analisi della co-occorrenza dei termini chiave (frequenza > 7) ha indicato un'enfasi sulla motilità degli spermatozoi, sullo stress ossidativo, sull'apoptosi/morte cellulare programmata, sui danni al DNA, sulla perossidazione lipidica e sulla qualità degli spermatozoi (Figura 3). Questi modelli bibliometrici supportano, ma non sostituiscono, la revisione meccanicistica: il campo di studio è concentrato principalmente sugli esiti relativi ai danni ossidativi e alla motilità, mentre le evidenze dirette sull'uomo che collegano percorsi specifici di controllo della qualità mitocondriale (MQC) all'infertilità rimangono limitate.
Conclusioni
Con l'avanzamento della biotecnologia, la ricerca sulla fertilità maschile si è spostata dalla morfologia descrittiva e dalla motilità verso i meccanismi molecolari e cellulari della spermatogenesi. I mitocondri rivestono un ruolo centrale in questo processo: generano ATP, sostengono il rimodellamento durante la meiosi e la spermiogenesi, e sono altamente sensibili ai danni ossidativi e ambientali44. Per mantenere la funzionalità sotto tali stress, i mitocondri si affidano al controllo della qualità mitocondriale (MQC), che integra biogenesi, dinamica di fusione e fissione, e mitofagia. L'alterazione di questi percorsi compromette lo sviluppo delle cellule germinali, l'architettura del pezzo intermedio degli spermatozoi e, in ultima analisi, la fertilità. In conclusione, le evidenze disponibili supportano un modello specifico per stadio, in cui la dinamica mitocondriale e la mitofagia contribuiscono a coordinare la produzione di energia, il rimodellamento degli organelli e l'eliminazione delle componenti danneggiate durante la spermatogenesi. Tuttavia, le evidenze dirette nell'uomo e la fenotipizzazione standardizzata rimangono limitate; pertanto, le proteine associate al MQC dovrebbero essere considerate come potenziali bersagli di ricerca da validare ulteriormente, piuttosto che come bersagli terapeutici definitivi.
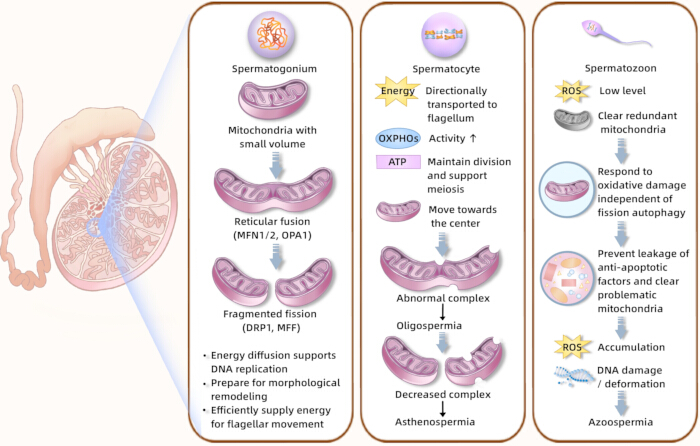
Figura 1. Il meccanismo del controllo della qualità mitocondriale durante la spermatogenesi. Metabolismo energetico e rimodellamento mitocondriale risolti per stadio nella spermatogenesi. Lo schema mostra l'accoppiamento metabolico tra cellule di Sertoli e cellule germinali, i trasportatori di glucosio, i trasportatori di monocarbossilati, la produzione di ATP, la transizione da un metabolismo sostenuto dalla glicolisi alla fosforilazione ossidativa durante la meiosi e la spermiogenesi, e i danni mitocondriali correlati alle specie reattive dell'ossigeno. Abbreviazioni: ATP = adenosina trifosfato; OXPHOS = fosforilazione ossidativa; ROS = specie reattive dell'ossigeno. Cliccare qui per visualizzare una versione ingrandita di questa figura.
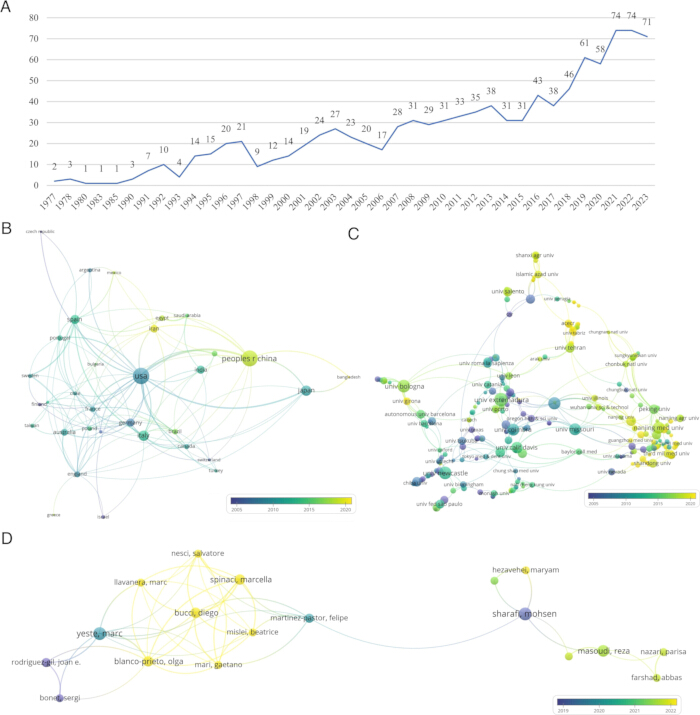
Figura 2. Analisi nazionali, istituzionali, degli autori e delle collaborazioni. (A) Numero annuo di pubblicazioni nel campo della spermatogenesi e del controllo della qualità mitocondriale (MQC). (B) Mappa della distribuzione temporale delle pubblicazioni collaborative internazionali nel campo della spermatogenesi e del MQC. (C) Mappa della distribuzione temporale delle collaborazioni istituzionali nel campo della spermatogenesi e del MQC. (D) Mappa della distribuzione temporale delle pubblicazioni degli autori nel campo della spermatogenesi e del MQC. I nodi indicano il numero di pubblicazioni; il colore dei nodi indica il periodo di pubblicazione, dal più antico al più recente; le linee rappresentano le relazioni collaborative, con linee più spesse che indicano una collaborazione più stretta. Abbreviazione: MQC = controllo della qualità mitocondriale. Cliccare qui per visualizzare una versione ingrandita di questa figura.
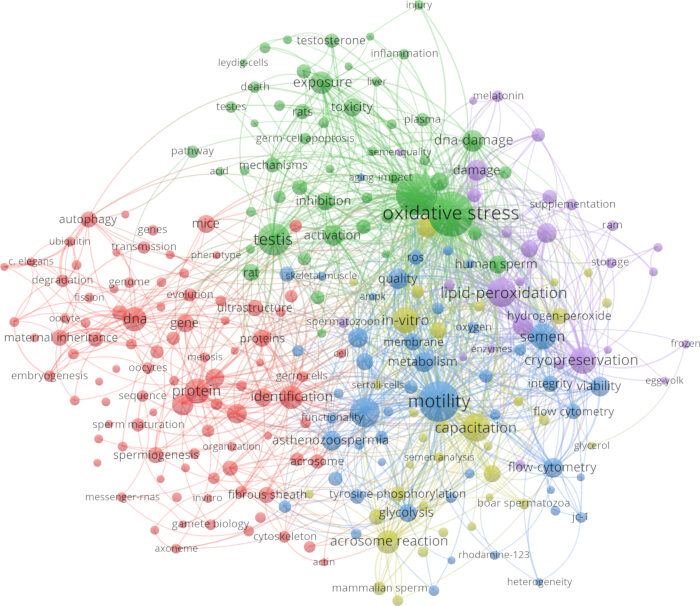
Figura 3. Grafico di co-occorrenza di parole chiave ad alta frequenza. I nodi rappresentano parole chiave ad alta frequenza; la dimensione dei nodi indica la frequenza; il colore dei nodi indica il raggruppamento, con colori uguali che indicano argomenti più strettamente correlati; le linee rappresentano le relazioni tra le parole chiave, con linee più spesse che indicano relazioni più strette. Cliccare qui per visualizzare una versione ingrandita di questa figura.
| Processo di controllo qualità mitocondriale (MQC) | Proteina bersaglio |
| Fusione mitocondriale | Optic atrophy 1 (OPA1) |
| Mitofusina 1 (MFN1) | |
| Mitofusina 2 (MFN2) | |
| Fissione mitocondriale | Proteina dinamina-correlata 1 (DRP1) |
| Proteina 1 della fissione mitocondriale (FIS1) | |
| Fattore della fissione mitocondriale (MFF) | |
| Mitofagia | Chinasi putativa indotta da PTEN (PINK1) |
| Ligasi ubiquitina-proteina Parkin (ligasi ubiquitina-proteina E3 Parkin) |
Tabella 1: Proteine chiave coinvolte nel controllo della qualità mitocondriale. La tabella elenca le proteine rappresentative coinvolte nella fusione mitocondriale, nella fissione mitocondriale e nella mitofagia durante la spermatogenesi.
Dichiarazioni
Gli autori dichiarano di non avere conflitti di interessi.
Ringraziamenti
Questo lavoro è stato sostenuto dal Progetto della Fondazione delle Scienze Naturali del Ningxia (2025AAC030481, 2024AAC03715), dalla Fondazione Nazionale delle Scienze Naturali della Cina (82560939, 82505601), dal Programma Chiave di Ricerca e Sviluppo del Ningxia (2025FRG05005, 2025BEG2008), dalla Fondazione delle Scienze Naturali di Pechino (7254520), dalla Fondazione della Scienza Postdottorale della Cina (2025T181076), dal Programma di Sponsorizzazione per Giovani Scienziati Eccellenti dell'Associazione Cinese per la Scienza e la Tecnologia (YESS20240193), dal Programma di Sostegno ai Giovani Talenti dell'Associazione Cinese di Medicina Tradizionale Cinese (CACM-2024-QNRC2-B17) e dal Progetto di Costruzione di Discipline Chiave di Alto Livello in Medicina Tradizionale Cinese dell'Amministrazione Nazionale della Medicina Tradizionale Cinese (zyyzdxk-2023238).
Riferimenti
- Esteves SC. Evolution of the World Health Organization semen analysis manual: where are we? Nat Rev Urol. 2022;19(7):439-46.
- Levine H, et al. Temporal trends in sperm count: a systematic review and meta-regression analysis of samples collected globally in the 20th and 21st centuries. Hum Reprod Update. 2023;29(2):157-76.
- Cipriani S, et al. Trend of change of sperm count and concentration over the last two decades: a systematic review and meta-regression analysis. Andrology. 2023;11(6):997-1008.
- Lv MQ, et al. Temporal trends in semen concentration and count among 327 373 Chinese healthy men from 1981 to 2019: a systematic review. Hum Reprod. 2021;36(7):1751-75.
- Li Y, et al. Trends in sperm quality by computer-assisted sperm analysis of 49 189 men during 2015-2021 in a fertility center from China. Front Endocrinol (Lausanne). 2023;14:1194455.
- Bonde JP, te Velde ER. Male factor infertility: declining sperm counts: the never-ending story. Nat Rev Urol. 2017;14(11):645-6.
- Hermo L, Pelletier RM, Cyr DG, Smith CE. Surfing the wave, cycle, life history, and genes/proteins expressed by testicular germ cells. Part 1: background to spermatogenesis, spermatogonia, and spermatocytes. Microsc Res Tech. 2010;73(4):241-78.
- Costa J, et al. Mitochondria quality control and male fertility. Biology (Basel). 2023;12(6):827.
- Varuzhanyan G, Chan DC. Mitochondrial dynamics during spermatogenesis. J Cell Sci. 2020;133(14):jcs235937.
- Wu S, Yan M, Ge R, Cheng CY. Crosstalk between Sertoli and germ cells in male fertility. Trends Mol Med. 2020;26(2):215-31.
- Mruk DD, Cheng CY. The mammalian blood-testis barrier: its biology and regulation. Endocr Rev. 2015;36(5):564-91.
- Ma Y, Ma QW, Sun Y, Chen XF. The emerging role of extracellular vesicles in the testis. Hum Reprod. 2023;38(3):334-51.
- Vertika S, Singh KK, Rajender S. Mitochondria, spermatogenesis, and male infertility: an update. Mitochondrion. 2020;54:26-40.
- Midzak A, et al. Mitochondrial protein import and the genesis of steroidogenic mitochondria. Mol Cell Endocrinol. 2011;336(1-2):70-9.
- Brand MD. Mitochondrial generation of superoxide and hydrogen peroxide as the source of mitochondrial redox signaling. Free Radic Biol Med. 2016;100:14-31.
- Boguenet M, et al. Mitochondria: their role in spermatozoa and in male infertility. Hum Reprod Update. 2021;27(4):697-719.
- Barbagallo F, et al. Evaluation of sperm mitochondrial function: a key organelle for sperm motility. J Clin Med. 2020;9(2):363.
- Gallon F, Marchetti C, Jouy N, Marchetti P. The functionality of mitochondria differentiates human spermatozoa with high and low fertilizing capability. Fertil Steril. 2006;86(5):1526-30.
- Gan Z, Fu T, Kelly DP, Vega RB. Skeletal muscle mitochondrial remodeling in exercise and diseases. Cell Res. 2018;28(10):969-80.
- Zhang J, et al. GASZ and mitofusin-mediated mitochondrial functions are crucial for spermatogenesis. EMBO Rep. 2016;17(2):220-34.
- Chen W, et al. MFN2 plays a distinct role from MFN1 in regulating spermatogonial differentiation. Stem Cell Reports. 2020;14(5):803-17.
- Ishihara N, et al. Mitochondrial fission factor Drp1 is essential for embryonic development and synapse formation in mice. Nat Cell Biol. 2009;11(8):958-66.
- Wakabayashi J, et al. The dynamin-related GTPase Drp1 is required for embryonic and brain development in mice. J Cell Biol. 2009;186(6):805-16.
- Varuzhanyan G, et al. Mitochondrial fission factor (Mff) is required for organization of the mitochondrial sheath in spermatids. Biochim Biophys Acta Gen Subj. 2021;1865(5):129845.
- Miao J, et al. MFN1 and MFN2 are dispensable for sperm development and functions in mice. Int J Mol Sci. 2021;22(24):13507.
- Arslan NP, Keles ON, Gonul-Baltaci N. Effect of titanium dioxide and silver nanoparticles on mitochondrial dynamics in mouse testis tissue. Biol Trace Elem Res. 2022;200(4):1650-8.
- Shang Y, et al. Autophagy regulates spermatid differentiation via degradation of PDLIM1. Autophagy. 2016;12(9):1575-92.
- Vargas JNS, et al. The mechanisms and roles of selective autophagy in mammals. Nat Rev Mol Cell Biol. 2023;24(3):167-85.
- Yi L, et al. Cadmium-induced apoptosis of Leydig cells is mediated by excessive mitochondrial fission and inhibition of mitophagy. Cell Death Dis. 2022;13(11):928.
- Losón OC, Song Z, Chen H, Chan DC. Fis1, Mff, MiD49, and MiD51 mediate Drp1 recruitment in mitochondrial fission. Mol Biol Cell. 2013;24(5):659-67.
- Varuzhanyan G, et al. Fis1 ablation in the male germline disrupts mitochondrial morphology and mitophagy, and arrests spermatid maturation. Development. 2021;148(16):dev199686.
- Tan EHN, Tang BL. Rab7a and mitophagosome formation. Cells. 2019;8(3):224.
- Onoue K, et al. Fis1 acts as a mitochondrial recruitment factor for TBC1D15 that is involved in regulation of mitochondrial morphology. J Cell Sci. 2013;126(1):176-85.
- Yamano K, et al. Mitochondrial Rab GAPs govern autophagosome biogenesis during mitophagy. Elife. 2014;3:e01612.
- Yamashita SI, et al. Mitochondrial division occurs concurrently with autophagosome formation but independently of Drp1 during mitophagy. J Cell Biol. 2016;215(5):649-65.
- Yang P, et al. In vivo autophagy and biogenesis of autophagosomes within male haploid cells during spermiogenesis. Oncotarget. 2017;8(34):56791-801.
- Li T, et al. YTHDF2 controls hexavalent chromium-induced mitophagy through modulating Hif1α and Bnip3 decay via the m6A/mRNA pathway in spermatogonial stem cells/progenitors. Toxicol Lett. 2023;377:38-50.
- Lv Y, et al. Melatonin attenuates chromium (VI)-induced spermatogonial stem cell/progenitor mitophagy by restoration of METTL3-mediated RNA N6-methyladenosine modification. Front Cell Dev Biol. 2021;9:684398.
- Eid N, Ito Y, Otsuki Y. Enhanced mitophagy in Sertoli cells of ethanol-treated rats: morphological evidence and clinical relevance. J Mol Histol. 2012;43(1):71-80.
- Hong Y, et al. X-box binding protein 1 caused an imbalance in pyroptosis and mitophagy in immature rats with di-(2-ethylhexyl) phthalate-induced testis toxicity. Genes Dis. 2024;11(2):935-51.
- Su Y, et al. Mutual promotion of apoptosis and autophagy in prepubertal rat testes induced by joint exposure of bisphenol A and nonylphenol. Environ Pollut. 2018;243:693-702.
- Quan C, et al. Prenatal bisphenol A exposure leads to reproductive hazards on male offspring via the Akt/mTOR and mitochondrial apoptosis pathways. Environ Toxicol. 2017;32(3):1007-23.
- Chen C, Song M. Visualizing a field of research: a methodology of systematic scientometric reviews. PLoS One. 2019;14(10):e0223994.
- Yang M, et al. Melatonin promotes male reproductive performance and increases testosterone synthesis in mammalian Leydig cells. Biol Reprod. 2021;104(6):1322-36.