Questo protocollo fornisce un flusso di lavoro pratico e riproducibile per la sincronizzazione di cellule in coltura, l'esecuzione di prelievi in tempi sfalsati su un arco di 24–72 h senza raccolta notturna e l'analisi dell'espressione dei geni dell'orologio circadiano.
Articolo metodologico
Ritmi circadiani in una piastra di Petri: sincronizzazione delle cellule ipotalamiche di topo mHypoE-42 per l'analisi dell'espressione dei geni dell'orologio circadiano
In questo articolo
Sommario
Abstract
I ritmi circadiani sono oscillazioni endogene di circa 24 h che regolano un'ampia gamma di processi cellulari e fisiologici, inclusa l'espressione genica, il metabolismo e il comportamento. Questi ritmi derivano da circuiti di retroazione trascrizionale–traduzionale interconnessi che rispondono a stimoli temporali e ambientali. Poiché la regolazione circadiana è altamente dinamica, anche piccole variazioni sperimentali possono influenzare fase, ampiezza e ritmicità, rendendo essenziali protocolli sperimentali standardizzati per ottenere risultati affidabili e riproducibili. L'obiettivo del presente protocollo è fornire un flusso di lavoro pratico e riproducibile per la sincronizzazione di cellule in coltura, il prelievo di campioni in serie temporale e l'analisi dell'espressione genica del clock circadiano in condizioni di laboratorio standard. Il protocollo descrive la sincronizzazione mediante shock sierico, il prelievo graduale dei campioni nell'arco di 24–72 h per evitare campionamenti notturni, l'estrazione dell'acido ribonucleico, la sintesi dell'acido deossiribonucleico complementare, la reazione a catena della polimerasi quantitativa in tempo reale e l'analisi dei ritmi circadiani mediante approcci statistici appropriati. Il flusso di lavoro evidenzia inoltre aspetti sperimentali critici, tra cui le condizioni di sincronizzazione, la valutazione della qualità del campione, la selezione dei geni di riferimento e l'analisi dei dati, al fine di migliorare la riproducibilità tra esperimenti. Questo metodo fornisce un approccio accessibile per lo studio dei meccanismi molecolari circadiani e la valutazione dell'espressione genica ritmica in cellule in coltura, facilitando ricerche sulla regolazione circadiana in modelli sperimentali fisiologici e legati a malattie.
Introduzione
I ritmi circadiani sono cicli endogeni con un periodo di circa 24 h che regolano un'ampia gamma di processi fisiologici, metabolici e cellulari1. Nei sistemi dei mammiferi, questi ritmi sono coordinati da un orologio centrale situato nel nucleo soprachiasmatico (SCN) dell'ipotalamo e da orologi molecolari autonomi a livello cellulare. Questi orologi consistono in loop di retroazione trascrizionale–traduzionale intrecciati che coinvolgono geni orologio fondamentali, tra cui il gene della proteina kaput dei cicli di attività motoria circadiani (Clock), il gene basic helix-loop-helix aryl hydrocarbon receptor nuclear translocase-like 1 (Bmal1), il gene period (Per) e il gene criptocromo (Cry)2. Data l'importanza centrale dell'orologio circadiano in diversi processi biologici, i modelli cellulari in vitro sono diventati strumenti fondamentali per studiare i meccanismi molecolari della regolazione temporale in condizioni sperimentali controllate.
L'obiettivo del presente protocollo è fornire un flusso di lavoro affidabile, pratico e riproducibile per sincronizzare cellule in coltura mediante un protocollo di shock sierico, eseguire prelievi campionati in tempi sfalsati e analizzare l'espressione dei geni dell'orologio circadiano evitando il prelievo notturno dei campioni. Migliorando la fattibilità del campionamento circadiano senza compromettere la qualità dei dati, questo flusso di lavoro è pensato per facilitare lo studio dei processi biologici ritmici mediante tecniche di laboratorio standard.
Studi circadiani sono stati condotti su una vasta gamma di modelli in vitro, inclusi linee cellulari tumorali umane3, fibroblasti di ratto-14, espianti del SCN 5 e organoidi6. Sebbene la maggior parte delle cellule dei mammiferi possieda orologi circadiani funzionali, l'assenza di stimoli sincronizzanti, come la luce, porta rapidamente a una desincronizzazione in coltura, limitando lo studio dei ritmi circadiani in vitro7. Pertanto, tecniche di sincronizzazione sono essenziali per indagare i meccanismi dell'orologio molecolare e le loro implicazioni nella salute e nelle malattie.
Sono state sviluppate diverse strategie di sincronizzazione per cellule mammifere in coltura. La sincronizzazione basata sui glucocorticoidi mediante desametasone è tra gli approcci più utilizzati poiché ripristina in modo robusto i ritmi circadiani in molti tipi cellulari, riducendo al contempo alcune delle variabilità associate alla stimolazione con siero8. Analogamente, l'attivazione mediata da forskolina della segnalazione dell'adenosina monofosfato ciclico è stata impiegata con successo per sincronizzare gli orologi periferici in specifici modelli cellulari9. Altri approcci includono il trattamento con segnali ematici4, diversi composti chimici8,10, il cambio del mezzo di coltura3, lo shock termico11, i cicli di ossigeno12 e la stimolazione meccanica13. Nel complesso, questi metodi hanno notevolmente avanzato la ricerca circadiana; tuttavia, potrebbero richiedere attrezzature specializzate, condizioni sperimentali specifiche o ulteriori ottimizzazioni, rendendo fondamentale validare la strategia di sincronizzazione scelta per ciascun modello biologico e applicazione sperimentale14.
Lo shock sierico è uno degli approcci di sincronizzazione più ampiamente consolidati e consiste nell'esporre cellule in coltura a uno stimolo transitorio ad alto contenuto di siero4. Poiché lo stimolo è transitorio, si riduce al minimo la perturbazione prolungata delle vie di segnalazione cellulare4, limitando così possibili effetti confondenti sulle analisi successive. Di conseguenza, lo shock sierico è particolarmente adatto per lo studio dell'espressione genica circadiana e della funzione dell'orologio molecolare. Inoltre, la procedura è semplice da attuare e non richiede attrezzature specializzate, risultando quindi accessibile e facilmente riproducibile in diversi laboratori. Un limite pratico degli esperimenti con shock sierico, tuttavia, è il programma di campionamento intensivo necessario per caratterizzare con precisione la ritmicità circadiana. Un'analisi affidabile dei ritmi richiede tipicamente il prelievo di campioni a intervalli regolari, solitamente ogni 2–6 ore per uno o più cicli circadiani (24–72 h)14, spesso rendendo necessari prelievi notturni.
Il flusso di lavoro descritto in questo articolo affronta questa sfida logistica suddividendo l'avvio della sincronizzazione su più piastre di coltura, consentendo così un campionamento circadiano completo durante l'orario lavorativo standard ed evitando il prelievo notturno dei campioni. Piuttosto che introdurre una nuova strategia di sincronizzazione, questo protocollo fornisce un'implementazione dettagliata e riproducibile di un metodo consolidato di shock sierico, abbinato a un programma pratico di campionamento e a un'analisi dell'espressione genica a valle. Questo flusso di lavoro è particolarmente adatto per studi sull'espressione genica circadiana in cellule in coltura, utilizzando tecniche di laboratorio ampiamente disponibili. Quando si adatta il protocollo ad altri modelli cellulari, i parametri sperimentali, inclusi la densità cellulare, le condizioni di sincronizzazione, gli intervalli di campionamento e la scelta dei geni di riferimento, devono essere ottimizzati e validati per il tipo cellulare specifico prima dell'implementazione.
Protocollo
Il seguente protocollo descrive un metodo validato di sincronizzazione per la linea cellulare ipotalamica embrionale murina mHypoE-42. Convalidare e ottimizzare autonomamente il protocollo di sincronizzazione prima di applicarlo ad altri tipi cellulari in coltura. Vedere Figura 1 per una panoramica del flusso di lavoro e Figura supplementare 1 per il programma settimanale di campionamento. Fare riferimento alla Tabella dei materiali per tutti i reagenti, l'equipaggiamento e gli strumenti utilizzati in questo protocollo. Eseguire tutte le procedure di coltura cellulare all'interno di un armadio a sicurezza biologica certificato, utilizzando reagenti e attrezzature sterili.
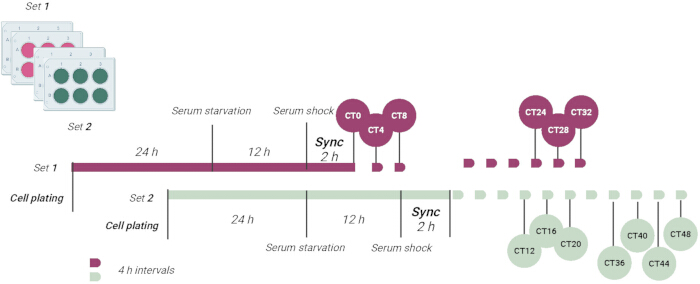
Figura 1. Panoramica schematica del protocollo di sincronizzazione con shock sierico sfalsato. Schema che illustra il flusso di lavoro utilizzato per sincronizzare le cellule mHypoE-42 mediante shock sierico in due serie sperimentali sfalsate. Il disegno sperimentale sfalsato consente il prelievo di campioni circadiani durante l’orario lavorativo standard, evitando prelievi notturni. I campioni vengono successivamente processati per l’estrazione di RNA, la reazione a catena della polimerasi in tempo reale quantitativa (qRT-PCR) e l’analisi del ritmo circadiano. Creato con Biorender.com. Cliccare qui per visualizzare una versione ingrandita di questa figura.
1. Coltura cellulare
- Coltivare le cellule aderenti mHypoE-42 in Dulbecco’s Modified Eagle Medium (DMEM) ad alto contenuto di glucosio (4500 mg/L), integrato con siero fetale bovino (FBS) inattivato termicamente al 10% (v/v), bicarbonato di sodio 3,7 g/L e soluzione antibiotica all'1%.
- Mantenere le cellule a 37°C in un incubatore umidificato contenente 95% di aria e 5% di anidride carbonica (CO2), utilizzando fiaschi di coltura T75 con un volume finale di coltura di 10 mL.
NOTA: Testare ogni nuovo lotto di FBS prima di iniziare gli esperimenti, poiché i lotti di siero possono variare. - Passaggiare le cellule quando raggiungono una confluenza di circa l'80%–90%. Lavare le cellule con soluzione salina fosfato sterile 1× (PBS; pH 7,4), aggiungere 3 mL di soluzione di tripsina al 0,5% e incubare per 3–5 minuti per staccare le cellule.
- Aggiungere almeno il doppio del volume di tripsina di mezzo di coltura completo contenente FBS al 10% (v/v) per neutralizzare la tripsina.
- Diluire le cellule con mezzo di crescita fresco in un rapporto fino a 1:2.
NOTA: Evitare l'uso di cellule sottoposte a un numero eccessivo di passaggi (ad esempio, passaggi superiori al 40 per le cellule mHypoE-42). Riscaldare preventivamente tutte le soluzioni prima dell'uso. Effettuare regolarmente test per la contaminazione da micoplasma. - Procedere con i saggi di sincronizzazione 24 ore dopo la semina delle cellule a 2,0 × 10⁵ cellule per pozzetto, come descritto al Passaggio 2. Mantenere le colture cellulari di routine a una confluenza di circa l'80%–90% prima del passaggio.
2. Sincronizzazione della linea cellulare mHypoE-42
- Preparazione delle cellule
- Dopo la tripsinizzazione, centrifugare le cellule a 700 × g per 5 min.
- Eliminare il soprannuato e risospendere il pellet cellulare in 10 mL di mezzo di coltura fresco.
- Mescolare la sospensione cellulare con il colorante blu di tripano in rapporto 1:1 (volume totale di 20 μL) e determinare la concentrazione cellulare utilizzando un emocitometro.
NOTA: Smaltire le soluzioni contenenti blu di tripano secondo le linee guida istituzionali per lo smaltimento dei rifiuti chimici. Non versare il colorante non utilizzato nel lavandino.
- Piastatura cellulare e progettazione sperimentale sfalsata
- Piastare 2,0 × 10⁵ cellule per pozzetto in piastre a 6 pozzetti o in piatti di coltura da 35 mm. Incubare le colture a 37°C per 24 h.
NOTA: Iniziare la sincronizzazione con il siero 24 h dopo la semina delle cellule. Pertanto, non è richiesta una confluenza cellulare predeterminata prima della sincronizzazione. Invece, esaminare le colture al microscopio per confermare che le cellule siano completamente attaccate e mostrino una morfologia appropriata prima di iniziare la procedura di sincronizzazione. - Dividere casualmente le piastre di coltura in due serie sperimentali. Utilizzare la prima serie per generare i punti temporali circadiani (CT) CT0, CT4, CT8, CT24, CT28 e CT32. Utilizzare la seconda serie per generare CT12, CT16, CT20, CT36, CT40, CT44 e CT48 (Figura 1; Figura Supplementare 1).
- Aumentare il numero di pozzetti o piastre secondo necessità per includere repliche tecniche.
NOTA: Ridurre al minimo la variabilità preparando tutte le piastre dalla stessa sospensione cellulare, mantenendo densità di semina e condizioni di coltura identiche ed eseguendo la sincronizzazione con gli stessi reagenti e impostazioni sperimentali. Regolare il formato del contenitore di coltura e la densità di piastatura secondo necessità per altri tipi cellulari. Quando si utilizzano piastre a 6 pozzetti, combinare i CT raccolti contemporaneamente per ottimizzare l'utilizzo della piastra.
- Piastare 2,0 × 10⁵ cellule per pozzetto in piastre a 6 pozzetti o in piatti di coltura da 35 mm. Incubare le colture a 37°C per 24 h.
- Sincronizzazione
- Dopo 24 h, aspirare il mezzo dalle prime piastre e aggiungere 1 mL di DMEM privo di siero. Incubare per 12 h per indurre la privazione di siero.
- Preparare immediatamente prima dell'uso una soluzione al 50% (v/v) di siero equino in DMEM ad alto contenuto di glucosio.
- Aspirare il mezzo di privazione dalla prima serie e esporre le cellule a 1 mL della soluzione fresca al 50% di siero equino per 2 h.
- Contemporaneamente, aspirare il mezzo dalla seconda serie di piastre e sostituirlo con 1 mL di DMEM privo di siero. Incubare per 12 h.
- Dopo lo shock di siero di 2 h, aspirare il mezzo e aggiungere 1 mL di DMEM ad alto contenuto di glucosio integrato con il 10% (v/v) di FBS inattivato per riscaldamento. Designare questo punto temporale come CT0.
- Raccolta dei campioni
- Posizionare le piastre di coltura sul ghiaccio. Aspirare il mezzo, lavare le cellule due volte con 1 mL di PBS sterile freddo 1×, eliminare la soluzione di lavaggio e lisare le cellule meccanicamente utilizzando fino a 1 mL di reagente di lisi.
ATTENZIONE: Il reagente di lisi contiene sostanze chimiche pericolose. Eseguire tutte le operazioni di manipolazione all'interno di una cappa chimica certificata indossando l'adeguata protezione individuale. Smaltire i rifiuti secondo le linee guida istituzionali per la sicurezza chimica. - Trasferire ogni lisato in un tubo sterile e conservare i campioni a −80°C fino all'estrazione dell'RNA.
- Ripetere i passaggi 2.4.1 e 2.4.2 per raccogliere i campioni a CT4 e CT8.
- A CT8, ripetere il passaggio 2.3.2 per la seconda serie sperimentale per sincronizzare le altre cellule.
- Dopo 2 h di shock di siero, terminare la sincronizzazione della seconda serie sperimentale sostituendo il mezzo con 1 mL di DMEM ad alto contenuto di glucosio integrato con il 10% (v/v) di FBS inattivato per riscaldamento.
- Raccogliere i campioni alternativamente dalle due serie sperimentali per ottenere CT12, CT24, CT16, CT28, CT20 e CT32. Il giorno successivo, ripetere la procedura di raccolta per ottenere CT36, CT40, CT44 e CT48.
NOTA: La privazione di siero e la sincronizzazione sono state avviate in base alla tempistica sperimentale dopo la semina delle cellule, piuttosto che a una confluenza cellulare predeterminata. Confermare che le cellule siano completamente attaccate e mostrino una morfologia appropriata prima di iniziare la sincronizzazione. Sebbene i CT consecutivi differiscano di 4 h, le raccolte non vengono effettuate a intervalli di 4 h. Fare riferimento a Figura Supplementare 1 per il programma completo di raccolta settimanale.
- Posizionare le piastre di coltura sul ghiaccio. Aspirare il mezzo, lavare le cellule due volte con 1 mL di PBS sterile freddo 1×, eliminare la soluzione di lavaggio e lisare le cellule meccanicamente utilizzando fino a 1 mL di reagente di lisi.
3. Elaborazione del campione: estrazione dell'RNA
NOTA: I protocolli possono variare a seconda del contesto sperimentale e dell'applicazione. Il seguente flusso di lavoro descrive un esempio di procedura efficace per l'estrazione di RNA totale, la sintesi del DNA complementare (cDNA) e la reazione a catena della polimerasi quantitativa in tempo reale (qRT-PCR). Estrarre l'RNA totale utilizzando un metodo combinato di lisi basato sul fenolo e separazione in fasi, seguito da purificazione con colonnine di silice in centrifuga.
- Preparazione del campione e separazione delle fasi
- Scongelare i campioni, re-omogeneizzare i lisati e incubarli a temperatura ambiente per 5 min.
- Aggiungere 200 μL di cloroformio per ogni 1 mL di reagente di lisi.
ATTENZIONE: Il cloroformio è volatile e tossico. Eseguire tutte le operazioni che coinvolgono il cloroformio in una cappa chimica certificata indossando idonei dispositivi di protezione individuale. - Agitare vigorosamente i tubi per 15 s e incubarli a temperatura ambiente per 3 min.
- Centrifugare i campioni a 12.000 × g per 15 min a 4°C. Lasciare separare i campioni in tre fasi: una fase inferiore fenolo-cloroformio contenente le proteine, un'interfase bianca contenente il DNA e una fase acquosa superiore arricchita in RNA.
- Trasferire con attenzione la fase acquosa in un nuovo tubo sterile senza disturbare l'interfase. Conservare la fase organica a 4°C se si prevede l'isolamento successivo di proteine o DNA.
NOTA: Eseguire l'isolamento di proteine o DNA seguendo il protocollo appropriato qualora si intenda recuperare queste biomolecole dalla fase organica.
- Purificazione dell'RNA
- Aggiungere un volume uguale di etanolo al 70% (preparato con acqua priva di RNasi) alla fase acquosa e vortexare due volte per 15 s per favorire il legame dell'RNA.
- Caricare il campione su una colonna di silice per centrifugazione e purificare l'RNA seguendo il protocollo di purificazione della colonna.
- Digerire il DNA genomico contaminante con DNasi per 15 min a temperatura ambiente.
- Lavare la colonna utilizzando i tamponi di lavaggio forniti.
- Eseguire un ulteriore lavaggio con 100 μL di tampone di lavaggio e centrifugare a 11.000 × g per 2 min per asciugare la membrana di silice.
- Trasferire la colonna per centrifugazione in un tubo microcentrifuga pulito. Eluire l'RNA con 40–60 μL di acqua priva di RNasi applicando l'acqua direttamente al centro della membrana di silice e centrifugando a 11.000 × g per 1 min.
NOTA: Selezionare il volume di eluizione in base al rendimento e alla concentrazione di RNA desiderati. Un volume di eluizione di 60 μL generalmente consente un recupero più completo dell'RNA dalla membrana di silice, ma produce una soluzione di RNA più diluita. Al contrario, un volume di eluizione di 40 μL fornisce una preparazione di RNA più concentrata, ma potrebbe ridurre il recupero totale di RNA. Ottimizzare il volume di eluizione in base alle raccomandazioni del produttore e alle esigenze dell'applicazione successiva.
- Valutazione della qualità dell'RNA
- Posizionare i campioni di RNA sul ghiaccio e trasferire 5 μL di ciascun campione in un nuovo tubo microcentrifuga sterile per la valutazione della qualità.
- Valutare l'integrità dell'RNA mediante elettroforesi su gel di agarosio al 1,5% o elettroforesi capillare. Confermare la presenza di bande distinte di RNA ribosomiale 28S e 18S.
- Determinare la concentrazione e la purezza dell'RNA misurandone l'assorbanza con uno spettrofotometro.
NOTA: Smaltire i rifiuti contenenti fenolo seguendo le linee guida istituzionali per lo smaltimento dei rifiuti chimici. Non smaltire rifiuti chimici pericolosi nel lavandino. Per campioni di cellule in coltura, le concentrazioni di RNA sono tipicamente comprese tra 200 e 1000 ng/μL e sono adatte per la sintesi di cDNA e qRT-PCR. Accettare campioni di RNA con un rapporto A260/230 compreso tra 2,0 e 2,2 e un rapporto A260/280 di circa 2,0 (vedere Tabella Supplementare 1).
- Conservazione dell'RNA
- Conservare i campioni di RNA purificati a −80°C fino alla sintesi di cDNA.
4. Elaborazione del campione: sintesi del cDNA
NOTA: Sintetizzare il cDNA da 1 μg di RNA totale utilizzando un kit per la sintesi del cDNA del primo filamento. Regolare i volumi delle reazioni e le condizioni di incubazione in base alle istruzioni del produttore.
- Trascrizione inversa
- Scongelare i campioni di RNA sul ghiaccio. Preparare una reazione di trascrizione inversa di 20 μL contenente 1 μg di RNA totale, 10 μL di 2× Master Mix (contenente inibitore della ribonucleasi, esameri casuali, primer oligo(deossitimidina), ioni magnesio [Mg2+] e tri-fosfati deossinucleotidici), 2 μL di mix enzimatico (contenente la trascrittasi inversa) e acqua trattata con pirobicarbonato di dietile fino a un volume finale di 20 μL.
- Incubare la reazione in un termociclatore per 10 min a 25°C per l'appaiamento dei primer, seguito da 30 min a 50°C per la sintesi del cDNA. Inattivare la trascrittasi inversa incubando la reazione a 85°C per 5 min.
- Aggiungere 1 μL di RNasi H e incubare la reazione per 20 min a 37°C per degradare il filamento di RNA dell'ibrido RNA-DNA.
- Diluire la preparazione di cDNA fino a 1:20 con acqua sterile, in base ai requisiti di ottimizzazione del saggio, e conservare il cDNA diluito a −20°C fino all'analisi mediante reazione a catena della polimerasi quantitativa in tempo reale (qRT-PCR).
5. Elaborazione del campione: reazione a catena della polimerasi quantitativa in tempo reale (qRT-PCR)
NOTA: Misurare l'espressione dei geni del clock circadiano mediante qRT-PCR. Fare riferimento alla Tabella Supplementare 2 per le sequenze dei primer validati, le temperature di annealing e le concentrazioni dei primer.
- Ottimizzazione del saggio
- Convalidare e ottimizzare la concentrazione dei primer, la temperatura di annealing e l'input di cDNA utilizzando campioni di cDNA pooled e una curva standard prima di analizzare i campioni sperimentali. Eseguire l'ottimizzazione e la convalida del saggio come descritto in precedenza15,16.
- Preparazione della reazione
- Preparare ogni reazione di qRT-PCR da 10 μL combinando 5 μL di master mix 2×, 0,4 μL di primer forward e reverse, 0,2 μL di acqua trattata con diethyl pyrocarbonato e 4 μL di template di cDNA in una piastra PCR a 96 pozzetti.
- Sigillare la piastra con un film trasparente otticamente chiaro o con un tappo sigillante. Centrifugare la piastra a 700 × g per un massimo di 5 min a 4°C per rimuovere le bolle e raccogliere la miscela di reazione sul fondo di ogni pozzetto.
- Analizzare tutti i campioni di cDNA per determinare l'espressione dei geni bersaglio Bmal1 e Per2.
- Analizzare il gene di riferimento selezionato (B2m) utilizzando la stessa diluizione di cDNA per normalizzare l'espressione genica tra i campioni.
- Cicli termici
- Eseguire la qRT-PCR utilizzando le seguenti condizioni di ciclaggio: denaturazione iniziale e attivazione della DNA polimerasi hot-start a 95°C per 2 min, seguita da 39 cicli di 95°C per 5 s e 60°C per 30 s.
- Eseguire l'analisi della curva di denaturazione riscaldando le reazioni a 95°C per 5 s, seguiti da incrementi di 0,5°C fino a 95°C, mantenendo per 5 s a ogni incremento.
NOTA: Regolare i tempi di mantenimento e le impostazioni della curva di denaturazione in base alle raccomandazioni del master mix, se necessario.
- Convalida del gene di riferimento
NOTA: Negli esperimenti di sincronizzazione con siero, valutare i geni di riferimento candidati poiché il trattamento con siero potrebbe alterare l'espressione dei geni housekeeping17. Valutare la stabilità dell'espressione utilizzando metodi come BestKeeper18, geNorm19, NormFinder20 o il metodo comparativo ΔCt21. Selezionare il/i gene/i più stabile/i per la normalizzazione. In questo studio, β-actin (Actb) e β-2-microglobulina (B2m) sono stati valutati utilizzando il software RefFinder22, che integra diversi algoritmi di convalida dei geni di riferimento. B2m ha mostrato la maggiore stabilità di espressione durante il corso del tempo circadiano ed è stato pertanto selezionato per la normalizzazione. - Verifica del prodotto
- Verificare la specificità dell'amplificazione analizzando i prodotti della PCR mediante elettroforesi su gel di agarosio al 2%.
NOTA: Determinare la temperatura di annealing ottimale testando diverse temperature (ad esempio, 58 °C, 60°C e 62°C). Selezionare la temperatura che produce il valore più basso del ciclo di quantificazione (Cq), mantenendo un singolo picco nella curva di denaturazione e senza evidenza di formazione di primer-dimer.
NOTA: Accettare saggi con efficienze di amplificazione comprese tra il 90% e il 110% e un coefficiente di determinazione (R2) pari o superiore a 0,99. Verificare che le temperature di denaturazione differiscano di non più di 0,5°C tra i replicati tecnici. Accettare solo replicati tecnici con una differenza di Cq ≤0,5 per l'analisi e utilizzare questi valori per calcolare i livelli medi di espressione. Eseguire tutte le reazioni in replicati tecnici (ad esempio, triplicati) e includere sia un controllo senza template sia un controllo senza trascrizione inversa.
- Verificare la specificità dell'amplificazione analizzando i prodotti della PCR mediante elettroforesi su gel di agarosio al 2%.
6. Analisi dei dati
- Analisi dell'espressione genica
- Mediare i replicati tecnici per ogni campione prima dell'analisi successiva.
- Calcolare il valore ΔCq per ogni campione e punto temporale utilizzando la seguente equazione:
ΔCq = Cqgene bersaglio - Cqgene di controllo - Calcolare il valore ΔΔCq per ogni campione e punto temporale utilizzando la seguente equazione:
ΔΔCq = ΔCqcampione - ΔCqcontrollo
NOTA: Per il calcolo di ΔΔCq, ΔCqcontrollo è stato definito come il valore medio di ΔCq ottenuto mediando tutti i campioni di controllo attraverso tutti i CT. - Valutare i parametri circadiani, inclusi il valore medio stimato del ritmo (MESOR), l'ampiezza, il picco e la fase, utilizzando CircaCompare23. Eseguire l'analisi utilizzando l'applicazione online oppure l'implementazione tramite pacchetto R.
- Analisi CircaCompare online
NOTA: L'implementazione online riporta stime complete dei parametri circadiani solo quando il set di dati soddisfa i criteri statistici per la ritmicità. Quando la ritmicità è debole o non statisticamente significativa, utilizzare l'implementazione in R per ottenere le stime dei parametri per tutti i set di dati.- Preparare un file di valori separati da virgola (.csv).
- Inserire la variabile temporale (numerica; ore) nella Colonna 1.
- Inserire la variabile di raggruppamento (solo due gruppi sperimentali) nella Colonna 2.
- Inserire la variabile risultato (numerica; ΔΔCq) nella Colonna 3.
- Caricare il file .csv nell'applicazione online CircaCompare.
- Assegnare le variabili temporale, di gruppo e risultato alle colonne corrispondenti.
- Selezionare Esegui per avviare l'analisi.
- Preparare un file di valori separati da virgola (.csv).
- Analisi CircaCompare in R
- Eseguire l'analisi utilizzando R versione 4.5.1 e il pacchetto CircaCompare versione 0.2.024.
- Installare i pacchetti R richiesti.
- Installare il pacchetto devtools (versione 2.5.2).
- Installare il pacchetto circacompare (versione 0.2.0).
- Installare il pacchetto ggplot2 (versione 4.0.3).
- Installare il pacchetto svglite (versione 2.2.2).
- Caricare il file di input .csv.
- Eseguire l'analisi CircaCompare impostando alpha_threshold = 1.
NOTA: Impostando alpha_threshold = 1 vengono riportate le stime dei parametri circadiani per tutte le oscillazioni adattate, indipendentemente dalla significatività statistica. Tuttavia, solo le oscillazioni con un p-value < 0,05 devono essere interpretate come ritmiche e statisticamente significative. - Personalizzare File Supplementare 1 prima di eseguire lo script.
- Sostituire “XXX.csv” con il nome del file di dati di input.
- Sostituire “YYY.csv” con il nome desiderato per il file dei risultati.
- Sostituire “ZZZ.svg” con il nome desiderato per il file del grafico.
- Regolare i limiti dell'asse y (ylim) e qualsiasi altro parametro di rappresentazione grafica in base al set di dati.
- Fare riferimento a Tabella Supplementare 3 per un esempio di file di input.
Risultati
Una sincronizzazione riuscita è indicata da una ritmicità circadiana statisticamente significativa dei geni orari analizzati nella condizione di controllo (p < 0,05). In questo studio sono stati effettuati tre esperimenti biologici indipendenti, utilizzando il dimetilsulfossido allo 0,1% come controllo negativo. Bmal1 e Per2 sono stati selezionati come marcatori ciradiani rappresentativi poiché sono componenti fondamentali dell'orologio circadiano molecolare ed esibiscono un profilo di espressione ben caratterizzato in antifase. I profili rappresentativi di espressione ritmica ottenuti dopo la sincronizzazione sono mostrati in Figura 2. I corrispondenti parametri circadiani, inclusi ritmicità, MESOR, ampiezza e tempo di picco, sono riassunti in Tabella 1, mentre il confronto a coppie tra Bmal1 e Per2 è presentato in Tabella 2.
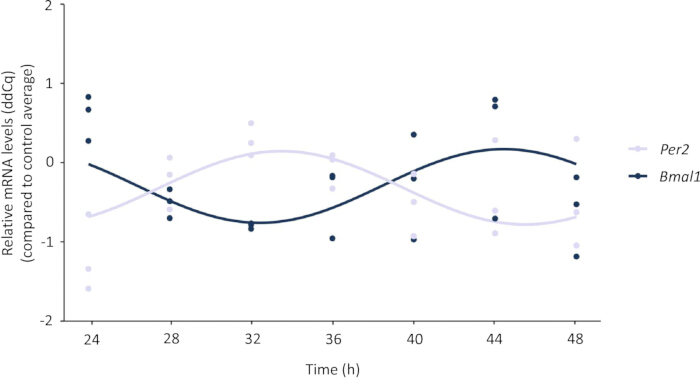
Figura 2. Oscillazioni circadiane di Bmal1 e Per2 dopo la sincronizzazione mediante shock sierico. Profili rappresentativi di espressione circadiana di Bmal1 (blu scuro) e Per2 (blu chiaro) in cellule mHypoE-42 sincronizzate, misurati mediante reazione a catena della polimerasi quantitativa in tempo reale (qRT-PCR) da 24 a 48 h dopo la sincronizzazione. Le curve rappresentano i modelli circadiani adattati generati utilizzando CircaCompare.Cliccare qui per visualizzare una versione ingrandita di questa figura.
| Gene | Ritmicità (p-value) | MESOR | Ampiezza | Tempo del picco (h) |
| Bmal1 | 0.0205 | −0.2948 | 0.4648 | 20.4239 |
| Per2 | 0.0071 | −0.318 | 0.4629 | 9.4883 |
| Bmal1 + Compound A | 0.1068 | — | — | — |
Tabella 1: Parametri del ritmo circadiano stimati per Bmal1 e Per2 in condizioni basali e per Bmal1 dopo il trattamento con il Composto A. La ritmicità circadiana è stata valutata utilizzando CircaCompare. La tabella riporta il valore p per la ritmicità, la statistica media di stima del ritmo (MESOR), l'ampiezza e l'ora del picco per ciascuna condizione. I parametri circadiani non sono riportati per Bmal1 dopo il trattamento con il Composto A poiché la ritmicità non era statisticamente significativa (p = 0,1068).
| Stima della differenza di MESOR (p-valore) | Stima della differenza di ampiezza (p-valore) | Stima della differenza di fase (p-valore) | Periodo condiviso (h) |
| −0.0232 (p = 0.8904) | −0.0019 (p = 0.9936) | −10.9356 (p = 2.3155 × 10⁻6) | 24 |
Tabella 2: Confronto a coppie dei parametri circadiani tra Bmal1 e Per2. Confronto a coppie della statistica centrale stimata del ritmo (MESOR), dell'ampiezza e della fase tra i profili di espressione circadiana adattati di Bmal1 e Per2, stimati utilizzando CircaCompare. I valori sono riportati come differenze tra parametri con i corrispondenti p-valori. Il periodo condiviso è stato fissato a 24 h durante l'adattamento del modello.
In condizioni basali, sia Bmal1 che Per2 hanno mostrato un'oscillazione statisticamente significativa (Bmal1: p = 0,0205; Per2: p = 0,0071). L'analisi con CircaCompare ha ulteriormente dimostrato che i due geni oscillano in fasi opposte, con una differenza di fase di −10,9356 h (p = 2,3155 × 10⁻6), coerente con la loro prevista relazione in antifase all'interno della rete molecolare dell'orologio circadiano. Le metriche sulla qualità dell'RNA a supporto dell'analisi dell'espressione genica successiva sono riportate nella Tabella Supplementare 1.
Il protocollo può essere applicato anche per confrontare la ritmicità circadiana tra condizioni sperimentali, inclusi modelli di salute rispetto a malattia o gruppi di controllo rispetto a gruppi trattati. A titolo rappresentativo, è stato valutato un contaminante ambientale emergente e interferente endocrino precedentemente rilevato nell'ipotalamo umano, indicato qui come Composto A. I risultati rappresentativi sono mostrati in Figura 3, e l'analisi della ritmicità corrispondente è riassunta in Tabella 1.
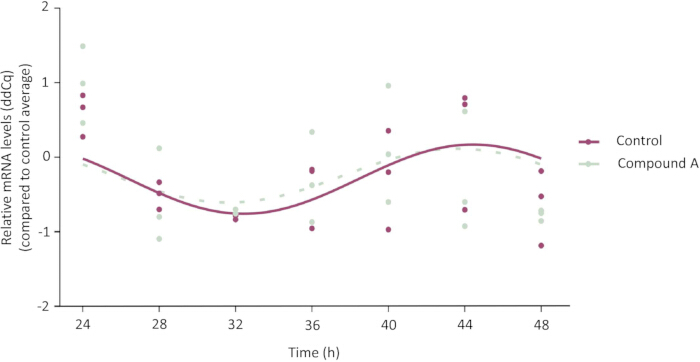
Figura 3. Effetto del Composto A sulla ritmicità circadiana dell'espressione di Bmal1. Profilo rappresentativo dell'espressione di Bmal1 in cellule mHypoE-42 sincronizzate dopo trattamento con il Composto A, misurato mediante reazione a catena della polimerasi quantitativa in tempo reale (qRT-PCR). Le curve rappresentano i modelli circadiani interpolati generati utilizzando CircaCompare. Cliccare qui per visualizzare una versione ingrandita di questa figura.
Dopo l'esposizione al Composto A, Bmal1 non ha più mostrato una ritmicità statisticamente significativa (p = 0,1068). In queste condizioni, il modello circolatorio adattato non soddisfaceva i criteri statistici per la ritmicità. Di conseguenza, i parametri circadiani come MESOR, ampiezza e tempo di picco non vengono riportati poiché non sono considerati biologicamente interpretabili quando la ritmicità non è statisticamente significativa. Questo esempio illustra come il flusso di lavoro possa distinguere profili di espressione ritmici da quelli non ritmici ed essere utilizzato per valutare potenziali alterazioni dell'espressione genica circadiana in diverse condizioni sperimentali. Per ridurre al minimo la variabilità tecnica potenziale associata alla strategia di campionamento sfalsato, tutte le piastre di coltura sono state preparate dalla stessa sospensione cellulare, mantenute in condizioni di coltura identiche e sincronizzate utilizzando lo stesso protocollo sperimentale, differendo soltanto nel momento della sincronizzazione.
Figura supplementare 1. Calendario settimanale del protocollo di sincronizzazione sfalsata. Linea temporale settimanale rappresentativa che illustra la semina cellulare, la privazione di siero, la sincronizzazione mediante shock di siero, l'arresto della sincronizzazione e il prelievo di campioni circadiani per i due set sperimentali sfalsati (Set 1, viola; Set 2, verde). Il disegno sfalsato permette la raccolta di punti temporali circadiani (CT) da CT0 a CT48 durante l'orario lavorativo standard, evitando il prelievo di campioni notturni. Cliccare qui per scaricare questo file.
Tabella supplementare 1. Parametri di qualità dell'RNA per tutti i campioni biologici inclusi nell'esperimento con serie temporale circadiana. La purezza dell'RNA è stata valutata mediante i rapporti di assorbanza A260/A280 e A260/A230, e la concentrazione di RNA è stata determinata mediante spettrofotometria prima della sintesi del DNA complementare (cDNA). I campioni sono identificati in base all'orario di raccolta, al gruppo di trattamento e alla replica biologica. Queste misurazioni sono state utilizzate per verificare la qualità dell'RNA prima dell'analisi successiva di reazione a catena della polimerasi in tempo reale quantitativa (qRT-PCR). Cliccare qui per scaricare il file.
Tabella Supplementare 2. Sequenze dei primer e condizioni di amplificazione utilizzate per la reazione a catena della polimerasi quantitativa in tempo reale (qRT-PCR). Le sequenze dei primer oligonucleotidici forward e reverse sono riportate in orientamento 5′-3′, insieme al corrispondente numero(i) di accessione NCBI, alla temperatura di appaiamento e alla concentrazione del primer utilizzata per l'amplificazione di ciascun gene bersaglio. Cliccare qui per scaricare il file.
Tabella Supplementare 3. Esempio di set di dati di input per l'analisi dei ritmi circadiani mediante CircaCompare. Esempio di set di dati in formato CSV (valori separati da virgola) predisposto per l'analisi con CircaCompare. Il set di dati contiene tre variabili obbligatorie: Time (h), Group e Outcome (ΔΔCq), corrispondenti al formato descritto nel protocollo di analisi dei dati e utilizzato come file di esempio in input per la stima dei parametri circadiani. Cliccare qui per scaricare il file.
File Supplementare 1. Esempio di script R per l'analisi dei ritmi circadiani mediante CircaCompare. Esempio di script R per l'analisi dei dati di espressione genica circadiana utilizzando il pacchetto CircaCompare (versione 0.2.0) in R (versione 4.5.1). Lo script importa il set di dati di input, stima i parametri circadiani con un periodo di 24 h, esporta il riepilogo statistico e genera un grafico di qualità pubblicabile. Prima dell'uso, sostituire i nomi file segnaposto (XXX.csv, YYY.csv e ZZZ.svg) con i nomi file di input e output desiderati e regolare i parametri di rappresentazione grafica (ad esempio, ylim) in modo appropriato per il set di dati. Cliccare qui per scaricare questo file.
Discussione
I ritmi circadiani sono cicli endogeni di circa 24 h che regolano un'ampia gamma di processi fisiologici, metabolici e cellulari attraverso meccanismi molecolari dell'orologio conservati1,2. I modelli di sincronizzazione in vitro forniscono un ambiente sperimentale controllato per lo studio di questi meccanismi e si sono rivelati strumenti preziosi per indagare la regolazione circadiana in condizioni normali e patologiche, inclusa l'esposizione a contaminanti ambientali e ad altre perturbazioni sperimentali25. Il protocollo qui presentato descrive un flusso di lavoro pratico per la sincronizzazione di cellule in coltura mediante shock sierico, il prelievo di campioni in serie temporale utilizzando una strategia di campionamento sfalsato e la quantificazione dell'espressione genica circadiana mediante qRT-PCR. Questo flusso di lavoro è particolarmente adatto a studi che richiedono un profilo dell'espressione genica temporale, minimizzando al contempo le difficoltà logistiche associate alla raccolta notturna dei campioni. Diversi passaggi critici determinano il successo e la riproducibilità di questo protocollo. È essenziale un controllo adeguato della confluenza cellulare, della privazione di siero, della durata dello shock sierico e delle condizioni di sincronizzazione, poiché una sincronizzazione inadeguata può portare a una ritmicità debole o non rilevabile14. Una densità di semina cellulare costante, la preparazione di tutte le piastre sperimentali a partire dalla stessa sospensione cellulare e condizioni di coltura identiche tra i diversi gruppi sperimentali sfalsati riducono ulteriormente la variabilità tecnica. La qualità dell'RNA, la sintesi del cDNA, la validazione dei primer e la scelta di geni di riferimento stabili sono anch'esse determinanti importanti per ottenere risultati affidabili con la qRT-PCR. Come per ogni protocollo di sincronizzazione circadiana, potrebbe essere necessaria l'ottimizzazione di questi parametri quando si adatta il flusso di lavoro a diversi tipi cellulari o condizioni sperimentali.
Sebbene lo shock sierico sia uno dei metodi di sincronizzazione più ampiamente utilizzati in biologia circadiana4,26, non è universalmente ottimale per ogni applicazione sperimentale. Approcci alternativi di sincronizzazione, tra cui il trattamento con desametasone, la stimolazione con forskolina, l'adattamento alla temperatura e i sistemi basati su reporter, possono risultare più appropriati a seconda del modello biologico e dell'obiettivo della ricerca14. Questi metodi dovrebbero essere considerati complementari piuttosto che alternativi, poiché ciascuno presenta vantaggi e limitazioni distinti. Lo shock sierico offre un equilibrio pratico tra semplicità sperimentale, accessibilità e riproducibilità, senza richiedere strumentazione specializzata o sistemi reporter geneticamente codificati. Tuttavia, i ricercatori dovrebbero valutare attentamente l'influenza potenziale dello stimolo di sincronizzazione sul loro sistema biologico e scegliere l'approccio più adatto alla domanda sperimentale. Sono stati descritti anche protocolli di shock sierico che omettono il passaggio di privazione di siero e potrebbero rappresentare alternative valide in specifici contesti sperimentali27. La flessibilità di questo protocollo consente diverse modifiche e strategie di risoluzione dei problemi. Il disegno sperimentale con campionamento sfalsato si basa su piastre in coltura sincronizzate in momenti diversi per generare fasi circadiane complementari, evitando al contempo il campionamento notturno. Per ridurre al minimo la variabilità tra piastre, preparare tutte le piastre a partire dalla stessa sospensione cellulare, seminare con densità identiche, mantenere condizioni di coltura uguali ed eseguire la sincronizzazione seguendo lo stesso protocollo sperimentale, variando soltanto il momento della sincronizzazione. Sebbene questo approccio non possa eliminare completamente la variabilità legata ai lotti, riduce al minimo la variabilità tecnica, riducendo notevolmente le difficoltà logistiche associate al campionamento notturno e preservando la capacità di rilevare ritmi circadiani biologicamente significativi. Sebbene la strategia di campionamento sfalsato sia stata progettata per ridurre la variabilità tecnica mantenendo condizioni di coltura identiche in tutti i gruppi sperimentali, nel presente studio non è stata confrontata direttamente con un disegno convenzionale di campionamento continuo. Studi futuri potranno ulteriormente valutare l'equivalenza di questi approcci in ulteriori modelli sperimentali. Quando si adatta questo protocollo a nuovi tipi cellulari o condizioni sperimentali, è necessario ottimizzare l'efficienza di sincronizzazione e valutare eventuali effetti di lotto durante la validazione del protocollo. A seconda dell'obiettivo sperimentale, è possibile modificare il programma di sincronizzazione regolando l'orario di inizio della sincronizzazione o mantenendo una singola coltura sincronizzata con una finestra di campionamento ridotta. Le strategie di risoluzione dei problemi includono l'ottimizzazione della durata dello shock sierico, la verifica della vitalità cellulare e della confluenza prima della sincronizzazione, la conferma della qualità dell'RNA prima dell'analisi successiva e la regolazione degli intervalli di campionamento per migliorare il rilevamento dei ritmi circadiani. Il presente protocollo è stato validato nella linea cellulare ipotalamica embrionale murina mHypoE-42 e pertanto dovrebbe essere ottimizzato e validato autonomamente prima di essere applicato ad altri modelli cellulari. Sebbene non valutato nel presente studio, questo protocollo è stato sviluppato sulla base di precedenti ottimizzazioni effettuate nel nostro laboratorio utilizzando altre linee cellulari (ad esempio, cellule N2a e fibroblasti umani), il che ne supporta la potenziale applicabilità a diversi modelli cellulari. Analogamente, la strategia di campionamento sfalsato migliora notevolmente la fattibilità sperimentale consentendo un campionamento circadiano completo durante l'orario lavorativo standard; tuttavia, gli utilizzatori devono mantenere condizioni sperimentali identiche su tutte le piastre di coltura per ridurre al minimo gli effetti di lotto potenziali. Quando adeguatamente ottimizzato, questo protocollo fornisce un approccio accessibile e riproducibile per lo studio dell'espressione genica circadiana e per la valutazione di interventi sperimentali che alterano la funzione dell'orologio molecolare in un'ampia gamma di applicazioni di ricerca.
Nonostante i suoi vantaggi pratici, questo metodo presenta diverse limitazioni. La strategia di campionamento sfalsato fornisce misurazioni in punti temporali discreti anziché un monitoraggio continuo, riducendo così la risoluzione temporale rispetto ai saggi con reporter basati su fluorescenza o bioluminescenza7. Di conseguenza, l'accuratezza della stima del periodo e la rilevazione di lievi spostamenti di fase o oscillazioni di bassa ampiezza possono risultare ridotte. Inoltre, il flusso di lavoro basato su piastre diventa sempre più laborioso all'aumentare del numero di trattamenti o condizioni sperimentali, poiché sono necessarie piastre di coltura aggiuntive per ciascuna condizione. Tra le metodologie esistenti, questo flusso di lavoro rappresenta un'alternativa pratica ai sistemi basati su reporter, inclusi i saggi di luciferasi guidati da E-box (ad esempio, Bmal1-Luc e Per2-Luc), che consentono il monitoraggio in tempo reale dell'attività circadiana in cellule vive28,29. Sebbene i sistemi reporter basati su fluorescenza e bioluminescenza offrano un'elevata risoluzione temporale e siano particolarmente utili per lo screening ad alto rendimento di modulatori circadiani candidati, richiedono una modificazione genetica stabile, apparecchiature specializzate per il rilevamento e condizioni ambientali strettamente controllate30, che potrebbero non essere disponibili in tutti i laboratori. Inoltre, i sistemi reporter sono generalmente limitati a costrutti reporter predefiniti e potrebbero richiedere una normalizzazione rispetto a segnali costitutivi o all'abbondanza cellulare, limitando la valutazione simultanea di più geni o di analisi molecolari a valle. Al contrario, il flusso di lavoro qui descritto è compatibile con diverse applicazioni a valle, inclusa l'analisi quantitativa dell'espressione genica e saggi basati sulle proteine, rendendolo un approccio accessibile e versatile per i laboratori che studiano la regolazione molecolare circadiana.
Dopo la raccolta dei campioni e le analisi successive, una valutazione statistica appropriata è essenziale per determinare se le oscillazioni osservate siano sia statisticamente significative sia biologicamente rilevanti. In questo protocollo, CircaCompare fornisce un quadro robusto per la stima e il confronto statistico di MESOR, ampiezza e fase mediante modelli di regressione basati sul cosinoro23. A differenza degli approcci che valutano esclusivamente la ritmicità, CircaCompare consente confronti diretti a coppie dei parametri circadiani tra gruppi sperimentali, facilitando la valutazione degli effetti dei trattamenti, delle perturbazioni genetiche o delle alterazioni associate a malattie nel comportamento circadiano. Questo flusso di lavoro analitico integra il protocollo di sincronizzazione fornendo misure quantitative standardizzate per interpretare i cambiamenti nell'espressione genica circadiana. Come dimostrato nei risultati rappresentativi, una sincronizzazione efficace è stata indicata dai modelli attesi di espressione oscillante dell'RNA messaggero (mRNA) di Bmal1 e Per2 dopo lo shock sierico (Figura 2). Al contrario, l'esposizione al Composto A ha determinato la perdita di ritmicità statisticamente significativa di Bmal1 (Figura 3), illustrando l'utilità di questo flusso di lavoro per valutare interventi sperimentali che alterano l'espressione genica circadiana. Un aspetto importante da considerare nell'interpretazione dei dati sull'espressione genica circadiana è la variabilità biologica tra esperimenti indipendenti. In questo studio, i risultati rappresentativi sono stati ottenuti da replicati biologici indipendenti eseguiti in giorni diversi e in diversi passaggi cellulari. Di conseguenza, un certo grado di variabilità è previsto ed è attribuibile alla variabilità biologica piuttosto che a quella tecnica. Per questo motivo, gli esperimenti di sincronizzazione dovrebbero includere replicati biologici indipendenti ed essere interpretati alla luce della variabilità biologica attesa del modello cellulare in esame. Nonostante tale variabilità, la ritmicità statisticamente significativa e la relazione antifasica attesa tra Bmal1 e Per2 sono state osservate in modo costante. Inoltre, le caratteristiche circadiane, tra cui l'ampiezza dell'oscillazione, la fase, la lunghezza del periodo e la velocità di smorzamento, variano tra i diversi modelli cellulari. Pertanto, le prestazioni della sincronizzazione devono essere valutate in relazione al tipo cellulare specifico in esame, piuttosto che mediante confronto diretto con modelli non correlati.
Questo flusso di lavoro è particolarmente rilevante per lo studio del ruolo dei ritmi circadiani nei meccanismi delle malattie e nelle risposte terapeutiche. La perturbazione della regolazione circadiana è stata associata a numerose condizioni patologiche, tra cui cancro, disturbi metabolici e malattie neurodegenerative31,32. La possibilità di valutare l'espressione genica ritmica o l'abbondanza proteica in vitro fornisce un quadro pratico per l'analisi di questi processi e per la valutazione degli effetti di interventi farmacologici sull'orologio molecolare circadiano, che è sempre più riconosciuto come un potenziale bersaglio terapeutico14,33. Ad esempio, questo protocollo può essere applicato per esaminare come modulatori candidati influenzino l'espressione genica circadiana in modelli cellulari pertinenti alle malattie, previa opportuna ottimizzazione e validazione. È importante precisare che lo scopo del presente lavoro non è promuovere lo shock sierico come sostituto di altri metodi di sincronizzazione né suggerirne la superiorità rispetto ad approcci alternativi. Al contrario, questo protocollo fornisce un flusso di lavoro dettagliato e riproducibile per implementare una strategia di sincronizzazione ampiamente utilizzata, raccogliere campioni circadiani durante l'orario lavorativo standard mediante un disegno di campionamento sfalsato e analizzare l'espressione genica ritmica con metodologie accessibili per l'analisi successiva. Si prevede che questo approccio sarà particolarmente utile per laboratori che intendono avviare esperimenti circadiani o cercano un flusso di lavoro pratico, riproducibile e accessibile per integrare analisi temporali in modelli cellulari esistenti.
Dichiarazioni
Gli autori dichiarano di non avere conflitti di interessi.
Ringraziamenti
Questo lavoro è stato cofinanziato dall'Unione Europea (UE) tramite il Fondo europeo per la ripresa e la resilienza e dai fondi nazionali portoghesi attraverso la FCT – Fundação para a Ciência e a Tecnologia nei progetti LA/P/0058/2020 (DOI: 10.54499/LA/P/0058/2020), UID/04539/2025, UID/PRR/04539/2025 (DOI: 10.54499/UID/PRR/04539/2025) e UID/PRR2/04539/2025 (DOI: 10.54499/UID/PRR2/04539/2025); dal Fondo europeo di sviluppo regionale (FESR) attraverso il Programma operativo regionale Centro 2030 nel progetto CENTRO2030-FEDER-02360200; e dai fondi nazionali portoghesi tramite la FCT nei finanziamenti 2023.17896.ICDT (DOI: 10.54499/2023.17896.ICDT), 2023.12355.PEX (DOI: 10.54499/2023.12355.PEX), 2021.02220.CEECIND/CP1656/CT0008 (DOI: 10.54499/2021.02220.CEECIND/CP1656/CT0008), 2020.04850.BD (DOI: 10.54499/2020.04850.BD) e 2021.05334.BD (DOI: 10.54499/2021.05334.BD).
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| Piastra per coltura cellulare a 6 pozzetti | Nest Biotechnology | 15140122 | Piastra per coltura cellulare |
| Agarosio | NZYtech | MB02702 | Valutazione della qualità dell'RNA |
| Miscela di antibiotici (penicillina/streptomicina) | Gibco, Thermo Fisher Scientific | D5648 | Integratore per coltura cellulare |
| Kit per la sintesi di cDNA (primo filamento) | NZYtech | MB12502 | Trascrizione inversa |
| Cloroformio | Sigma-Aldrich | A5256701 | Reagente per separazione di fase |
| DMEM, ad alto contenuto di glucosio (4500 mg/L di glucosio, L-glutammina) | Sigma-Aldrich | 26050088 | Mezzo di coltura cellulare |
| Provette microcentrifuga Eppendorf | Eppendorf | 30120086 | Conservazione del campione |
| Etilene (96%) | Fisher Bioreagents | 15552393 | Purificazione dell'RNA |
| Siero bovino fetale, inattivato termicamente | Gibco, Thermo Fisher Scientific | J62692.K7 | Integratore per coltura cellulare |
| Piastra PCR a 96 pozzetti rigida | Bio-Rad Laboratories | HSP9601 | Piastra per qRT-PCR |
| Siero equino, inattivato termicamente | Gibco, Thermo Fisher Scientific | 15400054 | Sincronizzazione mediante shock sierico |
| Linea cellulare mHypoE-42 (CVCL_D443) | CELLutions Biosystems Inc. | MB13402 | Linea cellulare ipotalamica embrionale di topo |
| Primer oligonucleotidici | NZYtech | MB12501 | Primer per qRT-PCR |
| Soluzione salina tamponata al fosfato (PBS) | Thermo Fisher Scientific | MB18502 | Lavaggio cellulare |
| qPCR Green Master Mix (2×) | NZYtech | MB22403 | Reagente per qRT-PCR |
| Sistema di rilevamento PCR in tempo reale | Bio-Rad Laboratories | EP0030108116 | Strumento per qRT-PCR |
| Kit per l'isolamento dell'RNA | NZYtech | 288306 | Purificazione su colonna a spin in silice |
| Reagente di lisi per RNA | NZYtech | MB18502 | Reagente per estrazione dell'RNA a base di fenolo |
| Bicarbonato di sodio | Sigma-Aldrich | MB22401 | Integratore per mezzo di coltura cellulare |
| Piatto di coltura sterile da 35 mm | Thermo Fisher Scientific | 121V | Piatto per coltura cellulare |
| Ciclatore termico T100 | Bio-Rad Laboratories | 1861096 | Sintesi di cDNA |
| Flacone per coltura tessutale T75 | Corning | 430641U | Recipiente per coltura cellulare |
| Soluzione di blu di tripano (0,4%) | Gibco, Thermo Fisher Scientific | 15250061 | Conteggio cellulare |
| Tripsina-EDTA (0,5%) | Gibco, Thermo Fisher Scientific | 15400054 | Dissociazione cellulare |
Riferimenti
- Fuhr L, Abreu M, Pett P, Relógio A. Circadian systems biology: When time matters. Comput Struct Biotechnol J. 2015;13:417-426.
- Albrecht U. Timing to perfection: The biology of central and peripheral circadian clocks. Neuron. 2012;74(2):246-260.
- Relógio A, et al. Ras-mediated deregulation of the circadian clock in cancer. PLoS Genet. 2014;10(5):e1004338.
- Balsalobre A, Damiola F, Schibler U. A serum shock induces circadian gene expression in mammalian tissue culture cells. Cell. 1998;93(6):929-937.
- Hughes ATL, et al. Constant light enhances synchrony among circadian clock cells and promotes behavioral rhythms in VPAC2-signaling deficient mice. Sci Rep. 2015;5:12092.
- Fuhr L, et al. The circadian clock regulates metabolic phenotype rewiring via HKDC1 and modulates tumor progression and drug response in colorectal cancer. EBioMedicine. 2018;33:105-121.
- Nagoshi E, et al. Circadian gene expression in individual fibroblasts: Cell-autonomous and self-sustained oscillators pass time to daughter cells. Cell. 2004;119(5):693-705.
- Balsalobre A, et al. Resetting of circadian time in peripheral tissues by glucocorticoid signaling. Science. 2000;289(5488):2344-2347.
- Kaneko H, Kaitsuka T, Tomizawa K. Response to stimulations inducing circadian rhythm in human induced pluripotent stem cells. Cells. 2020;9(3):732.
- Chalmers JA, et al. Vascular circadian rhythms in a mouse vascular smooth muscle cell line (Movas-1). Am J Physiol Regul Integr Comp Physiol. 2008;295:R1529-R1538.
- Brown SA, et al. Rhythms of mammalian body temperature can sustain peripheral circadian clocks. Curr Biol. 2002;12(18):1574-1583.
- Adamovich Y, et al. Rhythmic oxygen levels reset circadian clocks through HIF1α. Cell Metab. 2017;25(1):93-101.
- Rogers EH, et al. Comparing circadian dynamics in primary derived stem cells from different sources of human adult tissue. Stem Cells Int. 2017;2017:2057168.
- Gaspar LS, et al. The importance of determining circadian parameters in pharmacological studies. Br J Pharmacol. 2019;176(16):2827-2847.
- Nolan T, Hands RE, Bustin SA. Quantification of mRNA using real-time RT-PCR. Nat Protoc. 2006;1(3):1559-1582.
- Derveaux S, Vandesompele J, Hellemans J. How to do successful gene expression analysis using real-time PCR. Methods. 2010;50(4):227-230.
- Livak KJ, Schmittgen TD. Analysis of relative gene expression data using real-time quantitative PCR and the 2−ΔΔCT method. Methods. 2001;25(4):402-408.
- Pfaffl MW, Tichopad A, Prgomet C, Neuvians TP. Determination of stable housekeeping genes, differentially regulated target genes and sample integrity: BestKeeper—Excel-based tool using pair-wise correlations. Biotechnol Lett. 2004;26(6):509-515.
- Vandesompele J, et al. Accurate normalization of real-time quantitative RT-PCR data by geometric averaging of multiple internal control genes. Genome Biol. 2002;3(7):research0034.1-research0034.11.
- Andersen CL, Jensen JL, Ørntoft TF. Normalization of real-time quantitative reverse transcription-PCR data: a model-based variance estimation approach to identify genes suited for normalization. Cancer Res. 2004;64(15):5245–5250.
- Silver N, Best S, Jiang J, Thein SL. Selection of housekeeping genes for gene expression studies in human reticulocytes using real-time PCR. BMC Mol Biol. 2006;7:33.
- Xie F, Wang J, Zhang B. RefFinder: a web-based tool for comprehensively analyzing and identifying reference genes. Funct Integr Genomics. 2023;23:125.
- Parsons R, Garner N, Oster H, Rawashdeh O. CircaCompare: A method to estimate and statistically support differences in mesor, amplitude and phase between circadian rhythms. Bioinformatics. 2020;36(4):1208-1212.
- Parsons R. circacompare: Analyses of circadian data. R package version 0.2.0. 2021. Available at: https://CRAN.R-project.org/package=circacompare
- Di Nisio A, et al. Impairment of human dopaminergic neurons at different developmental stages by perfluoro-octanoic acid (PFOA) and differential human brain areas accumulation of perfluoroalkyl chemicals. Environ Int. 2022;158:106982.
- Xiang S, et al. Oscillation of clock and clock-controlled genes induced by serum shock in human breast epithelial and breast cancer cells: Regulation by melatonin. Breast Cancer (Auckl). 2012;6:155-168.
- Chang HC, Guarente L. SIRT1 mediates central circadian control in the SCN by a mechanism that decays with aging. Cell. 2013;153(7):1448-1460.
- Yoo SH, et al. PERIOD2::LUCIFERASE real-time reporting of circadian dynamics reveals persistent circadian oscillations in mouse peripheral tissues. Proc Natl Acad Sci U S A. 2004;101(15):5339-5346.
- Ueda HR, et al. System-level identification of transcriptional circuits underlying mammalian circadian clocks. Nat Genet. 2005;37(2):187-192.
- Beaulé C, Granados-Fuentes D, Marpegan L, Herzog ED. In vitro circadian rhythms: Imaging and electrophysiology. Essays Biochem. 2011;49(1):103-117.
- Ribeiro RFN, et al. Circadian rhythms are disrupted in patients and preclinical models of Machado-Joseph disease. Brain. 2025;148(11):4127-4142.
- Masri S, Sassone-Corsi P. The emerging link between cancer, metabolism, and circadian rhythms. Nat Med. 2018;24(12):1795-1803.
- Ribeiro RFN, Cavadas C, Silva MMC. Small-molecule modulators of the circadian clock: Pharmacological potentials in circadian-related diseases. Drug Discov Today. 2021;26(7):1620-1641.
Ristampe e permessi
Questo articolo è stato pubblicato
Video in arrivo