Questo studio valuta il trattamento con Qi-fu-yin (QFY) in topi 5xFAD. I risultati mostrano che l'amministrazione di QFY è associata a un miglioramento delle prestazioni di apprendimento e memoria, a una riduzione del deposito cerebrale di Aβ e della senescenza cellulare, e a un attenuato danno strutturale sinaptico nella corteccia cerebrale.
Articolo di ricerca
Effetti di Qi-fu-yin nel migliorare il deficit cognitivo e ridurre la senescenza cellulare nei cervelli di topi 5xFAD
* These authors contributed equally
In questo articolo
Sommario
Abstract
Sebbene il meccanismo d'azione del Qi-fu-yin (QFY), una prescrizione della medicina tradizionale cinese, non sia ancora completamente compreso, esso ha mostrato un potenziale terapeutico nella malattia di Alzheimer (AD). Questo studio si è proposto di indagare l'associazione tra il trattamento con QFY e il deterioramento cognitivo nei topi 5xFAD. Abbiamo utilizzato la forza di prensione, andatura, nidificazione coloniale, scatola di trasferimento, test del labirinto acquatico di Morris e ELISA per valutare i livelli di Amiloide-β proteina 1-42 (Aβ1-42), Aβ1-40, la proteina associata alla crescita 43 (GAP-43), la sinaptofisina (SYN) e la proteina della densità postsinaptica 95 (PSD-95) nei cervelli di topi 5xFAD. L'analisi citochinica con tecnologia Luminex è stata utilizzata per quantificare i livelli del fenotipo secretorio associato alla senescenza (SASP) nella corteccia. La quantità del fenotipo secretorio associato alla senescenza β-galattosidasi (SA-β-Gal), Aβ deposizione e spine dendritiche nei cervelli degli animali sono state misurate mediante SA-βcolorazione con Gal, immunohistochimica e colorazione di Golgi-Cox, rispettivamente. Il trattamento con QFY ridusse in modo significativo l'A corticaleβ carico di placche e ridotta espressione di p21 nei topi 5xFAD, secondo i test di immunofluorescenza. Nei topi 5xFAD, la terapia con QFY ha notevolmente migliorato le prestazioni di apprendimento e memoria, alleviando invecchiamento, e aumentato i livelli delle proteine GAP-43, PSD-95 e SYN nella corteccia dei topi. Dopo il trattamento con QFY, si è osservata una diminuzione significativa di Aβ placca e SA-β-Attività di Gal nel cervello, così come Aβ1-42 e Aβ1-42/Aβ1-40 livelli nell'ippocampo. I livelli di IL-1α, IL-1β, IL-6, IL-17A e IFN-γ erano notevolmente ridotte nella corteccia dei topi 5xFAD. Le analisi PCA e di correlazione di Pearson hanno dimostrato una forte associazione negativa tra le citochine SASP e i livelli delle proteine sinaptiche. Questi risultati suggeriscono un'associazione tra il trattamento con QFY e il miglioramento del declino cognitivo legato all'età e dei fenotipi di senescenza cellulare nei topi 5xFAD, insieme a un attenuato danno strutturale sinaptico. Tali risultati supportano ulteriori indagini sull'uso di QFY come potenziale candidato terapeutico per la malattia di Alzheimer.
Introduzione
Alzheimer's disease (AD)1 is the most prevalent form of dementia, characterized by amyloid-β protein (Aβ), hyperphosphorylated tau proteins (P-Tau), synaptic loss, and chronic inflammation. Currently available medications for AD have a number of side effects and are unable to stop the disease's progression2,3,4,5.
Senescence, which manifests as organism-wide disruptions across cellular and interstitial microenvironments rather than localized organ-specific alterations, is a key risk factor in AD pathogenesis. This systemic dysregulation distinguishes AD progression from single tissue-pathology models by fundamentally changing homeostatic mechanisms across biological systems6,7. Although cellular senescence initially serves as a homeostatic regulatory mechanism, the accumulation of senescent cells eventually causes progressive tissue degradation and persistent inflammatory cascades, fundamentally disrupting physiological homeostasis8. The ensuing inflammation may harm synapses and impair cognitive function9,10.
Cellular senescence is a complex cellular stress response characterized by telomere shortening, permanent cell-cycle arrest, and altered secretory activity11. Additional hallmarks include enlarged, flattened cell morphology, positive senescence-associated β-galactosidase (SA-β-Gal) staining, lipofuscin accumulation, and secretion of SASP factors12. Memory formation is affected by the notable decline in the levels of proteins associated with synaptic plasticity of axons and dendrites, which occurs with cellular senescence13,14. Because synaptic plasticity is essential for learning and memory, disruptions in synaptic proteins contribute to cognitive impairment. These proteins include GAP-43, SYN, and PSD-95. Undoubtedly, synaptic function is affected by reductions in dendritic numbers and functional abnormalities in the brains of the elderly15.
QFY is a traditional Chinese medicine formula derived from Jing Yue Quan Shu. It is composed of Panax ginseng C.A.Mey (Araliaceae), Polygala tenuifolia Willd (Polygalaceae), Rehmannia glutinosa (Gaertn.) Libosch. ex Fisch. & C. A. Mey (Orobanchaceae), Angelica sinensis (Oliv.) Diels (Apiaceae), Glycyrrhiza uralensis Fisch. ex DC. (Fabaceae), Atractylodes macrocephala Koidz (Asteraceae), Ziziphus jujuba Mill. var. spinosa (Bunge) Hu ex H.F. Chou (Rhamnaceae). Research has demonstrated that QFY significantly ameliorates cognitive dysfunction in rats with diabetes-induced brain injury16. Our previous study found that QFY could improve cognitive learning and memory functions impairment in 5xFAD and APP/PS1 mice. In addition, QFY demonstrated high safety in non-clinical studies, and no obvious acute, subacute, or long-term toxic reactions were observed17,18,19. Analysis of the clinical therapeutic effect of QFY showed that AD patients experienced a significant increase in their capacity for activities of daily living and MMSE scores after QFY treatment20. Following three consecutive days of QFY administration in male Sprague-Dawley rats, ten prototype QFY-derived components, including butylidenephthalide, butylphthalide, 20(S)-ginsenoside Rh1, 20(R)-ginsenoside Rh1, and zingibroside R1, were detected in cerebrospinal fluid21,22. However, the therapeutic mechanism of QFY in AD is still unclear. In this study, we investigated the association between QFY treatment, cellular senescence, and AD-related pathological changes in 5xFAD mice.
Although previous studies have demonstrated the neuroprotective effects of QFY in AD models, the specific involvement of cellular senescence in mediating these effects remains unexplored. Moreover, whether QFY confers cognitive benefits through senescence‑associated synaptic preservation, rather than solely through amyloid‑β reduction, has not been addressed. The present study was therefore designed to investigate whether QFY treatment attenuates cellular senescence and whether this attenuation is associated with improved synaptic plasticity in 5xFAD mice.
Protocollo
Tutti gli esperimenti sugli animali sono stati approvati dal Comitato Etico per il Benessere degli Animali da Laboratorio dell'Università di Medicina Tradizionale Cinese di Shandong (SDUTCM20221101001).
Farmaci
La polvere secca in crema granulare QFY è stata preparata e testata presso il Centro di Ricerca e Sviluppo Farmaceutico Houpu di Lunan. Donepezil e Memantina sono stati acquistati da Shanghai Yuanye Technology. Nel presente studio sono stati utilizzati topi maschi 5xFAD con un peso corporeo iniziale compreso tra 19 e 27 g. La dose di QFY è stata ricavata dalla dose clinica umana di 43 g/giorno, corrispondente a 16,297 g/giorno dopo l'adeguamento alla polvere secca in crema granulare QFY. La dose media per il presente esperimento è stata calcolata sulla base della dose clinica umana (16,297 g/70 kg × 9,1 = 2,11861 g/kg/giorno). La dose alta è stata stabilita al doppio della dose media (4,24 g/kg/giorno), mentre la dose bassa è stata fissata alla metà della dose media (1,06 g/kg/giorno). Tutte le soluzioni farmacologiche sono state somministrate in un volume di 0,1 mL ogni 10 g di peso corporeo.
Come controllo positivo, è stata impiegata l'amministrazione combinata di donepezil e cloridrato di memantina. Le dosi sono state determinate in riferimento alle dosi attualmente utilizzate in ambito clinico (rispettivamente 10 mg/die e 20 mg/die) e ai dati precedenti del nostro gruppo di ricerca, ottenendo un regime di 1,0 mg/kg/die di donepezil più 2,8 mg/kg/die di memantina, per una dose combinata totale di 3,8 mg/kg/die. La concentrazione finale della miscela di donepezil–memantina è stata preparata a 0,38 mg/mL, calcolata come 3,8 mg/kg diviso per il volume di somministrazione di 0,1 mL ogni 10 g di peso corporeo.
Le soluzioni di QFY a dose bassa, media e alta sono state preparate come segue: 5,3 g, 10,6 g e 21,2 g di polvere secca di QFY sono stati posti ciascuno in becker separati da 100 mL, mescolati con 30 mL di acqua purificata mediante agitazione accurata, trasferiti in cilindri graduati e portati al volume finale di 50 mL con acqua purificata, ottenendo concentrazioni massiche finali rispettivamente di 0,106 g/mL, 0,212 g/mL e 0,424 g/mL. Per il controllo positivo, 5 mg di donepezil e 14 mg di memantina sono stati sciolti in acqua purificata e portati al volume finale di 50 mL. Gli animali di ciascun gruppo hanno ricevuto una volta al giorno la soluzione di farmaco corrispondente mediante somministrazione orale tramite sondino.
Animali
I topi transgenici 5xFAD [B6. Cg-Tg (APPSwFlLon, PSEN1* M146L* L286V)6799Vas/Mmjax] sono stati allevati in laboratorio. Gli animali sono stati mantenuti tutti in un ambiente SPF presso l'Università di Medicina Tradizionale Cinese di Shandong, con una temperatura di 22–24 oC, un'umidità del 50–60% e un ciclo luce-buio di 12 ore. Cibo e acqua sono stati forniti agli animali in ogni momento.
A 2,5 mesi di età, topi maschi 5xFAD sono stati assegnati casualmente a cinque gruppi: 5xFAD non trattati, donepezil più memantina, QFY a basso dosaggio, QFY a dosaggio medio e QFY ad alto dosaggio. Coetanei maschi di tipo selvaggio (WT) servivano da gruppo di controllo WT. I trattamenti sono stati somministrati una volta al giorno per 220 giorni. (Figura 1).
Test comportamentali
Test della forza della presa
La forza muscolare scheletrica degli arti anteriori dei topi è stata misurata utilizzando un dinamometro per la forza di prensione23. Durante l'esperimento, il dispositivo di prova è stato posizionato in orizzontale, in modo che il topo rimanesse parallelo alla superficie del tavolo. Dopo aver acceso il dispositivo, il topo è stato posizionato delicatamente sulla piastra di prensione. Quando il topo aveva afferrato saldamente la piastra, la sua coda veniva tirata all'indietro con una forza costante fino a quando il topo non lasciava la presa. La forza massima di prensione è stata registrata. Questa misurazione è stata ripetuta tre volte e la media di questi valori è stata utilizzata per determinare la forza di prensione del topo.
Test della deambulazione
La regolarità dell'andatura dei topi è stata misurata utilizzando CatWalk XT. L'esperimento è stato suddiviso in un periodo di addestramento e un periodo di prova24. Un giorno prima, i topi sottoposti a esperimento sono stati trasferiti nella stanza sperimentale per permettere loro di adattarsi al nuovo ambiente. Durante il periodo di addestramento, i topi venivano posizionati nel punto di partenza e percorrevano autonomamente il canale fino al punto finale. Ogni topo veniva addestrato tre volte al giorno. Dopo 3 giorni di addestramento (fino a quando ciascun topo riusciva a percorrere rapidamente il canale), i topi venivano riportati nella gabbia. Il periodo di prova era identico al periodo di addestramento e il software del computer analizzava automaticamente ogni traiettoria di movimento. Punti verdi venivano visualizzati se la traiettoria era valida, punti arancioni se non lo era, e per ciascun topo dovevano essere presenti almeno tre punti verdi validi, che venivano analizzati mediante il software CatWalkXT 10.0.
Test della scatola di trasferimento
Il test della scatola di trasferimento è stato utilizzato per valutare la capacità di evitamento attivo condizionato nei topi25. L'apparato consisteva in una scatola di trasferimento (18 cm x 18 cm) collocata all'interno di una camera fonoassorbente. L'esperimento comprendeva un periodo di apprendimento di 4 giorni seguito da un periodo di prova di 1 giorno. Ogni giorno di apprendimento, ai topi veniva concesso un periodo di adattamento di 120 s nella scatola di trasferimento prima dell'inizio dell'addestramento. Ogni prova iniziava con uno stimolo condizionato di 6 s (tono a 70 dB, 1000 Hz abbinato a una luce da 500 lux), seguito da una scossa ai piedi di 3 s, 0,3 mA erogata attraverso il pavimento a griglia, e terminava con un intervallo interprova di 12 s. Se il topo passava al compartimento opposto durante lo stimolo condizionato, la scossa veniva omessa e la risposta veniva registrata come evitamento attivo. Se il topo non attraversava durante lo stimolo condizionato ma lo faceva durante la scossa ai piedi, la risposta veniva registrata come evitamento passivo. Se il topo non attraversava per tutta la durata della prova, la risposta veniva registrata come fallimento dell'evasione. L'addestramento è stato ripetuto per 4 giorni consecutivi con 30 prove al giorno. Durante il periodo di prova (giorno 5), la scossa ai piedi è stata omessa, mentre tutti gli altri parametri sono rimasti invariati rispetto al periodo di apprendimento. Il numero di risposte di evitamento attivo è stato registrato come misura principale di apprendimento e memoria.
Labirinto acquatico di Morris
Il test del labirinto acquatico di Morris è stato utilizzato per valutare le capacità di apprendimento spaziale e di memoria negli animali sperimentali26. L'esperimento è stato condotto in una vasca con un diametro di 120 cm e una profondità di 50 cm. La vasca è stata riempita con acqua bianca torbida, mantenuta alla temperatura di 21 °C. Una piattaforma con un diametro di 10 cm è stata posizionata a 1 cm sotto la superficie dell'acqua in uno dei quadranti. Intorno alla vasca sono stati disposti indizi visivi come punti di riferimento spaziali per i topi. La fase di apprendimento è stata svolta per quattro giorni consecutivi, con ciascuna sessione giornaliera che iniziava in uno di tre quadranti. Le posizioni di partenza variavano in modo pseudo-casuale tra i quattro punti cardinali. Ogni prova terminava quando l'animale raggiungeva con successo la piattaforma. È stato stabilito un tempo massimo di prova di 60 s; se l'animale non riusciva a individuare la piattaforma entro questo intervallo, veniva guidato con attenzione verso di essa. Dopo aver raggiunto la piattaforma, all'animale veniva concesso un breve riposo di 10 s prima di essere riportato nella sua gabbia di provenienza. Al termine del periodo di apprendimento, il periodo di prova inizia 24 h dopo. I topi vengono posizionati dal quadrante opposto rispetto a quello della piattaforma al giorno 5. Durante il periodo di prova vengono registrati la latenza di fuga, il tempo trascorso nel quadrante bersaglio e il numero di attraversamenti della zona originaria sott'acqua dove si trovava la piattaforma.
Test di nidificazione in colonia
Le attività quotidiane degli animali sperimentali sono state valutate utilizzando il test del nido coloniale27. L'esperimento è durato 24 h, con tre animali per gruppo. Dopo la somministrazione del farmaco nello stesso giorno, sono state preparate nuove gabbie foderate con 6 g di carta morbida per la costruzione del nido, e sono state scattate fotografie a 6 h, 12 h e 24 h. Alla fine dell'esperimento, la carta era dispersa in tutta la gabbia, senza alcun morso: 1 punto. I pezzi di carta erano raggruppati lateralmente nella gabbia, ma in modo allentato, senza formazione di nidi né evidente strappo o piegatura: 2 punti; i pezzi di carta raccolti e piegati in un nido formato ma relativamente piatto, senza evidente strappo: 3 punti; un nido profondo con carta ampiamente sminuzzata: 4 punti. Alla fine dell'esperimento, il cartoncino intatto (definito come frammenti di carta con peso >0,1 g non sminuzzati né incorporati nel nido) è stato accuratamente raccolto, essiccato all'aria e pesato mediante una bilancia elettronica (precisione: 0,01 g).
Campionamento e raccolta dei campioni
Sono stati raccolti campioni solo dai gruppi WT, 5xFAD e QFY (2,12 g/kg/giorno). Dopo l'asfissia con CO2, le teste sono state staccate, l'emisfero destro è stato rapidamente aperto per separare l'ippocampo e la corteccia, risciacquato con soluzione salina tamponata al fosfato (PBS) e posto in provette da 1,5 mL congelate in azoto liquido. I campioni sono stati conservati a -80 oC per analisi biochimiche. L'emisfero sinistro è stato fissato per immersione in paraformaldeide al 4% per 24 h, disidratato per immersione in etanolo assoluto, incluso in paraffina, sezionato a 5 µm e deparaffinizzato per la rilevazione immunohistochimica.
Saggio immunoenzimatico (ELISA)
Gli ELISA sono stati eseguiti per quantificare i livelli delle proteine bersaglio nei tessuti cerebrali. I contenuti di Aβ1–40 e Aβ1–42 negli omogenati dell'ippocampo sono stati misurati utilizzando kit commerciali, mentre i livelli corticali di GAP-43, PSD-95 e SYN sono stati determinati mediante kit provenienti da Jiangsu Enzyme Immunoassay Industry. Tutte le procedure sono state eseguite rigorosamente secondo i protocolli dei produttori. Le serie standard sono state preparate mediante diluizione seriale seguendo le istruzioni del kit. Il layout della micropiastra includeva pozzetti vuoti, pozzetti per gli standard, pozzetti per campioni 5xFAD, pozzetti per campioni trattati con QFY (2,12 g/kg/giorno) e pozzetti per campioni di tipo selvaggio. Prima del caricamento, tutti i campioni sono stati diluiti di due volte con il diluente fornito. I reagenti sono stati aggiunti tenendo la punta della pipetta perpendicolare al fondo del pozzetto, quindi delicatamente agitati per assicurare un mescolamento completo.
Dopo la sigillatura della piastra, l'incubazione iniziale è stata eseguita a 37 °C per 30 min. Durante questo periodo, il buffer di lavaggio è stato preparato diluendo la soluzione concentrata con acqua ultrapura in rapporto 1:29 (1 mL di concentrato in 29 mL di acqua). Al termine dell'incubazione, la pellicola sigillante è stata rimossa, il liquido è stato eliminato e la piastra è stata asciugata tamponando delicatamente. Ciascun pozzetto è stato quindi riempito con 200 µL di buffer di lavaggio, lasciato in posa per 30 s e svuotato; il ciclo è stato ripetuto per 5 volte. Successivamente, il reagente marcato con enzima (50 µL) è stato aggiunto in tutti i pozzetti tranne i bianchi, e la piastra è stata nuovamente sigillata e incubata a 37 °C per 30 min, seguita da un identico passaggio di lavaggio ripetuto per cinque cicli.
Per lo sviluppo del colore, sono stati aggiunti 50 µL di soluzione cromogenica A in ogni pozzetto, seguiti da 50 µL di soluzione cromogenica B, con un'accurata miscelazione dopo ciascun aggiunta. La piastra è stata incubata a 37 °C al buio per 10 minuti. La reazione enzimatica è stata interrotta aggiungendo 50 µL di soluzione di arresto per ogni pozzetto, che ha trasformato immediatamente il colore blu in giallo. L'assorbanza (densità ottica) è stata misurata a 450 nm utilizzando un lettore di micropiastre, con i pozzetti vuoti come riferimento; tutte le letture sono state effettuate entro 15 minuti dall'arresto della reazione.
Luminex
I livelli corticali dei fattori SASP sono stati misurati utilizzando il kit Bio‑Plex Pro Mouse Cytokine 23‑plex Assay, seguendo tutte le procedure indicate dal produttore. I reagenti sono stati prelevati dallo stoccaggio a 4 °C e lasciati equilibrare a temperatura ambiente per 30 minuti prima dell'uso. Le soluzioni madri degli standard sono state diluite in serie per generare una curva standard a sette punti, più un pozzetto bianco, secondo il protocollo del kit. Le perle magnetiche sono state pre-miscelate e diluite alla concentrazione operativa raccomandata; gli anticorpi di rilevamento sono stati preparati come soluzioni di lavoro; e il concentrato del buffer di lavaggio è stato diluito a 1x con acqua deionizzata. Il coniugato PE-streptavidina è stato anch'esso diluito a 1x utilizzando il buffer di diluizione fornito.
Per il saggio, 50 µL di sospensione di perline, standard, controlli di qualità e campioni di tessuto diluiti (5,6 µg/µL) sono stati aggiunti in sequenza alle pozzette designate secondo la disposizione della piastra. La piastra è stata quindi sigillata e incubata tutta la notte a 4 °C con agitazione orbitale a 800 rpm. Dopo l'incubazione, le perline sono state lavate tre volte con 200 µL di tampone di lavaggio per pozzetta. Successivamente, sono stati aggiunti 50 µL di anticorpo di rilevamento preparato in ciascuna pozzetta, e la piastra è stata incubata a temperatura ambiente per 1 h con agitazione a 800 rpm. Dopo altri tre cicli di lavaggio, sono stati aggiunti 50 µL di soluzione lavorativa di PE-streptavidina, e la piastra è stata incubata per ulteriori 30 min a temperatura ambiente nelle stesse condizioni di agitazione. È stato eseguito un ultimo lavaggio (tre volte con 200 µL di tampone di lavaggio), dopo di che sono stati aggiunti 150 µL di tampone di lavaggio in ciascuna pozzetta, e la piastra è stata agitata a temperatura ambiente per 2 min a 800 rpm prima della lettura sull'apparecchio Bio-Plex.
Colorazione per SA-β-Gal e immunohistochemia
La colorazione SA-β-Gal è stata eseguita secondo le istruzioni del kit Senescence β-Galactosidase Staining Kit. Dopo la colorazione SA-β-Gal, le sezioni sono state sottoposte a recupero dell'antigene mediante riscaldamento in tampone citrato (pH 6,0). L'attività della perossidasi endogena è stata bloccata incubando le sezioni in una soluzione bloccante per la perossidasi per 10 minuti a temperatura ambiente. Successivamente, le sezioni sono state incubate con un anticorpo monoclonale anti-Aβ₁-₄₂ di coniglio (1:400) a 4 °C durante la notte. Dopo il lavaggio, le sezioni sono state incubate con un anticorpo secondario IgG anti-coniglio/topo per 20 minuti a temperatura ambiente. Dopo ulteriori lavaggi, la reattività immunologica è stata rivelata con DAB per 2 minuti. Infine, le sezioni sono state disidratate, chiarificate e montate con resina neutra per l'esame microscopico.
Immunofluorescenza
Per la colorazione mediante immunofluorescenza, le sezioni in paraffina sono state disparaffinate nello xilene (3 × 15 min) e riidratate attraverso una serie di etanolo a concentrazione decrescente (100%, 95% e 75%; 2 × 5 min ciascuno). Il recupero dell'antigene è stato eseguito immergendo le sezioni in tampone di citrato sodico 1x a 95 °C per 30 min, quindi raffreddando gradualmente a temperatura ambiente. Dopo tre risciacqui con soluzione salina tamponata al fosfato contenente Tween 20 (PBST) (5 min ciascuno), le sezioni sono state permeabilizzate e bloccate con siero di capra normale al 10% contenente Triton X‑100 allo 0,3% per 90 min a temperatura ambiente. Successivamente, le sezioni sono state incubate con anticorpi primari contro p21/CIP1/CDKN1A (1:200) e Aβ₁‑₄₂ (1:400) a 37 °C per 2 h. Dopo quattro lavaggi con PBST (5 min ciascuno), le sezioni sono state incubate con anticorpi secondari coniugati ad Alexa Fluor, specifici per la specie, (1:500) a 37 °C per 2 h al buio. Dopo un ulteriore lavaggio (4 × 5 min in PBST), le sezioni sono state montate con un mezzo di montaggio antifade contenente DAPI e analizzate mediante microscopio a fluorescenza.
Colorazione Golgi-Cox
La colorazione Golgi-Cox è stata eseguita utilizzando un kit commerciale seguendo le istruzioni del produttore. Le Soluzioni A e B sono state miscelate 24 ore prima dell'esperimento. Dopo l'eutanasia dei topi, i tessuti cerebrali sono stati rapidamente rimossi, risciacquati con PBS e immersi nella miscela delle Soluzioni A e B. I tessuti sono stati conservati a temperatura ambiente al buio per 6 ore, dopo di che la soluzione di impregnazione è stata sostituita con soluzione fresca e l'incubazione è proseguita per ulteriori 2 settimane a temperatura ambiente al buio (almeno 2 mL di soluzione di impregnazione per ogni tessuto cerebrale). Successivamente, i tessuti sono stati trasferiti nella Soluzione C e incubati per 24 ore, quindi la soluzione è stata sostituita con Soluzione C fresca e l'incubazione è continuata per ulteriori 7 giorni a temperatura ambiente al buio. I tessuti cerebrali sono stati sezionati con uno spessore di 100 µm utilizzando un vibratomo. I tagli sono stati montati su vetrini rivestiti con gelatina e lasciati asciugare a temperatura ambiente per 3 giorni. I vetrini sono stati risciacquati due volte con acqua distillata (5 minuti ciascuno), quindi immersi in una miscela di Soluzione D, Soluzione E e acqua distillata (rapporto 1:1:2) per 15 minuti. Dopo altri due risciacqui con acqua distillata (5 minuti ciascuno), i tagli sono stati disidratati mediante soluzioni alcoliche graduali (50%, 75% e 95%; 5 minuti ciascuna), seguiti da quattro risciacqui in etanolo assoluto (4 minuti ciascuno) e tre risciacqui in xilene (5 minuti ciascuno). Infine, i preparati sono stati coperti con coprioggetti utilizzando un mezzo di montaggio. Le immagini sono state acquisite al microscopio e la densità delle spine dendritiche è stata quantificata utilizzando ImageJ.
Analisi statistica
Tutti i risultati sono stati riportati come media ± DS. I dati sono stati analizzati e rappresentati graficamente utilizzando GraphPad Prism 8.1.0. Per il confronto tra due gruppi è stato utilizzato il test t di Student. Per i confronti che coinvolgevano più gruppi è stata utilizzata un'ANOVA a un fattore, con confronti a coppie effettuati mediante il test di Dunnett. La significatività statistica è stata stabilita a p < 0,05.
Analisi multivariata e delle correlazioni
È stata eseguita un'analisi delle componenti principali (PCA) utilizzando GraphPad Prism 8.0.1 per visualizzare il raggruppamento dei fattori SASP (IL-1α, IL-1β, IL-6, IL-17A, IFN-γ, CCL3, CCL4 e CCL5) tra i gruppi WT, 5xFAD e QFY (2,12 g/kg/giorno) (n = 8 per gruppo). Il grafico dei punteggi è stato generato in base alle prime due componenti principali. Nessuna trasformazione dei dati è stata applicata prima della PCA. È stata condotta un'analisi della correlazione di Pearson per valutare le relazioni lineari tra i fattori SASP e le proteine sinaptiche (PSD-95, GAP-43 e SYN), nonché tra Aβ₁₋₄₀, Aβ₁₋₄₂ e il rapporto Aβ₁₋₄₂/Aβ₁₋₄₀. L'analisi è stata eseguita utilizzando GraphPad Prism, con una soglia di significatività a due code di p < 0,05. Sono state generate matrici di correlazione e una mappa termica per visualizzare l'intensità e la direzione delle associazioni.
Risultati
Administration of QFY enhances learning and memory in 5xFAD mice
After QFY administration, a shuttle box test was conducted to assess the conditional active avoidance response of mice (Figure 2A–C). The results showed the number of active avoidances on days 1-4 (Figure 2A, p < 0.05) and the area under the curve (AUC) of active avoidance (Figure 2B, p < 0.01) during the learning period, and the number of active avoidances (Figure 2C, p < 0.05) during the test period were significantly reduced in 5xFAD mice compared with WT mice. The administration of donepezil and memantine significantly increased the number of active avoidances on day 2 during the learning period in 5xFAD mice (Figure 2A, p < 0.05). The administration of QFY significantly increased the number of active avoidances on days 3 and 4 (Figure 2A, p < 0.05), and the AUC of active avoidance (Figure 2B, p < 0.01 in QFY high-dose group) during the learning period, and the number of active avoidances (Figure 2C, p < 0.05 in QFY low-dose group) during the test period. This data indicates that the ability to perform an active avoidance response was impaired in 5xFAD mice, whereas QFY administration improved it.
We used the Morris water maze to evaluate spatial learning and memory in mice. The results showed (Figure 2D–I) that the escape latency on the first day (Figure 2D, p < 0.05) and AUC of escape latency (Figure 2E, p < 0.01) during learning period, escape latency in testing period (Figure 2F, p < 0.05) were obviously increased in 5xFAD mice compared with WT mice, the number of platform crossings (Figure 2H, p < 0.05) was reduced significantly in 5xFAD mice compared with WT mice. The administration of donepezil and memantine significantly reduced the AUC of escape latency during the learning period (Figure 2E, p < 0.05) and during the testing period (Figure 2F, p < 0.01). The treatment of QFY significantly reduced the AUC of escape latency during the learning period (Figure 2E, p < 0.05 in QFY low-dose and high-dose groups, p < 0.01 in QFY medium-dose group) and escape latency (Figure 2F, p < 0.01 in three QFY groups) during the testing period, and also prolonged the time in the target quadrant (Figure 2G, p < 0.05 in low-dose QFY group), increased the number of crossings (Figure 2H, p < 0.05 in low-dose QFY), evidently. These results indicate spatial learning and memory deficits in 5xFAD mice and that QFY treatment ameliorated these deficits.
Administration of QFY alleviates aging in 5xFAD mice
After QFY administration, gait, grip strength, and colony nesting tests were used to evaluate mouse aging. The results (Figure 3A) showed that, compared with WT mice, run duration, run maximum variation, and the step sequence regularity index decreased significantly in 5xFAD mice (p < 0.05). Run average speed (Figure 3A, p < 0.05), right forelimb (RF) stand index (Figure 3A, p < 0.01), left hindlimb (LH) stand index (Figure 3A, p < 0.05), RF max contact (Figure 3A, p < 0.01), right hindlimb (RH) swing speed (Figure 3A, p < 0.05), LH swing speed (Figure 3A, p < 0.01) and duty cycle (FIGURE 3A, p < 0.05) in 5xFAD was significant increased. The treatment of donepezil and memantine increased RH, stand index left forelimb (LF) stand index (Figure 3A, p < 0.05) and decreased LH duty cycle (Figure 3A, p < 0.01), also reduced RH initial dual stance (Figure 3A, p < 0.05) and LH terminal dual stance (Figure 3A, p < 0.01) of 5xFAD mice. The administration of QFY reduced LH duty cycle (Figure 3A, p < 0.05 in QFY low- and p < 0.01 in medium-dose group), RH initial dual stance (Figure 3A, p < 0.05 in QFY low-dose and high-dose group, p < 0.01 in QFY medium-dose group) and LH terminal dual stance (Figure 3A, p < 0.05 in QFY low-dose group, p < 0.01, in QFY medium- and high-dose group), also increased the run duration (Figure 3A, p < 0.05 in QFY low-and medium-dose group), run maximum variation (Figure 3A, p < 0.05 in QFY low- and medium-dose group), step sequence regularity index (Figure 3A, p < 0.01 in QFY low- and medium-dose group), LF stand index (Figure 3A, p < 0.05 in QFY low-dose group) and LH stand index (Figure 3A, p < 0.05 in QFY low-dose group) of 5xFAD mice. These results indicate that 5xFAD mice exhibited an abnormal gait, which QFY treatment restored.
After QFY administration, a grip-strength test was conducted to assess forelimb strength. The experimental data (Figure 3B) show that the forelimb strength of the 5xFAD mice was significantly weaker than that of WT mice (p < 0.01). The administration of donepezil and memantine (Figure 3B, p < 0.01), QFY (Figure 3B, p < 0.01, in QFY low-dose and high-dose groups) significantly increased the grip strength of the 5xFAD mice. These studies suggest that forelimb strength in 5xFAD mice has been enhanced by QFY treatment.
The results of colony nesting test showed (Figure 3C–G) that the nesting score of the 5xFAD mice were significantly lower than the WT mice at 6 h (Figure 3C, p < 0.05), 12 h and 24 h after the start of colony nesting (Figure 3DE, p < 0.01), and the untorn tissue weight was significantly higher of 5xFAD mice (Figure 3F, p < 0.01). Administration with donepezil and memantine just decreases the untorn tissue weight (Figure 3F, p < 0.01). The treatment with QFY increased nesting scores at 12 h (Figure 3D; QFY p < 0.05 in the QFY medium-dose group) and 24 h (Figure 3E; QFY p < 0.05 in the QFY low- and medium-dose groups). Moreover, the untorn tissue weight was significantly lower in the QFY low- and medium-dose groups (Figure 3F, p < 0.01) and in the QFY high-dose group (Figure 3F, p < 0.05). These results indicated that QFY treatment enhanced daily activity in 5xFAD mice.
Treatment of QFY reduces the synaptic structure damage in the cerebral cortex of 5xFAD mice
After QFY treatment, the cerebral cortex of mice was collected to measure the protein levels of GAP-43, PSD-95, and SYN by ELISA. The results (Figure 4A–C) showed that the contents of GAP-43 (Figure 4A, p < 0.05), PSD-95 (Figure 4B, p < 0.01), and SYN (Figure 4C, p < 0.01) in the cerebral cortex of the 5xFAD mice were significantly lower than those in WT mice. The protein content of GAP-43 (Figure 4A, p < 0.05), PSD-95 (Figure 4B, p < 0.01), and SYN (Figure 4C, p < 0.01) significantly increased after the treatment of QFY. The results of Golgi-Cox staining (Figure 4D) showed that the length of dendrites in the cerebral cortex of the 5xFAD mice was shorter (Figure 4G, p < 0.05) than that of WT mice. The treatment with QFY tended to increase the length, number, and density of dendritic spines.
Treatment of QFY reduced Aβ deposition and cellular senescence in the brains of 5xFAD mice
Aβ deposition and cellular senescence play important roles in AD pathogenesis. We used a combination of SA-β-Gal staining and Aβ immunohistochemistry to assess co-localization between SA-β-Gal and Aβ plaques. The result showed there was a large amount of SA-β-Gal aggregation and Aβ plaque deposition in the cerebral cortex of 5xFAD mice (Figure 5A), while only a few SA-β-Gal aggregations and Aβ plaque depositions were found after QFY treatment (Figure 5A). In addition, there was co-localization of SA-β-Gal and Aβ plaque.
Immunofluorescence assays revealed that 5xFAD mice brains were heavily laden with both Aβ plaques and p21-positive cells (Figure 5B,C). Administration of QFY significantly curtailed cortical Aβ plaque and attenuated p21 expression in these animals (Figure 5B,C). The results of ELISA showed that compared with WT mice, the content of Aβ1-42 and the ratio of Aβ1-42/ AΒ1-40 was significantly increased in the hippocampus of 5xFAD mice (Figure 5D,F, p < 0.01), while the treatment of QFY reduced them obviously (Figure 5D, p < 0.01; Figure 5F, p < 0.05, respectively).
Senescent cells typically secrete large amounts of SASP factors. The results of Luminex analysis showed the contents of IL-1α (Figure 5G, p < 0.05), IL-1β (Figure 5H, p < 0.01), IL-17A (Figure 5J, p < 0.05), CCL3 (Figure 5K, p < 0.01), CCL4 (Figure 5L, p < 0.01), CCL5 (Figure 5M, p < 0.01) and IFN-γ (Figure 5N, p < 0.01) were significantly increased in cortex of 5xFAD mice. QFY treatment decreased the contents of IL-1α (Figure 5G, p < 0.05), IL-1β (Figure 5H, p < 0.05), IL-6 (Figure 5I, p < 0.05), IL-17A (Figure 5J, p < 0.05), and IFN-γ (Figure 5N, p < 0.01) in the cortex significantly.
These data indicate that cellular senescence appeared in the brain of 5xFAD mice, while the treatment of QFY reduced cellular senescence in 5xFAD mice.
Effects of QFY ameliorating cognitive impairment and reducing the aging of brain cells in 5xFAD mice correlated with synaptic damage
Principal component analysis (PCA) was performed to assess the overall SASP expression profiles (IL‑1α, IL‑1β, IL‑6, IL‑17A, CCL3, CCL4, CCL5, and IFN‑γ) among WT, 5xFAD, and QFY‑treated groups (Figure 6A). The first two principal components accounted for 44.11% and 23.46% of the total variance, respectively. As shown in the PCA score plot (Figure 6A), the WT group was clearly separated from the 5xFAD group. Notably, the QFY‑treated group showed an intermediate position, clustering more closely with the WT group than with the 5xFAD group, suggesting partial normalization of the SASP profile after QFY treatment. Statistical analysis of PC1 scores (Figure 6B) revealed that the 5xFAD group exhibited significantly higher PC1 values than the WT group. PC2 scores (Figure 6C) also showed significant differences between the 5xFAD and WT groups. Loading plot analysis (Figure 6D) indicated that IL‑1α, IL‑1β, and IFN‑γ were the major contributors to PC1, whereas IL‑6 and CCL3 contributed more substantially to PC2.
We performed Pearson correlation analyses between IL-1α, IL-1β, and IFN-γ and the contents of PSD-95, GAP-43, and SYN in the cortex, as well as the contents of Aβ1-40 and Aβ1-42 and the ratio of Aβ1-42/Aβ1-40 in the hippocampus, and developed heatmaps to visualize the interplay between synaptic-associated protein and SASP function. IL-1α, IL-1β, and IFN-γ levels positively correlated with the contents of Aβ1-40 and Aβ1-42 and the ratio of Aβ1-42/Aβ1-40 (Figure 6E, p < 0.05), and negatively correlated with the content of SYN protein. The levels of IL-1α and IFN-γ were negatively correlated with the content of GAP-43 protein, and IL-1β was negatively correlated with PSD-95 protein (Figure 6E, p < 0.05). These data suggest that IL-1α, IL-1β, and IFN-γ are major contributors to synaptic dysfunction.
Data Availability:
All raw data supporting the findings of this study have been deposited in Figshare and are accessible via the private reviewer link: https://doi.org/10.6084/m9.figshare.33208029.
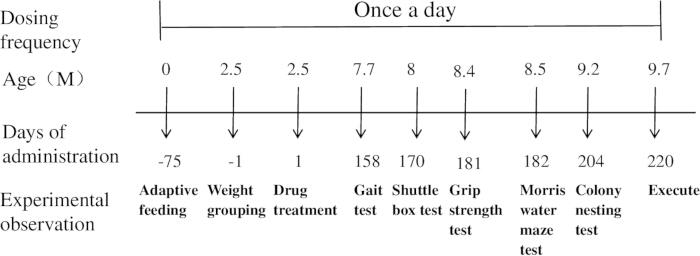
Figure 1: Schematic diagram of the experimental procedure. Please click here to view a larger version of this figure.
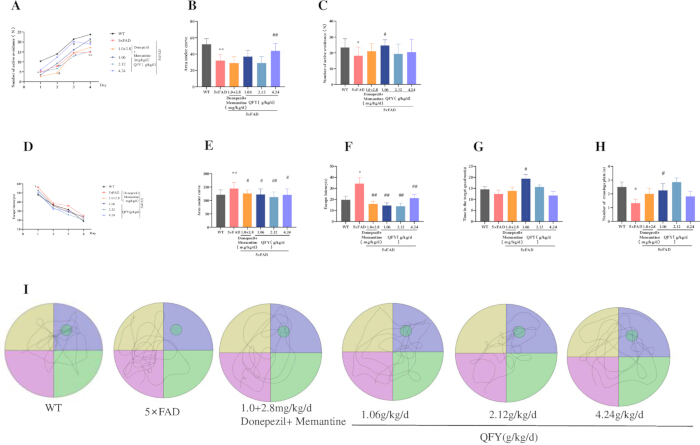
Figure 2: QFY administration improves learning and memory performance in 5xFAD mice. (A–C) Shuttle box test: (A) Number of active avoidance responses during the learning period. (B) Area under the curve (AUC) for active avoidance responses during the learning period. (C) Number of active avoidance responses during the test period. (D–I) Morris water maze test: (D) Escape latency during the learning period. (E) AUC for escape latency during the learning period. (F) Escape latency during the test period. (G) Time spent in the target quadrant. (H) Number of platform crossings. (I) Movement trajectories during the test period. Mean ± SD, n = 11–20 per group, with exact n indicated in each bar. * = p < 0.05, vs WT, Student`s t-test; # = p < 0.05, ## = p < 0.01, vs 5xFAD; One-way ANOVA followed by Dunnett's multiple comparisons test. Please click here to view a larger version of this figure.
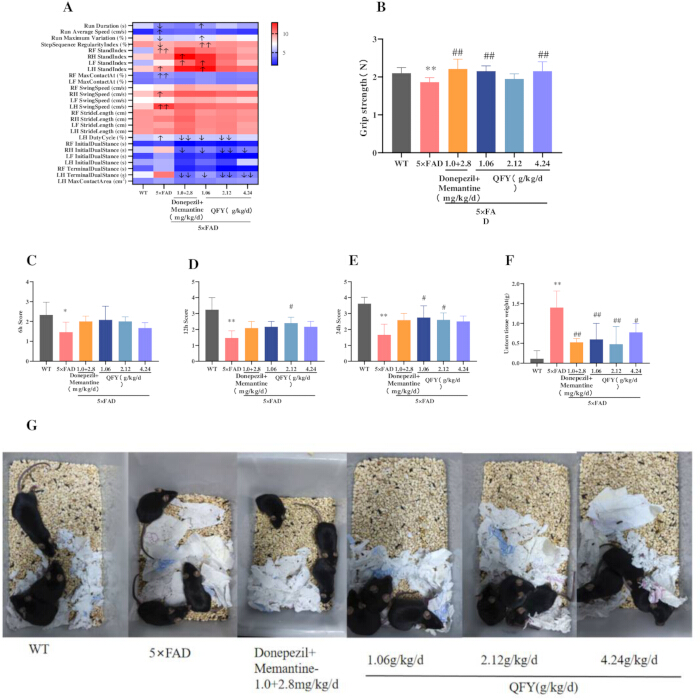
Figure 3: Effects of QFY administration on aging-associated functional measures in 5xFAD mice. (A) Gait heat map. The color scale is based on row‑wise Z‑score normalization, where red indicates values above the group mean, blue indicates values below the group mean, and white represents the mean level. (B) Grip strength test. (C–G) Colony nesting test: (C) Nesting score 6 h, (D) Nesting score at 12 h. (E) Nesting score at 24 h. (F) Untorn tissue weight. (G) Representative images of nests at 24 h. Mean ± SD, n = 3 per group, with exact n indicated in each bar. * = p < 0.05, ** = p < 0.01, vs WT, Student`s t-test; # = p < 0.05, ## = p < 0.01, vs 5x FAD, One-way ANOVA followed by Dunnett's multiple comparisons test. Please click here to view a larger version of this figure.
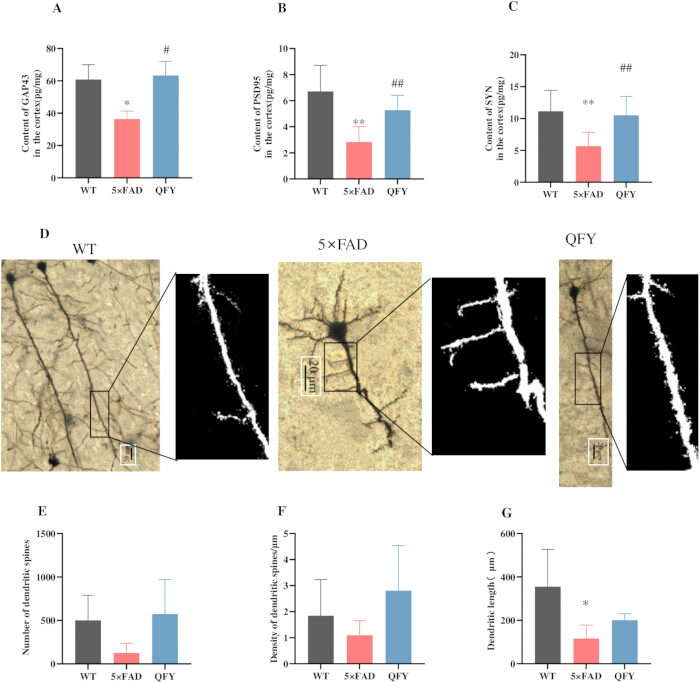
Figure 4: QFY attenuates synaptic structural alterations in the cerebral cortex of 5xFAD mice. (A) Content of GAP-43 in the cortex. (B) Content of PSD-95 in the cortex. (C) Content of SYN in the cortex. (D) Golgi-Cox staining. (E) Number of dendritic spines. (F) Density of dendritic spines. (G) Dendritic length. Mean ± SD, n = 3–14 per group, with exact n indicated in each bar. * = p < 0.05, ** = p < 0.01, vs WT, Student`s t-test; # = p < 0.05, ## = p < 0.01, vs 5xFAD, Student`s t-test. Please click here to view a larger version of this figure.
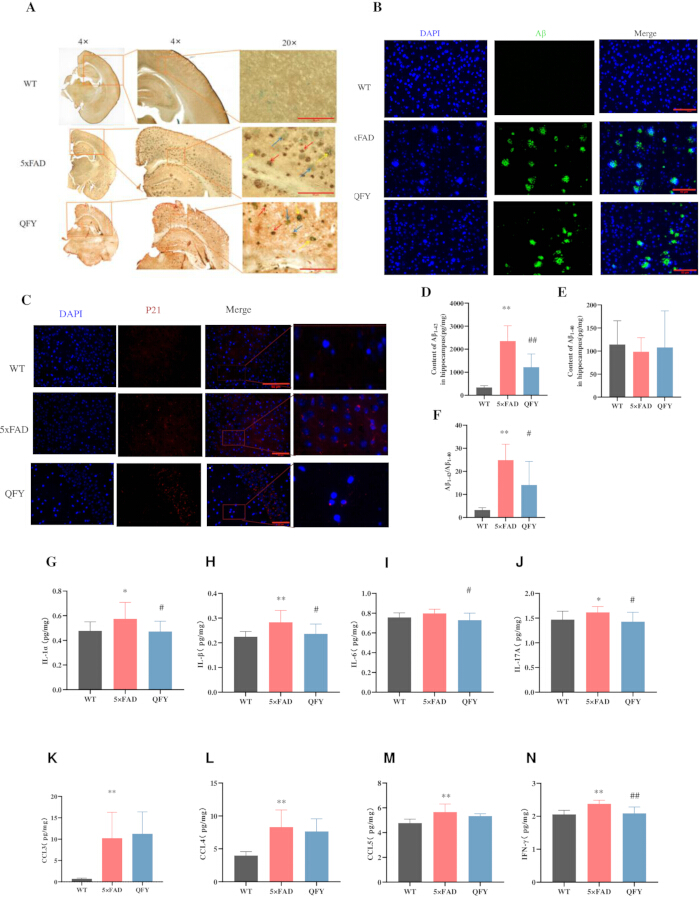
Figure 5: QFY reduced Aβ deposition and cell senescence in the brains of 5xFAD mice. (A) Combined SA-β-Gal staining and Aβ immunohistochemistry, SA-β-Gal (green, blue arrow), Aβ (brown, red arrow), SA-β-Gal + Aβ (yellow arrow), n = 3, Scale bar = 10 µm, 20x objective. (B) Immunofluorescence images showing Aβ in the cerebral cortex after treatment of QFY, n = 3, Scale bar = 50 µm, 40x objective. (C) Immunofluorescence images showing p21in the cerebral cortex after treatment of QFY. n = 1, Scale bar = 50 µm, 40x objective. (D–F) ELISA. (D) Content of Aβ1-42 in the hippocampus. (E) Content of Aβ1-40 in the hippocampus. (F) Aβ1-42/ Aβ1-40. (G–N) Luminex cytokine analysis. (G) Content of IL-1α in the cortex. (H) Content of IL-1β in the cortex. (I) Content of IL-6 in the cortex. (J) Content of IL-17A in the cortex. (K) Content of CCL3 in the cortex. (L) Content of CCL4 in the cortex. (M) Content of CCL5 in the cortex. (N) Content of IFN-γ in the cortex. Mean ± SD, n = 8–14 per group, with exact n indicated in each bar. * = p < 0.05, ** = p < 0.01, vs WT, Student’s t-test; # = p < 0.05 ## = p < 0.01, vs 5xFAD, Student’s t-test. Please click here to view a larger version of this figure.
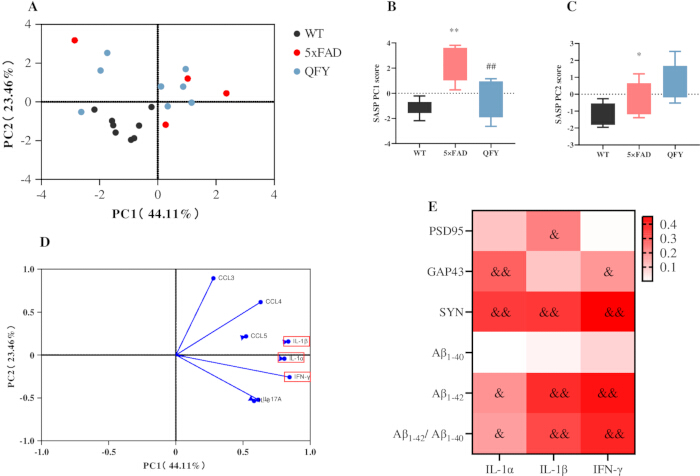
Figure 6: Principal component and correlation analyses of SASP factors, synaptic proteins, and Aβ levels in 5xFAD mice following QFY treatment. (A–D) Principal component analysis (PCA) of SASP factors. (A) PCA score plot. (B) PC1 scores. (C) PC2 scores. (D) PCA loading plot. (E) Heatmap generated from the correlation analysis between the SASP and PSD-95, GAP-43, SYN, Aβ1-40, Aβ1-42, and the ratio of Aβ1-42/Aβ1-40. Colors closer to red indicate higher R-values, while colors closer to white indicate lower R-values. Mean ± SD; n = 8 per group. * = p < 0.05, ** = p < 0.01,vs WT; ## = p < 0.01, vs 5xFAD, & = p < 0.05, && = p < 0.01, indicates a significant correlation. Pearson correlation analysis was used to assess associations between variables. Please click here to view a larger version of this figure.
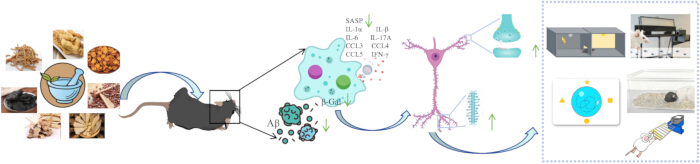
Figure 7: Proposed model of the effects of QFY on age-related cognitive decline and cellular senescence-associated phenotypes in 5xFAD mice. Please click here to view a larger version of this figure.
Discussione
La plasticità sinaptica neurale svolge un ruolo chiave nella funzione cognitiva. Nei cervelli dei pazienti con AD, i depositi di Aβ si diffondono in diverse regioni, causando direttamente danni strutturali alle sinapsi, perdita di sinapsi eccitatorie e declino cognitivo28. GAP-43 (una proteina della membrana presinaptica)29, PSD-95 (una proteina di ancoraggio localizzata nella membrana postsinaptica)30 e SYN (una fosfoproteina associata alle vescicole sinaptiche)31 svolgono un ruolo importante nella plasticità strutturale sinaptica e nella patogenesi dell'AD32. Lo studio attuale ha dimostrato che il trattamento con QFY migliora l'apprendimento e la memoria, riduce il carico di placche di Aβ e ripristina la struttura sinaptica aumentando il numero di spine dendritiche e i livelli proteici di GAP-43, PSD-95 e SYN nei cervelli di topi 5xFAD.
L'invecchiamento è un fattore di rischio cruciale nello sviluppo dell'AD e favorisce la produzione di Aβ. I segni distintivi dell'invecchiamento includono la riduzione della forza muscolare, l'instabilità della deambulazione e il deterioramento delle attività di base della vita quotidiana33,34. La senescenza cellulare, caratterizzata dalla SA-β-Gal, è stata associata all'invecchiamento e all'insorgenza di malattie legate all'età, come l'AD11,35. L'eliminazione selettiva delle cellule senescenti prolunga la durata della vita in buona salute e ritarda le malattie legate all'età36. La rimozione delle cellule senescenti mediante approcci genetici o farmacologici ha attenuato il deposito di Aβ e migliorato le funzioni di apprendimento e memoria nei topi modello di AD37. Una terapia combinata con Dasatinib e Quercetina (D+Q) riduce la senescenza delle cellule progenitrici oligodendrocitiche, allevia l'infiammazione neurologica, diminuisce le placche di Aβ e l'attività della SA-β-Gal, prevenendo l'accumulo di Aβ e il deterioramento cognitivo nei topi APP/PS137. Il trattamento con Memantina ha ridotto significativamente l'attività della SA-β-Gal nel cervello dei topi SAMP8 e ha migliorato l'apprendimento e la memoria spaziale; lo stesso effetto è stato osservato con la combinazione di memantina e donepezil38. Lo studio attuale ha riscontrato che il trattamento con QFY migliora la deambulazione, rafforza i muscoli degli arti anteriori e potenzia le capacità nelle attività di base della vita quotidiana, in particolare alleviando la senescenza cellulare, come indicato dalla colorazione per SA-β-Gal nel cervello dei topi 5xFAD.
Sia i pazienti con malattia di Alzheimer (AD) che i modelli animali mostrano astrociti, microglia, cellule endoteliali e neuroni senescenti39,40. La secrezione del SASP, che comprende chemochine e citochine infiammatorie, è una caratteristica distintiva della senescenza cellulare; una secrezione eccessiva di SASP può portare a infiammazione cronica, con conseguente danno tissutale e ulteriore senescenza cellulare41. La secrezione continua di SASP, tra cui IL-1α, IL-1β, IL-6, IL-8, IFN-γ, CCL2, CCL3, CCL4, CCL5, CXCL1, ecc., promuove l'infiammazione cronica, la senescenza paracrina di cellule normali, alterazioni del metabolismo cellulare e della regolazione epigenetica, e la produzione continua di Aβ42,43,44,45. I livelli di IL-1α, IL-1β, IL-6, IL-17A e IFN-γ sono significativamente aumentati nei cervelli di pazienti con AD e nei modelli di AD46. Studi hanno dimostrato che D+Q può inibire la secrezione di fattori infiammatori, tra cui IL-1α e IFN-γ, e ridurre le placche di Aβ e l'attività di SA-β-Gal nei topi APP/PS137. Lo studio ha rilevato che QFY riduce l'espressione di diversi fattori SASP, tra cui IL-1α, IL-1β, IL-6, IL-17A e IFN-γ, attenuando così il fenotipo infiammatorio senescente.
p21 appartiene alla famiglia CIP/KIP di inibitori delle chinasi dipendenti dai cicline e agisce come un freno prossimale sui complessi ciclina-CDK2/4, imponendo così l'arresto in G1/G2 in risposta a stress cellulare, danni al DNA e invecchiamento. Un aumento sostenuto dell'abbondanza di p21 è generalmente interpretato come l'ingresso in un programma senescente stabile47,48. Dati recenti mostrano che i topi 5xFAD presentano un carico cerebrale di p21 insolitamente elevato, che viene notevolmente ridotto dopo il trattamento congiunto con D+Q49. In accordo con questi risultati, lo studio attuale ha evidenziato che l'amministrazione di QFY riduce significativamente le placche corticali di Aβ e attenua l'espressione di p21 in questi animali.
Nel complesso, questi risultati suggeriscono un'associazione tra il trattamento con QFY e il miglioramento del declino cognitivo legato all'età e dei fenotipi di senescenza cellulare nei topi 5xFAD, insieme a un danno strutturale sinaptico attenuato (Figura 7).
È necessario riconoscere diversi limiti di questo studio. In primo luogo, sono stati utilizzati solo topi 5xFAD maschi, e non è ancora stato determinato se gli effetti osservati dipendano dal sesso. In secondo luogo, sebbene i dati attuali dimostrino forti associazioni tra fenotipi legati all'invecchiamento attenuati e miglioramento cognitivo, non abbiamo condotto esperimenti diretti di intervento meccanicistico per stabilire una relazione causale. In terzo luogo, la rilevanza traslazionale dei risultati all'AD umano è limitata dalle differenze tra le specie e dalla mancanza di dati clinici di farmacocinetica. Sono necessari studi futuri che includano animali femmine, interventi specifici sull'invecchiamento e prove cliniche ben progettate per estendere questi risultati.
Dichiarazioni
Gli autori dichiarano di non avere conflitti di interessi.
Ringraziamenti
Questo lavoro è stato sostenuto da finanziamenti della National Natural Science Foundation of China (82205078, 82374062), della Shandong Provincial Natural Science Foundation (ZR2026MS1293, ZR2021QH157), del Progetto di Scienza e Tecnologia della Medicina Tradizionale Cinese della Provincia di Shandong (M20251730), dei Progetti di Scienza e Tecnologia della Regione Autonoma del Tibet, Cina (XZ202601ZY0167), e del Programma di Guida all'Innovazione Tecnologica della Provincia di Shandong (Fondo per lo Sviluppo Scientifico e Tecnologico Locale guidato dal Governo Centrale) (YDZX2023137), con il titolo del progetto 'Sviluppo e Ricerca sull'Industrializzazione delle Capsule Rivestite Enteriche Tongli come Medicina Tradizionale Cinese di Classe 1'.
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| Farmaci | |||
| Donepezil | Shanghai Yuanye Technology | lot.J15HB188725 | |
| Memantina | Shanghai Yuanye Technology | lot. J21HB189391 | |
| Qi-fu-yin | Centro di Ricerca e Sviluppo Houpu, Lunan Pharmaceutical | lot. 2209001 | |
| Test comportamentali | |||
| CatWalk XT | Noldus | CatWalkXT 10.0 software | |
| Dinamometro per la forza della presa | Bileadbiosci | BLD-ZL-20 | |
| Labirinto acquatico di Morris | Shanghai Xinruan Information Technology Co., Ltd | 120 cm | |
| Scatola di trasferimento | Shanghai Xinruan Information Technology Co., Ltd | XR-XC404 | |
| Anticorpi | |||
| Anti-Aβ1-42 anticorpo | Abcam | Cat# ab201061 | |
| Anticorpo anti-p21/CIP1/CDKN1A | Novus Biologicals | Cat# NBP3-15661 | |
| Kit di saggio | |||
| Aβ1-40 kit ELISA | Thermo Fisher Scientific | Cat# KHB3482 | |
| Aβ1-42 kit ELISA | Thermo Fisher Scientific | Cat# KHB3442 | |
| Kit Bio-Plex Pro Cytokina Mouse 23-plex | R&D Sistemi | Cat# LXLBM23-1 | |
| kit ELISA per GAP-43 | Industria Jiangsu degli immunodosaggi enzimatici | Cat# MM-47506M1 | |
| kit per colorazione di Golgi-Cox | BeiJing Biolead Biology Sci & Tech Co | Cat# PK401 | |
| kit ELISA per PSD-95 | Industria Jiangsu per saggi immunoenzimatici | Cat# MM-45953M1 | |
| Senescenza βKit per la colorazione della galattosidasi | Beyotime | Cat# C0602 | |
| Kit ELISA per la sinaptofisina (SYN) | Industria Jiangsu degli immunodosaggi enzimatici | Cat# MM-46504M1 | |
| Prodotti chimici & Reagenti | |||
| Anti-IgG coniglio e topo (anticorpo secondario) | Starter | Cat# S0C1001 | |
| cromogeno DAB | Avviatore | Cat# S0C1001 | |
| Software | |||
| CatWalk XT | Noldus Information Technology | Versione 10.0 | |
| ImageJ | Istituti Nazionali di Sanità (NIH) | Versione 1.53 |
Riferimenti
- Joe E, Ringman JM. Cognitive symptoms of Alzheimer's disease: clinical management and prevention. BMJ. 2019;367:l6217.
- Scheff SW, et al. Synaptic alterations in CA1 in mild Alzheimer disease and mild cognitive impairment. Neurology. 2007;68(18):1501-8.
- Muralidar S, et al. Role of tau protein in Alzheimer's disease: the prime pathological player. Int J Biol Macromol. 2020;163:1599-617.
- Hardy JA, Higgins GA. Alzheimer's disease: the amyloid cascade hypothesis. Science. 1992;256(5054):184-5.
- Calsolaro V, Edison P. Neuroinflammation in Alzheimer's disease: current evidence and future directions. Alzheimers Dement. 2016;12(6):719-32.
- Campisi J. Senescent cells, tumor suppression, and organismal aging: good citizens, bad neighbors. Cell. 2005;120(4):513-22.
- Yao R. An in-silico assessment suggests the potential effects of goji (fruit of Lycium barbarum L.) against aging-related diseases. Food Med Homol. 2025;2(2):9420036.
- Campisi J, d'Adda di Fagagna F. Cellular senescence: when bad things happen to good cells. Nat Rev Mol Cell Biol. 2007;8(9):729-40.
- Salminen A, Kaarniranta K, Kauppinen A. ER stress activates immunosuppressive network: implications for aging and Alzheimer's disease. J Mol Med (Berl). 2020;98(5):633-50.
- Mirabella F, et al. Prenatal interleukin 6 elevation increases glutamatergic synapse density and disrupts hippocampal connectivity in offspring. Immunity. 2021;54(11):2611-31.e8.
- Baker DJ, Petersen RC. Cellular senescence in brain aging and neurodegenerative diseases: evidence and perspectives. J Clin Invest. 2018;128(4):1208-16.
- Lucas V, Cavadas C, Aveleira CA, Hook V. Cellular senescence: from mechanisms to current biomarkers and senotherapies. Pharmacol Rev. 2023;75(4):675-713.
- Bloss EB, et al. Evidence for reduced experience-dependent dendritic spine plasticity in the aging prefrontal cortex. J Neurosci. 2011;31(21):7831-9.
- Ye XS, et al. The food and medicine homologous Chinese medicine from Leguminosae species: a comprehensive review on bioactive constituents with neuroprotective effects on nervous system. Food Med Homol. 2025;2(2):9420033.
- Dickstein DL, Weaver CM, Luebke JI, Hof PR. Dendritic spine changes associated with normal aging. Neuroscience. 2013;251:21-32.
- Wang SY, et al. Qifu-Yin attenuates AGEs-induced Alzheimer-like pathophysiological changes through the RAGE/NF-kappaB pathway. Chin J Nat Med. 2014;12(12):920-8.
- Yang X, et al. Qi-fu-yin attenuated cognitive disorders in 5xFAD mice of Alzheimer's disease animal model by regulating immunity. Front Neurol. 2023;14:1183764.
- Xiao QY, et al. Effects of Qi-Fu-Yin on aging of APP/PS1 transgenic mice by regulating the intestinal microbiome. Front Cell Infect Microbiol. 2023;12:1048513.
- Chen K, et al. Safety and toxicity of Qi-Fu Yin, a classical traditional Chinese medicine prescription: a nonclinical research. J Appl Toxicol. 2025;45(9):1811-38.
- Wang L, Qiao P, Yue L, Sun R. Is Qi Fu Yin effective in clinical treatment of dementia? A meta-analysis of 697 patients. Medicine (Baltimore). 2021;100(5):e24526.
- Li H, et al. Identification of chemical components of Qi-Fu-Yin and its prototype components and metabolites in rat plasma and cerebrospinal fluid via UPLC-Q-TOF-MS. Evid Based Complement Alternat Med. 2021;2021:1995766.
- Lei X, et al. Integrating network pharmacology and component analysis to study the potential mechanisms of Qi-Fu-Yin Decoction in treating Alzheimer's disease. Drug Des Devel Ther. 2023;17:2841-58. doi:10.2147/DDDT.S402624.
- Takeshita H, et al. Modified forelimb grip strength test detects aging-associated physiological decline in skeletal muscle function in male mice. Sci Rep. 2017;7:42323.
- Caggiano V, et al. Midbrain circuits that set locomotor speed and gait selection. Nature. 2018;553(7689):455-60.
- Ehret B, et al. Population-level coding of avoidance learning in medial prefrontal cortex. Nat Neurosci. 2024;27(9):1805-15.
- Curdt N, et al. Search strategy analysis of Tg4-42 Alzheimer mice in the Morris water maze reveals early spatial navigation deficits. Sci Rep. 2022;12:5451.
- Deacon RMJ. Assessing nest building in mice. Nat Protoc. 2006;1(3):1117-9.
- Tu S, Okamoto SI, Lipton SA, Xu H. Oligomeric Aβ-induced synaptic dysfunction in Alzheimer's disease. Mol Neurodegener. 2014;9:48.
- Benowitz LI, Routtenberg A. GAP-43: an intrinsic determinant of neuronal development and plasticity. Trends Neurosci. 1997;20(2):84-91.
- Dore K, et al. PSD-95 protects synapses from β-amyloid. Cell Rep. 2021;35(9):109194.
- Kokotos AC, et al. Synaptophysin sustains presynaptic performance by preserving vesicular synaptobrevin-II levels. J Neurochem. 2019;151(1):28-37.
- Martin SB, et al. Synaptophysin and Synaptojanin-1 in Down syndrome are differentially affected by Alzheimer's disease. J Alzheimers Dis. 2014;42(3):767-75.
- Namioka N, et al. Oxidative stress and inflammation are associated with physical frailty in patients with Alzheimer's disease. Geriatr Gerontol Int. 2016;17(6):913-8.
- Kojima G, Liljas A, Iliffe S, Walters K. Prevalence of frailty in mild to moderate Alzheimer's disease: a systematic review and meta-analysis. Curr Alzheimer Res. 2017;14(12):1256-63.
- Dimri GP, et al. A biomarker that identifies senescent human cells in culture and in aging skin in vivo. Proc Natl Acad Sci U S A. 1995;92(20):9363-7.
- Baker DJ, et al. Naturally occurring p16Ink4a-positive cells shorten healthy lifespan. Nature. 2016;530(7589):184-9.
- Zhang P, et al. Senolytic therapy alleviates Abeta-associated oligodendrocyte progenitor cell senescence and cognitive deficits in an Alzheimer's disease model. Nat Neurosci. 2019;22(5):719-28.
- Ota H, Ogawa S, Ouchi Y, Akishita M. Protective effects of NMDA receptor antagonist, memantine, against senescence of PC12 cells: a possible role of nNOS and combined effects with donepezil. Exp Gerontol. 2015;72:109-16.
- Herdy JR, et al. Increased post-mitotic senescence in aged human neurons is a pathological feature of Alzheimer's disease. Cell Stem Cell. 2022;29(12):1637-52.e6.
- Hu Y, et al. Replicative senescence dictates the emergence of disease-associated microglia and contributes to Abeta pathology. Cell Rep. 2021;35(10):109228.
- Tchkonia T, et al. Cellular senescence and the senescent secretory phenotype: therapeutic opportunities. J Clin Invest. 2013;123(3):966-72.
- Guerrero A, De Strooper B, Arancibia-Cárcamo IL. Cellular senescence at the crossroads of inflammation and Alzheimer's disease. Trends Neurosci. 2021;44(9):714-27.
- Acosta JC, et al. A complex secretory program orchestrated by the inflammasome controls paracrine senescence. Nat Cell Biol. 2013;15(8):978-90.
- Wang B, Han J, Elisseeff JH, Demaria M. The senescence-associated secretory phenotype and its physiological and pathological implications. Nat Rev Mol Cell Biol. 2024;25(12):958-78.
- Gaikwad S, Senapati S, Haque MA, Kayed R. Senescence, brain inflammation, and oligomeric tau drive cognitive decline in Alzheimer's disease: evidence from clinical and preclinical studies. Alzheimers Dement. 2024;20(1):709-27.
- Si Z, Sun L, Wang X. Evidence and perspectives of cell senescence in neurodegenerative diseases. Biomed Pharmacother. 2021;137:111327.
- Chen X, et al. Senescence-like changes induced by expression of p21Waf1/Cip1 in NIH3T3 cell line. Cell Res. 2002;12(3-4):229-33.
- Engeland K. Cell cycle regulation: p53-p21-RB signaling. Cell Death Differ. 2022;29(5):946-60.
- Choi I, et al. Autophagy enables microglia to engage amyloid plaques and prevents microglial senescence. Nat Cell Biol. 2023;25(7):963-74.