Questo protocollo descrive la registrazione elettrofisiologica extracellulare di segnali pacemaker del nuoto evocati visivamente dal ropalio isolato della medusa cubozoa Tripedalia cystophora, fornendo un'indicazione quantitativa del comportamento di evitamento di ostacoli per un'analisi precisa dell'elaborazione delle informazioni visive e dell'integrazione sensorimotoria.
Articolo metodologico
Registrazione elettrofisiologica extracellulare di segnali pacemaker per il nuoto evocati visivamente dal rofalio isolato di Tripedalia cystophora
In questo articolo
Sommario
Abstract
La medusa cubozoa Tripedalia cystophora combina occhi con lente formatori di immagini e comportamenti visivamente guidati ben caratterizzati con un sistema nervoso ropardiale gestibile composto di circa 1000 neuroni, rendendola un modello emergente per lo studio a livello di sistema dell'elaborazione delle informazioni visive e dell'integrazione sensorimotoria. I neuroni del pacemaker natatorio generano comandi motori che controllano direttamente le contrazioni della campana, e questi segnali possono essere registrati extracellularmente dal nervo del peduncolo epidermico di un rardio isolato, fornendo una misura quantitativa indiretta dell'output motorio guidato dalla vista. L'intensità della risposta del pacemaker, quantificata come attività neurale standardizzata derivata dal numero di segnali del pacemaker e dalla frequenza istantanea, aumenta con il contrasto dello stimolo al di sopra della soglia di transizione decisionale (DTT), consentendo una valutazione graduale dell'integrazione sensorimotoria guidata dalla vista. In questo protocollo, descriviamo la fabbricazione di elettrodi a suggizione extracellulari, l'isolamento del rardio, la configurazione della camera di registrazione, la presentazione dello stimolo visivo all'occhio con lente inferiore, la verifica a livello hardware dei tempi dello stimolo, il posizionamento dell'elettrodo sul nervo del peduncolo epidermico e l'acquisizione sincronizzata di dati elettrofisiologici e di stimolazione mediante apparecchiature di laboratorio standard.
Introduzione
Comprendere come i sistemi nervosi elaborino le informazioni sensoriali e le traducano in comportamenti adattativi rappresenta una sfida centrale nelle neuroscienze. I progressi sono stati notevoli in organismi modello complessi e di grandi dimensioni, come Drosophila melanogaster, il cui cervello composto da circa 200.000 neuroni ha permesso un'analisi dettagliata dell'organizzazione dei circuiti neurali1, tra gli altri modelli geneticamente accessibili dotati di strumenti sofisticati per l'imaging e la mappatura dei circuiti. Tuttavia, proprio la complessità di questi sistemi rende difficile ottenere una comprensione completa a livello di sistema delle relazioni tra input sensoriale, elaborazione neurale e output comportamentale. All'estremità opposta dello spettro della complessità, sistemi piccoli e completamente mappati, come quello di Caenorhabditis elegans, costituito da 302 neuroni2, tra gli altri modelli con numero minimo di neuroni, offrono dimensioni gestibili ma mancano di occhi in grado di formare immagini e dei comportamenti guidati dalla visione che ne derivano.
Tripedalia cystophora, la medusa cubozoa dei Caraibi (Figura 1A), si sta affermando come un sistema modello per l'elaborazione visiva a livello di sistema e per l'integrazione sensorimotoria, occupando una posizione distinta tra questi due estremi3. Il protocollo qui descritto (Figura 1) è stato progettato per rendere accessibile al più ampio ambito della comunità delle neuroscienze l'intero potenziale sperimentale di questo animale.
T. cystophora possiede un sistema visivo di notevole sofisticazione per un animale della sua complessità neurale. Ciascuna delle quattro strutture sensoriali chiamate ropalî porta sei occhi, inclusi due occhi con lente capaci di formare immagini: l'occhio superiore con lente (ULE) e l'occhio inferiore con lente (LLE)4 (Figura 1B). Questi non sono semplici organi fotorecettivi: sono dotati di una lente con indice di rifrazione graduato di tipo Matthiessen, una configurazione ottica presente anche negli occhi dei vertebrati, e di una retina evaginata in cui circa 600 fotorecettori nell'LLE e 400 nell'ULE si collegano direttamente a neuroni di secondo ordine5,6,7. La composizione molecolare del macchinario fotorecettivo, inclusi gli opsine cnidops omologhi alle c-opsine dei vertebrati e i componenti associati della fototrasduzione8,9,10, suggerisce fortemente che si tratti di fotorecettori iperpolarizzanti, collocando il sistema visivo di T. cystophora nella stessa ampia categoria funzionale dell'occhio dei vertebrati, nonostante la sua origine evolutiva indipendente.
In modo critico, questi investimenti ottici sono accompagnati da comportamenti elaborati, caratterizzabili sperimentalmente e guidati dalla vista. T. cystophora si orienta nell'ambiente otticamente complesso delle mangrovie utilizzando la navigazione a lunga distanza e il rilevamento dei raggi di luce, meccanismi che le permettono di mantenere la posizione all'interno dell'habitat11,12, e comportamenti di evitamento di ostacoli per aggirare le radici aeree sommerse12,13,14. Il quadro neuroetologico alla base di questo lavoro afferma che il comportamento è l'unico indicatore valido dell'elaborazione sensoriale negli animali non dotati di linguaggio. Poiché non possiamo chiedere agli animali cosa percepiscono, il disegno sperimentale deve essere adattato a stimoli che l'animale è in grado di rilevare e comprendere, e a comportamenti che l'animale è effettivamente in grado di eseguire. Ciò implica che le domande sperimentali devono essere formulate secondo i termini dell'animale, e non dell'osservatore. Il comportamento di evitamento degli ostacoli in T. cystophora esemplifica questo principio. L'epidermide della medusa è spessa appena uno strato cellulare, rendendo potenzialmente fatale una collisione con una radice sommersa a causa dei danni al suo corpo fragile. Poiché l'integrazione inter-rhopalica avviene solo a valle attraverso il nervo anulare15, nessun singolo sistema nervoso rhopaliale (RNS) riceve un input binoculare sovrapposto necessario per calcolare la profondità sulla base della disparità stereoscopica. L'animale sfrutta invece una proprietà fondamentale dell'ottica subacquea: il contrasto tra un oggetto e l'acqua circostante si attenua rapidamente all'aumentare della distanza. Un ostacolo ad alto contrasto è quindi un ostacolo vicino, che rappresenta una minaccia immediata, mentre un ostacolo a basso contrasto è distante e non ancora pericoloso. L'animale utilizza il contrasto come indicatore indiretto della distanza16. Negli animali liberi di comportarsi spontaneamente, il comportamento di evitamento degli ostacoli (OAB) si basa su una decisione di tipo sì/no; un evento viene innescato quando l'animale rileva un ostacolo subacqueo il cui contrasto supera la soglia di transizione decisionale (DTT), ovvero la soglia al di sopra della quale l'ostacolo è sufficientemente vicino da costituire una minaccia, e viene avviata la risposta "sì": da 3 a 5 contrazioni rapide della campana, una virata di 120–180° e una nuotata rapida allontanandosi dall'ostacolo14 (Figura 1C). La risposta graduale del pacemaker al di sopra della DTT riflette l'urgenza graduale rappresentata dalla minaccia16. L'OAB fornisce quindi un saggio comportamentale altamente accessibile per lo studio dell'integrazione sensorimotoria: un singolo parametro visivo ben definito (il contrasto) controlla un output motorio stereotipato e quantificabile, rendendolo un sistema ideale per indagare le basi neurali del processo decisionale guidato dalla vista.
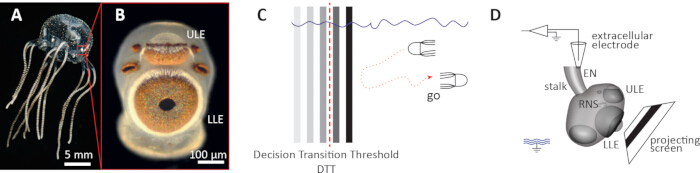
Figura 1: Panoramica del preparato isolato del ròpalio di Tripedalia cystophora per la registrazione elettrofisiologica extracellulare. (A) Medusa adulta di T. cystophora. Barra della scala: 5 mm. Il riquadro rosso indica la posizione di un ròpalio sul margine della campana. (B) Ingrandimento di un ròpalio isolato. L'occhio con lente superiore (ULE) e l'occhio con lente inferiore (LLE) sono occhi formatori di immagini. Barra della scala: 100 µm. Immagine di Dan-Eric Nilsson, riprodotta con autorizzazione. (C) Illustrazione schematica del comportamento di evitamento degli ostacoli (OAB). Al di sotto della soglia di transizione decisionale (DTT, linea rossa tratteggiata), l'animale continua a nuotare verso l'ostacolo (no go). Al di sopra della DTT, viene avviato il comportamento di evitamento dell'ostacolo (go). (D) Schema del preparato per l'elettrofisiologia del ròpalio isolato. Il ròpalio è posizionato in modo da guardare verso lo schermo di proiezione inclinato. L'elettrodo extracellulare registra i segnali del pacemaker natatorio dal nervo del peduncolo epidermico (EN). RNS: sistema nervoso del ròpalio; ULE: occhio con lente superiore; LLE: occhio con lente inferiore; EN: nervo del peduncolo epidermico. Il simbolo di massa indica l'elettrodo di riferimento nel bagno. Cliccare qui per visualizzare una versione ingrandita di questa figura.
Il substrato neurale che media questa elaborazione visiva è il sistema nervoso romboide (RNS), costituito da circa 1000 neuroni per ciascun romboide17. Nonostante questo numero limitato di neuroni, l'RNS presenta un'architettura sofisticata. Evidenze di immunohistochimica indicano che esso è organizzato in gruppi distinti di neuroni che esprimono profili specifici di neuropeptidi18, coerentemente con un'architettura di elaborazione compartimentalizzata. Si ritiene che l'informazione visiva venga elaborata attraverso gruppi oscillatori secondari (subOC), ognuno associato a un occhio specifico sul romboide, i quali convergono su un gruppo oscillatore terminale (trmOC) — ipotizzato corrispondere alla popolazione di cellule pacemaker che genera il segnale di uscita motoria che controlla le contrazioni della campana3. Proponiamo che il trmOC integri le informazioni sensoriali elaborate provenienti dai subOC e generi il segnale del pacemaker natatorio che guida l'uscita motoria comportamentale, e che la sincronizzazione tra i subOC e il trmOC costituisca la base della trasformazione dell'input visivo in un'uscita di controllo comportamentale3 (Figura 2).
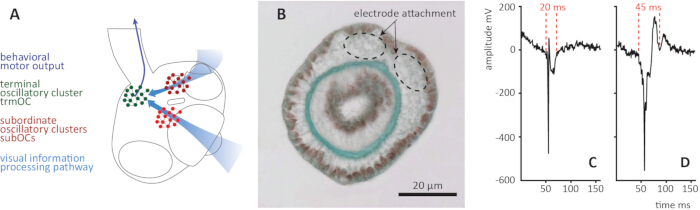
Figura 2: Origine del circuito neurale e identificazione elettrofisiologica del segnale del pacemaker natatorio in Tripedalia cystophora. (A) Schema del sistema nervoso ropaliale. L'informazione visiva viene elaborata attraverso cluster oscillatori subordinati (subOC, in rosso) associati ai singoli occhi, e converge sul cluster oscillatore terminale (trmOC, in verde). Si ipotizza che il trmOC integri le informazioni sensoriali elaborate provenienti dai subOC e generi il segnale del pacemaker natatorio che guida l'output motorio comportamentale. Le frecce in azzurro indicano il percorso di elaborazione dell'informazione visiva; la freccia in blu scuro indica l'output motorio comportamentale. (B) Micrografia elettronica a trasmissione (TEM) della superficie del peduncolo epidermico sezionato. I cerchi tratteggiati indicano i due punti di attacco del nervo biforcuto del peduncolo epidermico sulla superficie adorale del peduncolo, corrispondenti ai siti di posizionamento degli elettrodi di registrazione. (C) Segnale simile a un potenziale d'azione. L'onda è caratterizzata da una deflessione rapida e stretta con una durata di circa 20 ms (indicata da linee tratteggiate rosse). (D) Segnale del pacemaker natatorio proveniente dal trmOC. L'onda è più ampia, con una durata caratteristica di circa 45 ms (indicata da linee tratteggiate rosse), e presenta una morfologia composta che riflette l'attività sommata di numerosi neuroni del trmOC. Sebbene le ampiezze del segnale siano comparabili tra i due tipi di segnale, la durata e la morfologia dell'onda costituiscono i criteri affidabili per la discriminazione nell'analisi successiva. Tutti i valori elettrofisiologici sono post-amplificazione (×1000). Modificato con autorizzazione da Bielecki et al.24. Cliccare qui per visualizzare una versione ingrandita di questa figura.
Questa architettura crea un'eccezionale opportunità sperimentale. Il segnale del pacemaker natatorio generato dal trmOC induce contrazioni della campana in maniera rigorosamente uno-a-uno19 e può essere registrato extracellularmente dal nervo del peduncolo epidermico di un rofalio isolato13,20. Ciò significa che i comandi motori evocati visivamente, e per estensione le risposte comportamentali guidate dalla vista, possono essere monitorati mediante metodi elettrofisiologici in un preparato da cui gli effettori motori stessi sono stati completamente rimossi14. Il rofalio isolato occupa quindi una posizione intermedia dal punto di vista metodologico, difficile da ottenere in altri sistemi: offre il controllo sperimentale di un preparato ridotto, inclusa la definizione precisa di stimoli visivi spaziotemporali, mantenendo al contempo un'uscita quantitativa diretta dell'attività neurale rilevante per il comportamento. In condizioni indisturbate, i segnali del pacemaker si verificano a una frequenza di 0,5–1 Hz; le risposte di evitamento di ostacoli evocate visivamente sono caratterizzate da aumenti fino a 2–3 Hz, fornendo una finestra di segnale chiara per l'analisi14 (Figura 1D).
Questa combinazione di proprietà rende il preparato isolato di rizalia di T. cystophora particolarmente adatto per lo studio a livello di sistema dell’elaborazione visiva e dell’integrazione sensorimotoria. Questo preparato è indicato per ricercatori che intendono indagare l’elaborazione visiva, l’integrazione sensorimotoria o la dinamica delle reti oscillatorie in un sistema nervoso accessibile dotato di occhi formatori di immagini e di comportamenti guidati dalla vista ben caratterizzati4. Richiede attrezzature standard per elettrofisiologia, un proiettore commerciale modificato e un microscopio per dissezioni, ed è realizzabile in un laboratorio privo di infrastrutture specialistiche. Il paradigma di apprendimento associativo meccano-visivo — l’associazione di stimolazione visiva e meccanosensoriale simultanea — precedentemente descritto per questo preparato14 può essere implementato come estensione del protocollo di registrazione di base qui descritto.
Protocollo
Per questo studio non è stata richiesta l'approvazione etica sugli animali. I cnidari, inclusa Tripedalia cystophora, sono esclusi dall'ambito di applicazione della Direttiva 2010/63/UE sulla protezione degli animali utilizzati a fini scientifici, che si applica esclusivamente ai cefalopodi e ai vertebrati. Gli animali utilizzati in questo studio sono stati raccolti da corsi d'acqua nei mangrovieti presso La Parguera, Portorico, USA, una località che non è parte del Protocollo di Nagoya sull'accesso alle risorse genetiche e sulla condivisione dei benefici; pertanto, non è stato richiesto consenso informato preventivo né accordo sull'accesso e sulla condivisione dei benefici. Tripedalia cystophora non è inserita nell'elenco delle specie minacciate o protette secondo la CITES né in base a qualsivoglia normativa nazionale sulla conservazione.
1. Configurazione del palco e della catena del segnale
NOTA: Tutti i componenti hardware e le relative connessioni sono illustrati in Figura 3. Fare riferimento alla Figura 3 durante tutta questa sezione. Tutti i passaggi di questa sezione devono essere completati prima di manipolare l'animale. In questa fase, la camera di registrazione non è riempita con acqua di mare.
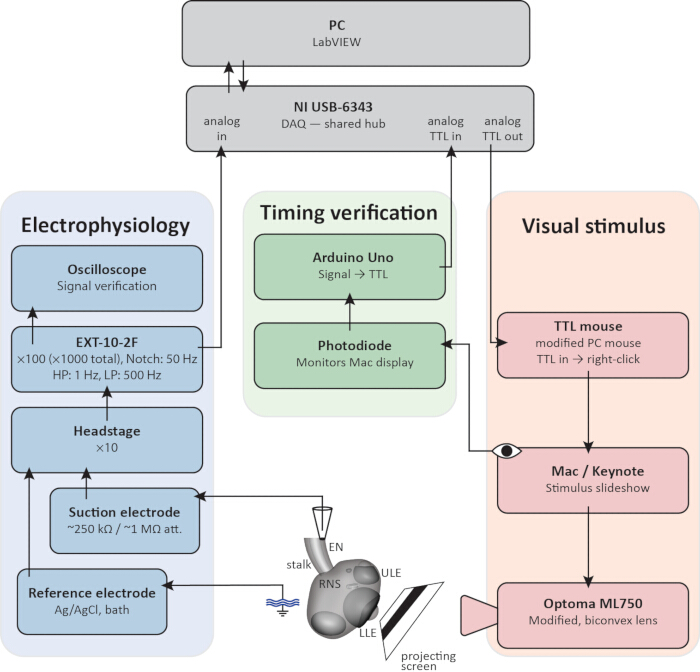
Figura 3: Schema delle connessioni per la preparazione di elettrofisiologia extracellulare del ropalio isolato. Il PC che esegue l'interfaccia virtuale (VI) e il dispositivo di acquisizione dati (DAQ, in alto, grigio) funge da centro di integrazione condiviso per tutte e tre le catene di segnale. Catena di elettrofisiologia (blu): i segnali del pacemaker natatorio vengono registrati dal nervo dello stelo epidermico (EN) tramite un elettrodo a sifone (~250 kΩ punta libera, ~1 MΩ applicato) e un elettrodo di riferimento a pellet Ag/AgCl applicato nel bagno, amplificati dallo stadio frontale EXT-10-2F (×10) e dall'amplificatore principale (×100, totale ×1000), con filtro passa-banda (HP: 1 Hz, LP: 500 Hz) e filtro notch 50/60 Hz, monitorati sull'oscilloscopio e acquisiti dal DAQ. Catena dello stimolo visivo (rosso): un impulso TTL dal DAQ fa avanzare la presentazione dello stimolo tramite un mouse PC modificato (TTL mouse), che comanda il proiettore DLP (modificato, lente biconvessa) a proiettare lo stimolo sulla parete inclinata dello schermo della camera di registrazione, davanti all'occhio con lente inferiore (LLE). Catena di verifica della temporizzazione (verde): un fotodiodo monitora il quadrato indicatore bianco e nero sullo schermo del computer che passa da bianco a nero all'inizio dello stimolo e ritorna al bianco alla sua fine; un Arduino Uno converte questo segnale in un impulso TTL registrato dal DAQ come finestra di stimolo verificata. RNS: sistema nervoso ropaliale; ULE: occhio con lente superiore; LLE: occhio con lente inferiore; EN: nervo dello stelo epidermico. Tutti i valori di ampiezza sono post-amplificazione (×1000). Cliccare qui per visualizzare una versione ingrandita di questa figura.
- Costruzione della camera di registrazione
- Progettare o stampare in 3D una camera di registrazione con dimensioni interne sufficienti ad accogliere il preparato, la punta della micropipetta di ritenzione e la punta dell'elettrodo di registrazione.
NOTA: Gli elementi funzionalmente critici della progettazione sono il bordo per il vetrino, che posiziona il ropalio al bordo del vetrino a 2 mm dallo schermo di proiezione, e le dimensioni dello schermo (16 mm × 12 mm, inclinato di 60°), che insieme determinano l'angolo sotteso dallo stimolo visivo all'occhio con lente inferiore. La camera descritta qui ha una base di 30 mm × 30 mm e uno spessore delle pareti di circa 5 mm. I disegni tecnici sono forniti in Figura 4. - Posizionare il vetrino Roth da 20 mm × 26 mm sui bordi per il vetrino della camera di registrazione. Il vetrino rimane in posizione grazie alla galleggiabilità negativa e non richiede fissazione adesiva.
- Montare la camera di registrazione sullo stativo del microscopio utilizzando i fori passanti M6. Si consiglia uno stativo traslazionale x-y-z, poiché facilita l'allineamento fine dell'immagine proiettata sulla parete dello schermo di proiezione della camera di registrazione.
- Collegare le porte di ingresso e uscita dei canali di flusso della camera di registrazione (Figura 4A) a un bagno termostatato con circolazione d'acqua a 28 °C.
NOTA: La temperatura della camera di registrazione deve essere mantenuta tra 28 e 30 °C per tutta la durata dell'esperimento.
- Progettare o stampare in 3D una camera di registrazione con dimensioni interne sufficienti ad accogliere il preparato, la punta della micropipetta di ritenzione e la punta dell'elettrodo di registrazione.
- Configurazione ottica (Figura 3, catena dello stimolo visivo)
ATTENZIONE: Non osservare direttamente l'uscita del proiettore, specialmente prima dell'inserimento dei filtri neutri (Sezione 4). La rimozione del sistema ottico fornito dal produttore elimina l'attenuazione intrinseca della luce e può causare lesioni agli occhi.- Rimuovere il sistema ottico fornito dal produttore dal proiettore.
- Montare una singola lente biconvessa (f = 30 mm) davanti all'apertura di uscita del proiettore per mettere a fuoco l'immagine proiettata sulla parete dello schermo di proiezione della camera di registrazione.
- Allineare il proiettore in modo che l'immagine proiettata sia a fuoco sulla parete dello schermo di proiezione della camera di registrazione e riempia completamente le dimensioni dello schermo (16 mm × 12 mm).
NOTA: I filtri neutri non vengono inseriti in questa fase. L'intensità appropriata del filtro viene determinata empiricamente durante la calibrazione biologica nella Sezione 4.
- Assemblaggio della catena del segnale (Figura 3, catene di elettrofisiologia e verifica temporale)
- Collegare il supporto dell'elettrodo al braccio dello stadio frontale fornito con l'amplificatore EXT-10-2F e fissare il braccio dello stadio frontale a un micromanipolatore MM33.
- Collegare lo stadio frontale all'amplificatore principale. Il guadagno dello stadio frontale è ×10. Impostare il guadagno dell'amplificatore principale su ×100, ottenendo un'amplificazione totale di ×1000.
- Collegare l'uscita dell'amplificatore a un canale di ingresso analogico di un convertitore analogico-digitale (DAQ).
- Collegare il DAQ al PC che esegue LabVIEW (versione 2018 o simile) tramite USB.
- Collegare l'uscita TTL di Arduino Uno a un canale di ingresso analogico dedicato del DAQ.
- Posizionare il fotodiodo sopra il quadrato indicatore bianco e nero sullo schermo del computer (passo 1.4.2). Collegare il terminale positivo del fotodiodo al pin di ingresso analogico A0 di Arduino Uno e il terminale negativo a massa. Lo sketch per Arduino che implementa la logica di monitoraggio del fotodiodo e la soglia dell'uscita TTL è fornito come materiale supplementare (File Supplementare 1).
- Progettazione della geometria dello stimolo (Figura 3, catena dello stimolo visivo)
- Progettare lo stimolo visivo nel software di presentazione come una barra verticale grigia in movimento su sfondo bianco, che imita un ostacolo costituito dalla radice aerea di una mangrovia. Impostare lo sfondo al bianco massimo.
NOTA: Il livello di grigio della barra rispetto allo sfondo bianco determina il contrasto dello stimolo ed è stabilito durante la caratterizzazione dell'irradianza nella Sezione 4. La barra deve sottendere un angolo visivo di 30° per l'occhio con lente inferiore (misurato al centro del campo visivo) e muoversi a 10° s-1 lungo tutta la larghezza del campo visivo, rimanendo sempre all'interno del campo visivo. L'angolo visivo di un ostacolo proiettato può essere determinato mediante:
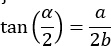
dove α è l'angolo visivo, a è la larghezza della caratteristica dell'immagine e b è la distanza dall'occhio con lente inferiore allo schermo. Il movimento della barra viene implementato come animazione continua di un singolo oggetto (ad esempio, l'effetto "Sposta" di Keynote) applicato all'oggetto barra all'interno di una singola diapositiva, piuttosto che come sequenza di diapositive distinte. Un file di stimolo rappresentativo che implementa questa animazione è fornito come materiale supplementare (File Supplementare 2). Poiché larghezza e velocità della barra sono specificate in angolo visivo e non in unità fisiche, entrambe devono essere convertite in millimetri e mm/s utilizzando l'equazione sopra riportata, in base alla distanza operativa specifica e alle dimensioni dello schermo della camera di registrazione, prima di essere inserite come dimensione dell'oggetto e durata dell'animazione nel software di presentazione. - Includere un piccolo quadrato indicatore bianco e nero in un angolo della diapositiva che passa dal bianco al nero in coincidenza con l'inizio del movimento della barra e ritorna al bianco alla fine dello stimolo. Monitorare questo quadrato sullo schermo del computer utilizzando il fotodiodo per la verifica temporale dello stimolo al passo 3.3.
NOTA: Il quadrato indicatore bianco e nero appare necessariamente all'interno dell'immagine proiettata sullo schermo della camera di registrazione, poiché deve far parte della diapositiva per apparire sullo schermo del computer durante la presentazione. Tuttavia, il quadrato è dimensionato in modo da coprire solo l'area ricettiva del fotodiodo sullo schermo del computer. Quando proiettato sullo schermo della camera, è sufficientemente piccolo da non essere risolvibile come caratteristica visiva distinta dall'occhio con lente inferiore, e il suo contributo alla luminanza complessiva dello schermo è trascurabile e non innesca risposte di accensione/spegnimento della luce4,13,20. - Far avanzare le diapositive del software di presentazione tramite un trigger automatico o manuale.
- Opzione A (automatica): Costruire un mouse a logica transistor-transistor (TTL) modificando un mouse PC standard in modo che un breve impulso TTL a 5 V ricevuto dall'uscita del DAQ sostituisca il segnale di clic destro. Collegare il mouse TTL al computer di presentazione tramite USB. Configurare il software di presentazione in modo che le diapositive avanzino con un input di clic destro.
- Opzione B (manuale): Attivare manualmente l'avanzamento della diapositiva all'inizio previsto dello stimolo. Poiché per l'analisi (passo 6.2.1) viene utilizzata la finestra temporale dello stimolo verificata da Arduino (Canale 3), e non il segnale di attivazione stesso, l'attivazione manuale non compromette l'accuratezza temporale, anche se richiede un tempismo preciso da parte dell'operatore durante l'acquisizione ed è meno comoda rispetto all'opzione automatica.
- Progettare lo stimolo visivo nel software di presentazione come una barra verticale grigia in movimento su sfondo bianco, che imita un ostacolo costituito dalla radice aerea di una mangrovia. Impostare lo sfondo al bianco massimo.
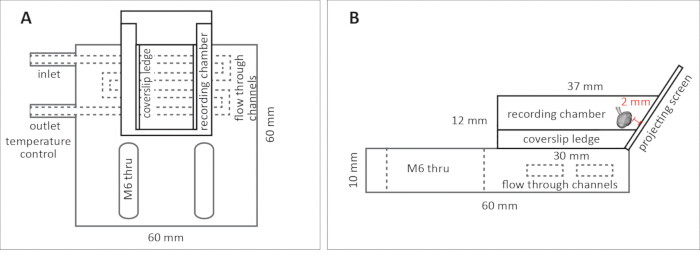
Figura 4: Camera di registrazione per il preparato isolato di ropalio. (A) Vista schematica dall'alto. La camera di registrazione è affiancata da canali a flusso continuo per il controllo termico a doppia guaina, con porte di ingresso e uscita (OD 4,2 mm, ID 2,5 mm) indicate. I supporti per coprioggetti si estendono longitudinalmente lungo entrambe le pareti interne della camera, sostenendo il coprioggetto dell'emocitometro a metà altezza della camera. I fori passanti M6 forniscono punti di fissaggio per ancorare la camera alla piastra del microscopio. Dimensioni complessive: 60 mm × 60 mm. (B) Vista laterale schematica con indicazione delle dimensioni. La camera di registrazione ha un'altezza interna di 12 mm e una larghezza superiore di 37 mm. Una delle pareti della camera costituisce lo schermo di proiezione, inclinato di 60° rispetto alla verticale, in modo da allinearsi con l'asse ottico dell'occhio con lente inferiore. Il supporto per coprioggetti posiziona il ropalio sul bordo del coprioggetti rivolto verso lo schermo di proiezione. La distanza operativa di 2 mm indicata si riferisce alla specifica configurazione di camera, schermo e proiettore descritta nel presente protocollo; i lettori che adattano questo progetto a dispositivi diversi dovrebbero ricalcolare una distanza operativa adeguata per la propria configurazione utilizzando l'equazione indicata al passo 1.4.1. I canali a flusso continuo per il controllo della temperatura sono ricavati nella base della camera di registrazione e non entrano in contatto con il preparato. Cliccare qui per visualizzare una versione ingrandita di questa figura.
2. Fabbricazione dell'elettrodo
NOTA: Gli elettrodi di aspirazione extracellulari sono costituiti da tubi capillari di vetro con punte coniche tirate per creare un'apertura adatta all'adesione per aspirazione e alla registrazione dei potenziali elettrici. Il capillare di vetro funge da isolante elettrico, garantendo che vengano registrati solo i potenziali presenti alla punta. Un filo di argento inserito nel capillare si collega all'amplificatore. Questa configurazione consente registrazioni multi-unità, catturando i potenziali elettrici da gruppi di cellule pacemaker presenti alla punta dell'elettrodo, misurati rispetto a un elettrodo di riferimento applicato nel bagno. Gli elettrodi devono essere fabbricati nel giorno dell'uso, prima della sessione di registrazione. Gli elettrodi conservati sono soggetti all'occlusione della punta, che impedisce l'aspirazione dell'acqua di mare nel capillare e rende l'elettrodo non funzionante. I capillari di vetro tirati presentano punte affilate e fragili. Vanno maneggiati con cura durante la fabbricazione per evitare lesioni da puntura e i capillari rotti, scartati o usati devono essere smaltiti in un apposito contenitore per materiali taglienti.
- Traslo del tubo capillare in vetro
- Caricare un tubo capillare in vetro borosilicato (1,16 mm di diametro interno × 2,00 mm di diametro esterno × 80 mm di lunghezza) nel trascinatore di micropipette.
- Eseguire il seguente programma di trascinamento: Linea 1 (×1): riscaldamento 535, trascinamento 0, velocità 12, tempo 200, pressione 600, rampa 540. Linee 2–4 (×3): riscaldamento 532, trascinamento 0, velocità 12, tempo 100.
NOTA: Questi parametri sono specifici dello strumento, del vetro e del filamento utilizzati e potrebbero richiedere aggiustamenti su un’unità diversa o dopo l’usura del filamento; considerarli un punto di partenza piuttosto che una specifica fissa. - Rimuovere con attenzione l’elettrodo trascinato e conservarlo con la punta rivolta verso l’alto per evitare danni meccanici.
- Lucidatura della punta dell’elettrodo
- Lucidare la punta per creare una superficie liscia e a tenuta sotto vuoto, perpendicolare all’asse del capillare. Fare riferimento alle due opzioni fornite di seguito; si raccomanda l’Opzione A (microforno).
- Opzione A: Lucidatura con microforno (consigliata)
- Montare l’elettrodo trascinato in un microforno.
- Sotto un ingrandimento di 600× (obiettivo 40×, oculare 15×), posizionare la punta vicino al filamento riscaldante.
- Riscaldare e lucidare la punta finché l’apertura non raggiunge una resistenza di circa 250 kΩ (corrispondente a ~1 MΩ quando a contatto con il tessuto). A un ingrandimento di 600×, ciò corrisponde a circa tre incrementi sulla scala del reticolo oculare.
NOTA: Per misurare la resistenza dell’elettrodo, collegare un multimetro tra il nucleo BNC (collegato al filo d’argento dell’elettrodo) e l’elettrodo di riferimento del bagno (palletta Ag/AgCl), una volta che l’elettrodo è stato riempito con acqua di mare. La misurazione della resistenza elettrica non è richiesta per le registrazioni evocate visivamente standard, in cui la qualità del segnale è il criterio principale di adeguatezza dell’elettrodo (passo 6.1.5); diventa necessaria quando questa preparazione viene utilizzata per il paradigma di apprendimento associativo che richiede l’erogazione calcolata di corrente, al di fuori dell’ambito di questo protocollo14. - Lasciare raffreddare completamente l’elettrodo prima di rimuoverlo dal microforno.
- Opzione B: Lucidatura manuale senza microforno
ATTENZIONE: Questo passaggio utilizza una fiamma libera (bruciatore a etanolo). Tenere lontani materiali infiammabili dalla fiamma e seguire le precauzioni standard per l’uso di fiamme libere in laboratorio.- Tenere brevemente la punta del capillare trascinato nella fiamma di un bruciatore a etanolo finché il vetro non si fonde e sigilla la punta formando una piccola goccia.
- Lasciare raffreddare completamente la punta sigillata.
- Posare una goccia di acqua deionizzata su un foglio di carta vetrata fine (grana 1200) e tenere il capillare perpendicolare alla superficie della carta.
- Levigare la punta con piccoli movimenti circolari, alternando tra direzioni orarie e antiorarie.
- Continuare con attenzione la levigatura finché una piccola quantità di acqua carica di detriti di vetro non viene aspirata nella punta per azione capillare.
- Collegare un tubo di gomma all’estremità opposta del capillare e connetterlo a una siringa.
- Applicare una leggera aspirazione per far passare acqua deionizzata attraverso la punta, rimuovendo i detriti di vetro.
- Se i detriti non vengono rimossi, levigare delicatamente per un breve periodo aggiuntivo e ripetere il passaggio di lavaggio.
NOTA: La portata target attraverso la punta finita è di circa 1 cm di colonna d’acqua ogni 10 s sotto una leggera aspirazione. Il successo nella fabbricazione della punta è definito dall’esito della registrazione (segnale a basso rumore e alta ampiezza), non dall’aspetto della punta. Circa il 40%–50% degli elettrodi fabbricati con entrambe le opzioni di lucidatura produce registrazioni di questo tipo, anche se il fattore limitante differisce tra le due. Per la lucidatura con microforno (Opzione A), il fallimento è più comunemente dovuto a una geometria irregolare del poro generata durante il passo di trascinamento (passo 2.1), che la successiva lucidatura termica non riesce a correggere completamente. Per la lucidatura manuale (Opzione B), il successo dipende principalmente dall’abilità dell’operatore; il fallimento più comune è un poro troppo grande causato da un’eccessiva levigatura. Un poro liscio, di dimensioni corrette e rotondo aumenta notevolmente la probabilità di ottenere una registrazione di alta qualità, ma non la garantisce — l’esito funzionale è l’unico criterio che alla fine conta.
- Assemblaggio dell’elettrodo
- Inserire il tubo capillare lucidato nel supporto dell’elettrodo, assicurandosi che il filo Ag/AgCl (argento/cloruro d’argento) sia esteso e privo di pieghe all’interno del capillare di vetro, e montarlo sul braccio della testa fornito con l’amplificatore EXT-10-2F. Fissare saldamente il braccio della testa nel micromanipolatore MM33.
NOTA: Se il filo d’argento non è clorurato, clorurarlo elettrochimicamente immergendo sia il filo d’argento dell’elettrodo che un elettrodo d’argento solido separato in una soluzione di KCl 2 M, collegati tramite cavi isolati a una sorgente di corrente continua da 12 V. Applicare la corrente a intervalli di circa 2 minuti, ispezionando visivamente il filo tra un ciclo e l’altro; il filo è sufficientemente clorurato quando si è scurito visibilmente, generalmente entro 5 minuti totali. Risciacquare accuratamente con acqua deionizzata dopo la clorurazione. Un filo non clorurato può introdurre un offset in corrente continua elevato e instabile.
ATTENZIONE: La clorurazione elettrolitica in soluzione di KCl genera gas cloro e idrogeno. Eseguire in un’area ben ventilata. Smaltire la soluzione usata per la clorurazione del KCl in conformità con le linee guida istituzionali per i rifiuti pericolosi. - Riempire l’elettrodo immediatamente prima della registrazione aspirando direttamente l’acqua di mare dalla camera di registrazione piena nel capillare, fino a quando la soluzione interna non raggiunge la metà del filo d’argento. Vedere il passo 3.1 per la procedura di riempimento.
NOTA: Le micropipette di ritenzione non richiedono le specifiche ottiche o elettriche delle elettrodi di registrazione. Gli elettrodi scartati durante la fabbricazione (passo 2.2) a causa di un diametro eccessivo della punta (resistenza inferiore a 250 kΩ) o di una geometria della punta decentrata sono adatti a questo scopo e devono essere conservati. Non è necessario fabbricare micropipette di ritenzione dedicate.
- Inserire il tubo capillare lucidato nel supporto dell’elettrodo, assicurandosi che il filo Ag/AgCl (argento/cloruro d’argento) sia esteso e privo di pieghe all’interno del capillare di vetro, e montarlo sul braccio della testa fornito con l’amplificatore EXT-10-2F. Fissare saldamente il braccio della testa nel micromanipolatore MM33.
3. Convalida del sistema
Questa sezione verifica che l'intero sistema di registrazione — elettrodo, catena del segnale, consegna dello stimolo e verifica della temporizzazione — funzioni correttamente prima dell'introduzione della preparazione sperimentale. L'intera catena del segnale è illustrata nella Figura 3. Verificare che tutte le connessioni siano correttamente effettuate prima di procedere.
- Riempimento della camera e preparazione dell'elettrodo
- Riempire la camera di registrazione con acqua di mare filtrata a 0,20 µm proveniente dal serbatoio di coltura. Questo garantisce una continuità nella composizione chimica tra l'ambiente di coltura e la camera di registrazione, evitando l'esposizione del robo alare a composti estranei o variazioni della chimica dell'acqua che potrebbero influenzare l'attività del pacemaker o la vitalità del preparato.
- Riempire l'elettrodo di registrazione a suggizione aspirando direttamente l'acqua di mare dalla camera di registrazione nel capillare, fino a quando la soluzione interna raggiunge la metà della lunghezza del filo d'argento. Riempire la micropipetta di mantenimento con quantità sufficiente di acqua di mare proveniente dalla camera di registrazione per consentire l'adesione per suggizione al cristallo.
- Posizionare un elettrodo a pellet sinterizzato Ag/AgCl (argento/cloruro di argento) nel bagno di registrazione e collegarlo all'ingresso di riferimento della testa amplificatrice.
- Messa a terra e verifica del rumore
ATTENZIONE: Questa configurazione prevede l'uso di apparecchiature elettriche in prossimità dell'acqua di mare. Mantenere tutti i collegamenti elettrici e le apparecchiature lontano dalla camera e da eventuali fuoriuscite, e seguire le pratiche di sicurezza elettrica istituzionali per lavori in ambienti umidi.- Mettere a terra tutti gli strumenti a un unico punto di massa comune (configurazione a stella) per evitare loop di massa.
- Monitorare il segnale sull'oscilloscopio. Verificare che la linea di base sia pulita e priva di rumore prima di procedere.
NOTA: Le gabbie di Faraday generalmente non vengono utilizzate nel nostro laboratorio per le registrazioni extracellulari, poiché una messa a terra rigorosa a stella si è dimostrata più efficace della schermatura fisica nell'eliminare il rumore elettrico (50/60 Hz).
- Catena di verifica della temporizzazione
- Eseguire lo strumento virtuale LabVIEW (VI) (fornito come materiale supplementare, Supplementary File 3). Eseguire il VI durante la validazione del sistema. Questo invia un impulso TTL al mouse TTL per innescare la generazione dello stimolo e genera un file di output in formato .txt che consente di verificare che tutti i canali — segnale elettrofisiologico, TTL di LabVIEW e TTL di Arduino — siano correttamente acquisiti prima dell'introduzione del preparato sperimentale.
NOTA: Il ritardo tra il comando TTL registrato da LabVIEW e l'inizio dello stimolo verificato da Arduino varia in modo imprevedibile tra le registrazioni e non viene risolto in questa fase; viene invece determinato e corretto singolarmente per ogni registrazione durante l'analisi (passaggio 7.2.1). - Verificare che l'impulso TTL proveniente dalla DAQ attivi correttamente la generazione dello stimolo e che lo stimolo visivo venga proiettato sullo schermo come previsto.
- Verificare che Arduino Uno rilevi il cambiamento nel quadrato indicatore bianco/nero sullo schermo del computer e invii un impulso TTL alla DAQ.
NOTA: Arduino Uno campiona la tensione del fotodiodo tramite analogRead(A0). Quando il valore campionato scende al di sotto di una soglia determinata empiricamente (61 nell'intervallo 0–1023 di analogRead in questa configurazione), il pin di uscita digitale 5 viene impostato a 5 V (TTL alto); quando il valore ritorna al di sopra della soglia, l'uscita torna a 0 V. Questa soglia dipende dalla configurazione e deve essere ricalibrata per ogni schermo e condizione di illuminazione ambientale. - Confermare che l'impulso TTL della finestra di stimolo proveniente da Arduino Uno venga registrato correttamente nel file .txt generato dal VI di LabVIEW, insieme al canale elettrofisiologico e al canale digitale TTL del VI.
NOTA: Il segnale del fotodiodo non viene registrato direttamente dalla DAQ, poiché l'uscita grezza del fotodiodo è troppo rumorosa per un rilevamento affidabile dello stimolo all'ingresso della DAQ. La conversione in un impulso TTL pulito da parte di Arduino Uno garantisce un segnale temporale affidabile e a basso rumore. Lo sketch di Arduino che implementa il monitoraggio del fotodiodo e l'uscita TTL è fornito come materiale supplementare (Supplementary File 1). La frequenza di aggiornamento di Arduino a 1 kHz corrisponde alla frequenza di campionamento della DAQ, assicurando che nessuna informazione temporale venga persa. - Dopo aver verificato tutti i canali, svuotare la camera di registrazione e rimuovere l'elettrodo dalla camera in preparazione della Sezione 4.
- Eseguire lo strumento virtuale LabVIEW (VI) (fornito come materiale supplementare, Supplementary File 3). Eseguire il VI durante la validazione del sistema. Questo invia un impulso TTL al mouse TTL per innescare la generazione dello stimolo e genera un file di output in formato .txt che consente di verificare che tutti i canali — segnale elettrofisiologico, TTL di LabVIEW e TTL di Arduino — siano correttamente acquisiti prima dell'introduzione del preparato sperimentale.
4. Calibrazione della luce e determinazione del contrasto
NOTA: questa sezione stabilisce la corretta configurazione ottica per la stimolazione visiva dell'occhio con lente inferiore e determina i valori di irradianza necessari per i calcoli del contrasto. Viene utilizzato un ropalio sacrificabile per la fase di calibrazione biologica. La caratterizzazione dell'irradianza viene eseguita senza alcuna preparazione nella camera. Questa sezione richiede molto tempo. La calibrazione biologica, la caratterizzazione dell'irradianza a tutti i livelli di grigio e i calcoli del contrasto potrebbero richiedere una sessione dedicata prima della giornata di registrazione. Il ropalio utilizzato per la calibrazione biologica deve essere scartato al termine di questa sezione e non può essere utilizzato per le registrazioni.
- Calibrazione biologica
- Riempire la camera di registrazione con acqua di mare filtrata a 0,20 µm proveniente dal serbatoio di coltura.
- Isolare un rofalo e trasferirlo nella camera di registrazione seguendo la procedura descritta nella Sezione 5.
- Posizionare il rofalo sul bordo del coprivetrino rivolto verso lo schermo di proiezione utilizzando la micropipetta di fissazione (Figura 1D).
NOTA: Posizionare il rofalo sul bordo del coprivetrino anziché sulla sua superficie ha due scopi: innanzitutto, il bordo del coprivetrino può essere posizionato a una distanza fissa e riproducibile dallo schermo di proiezione, garantendo una distanza operativa costante in tutte le registrazioni; in secondo luogo, l'occhio con lente inferiore non deve guardare attraverso il vetro del coprivetrino per vedere lo schermo, evitando così una distorsione angolare dello stimolo visivo. La distanza tra il bordo del coprivetrino e lo schermo di proiezione determina l'estensione angolare di tutti gli stimoli proiettati sull'occhio con lente inferiore e deve essere mantenuta costante in tutte le registrazioni. Nella camera descritta in questo protocollo, questa distanza è di 2 mm. - Collegare l'elettrodo di registrazione al nervo dello stelo epidermico seguendo la procedura descritta al punto 6.1.
- Presentare un ostacolo a contrasto massimo (c ≈ 1,0, barra nera su sfondo bianco) che si muove lungo tutta la larghezza del campo visivo e valutare la risposta del segnale del pacemaker (Figura 1C; Figura 5).
NOTA: La misurazione fotometrica ha confermato un contrasto massimo ottenibile di c ≈ 0,99 tra i livelli di grigio più chiari e più scuri del sistema di proiezione utilizzato, dovuto alla luminanza residua nel punto nero del proiettore piuttosto che a una limitazione della progettazione dello stimolo; questo è alla base della notazione approssimata (c ≈ 1,0) utilizzata in tutto il protocollo per stimoli a contrasto massimo.
NOTA: (FONDAMENTALE) Una risposta soddisfacente consiste in un aumento robusto della frequenza del segnale del pacemaker superiore a 2 Hz, che si verifica come un breve burst temporizzato quando il bordo anteriore dell'ostacolo raggiunge il centro del campo visivo, piuttosto che in modo sostenuto per tutta la presentazione dello stimolo, con circa 5–15 segnali del pacemaker che si verificano durante questo burst (Figura 5B). L'intensità della risposta, sia in termini di frequenza che di numero di segnali, aumenta con il contrasto dello stimolo; la risposta a uno stimolo a contrasto massimo (c ≈ 1,0) dovrebbe quindi essere la più intensa possibile, poiché ciò riflette un corretto orientamento dell'occhio con lente inferiore, un corretto collegamento dell'elettrodo e una calibrazione accurata del proiettore, e garantisce un'adeguata dinamica per distinguere le risposte a livelli di contrasto inferiori. Ciò conferma che i fotorecettori operano all'interno del loro intervallo dinamico e non sono saturati da un'eccessiva irradiazione. Se non si osserva alcuna modulazione della frequenza del pacemaker nonostante un preparato sano che mostri un'attività spontanea del pacemaker a 0,5–1 Hz, si dovrebbe sospettare una saturazione dei fotorecettori dovuta a un'eccessiva irradiazione. Inserire un filtro neutro (ad esempio Thorlabs NE01A, densità ottica = 0,1, secondo necessità) nell'obiettivo e ripetere la calibrazione. Aumentare progressivamente l'attenuazione finché non si ottiene una risposta robusta della frequenza del pacemaker. Tutte le registrazioni successive devono essere effettuate con questa configurazione del filtro. - Una volta ottenuta una risposta biologica soddisfacente, registrare la configurazione del filtro neutro. Questa configurazione è fissa per tutte le registrazioni successive con questa configurazione ottica.
- Rimuovere il rofalo dalla camera di registrazione e scartarlo. Il rofalo utilizzato per la calibrazione biologica non può essere utilizzato per le registrazioni a causa del tempo trascorso durante la procedura di calibrazione.
- Caratterizzazione dell'irradiazione
- Svuotare la camera di registrazione e assicurarsi che la superficie dello schermo di proiezione sia asciutta. Posizionare la fibra dello spettrometro direttamente sulla superficie dello schermo di proiezione e perpendicolarmente ad essa.
NOTA: La maggior parte delle fibre ottiche degli spettrometri non è impermeabile. La camera deve essere vuota e la superficie dello schermo asciutta prima di posizionare la fibra sullo schermo. - Utilizzando il software di presentazione, illuminare uniformemente lo schermo di proiezione con ciascun livello di grigio da misurare e registrare l'irradiazione (350–700 nm) utilizzando lo spettrometro.
NOTA: Si raccomanda di procedere dal livello di grigio massimo a quello minimo (bianco a nero), poiché lo spettrometro è più soggetto a sovraesposizione a livelli elevati di irradiazione. Potrebbe essere necessario ricalibrare il tempo di integrazione in diversi punti dell'intervallo di livelli di grigio per evitare sia sovraesposizione che sottoesposizione. Questo processo, esteso a tutti i livelli di grigio, è lungo e deve essere pianificato di conseguenza. - Correggere ciascun valore misurato di irradiazione in base allo spettro di assorbimento dell'opsina a 500 nm di T. cystophora presente nell'occhio con lente inferiore21,22.
NOTA: La correzione dell'opsina viene effettuata moltiplicando l'irradiazione misurata a ciascuna lunghezza d'onda per il corrispondente coefficiente di ricezione del modello di pigmento visivo di Govardovskii per un λmax di 500 nm21, quindi sommando su tutto l'intervallo di lunghezze d'onda misurate per ottenere un singolo valore di irradiazione corretto per l'opsina. Questo calcolo può essere eseguito in qualsiasi comune software per fogli di calcolo una volta acquisiti i dati grezzi di irradiazione spettrale. - Calcolare il contrasto di ciascun livello di grigio utilizzando i valori di irradiazione corretti:

dove Iw è l'irradiazione corretta per l'opsina dello sfondo bianco e Ig è l'irradiazione corretta per l'opsina della barra grigia o nera. I valori di contrasto variano da 0 (barra indistinguibile dallo sfondo) a 1 (contrasto massimo, barra nera su sfondo bianco). - Dai valori di contrasto calcolati, identificare i livelli di grigio corrispondenti ai livelli di contrasto richiesti per il protocollo sperimentale. Aggiornare la presentazione del software con questi livelli di grigio.
NOTA: Il contrasto è un rapporto tra valori di irradiazione ed è quindi insensibile a variazioni uniformi nell'output assoluto della lampada su tutti i livelli di grigio. La caratterizzazione dell'irradiazione non deve essere ripetuta tra sessioni di registrazione, purché la configurazione ottica rimanga invariata. Tuttavia, si consiglia di verificare la stabilità dell'irradiazione se si osservano cambiamenti inattesi nella risposta allo stimolo tra sessioni.
- Svuotare la camera di registrazione e assicurarsi che la superficie dello schermo di proiezione sia asciutta. Posizionare la fibra dello spettrometro direttamente sulla superficie dello schermo di proiezione e perpendicolarmente ad essa.
<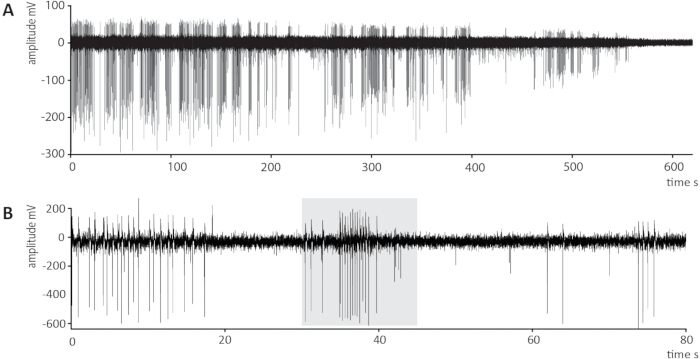
Figura 5: Registrazioni extracellulari rappresentative dei segnali del pacemaker natatorio dal ropalio isolato di Tripedalia cystophora. (A) Esempio di perdita progressiva del sigillo dell'elettrodo durante una sessione di registrazione prolungata. L'ampiezza del segnale del pacemaker inizia a diminuire intorno ai 200–250 s, indicando un deterioramento del contatto elettrico tra la punta dell'elettrodo e il nervo dello stelo epidermico, e il segnale si perde completamente intorno ai 580–600 s. Sia l'ampiezza del segnale che il rumore di fondo diminuiscono in parallelo, un segno caratteristico della perdita del sigillo. (B) Registrazione rappresentativa di una risposta evocata visivamente di evitamento di ostacoli sopra il DTT. L'area grigia ombreggiata indica la finestra di stimolo, definita dal segnale TTL dell'Arduino, durante la quale un ostacolo verticale ad alto contrasto (c = 0.80) è stato spostato lungo tutta la larghezza del campo visivo dell'occhio con lente inferiore. La frequenza del segnale del pacemaker aumenta notevolmente durante la finestra di stimolo, coerentemente con una risposta di evitamento di ostacoli evocata visivamente, e ritorna verso la frequenza di base dopo la cessazione dello stimolo. Segnali spontanei del pacemaker che si verificano al di fuori della finestra di stimolo sono attesi e non costituiscono risposte evocate visivamente. Si noti che la differenza nella scala dell'asse y tra i pannelli riflette la diversa qualità delle registrazioni mostrate e non implica una differenza nell'intensità del segnale; in elettrofisiologia extracellulare, l'ampiezza del segnale dipende dalla qualità del sigillo dell'elettrodo piuttosto che dall'entità della risposta fisiologica. Tutti i valori sono post-amplificazione (×1000). Cliccare qui per visualizzare una versione ingrandita di questa figura.
5. Isolamento e trasferimento del rofalio
NOTA: Questa procedura viene eseguita ogni volta che è necessario un ropalio: una volta con un ropalio sacrificale per la calibrazione biologica nella Sezione 4 e successivamente per ciascun ropalio sperimentale utilizzato nella Sezione 6. In ogni occasione, tutti i componenti hardware devono essere completamente assemblati e verificati prima di manipolare l'animale. Il numero di ropalii sperimentali è determinato dal disegno sperimentale.
- Utilizzando una pipetta di trasferimento in plastica monouso con la punta tagliata per ottenere un'apertura di circa 8 mm di diametro, trasferire un singolo animale dal serbatoio di coltura a una capsula di Petri da 35 mm contenente acqua di mare filtrata a 0,20 µm proveniente dal serbatoio di coltura.
- Rimuovere l'acqua di mare in eccesso fino a quando l'animale non risulta appiattito contro la capsula e immobile, ma non disidratato.
- Utilizzando forbici fini (forbici di Vannas, lama 0,025 mm × 0,015 mm), sezionare il peduncolo che collega il roplio alla campana a circa due terzi della lunghezza del peduncolo misurata a partire dall'attacco del roplio (cioè in posizione distale rispetto al roplio). Immediatamente dopo la sezione, riempire nuovamente la capsula di Petri con acqua di mare filtrata a 0,20 µm proveniente dal serbatoio di coltura.
ATTENZIONE: Le forbici di Vannas sono estremamente affilate. Manipolarle con cautela durante la dissezione per evitare lesioni.
NOTA: Il roplio potrebbe ritrarsi all'interno della nicchia ropliale dopo la sezione. Il ripristino dell'acqua filtrata nella capsula di Petri, nella maggior parte dei casi, permette di espellere il roplio. In caso contrario, utilizzare una pipetta di Pasteur per rimuoverlo delicatamente.
Utilizzando una pipetta di Pasteur (150 mm), trasferire il roplio isolato nella camera di registrazione per elettrofisiologia posizionata sul palchetto del microscopio. (FONDAMENTALE) Assicurarsi che il roplio rimanga sempre completamente immerso in acqua di mare durante e dopo il trasferimento. L'esposizione all'aria danneggia irreversibilmente il preparato. - Utilizzando una pipetta di trasferimento, restituire l'animale al serbatoio di coltura.
NOTA: La perdita di un singolo roplio non compromette in modo significativo il comportamento normale della medusa cubozoa; animali che ne conservano anche solo uno continuano a mostrare comportamenti normali di alimentazione e di interazione con i fasci di luce. I ropli inoltre rigenerano completamente la loro funzionalità, inclusa la ripresa del segnale del pacemaker e delle risposte normali dei fotoricettori, entro due settimane dall'asportazione23. L'animale può essere riutilizzato in sessioni successive finché rimangono ropli. Una volta rimossi tutti e quattro i ropli, l'animale non è più in grado di generare segnali del pacemaker per il nuoto né contrazioni della campana e deve essere eliminato in modo umano tramite lo scarico di laboratorio standard, in conformità con lo smaltimento del tessuto ropliale (passaggio 6.2.5).
6. Registrazione
- Posizionamento del rofalio e attacco dell'elettrodo
- Riempire l'elettrodo di registrazione a suggente aspirando l'acqua di mare direttamente dalla camera di registrazione nel capillare, fino a quando la soluzione interna raggiunge metà dell'altezza del filo d'argento. Riempire la micropipetta di mantenimento con acqua di mare sufficiente prelevata dalla camera di registrazione per consentire l'adesione per aspirazione al cristallo.
- Montare la micropipetta di mantenimento su un micromanipolatore. Applicare un'aspirazione delicata tramite una siringa Luer-lock collegata per fissare la punta della micropipetta di mantenimento al cristallo di solfato di calcio (CaSO₄) all'estremità distale del rofalio. Il cristallo fornisce un punto di ancoraggio meccanico robusto senza danneggiare il tessuto nervoso.
- Utilizzando la micropipetta di mantenimento, posizionare il rofalio sul bordo del coprioggetto rivolto verso lo schermo di proiezione (Figura 1D).
NOTA: (FONDAMENTALE) La distanza tra l'occhio con lente inferiore e lo schermo di proiezione deve essere misurata e registrata, poiché è necessaria per calcolare l'estensione angolare (angolo di accettazione) delle caratteristiche dell'immagine proiettata sull'occhio con lente inferiore utilizzando:
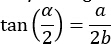
dove α è l'angolo visivo, a è la larghezza della caratteristica dell'immagine e b è la distanza tra l'occhio con lente inferiore e lo schermo. A una distanza operativa di 2 mm, un'immagine proiettata di 16 mm × 12 mm (l × h) sottende circa 150° in orizzontale e 120° in verticale del campo visivo circolare di 170° dell'occhio con lente inferiore. La distanza operativa deve essere mantenuta costante in tutte le registrazioni, poiché qualsiasi deviazione invalida i calcoli angolari per gli stimoli presentati e impedisce il confronto diretto tra le registrazioni. - Mantenendo la posizione del rofalio con la micropipetta di mantenimento, avanzare l'elettrodo di registrazione verso la superficie transecata del gambo utilizzando un secondo micromanipolatore.
NOTA: Il nervo del gambo epidermico scorre longitudinalmente per tutta la lunghezza del gambo, dal punto di attacco del rofalio al nervo anulare15. Sulla superficie transecata, le terminazioni nervose del nervo del gambo epidermico biforcato sono esposte e disponibili per il contatto con l'elettrodo sulla superficie adorale del gambo — il lato rivolto verso gli occhi con lente (Figura 2B). - Applicare un'aspirazione delicata tramite siringa Luer-lock finché non si stabilizza un segnale.
NOTA: Le terminazioni nervose non sono sempre distinguibili visivamente sulla superficie transecata. Posizionare la punta dell'elettrodo sulla regione in cui ci si aspetta il nervo del gambo epidermico in base ai punti di riferimento anatomici e applicare un'aspirazione delicata. Un adeguato attacco dell'elettrodo è indicato dalla comparsa di segnali del pacemaker di grandi dimensioni, chiaramente risolti, con forma d'onda costante alla frequenza attesa di 0,5–1 Hz (Figura 5). I segnali del pacemaker si distinguono dai segnali simili ai potenziali d'azione in base alla durata e alla morfologia della forma d'onda (Figura 2C,D)13,20,24. La comparsa di segnali del pacemaker stabili costituisce il criterio definitivo per un corretto posizionamento dell'elettrodo, non la conferma visiva del contatto nervoso. Se non si ottiene alcun segnale, rilasciare l'aspirazione, riposizionare leggermente la punta dell'elettrodo sulla superficie transecata e riapplicare l'aspirazione. Un'aspirazione eccessiva rischia di ostruire la punta con detriti tissutali o di danneggiare meccanicamente la terminazione nervosa. La perdita progressiva dell'ampiezza del segnale e l'aumento del rumore di fondo durante la registrazione indicano una perdita della tenuta dell'elettrodo (Figura 5A). - Lasciare che il preparato si ambienti per un minimo di 10 minuti dopo l'attacco dell'elettrodo prima di iniziare le registrazioni. Durante questo periodo, mantenere lo schermo di proiezione illuminato con lo sfondo bianco e la barra grigia posizionata ferma su un lato del campo visivo, al di fuori del centro.
NOTA: Prima di iniziare l'ambientamento, verificare la reattività del preparato presentando un singolo stimolo di contrasto massimo (c ≈ 1,0); i rofali che non rispondono vengono esclusi dal set di dati. Il periodo di ambientamento consente al preparato di stabilizzarsi dopo la perturbazione meccanica causata dall'attacco dell'elettrodo. Mantenere lo schermo bianco con una barra ferma assicura che i fotoricettori siano adattati alla luce alle condizioni di base che saranno presenti durante la stimolazione visiva e che la frequenza iniziale del pacemaker sia stabile prima della presentazione del primo stimolo. Questo rappresenta un ulteriore vantaggio pratico dell'uso di un software di presentazione per il controllo degli stimoli. Il contenuto dello schermo durante l'ambientamento e tra le registrazioni è direttamente visibile e completamente controllabile senza ulteriore programmazione. - Una volta stabilito un segnale del pacemaker stabile, ottimizzare le impostazioni del filtro passa-banda sull'amplificatore extracellulare per massimizzare il rapporto segnale-rumore e preservare l'ampiezza del segnale e la morfologia della forma d'onda, monitorandone l'effetto sul display dell'oscilloscopio. Utilizzare le seguenti impostazioni iniziali: passa-alto 1 Hz e passa-basso 500 Hz; attivare il filtro notch 50/60 Hz (add-on integrato EXT-10-2F). Regolare in base al segnale osservato.
NOTA: Aumentare la frequenza di taglio del passa-alto oltre 1 Hz attenuerà progressivamente le componenti a bassa frequenza del segnale del pacemaker, riducendone l'ampiezza e potenzialmente compromettendo il rilevamento del segnale. L'ampiezza del segnale post-amplificazione desiderata per segnali del pacemaker chiari e facilmente identificabili è di 400–600 mV, con un massimo di circa 1 V.
- Acquisizione dei dati
- Configurare il VI (fornito come materiale supplementare, File Supplementare 3) per acquisire simultaneamente i seguenti canali tramite la DAQ a una frequenza di campionamento di 1 kHz:
Canale 1: Segnale elettrofisiologico (segnale del pacemaker amplificato e filtrato proveniente da EXT-10-2F)
Canale 2: Uscita TTL analogica generata da LabVIEW al mouse TTL
Canale 3: Timestamp TTL analogico da Arduino Uno (registra la finestra effettiva dello stimolo — l'inizio definito dall'innalzamento del TTL, la fine definita dal ritorno del TTL a livello basso — come rilevato dal fotodiodo che monitora il quadrato indicatore bianco e nero sul display del computer).
NOTA: Il Canale 2 registra il tempo previsto di consegna dello stimolo, mentre il Canale 3 registra la finestra effettiva dello stimolo verificata. Il Canale 3 deve essere utilizzato come registro definitivo del timing dello stimolo per tutte le analisi. - Impostare la durata della registrazione in base al protocollo sperimentale. Per una sequenza standard di presentazione degli stimoli composta da un periodo di baseline pre-stimolo di 30 s, circa 15 s di stimolazione visiva e un periodo post-stimolo di 35 s, impostare la durata totale della registrazione a 80 s.
NOTA: Questo protocollo utilizza tipicamente 10 repliche biologiche (rofali), preferibilmente ottenute da 10 animali diversi, per valutare l'intensità della risposta, in linea con Bielecki et al. (2023)14. All'interno di un singolo preparato, lo stesso rofalio isolato riceve l'intero protocollo di stimoli visivi, presentati in sequenza dal contrasto più basso al più alto; questo ordine previene l'abituazione dell'animale all'assenza di conseguenze avverse a contrasto elevato, che altrimenti potrebbe ridurre la reattività agli stimoli successivi a contrasto più basso. Le registrazioni successive vengono avviate a intervalli fissi di 2 minuti, determinando un intervallo di 105 s tra la fine di un periodo di stimolo e l'inizio del successivo (sufficiente affinché la frequenza del pacemaker ritorni al livello di base prima dello stimolo successivo). Non vengono effettuate repliche tecniche; ogni rofalio riceve una singola presentazione per livello di contrasto all'interno della sua sequenza di stimoli. - Il VI LabVIEW (fornito come materiale supplementare, File Supplementare 3) genera automaticamente un impulso TTL dalla DAQ al mouse TTL al momento appropriato all'interno della sequenza di registrazione, avanzando la diapositiva e avviando l'inizio dello stimolo visivo. Salvare i dati acquisiti come file .txt delimitato da tabulazioni. Quando si utilizza il VI fornito, i metadati della registrazione vengono codificati manualmente nel nome del file al momento del salvataggio.
NOTA: Si raccomanda agli utenti di stabilire una convenzione coerente per la denominazione dei file prima di iniziare le registrazioni. Un identificatore del preparato è un codice univoco (ad esempio, un numero di animale o di sessione) che consente di risalire a quale registrazione specifica appartiene un determinato rofalio e sessione sperimentale. Lo schema esatto di denominazione è lasciato alla preferenza dell'investigatore, purché sia sistematico e consenta di risalire in modo inequivocabile a ogni registrazione al suo preparato corrispondente — ad esempio, un nome di file potrebbe combinare data e ora della registrazione con i parametri dello stimolo rilevanti (ad esempio, livello di contrasto, dimensioni della barra e velocità). - Al termine di tutte le registrazioni per un determinato rofalio, smaltire il tessuto del rofalio tramite lo scarico standard del laboratorio.
NOTA: Si raccomanda agli utenti di stabilire una convenzione coerente per la denominazione dei file prima di iniziare le registrazioni. Un nome di file sistematico che includa data, identificatore del preparato e condizione dello stimolo è sufficiente per l'analisi successiva. Il software di presentazione è preferito rispetto agli stimoli visivi generati da LabVIEW per due motivi pratici: primo, garantisce che l'immagine proiettata sull'occhio con lente inferiore tra le registrazioni sia nota e controllata in ogni momento, prevenendo stimolazioni visive non intenzionali da interfacce software o schermi di sistema; secondo, elimina il rischio di spegnimento dello schermo tra le sessioni di registrazione, che provocherebbe una risposta di tipo luce-OFF nei fotoricettori e introdurrebbe un'attività spuria del pacemaker nel periodo di baseline successivo. La dimensione angolare percepita e la velocità della barra varieranno in modo non lineare attraverso il campo visivo a causa della geometria dell'occhio con lente. Questa non linearità non viene corretta per due motivi: primo, gli animali in nuoto libero non si avvicinano agli ostacoli con velocità o direzione costante, rendendo la correzione angolare di limitata rilevanza naturalistica; secondo, correggere la dimensione angolare richiederebbe variazioni della luminanza complessiva dello schermo, attivando così la risposta luce ON/OFF coinvolta nel rilevamento dei fasci di luce nei mangrovieti.
- Configurare il VI (fornito come materiale supplementare, File Supplementare 3) per acquisire simultaneamente i seguenti canali tramite la DAQ a una frequenza di campionamento di 1 kHz:
7. Analisi dei dati
- Discriminazione del segnale del pacemaker in Igor Pro
NOTA: I segnali del pacemaker per il nuoto vengono discriminati dai segnali simili a potenziali d'azione nel tracciato elettrofisiologico grezzo prima dell'analisi della frequenza. I due tipi di segnale possono verificarsi contemporaneamente durante la registrazione e devono essere distinti prima di estrarre i dati temporali del pacemaker. Esempi rappresentativi di entrambi i tipi di segnale e delle loro caratteristiche morfologiche distinte sono riportati in Figura 2C,D.- Importare il file dati .txt in Igor Pro (versione 6.37 o successiva) utilizzando il plugin Neuromatic (versione 2.00).
- Discriminare i segnali del pacemaker per il nuoto dai segnali simili a potenziali d'azione in base alla durata del segnale e alla morfologia dell'onda.
NOTA: I segnali del pacemaker per il nuoto hanno una durata caratteristica di circa 45 ms e una morfologia complessa dell'onda che riflette l'attività sommata di numerosi neuroni pacemaker. I segnali simili a potenziali d'azione hanno una durata più breve di circa 10 ms e un'onda più acuta e unitaria. L'ampiezza del segnale da sola non è un criterio di discriminazione affidabile, poiché i due tipi di segnale possono raggiungere ampiezze comparabili24 (Figura 2C,D). Viene fornita una figura rappresentativa che illustra le caratteristiche morfologiche distinte dei segnali del pacemaker per il nuoto e dei segnali simili a potenziali d'azione (Figura 2C,D). Si raccomanda agli utenti di familiarizzare con entrambi i tipi di segnale prima dell'analisi, poiché un'errata identificazione introdurrebbe errori nella stima della frequenza del pacemaker. Le caratteristiche morfologiche del segnale sono costanti all'interno di una stessa preparazione, ma possono variare leggermente tra preparazioni diverse; i criteri di discriminazione devono pertanto essere valutati per ogni preparazione singolarmente, utilizzando le caratteristiche morfologiche descritte sopra come indicazione generale piuttosto che come soglie universali fisse. Per forme d'onda ambigue o intermedie che non possono essere classificate con sicurezza, risolvere l'ambiguità nella direzione opposta all'esito atteso o ipotizzato — ad esempio, escludere un evento ambiguo se un conteggio più alto di segnali supporterebbe l'ipotesi in esame, oppure includerlo se un conteggio più basso la supporterebbe — per evitare di sovrastimare l'evidenza del risultato. - Estrarre il timestamp di ciascun segnale del pacemaker per il nuoto identificato, ottenendo una serie temporale di eventi del pacemaker per ogni registrazione, ed esportare questi timestamp (ad esempio, in un foglio elettronico o file .csv) per analisi statistiche successive.
- Analisi della frequenza
- Calcolare la frequenza del segnale del pacemaker come inverso dell'intervallo inter-singolo segnale lungo tutta la registrazione.
- Valutare l'effetto dello stimolo visivo confrontando la frequenza del pacemaker durante il periodo basale pre-stimolo, il periodo di stimolo e il periodo post-stimolo, utilizzando i timestamp del segnale del pacemaker corretti per il ritardo tra il comando TTL registrato da LabVIEW (Canale 2) e l'inizio dello stimolo verificato da Arduino (Canale 3).
NOTA: L'occhio con lente inferiore risponde allo stimolo in base al timing del TTL verificato, non al comando registrato dal software; pertanto, il tempo di inizio verificato di ogni registrazione viene esportato insieme ai timestamp grezzi del pacemaker e del TTL in un foglio elettronico (Tabella Supplementare 1) ed è utilizzato direttamente dallo script di analisi SAS per classificare ogni segnale del pacemaker nella finestra pre-stimolo, di stimolo o post-stimolo (Figura 6); i valori dei timestamp non vengono modificati nella fase del foglio elettronico. In condizioni basali indisturbate, la frequenza del segnale del pacemaker è di 0,5–1 Hz. Le risposte evocate visivamente di evitamento di ostacoli al di sopra del DTT sono caratterizzate da un aumento della frequenza del pacemaker a 2–3 Hz. Il massimo fisiologico è di circa 4 Hz, corrispondente a un intervallo minimo tra segnali di 250–280 ms25. Poiché la frequenza basale del pacemaker varia tra le preparazioni, i valori di frequenza per ogni registrazione vengono standardizzati rispetto alla frequenza media di quella registrazione, calcolata dai periodi pre-stimolo e post-stimolo (escludendo il periodo di stimolo stesso). Questa normalizzazione permette di confrontare l'ampiezza della risposta tra diverse preparazioni, indipendentemente dalle differenze nella frequenza basale del pacemaker. Le procedure statistiche complete per valutare la significatività della risposta, inclusivo il modello non lineare utilizzato per confrontare i periodi basale, di stimolo e post-stimolo, sono descritte in Bielecki et al. (2023)14; il codice di analisi SAS corrispondente è disponibile all'indirizzo doi: 10.17632/csgymw8kjk.1. Viene fornito un esempio rappresentativo di flusso di analisi, dal segnale grezzo attraverso la discriminazione, il calcolo della frequenza e la standardizzazione fino alla metrica finale della risposta, in Figura 7.
- Valutare l'effetto dello stimolo visivo confrontando la frequenza del pacemaker durante il periodo basale pre-stimolo, il periodo di stimolo e il periodo post-stimolo, utilizzando i timestamp del segnale del pacemaker corretti per il ritardo tra il comando TTL registrato da LabVIEW (Canale 2) e l'inizio dello stimolo verificato da Arduino (Canale 3).
- Calcolare la frequenza del segnale del pacemaker come inverso dell'intervallo inter-singolo segnale lungo tutta la registrazione.
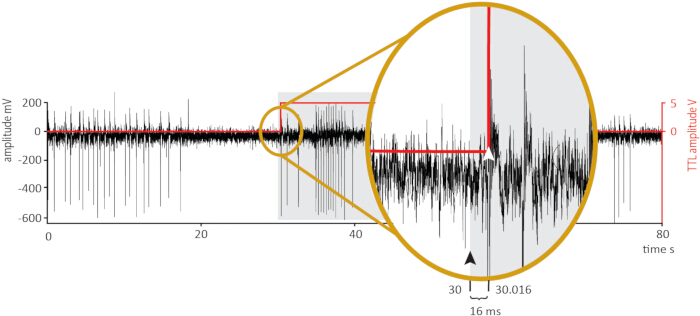
Figura 6: Esempio rappresentativo della correzione del timestamp del pacemaker per la temporizzazione verificata mediante stimolo. Registrazione esemplificativa che illustra il ritardo tra il comando TTL registrato dal software VI e l'inizio dello stimolo verificato tramite Arduino, verificato singolarmente per ogni registrazione attraverso la catena temporale Arduino/fotodiodo ed esportato in un foglio elettronico (Tabella Supplementare 1) per l'uso diretto da parte dello script di analisi SAS nel classificare ciascun timestamp del segnale del pacemaker all'interno della finestra pre-stimolo, stimolo o post-stimolo. Traccia nera (asse y sinistro): segnale elettrofisiologico (mV). Traccia rossa (asse y destro): ampiezza TTL (V). La regione ombreggiata in grigio indica la finestra di stimolazione nominale, come registrata dal comando TTL registrato dal software. Insetto: vista ingrandita dell'inizio del TTL. La freccia nera indica l'istante di invio del TTL registrato da LabVIEW (t = 30,000 s, Canale 2); la freccia bianca indica l'inizio dello stimolo verificato rilevato tramite la catena Arduino/fotodiodo (t = 30,016 s, Canale 3). L'intervallo di 16 ms mostrato è un esempio rappresentativo compreso nell'intervallo <20 ms riportato per l'attivazione automatica del mouse mediante TTL (Risultati). Poiché questo ritardo è costante all'interno di una singola registrazione, la transizione corrispondente di offset non è illustrata separatamente. Cliccare qui per visualizzare una versione ingrandita di questa figura.
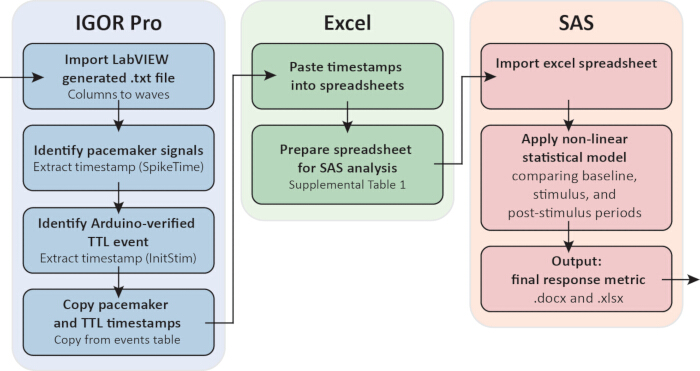
Figura 7: Flusso di lavoro rappresentativo per l'analisi, dai dati grezzi alla metrica finale della risposta. Il segnale del pacemaker e i timestamp TTL vengono estratti dalla tabella degli eventi di Igor Pro/Neuromatic: gli eventi del segnale del pacemaker vengono identificati in base alla durata e alla morfologia dell'onda (passaggio 7.1.2), e l'inizio dello stimolo verificato tramite Arduino (InitStim, Canale 3) viene estratto per ogni registrazione come timestamp assoluto, non come ritardo calcolato. Questi timestamp vengono copiati in un foglio elettronico (Tabella Supplementare 1), che viene preparato per l'analisi SAS calcolando l'intervallo interspikico (Intval) e il timestamp centrale (MidTime) per ciascun evento del segnale del pacemaker. SAS importa il foglio elettronico preparato e applica un modello statistico non lineare (Bielecki et al., 202314) per confrontare la frequenza del pacemaker nei periodi pre-stimolo, durante lo stimolo e post-stimolo, classificati rispetto all'inizio dello stimolo verificato per ciascuna registrazione, al fine di produrre la metrica finale della risposta (riepilogo in formato .docx, tabelle dati in formato .xlsx). Cliccare qui per visualizzare una versione ingrandita di questa figura.
Risultati
Qualità del segnale e attività di pacemaker spontanea
Dopo un corretto posizionamento dell'elettrodo sul nervo del peduncolo epidermico sezionato, segnali di pacemaker spontanei dovrebbero risultare immediatamente evidenti sull'oscilloscopio. Una registrazione di alta qualità si caratterizza per segnali di pacemaker ampi e ben definiti, con un'ampiezza post-amplificazione compresa tra 400 e 600 mV, che si verificano a una frequenza spontanea stabile di 0,5–1 Hz, su una linea di base a basso rumore (deviazione massima di circa 10–15 mV su entrambi i lati dello zero, corrispondente a un rapporto segnale-rumore di circa 27–40:1 nell'intervallo di ampiezza desiderato) (Figura 5B). È possibile analizzare registrazioni con ampiezza del segnale fino a 100 mV, ma ciò aumenta notevolmente il tempo necessario per la discriminazione del segnale in Igor Pro e non è consigliato, specialmente per operatori inesperti. La morfologia del potenziale composto del segnale di pacemaker, che riflette l'attività sommata di numerosi neuroni trmOC, lo distingue da segnali più brevi e più acuti, simili a potenziali d'azione, che potrebbero essere presenti nella registrazione24 (Figura 2C,D). Come descritto al passaggio 7.1, questi due tipi di segnale devono essere discriminati prima dell'analisi in base alla durata del segnale (~45 ms per i segnali di pacemaker rispetto a ~10 ms per i segnali simili a potenziali d'azione) e alla morfologia del potenziale. L'ampiezza da sola non costituisce un criterio affidabile per la discriminazione. La discriminazione dei segnali in questo protocollo è stata effettuata da un singolo operatore esperto; pertanto, non sono state calcolate statistiche formali sulla riproducibilità tra valutatori (vedere la sezione Discussione, Limitazioni).
Risposta del pacemaker evocata visivamente
In una preparazione sana e reattiva, la presentazione di uno stimolo a barra verticale in movimento al di sopra del DTT all'occhio della lente inferiore produce una risposta chiara e sincronizzata del pacemaker. La frequenza del segnale del pacemaker aumenta a 2–3 Hz, coincidendo con il passaggio del bordo anteriore dell'ostacolo attraverso il centro del campo visivo, e ritorna verso la frequenza di base dopo la cessazione dello stimolo14 (Figura 5B). Il momento d'inizio dello stimolo è stato verificato utilizzando la catena temporale Arduino/fotodiodo (passo 3.3), anziché fare affidamento sul timestamp riportato da LabVIEW. Utilizzando il mouse TTL per far avanzare il software di presentazione, l'intervallo verificato è <20 ms; utilizzando l'attivazione manuale (un operatore che clicca un mouse non modificato sincronizzato con l'inizio desiderato), l'intervallo verificato è 100–150 ms. Poiché l'analisi della risposta utilizza l'inizio verificato (Canale 3) anziché l'impulso riportato dal software (Canale 2), questo intervallo non influisce sulla quantificazione della risposta, indipendentemente dal metodo di attivazione. Questo aumento di frequenza costituisce il correlato elettrofisiologico del comportamento di evitamento dell'ostacolo osservato negli animali che nuotano liberamente, e la sua presenza conferma sia la vitalità della preparazione sia il corretto allineamento ottico dell'occhio della lente inferiore con lo schermo di proiezione.
L'entità della risposta del pacemaker viene valutata utilizzando la frequenza istantanea del segnale, calcolata come l'inverso dell'intervallo inter-singolo tra eventi consecutivi del pacemaker. Questo approccio richiede almeno due segnali del pacemaker consecutivi per stabilire un valore di frequenza, fornendo una protezione intrinseca contro il rilevamento di risposte false positive derivanti da singoli segnali isolati.
Il contrasto dello stimolo della barra in movimento determina l'ampiezza della risposta evocata. In Bielecki et al. (2023)14, sono stati utilizzati tre livelli di contrasto (c = 0,20, 0,40 e 0,80), distanziati di un f-stop l'uno dall'altro. Questi valori specifici di contrasto sono stati scelti per mantenere la durata totale del protocollo entro la finestra di registrazione praticabile di circa 1 h. I ricercatori che indagano i limiti di sensibilità al contrasto dell'occhio con lente inferiore, o altre proprietà specifiche della risposta visiva, dovrebbero selezionare livelli di contrasto appropriati alla loro domanda sperimentale, piuttosto che adottare questi valori in modo prescrittivo.
Registrazioni subottimali e modalità di errore
In pratica, circa il 90% (9 su 10) delle preparazioni che soddisfano il criterio di vitalità durante l'acclimatazione (passaggio 6.1.6) riesce a produrre un'attività spontanea stabile e una risposta visivamente evocata misurabile; questa proporzione dipende fortemente dall'esperienza dell'operatore. Le preparazioni rimanenti di solito non riescono a causa di uno dei seguenti motivi: la causa più comune di fallimento è la perdita progressiva della sigillatura dell'elettrodo durante la sessione di registrazione. Questo si manifesta come una riduzione graduale sia dell'ampiezza del segnale del pacemaker sia del livello del rumore di fondo, indicando un deterioramento del contatto elettrico tra la punta dell'elettrodo e la terminazione nervosa (Figura 5A). Se si osserva questo andamento, si dovrebbe rilasciare e riapplicare l'aspirazione dopo aver riposizionato leggermente la punta dell'elettrodo sulla superficie del peduncolo sezionato. Se l'ampiezza del segnale non si recupera, la preparazione deve essere valutata per verificarne la vitalità controllando la presenza di attività spontanea del pacemaker. L'assenza totale di segnale dopo tentativi di ricollegamento, in una preparazione isolata da più di 1 h, probabilmente indica un deterioramento della preparazione piuttosto che un malfunzionamento dell'elettrodo, e si dovrebbe utilizzare una preparazione fresca.
Un secondo tipo di malfunzionamento è l'assenza di una risposta evocata visivamente nonostante un'attività spontanea del pacemaker stabile. Questo dovrebbe indurre a rivalutare la configurazione ottica prima di concludere che il preparato è inerte. Le cause più comuni sono il disallineamento dell'occhio con lente inferiore rispetto allo schermo di proiezione e la saturazione dei fotorecettori dovuta a un'eccessiva irradiazione. Si dovrebbe ripetere la procedura di calibrazione biologica descritta al punto 4.1.5 e, se necessario, aumentare l'attenuazione del filtro di densità neutra. Si deve inoltre verificare che lo stimolo a barra in movimento rimanga all'interno del campo visivo per tutta la durata del movimento, poiché l'uscita dello stimolo dal campo visivo provocherebbe una risposta di tipo luce-OFF e introdurrebbe un'attività spuria del pacemaker nella registrazione.
Un terzo schema — un rumore di fondo elevato che oscura i segnali del pacemaker — riflette più comunemente un problema di messa a terra o interferenze della corrente elettrica. Deve essere verificata la configurazione a terra a stella descritta al punto 3.2.1 e deve essere confermato che il filtro notch a 50/60 Hz sia attivato.
File supplementare 1: Sketch per Arduino. Implementa il rilevamento dell'inizio dello stimolo basato su fotodiodo: l'Arduino Uno campiona il fotodiodo, monitorando il quadrato indicatore bianco e nero sul display di presentazione (passaggio 1.4.2) a 1 kHz, converte il segnale analogico grezzo in un impulso digitale TTL pulito mediante confronto con una soglia e invia questo impulso come segnale verificato di temporizzazione dello stimolo (Canale 3, passaggio 6.2.1).Cliccare qui per scaricare questo file.
File supplementare 2: Esempio di file di stimolo. Esempio di file per software di presentazione (Keynote) che implementa lo stimolo visivo della barra in movimento come animazione di un singolo oggetto continuo e il quadrato indicatore bianco e nero per la verifica dei tempi (passaggio 1.4). I lettori che progettano le proprie sequenze di stimoli devono garantire che la visualizzazione rimanga stabile per un periodo adeguato di accomodamento prima di ogni inizio dello stimolo; il ciclo di retroazione fotodiodo/Arduino (passaggio 3.3) verifica i tempi effettivi dello stimolo indipendentemente dal software di presentazione o dalla progettazione delle diapositive utilizzati.Cliccare qui per scaricare questo file.
File supplementare 3: Strumento virtuale LabVIEW (VI). Configurare il DAQ NI USB-6343 con due canali di ingresso analogico — AI0 (segnale elettrofisiologico dall'amplificatore) e AI1 (TTL di inizio stimolo verificato da Arduino, segnale di retroazione del fotodiodo) — e un canale di uscita analogico, AO0, che invia un impulso TTL al mouse TTL al tempo di stimolo programmato per far avanzare la diapositiva del software di presentazione. Il file di output risultante in formato .txt registra tre colonne: il segnale elettrofisiologico (AI0), il timestamp registrato da LabVIEW del comando di trigger AO0 (una registrazione software, non un segnale reacquisito) e il TTL verificato da Arduino (AI1).Cliccare qui per scaricare questo file.
Tabella supplementare 1: Formato del file di input per SAS. Definizioni delle colonne e un esempio svolto per il foglio elettronico caricato su SAS per l'analisi statistica (passaggio 7.2.1). Quattro timestamp consecutivi del segnale del pacemaker, provenienti da una registrazione rappresentativa, illustrano il calcolo dell'intervallo interspiga (Intval) e del timestamp del punto medio (MidTime) utilizzati nel calcolo della frequenza; l'ultimo evento elencato non presenta valori di Intval/MidTime, poiché non esiste un timestamp successivo per completare l'intervallo.Cliccare qui per scaricare il file.
Discussione
Diversi passaggi di questo protocollo sono fondamentali per ottenere registrazioni affidabili. Il più importante è la fabbricazione e la preparazione dell'elettrodo a suzione. Sebbene qualsiasi elettrodo che ottimizzi il rapporto segnale-rumore sia accettabile per registrazioni standard del pacemaker evocate visivamente, una resistenza collegata di circa 1 MΩ diventa specificamente critica quando il preparato viene utilizzato per la somministrazione di uno stimolo elettrico incondizionato, poiché è necessaria per calcolare la corrente somministrata14. Ai soli fini della registrazione, il criterio principale è la qualità del segnale piuttosto che un valore specifico di resistenza.
Altrettanto critica è la calibrazione biologica del sistema ottico prima di iniziare le registrazioni (passaggio 4.1.5). Poiché l'output del proiettore, la configurazione delle lenti e la riflettanza dello schermo interagiscono per determinare l'irradianza effettiva all'occhio con lente inferiore, non è possibile specificare un valore di irradianza universalmente applicabile. La calibrazione biologica (che utilizza la risposta in frequenza del pacemaker a uno stimolo di contrasto massimo come criterio per il campo dinamico dei fotoricettori) fornisce un metodo autolvalidante e indipendente dall'apparecchiatura per stabilire l'intensità appropriata dello stimolo. Questo passaggio non deve essere omesso, poiché la saturazione dei fotoricettori causata da un'eccessiva irradianza annullerà le risposte del pacemaker evocate visivamente e potrebbe essere scambiata per un preparato non responsivo.
Mantenere l'immersione del rodopio durante tutta l'isolazione e il trasferimento è fondamentale. Il sistema nervoso rodopiale è estremamente sensibile alla disidratazione e anche una breve esposizione all'aria può danneggiare irreversibilmente il preparato. Tutti i passaggi di trasferimento devono essere eseguiti in presenza di acqua di mare, e la camera di registrazione deve essere riempita con acqua di mare del serbatoio filtrata a 0,20 µm prima di introdurre il rodopio.
Infine, il posizionamento dell'elettrodo sulla superficie del peduncolo sezionato richiede pazienza. I terminali nervosi epidermici del peduncolo non sono sempre identificabili visivamente, e il posizionamento corretto deve essere confermato dall'apparizione di segnali spontanei del pacemaker sull'oscilloscopio.
La causa più comune di fallimento della registrazione è la perdita della sigillatura dell'elettrodo durante la sessione. Per ridurre al minimo questo rischio, tutti i protocolli dovrebbero essere completati entro un'ora dall'isolamento del rofalo. Il limite di un'ora raccomandato qui è una scelta pratica conservativa, che riflette l'aspettativa generale secondo cui una preparazione neurale isolata, scollegata dal resto dell'animale, non può essere considerata rappresentativa in modo completo e indefinito della funzione fisiologica integra, anche quando l'attività del marcatempo persiste. I rofali isolati rimangono vitali, nel senso di generare segnali del marcatempo rilevabili, per un periodo notevolmente più lungo rispetto alla finestra di registrazione utilizzata in questo protocollo, fino a circa 5 h dopo l'isolamento; tuttavia, non è stato caratterizzato sistematicamente se le risposte registrate verso la fine di questa finestra rimangano pienamente rappresentative di una preparazione integra, e il limite di 1 h viene adottato come margine conservativo piuttosto che come soglia precisamente definita. La perdita progressiva della sigillatura dell'elettrodo è una modalità di fallimento tecnico distinta e facilmente identificabile ed è la causa più comune di perdita del segnale all'interno di una singola sessione di registrazione (vedi sotto), ma ciò non esclude un contributo dello stato della preparazione a cambiamenti più sottili della risposta nel tempo. Se si verifica una perdita di sigillatura durante una registrazione, è possibile rilasciare l'aspirazione, riposizionare l'elettrodo sulla superficie del peduncolo sezionato e riapplicare l'aspirazione. Tuttavia, se la preparazione è stata isolata da più di un'ora, è consigliabile iniziare una nuova preparazione piuttosto che investire tempo nel tentativo di risolvere i problemi di una preparazione in declino.
Le impostazioni del filtro devono essere considerate come punti di partenza piuttosto che parametri fissi. I valori del filtro passabanda specificati in questo protocollo (filtro passa-alto a 1 Hz, filtro passa-basso a 500 Hz, filtro notch a 50/60 Hz) sono quelli che ottimizzano il rapporto segnale-rumore nell'ambiente di registrazione degli autori. Laboratori con livelli diversi di interferenza elettrica, o che utilizzano modelli diversi di amplificatore, potrebbero dover regolare empiricamente queste impostazioni sui controlli dell'amplificatore, monitorando il segnale sul display dell'oscilloscopio all'inizio di ogni sessione.
Se non è presente un'attività pacemaker spontanea dopo il posizionamento dell'elettrodo, è necessario valutare il preparato prima di procedere alla risoluzione dei problemi relativi all'elettrodo. Un ropalio isolato sano mostrerà segnali pacemaker spontanei a una frequenza di 0,5–1 Hz entro pochi minuti dal posizionamento dell'elettrodo. L'assenza di attività spontanea riflette più comunemente un danno al preparato durante l'isolamento o il trasferimento, piuttosto che un malfunzionamento dell'elettrodo. Al contrario, se è presente un'attività spontanea ma non si ottiene alcuna risposta evocata visivamente, è necessario ripetere la calibrazione ottica prima di concludere che il preparato non risponde.
Per laboratori che adattano questo protocollo a hardware diversi, la catena di verifica della temporizzazione costituita dal mouse TTL e dall'Arduino Uno descritta al passaggio 3.3 può essere sostituita da qualsiasi sistema in grado di fornire un registro della finestra di stimolo a livello hardware, indipendente dal software e acquisito in modo sincrono con la traccia elettrofisiologica. L'implementazione specifica qui descritta è stata sviluppata per collegare l'ambiente di acquisizione LabVIEW su un PC al software di presentazione su un computer separato, rappresentando una soluzione ingegneristica pratica a una sfida comune di integrazione tra piattaforme diverse. Il principio fondamentale secondo cui i trigger software da soli non sono sufficienti per un'analisi precisa della temporizzazione tra stimolo e risposta vale indipendentemente dalla piattaforma hardware specifica utilizzata.
Il limite principale della preparazione del ropalio isolato è che registra da un singolo ropalio in isolamento. Nell'animale integro, i quattro ropalii sono connessi tramite il nervo anulare15 e i loro segnali in uscita vengono integrati per produrre un comportamento natatorio coordinato. La comunicazione tra ropalii non è accessibile in questa preparazione. Tuttavia, ai fini dello studio dell'elaborazione delle informazioni visive all'interno di un singolo sistema nervoso ropaliale, questo isolamento rappresenta un vantaggio piuttosto che uno svantaggio. Esso elimina l'influenza disturbante degli input provenienti da altri ropalii e permette di caratterizzare completamente le proprietà di risposta visiva di un singolo SNC.
L'isolamento del roplio esclude anche il contesto sensoriale multimodale al di fuori dello stesso roplio; i presunti chemioricettori descritti anatomicamente sulla sua superficie17 non sono stati funzionalmente associati alla risposta del pacemaker, quindi il segnale può essere ragionevolmente interpretato come una lettura dell'elaborazione visiva, per lo più non complicata da input non visivi. Una limitazione più fondamentale è che la registrazione extracellulare del nervo del peduncolo cattura soltanto il segnale integrato di uscita motoria trmOC. I singoli contributi subOC all'elaborazione visiva non possono essere risolti elettrofisiologicamente; ciò richiede approcci di imaging in vivo con risoluzione spaziale. Il metodo elettrofisiologico qui descritto è pertanto una misura del comando motorio finale integrato, non dei passaggi intermedi di elaborazione all'interno del RNS.
Questo ha un'importante conseguenza pratica: il protocollo di elettrofisiologia del rofalo isolato non è un metodo autonomo. È fondamentale eseguire un'analisi comportamentale dell'animale intero prima di progettare esperimenti con rofali isolati, al fine di stabilire quali stimoli visivi inducono comportamenti che modificano la frequenza delle contrazioni della campana. I comportamenti che non producono un cambiamento nella frequenza del segnale del pacemaker non possono essere valutati mediante questo approccio. Il rilevamento elettrofisiologico misura specificamente l'output motorio della nuotata, e i disegni sperimentali devono basarsi su una caratterizzazione comportamentale preliminare per garantire che gli stimoli scelti influenzino effettivamente questo output.
Il successo della registrazione e la classificazione del segnale dipendono entrambi dall'esperienza dell'operatore. Circa il 90% delle preparazioni che soddisfano il criterio di vitalità durante l'acclimatazione (passaggio 6.1.6) produce un'attività spontanea stabile e una risposta evocata visivamente misurabile nelle mani di un operatore esperto; si prevede che questa proporzione sia inferiore nelle fasi iniziali del percorso di apprendimento. La discriminazione del segnale tra forme d'onda simili a quelle del pacemaker e potenziali d'azione (passaggio 7.1.2) è stata eseguita da un singolo operatore esperto in questo studio; poiché la valutazione formale dell'affidabilità tra osservatori richiede più osservatori indipendenti, non è stato possibile calcolare una statistica di accordo tra osservatori. L'uniformità interna è stata invece mantenuta confrontando le forme d'onda ambigue con un segnale di identità nota all'interno della stessa registrazione, tipicamente una risposta evocata al contrasto massimo.
Le scelte relative a hardware e software in questo protocollo — una lente di proiettore modificata, un mouse TTL personalizzato, la catena temporale Arduino e LabVIEW/Igor Pro/SAS — riflettono l'equipaggiamento e le competenze già disponibili nel laboratorio degli autori, piuttosto che un requisito obbligatorio del metodo. La lente del proiettore è stata modificata perché la configurazione standard non soddisfaceva i requisiti dell'allestimento. Il mouse TTL collega il computer dello stimolo e il computer di acquisizione: LabVIEW invia un impulso TTL al mouse e registra l'istante di invio (Canale 2), e il clic del mouse attiva la generazione dello stimolo tramite USB. Poiché il ritardo tra questo trigger registrato e il reale cambiamento sullo schermo è variabile, una catena indipendente composta da un fotodiodo e da Arduino verifica l'effettivo inizio dello stimolo e invia un secondo segnale TTL al DAQ (Canale 3); potrebbe esistere un'alternativa commerciale al mouse, ma gli autori non ne sono a conoscenza. Nessuno di questi componenti hardware richiede competenze specializzate di fabbricazione né costi elevati, e qualsiasi sistema di acquisizione sostitutivo deve semplicemente soddisfare lo stesso requisito di campionamento multi-canale sincronizzato a 1 kHz, oltre alle competenze elettroniche o di programmazione necessarie. Con una sola eccezione: la personalizzazione di un opportuno amplificatore analogico richiede competenze nella progettazione di circuiti a basso rumore che non vengono date per scontate nel lettore.
T. cystophora combina la sofisticazione visiva di sistemi geneticamente accessibili come Drosophila e il pesce zebra con la trattabilità a livello di circuito di sistemi numericamente semplici come C. elegans: il sistema nervoso ropaliale comprende circa 1000 neuroni, rispetto a circa 200.000 nel cervello di Drosophila1 e 302 nell'intero sistema nervoso di C. elegans2. Un ulteriore vantaggio di questo sistema è la sua gerarchia sensoriale: T. cystophora possiede diverse modalità sensoriali, tra cui la meccanoricezione (implicata funzionalmente nell'apprendimento associativo14) e una presunta chemioricezione (descritta anatomicamente ma non dimostrata funzionalmente17), oltre alla visione. Tuttavia, nel preparato ropaliale isolato, solo la visione è stata dimostrata funzionalmente in grado di guidare la risposta del pacemaker valutata mediante questo protocollo, consentendo di interpretare il segnale come un indicatore relativamente privo di interferenze dell'elaborazione visiva, senza le complicazioni interpretative che sorgono quando più sensi attivi simultaneamente modulano congiuntamente una risposta comportamentale. Gli stimoli visivi possono essere definiti con precisione in termini di spazio, tempo e contrasto, mentre il segnale del pacemaker può essere utilizzato come indicatore quantitativo dell'output motorio guidato dalla visione, rilevante per il comportamento dell'animale nel suo insieme14.
Oltre all'elettrofisiologia visiva, il preparato isolato di ròpalo è stato applicato con successo allo studio farmacologico del sistema nervoso radiale (RNS) mediante saggi con neurotrasmettitori e neuromodulatori somministrati nel bagno, consentendo l'identificazione dei sistemi di trasmettitori che modulano l'attività del pacemaker24. Il preparato si presta anche a tecniche di imaging del calcio e del potenziale di membrana. Lavori preliminari non pubblicati effettuati nel laboratorio degli autori, utilizzando un indicatore del calcio permeabile alle cellule, confermano la fattibilità dell'imaging del calcio con questo preparato; l'imaging del potenziale di membrana invece non è ancora stato testato. Tali approcci potrebbero verificare direttamente l'architettura stessa della rete subOC–trmOC, che al momento rimane un modello operativo, e fornirebbero la risoluzione spaziale necessaria per analizzare separatamente l'attività di subOC e trmOC durante la stimolazione visiva, una capacità che la registrazione extracellulare da sola non può offrire. Nel complesso, questi approcci complementari collocano il ròpalo isolato di T. cystophora come un preparato altamente accessibile per indagini a livello di sistema dell'elaborazione visiva e dell'integrazione sensorimotoria in un sistema nervoso di complessità definita e limitata.
Dichiarazioni
Gli autori dichiarano di non avere interessi concorrenti.
Ringraziamenti
Gli autori ringraziano Dan-eric Nilsson per aver fornito l'immagine del ropalio (Figura 1B), l'assistenza tecnica offerta da Mathias Hoppe, Ingo Klein, Olaf Wendt e Holger Voigt (Università di Kiel) e il supporto dei membri del gruppo di Biologia Sensoriale (Università di Copenaghen) per la manutenzione delle colture. Finanziato dalla Deutsche Forschungsgemeinschaft (DFG, Fondazione tedesca per la ricerca) – Project-ID 567357102 (J.B.)
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| Piastra di Petri da 35 mm | Nunc | 153066 | Qualsiasi piastra di Petri equivalente adatta |
| Arduino Uno | Arduino | — | Converte il segnale del fotodiodo in TTL per la verifica del timing dello stimolo; frequenza di aggiornamento 1 kHz |
| Lente biconvessa f = 30 mm | Linos | G063-022-000 | Sostituita alla lente del produttore; focalizza l'immagine sulla parete dello schermo di proiezione della camera di registrazione |
| Capillare in vetro borosilicato, diametro interno 1,16 mm × diametro esterno 2,00 mm × lunghezza 80 mm | Science Products | GB200-8P | Per la fabbricazione dell'elettrodo a sifone |
| Pipetta monouso per trasferimento | Sarstedt | 86.1171 | Punta tagliata per ottenere un'apertura di circa 8 mm per il trasferimento dell'animale |
| Portaelettrodo PPH-OP-BNCPC | ALA Scientific Instruments | PPH-OP-BNCPC | Portaelettrodo di tipo BNC con attacco per sifone; fornito con filo d'argento di circa 0,25 mm |
| Amplificatore extracellulare EXT-10-2F | NPI Electronic | — | Amplificatore differenziale in corrente alternata; preamplificatore ×10, amplificatore principale ×100, guadagno totale ×1000; filtro passabanda integrato: passa-alto 1 Hz, passa-basso 500 Hz; filtro notch 50/60 Hz attivato; fornito con braccio per preamplificatore |
| Coverslip per emocitometro 20 mm × 26 mm | Carl Roth | L 189 | Si appoggia sui risalti della camera per emopoiesi grazie alla galleggiabilità negativa; più robusta dei comuni coverslip |
| Igor Pro 6.37 | WaveMetrics Inc. | Versione 6.37 | Lake Oswego, OR, USA; per l'analisi del segnale del pacemaker |
| LabVIEW 2016 | National Instruments | Versione 2016 | Software per acquisizione e controllo degli stimoli; VI fornito come materiale supplementare |
| Siringa con attacco Luer-lock | — | — | Generica; qualsiasi siringa standard con attacco Luer-lock adatta |
| Microforgiatrice MF-2 | Narishige | — | Per la lucidatura della punta dell'elettrodo (Opzione A) |
| Micromanipolatore MM33 | Märzhäuser Wetzlar | 00-42-101-0000 (destro) / 00-42-102-0000 (sinistro) | Manuale, tre assi; ne sono necessari due (per pipetta di tenuta ed elettrodo di registrazione) |
| Tiratore di micropipette, Flaming/Brown P-1000 | Sutter Instrument | P-1000 | Programma di trazione: Linea 1×1: riscaldamento 535, trazione 0, velocità 12, tempo 200, pressione 600, rampa 540; Linee 2–4 × 3: riscaldamento 532, trazione 0, velocità 12, tempo 100 |
| Plugin Neuromatic v2.00 | — | Versione 2.00 | Per Igor Pro; discriminazione del segnale del pacemaker ed estrazione dei timestamp |
| Filtro neutro | Thorlabs | NE10A | Trasmissione del 10%; attenuazione da verificare empiricamente mediante calibrazione biologica (passo 4.1) |
| DAQ NI USB-6343 | National Instruments | 781438-01 | DAQ multifunzione a 16 bit; acquisizione di elettrofisiologia, consegna di stimoli TTL al mouse, ingresso TTL per Arduino; frequenza di campionamento 1 kHz |
| Proiettore DLP Optoma ML750 | Optoma | ML750 | Sistema ottico del produttore rimosso; sostituito con una singola lente biconvessa f = 30 mm |
| Oscilloscopio DS1102E | Rigol | DS1102E | Per il monitoraggio in tempo reale del segnale durante il posizionamento dell'elettrodo e l'ottimizzazione del filtro |
| Pipetta di Pasteur da 150 mm | Carl Roth | 4518 | Per il trasferimento del ropalio |
| Fotodiodo BRW21 | OSRAM | BRW21 | Fotodiodo al silicio; monitora il quadrato indicatore bianco e nero sullo schermo del computer |
| SAS | SAS Institute Inc. | doi: 10.17632/csgymw8kjk.1 | Cary, NC, USA; analisi statistica della risposta del pacemaker; codice disponibile all'indirizzo doi: 10.17632/csgymw8kjk.1 |
| Tubulatura in silicone | Erich Eydam KG | 9205000 | Per il collegamento a sifone tra portaelettrodo e siringa |
| Filtro per siringa Filtropur S, 0,20 µm PES | Sarstedt | 83.1826.001 | Per filtrare l'acqua di mare del serbatoio di coltura destinata alla camera di registrazione e alle capsule di preparazione |
| Forbici di Vannas | World Precision Instruments | 500086 | Lama 0,025 mm × 0,015 mm; per la sezione del peduncolo ropaliale |
| WTE var 3185 | Assistent | — | Termostato per bagno termoregolato |
Riferimenti
- Raji JI, Potter CJ. The number of neurons in Drosophila and mosquito brains. PLoS ONE. 2021;16(5):e0250381.
- Sasakura H, Mori I. Behavioral plasticity, learning, and memory in C. elegans. Curr Opin Neurobiol. 2013;23(1):92-99.
- Bielecki J, et al. Pattern recognition in the box jellyfish rhopalial nervous system mimicked by an ensemble of pulsed coupled oscillators. Springer Series on Bio- and Neurosystems. Springer, Cham, 2024.
- Bielecki J, Garm A. Vision made easy: Cubozoans can advance our understanding of systems-level visual information processing. Marine organisms as model systems in biology and medicine. Springer, Cham, 2018.
- Nilsson D-E, Gislén L, Coates MM, Skogh C, Garm A. Advanced optics in a jellyfish eye. Nature. 2005;435(7039):201-205.
- Yatsu N. Notes on the physiology of Charybdea rastonii. J Coll Sci Imp Univ Tokyo. 1917;40:1-12.
- Bielecki J, et al. Ocular and extraocular expression of opsins in the rhopalium of Tripedalia cystophora (Cnidaria: Cubozoa). PLoS One. 2014;9(6):e98870.
- Plachetzki DC, Degnan BM, Oakley TH. The origins of novel protein interactions during animal opsin evolution. PLoS One. 2007;2(10):e1054.
- Koyanagi M, et al. Jellyfish vision starts with cAMP signaling mediated by opsin-Gs cascade. Proc Natl Acad Sci U S A. 2008;105(40):15576-15580.
- Kozmik Z, et al. Assembly of the cnidarian camera-type eye from vertebrate-like components. Proc Natl Acad Sci U S A. 2008;105(26):8989-8993.
- Garm A, Oskarsson M, Nilsson D-E. Box jellyfish use terrestrial visual cues for navigation. Curr Biol. 2011;21(9):798-803.
- Buskey E. Behavioral adaptations of the cubozoan medusa Tripedalia cystophora for feeding on copepod (Dioithona oculata) swarms. Mar Biol. 2003;142(2):225-232.
- Garm A, Mori S. Multiple photoreceptor systems control the swim pacemaker activity in box jellyfish. J Exp Biol. 2009;212(24):3951.
- Bielecki J, Dam Nielsen SK, Nachman G, Garm A. Associative learning in the box jellyfish Tripedalia cystophora. Curr Biol. 2023;33(19):4150-4159.e5.
- Garm A, Poussart Y, Parkefelt L, Ekström P, Nilsson D-E. The ring nerve of the box jellyfish Tripedalia cystophora. Cell Tissue Res. 2007;329(1):147-157.
- Garm A, Hedal I, Islin M, Gurska D. Pattern- and contrast-dependent visual response in the box jellyfish Tripedalia cystophora. J Exp Biol. 2013;216(24):4520-4529.
- Skogh C, Garm A, Nilsson D-E, Ekström P. Bilaterally symmetrical rhopalial nervous system of the box jellyfish Tripedalia cystophora. J Morphol. 2006;267(12):1391-1405.
- Nielsen SKD, Koch TL, Wiisbye SH, Grimmelikhuijzen CJP, Garm A. Neuropeptide expression in the box jellyfish Tripedalia cystophora—new insights into the complexity of a "simple" nervous system. J Comp Neurol. 2021;529(11):2865-2882.
- Satterlie RA, Spencer AN. Swimming control in a cubomedusan jellyfish. Nature. 1979;281(5727):141-142.
- Garm A, Bielecki J. Swim pacemakers in box jellyfish are modulated by the visual input. J Comp Physiol A. 2008;194(7):641.
- Govardovskii VI, Fyhrquist N, Reuter T, Kuzmin DG, Donner K. In search of the visual pigment template. Vis Neurosci. 2000;17(4):509-528.
- Garm A, Coates MM, Gad R, Seymour J, Nilsson D-E. The lens eyes of the box jellyfish Tripedalia cystophora and Chiropsalmus sp. are slow and color-blind. J Comp Physiol A. 2007;193(5):547-557.
- Stamatis S-A, Worsaae K, Garm A. Regeneration of the rhopalium and the rhopalial nervous system in the box jellyfish Tripedalia cystophora. Biol Bull. 2018;234(1):22-36.
- Bielecki J, Nachman G, Garm A. Swim pacemaker response to bath applied neurotransmitters in the cubozoan Tripedalia cystophora. J Comp Physiol A. 2013;199(9):785-797.
- Bielecki J, Høeg JT, Garm A. Fixational eye movements in the earliest stage of metazoan evolution. PLoS ONE. 2013;8(6):e66442.