Analisi integrate di bioinformatica e sperimentali hanno identificato LINC01871 come un possibile predittore della sensibilità agli inibitori della chinasi dipendente dai ciclini 4/6 e hanno mostrato che il sovraespressione di LINC01871 inibisce la proliferazione del cancro al seno ed è associata a una ridotta segnalazione NF-κB.
Articolo di ricerca
Sensibilità agli inibitori delle chinasi ciclina-dipendenti 4/6 mediata da LINC01871 nel cancro al seno umano
In questo articolo
Sommario
Abstract
Il cancro al seno rimane la neoplasia più frequentemente diagnosticata nelle donne e la resistenza agli inibitori delle chinasi dipendenti dalle cicline 4 e 6 (CDK4/6) limita l'efficacia del trattamento a lungo termine. Questo studio ha avuto lo scopo di identificare RNA non codificanti lunghi (lncRNA) associati alla sensibilità predetta agli inibitori delle CDK4/6 e di indagare le loro funzioni biologiche nel cancro al seno. Sono stati integrati dati trascrittomici provenienti da The Cancer Genome Atlas (TCGA) e dati sulla sensibilità ai farmaci provenienti dal database Genomics of Drug Sensitivity in Cancer 2 (GDSC2), e la sensibilità ai farmaci è stata predetta utilizzando l'algoritmo oncoPredict. Gli lncRNA candidati sono stati identificati mediante analisi dell'espressione differenziale, analisi della rete di co-espressione genica pesata, analisi prognostica e apprendimento automatico. Le funzioni biologiche di LINC01871 sono state successivamente valutate mediante esperimenti in vitro e in vivo. Sono stati identificati 62 lncRNA associati alla sensibilità predetta a ribociclib e palbociclib, e sono stati selezionati sei lncRNA principali. LINC01871 ha mostrato la maggiore capacità discriminatoria per la sensibilità predetta ai farmaci. L'iperespressione di LINC01871 è risultata associata a un aumento della sensibilità delle cellule tumorali del seno a ribociclib e palbociclib, all'inibizione della proliferazione cellulare, alla promozione dell'apoptosi e alla soppressione della via di segnalazione del fattore nucleare kappa B (NF-κB). L'analisi trascrittomica a singola cellula ha dimostrato un'elevata espressione di LINC01871 nelle cellule T e nelle cellule natural killer (NK), mentre le analisi del coinvolgimento immunitario basate sul trascrittoma hanno mostrato che un'elevata espressione di LINC01871 è associata a un maggiore infiltrato immunitario. Questi risultati identificano LINC01871 come un biomarcatore candidato della sensibilità agli inibitori delle CDK4/6 e ne dimostrano gli effetti soppressori del tumore nel cancro al seno. Sono necessari ulteriori studi clinici e meccanicistici per convalidare il suo valore predittivo e la sua rilevanza terapeutica.
Introduzione
Il cancro al seno rimane una delle principali cause di mortalità per cancro tra le donne in tutto il mondo, nonostante i continui progressi nella sua gestione clinica1,2. Il trattamento si è progressivamente ampliato oltre la terapia endocrina e la chemioterapia, includendo approcci mirati di tipo molecolare3. Tra questi, gli inibitori delle chinasi dipendenti dalle cicline 4 e 6 (CDK4/6), come ribociclib, palbociclib e abemaciclib, hanno prodotto significativi benefici clinici nei tumori del seno positivi per il recettore degli estrogeni e/o per il recettore del progesterone4,5,6. Tuttavia, un trattamento prolungato può essere accompagnato da resistenza acquisita, che limita la durata del beneficio terapeutico7.
L'inibizione di CDK4/6 agisce principalmente attraverso l'asse regolatorio del ciclo cellulare Rb–E2F. L'inibizione dell'attività di CDK4/6–ciclina D riduce la fosforilazione della proteina del retinoblastoma (Rb), consentendo a Rb ipofosforilata di inibire la trascrizione dipendente da E2F e, di conseguenza, promuovere l'arresto nella fase G1 e limitare la proliferazione delle cellule tumorali8. Sebbene siano stati caratterizzati diversi meccanismi che contribuiscono alla resistenza agli inibitori di CDK4/6, questi non spiegano completamente le differenze nella risposta al trattamento. Tali meccanismi includono l'attivazione anomala della via fosfatidilinositolo 3-chinasi/proteina chinasi B/target mammalico della rapamicina (PI3K/AKT/mTOR) e un aumento dell'espressione dei complessi ciclina–CDK9,10. È importante notare che le componenti della via PI3K/AKT/mTOR sono esse stesse bersagli terapeutici nelle malattie avanzate11. Nel complesso, queste osservazioni indicano che ulteriori determinanti molecolari della sensibilità e resistenza agli inibitori di CDK4/6 rimangono da identificare. La rilevanza clinica dei biomarcatori predittivi è illustrata da strategie emergenti guidate da biomarcatori per il carcinoma mammario metastatico positivo per i recettori ormonali. L'analisi seriale del DNA tumorale circolante (ctDNA), ad esempio, può rilevare l'insorgenza di mutazioni in ESR1 durante un trattamento basato su inibitori di CDK4/6. Gli studi PADA-1 e SERENA-6 hanno dimostrato che tale rilevamento molecolare può guidare un precoce cambiamento della terapia endocrina mantenendo l'inibizione di CDK4/612,13. Tuttavia, le mutazioni in ESR1 rappresentano soltanto un determinante della risposta terapeutica e non possono spiegare tutti i casi di sensibilità o resistenza. Questa limitazione assume un'importanza clinica crescente poiché i pazienti affetti da carcinoma mammario metastatico positivo per i recettori ormonali e negativo per HER2, che progrediscono durante un trattamento basato su inibitori di CDK4/6, ora dispongono di diverse opzioni terapeutiche successive, tra cui degraderi orali selettivi del recettore degli estrogeni, inibitori della via PI3K/AKT e anticorpi coniugati a farmaci. L'identificazione di ulteriori biomarcatori candidati associati a una diversa sensibilità agli inibitori di CDK4/6 potrebbe quindi aiutare a distinguere i pazienti con maggiori probabilità di trarre beneficio da queste terapie da quelli che potrebbero necessitare di un adattamento terapeutico più precoce.
Gli RNA non codificanti lunghi (lncRNA) sono trascritti privi di capacità di codifica proteica che partecipano alla regolazione di numerosi processi biologici. Diversi lncRNA sono stati associati alla progressione del cancro e alla risposta al trattamento. Nel carcinoma a cellule squamose orale, LOC100506114 è stato descritto come promotore della proliferazione e della migrazione attraverso l'interazione con il fattore di trascrizione RUNX e la conseguente regolazione dell'espressione genica a valle14. Nel cancro al seno, HISLA è stato associato a un aumento della glicolisi e a una maggiore resistenza all'apoptosi15, mentre LINC02568 contribuisce alla resistenza endocrina attraverso la regolazione di ESR1 e CA1216. Nonostante il riconosciuto coinvolgimento degli lncRNA nella biologia del cancro, la loro relazione con la resistenza agli inibitori di CDK4/6 rimane insufficientemente caratterizzata. In questo studio, è stata utilizzata una strategia integrata basata su multi-omics e apprendimento automatico per identificare lncRNA associati alla sensibilità predetta al ribociclib e al palbociclib, da cui è emerso LINC01871 come candidato. Successivamente, abbiamo esaminato l'associazione di LINC01871 con la sensibilità a entrambi i farmaci e ne abbiamo valutato gli effetti sulla proliferazione delle cellule tumorali del seno mediante approcci sperimentali in vitro e in vivo.
Protocollo
All procedures involving animals were performed under institutional animal-welfare requirements and received approval from the Animal Ethical and Welfare Committee of Fujian Cancer Hospital & Fujian Medical University Cancer Hospital (Approval No. SQ2021-159-01).
Data acquisition
Bulk transcriptomic profiles were downloaded from TCGA in January 2025 and converted to transcripts per million (TPM) before downstream analysis. Single-cell RNA-sequencing data were obtained from the Gene Expression Omnibus (GEO), using dataset GSE161529.
Drug sensitivity estimation of ribociclib and palbociclib
GDSC2 data were used to train the drug-response prediction model, and TCGA-BRCA transcriptomic profiles were used as the test dataset. Clinical information required for the subgroup analysis was retrieved from the TCGA Pan-Cancer Atlas Clinical with Follow-up dataset. Four clinical variables were considered: ER status (breast_carcinoma_estrogen_receptor_status), PR status (breast_carcinoma_progesterone_receptor_status), HER2 status determined by IHC (lab_proc_her2_neu_immunohistochemistry_receptor_status), and HER2 status determined by FISH (lab_procedure_her2_neu_in_situ_hybrid_outcome_type). A tumor was classified as HR-positive if either ER or PR was annotated as “Positive.” A tumor was classified as HER2-negative when at least one of the HER2 IHC or FISH results was negative and neither test had a positive result. Cases for which HR or HER2 status could not be definitively determined were excluded. Using these criteria, 601 patients were identified as HR-positive/HER2-negative. Among them, 599 had corresponding records in both the Pan-Cancer clinical dataset and the TCGA-BRCA expression matrix and were included in the subgroup analysis. Ribociclib and palbociclib IC₅₀ values were estimated with the oncoPredict R package (version 1.2) using default parameters. Scatter plots generated with ggplot2 were used to display the distribution of predicted IC₅₀ values among patients. Patients within the highest 25% of predicted IC₅₀ values were designated as resistant, whereas those within the lowest 25% were designated as sensitive.
Identification of CDK4/6 inhibitor resistance–related genes
Differential expression between the predicted sensitive and resistant groups was assessed using the limma package, and the resulting gene-expression patterns were displayed as volcano plots with ggplot2. Weighted gene co-expression network analysis (WGCNA) was then conducted with the WGCNA package to identify expression modules associated with resistance to both CDK4/6 inhibitors. Genes shared across the four resulting datasets were identified and illustrated using the VennDiagram package. The intersecting genes were subsequently evaluated by Kaplan–Meier survival analysis and univariate Cox regression using the survival and survminer packages, with corresponding survival curves generated for visualization. Genes reaching statistical significance in both survival analyses were entered into LASSO regression with the glmnet package to select core prognostic factors. The ability of the selected genes to discriminate predicted drug resistance was then assessed by ROC analysis using pROC, with performance quantified by the area under the ROC curve. AUC values for the different drugs were compared graphically using bar plots generated with ggplot2.
Single-gene analysis of LINC01871
LINC01871 expression was first compared between tumor and normal tissues by differential expression analysis. Its prognostic association across multiple cancer types was subsequently examined by Kaplan–Meier survival analysis and univariate Cox regression using the survival and survminer R packages. Differences in LINC01871 expression among clinicopathological groups were assessed with the Wilcoxon rank-sum test and displayed as boxplots using ggpubr. For the single-cell RNA-sequencing analysis, data preprocessing and downstream analysis were carried out with Seurat. Inter-batch variation was corrected using Harmony with its default parameter settings. Following batch correction, the resulting cell clusters were represented in a UMAP embedding. Cell identities were then assigned automatically with SingleR using reference transcriptomic profiles.
Functional enrichment analysis
Genes showing differential expression between the high- and low-LINC01871 groups were determined with the limma package. In parallel, Pearson correlation analysis was used to identify mRNAs whose expression levels were correlated with LINC01871 expression. GO and KEGG enrichment analyses were subsequently conducted with clusterProfiler. The resulting enrichment profiles were presented as bar and bubble plots generated using ggplot2.
Immune infiltration analysis
Immune cell infiltration was initially characterized using CIBERSORT with the LM22 signature matrix, which was applied to estimate the relative distribution of 22 immune cell populations. Differences in these estimates between the high- and low-LINC01871 expression groups were visualized using ggpubr. Stromal, immune, and ESTIMATE scores were then calculated for individual samples with the estimate package and displayed as violin plots. In addition, single-sample gene set enrichment analysis (ssGSEA) was performed using the GSVA package to estimate the relative abundance of immune cell populations in each sample. Differences in the resulting immune infiltration estimates between the two LINC01871 expression groups were evaluated and visualized with ggpubr.
Cell culture
MDA-MB-231, MCF-10A, and HEK293T cell lines were used in this study. MDA-MB-231 and HEK293T cells were grown in DMEM containing 10% fetal bovine serum, whereas MCF-10A cells were maintained in medium specifically formulated for this cell line. Cultures were kept at 37°C under humidified conditions with 5% CO₂. To establish LINC01871-overexpressing cells, the LINC01871 overexpression construct and lentiviral packaging plasmids were co-transfected into HEK293T cells for lentiviral production. Virus-containing supernatant was subsequently harvested and used to transduce MDA-MB-231 cells. Transduced cells were selected with 1 μg/mL puromycin. Wild-type control and transduced cells were both subjected to puromycin treatment, and selection was terminated after 3–4 days once all wild-type control cells had died.
Reverse transcription quantitative polymerase chain reaction (RT-qPCR)
Cellular RNA was isolated using RNAiso Plus reagent, and RNA concentrations were adjusted to equivalent levels before reverse transcription. Complementary DNA (cDNA) was generated with a reverse transcription kit following the manufacturer’s protocol. RT-qPCR amplification began with denaturation at 95°C for 30 s and was followed by 40 cycles consisting of 95°C for 5 s, 60°C for 30 s, and 72°C for 30 s. Transcript abundance was determined by the 2−ΔΔCt method using GAPDH for normalization. Primer sequences used for the analysis are listed in Supplementary Table 1.
Cell proliferation and cytotoxicity assays
For assessment of drug cytotoxicity, 8,000 cells per well were plated in 96-well plates and allowed to grow for 24 h. The culture medium was subsequently exchanged for fresh medium containing the indicated drug concentrations, followed by a further 24 h of incubation. CCK-8 reagent was then applied, and the plates were maintained in the dark for 2 h before absorbance was recorded at 450 nm. These measurements were used to construct drug dose–response curves and determine IC₅₀ values. For proliferation measurements, cells were prepared at a density of 1,000 cells/mL, and 100 μL of the cell suspension was added to each well of a 96-well plate. CCK-8 measurements were performed at 24 h intervals. At each time point, the reagent was added and the plates were incubated in the dark for 2 h before absorbance was measured at 450 nm to assess cell proliferation.
Colony formation assay
For colony formation experiments, 1,000 cells were plated per well in 6-well plates, with three replicates included for each experimental group. Cells were maintained for 1–2 weeks to permit visible colony development. The medium was then discarded, and the cells were fixed in 4% paraformaldehyde, rinsed with PBS, and subsequently stained with 1% crystal violet.
5-Ethynyl-2′-deoxyuridine incorporation assay
Cells from each experimental group were plated in 12-well plates and maintained overnight. The following day, cells were exposed to the EdU working solution for 2 h. After fixation and permeabilization, EdU labeling was carried out, followed by nuclear counterstaining with Hoechst. Fluorescence microscopy was then used to acquire images for evaluation of EdU incorporation.
Western blot
Cells were lysed in RIPA buffer supplemented with protease and phosphatase inhibitors to obtain total protein. Protein concentrations were quantified by BCA assay. Following addition of loading buffer, the protein samples were denatured at 95°C and resolved by SDS–PAGE before transfer to PVDF membranes. The membranes were blocked at room temperature for 1 h and subsequently incubated with the designated primary antibodies at 4°C overnight (Supplementary Table 2). After three TBST washes, the corresponding secondary antibodies were applied for 45 min at room temperature. Protein signals were detected by enhanced chemiluminescence (ECL) and subsequently imaged. GAPDH or β-actin served as the loading control.
Flow cytometry analysis
For cell-cycle assessment, cells were collected by trypsinization, rinsed with PBS, and fixed overnight in 70% ethanol at 4°C. The fixed cells were washed again with PBS and incubated with a cell-cycle detection reagent before flow cytometric measurement. For apoptosis assessment, harvested cells were washed with PBS and suspended in binding buffer. The cell suspension was stained with Annexin V and propidium iodide (PI) for 10–15 min at room temperature under light-protected conditions. Flow cytometry was subsequently performed to quantify the apoptotic cell populations.
Xenograft mouse models
In vivo experiments were conducted using five-week-old NOD/ShiLtJGpt immunodeficient mice. Animals were maintained in a specific pathogen-free (SPF) facility on a 12 h light/dark schedule, with no more than four animals housed in each cage. Before tumor-cell implantation, mice were anesthetized by inhaled isoflurane. Following confirmation of adequate anesthesia, the animals were allocated to two groups and received abdominal fat-pad injections of either control or LINC01871-overexpressing MDA-MB-231 cells. Tumor growth was designated as the primary outcome. Tumor dimensions were recorded with calipers at intervals of 3–4 days. Tumor volume was determined as V = ( L x W2 ) / 2', where L denotes the longest tumor diameter and W the shortest, with volume expressed in mm3. The study was terminated before any tumor reached a maximum diameter of 1.5 cm or a volume of 2,000 mm3. At the experimental endpoint, mice were anesthetized with isoflurane, and cervical dislocation was performed only after deep anesthesia had been confirmed. Animals were euthanized before the scheduled endpoint if substantial signs of distress were observed, including lethargy, weight loss, hunched posture, or inability to eat or drink. At study completion, tumors were removed and subsequently weighed and imaged.
Statistical analysis
Data analyses were conducted using GraphPad Prism version 10.3.1 and R version 4.3.1. The statistical method applied to each comparison was selected according to the study design and distribution of the corresponding data. As appropriate, analyses included Student’s t-test, paired t-test, Wilcoxon signed-rank test, Mann–Whitney U test, one-way or two-way analysis of variance (ANOVA), Kaplan–Meier analysis with the log-rank test, univariate Cox proportional hazards regression, and Pearson or Spearman correlation analysis. Statistical significance was defined using a two-sided P value <0.05.
Risultati
LINC01871 è strettamente associato alla sensibilità a ribociclib e palbociclib
I valori previsti di IC50 per ribociclib e palbociclib sono stati stimati per i pazienti del gruppo TCGA-BRCA utilizzando i dati GDSC2 e ordinati in modo crescente. I pazienti appartenenti al quartile più basso dei valori previsti di IC50 sono stati assegnati al gruppo sensibile, mentre quelli appartenenti al quartile più alto sono stati assegnati al gruppo resistente (Figura 1A,B). Il confronto tra questi gruppi ha identificato lncRNA espressi in modo differenziale per ciascun farmaco (Figura supplementare 1A,B). L'analisi WGCNA ha inoltre identificato moduli di lncRNA significativamente associati alla sensibilità prevista a ribociclib e palbociclib (Figura 1C,D; Figura supplementare 1C,D). L'integrazione dei quattro insiemi genici risultanti ha prodotto 62 lncRNA condivisi (Figura 1E), di cui 18 erano significativamente associati alla prognosi sia nell'analisi di regressione di Cox univariata che nelle analisi di sopravvivenza di Kaplan-Meier. Successivamente, è stata applicata la regressione LASSO per affinare ulteriormente questo insieme, ottenendo sei lncRNA prognosticamente rilevanti: ANKRD44-AS1, AC083837.1, AC242842.1, DBH-AS1, LINC00926 e LINC01871 (Figura 1F,G; Figura supplementare 2A). La loro capacità di discriminare la resistenza prevista al farmaco è stata successivamente confrontata mediante analisi AUC. Tra i sei candidati, LINC01871 ha mostrato l'AUC media più elevata per ribociclib e palbociclib (Figura 1H–J; Figura supplementare 2B,C).
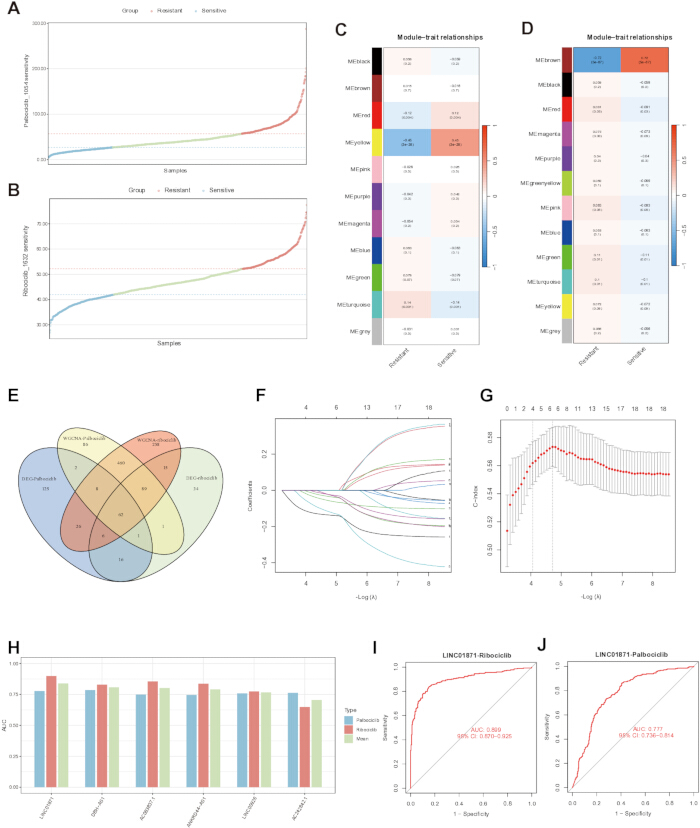
Figura 1. Identificazione di RNA non codificanti lunghi associati alla sensibilità predetta a ribociclib e palbociclib.
(A,B) Distribuzione dei valori predetti della concentrazione inibitoria semimassimale (IC50) per palbociclib (A) e ribociclib (B) nella coorte di carcinoma mammario invasivo di The Cancer Genome Atlas (TCGA-BRCA), stimata utilizzando il dataset Genomics of Drug Sensitivity in Cancer 2 (GDSC2). (C,D) Analisi della rete di co-espressione genica pesata (WGCNA) che mostra le associazioni tra moduli e tratti per palbociclib (C) e ribociclib (D). (E) Diagramma di Venn che illustra i geni condivisi tra i set di geni differenzialmente espressi e i set di geni derivati da WGCNA associati ai due farmaci. (F,G) Regressione con operatore di selezione e riduzione assoluta minima (LASSO) per la selezione di RNA non codificanti lunghi (lncRNA) clinicamente rilevanti. (H) Confronto dei valori dell'area sotto la curva caratteristica operativa del ricevitore (AUC) per i sei lncRNA selezionati tramite LASSO. (I,J) Curve caratteristiche operative del ricevitore (ROC) per valutare la capacità di LINC01871 di discriminare la sensibilità predetta a ribociclib (I) e palbociclib (J). Cliccare qui per visualizzare una versione ingrandita di questa figura.
L'overespressione di LINC01871 ha aumentato la sensibilità ai farmaci nelle cellule del cancro al seno
All'interno del coorte TCGA-BRCA, un'espressione più elevata di LINC01871 era associata a valori predetti di IC50 più bassi sia per ribociclib che per palbociclib (Figura 2A,B). Questa relazione è stata ulteriormente analizzata nel sottogruppo clinicamente rilevante positivo per recettori ormonali e negativo per HER2 (n = 599). In questo sottogruppo, i valori predetti di IC50 per entrambi i farmaci erano significativamente più bassi nei pazienti con alta espressione di LINC01871 rispetto a quelli con bassa espressione. Inoltre, l'espressione di LINC01871 era inversamente correlata ai valori predetti di IC50 di ribociclib e palbociclib (Figura supplementare 3A,B). L'associazione computazionale è stata successivamente verificata sperimentalmente. Saggi di citotossicità hanno dimostrato una maggiore sensibilità sia a ribociclib che a palbociclib nelle cellule del cancro al seno che overesprimono LINC01871 rispetto alle cellule di controllo con vettore (Figura 2C,D). L'analisi mediante citometria a flusso ha mostrato una proporzione maggiore di cellule in fase G1 e una minore proporzione in fase S dopo l'overespressione di LINC01871, coerente con un arresto più marcato in fase G1 (Figura 2E). Nei saggi di formazione di colonie, concentrazioni crescenti di ribociclib o palbociclib hanno ridotto progressivamente la formazione di colonie (Figura 2F,G). A concentrazioni equivalenti di farmaco, la capacità di formare colonie era significativamente inferiore nelle cellule che overesprimono LINC01871 rispetto alle cellule di controllo con vettore. L'analisi mediante Western blot ha inoltre rivelato livelli più bassi di CDK4, CDK6 e ciclina D1, accompagnati da una ridotta fosforilazione della proteina RB, nelle cellule che overesprimono LINC01871 (Figura 2H). Questi cambiamenti molecolari erano coerenti con l'arresto più marcato in fase G1 osservato dopo l'overespressione di LINC01871.
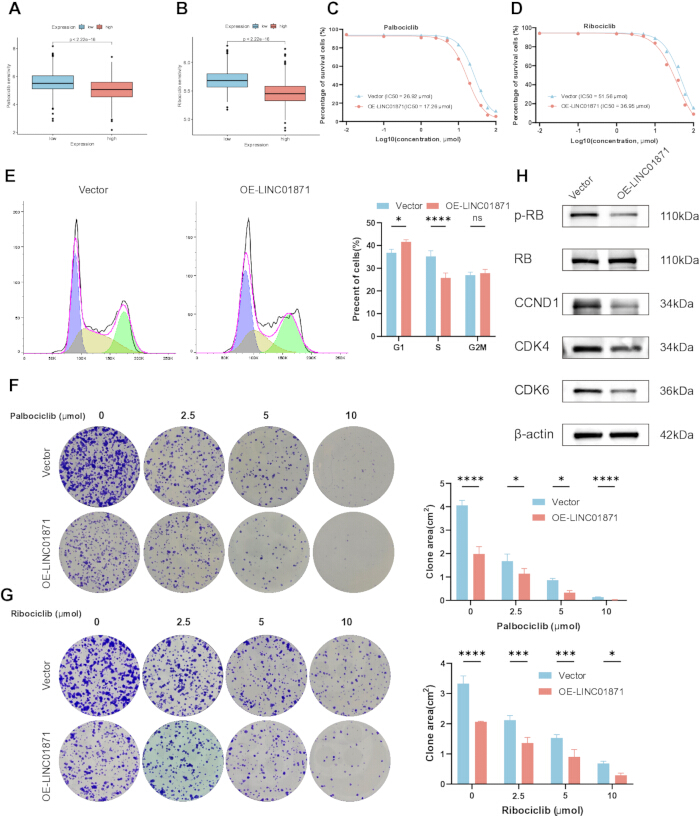
Figura 2. Associazione tra la sovraespressione di LINC01871 e la sensibilità agli inibitori della chinasi dipendente dal ciclo cellulare 4/6 in cellule di cancro al seno. (A,B) Sensibilità predetta a palbociclib (A) e ribociclib (B) in base a bassa o alta espressione di LINC01871. (C,D) Curve dose-risposta ai farmaci per palbociclib (C) e ribociclib (D) in cellule con controllo vettoriale e cellule che sovraesprimono LINC01871, con i corrispondenti valori di concentrazione inibitoria semimassimale (IC50) indicati in ciascun pannello. (E) Valutazione mediante citometria a flusso della distribuzione nel ciclo cellulare in cellule con controllo vettoriale e cellule che sovraesprimono LINC01871. (F,G) Formazione di colonie dopo trattamento con concentrazioni crescenti di palbociclib (F) e ribociclib (G). (H) Analisi mediante Western blot di chinasi dipendente dal ciclo cellulare 4 (CDK4), chinasi dipendente dal ciclo cellulare 6 (CDK6), ciclina D1 (CCND1), proteina del retinoblastoma (RB) e RB fosforilata (p-RB), con β-actina utilizzata come controllo di caricamento. OE-LINC01871, sovraespressione di LINC01871; ns, non significativo. Tutti gli esperimenti sono stati eseguiti indipendentemente in triplice replicato. I dati sono presentati come media ± DS. I valori di IC50 sono stati determinati mediante regressione non lineare. I dati relativi alla distribuzione nel ciclo cellulare e alla formazione di colonie sono stati analizzati mediante ANOVA a due vie. *P < 0,05, **P < 0,01, ***P < 0,001 e ****P < 0,0001; ns, non significativo. Cliccare qui per visualizzare una versione ingrandita di questa figura.
I pazienti con elevata espressione di LINC01871 tendevano ad avere esiti clinici favorevoli
L'associazione prognostica di LINC01871 è stata ulteriormente esaminata nel coorte TCGA-BRCA. Le analisi di Kaplan-Meier hanno indicato che un'espressione più elevata di LINC01871 era generalmente associata a una sopravvivenza complessiva più lunga e a un intervallo senza progressione più prolungato (Figura 3A; Figura supplementare 3C). Il confronto sia di campioni appaiati che non appaiati ha inoltre rivelato un'espressione di LINC01871 significativamente più bassa nei tessuti tumorali rispetto ai tessuti normali (Figura 3B,C). Successivamente, abbiamo esaminato la relazione tra l'espressione di LINC01871 e le caratteristiche clinicopatologiche. Un'espressione più bassa di LINC01871 tendeva ad associarsi a dimensioni tumorali maggiori ed è stata osservata nei pazienti registrati come deceduti rispetto a quelli registrati come vivi (Figura 3D,E). Tra i pazienti sottoposti a radioterapia, l'analisi per sottogruppi ha mostrato ulteriormente esiti di sopravvivenza significativamente più favorevoli nei soggetti con elevata espressione di LINC01871 (Figura supplementare 3D). È stato successivamente sviluppato un nomogramma prognostico che incorpora l'espressione di LINC01871 insieme a molteplici caratteristiche cliniche (Figura supplementare 3E). Un'analisi di calibrazione ha mostrato un accordo stretto tra le probabilità di sopravvivenza stimate dal nomogramma e gli esiti osservati (Figura supplementare 3F).
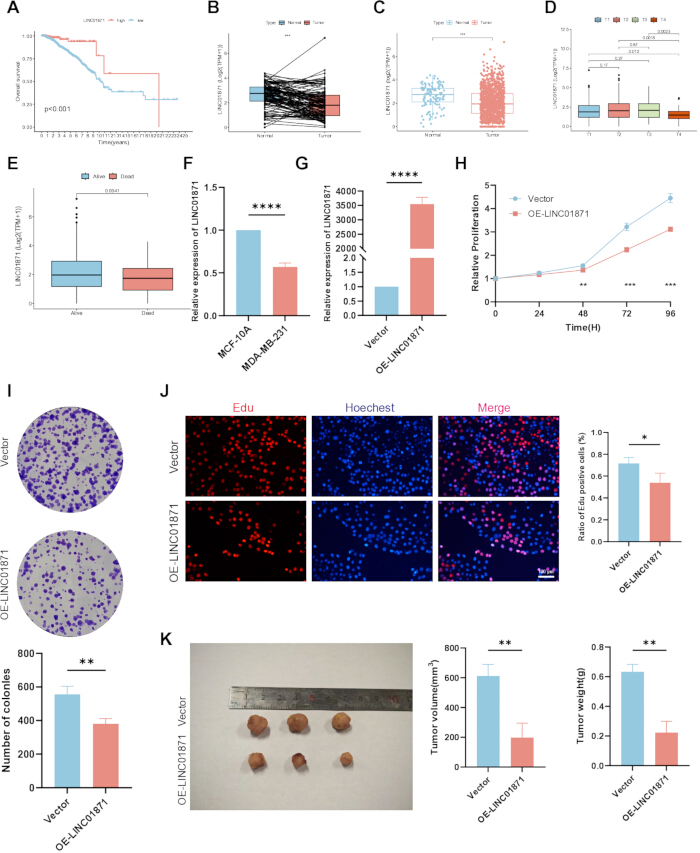
Figura 3. Espressione di LINC01871, associazioni prognostiche e soppressione della proliferazione del cancro al seno.
(A) Analisi di Kaplan-Meier della sopravvivenza globale stratificata per espressione di LINC01871. (B,C) Analisi appaiate (B) e non appaiate (C) per confrontare l'espressione di LINC01871 tra tessuti normali e tumorali. (D,E) Espressione di LINC01871 in relazione alla categoria T del tumore (D) e allo stato di sopravvivenza (E). (F) Confronto dell'espressione relativa di LINC01871 tra cellule MCF-10A e MDA-MB-231. (G) Conferma mediante reazione a catena della polimerasi quantitativa con trascrizione inversa dell'iperespressione di LINC01871 nelle cellule MDA-MB-231. (H–J) Valutazione della proliferazione cellulare mediante saggio con Cell Counting Kit-8 (CCK-8) (H), saggio di formazione di colonie (I) e saggio di incorporazione di 5-etinil-2′-desossiuridina (EdU) (J). La barra della scala nel pannello J rappresenta 100 μm. (K) Aspetto, volume e peso del tumore allo xenotrapianto nei gruppi con vettore di controllo e con iperespressione di LINC01871. TPM, trascritti per milione; OE-LINC01871, iperespressione di LINC01871. La sopravvivenza globale è stata valutata mediante analisi di Kaplan-Meier con il test del log-rank. I confronti appaiati tra tessuti tumorali e normali sono stati valutati utilizzando il test dei ranghi con segno di Wilcoxon. Per i restanti confronti tra due gruppi, è stato scelto un test t di Student non appaiato o un test U di Mann-Whitney dopo aver valutato la normalità con il test di Shapiro-Wilk. Le misurazioni con CCK-8 sono state analizzate mediante analisi della varianza a due vie. Gli esperimenti in vitro comprendevano tre repliche biologiche indipendenti, mentre negli esperimenti con xenotrapianto erano inclusi tre topi per ogni gruppo. I dati sono presentati come media ± deviazione standard. *P < 0,05, **P < 0,01, ***P < 0,001 e ****P < 0,0001; ns, non significativo. Cliccare qui per visualizzare una versione ingrandita di questa figura.
L'overespressione di LINC01871 inibisce la proliferazione delle cellule tumorali ed è associata a una ridotta segnalazione NF-κB
L'effetto inibitorio di LINC01871 sulla proliferazione delle cellule tumorali è stato ulteriormente esaminato mediante modelli in vitro e in vivo. L'espressione di LINC01871 era significativamente più elevata nella linea cellulare di epitelio mammario normale rispetto alla linea cellulare di carcinoma mammario (Figura 3F). L'efficace stabilimento del modello di overespressione di LINC01871 è stato confermato mediante RT-qPCR, che ha mostrato un'espressione di LINC01871 marcatamente aumentata rispetto al gruppo controllo con vettore (Figura 3G). Saggi CCK-8 hanno successivamente rivelato una capacità proliferativa significativamente ridotta nelle cellule che overesprimono LINC01871 (Figura 3H). In accordo con questi risultati, l'overespressione di LINC01871 ha ridotto la capacità di formazione di colonie (Figura 3I) e la percentuale di cellule positive per EdU (Figura 3J). Nel modello di xeno-trapianto, i tumori derivati da cellule che overesprimono LINC01871 erano significativamente più piccoli rispetto a quelli derivati da cellule controllo con vettore (Figura 3K).
Per esplorare i potenziali meccanismi alla base di questi effetti, sono state condotte analisi di arricchimento funzionale utilizzando due insiemi di geni: i geni espressi in modo differenziale tra i gruppi con alta e bassa espressione di LINC01871 e i geni identificati come co-espressi con LINC01871 mediante analisi di correlazione di Pearson. L'analisi GO di questi insiemi di geni ha rivelato associazioni con diverse funzioni immunitarie, tra cui legame al recettore delle cellule T, legame al complesso proteico del complesso maggiore di istocompatibilità (MHC), regolazione positiva dell'attivazione dei leucociti e attività del recettore immunitario (Figura 4A,C). L'analisi KEGG ha identificato in modo analogo percorsi associati al sistema immunitario, tra cui la trasduzione del segnale del recettore delle cellule T e il percorso del checkpoint dell'espressione della ligando della morte programmata 1 (PD-L1) e della proteina della morte cellulare programmata 1 (PD-1) nel cancro. È stato inoltre osservato un arricchimento per i percorsi di segnalazione della Janus chinasi/fattore di trascrizione e attivatore del segnale (JAK-STAT) e della NF-κB (Figura 4B,D). Poiché la segnalazione della NF-κB è stata identificata in entrambe le analisi di arricchimento, la sua attività è stata ulteriormente esaminata mediante immunoblotting. La fosforilazione di P65 è risultata notevolmente inferiore nelle cellule che overesprimono LINC01871 rispetto al gruppo di controllo (Figura 4E), un risultato coerente con una ridotta attivazione del percorso della NF-κB. È stata inoltre valutata la relazione tra l'overespressione di LINC01871 e l'apoptosi. L'immunoblotting ha mostrato un aumento dell'espressione della proteina pro-apoptotica Bax e una diminuzione dell'espressione della proteina anti-apoptotica Bcl-2 in seguito all'overespressione di LINC01871 (Figura 4F). La citometria a flusso ha inoltre rivelato una proporzione significativamente maggiore di cellule apoptotiche nel gruppo con overespressione di LINC01871 rispetto al gruppo di controllo con vettore (Figura 4G).
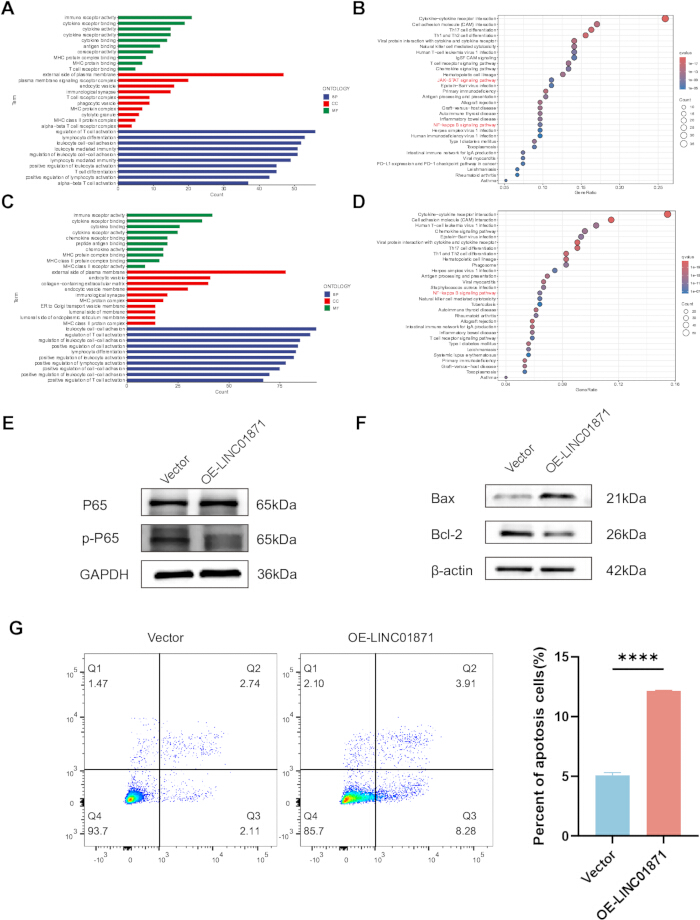
Figura 4Associazione di LINC01871 con la segnalazione del fattore nucleare kappa B e l'apoptosi.
(A,B) Analisi di arricchimento Gene Ontology (GO) (A) e Kyoto Encyclopedia of Genes and Genomes (KEGG) (B) dei geni che mostrano un'espressione differenziale tra i gruppi con alta e bassa espressione di LINC01871. (C,D) Analisi di arricchimento GO (C) e KEGG (D) dei geni co-espressi con LINC01871. (E) Valutazione mediante Western blot del fattore nucleare kappa B (NF-κB) proteine della via di segnalazione P65 e P65 fosforilata (p-P65), con la gliceraldeide-3-fosfato deidrogenasi (GAPDH) utilizzata come controllo di caricamento. (F) Valutazione mediante immunoblotting delle proteine legate all'apoptosi B-cell lymphoma 2 (Bcl-2) e proteina Bcl-2 associata a X (Bax), utilizzando β-actina come controllo di caricamento. (G) Valutazione e quantificazione mediante citometria a flusso dell'apoptosi in cellule con controllo vettoriale e in cellule che overesprimono LINC01871. Tutti gli esperimenti in vitro hanno incluso tre replicati biologici indipendenti. Le immagini di western blot mostrate sono rappresentative di tre esperimenti biologici indipendenti. I dati sono presentati come media ± SD. I confronti tra cellule con controllo vettoriale e cellule con sovraespressione di LINC01871 sono stati effettuati utilizzando un test t di Student non appaiato ttest t o test U di Mann-Whitney a seconda dell'assunto di normalità verificato con il test di Shapiro-Wilk. *P < 0,05, **P < 0,01, ***P < 0,001 e ****P < 0,0001; ns, non significativo. Cliccare qui per visualizzare una versione ingrandita di questa figura.
Analisi Pan-Cancro di LINC01871
Data la funzione soppressiva del tumore associata a LINC01871 nel cancro al seno, abbiamo esteso l'analisi a diversi tipi di cancro per caratterizzarne l'espressione e le associazioni prognostiche. Un'espressione differenziale di LINC01871 è stata osservata in diverse neoplasie oltre al carcinoma mammario (Figura 5A). Nel carcinoma adenocarcinoma del colon (COAD), nel carcinoma renale a cellule chiare (KIRC), nel carcinoma renale a cellule papillari (KIRP), nel carcinoma a cellule squamose del polmone (LUSC) e nel carcinoma della tiroide (THCA), sono state rilevate differenze significative tra tessuto tumorale e tessuto normale sia nei confronti appaiati che non appaiati (Figura 5B). Le analisi della sopravvivenza hanno inoltre identificato associazioni prognostiche significative per LINC01871 nel carcinoma a cellule squamose della testa e del collo (HNSC), nel KIRC, nel glioma di grado basso del cervello (LGG), nell'adenocarcinoma del retto (READ), nel melanoma cutaneo (SKCM), nel carcinoma endometriale del corpo uterino (UCEC), nel carcinoma uroteliale della vescica (BLCA), nel carcinoma epatocellulare (LIHC) e nell'adenocarcinoma prostatico (PRAD) (Figura 5C–E).
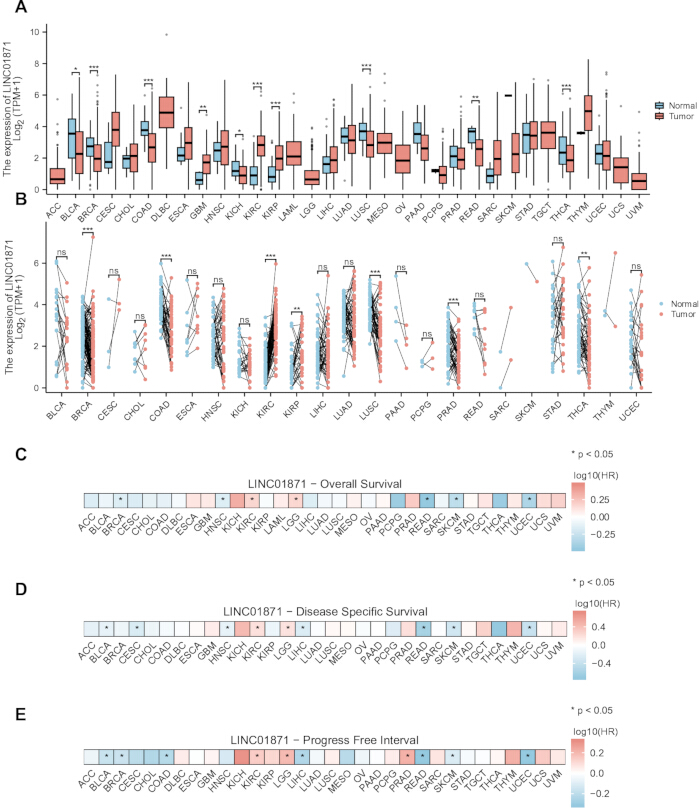
Figura 5. Analisi pan-cancro dell'espressione e della prognosi di LINC01871.
(A,B) Confronto dell'espressione di LINC01871 tra tessuti tumorali e normali in diversi tipi di cancro, mediante analisi non appaiate (A) e appaiate (B). (C–E) Associazioni prognostiche di LINC01871 che mostrano i rapporti di rischio trasformati in logaritmo per la sopravvivenza globale (C), la sopravvivenza specifica per la malattia (D) e l'intervallo libero da progressione (E). HR, rapporto di rischio; TPM, trascritti per milione; ns, non significativo. Le abbreviazioni dei tipi di cancro si basano sulla nomenclatura di The Cancer Genome Atlas. I dati non appaiati tra tumore e tessuto normale sono stati valutati mediante il test U di Mann-Whitney (A), mentre i dati appaiati tra tumore e tessuto normale sono stati valutati mediante il test dei ranghi con segno di Wilcoxon (B). Le associazioni con la sopravvivenza globale, la sopravvivenza specifica per la malattia e l'intervallo libero da progressione sono state analizzate mediante regressione univariata di Cox per i rischi proporzionali (C–E). *P < 0,05, **P < 0,01, ***P < 0,001 e ****P < 0,0001; ns, non significativo. Cliccare qui per visualizzare una versione ingrandita di questa figura.
Correlazione tra l'espressione di LINC01871 e l'infiltrazione di cellule immunitarie
Abbiamo successivamente caratterizzato la distribuzione cellulare di LINC01871 utilizzando dati di sequenziamento dell'RNA a singola cellula provenienti da campioni di cancro al seno (GSE161529). Dopo il controllo della qualità, la correzione degli effetti di batch, il raggruppamento e l'annotazione dei tipi cellulari, le popolazioni identificate includevano cellule epiteliali, cellule T CD8⁺, cellule T, macrofagi, fibroblasti, cellule natural killer (NK) e cellule B (Figura 6A). Tra queste popolazioni, l'espressione di LINC01871 era più evidente nelle cellule T e nelle cellule NK (Figura 6B,C). Abbiamo quindi ulteriormente esaminato la relazione tra LINC01871 e il microambiente immunitario utilizzando stime dell'infiltrazione basate sul trascrittoma. L'analisi CIBERSORT ha indicato che il gruppo con elevata espressione di LINC01871 presentava proporzioni stimate più alte di diverse popolazioni immunitarie, tra cui cellule T CD8⁺, cellule NK e macrofagi M1, insieme a proporzioni stimate più basse di cellule T regolatorie (Treg) e macrofagi M2 (Figura 6D). Analogamente, i punteggi immunitari derivati da ESTIMATE erano più elevati nei campioni con alta espressione di LINC01871 (Figura 6E). L'analisi mediante ssGSEA, utilizzando geni marcatore di cellule immunitarie precedentemente riportati, ha prodotto schemi sostanzialmente coerenti (Figura 6F). L'estensione di questa analisi a diversi tipi di cancro ha mostrato correlazioni significative tra l'espressione di LINC01871 e l'abbondanza stimata di molteplici popolazioni di cellule immunitarie (Figura 6G).
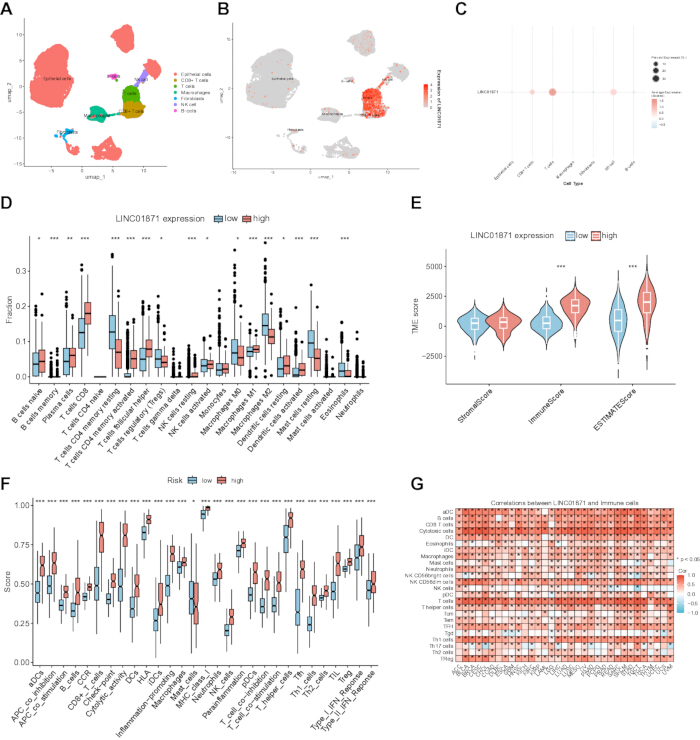
Figura 6. Analisi dell'espressione a singola cellula e dell'infiltrazione immunitaria di LINC01871.
(A) Rappresentazione Uniform Manifold Approximation and Projection (UMAP) delle popolazioni cellulari annotate identificate dai dati di sequenziamento dell'RNA a singola cellula. (B) Grafico delle caratteristiche UMAP che mostra la distribuzione dell'espressione di LINC01871 tra le popolazioni cellulari annotate. (C) Diagramma a punti che mostra la proporzione di cellule esprimenti LINC01871 e l'espressione media normalizzata per ciascun tipo cellulare. (D) Proporzioni relative di 22 popolazioni di cellule immunitarie nei gruppi con espressione bassa e alta di LINC01871, stimate mediante Cell-type Identification by Estimating Relative Subsets of RNA Transcripts (CIBERSORT). (E) Punteggi stromali, immunitari e del microambiente tumorale derivati utilizzando Estimation of STromal and Immune cells in MAlignant Tumour tissues using Expression data (ESTIMATE). (F) Punteggi legati all'immunità ottenuti mediante analisi di arricchimento di set di geni da singolo campione (ssGSEA) nei gruppi con espressione bassa e alta di LINC01871. (G) Associazioni pan-cancro tra l'espressione di LINC01871 e l'infiltrazione di cellule immunitarie stimate mediante ssGSEA. NK, natural killer; TME, microambiente tumorale. Le abbreviazioni dei tipi di cancro si basano sulla nomenclatura di The Cancer Genome Atlas. Le differenze tra i gruppi con espressione bassa e alta di LINC01871 sono state valutate mediante il test U di Mann-Whitney (D–F). Le associazioni pan-cancro tra l'espressione di LINC01871 e l'infiltrazione di cellule immunitarie sono state valutate mediante analisi della correlazione di Spearman (G). *P < 0,05, **P < 0,01, ***P < 0,001 e ****P < 0,0001; ns, non significativo. Cliccare qui per visualizzare una versione ingrandita di questa figura.
Disponibilità dei dati:
I set di dati analizzati in questo studio sono disponibili pubblicamente presso The Cancer Genome Atlas (TCGA; https://portal.gdc.cancer.gov) e il Gene Expression Omnibus (GEO; https://www.ncbi.nlm.nih.gov/geo/). I set di dati utilizzati includono il coorte TCGA-BRCA e GSE161529 (https://www.ncbi.nlm.nih.gov/geo/query/acc.cgi?acc=GSE161529). Le Figure Supplementari 1–3 forniscono ulteriori analisi bioinformatiche e prognostiche. La Tabella Supplementare 1 elenca le sequenze dei primer utilizzate per la reazione a catena della polimerasi quantitativa con trascrizione inversa (RT-qPCR), mentre la Tabella Supplementare 2 elenca gli anticorpi primari e secondari utilizzati per l'analisi mediante western blot. Gli script R utilizzati per le analisi bioinformatiche e statistiche sono forniti come File Supplementare 1.
Figura supplementare 1. Identificazione dei geni differenzialmente espressi e dei moduli della rete di co-espressione genica pesata associati alla sensibilità predetta agli inibitori di CDK4/6.
(A,B) Diagrammi a vulcano che mostrano i geni differenzialmente espressi tra i gruppi predetti come resistenti e predetti come sensibili rispettivamente per ribociclib (A) e palbociclib (B). (C,D) Dendrogrammi gerarchici generati da WGCNA che mostrano il raggruppamento genico e l'assegnazione dei moduli per ribociclib (C) e palbociclib (D). I geni differenzialmente espressi sono stati definiti come quelli con un valore assoluto del log2 della variazione di espressione ≥0,5 e un valore di P corretto <0,05. Cliccare qui per scaricare questo file.
Figura supplementare 2. Prestazioni prognostiche e predittive di cinque ulteriori lncRNA candidati.
(A) Analisi di sopravvivenza di Kaplan-Meier di cinque ulteriori lncRNA candidati identificati mediante regressione LASSO. (B,C) Analisi delle curve ROC (caratteristica operativa del ricevitore) che mostrano le prestazioni diagnostiche di questi cinque lncRNA nella previsione della resistenza al ribociclib (B) e al palbociclib (C). Le analisi corrispondenti relative a LINC01871 sono presentate nelle Figure 1 e 3. Cliccare qui per scaricare questo file.
Figura supplementare 3. Valutazione prognostica di LINC01871 nel cancro al seno.
(A) Valori predetti della concentrazione inibitoria mediale (IC50) per ribociclib e palbociclib nei gruppi con espressione elevata e bassa di LINC01871 all'interno del sottogruppo positivo per recettori ormonali/negativo per recettore 2 del fattore di crescita epidermico umano (HR-positivo/HER2-negativo). (B) Analisi di correlazione di Spearman tra l'espressione di LINC01871 e i valori predetti di IC50 per ribociclib e palbociclib nel sottogruppo HR-positivo/HER2-negativo. (C) Analisi di sopravvivenza di Kaplan–Meier relativa all'intervallo libero da progressione (PFI) in base all'espressione di LINC01871. (D) Analisi di sopravvivenza di Kaplan–Meier dei pazienti sottoposti a radioterapia stratificati in base all'espressione di LINC01871. (E) Nomogramma che integra l'espressione di LINC01871 e le caratteristiche clinico-patologiche per prevedere la sopravvivenza complessiva nell'intera coorte TCGA-BRCA. (F) Curve di calibrazione per valutare l'accordo tra le probabilità di sopravvivenza predette e osservate del nomogramma a 1, 3 e 5 anni. I confronti nel pannello A sono stati analizzati mediante il test U di Mann–Whitney, e le correlazioni nel pannello B sono state valutate mediante analisi della correlazione di Spearman. IC50, concentrazione inibitoria mediale; PFI, intervallo libero da progressione; HR, recettore ormonale; HER2, recettore 2 del fattore di crescita epidermico umano. *P < 0.05, **P < 0.01, ***P < 0.001 e ****P < 0.0001; ns, non significativo. Cliccare qui per scaricare questo file.
Tabella supplementare 1. Sequenze dei primer utilizzate per la reazione a catena della polimerasi quantitativa con trascrizione inversa (RT-qPCR).
Sequenze dei primer diretti e inversi (5′→3′) utilizzate per l'analisi RT-qPCR di LINC01871 e del gene di riferimento endogeno GAPDH. Cliccare qui per scaricare il file.
Tabella supplementare 2. Anticorpi primari e secondari utilizzati per l'analisi mediante western blot.
Anticorpi primari e secondari utilizzati per l'analisi mediante western blot, inclusi la proteina bersaglio o la specificità dell'anticorpo, il fornitore, il numero di catalogo, la specie ospite, la diluizione di lavoro e l'identificatore delle risorse per la ricerca (RRID). Cliccare qui per scaricare il file.
File supplementare 1. Script R utilizzati per le analisi bioinformatiche e statistiche.
Questo file supplementare contiene gli script R utilizzati per eseguire le analisi bioinformatiche e generare le figure presentate in questo studio, inclusi l'analisi trascrittomica, l'analisi dell'espressione differenziale, l'analisi della rete di co-espressione genica pesata (WGCNA), la regressione con operatore di riduzione e selezione dei minimi assoluti (LASSO), l'analisi della sopravvivenza, l'analisi delle caratteristiche operative del ricevitore (ROC), l'analisi dell'arricchimento funzionale, l'analisi dell'infiltrazione immunitaria, l'analisi del sequenziamento dell'RNA a singola cellula e la generazione delle figure. Ogni script corrisponde alle figure principali e supplementari presentate nel manoscritto. Cliccare qui per scaricare questo file.
Discussione
La crescente comprensione della biologia del cancro ha portato all'identificazione di nuovi bersagli terapeutici e ha affermato le terapie mirate come componente importante del trattamento oncologico17. Tuttavia, lo sviluppo di resistenza ai trattamenti continua a limitarne l'efficacia a lungo termine. In questo studio, l'integrazione di analisi multi-omiche con approcci di apprendimento automatico ha identificato LINC01871 come un candidato associato alla sensibilità predetta a ribociclib e palbociclib. Analisi sperimentali hanno inoltre dimostrato che l'overespressione di LINC01871 aumenta la sensibilità a entrambi gli agenti in vitro e inibisce la proliferazione delle cellule tumorali del seno in modelli cellulari e di xeno innesto. Questi effetti sono stati accompagnati da una ridotta attività della via NF-κB, suggerendo una possibile relazione tra LINC01871 e questa via di segnalazione. Queste osservazioni potrebbero essere rilevanti per l'uso crescente di biomarcatori per guidare le decisioni terapeutiche durante le terapie basate su inibitori di CDK4/6. Tuttavia, le evidenze a sostegno di LINC01871 differiscono sostanzialmente da quelle disponibili per gli approcci consolidati guidati da biomarcatori. Ad esempio, il monitoraggio del DNA tumorale circolante per le mutazioni di ESR1 è stato valutato prospetticamente come strategia per adattare il trattamento endocrino. Al contrario, LINC01871 rimane un biomarcatore candidato e non dovrebbe ancora essere considerato idoneo per le decisioni cliniche. Tale distinzione è particolarmente importante poiché le opzioni terapeutiche dopo la progressione durante terapie basate su inibitori di CDK4/6 nel cancro al seno metastatico HR-positivo/HER2-negativo includono attualmente degradatori orali selettivi del recettore degli estrogeni, inibitori della via PI3K/AKT e anticorpi coniugati a farmaci18,19. In questo scenario terapeutico in evoluzione, biomarcatori in grado di distinguere differenze nella sensibilità agli inibitori di CDK4/6 potrebbero potenzialmente assistere nella stratificazione del trattamento. Sebbene i nostri risultati supportino un'associazione tra LINC01871 e la sensibilità a ribociclib e palbociclib, le evidenze attuali derivano da stime computazionali della sensibilità ai farmaci insieme a esperimenti in vitro. Saranno pertanto necessari coorti prospettici con esposizione documentata agli inibitori di CDK4/6 e con esiti clinici ben definiti per determinare se LINC01871 abbia un valore predittivo nei pazienti.
Il beneficio terapeutico degli inibitori della CDK4/6 nei tumori al seno positivi per il recettore degli estrogeni e/o per il recettore della progesterone è stato dimostrato in numerosi studi clinici4,5,6. Anche la loro potenziale utilità nel carcinoma mammario triplo-negativo ha attirato l'attenzione della ricerca20,21. Ad esempio, Yang et al. hanno scoperto che il targeting simultaneo della CDK4/6 e della CDK7 inibisce la proliferazione delle cellule del carcinoma mammario triplo-negativo22. Altri studi hanno identificato alterazioni molecolari che potrebbero modificare la risposta all'inibizione della CDK4/6. È stato riportato che l'inibizione della GPX4 aumenta la sensibilità al palbociclib sia nei tumori al seno positivi per il recettore degli estrogeni sia in quelli triplo-negativi23, mentre il gene C9orf142 è stato associato alla resistenza agli inibitori della CDK4/6 nel carcinoma mammario triplo-negativo20. Al contrario, è stato riportato che l'inibizione di ACAA1 potenzia la sensibilità delle cellule tumorali del seno agli inibitori della CDK4/624. Gran parte dei lavori esistenti sui determinanti molecolari della risposta agli inibitori della CDK4/6 si è concentrata sui geni codificanti proteine, lasciando meno chiaro il contributo degli lncRNA. I nostri risultati ampliano questo campo identificando LINC01871 come un possibile RNA non codificante associato alla risposta agli inibitori della CDK4/6. Saggi di citotossicità e di formazione di colonie, insieme alla valutazione mediante citometria a flusso e all'analisi di proteine legate al ciclo cellulare, hanno costantemente associato la sovraespressione di LINC01871 a una maggiore sensibilità al ribociclib e al palbociclib. Saggi indipendenti sulla proliferazione e un modello di xenotrapianto hanno ulteriormente confermato un'associazione inibitoria tra la sovraespressione di LINC01871 e la crescita del tumore al seno.
Per esplorare i meccanismi che potrebbero sottendere a queste osservazioni, abbiamo analizzato i profili funzionali dei geni espressi in modo differenziale tra i gruppi ad alto e basso contenuto di LINC01871 e dei geni co-espressi con LINC01871. Le analisi GO e KEGG hanno associato entrambi i gruppi di geni a processi immunitari e alla segnalazione NF-κB. Questo risultato è rilevante per la regolazione del ciclo cellulare poiché si è precedentemente riportato che la segnalazione NF-κB aumenta l'espressione della ciclina D e quindi favorisce il progresso del ciclo cellulare25,26. Zhou et al. hanno inoltre dimostrato che NF-κB può interagire con il promotore di CDK6 e stimolarne la trascrizione27. È stata descritta anche una comunicazione incrociata tra NF-κB e la via PI3K/AKT/mTOR28, e quest'ultima via è implicata nella resistenza agli inibitori di CDK4/611. Nel complesso, queste osservazioni forniscono una giustificazione per esaminare l'attività di NF-κB nel contesto di LINC01871. In accordo con i risultati di arricchimento, le cellule che overesprimono LINC01871 hanno mostrato una fosforilazione ridotta di P65. Tuttavia, questi dati stabiliscono un'associazione piuttosto che un meccanismo regolatorio diretto, e rimane da determinare come LINC01871 influenzi la segnalazione NF-κB.
L'ambiente immunitario microscopico rappresenta un altro possibile fattore che contribuisce alla risposta agli inibitori di CDK4/6. Le cellule T γδ, ad esempio, sono state segnalate come responsabili della resistenza attraverso effetti mediati da macrofagi CX3CR1⁺29. Luo et al. hanno osservato una maggiore infiltrazione di cellule T CD8⁺ e cellule NK in tumori di pazienti che hanno sviluppato resistenza agli inibitori di CDK4/6 in fasi successive30. La nostra analisi a singola cellula ha mostrato che l'espressione di LINC01871 era più evidente nelle cellule T e nelle cellule NK rispetto alle cellule epiteliali. Analisi complementari basate sul trascrittoma hanno associato un'espressione più elevata di LINC01871 a una maggiore infiltrazione stimata di cellule T CD8⁺, macrofagi M1 e cellule NK, e a una minore infiltrazione stimata di macrofagi M2 e cellule T regolatorie (Treg). Le cellule T CD8⁺, i macrofagi M1 e le cellule NK sono state associate a un'attività immunitaria antitumorale, mentre i macrofagi M2 sono stati collegati a funzioni favorenti la crescita tumorale31,32,33,34. Nel complesso, i nostri risultati suggeriscono che un'espressione più elevata di LINC01871 potrebbe essere associata a un microambiente tumorale più attivo dal punto di vista immunitario. Tuttavia, questa interpretazione rimane preliminare, poiché le stime relative alle cellule immunitarie sono state dedotte da profili trascrittomici piuttosto che misurate direttamente, e saranno necessari studi funzionali per stabilire se LINC01871 abbia un ruolo nella modulazione dell'ambiente immunitario tumorale.
Diversi limiti devono essere riconosciuti nell'interpretazione di questi risultati. In primo luogo, LINC01871 è stato identificato tramite un'analisi integrata multi-omica in cui la risposta al farmaco è stata computazionalmente inferita piuttosto che ottenuta da pazienti in trattamento con inibitori di CDK4/6. Sebbene esperimenti diretti in vitro abbiano mostrato una maggiore sensibilità a palbociclib e ribociclib in seguito alla sovraespressione di LINC01871, questi risultati non stabiliscono il suo valore predittivo nei pazienti. Saranno pertanto necessarie coorti indipendenti con dati documentati sull'esposizione agli inibitori di CDK4/6 e sulla risposta clinica per valutare LINC01871 come biomarcatore predittivo. In secondo luogo, l'analisi di scoperta è stata inizialmente condotta sull'intera coorte TCGA-BRCA, che comprende sottotipi eterogenei di carcinoma mammario dal punto di vista clinico. L'associazione tra LINC01871 e sensibilità predetta al farmaco è stata osservata anche nel sottogruppo positivo per recettori ormonali/negativo per HER2; tuttavia, è ancora necessaria una conferma in popolazioni clinicamente trattate con profilo HR-positivo/HER2-negativo. In terzo luogo, le nostre analisi sulla risposta al farmaco si sono limitate a palbociclib e ribociclib poiché i dati corrispondenti sulla risposta ad abemaciclib non erano disponibili nel dataset GDSC2 utilizzato per questo studio. Se l'associazione osservata si estenda ad abemaciclib rimane quindi sconosciuto. In quarto luogo, nonostante gli effetti soppressori tumorali osservati negli esperimenti su cellule e nei modelli di xeno innesto, il legame molecolare tra LINC01871 e la via di segnalazione NF-κB non è stato ancora stabilito. La riduzione della fosforilazione di P65 ha accompagnato la sovraespressione di LINC01871, ma il meccanismo responsabile di questa associazione richiede ulteriori indagini. Analogamente, le osservazioni relative all'immunità derivano principalmente da analisi computazionali basate sul trascrittoma e devono essere interpretate come associazioni piuttosto che come prova che LINC01871 regoli direttamente il microambiente immunitario tumorale. Infine, la resistenza agli inibitori di CDK4/6 coinvolge numerosi processi biologici, e LINC01871 difficilmente può spiegare l'intera complessità della risposta al trattamento. Ulteriori ricerche dovrebbero pertanto includere coorti specifiche per sottotipo, la valutazione della risposta ad abemaciclib, la validazione sperimentale delle associazioni immunitarie, studi meccanicistici sulla relazione tra LINC01871 e la segnalazione NF-κB, e una valutazione clinica prospettica per determinare se LINC01871 possa avere utilità come biomarcatore predittivo.
Dichiarazioni
Conflitto di interessi:
Gli autori dichiarano di non avere interessi concorrenti.
Ringraziamenti
Questa ricerca è stata sostenuta dalla Natural Science Foundation della provincia di Fujian (Grant No. 2022J011056). Gli autori ringraziano The Cancer Genome Atlas (TCGA) e il Gene Expression Omnibus (GEO) per aver fornito i set di dati pubblicamente disponibili utilizzati in questo studio.
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| Aghi per siringa 25 G | Beyotime | FS802-30pcs | Aghi per siringa monouso utilizzati per il retrattore orale e il pre-allentamento facoltativo del legamento parodontale |
| Soluzione di paraformaldeide al 4% | Solarbio | P1110 | Soluzione di paraformaldeide al 4% utilizzata per la fissazione del campione |
| Etilene al 75% | Ouse Medical Devices Store | N/A | Etilene di grado medico al 75% utilizzato per la disinfezione superficiale |
| Topi C57BL/6 | Charles River | 213 | Topi maschi C57BL/6 di 8 settimane, del peso di 22–29 g |
| Carprofene | Solarbio | C5350 | Analgesico postoperatorio somministrato per via sottocutanea a 5 mg/kg |
| Palline di cotone | Ouning Medical Devices | N/A | Palline di cotone sterili utilizzate per la pulizia orale e l’emostasi |
| CTAn v1.18.4.0+ | SkyScan | N/A | Software utilizzato per l’analisi delle immagini di μTC |
| DataViewer v1.5.6.2 | SkyScan | N/A | Software utilizzato per visualizzare ed esportare le immagini di μTC ricostruite |
| Guaine per dita | LeSu Office | MEKU-1/2/3B | Guaine per dita utilizzate per proteggere il pollice durante l’estrazione |
| Tavola in schiuma | Dongguan Lijianglong Industrial Co., Ltd. | N/A | Tavola in schiuma utilizzata come piattaforma operatoria e di fissazione |
| Dieta in gel | ReadyDietech | J10001 | Dieta postoperatoria fornita sul fondo della gabbia per 3 giorni, se utilizzata |
| GraphPad Prism v10.1.2 | GraphPad | RRID: SCR_002798 | Software utilizzato per l’analisi statistica e la generazione di grafici |
| Lampada frontale | Bazhou Pengen Protective Equipment Factory | N/A | Lampada frontale utilizzata per illuminare il campo operatorio |
| Pad riscaldante | Shijiazhuang Jianuan Electrical Appliances Co., Ltd. | N/A | Pad riscaldante preriscaldato a circa 38 °C per il recupero postoperatorio |
| Fantoccio di idrossiapatite | QRM | QRM-70127 | Fantoccio di calibrazione utilizzato per convertire i valori di attenuazione TC in densità minerale ossea |
| Dispositivo di ingrandimento | Olympus Corporation | SZX10 | Dispositivo utilizzato per ispezionare le punte delle pinzette dentate e l’alveolo estrattivo con ingrandimento |
| Mascherina | Senlun Medical Devices Specialty Store | N/A | Mascherina chirurgica |
| Scanner di tomografia computerizzata microscopica | Bruker SkyScan | SkyScan 1276 | Scanner μTC utilizzato a 80 kV, 500 μA e risoluzione del voxel di 10 μm |
| Mimics Research v21.0 | Materialise | RRID: SCR_015802 | Software utilizzato per la ricostruzione tridimensionale |
| Sodio pentobarbitale | Sigma-Aldrich | P3761 | Sale sodico del pentobarbital utilizzato come soluzione anestetica al 1% |
| Soluzione salina tamponata al fosfato | Solarbio | P1010 | Polvere di soluzione salina tamponata al fosfato 0,01 M, pH 7,2–7,4 |
| Soluzione antisettica di povidone-iodio | Belkon Pharmacy Flagship Store | N/A | Soluzione di povidone-iodio utilizzata per la disinfezione addominale |
| Elaster | Foshan Puli Rubber Products Factory | N/A | Elaster utilizzati per assemblare il retrattore orale |
| Soluzione salina | Thermo Fisher | BR0053G | Compresse saline utilizzate per preparare la soluzione per la pulizia orale |
| Dieta standard in mangime | Jiangsu Xietong Pharmaceutical and Biotechnology Engineering Co., Ltd. | XTC01WC-001 | Mangime standard utilizzato per l’alloggiamento abituale e ammorbidito per l’alimentazione postoperatoria |
| Sterilizzatore a vapore | Struttura istituzionale | N/A | Attrezzatura utilizzata per sterilizzare le pinzette dentate e la soluzione salina |
| Tampini di cotone sterili | Kangbailai Medical Devices Store | N/A | Tampini di cotone sterili monouso |
| Guanti sterili | Senlun Medical Devices Specialty Store | N/A | Guanti sterili in lattice |
| Tessuto non tessuto sterile | Shandong Xinhua Infection Control Supplies Hangzhou Store | N/A | Tessuto non tessuto sterile utilizzato per coprire la superficie operatoria e il pad riscaldante |
| Cuffia chirurgica sterile | Senlun Medical Devices Specialty Store | N/A | Cuffia chirurgica sterile |
| Abiti chirurgici | Senlun Medical Devices Specialty Store | N/A | Abiti chirurgici puliti indossati durante la procedura |
| Nastro adesivo | Thermo Fisher | 15947 | Nastro adesivo utilizzato per fissare gli arti del topo |
| Pinzette oftalmiche dentate | Beyotime | FS229 | Pinze oftalmiche dentate utilizzate come pinze dentali |
| Unguento oftalmico veterinario | Dechra Veterinary Products | 143-16 | Unguento oftalmico applicato dopo l’anestesia per prevenire l’essiccazione della cornea |
Riferimenti
- Bray F, et al. Global cancer statistics 2022: GLOBOCAN estimates of incidence and mortality worldwide for 36 cancers in 185 countries. CA Cancer J Clin. 2024;74(3):229-63.
- Xiong X, et al. Breast cancer: Pathogenesis and treatments. Signal Transduct Target Ther. 2025;10(1):49.
- Ye F, et al. Advancements in clinical aspects of targeted therapy and immunotherapy in breast cancer. Mol Cancer. 2023;22(1):105.
- Johnston SRD, et al. Abemaciclib plus endocrine therapy for hormone receptor-positive, HER2-negative, node-positive, high-risk early breast cancer (monarchE): Results from a preplanned interim analysis of a randomised, open-label, phase 3 trial. Lancet Oncol. 2023;24(1):77-90.
- Slamon D, et al. Ribociclib plus endocrine therapy in early breast cancer. N Engl J Med. 2024;390(12):1080-91.
- Finn RS, et al. The cyclin-dependent kinase 4/6 inhibitor palbociclib in combination with letrozole versus letrozole alone as first-line treatment of oestrogen receptor-positive, HER2-negative, advanced breast cancer (PALOMA-1/TRIO-18): A randomised phase 2 study. Lancet Oncol. 2015;16(1):25-35.
- Morrison L, Loibl S, Turner NC. The CDK4/6 inhibitor revolution-a game-changing era for breast cancer treatment. Nat Rev Clin Oncol. 2024;21(2):89-105.
- Guo Z, et al. Cyclin-dependent kinase 4 and 6 inhibitors in breast cancer treatment. Oncogene. 2025;44(17):1135-52.
- Vora SR, et al. CDK4/6 inhibitors sensitize PIK3CA-mutant breast cancer to PI3K inhibitors. Cancer Cell. 2014;26(1):136-49.
- Foffano L, et al. Cyclin-dependent kinase 4 and 6 inhibitors (CDK4/6i): Mechanisms of resistance and where to find them. Breast. 2025;79:103863.
- Hao C, et al. PI3K/AKT/mTOR inhibitors for hormone receptor-positive advanced breast cancer. Cancer Treat Rev. 2025;132:102861.
- Bidard FC, et al. Switch to fulvestrant and palbociclib versus no switch in advanced breast cancer with rising ESR1 mutation during aromatase inhibitor and palbociclib therapy (PADA-1): A randomised, open-label, multicentre, phase 3 trial. Lancet Oncol. 2022;23(11):1367-77.
- Bidard FC, et al. First-line camizestrant for emerging ESR1-mutated advanced breast cancer. N Engl J Med. 2025;393(6):569-80.
- Zhang D, et al. Cancer-associated fibroblasts promote tumor progression by lncRNA-mediated RUNX2/GDF10 signaling in oral squamous cell carcinoma. Mol Oncol. 2022;16(3):780-94.
- Chen F, et al. Extracellular vesicle-packaged HIF-1α-stabilizing lncRNA from tumour-associated macrophages regulates aerobic glycolysis of breast cancer cells. Nat Cell Biol. 2019;21(4):498-510.
- Chen X, et al. Estrogen-induced lncRNA LINC02568 promotes estrogen receptor-positive breast cancer development and drug resistance through both in trans and in cis mechanisms. Adv Sci (Weinh). 2023;10(25):e2206663.
- Huang R, Zhou PK. DNA damage repair: Historical perspectives, mechanistic pathways and clinical translation for targeted cancer therapy. Signal Transduct Target Ther. 2021;6(1):254.
- Güren AK, et al. Post-CDK4/6 inhibitor treatment landscape in metastatic hormone receptor-positive breast cancer: A narrative review. Expert Rev Anticancer Ther. 2026;26(4):425-35.
- Güren AK, et al. Efficacy and safety of sacituzumab govitecan in hormone receptor-positive metastatic breast cancer: A systematic review and meta-analysis. J Oncol Pharm Pract. 2026. doi:10.1177/10781552261462434.
- Liao L, et al. C9orf142 transcriptionally activates MTBP to drive progression and resistance to CDK4/6 inhibitors in triple-negative breast cancer. Clin Transl Med. 2023;13(11):e1480.
- Zhu X, et al. Efficacy and mechanism of the combination of PARP and CDK4/6 inhibitors in the treatment of triple-negative breast cancer. J Exp Clin Cancer Res. 2021;40(1):122.
- Yang Y, et al. Dual inhibition of CDK4/6 and CDK7 suppresses triple-negative breast cancer progression via epigenetic modulation of SREBP1-regulated cholesterol metabolism. Adv Sci (Weinh). 2025;12(5):e2413103.
- Herrera-Abreu MT, et al. Inhibition of GPX4 enhances CDK4/6 inhibitor and endocrine therapy activity in breast cancer. Nat Commun. 2024;15(1):9550.
- Peng WT, et al. Inhibition of ACAA1 restrains proliferation and potentiates the response to CDK4/6 inhibitors in triple-negative breast cancer. Cancer Res. 2023;83(10):1711-24.
- Joyce D, et al. NF-κB and cell-cycle regulation: The cyclin connection. Cytokine Growth Factor Rev. 2001;12(1):73-90.
- Iwanaga R, et al. Activation of the cyclin D2 and CDK6 genes through NF-κB is critical for cell-cycle progression induced by HTLV-I Tax. Oncogene. 2008;27(42):5635-42.
- Zhou B, et al. Bortezomib suppresses self-renewal and leukemogenesis of leukemia stem cells by NF-κB-dependent inhibition of CDK6 in MLL-rearranged myeloid leukemia. J Cell Mol Med. 2021;25(6):3124-35.
- Yu M, et al. Baicalein increases cisplatin sensitivity of A549 lung adenocarcinoma cells via the PI3K/AKT/NF-κB pathway. Biomed Pharmacother. 2017;90:677-85.
- Petroni G, et al. IL-17A-secreting γδ T cells promote resistance to CDK4/CDK6 inhibitors in HR-positive/HER2-negative breast cancer via CX3CR1-positive macrophages. Nat Cancer. 2025;6(10):1656-75.
- Luo L, et al. Single-cell RNA sequencing identifies molecular biomarkers predicting late progression to CDK4/6 inhibition in patients with HR-positive/HER2-negative metastatic breast cancer. Mol Cancer. 2025;24(1):48.
- Komuro H, et al. Single-cell sequencing of CD8-positive tumor-infiltrating lymphocytes revealed the nature of exhausted T cells recognizing neoantigens and cancer/testis antigens in non-small cell lung cancer. J Immunother Cancer. 2023;11(8):e007180.
- Rafei H, et al. CREM is a regulatory checkpoint of CAR and IL-15 signalling in NK cells. Nature. 2025;643(8073):1076-86.
- Van Elsas MJ, et al. Immunotherapy-activated T cells recruit and skew late-stage activated M1-like macrophages that are critical for therapeutic efficacy. Cancer Cell. 2024;42(6):1032-50.e1010.
- Yang J, et al. STK11 coordinates IL-4 signaling with metabolic reprogramming to control M2 macrophage polarization and antitumor immunity. Sci Adv. 2025;11(39):eadx5495.