Questo protocollo descrive un modello murino di lesione polmonare associata alla malattia da coronavirus 2019 indotta da somministrazione combinata per via intranasale di sindrome respiratoria acuta grave da coronavirus 2 e lipopolisaccaride. Il modello consente lo studio delle risposte infiammatorie polmonari, delle risposte interferoniche di tipo I compromesse e di potenziali interventi terapeutici.
Articolo metodologico
Un modello murino di danno polmonare associato alla malattia da coronavirus 2019 indotto da coronavirus 2 della sindrome respiratoria acuta grave e lipopolisaccaride
33 visualizzazioni
⸱
11 settembre 2026
* These authors contributed equally
In questo articolo
Sommario
Abstract
Nonostante l'ampia diffusione della vaccinazione e delle terapie antivirali, l'infezione da SARS-CoV-2 continua a causare una significativa morbosità e mortalità tra le popolazioni vulnerabili, evidenziando l'urgente necessità di modelli sperimentali affidabili per studiare la patogenesi del COVID-19, chiarire i meccanismi d'azione dei farmaci e valutare potenziali strategie terapeutiche. L'infezione da SARS-CoV-2 può provocare un grave danno polmonare, caratterizzato da eccessive risposte infiammatorie e da un'immunità antivirale mediata dall'interferone di tipo I (IFN-I) compromessa; tuttavia, i modelli animali attualmente disponibili presentano limitazioni nel riprodurre le risposte immuno-infiammatorie alterate associate al COVID-19. È stato sviluppato un modello murino di danno polmonare indotto da SARS-CoV-2 e LPS per riprodurre caratteristiche immunopatologiche chiave del COVID-19. Questo modello induce marcature evidenti di alterazioni patologiche nel tessuto polmonare, inclusa l'infiltrazione di cellule infiammatorie, la distruzione della struttura alveolare e un'espressione elevata di citochine pro-infiammatorie, accompagnate da risposte IFN-I compromesse. Lo studio fornisce una descrizione dettagliata delle procedure utilizzate per stabilire il modello murino di danno polmonare indotto da SARS-CoV-2 e LPS e caratterizza sistematicamente il modello attraverso l'analisi delle alterazioni istopatologiche polmonari, del carico virale, delle citochine infiammatorie e dei livelli di IFN-I. Questo modello offre una piattaforma sperimentale per indagare i meccanismi immuno-infiammatori alla base del danno polmonare associato al COVID-19 e i processi coinvolti nella riparazione del tessuto polmonare, fornendo al contempo una base per valutare strategie terapeutiche finalizzate a ridurre la disregolazione immuno-infiammatoria e promuovere il recupero della funzione polmonare.
Introduzione
Da quando è emerso alla fine del 2019, il SARS-CoV-2 ha causato una sfida globale per la salute pubblica, e l'evoluzione virale in corso continua a rappresentare una minaccia per i vaccini e le strategie terapeutiche esistenti1,2,3. Pertanto, ulteriori indagini sui danni polmonari associati al COVID-19 sono essenziali per chiarire i meccanismi della malattia e per sviluppare strategie terapeutiche più efficaci.
L'infezione da SARS-CoV-2 può causare un grave danno polmonare e può persino progredire verso la sindrome da distress respiratorio acuto (ARDS) e la sindrome da disfunzione multiorgano4,5. Un numero crescente di evidenze suggerisce che la patogenesi del danno polmonare associato al COVID-19 sia altamente complessa, con un tratto distintivo chiave rappresentato dalla disregolazione delle risposte immunitarie e infiammatorie6,7,8,9. Da un lato, l'infezione da SARS-CoV-2 può indurre una risposta infiammatoria eccessiva, portando al rilascio massiccio di citochine pro-infiammatorie come l'interleuchina-6 (IL-6), l'interleuchina-1β (IL-1β) e il fattore di necrosi tumorale-α (TNF-α), innescando così quella che è nota come "tempesta di citochine"10,11, considerata un fattore principale del danno polmonare e della progressione della malattia. Dall'altro lato, nelle fasi iniziali dell'infezione, l'SARS-CoV-2 può sopprimere la risposta IFN-I dell'ospite attraverso diversi meccanismi, causando un'alterazione dell'immunità antivirale mediata dall'IFN-I12,13,14. Di conseguenza, una risposta ritardata all'interferone accompagnata da livelli elevati di citochine pro-infiammatorie è considerata una caratteristica distintiva del COVID-196,15.
Gli attuali modelli animali disponibili per il COVID-19 si basano in larga misura su topi transgenici per hACE2, ceppi virali adattati al topo o altre specie come furetti e primati non umani16,17. Tuttavia, i modelli convenzionali di infezione da SARS-CoV-2 nei topi spesso non riescono a riprodurre pienamente le caratteristiche iperinflammatory del COVID-1918,19,20. Il LPS, un agonista del TLR4, induce risposte infiammatorie robuste ed è ampiamente utilizzato nei modelli di lesione polmonare acuta21. Pertanto, il modello indotto da SARS-CoV-2 e LPS descritto in questo studio è stato ideato per indagini mirate alla lesione polmonare associata al COVID-19, in particolare ai meccanismi sottostanti l'attivazione infiammatoria eccessiva e le risposte immunitarie antivirali compromesse. Rispetto ai modelli basati esclusivamente su SARS-CoV-2, questo approccio enfatizza le caratteristiche immuno-infiammatorie pur mantenendo il contesto dell'infezione virale. Questo modello presenta un notevole potenziale per lo studio dei meccanismi immuno-infiammatori, piuttosto che per la modellizzazione della trasmissione virale o dell'intero decorso naturale dell'infezione da SARS-CoV-2.
Questo protocollo descrive la procedura per l'allestimento di un modello murino di danno polmonare associato al COVID-19 indotto da SARS-CoV-2 e LPS. Considerate le limitazioni dei modelli esistenti nel riprodurre la disregolazione immuno-infiammatoria associata al COVID-19, questo approccio fornisce una piattaforma pratica per lo studio dei meccanismi della malattia e la valutazione di potenziali strategie terapeutiche. Il modello è stato valutato sistematicamente mediante istopatologia polmonare, carica virale, citochine infiammatorie e risposte dell'IFN-I.
Protocollo
Questo studio ha stabilito un modello murino di lesione polmonare associata al COVID-19 mediante instillazione intranasale di SARS-CoV-2 e LPS, fornendo un'alternativa stabile ed economica ai modelli murini transgenici. Il protocollo sperimentale è stato approvato dal Centro Sichuan per il Controllo e la Prevenzione delle Malattie ed ha ricevuto l'approvazione etica per la sperimentazione animale [Sichuan CDC (Approvazione Etica Animali) Numero 005 (2025)]. Tutte le procedure sono state condotte in rigoroso accordo con le linee guida pertinenti e le normative di biosicurezza.
Informazioni dettagliate sui reagenti principali e sull'equipaggiamento sono fornite nella Tabella dei Materiali.
1. Progettazione del protocollo di studio
- Assegnare casualmente i topi BALB/c al gruppo di controllo o al gruppo modello.
- Somministrare SARS-CoV-2 per via intranasale ai topi del gruppo modello al giorno 0.
- Somministrare LPS per via intranasale ai topi del gruppo modello al giorno 2.
- Somministrare un volume equivalente di soluzione salina fisiologica per via intranasale ai topi di controllo nei corrispondenti punti temporali.
- Sacrificare tutti i topi al giorno 3 dopo l'infezione da SARS-CoV-2 e raccogliere il tessuto polmonare per la validazione del modello.
NOTA: Il flusso sperimentale è illustrato in Figura 1A.
2. Preparazione
- Preparazione degli animali
- Utilizzare topi femmine BALB/c specific pathogen-free (SPF) di età compresa tra 6 e 8 mesi e del peso di circa 25–30 g.
- Assegnare casualmente i topi a un gruppo di controllo o a un gruppo modello utilizzando una tabella di numeri casuali, con quattro animali per gruppo.
- Allevare i topi in condizioni standard di laboratorio con libero accesso a cibo e acqua.
NOTA: Studi precedenti hanno dimostrato che i topi anziani sono più suscettibili all'infezione intranasale da SARS-CoV-2 rispetto ai topi più giovani18,22. Pertanto, in questo studio sono stati selezionati topi BALB/c anziani per facilitare l'allestimento di un modello di danno polmonare associato a SARS-CoV-2. - Inoculare ogni topo per via intranasale con 100 µL di sospensione virale, corrispondenti a una dose infettiva finale di 4,5 x 10⁵ TCID₅₀ per topo.
NOTA: Il SARS-CoV-2 è stato fornito dal Centro Sichuan per il Controllo e la Prevenzione delle Malattie. La variante utilizzata in questo studio era l'omikron di SARS-CoV-2, con un titolo del ceppo virale pari a 4,5 x 10⁶ TCID₅₀/mL.
ATTENZIONE: Poiché il SARS-CoV-2 è un microrganismo altamente patogeno, eseguire tutte le procedure relative al virus in un impianto di biosicurezza animale di livello 3 (ABSL-3). Ottimizzare la dose infettiva in base a esperimenti preliminari quando si utilizzano varianti virali diverse o modelli animali differenti.
- Preparazione della soluzione di lavoro
- Preparazione della soluzione madre di LPS: Pesare 3 mg di polvere di LPS e scioglierli in 1 mL di soluzione salina fisiologica. Mescolare delicatamente o agitare con vortice fino a completo scioglimento per ottenere una soluzione madre alla concentrazione di 3 mg/mL. Prima dell'amministrazione, diluire ulteriormente la soluzione madre con soluzione salina fisiologica alla concentrazione di lavoro desiderata in base al peso corporeo dei topi.
- Preparazione della soluzione anestetica: Ricostruire la polvere con l'acqua sterile per iniezione fornita nel pacchetto di Zoletil per preparare una soluzione al rapporto massa/volume richiesto per l'uso successivo.
- Preparazione della soluzione virale di lavoro: Scongelare lentamente su ghiaccio 1 mL di sospensione virale di SARS-CoV-2 all'interno di un armadio di sicurezza biologica prima dell'uso.
NOTA: Seguire le istruzioni dei rispettivi produttori durante la preparazione e l'uso di tutte le soluzioni di lavoro.
3. Amministrazione intranasale nei topi
- Pesare ogni topo prima della somministrazione e registrare il peso corporeo.
- Calcolare le dosi di Zoletil e LPS in base al peso corporeo di ciascun topo.
- Preparare le soluzioni operative corrispondenti e prelevare i volumi richiesti utilizzando una siringa adeguata per la successiva somministrazione.
- Contenzione del topo: Afferrare delicatamente il topo per la nuca utilizzando il pollice e l'indice della mano sinistra, tenendo la pelle dietro le orecchie e il collo.
- Posizionare l'animale sul palmo della mano, usando l'anulare e il mignolo per fissare il dorso e la coda. Posizionare il topo in posizione supina, con l'addome completamente esposto e il corpo stabilizzato.
- Disinfezione: Disinfettare il sito di iniezione addominale con etanolo al 75% utilizzando un batuffolo sterile.
- Anestesia: Inserire l'ago della siringa contenente Zoletil (25 mg/kg) a circa 0,5 cm lateralmente rispetto alla linea mediana dell'addome inferiore. Inserire l'ago con un angolo di 45° nella cavità peritoneale fino a una profondità di circa 2–3 mm dopo aver perforato la cute. Aspirare per verificare l'assenza di sangue, quindi somministrare lentamente l'anestetico.
NOTA: Ottimizzare la dose anestetica in base a esperimenti pilota per garantire un'adeguata anestesia e ridurre al minimo la mortalità. Evitare punture ripetute per minimizzare i danni ai tessuti. - Conferma dell'anestesia: Confermare lo stato anestetico osservando una respirazione stabile e regolare, senza segni di dispnea o difficoltà respiratorie.
- Instillazione intranasale di SARS-CoV-2 (giorno 0): Somministrare lentamente, goccia a goccia, 100 µL di sospensione virale di SARS-CoV-2 (50 µL per narice) sulle narici esterne utilizzando una micropipetta o una siringa durante un ciclo respiratorio regolare e all'inizio dell'inspirazione.
- Alternare le narici per favorire un'inalazione uniforme. Trattare i topi di controllo con un volume uguale di soluzione salina fisiologica utilizzando la stessa procedura.
NOTA: Somministrare la soluzione goccia a goccia, assicurandosi che ogni goccia venga inalata nella cavità nasale prima di applicare la successiva, fino al raggiungimento del volume desiderato. - Gestione post-somministrazione: Mantenere la testa del topo leggermente sollevata per circa 30–60 s dopo l'instillazione intranasale, per favorire il raggiungimento delle vie respiratorie inferiori. Riportare i topi nelle loro gabbie non appena si osservano segni di risveglio dall'anestesia e monitorarli fino al completo recupero della coscienza.
- Registrazione e monitoraggio: Registrare il volume somministrato e il numero di identificazione di ciascun topo. Monitorare gli animali continuamente per tutta la durata dell'esperimento per valutarne la sopravvivenza e le condizioni fisiologiche generali.
- Instillazione intranasale di LPS (giorno 2): Somministrare LPS ai topi al giorno 2 post-infezione da SARS-CoV-2. Eseguire l'amministrazione intranasale di LPS (5 mg/kg) seguendo lo stesso protocollo utilizzato per la somministrazione di SARS-CoV-2. Somministrare un volume uguale di soluzione salina fisiologica ai topi di controllo utilizzando la stessa procedura.
NOTA: In questa fase, LPS e soluzione salina fisiologica sono stati somministrati seguendo la stessa procedura dell'inoculazione di SARS-CoV-2, inclusa l'anestesia e la somministrazione intranasale.
4. Dissezione del topo e raccolta del tessuto polmonare
- Eutanasia i topi al giorno 3 post infezione da SARS-CoV-2 per il prelievo dei tessuti. Anestetizzare prima gli animali e quindi sacrificarli mediante dislocazione cervicale. Trattare i topi di controllo con lo stesso procedimento.
NOTA: Per procedure dettagliate relative alla dislocazione cervicale, consultare il File Supplementare 1. - Fissare il topo eutanasizzato in posizione supina su un tavolo da dissezione, esponendo completamente le regioni addominale e toracica. Inumidire il pelo addominale con etanolo al 75% per ridurre al minimo la contaminazione.
- Utilizzare forbici sterili per tagliare con attenzione lo sterno lungo i margini costali bilaterali e aprire gradualmente la cavità toracica. Usare pinze per retrarre delicatamente i tessuti ed estrarre i polmoni passo dopo passo dalle strutture toraciche circostanti, minimizzando i danni meccanici al tessuto polmonare.
NOTA: Controllare con attenzione l'orientamento delle punte delle forbici durante il taglio per evitare lesioni a cuore, polmoni e strutture vascolari principali. - Immergere immediatamente i tessuti polmonari asportati in PBS pre-rafreddato o soluzione fisiologica e risciacquarli delicatamente 2–3 volte per rimuovere il sangue residuo e i detriti. Asciugare con cura l’eccesso di liquido superficiale utilizzando carta filtro senza lanugine ed evitare compressioni per prevenire danni strutturali al tessuto.
- Pesare immediatamente i tessuti polmonari elaborati utilizzando una bilancia elettronica e registrare le misurazioni.
- Asportare il lobo caudale destro e fissarlo immediatamente in paraformaldeide al 4% in un volume pari a dieci volte quello del tessuto, per l’analisi istopatologica successiva.
ATTENZIONE: La paraformaldeide è tossica; maneggiarla seguendo le linee guida di sicurezza istituzionali. - Raccogliere i tessuti polmonari rimanenti, suddividerli in aliquote in crioprovette, congelarli rapidamente in azoto liquido e conservarli a −80 °C. Destinare il lobo craniale destro, il lobo medio destro e il lobo accessorio alla rilevazione del carico virale di SARS-CoV-2 e delle citochine pro-infiammatorie, e riservare il polmone sinistro per l’analisi mediante ELISA.
ATTENZIONE: L’azoto liquido è estremamente freddo; indossare guanti criogenici e occhiali di sicurezza adeguati durante la manipolazione per prevenire ustioni da freddo o congelamento. - Pulire e sterilizzare accuratamente tutti gli strumenti secondo le procedure standard dopo aver completato la dissezione. Smaltire carcasse animali e rifiuti biologici in conformità con le linee guida istituzionali e normative per gli esperimenti sugli animali.
5. Colorazione con ematossilina-eosina (HE)23
- Fissare i tessuti polmonari freschi in paraformaldeide al 4% a temperatura ambiente per 24 h.
NOTA: Controllare attentamente il tempo di fissazione. Evitare una fissazione insufficiente, che potrebbe causare una conservazione incompleta del tessuto, e una fissazione prolungata, che potrebbe provocare un'eccessiva reticolazione delle proteine e compromettere la qualità della colorazione. - Processare i tessuti fissati mediante un'apparecchiatura automatica per l'elaborazione dei tessuti, eseguendo una disidratazione graduale, una chiarificazione e un'infiltrazione con paraffina.
NOTA: Il protocollo per il processore automatico dei tessuti è fornito in File Supplementare 2. - Posizionare i tessuti infiltrati con paraffina nei stampi di inclusione. Aggiungere paraffina fusa e orientare accuratamente il tessuto.
- Trasferire gli stampi su una piastra fredda per la solidificazione. Rimuovere i blocchi di paraffina dagli stampi dopo un completo indurimento.
- Montare i blocchi di paraffina su un microtomo e regolare la superficie di taglio in modo che sia parallela alla lama. Ottenere sezioni seriali con uno spessore di circa 3–5 µm.
- Trasferire immediatamente i campioni in un bagnomaria a circa 45 °C per consentire un'espansione completa della galleggiabilità.
- Prelevare le sezioni utilizzando le lamelle immergendo verticalmente un'estremità della lamella nell'acqua e usare pinzette per favorire l'adesione corretta delle sezioni sulla superficie della lamella.
- Posizionare i vetrini in un 65 °C essiccatore per vetrini per circa 1 h per migliorare l'adesione del tessuto.
NOTA: Regolare il tempo di essiccazione in base al tipo di tessuto, allo spessore delle sezioni e alle condizioni dell'apparecchiatura. Evitare il surriscaldamento per prevenire danni ai tessuti. - Eseguire la colorazione con ematossilina-eosina (HE) sulle sezioni essiccate utilizzando un coloratore automatico.
NOTA: Il protocollo per lo strumento di colorazione automatica è fornito in File Supplementare 3. - Rimuovere le sezioni colorate e farle asciugare all'aria. Applicare una goccia di mezzo di montaggio neutro e coprire con un coprioggetti. Esaminare le sezioni al microscopio ottico dopo che il mezzo di montaggio si è solidificato.
6. Espressione della carica virale di SARS-CoV-2 e delle citochine pro-infiammatorie nel tessuto polmonare
- Omosessazione del tessuto polmonare
- Preparare tubi per omogenizzazione privi di RNasi aggiungendo 4–5 sfere di acciaio inossidabile (3 mm di diametro) e 900 µL di buffer di lisi pre-raffreddato come mezzo di omogenizzazione.
NOTA: Regolare il volume del buffer di lisi in base al peso del tessuto, tipicamente in un rapporto di circa 9 mL per 1 g di tessuto. - Pesare circa 50 mg di tessuto polmonare, tritare finemente il tessuto e trasferirlo nel tubo di omogenizzazione.
- Omosessare il tessuto utilizzando un omogenizzatore tissutale (60 Hz, 60 s, per 2–3 cicli con intervalli di 10 s tra i cicli).
NOTA: Ottimizzare i parametri di omogenizzazione in base allo strumento e al tipo di tessuto. - Ispezionare il campione dopo l’omogenizzazione per assicurarsi che l’omogenato sia completamente disgregato. Ripetere il processo di omogenizzazione se persistono frammenti visibili di tessuto, fino a ottenere un lisato uniforme.
- Preparare tubi per omogenizzazione privi di RNasi aggiungendo 4–5 sfere di acciaio inossidabile (3 mm di diametro) e 900 µL di buffer di lisi pre-raffreddato come mezzo di omogenizzazione.
- Estrazione di RNA totale dal tessuto polmonare mediante colonna
NOTA: Estrarre l'RNA totale dal tessuto polmonare utilizzando un metodo di purificazione su colonna seguendo le istruzioni del produttore. Eseguire metodi alternativi di estrazione dell'RNA seguendo i manuali dei prodotti corrispondenti quando applicabile.- Trasferire l’omogenato in un nuovo tubo microcentrifugo da 2 mL privo di RNasi. Aggiungere 100 µL di soluzione gDNA Eliminator. Chiudere bene il tappo del tubo e agitare vigorosamente per 15–20 s.
- Aprire brevemente il tappo, aggiungere 180 µL di cloroformio e vortexare accuratamente per 15 s.
ATTENZIONE: Il cloroformio è volatile e tossico; maneggiarlo in un'area ben ventilata o in una cappa chimica indossando dispositivi di protezione personale adeguati per evitare inalazione e contatto con la pelle. - Incubare il campione a temperatura ambiente per 2 min e quindi centrifugare a 12.000 x g per 15 min a 4 °C.
- Trasferire con attenzione la fase acquosa superiore in un nuovo tubo. Aggiungere un volume uguale di etanolo al 70% e mescolare accuratamente mediante vortex.
NOTA: Evitare di disturbare l’interfase e lo strato organico durante il prelievo della fase acquosa per garantire la purezza dell’RNA. Procedere direttamente al passaggio successivo dopo l’aggiunta dell’etanolo al 70%, senza centrifugazione. - Trasferire la miscela in una colonna da centrifuga e centrifugare a 8.000 x g per 15 s. Scartare il flusso passante.
- Aggiungere 700 µL di buffer di lavaggio sulla colonna da centrifuga e centrifugare a 8.000 x g per 15 s. Scartare il flusso passante.
- Aggiungere 500 µL di buffer di lavaggio sulla colonna da centrifuga e centrifugare a 8.000 x g per 15 s. Ripetere questo passaggio di lavaggio una volta.
- Trasferire la colonna da centrifuga in un nuovo tubo di raccolta e centrifugare a 12.000 x g per 1 min per rimuovere il residuo di buffer di lavaggio.
- Posizionare la colonna da centrifuga in un nuovo tubo microcentrifugo da 1,5 mL privo di RNasi. Aggiungere 30 µL di acqua priva di RNasi direttamente al centro della membrana e centrifugare a 8.000 x g per 1 min per eluire l’RNA.
NOTA: Regolare il volume di acqua priva di RNasi tra 30–50 µL in base alle applicazioni successive. Utilizzare un volume di eluizione più basso quando è richiesta una concentrazione maggiore di RNA.
- Rilevamento del carico virale di SARS-CoV-2 mediante PCR digitale a trascrizione inversa (RT-dPCR)
NOTA: È stato impiegato un saggio RT-dPCR in un unico passaggio per la quantificazione assoluta dell'RNA di SARS-CoV-2. Sono stati utilizzati set specifici di primer-probe rivolti al gene della nucleocapside (N) per determinare il numero di copie di RNA virale.- Scongelare i campioni di RNA e i reagenti sul ghiaccio.
- Preparare la miscela di reazione per RT-dPCR seguendo le istruzioni del produttore.
- Combinare 20 µL di miscela di reazione RT-dPCR con 20 µL di stampo di RNA. Vortexare brevemente la miscela, centrifugare con una breve rotazione e mantenerla sul ghiaccio.
- Caricare la miscela di reazione da 40 µL nelle camere della chip per PCR digitale e sigillare la chip seguendo il protocollo dello strumento.
- Eseguire l'amplificazione utilizzando le seguenti condizioni di termociclaggio: 50 °C per 40 min (1 ciclo), 95 °C per 2 min (1 ciclo), seguiti da 40 cicli di 95 °C per 15 s e 57 °C per 60 s. Impostare i canali di rilevamento su VERDE (250 ms) e ROSSO (150 ms).
- Rilevamento dell'espressione delle citochine infiammatorie mediante PCR quantitativa a trascrizione inversa (RT-qPCR)
- Determinare concentrazione e purezza dell'RNA utilizzando uno spettrofotometro UV.
- Utilizzare 1.000 ng di RNA totale per ogni reazione per la trascrizione inversa al fine di sintetizzare il DNA complementare (cDNA) seguendo le istruzioni del produttore.
- Eseguire la RT-qPCR utilizzando 100 ng di cDNA per reazione come stampo, con una miscela master PCR SYBR Green e primer specifici per il gene. Utilizzare le seguenti condizioni di ciclaggio: 95 °C per 2 min, seguiti da 40 cicli di 95 °C per 5 s e 60 °C per 10 s. Le sequenze dei primer sono elencate in Tabella 1.
NOTA: Ottimizzare le condizioni di reazione in base ai reagenti e agli strumenti specifici utilizzati, seguendo le istruzioni del produttore corrispondente. - Utilizzare GAPDH come gene di riferimento interno e calcolare i livelli di espressione genica relativi mediante il metodo 2−ΔΔCt.
7. Rilevamento di citochine pro-infiammatorie nel tessuto polmonare mediante saggio immunoenzimatico (ELISA)24
NOTA: utilizzare i kit ELISA seguendo i protocolli specifici forniti dai diversi produttori. Seguire rigorosamente le istruzioni del produttore corrispondente quando si utilizzano kit provenienti da fornitori alternativi.
- Omogeneizzare il tessuto polmonare come descritto in precedenza. Utilizzare PBS o un buffer di lisi specifico per ELISA come mezzo di omogeneizzazione.
- Centrifugare i campioni omogeneizzati (ad esempio, 12.000 x g, 4 °C, 10 min) e raccogliere il sopranatante per le analisi successive.
- Portare il kit ELISA a temperatura ambiente per 30 minuti prima dell'uso. Rimuovere le strisce microplacca necessarie dalla busta in foglio di alluminio.
- Preparare i campioni standard, i pozzetti del campione e i pozzetti bianco secondo le istruzioni del produttore. Aggiungere 50 µL di standard nei pozzetti standard e 10 µL di campione più 40 µL di buffer di diluizione del campione nei pozzetti del campione. Eseguire due replicati tecnici per ciascuno standard e campione.
- Aggiungere 100 µL di anticorpo di rilevamento coniugato con perossidasi di rafano (HRP) in ogni pozzetto di standard e di campione, tranne che nei pozzetti bianco. Sigillare la piastra con pellicola adesiva e incubare a 37 °C per 60 minuti.
- Dopo l'incubazione, eliminare il liquido da ciascun pozzetto e battere delicatamente la piastra su carta assorbente per rimuovere il fluido residuo.
- Aggiungere il buffer di lavaggio in ogni pozzetto, lasciarlo in posa per 1 minuto, quindi eliminare il buffer. Asciugare la piastra tamponandola. Ripetere questo passaggio di lavaggio per un totale di cinque volte.
- Aggiungere sequenzialmente 50 µL di soluzione substrato A e 50 µL di soluzione substrato B in ciascun pozzetto. Mescolare delicatamente la piastra e incubarla a 37 °C al buio per 15 minuti per consentire lo sviluppo del colore.
- Interrompere la reazione aggiungendo 50 µL di soluzione di arresto in ciascun pozzetto. Misurare la densità ottica (OD) entro 10 minuti a 450 nm utilizzando un lettore microplacca.
- Generare una curva standard riportando in grafico le concentrazioni degli standard (asse x) rispetto ai valori di OD (asse y) e interpolare la curva. Calcolare le concentrazioni delle citochine bersaglio nei campioni sostituendo i valori di OD nell'equazione della curva standard e moltiplicando per i fattori di diluizione corrispondenti.
- Determinare la concentrazione proteica totale nel tessuto polmonare utilizzando un kit per saggio proteico BCA. Normalizzare i livelli finali di citochine al contenuto proteico totale ed esprimere i risultati come quantità di citochina bersaglio per milligrammo di proteina totale (ad esempio, pg/mg di proteina).
Risultati
La validazione del modello è stata eseguita valutando i cambiamenti istopatologici polmonari, il carico virale di SARS-CoV-2 e i livelli di citochine pro-infiammatorie e interferoni di tipo I sia nei gruppi di controllo che in quelli del modello.
Analisi statistica
I dati sono espressi come media ± errore standard (SE). Per i confronti tra il gruppo modello e il gruppo di controllo è stato utilizzato un test t di Student non appaiato. Questo test è stato scelto perché è appropriato per confrontare le medie di variabili continue tra due gruppi indipendenti. In questo studio, i topi sono stati assegnati in modo indipendente e casuale ai due gruppi, soddisfacendo l'assunzione di indipendenza dei campioni. Un valore di p < 0,05 è stato considerato statisticamente significativo.
Variazioni del peso corporeo e dell'indice polmonare nei topi
Come mostrato nella Figura 1B, rispetto ai valori basali prima della modellizzazione, il peso corporeo dei topi nel gruppo modello è risultato significativamente ridotto dopo l'infezione, con una differenza statisticamente significativa (p < 0,05). Come mostrato nella Figura 1C, l'indice polmonare dei topi nel gruppo modello è risultato significativamente aumentato rispetto a quello del gruppo di controllo (p < 0,01), in accordo con le caratteristiche tipiche del danno polmonare. Non è stata osservata mortalità durante il periodo sperimentale, e tutti i topi sono sopravvissuti fino al termine dello studio.
Modifiche istopatologiche nel tessuto polmonare e carica virale di SARS-CoV-2 nei topi
Figura 2 mostra le alterazioni istopatologiche e il carico virale nei tessuti polmonari dei topi di entrambi i gruppi. La colorazione con ematossilina-eosina ha rivelato che il gruppo di controllo presentava un'architettura polmonare integra, mentre il gruppo modello mostrava notevoli alterazioni patologiche polmonari, tra cui un ispessimento del setto alveolare, infiltrazione di cellule infiammatorie e alterazione della struttura alveolare (Figura 2A). Un'analisi quantitativa ha ulteriormente confermato che sia il punteggio di danno polmonare sia il punteggio di infiammazione alveolare erano significativamente aumentati nel gruppo modello rispetto al gruppo di controllo (p < 0,001), dimostrando l'induzione efficace di lesioni polmonari e risposte infiammatorie (Figura 2B,C).
Inoltre, è stato rilevato un livello significativo di espressione dell'RNA di SARS-CoV-2 nei tessuti polmonari del gruppo modello. Al terzo giorno post-infezione, il carico virale medio nel tessuto polmonare ha raggiunto 5,5 x 10⁸ copie/g (Figura 2D), indicando una replicazione virale avvenuta con successo e una presenza sostenuta a livelli elevati nel polmone.
Modifiche nei citochine pro-infiammatorie e nell'IFN-I nel tessuto polmonare del topo
Figura 3 illustra le variazioni nei citochine infiammatorie e nell'IFN-I nel tessuto polmonare del topo. I risultati hanno mostrato che, rispetto al gruppo di controllo, l'espressione dell'mRNA e i livelli proteici di IL-6, IL-1β e TNF-α nel tessuto polmonare del gruppo modello erano significativamente aumentati (p < 0,05) (Figura 3A–F), indicando una marcata attivazione della risposta infiammatoria. Al contrario, i risultati dell'ELISA hanno dimostrato che i livelli di IFN-α e IFN-β nel tessuto polmonare del gruppo modello erano significativamente ridotti rispetto a quelli del gruppo di controllo (p < 0,001) (Figura 3G,H), suggerendo una soppressione della risposta immunitaria antivirale.
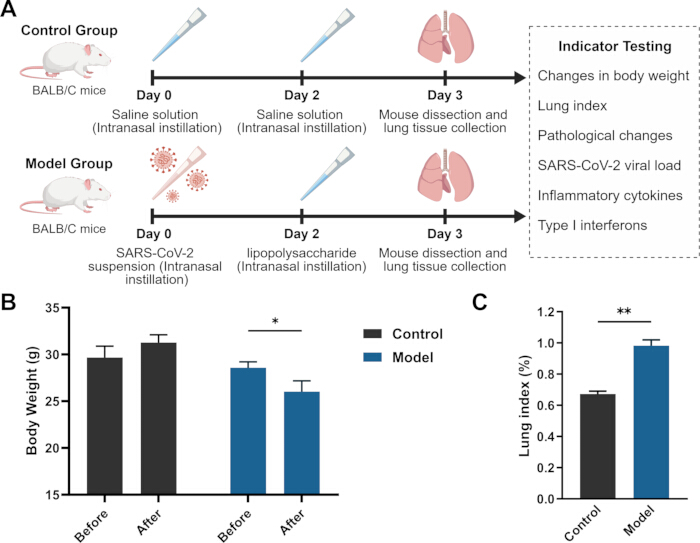
Figura 1: Diagramma del flusso sperimentale e variazioni del peso corporeo e dell'indice polmonare nei topi. (A) Diagramma del flusso sperimentale. (B) Variazioni del peso corporeo nei topi. (C) Variazioni dell'indice polmonare nei topi. I dati sono espressi come media ± errore standard (SE) per ciascun gruppo. Il test t di Student è stato utilizzato per valutare le differenze statistiche tra i gruppi. *p < 0,05; **p < 0,01; ***p < 0,001. Figura 1A è stata creata con BioGDP.com25. Cliccare qui per visualizzare una versione ingrandita di questa figura.
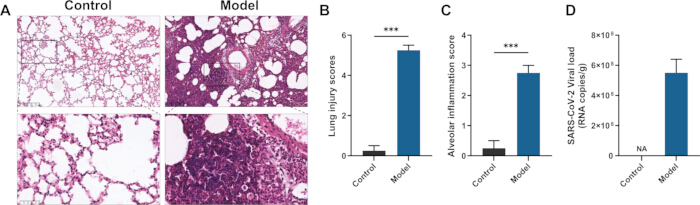
Figura 2: Modifiche istopatologiche e carico virale di SARS-CoV-2 nel tessuto polmonare di topo. (A) Colorazione con ematossilina-eosina (HE) del tessuto polmonare di topo. (B) Punteggio di danno polmonare (punteggio di Smith). (C) Punteggio di infiammazione alveolare (punteggio di Szapiel). (D) Carico virale di SARS-CoV-2 nel tessuto polmonare. I dati sono mostrati come media ± errore standard (SE) per ciascun gruppo. Per valutare le differenze statistiche tra i gruppi è stato utilizzato il test t di Student. *p < 0,05; **p < 0,01; ***p < 0,001. Cliccare qui per visualizzare una versione ingrandita di questa figura.
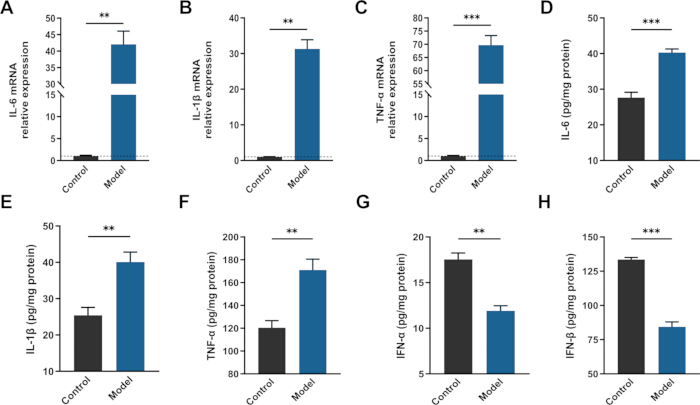
Figura 3: Variazioni delle citochine pro-infiammatorie e dell'IFN-I nel tessuto polmonare del topo. (A–C) Espressione relativa di mRNA delle citochine pro-infiammatorie IL-6, IL-1β e TNF-α nel tessuto polmonare del topo. (D–F) Livelli proteici di IL-6, IL-1β e TNF-α nel tessuto polmonare del topo. (G–H) Livelli di IFN-α e IFN-β nel tessuto polmonare del topo. I dati sono espressi come media ± errore standard (SE) per ciascun gruppo. Per valutare le differenze statistiche tra i gruppi è stato utilizzato il test t di Student. *p < 0,05; **p < 0,01; ***p < 0,001. Cliccare qui per visualizzare una versione ingrandita di questa figura.
| Primer | Sequenza diretta (5’ a 3’) | Sequenza inversa (5’ a 3’) |
| IL-6 | CTTCTTGGGACTGATGCTGGTGAC | AGGTCTGTTGGGAGTGGTATCCTC |
| IL-1β | TCGCAGCAGCACATCAACAAGAG | AGGTCCACGGGAAAGACACAGG |
| TNF-α | GCCTCTTCTCATTCCTGCTTGTGG | GTGGTTTGTGAGTGTGAGGGTCTG |
| GAPDH | GGCAAATTCAACGGCACAGTCAAG | TCGCTCCTGGAAGATGGTGATGG |
Tabella 1: Sequenze dei primer utilizzate in questo studio. Sono elencate le sequenze dei primer diretti e inversi (da 5′ a 3′) per i geni bersaglio e i geni di riferimento interni.
File Supplementare 1 Cliccare qui per scaricare il file.
File Supplementare 2 Cliccare qui per scaricare il file.
File Supplementare 3 Cliccare qui per scaricare questo file.
Discussione
Questo studio ha stabilito un modello murino di lesione polmonare associata al COVID-19 mediante instillazione intranasale di SARS-CoV-2 e LPS. I risultati hanno dimostrato che la somministrazione intranasale congiunta di SARS-CoV-2 e LPS induce una marcata risposta infiammatoria accompagnata da soppressione del segnale di IFN-I. I topi del gruppo modello hanno mostrato una significativa perdita di peso corporeo e un aumento dell'indice polmonare, indicativo di un'alterazione sistemica e di un aggravamento della lesione polmonare. La colorazione ematossilina-eosina ha ulteriormente confermato che il gruppo modello presentava una lesione polmonare diffusa tipica, caratterizzata da alterazione dell'architettura alveolare e da un'intensa infiltrazione di cellule infiammatorie. Inoltre, rispetto al gruppo di controllo, i tessuti polmonari del gruppo modello hanno mostrato un'espressione significativamente aumentata di citochine pro-infiammatorie chiave, tra cui IL-6, IL-1β e TNF-α, mentre i livelli di IFN-α e IFN-β risultavano notevolmente ridotti. Questi risultati suggeriscono uno stato di squilibrio immunitario caratterizzato da un'eccessiva attivazione delle risposte pro-infiammatorie accompagnata da una ridotta immunità antivirale, supportando ulteriormente il potenziale valore di questo modello nel riprodurre le caratteristiche immunopatologiche della malattia.
L'infezione da SARS-CoV-2 è considerata un fattore centrale nella comparsa dei danni organici associati al COVID-1926,27. In questo studio, un carico virale elevato è stato rilevato nei tessuti polmonari di topi modello, accompagnato da un marcato danno polmonare diffuso e infiltrazione di cellule infiammatorie, suggerendo che l'infezione virale possa essere un fattore scatenante chiave della risposta infiammatoria polmonare. In accordo con studi precedenti, l'infezione da SARS-CoV-2 può indurre alterazioni patologiche polmonari e attivazione immunitaria28; tuttavia, i modelli convenzionali di infezione da SARS-CoV-2 nei topi spesso mostrano risposte infiammatorie limitate e potrebbero non riprodurre completamente il fenotipo iperinfiammatorio osservato nei pazienti con COVID-1918,19,20. Pertanto, potrebbe essere necessaria un'ulteriore stimolazione dell'immunità innata per indagare meglio i meccanismi alla base della disregolazione immuno-infiammatoria associata alla malattia. Il LPS, un attivatore prototipico dell'immunità innata, si lega al recettore di tipo Toll 4 (TLR4) e attiva sia le vie di segnalazione dipendenti da MyD88 che quelle dipendenti da TRIF, attivando così programmi trascrizionali infiammatori chiave come NF-κB e inducendo l'espressione di numerose citochine pro-infiammatorie29. Studi precedenti hanno inoltre dimostrato che la stimolazione con LPS, sia in monoterapia che in combinazione con componenti legate al SARS-CoV-2, può potenziare le risposte infiammatorie e contribuire a fenotipi simili a lesioni polmonari acute, supportando la validità dell'utilizzo del LPS come stimolo infiammatorio nella ricerca sul COVID-1930,31,32. Nel presente studio, livelli significativamente elevati di IL-6, IL-1β e TNF-α sono stati osservati nei tessuti polmonari del gruppo modello, suggerendo che il LPS agisca come un amplificatore infiammatorio nel contesto dell'infezione da SARS-CoV-2, piuttosto che rappresentare semplicemente una coinfezione batterica. Rispetto ai modelli infiammatori indotti solo da LPS, privi di un background infettivo virale, il modello combinato sviluppato in questo studio integra le alterazioni immunitarie indotte dal SARS-CoV-2 con l'attivazione infiammatoria mediata dal LPS, fornendo così una piattaforma più completa per lo studio delle lesioni polmonari associate al COVID-19.
Gli IFN-I sono molecole effettrici chiave dell'immunità antivirale dell'ospite e svolgono ampie funzioni antivirali inducendo un'ampia gamma di geni stimolati dall'interferone (ISG)33. Tuttavia, è stato dimostrato che SARS-CoV-2 antagonizza la segnalazione degli IFN-I attraverso diversi meccanismi, tra cui l'interferenza con la trasduzione del segnale mediata dai recettori di riconoscimento di pattern (PRR), la soppressione dell'attivazione del fattore regolatore dell'interferone (IRF) e il blocco della segnalazione JAK-STAT a valle, compromettendo così le difese antivirali dell'ospite14,34. In questo studio, livelli significativamente ridotti di IFN-α e IFN-β sono stati osservati nei tessuti polmonari del gruppo modello, indicando che sotto gli effetti sinergici dell'infezione virale e della stimolazione con LPS, l'ospite manifestava non solo un'eccessiva attivazione infiammatoria, ma anche una contemporanea soppressione dell'immunità antivirale. Tale disregolazione immunitaria è considerata uno degli aspetti immunologici chiave nello sviluppo e nella progressione del COVID-198. Pertanto, il modello attuale riproduce parzialmente questo complesso processo patologico, fornendo uno strumento sperimentale prezioso per ulteriori indagini sulla disregolazione immunitaria associata al COVID-19 e per lo sviluppo di interventi terapeutici correlati.
Il modello murino di COVID-19 sviluppato in questo studio, basato sulla somministrazione concomitante di SARS-CoV-2 e LPS, è in grado di riprodurre caratteristiche chiave della patologia della malattia, inclusi livelli elevati di citochine pro-infiammatorie e soppressione della segnalazione dell'IFN-I, mimando così parzialmente lo squilibrio immunitario osservato nel danno polmonare associato alla COVID-19. Rispetto ai modelli di singola infezione virale, questo approccio combinato introduce uno stimolo esogeno del sistema immunitario innato per potenziare le risposte infiammatorie rilevanti per la malattia, consentendo quindi lo studio dei processi patologici associati a un'eccessiva infiammazione e a una compromessa immunità antivirale. Di conseguenza, questo modello potrebbe rivelarsi utile per valutare in vivo strategie sperimentali anti-infiammatorie, immunomodulanti e di riparazione polmonare, in particolare quelle mirate alla disregolazione immunitaria piuttosto che alla sola replicazione virale.
Tuttavia, è necessario riconoscere diversi limiti di questo studio. In primo luogo, l'LPS induce infiammazione principalmente attraverso l'attivazione di TLR4, il che non riflette appieno le complesse interazioni virus-ospite nel COVID-19 clinico e potrebbe alterare la risposta infiammatoria. In secondo luogo, sebbene esperimenti comparativi con gruppi solo SARS-CoV-2 e solo LPS siano stati eseguiti durante la fase preliminare di ottimizzazione, questi dati non sono inclusi nel manoscritto. Studi futuri valuteranno ulteriormente gli effetti individuali e combinati di SARS-CoV-2 e LPS per definire meglio il contributo di ciascun componente. In terzo luogo, questo modello è stato progettato per riprodurre le principali caratteristiche immunopatologiche del danno polmonare associato al COVID-19, in particolare la disregolazione immuno-infiammatoria, piuttosto che l'intero decorso naturale dell'infezione da SARS-CoV-2. Infine, sebbene la dose di SARS-CoV-2 e la concentrazione di LPS siano state determinate sulla base di esperimenti preliminari di ottimizzazione, le variazioni tra ceppi di topi, varianti virali, metodi di analisi e condizioni sperimentali potrebbero influenzare la riproducibilità del modello e richiedere ulteriori validazioni in diversi contesti di ricerca. Nelle condizioni ottimizzate descritte in questo protocollo, il tasso di successo complessivo di stabilimento del modello è stato di circa il 90%; tuttavia, questo valore può variare a seconda delle diverse impostazioni sperimentali. Studi futuri potrebbero ulteriormente ottimizzare questo modello introducendo diverse varianti di SARS-CoV-2, ceppi di topi geneticamente modificati o approcci avanzati di caratterizzazione immunitaria, come l'analisi trascrittomica a singola cellula, al fine di caratterizzare meglio le interazioni virus-ospite e identificare nuovi bersagli terapeutici. Questi sforzi potrebbero ulteriormente migliorare la rilevanza traslazionale di questo modello nella ricerca sul COVID-19.
Dichiarazioni
Gli autori non hanno conflitti di interessi da dichiarare.
Ringraziamenti
Questa ricerca è stata sostenuta dal National Natural Science Foundation of China (82374291); dal programma Sichuan Science and Technology (2024NSFJQ0059); dal progetto speciale di ricerca scientifica dell'Amministrazione Sichuan della Medicina Tradizionale Cinese (2024zd005); dal progetto 2022 “Tianfu Qingcheng Plan” per talenti scientifici e tecnologici leader di Tianfu (Chuan Qingcheng n. 1090); e dal Fondo congiunto per l'innovazione della Commissione Sanitaria di Chengdu e dell'Università di Medicina Tradizionale Cinese di Chengdu (WXLH202403091).
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| Processore tessuti automatico | Dakewe Biotech Co., Ltd. | HP300 | Utilizzato per la disidratazione dei tessuti. |
| Coloratore automatico | Leica Biosystems | LEICA ST5010 | Utilizzato per la colorazione con ematossilina-eosina (HE). |
| Centrifuga | DLAB Scientific | D3024R | Utilizzata per la centrifugazione di campioni o reagenti. |
| Bagno termostatato a temperatura costante | Shanghai LICHEN-BX Instrument Techonology Co., Ltd. | HH-6 | Utilizzato per bagni termostatati a temperatura costante. |
| Sistema di PCR digitale | QIAGEN | QIAcuity One | Utilizzato per la RT-dPCR. |
| TransScript All-in-One First-Strand cDNA Synthesis SuperMix per qPCR (One-Step gDNA Removal) | TransGen Biotech Co.,Ltd. | AT341 | Utilizzato per la trascrizione inversa. |
| Soluzione di eosina | BASO | BA4024 | Utilizzata per la colorazione istologica. |
| Sistema PCR quantitativo fluorescente | Rocgene (Beijing) Technology Co., Ltd. | Archimed X6 | Utilizzato per la RT-qPCR. |
| Soluzione di ematossilina | BASO | BA4041 | Utilizzata per la colorazione istologica. |
| Software IBM SPSS Statistics | IBM Corp., Armonk, NY, USA | versione 22.0 | Utilizzato per l'analisi statistica. |
| Lipopolisaccaridi da Escherichia coli O55:B5 | Sigma-Aldrich (Shanghai) Trading Co., Ltd. | L2880 | Utilizzati per la modellizzazione nei topi. |
| Lettore di micropiastre | Molecular Devices | SpectraMax Plus 384 | Utilizzato per ELISA. |
| Kit ELISA per IFN-α nei topi | ZCIBIO Technology Co., Ltd. | ZC-37863W | Utilizzato per rilevare i livelli di IFN-α nel tessuto polmonare dei topi. |
| Kit ELISA per IFN-β nei topi | ZCIBIO Technology Co., Ltd. | ZC-37887W | Utilizzato per rilevare i livelli di IFN-β nel tessuto polmonare dei topi. |
| Kit ELISA per IL-1β nei topi | ZCIBIO Technology Co., Ltd. | ZC-37974W | Utilizzato per rilevare i livelli di IL-1β nel tessuto polmonare dei topi. |
| Kit ELISA per IL-6 nei topi | ZCIBIO Technology Co., Ltd. | ZC-37988W | Utilizzato per rilevare i livelli di IL-6 nel tessuto polmonare dei topi. |
| Kit ELISA per TNF-α nei topi | ZCIBIO Technology Co., Ltd. | ZC-39024W | Utilizzato per rilevare i livelli di TNF-α nel tessuto polmonare dei topi. |
| Kit One-Step RT-PCR per PCR digitale | QIAGEN | 4829104 | Utilizzato per la PCR digitale. |
| Macchina per inclusione in paraffina | Hubei Aristion Medical Industrial Co., Ltd. | ABM-7L | Utilizzata per l'inclusione in paraffina del tessuto polmonare di topo. |
| Kit QuantiNova SYBR PCR Mix | QIAGEN | 1129280 | Utilizzato per la RT-qPCR. |
| Kit RNeasy Plus Universal Mini | QIAGEN | 1062832 | Utilizzato per l'estrazione di RNA totale. |
| Microtomo | Leica Biosystems | LEICA RM2235 | Utilizzato per la preparazione di sezioni in paraffina. |
| Perle in acciaio inossidabile per omogeneizzatore tessutale | Beyotime Biotechnology | F6621 | Utilizzate per l'omogeneizzazione del tessuto polmonare. |
| Pool di primer XG 1.0 per PCR digitale | QIAGEN | 4828104 | Utilizzato per la PCR digitale. |
| Zoletil 50 | VIRBAC | BN9VS7A | Utilizzato per l'anestesia dei topi. |
Riferimenti
- Zhang X, et al. SARS-CoV-2 Evolution: Immune Dynamics, Omicron Specificity, and Predictive Modeling in Vaccinated Populations. Adv Sci (Weinh). 2024;11(40):e2402639.
- Yu Y, et al. COVID-19 Serum Drives Spike-Mediated SARS-CoV-2 Variation. Viruses. 2024;16(5):763.
- Alhamlan FS, Al-Qahtani AA. SARS-CoV-2 Variants: Genetic Insights, Epidemiological Tracking, and Implications for Vaccine Strategies. Int J Mol Sci. 2025;26(3):1263.
- Habashi NM, Camporota L, Gatto LA, Nieman G. Functional pathophysiology of SARS-CoV-2-induced acute lung injury and clinical implications. J Appl Physiol (1985). 2021;130(3):877-891.
- Nie X, et al. Multi-organ proteomic landscape of COVID-19 autopsies. Cell. 2021;184(3):775-791.e14.
- Blanco-Melo D, et al. Imbalanced Host Response to SARS-CoV-2 Drives Development of COVID-19. Cell. 2020;181(5):1036-1045.e9.
- Wang J, Li Q, Qiu Y, Lu H. COVID-19: imbalanced cell-mediated immune response drives to immunopathology. Emerg Microbes Infect. 2022;11(1):2393-2404.
- Sa Ribero M, Jouvenet N, Dreux M, Nisole S. Interplay between SARS-CoV-2 and the type I interferon response. PLoS Pathog. 2020;16(7):e1008737.
- El-Saber Batiha G, Al-Gareeb AI, Saad HM, Al-Kuraishy HM. COVID-19 and corticosteroids: a narrative review. Inflammopharmacology. 2022;30(4):1189-1205.
- Ye Q, Wang B, Mao J. The pathogenesis and treatment of the 'Cytokine Storm' in COVID-19. J Infect. 2020;80(6):607-613.
- Jiang Y, et al. Cytokine storm in COVID-19: from viral infection to immune responses, diagnosis and therapy. Int J Biol Sci. 2022;18(2):459-472.
- Zhang S, Wang L, Cheng G. The battle between host and SARS-CoV-2: Innate immunity and viral evasion strategies. Mol Ther. 2022;30(5):1869-1884.
- Beyer DK, Forero A. Mechanisms of Antiviral Immune Evasion of SARS-CoV-2. J Mol Biol. 2022;434(6):167265.
- Lei X, et al. Activation and evasion of type I interferon responses by SARS-CoV-2. Nat Commun. 2020;11(1):3810.
- Mostafa-Hedeab G, et al. A raising dawn of pentoxifylline in management of inflammatory disorders in Covid-19. Inflammopharmacology. 2022;30(3):799-809.
- Chen Z, et al. SARS-CoV-2 immunity in animal models. Cell Mol Immunol. 2024;21(2):119-133.
- Johansen MD, et al. Animal and translational models of SARS-CoV-2 infection and COVID-19. Mucosal Immunol. 2020;13(6):877-891.
- Zhang Y, et al. SARS-CoV-2 rapidly adapts in aged BALB/c mice and induces typical pneumonia. J Virol. 2021;95(11):e02477-20.
- Sun SH, et al. A Mouse Model of SARS-CoV-2 Infection and Pathogenesis. Cell Host Microbe. 2020;28(1):124-133.e4.
- Muñoz-Fontela C, et al. Animal models for COVID-19. Nature. 2020;586(7830):509-515.
- Liu T, et al. Therapeutic potential of inosine in acute lung injury: mechanistic insights into TLR4 suppression and macrophage polarization. Phytomedicine. 2025;143:156854.
- Powers JM, et al. Divergent pathogenetic outcomes in BALB/c mice following Omicron subvariant infection. Virus Res. 2024;341:199319.
- Fan F, et al. Association between systemic immune-inflammation indexes and Nuodikang capsule's protection in LPS-induced acute lung injury in mice. Phytomedicine. 2025;147:157229.
- Xie N, et al. Rhodiola crenulate alleviates hypobaric hypoxia-induced brain injury via adjusting NF-κB/NLRP3-mediated inflammation. Phytomedicine. 2022;103:154240.
- Jiang S, et al. Generic Diagramming Platform (GDP): a comprehensive database of high-quality biomedical graphics. Nucleic Acids Res. 2025;53(D1):D1670-D1676.
- Onohuean H, et al. Covid-19 and development of heart failure: mystery and truth. Naunyn Schmiedebergs Arch Pharmacol. 2021;394(10):2013-2021.
- Zarrilli G, et al. The Immunopathological and Histological Landscape of COVID-19-Mediated Lung Injury. Int J Mol Sci. 2021;22(2):974.
- Fernandes de Souza WD, et al. Lung Inflammation Induced by Inactivated SARS-CoV-2 in C57BL/6 Female Mice Is Controlled by Intranasal Instillation of Vitamin D. Cells. 2023;12(7):1092.
- Ciesielska A, Matyjek M, Kwiatkowska K. TLR4 and CD14 trafficking and its influence on LPS-induced pro-inflammatory signaling. Cell Mol Life Sci. 2021;78(4):1233-1261.
- Brandenburg K, et al. A Comparison between SARS-CoV-2 and Gram-Negative Bacteria-Induced Hyperinflammation and Sepsis. Int J Mol Sci. 2023;24(20):15169.
- Samsudin F, et al. SARS-CoV-2 spike protein as a bacterial lipopolysaccharide delivery system in an overzealous inflammatory cascade. J Mol Cell Biol. 2023;14(9):mjac058.
- Petruk G, et al. SARS-CoV-2 spike protein binds to bacterial lipopolysaccharide and boosts proinflammatory activity. J Mol Cell Biol. 2020;12(12):916-932.
- Martin-Sancho L, et al. Functional landscape of SARS-CoV-2 cellular restriction. Mol Cell. 2021;81(12):2656-2668.e8.
- Minkoff JM, tenOever B. Innate immune evasion strategies of SARS-CoV-2. Nat Rev Microbiol. 2023;21(3):178-194.