Questo protocollo ha lo scopo di valutare l'efficacia antitumorale della ruscogenina in cellule di carcinoma nasofaringeo. Descrive metodologie complete — inclusi saggi di vitalità, migrazione, apoptosi e ferroptosi — per chiarire in modo sistematico come questo composto induca una morte cellulare duale attraverso il targeting e la downregolazione di KDM1A.
Articolo di ricerca
La ruscogenina sopprime la progressione del carcinoma rinofaringeo downregolando KDM1A per co-indurre ferroptosi e apoptosi
In questo articolo
Sommario
Abstract
Il carcinoma nasofaringeo (NPC) è una neoplasia altamente aggressiva. Il composto naturale rusco genina (Rus) mostra un potenziale antitumorale. Questo studio chiarisce il meccanismo d'azione specifico della rusco genina nel carcinoma nasofaringeo (NPC), analizzandone gli effetti sulle cellule NPC e sul percorso molecolare sottostante. La linea cellulare umana di carcinoma nasofaringeo (NPC), C666-1, è stata trattata con diverse concentrazioni di Rus. È stata eseguita una serie di saggi in vitro per valutare la vitalità cellulare, la proliferazione, la migrazione, l'invasione, l'apoptosi e la ferroptosi. Il ruolo della lisina-specifica demetilasi 1A (KDM1A) è stato indagato mediante Western blot e docking molecolare, e il suo ruolo mediatore è stato confermato tramite esperimenti di recupero mediante sovraespressione. La rusco genina ha ridotto in modo dose-dipendente le capacità proliferative, clonogeniche, migratorie e invasive delle cellule C666-1. Dal punto di vista meccanicistico, il trattamento con Rus ha indotto sia l'apoptosi, dimostrata dall'attivazione della caspasi esecutrice-3 e da uno spostamento verso una segnalazione pro-apoptotica mediata dall'equilibrio Bax/Bcl-2, sia la ferroptosi, caratterizzata da un aumento della perossidazione lipidica e del ferro intracellulare. Questi effetti antitumorali sono risultati fortemente correlati alla downregolazione di KDM1A. In modo cruciale, la sovraespressione forzata di KDM1A ha attenuato in modo significativo l'apoptosi e la ferroptosi indotte da Rus e ha invertito la soppressione dei fenotipi maligni, confermando il ruolo mediatore essenziale di KDM1A. La rusco genina inibisce la progressione maligna del carcinoma nasofaringeo attraverso la downregolazione di KDM1A, promuovendo così apoptosi e ferroptosi. Questi risultati identificano l'asse Rus-KDM1A come un promettente bersaglio terapeutico per il trattamento del NPC.
Introduzione
Il carcinoma nasofaringeo (NPC) è un tipo di cancro causato dalla cooperazione tra fattori genetici e ambientali1. Sebbene la radioterapia abbia compiuto notevoli progressi nel trattamento, la sopravvivenza complessiva dei pazienti affetti da NPC rimane insoddisfacente. Ciò è probabilmente dovuto al fatto che le cellule del NPC possono proliferare rapidamente e sono altamente predisposte a metastatizzare nei linfonodi regionali e in organi distanti2. Pertanto, è fondamentale esplorare i meccanismi molecolari che promuovono la progressione del NPC. Recentemente, la ferroptosi, una nuova modalità di morte cellulare, regolata in modo dipendente dal ferro da Fe2⁺ e dai perossidi lipidici, è stata identificata come un processo coinvolto in modo critico nel NPC3. Le evidenze attuali hanno dimostrato che la ferroptosi svolge un ruolo importante nel NPC e che la sua induzione può potenziare la radioterapia antitumorale4,5.
Grazie alla tossicità minima e agli effetti collaterali ridotti, le formule erboristiche cinesi vengono utilizzate da migliaia di anni per il trattamento del cancro6,7. Essendo un tipo di medicina multicomponente, a multi-target e con effetto sinergico, le prescrizioni della medicina tradizionale cinese (MTC) sono state impiegate come terapia complementare efficace nella prevenzione e nel trattamento del cancro, inclusivo del carcinoma nasofaringeo (NPC)8,9,10. La Radix ophiopogonis (RO), la radice della pianta erbacea perenne Ophiopogon japonicus, è stata riportata come efficace nell'attenuare il NPC in qualità di terapia adiuvante11,12. La ruscogenina (Rus), il componente principale della RO, è stata descritta come dotata di potenti effetti antitumorali13. In modelli murini di cancro del colon-retto, la Rus è in grado di migliorare i danni alle giunzioni strette e inibire la migrazione tumorale14. In particolare, la Rus può anche ridurre la vitalità delle cellule del cancro del pancreas inducendo ferroptosi. Tuttavia, l'effetto della Rus sul NPC rimane ancora poco chiaro.
L'epigenetica è il campo principale di ricerca sulla patogenesi del cancro e fornisce numerosi trattamenti efficaci15. Come una delle modificazioni epigenetiche meglio studiate, la metilazione degli istoni è coinvolta nello sviluppo del cancro ed è anche un importante bersaglio per la progettazione di farmaci16. La modulazione dinamica della metilazione degli istoni è mediata da metiltransferasi e demetilasi17. KDM1A è una lisina demetilasi degli istoni che è stata trovata essere criticamente coinvolta nella carcinogenesi a causa del suo ruolo nella modulazione epigenetica18. Inoltre, si è scoperto che KDM1A è una oncoproteina con elevata espressione in diversi tipi di cancro, come il cancro del polmone e del pancreas19. Guo et al. hanno riportato che l'aumento di KDM1A può sopprimere l'espressione della fosfatasi e omologo della tensina (PTEN) e potenziare la proliferazione e la migrazione delle cellule del carcinoma nasofaringeo, inibendo al contempo l'apoptosi20. Nel frattempo, è stato anche osservato che l'upregolazione di KDM1A può reprimere la ferroptosi nel cancro del polmone21. L'analisi del database Super-PRED ha indicato che KDM1A è un potenziale bersaglio di Rus.
Nonostante il riconosciuto potenziale antitumorale della Rus in altri tipi di cancro, il suo ruolo specifico e i meccanismi molecolari nel carcinoma nasofaringeo rimangono completamente sconosciuti, rappresentando una significativa lacuna nella ricerca. Inoltre, sebbene studi precedenti abbiano collegato separatamente la KDM1A alla proliferazione tumorale e alla resistenza alla ferroptosi, nessuna ricerca ha ancora esplorato se il targeting della KDM1A possa innescare contemporaneamente multipli vie di morte cellulare nel NPC. Pertanto, questo studio fornisce una solida base razionale per ipotizzare che la Rus possa sopprimere la progressione maligna delle cellule del NPC mediante la downregolazione diretta della KDM1A.
Questo studio si è proposto di colmare questa lacuna valutando sistematicamente l'effetto della ruspolina sulla proliferazione, migrazione e invasione delle cellule del carcinoma nasofaringeo (NPC). La principale novità di questa ricerca consiste nell'aver scoperto una strategia a doppio meccanismo. L'attenzione è stata concentrata sulla capacità della ruspolina di indurre contemporaneamente sia l'apoptosi classica sia la ferroptosi dipendente dal ferro. Confermando il nuovo asse di segnalazione ruspolina-KDM1A, questo studio amplia significativamente le conoscenze attuali dimostrando come un singolo composto naturale possa superare la resistenza tumorale attraverso un blocco simultaneo di più vie, offrendo una solida base preclinica per una terapia mirata del carcinoma nasofaringeo.
Protocollo
Cultura cellulare, trattamento e trasfezione
La linea cellulare di carcinoma nasofaringeo umano, C666-1 (RRID: CVCL_M597), e la linea cellulare di epitelio nasofaringeo umano non maligno, NP69 (RRID: CVCL_F755), sono state acquistate da un fornitore commerciale. Entrambe le linee cellulari sono state autenticate mediante analisi del profilo degli Short Tandem Repeat (STR) e sono state confermate prive di contaminazione da micoplasma prima dell'uso. Per la coltura di routine, le cellule C666-1 sono state propagate in mezzo RPMI 1640 integrato con il 10% di siero fetale bovino (FBS) e l'1% di penicillina-streptomicina. Le cellule NP69 sono state coltivate in mezzo privo di siero per cheratinociti, integrato con il 10% di FBS, 10 ng/mL di fattore di crescita epidermico ricombinante e l'1% di penicillina-streptomicina. La ruscogenina (Rus; purezza ≥ 98%) è stata acquistata da un fornitore commerciale. Entrambe le linee cellulari sono state mantenute in un incubatore umidificato a 37 °C con 5% di CO₂. Per i trattamenti, le cellule sono state esposte alla ruscogenina (Rus) a concentrazioni variabili (10, 20, 50 µM) per 24 h22. Per la trasfezione, plasmidi codificanti la lisina-specifica demetilasi 1A per sovraespressione (oe-KDM1A) e un vettore vuoto controllo negativo corrispondente (oe-NC), ottenuti da un fornitore commerciale, sono stati trasfettati nelle cellule C666-1 quando la confluenza cellulare ha raggiunto il 70–80%. In particolare, 2,5 µg di DNA plasmidico e 5 µL di un reagente di trasfezione a base lipidica sono stati ciascuno diluiti in 150 µL di mezzo con ridotto contenuto di siero, mescolati delicatamente, incubati per 20 min a temperatura ambiente e quindi aggiunti a ciascun pozzetto di una piastra a 6 pozzetti secondo il protocollo del produttore. Le cellule sono state incubate per 48 h a 37 °C e l'efficacia della trasfezione è stata successivamente verificata.
Saggio con il kit per il conteggio delle cellule-8 (CCK-8)
La vitalità cellulare dopo il trattamento con Rus è stata quantificata utilizzando il saggio CCK-8. Per questa procedura, le cellule sono state innanzitutto seminate in piastre a 96 pozzetti e coltivate durante la notte. Il saggio è stato avviato aggiungendo 10 µL di soluzione CCK-8 e, dopo 2 h di incubazione, la variazione colorimetrica risultante è stata misurata come densità ottica (OD) a 450 nm utilizzando un lettore di piastre.
Saggio di formazione di colonie
Per valutare la sopravvivenza clonogenica, le cellule C666-1 sono state seminate in piastre da 6 pozzetti e coltivate per 14 giorni. Al termine del periodo di incubazione, le colonie risultanti sono state fissate con metanolo al 100% per 10 minuti e successivamente visualizzate con violetto cristallo allo 0,5% per 30 minuti. Il numero di colonie colorate è stato quindi quantificato mediante imaging al microscopio e conteggio.
Western blot
Per l'analisi mediante Western blot, le proteine totali sono state dapprima estratte dalle cellule utilizzando un tampone RIPA, e i lisati ottenuti sono stati centrifugati (12.000 × g) per raccogliere il sopranatante. È stato utilizzato un saggio BCA per quantificare i livelli proteici. Quantità uguali di proteina totale (30 µg per pozzetto) sono state caricate e separate mediante elettroforesi su gel di poliacrilammide in presenza di dodecilsolfato di sodio al 10% (SDS-PAGE). Dopo la separazione, le proteine sono state trasferite su membrane di fluoruro di polivinilidene (PVDF) a una tensione costante di 100 V per 90 minuti su ghiaccio. Le membrane sono state quindi bloccate con albumina sierica bovina (BSA) al 5% preparata in soluzione salina tamponata al Tris contenente lo 0,1% di Tween 20 (TBST) per 2 ore a temperatura ambiente. Successivamente, le membrane sono state incubate tutta la notte a 4°C con i seguenti anticorpi primari diluiti nel buffer di blocco (tutti in rapporto 1:1000): Ki67, PCNA, MMP2, MMP9, Bcl-2, Bax, KDM1A, SLC7A11, GPX4, ACSL4, TFR1 e β-actina. Infine, dopo un'incubazione di 2 ore con anticorpi secondari coniugati con perossidasi, le bande immunoreattive sono state visualizzate mediante un reagente di rilevamento chemiluminescente migliorato (ECL) e l'analisi densitometrica è stata eseguita utilizzando un software di analisi dell'immagine.
Saggio di riparazione della ferita (wound scratch)
Per il saggio di guarigione della ferita, le cellule C666-1 sono state coltivate fino a una confluenza dell'80% in piastre da 6 pozzetti. Una ferita uniforme è stata creata nel monostrato raschiando con una punta da pipetta da 200 µL. Le cellule staccate sono state rimosse con un lavaggio in PBS, dopodiché il mezzo di coltura è stato sostituito con mezzo privo di siero per un'incubazione di 24 ore. Le immagini dell'area della ferita sono state acquisite a 0 h e a 24 h mediante microscopio ottico per valutare la migrazione cellulare.
Saggio Transwell
L'invasione cellulare è stata valutata utilizzando camere a transwell (dimensione dei pori di 8 µm) pre-ricoperte con 50 µL di matrice della membrana basale. La capacità invasiva delle cellule C666-1 è stata analizzata mediante camere a transwell. Negli inserti superiori sono state seminate cellule sospese in mezzo privo di siero, mentre nei pozzetti inferiori è stato aggiunto DMEM contenente il 10% di FBS. Dopo un'incubazione di 24 h, le cellule rimaste sul lato apicale della membrana sono state accuratamente rimosse. Per la quantificazione, le cellule presenti sulla superficie basolaterale sono state fissate in metanolo, colorate con violetto cristallo allo 0,1% e contate a partire da immagini acquisite al microscopio ottico.
Citometria a flusso
L'apoptosi è stata quantificata mediante citometria a flusso. Per preparare i campioni, le cellule C666-1 sono state raccolte, lavate con PBS freddo, quindi risospese in 100 µL di buffer di legame. Le cellule sono state quindi colorate contemporaneamente con Annexina-V-FITC (20 µg/mL) e ioduro di propidio (PI). La colorazione è stata eseguita per 15 minuti sul ghiaccio, al riparo dalla luce. I dati sono stati acquisiti immediatamente mediante citometro a flusso per determinare la percentuale di cellule apoptotiche.
Rilevamento dell'attività della caspasi-3
L'attività della caspasi-3 è stata misurata utilizzando un kit commerciale per saggio secondo le istruzioni del produttore. In breve, le cellule C666-1 sono state lisate e i soprannatanti sono stati raccolti dopo centrifugazione a 14.000 × g. Dopo un'incubazione di 2 h con il reagente fornito, l'assorbanza di ciascun soprannatante è stata quantificata a 405 nm.
RT-qPCR
L'RNA totale è stato purificato da cellule C666-1 utilizzando un reagente commerciale per l'estrazione di RNA. L'RNA ottenuto è stato retrotrascritto in cDNA di prima catena utilizzando un kit commerciale seguendo il protocollo del produttore. Successivamente, è stata eseguita l'analisi dell'espressione genica mediante PCR quantitativa (qPCR) su un sistema di PCR in tempo reale con una miscela master a base di SYBR Green. Per determinare i livelli relativi di trascritto è stato utilizzato il metodo comparativo del Ct (2⁻△△Ct). Le sequenze dei primer utilizzate per l'amplificazione sono state: β-actin (Forward: 5'-CATGTACGTTGCTATCCAGGC-3'; Reverse: 5'-CTCCTTAATGTCACGCACGAT-3') e KDM1A (Forward: 5'-TGACCGGATGACTTCTCAAGA-3'; Reverse: 5'-GTTGGAGAGTAGCCTC AAATGTC-3').
Saggio delle sostanze reattive all'acido tiobarbiturico (TBARS)
Per misurare la perossidazione lipidica, i soprannatanti sono stati prima preparati da cellule C666-1 mediante precipitazione (15% TCA, 500 mM BHA) e centrifugazione per 10 min a 10.000 × g. Questi soprannatanti sono stati quindi fatti reagire con acido tiobarbiturico allo 0,375% e riscaldati a 100 °C per 10 min per generare l'addotto MDA-TBA. Il livello di questo addotto, indicativo della perossidazione lipidica, è stato determinato misurando l'assorbanza a 532 nm con un lettore di micropiastre23.
Rilevamento delle specie reattive dell'ossigeno lipidiche (ROS)
La perossidazione lipidica è stata rilevata utilizzando una sonda fluorescente per la perossidazione lipidica. Le cellule C666-1 sono state seminate in piastre a 6 pozzetti, coltivate durante la notte e successivamente esposte alla sonda fluorescente (2 µM). Questa sonda mostra uno spostamento della fluorescenza dal rosso al verde in seguito all'ossidazione. Il rapporto tra fluorescenza verde e rossa è stato analizzato mediante microscopio confocale a scansione laser e software di analisi delle immagini. Il rapporto di fluorescenza verde/rosso riportato in grafico è stato chiaramente definito e utilizzato come indicatore quantitativo dei livelli di perossidazione lipidica24.
Rilevamento di Fe2+
Il livello intracellulare di ferro ferroso (Fe2⁺) è stato misurato utilizzando una sonda fluorescente per il ferro intracellulare. Le cellule C666-1 sono state incubate con una sonda fluorescente a 10 µM per 10 minuti. Dopo il lavaggio con PBS per rimuovere l'eccesso di sonda, le cellule sono state analizzate mediante microscopia a fluorescenza.
Analisi di docking molecolare
Il docking molecolare è un metodo computazionale fondamentale che facilita la progettazione di nuovi farmaci prevedendo l'affinità di legame e l'interazione tra un ligando e la sua proteina bersaglio attraverso la valutazione delle loro modalità di legame25. A partire dalla pagina web RCSB PDB (https://www.rcsb.org/), è stata ottenuta la struttura tridimensionale della KDM1A (ID PDB: 6NQU). Per la preparazione della struttura proteica della KDM1A, è stata rimossa l'acqua e sono stati eliminati i ligandi piccoli non rilevanti. La simulazione di docking molecolare è stata eseguita mediante software di docking molecolare utilizzando l'algoritmo genetico Lamarckiano, e la visualizzazione è stata effettuata impiegando software di visualizzazione molecolare26.
Analisi statistica
Tutti gli esperimenti sono stati eseguiti utilizzando almeno tre replicati biologici indipendenti e i risultati sono presentati come media ± deviazione standard (SD). L'analisi statistica è stata condotta mediante software di analisi statistica. Le differenze tra più gruppi sono state valutate mediante analisi della varianza unidirezionale (ANOVA) seguita dal test post-hoc di Tukey per confronti multipli. Un valore di P inferiore a 0,05 è stato considerato indicativo di una differenza statisticamente significativa.
Risultati
La ruscogenina inibisce selettivamente la vitalità e la proliferazione delle cellule del carcinoma nasofaringeo
Lo studio ha innanzitutto analizzato l'effetto della ruscogenina (Rus) sulla vitalità sia delle cellule epiteliali nasofaringee normali (NP69) che delle cellule di carcinoma nasofaringeo (NPC) (C666-1). Secondo i risultati del saggio CCK-8, il trattamento con Rus a concentrazioni di 10, 20 e 50 µM non ha mostrato tossicità significativa sulle cellule normali NP69. Al contrario, la ruscogenina (Rus) ha compromesso in modo significativo la sopravvivenza delle cellule tumorali C666-1 in maniera dipendente sia dalla concentrazione sia dal tempo di incubazione. L'attività citotossica più marcata è stata osservata a 50 µM (p < 0,001) (Figura 1B-C). Successivamente, è stato eseguito il saggio di formazione di colonie per valutare la sopravvivenza clonogenica delle cellule C666-1 dopo il trattamento con Rus, i cui risultati hanno mostrato che Rus inibisce in modo altamente significativo la sopravvivenza clonogenica delle cellule C666-1 in maniera dose-dipendente (Figura 1D). Per confermare questi risultati a livello molecolare, è stata analizzata mediante Western blot l'espressione delle proteine legate alla proliferazione Ki67 e PCNA (Figura 1E). Questi risultati dimostrano che la ruscogenina esercita un effetto anti-proliferativo selettivo per le cellule NPC rispetto alle cellule epiteliali nasofaringee normali. Tale selettività è stata ulteriormente confermata dalla riduzione significativa e dose-dipendente dei livelli proteici di Ki67 e PCNA nelle cellule C666-1 (p < 0,001 a 50 µM) (Figura 1E).
La ruscogenina inibisce la migrazione e l'invasione delle cellule C666-1
Poiché la metastasi è una caratteristica chiave dei tumori maligni, lo studio ha successivamente esplorato l'impatto di Rus sulle capacità migratorie e invasive delle cellule C666-1. Il saggio del "wound scratch" ha rivelato che il trattamento con Rus inibisce in modo significativo la capacità di guarigione della ferita da parte delle cellule C666-1 in maniera dose-dipendente (p < 0,001 per 50 µM), suggerendo una riduzione della migrazione cellulare (Figura 2A). Analogamente, il saggio transwell ha mostrato che il numero di cellule invasive è notevolmente diminuito dopo il trattamento con Rus, con un effetto altamente significativo a concentrazioni più elevate (p < 0,001 per 50 µM) (Figura 2B). Questo effetto inibitorio è ulteriormente confermato dall'analisi mediante western blot delle metalloproteasi della matrice (MMP). La ruscogenina riduce in modo dose-dipendente l'espressione di MMP2 e MMP9 nelle cellule C666-1, raggiungendo un'elevata significatività statistica a 50 µM (p < 0,001) (Figura 2C). Questi risultati dimostrano che Rus sopprime in modo efficace la migrazione e l'invasione delle cellule del carcinoma nasofaringeo (NPC) con un'elevata significatività statistica.
La ruscogenina induce apoptosi nelle cellule C666-1
Per determinare se la riduzione osservata nella vitalità cellulare fosse dovuta alla morte cellulare programmata, lo studio ha valutato il livello di apoptosi. La citometria a flusso ha confermato che la ruscogenina promuove in modo potente l'apoptosi nelle cellule C666-1 in maniera dose-dipendente, un effetto altamente significativo a 50 µM (p < 0,001) (Figura 3A). Tale effetto è stato accompagnato da un aumento corrispondente e statisticamente significativo dell'attività della caspasi-3, un enzima chiave nell'effettuazione della cascata apoptotica (p < 0,001 a 50 µM) (Figura 3B). Per approfondire ulteriormente il meccanismo apoptotico, sono state valutate alcune proteine regolatrici chiave. L'analisi mediante Western blot ha dimostrato che il trattamento con ruscogenina induce un significativo spostamento dose-dipendente verso uno stato pro-apoptotico, riducendo notevolmente l'espressione della proteina anti-apoptotica Bcl-2 e aumentando l'espressione della proteina pro-apoptotica Bax (p < 0,001 a 50 µM) (Figura 3C). Questi significativi cambiamenti nell'espressione proteica confermano ulteriormente che Rus induce apoptosi nelle cellule C666-1.
La ruscogenina promuove la ferroptosi nelle cellule C666-1 mediante la riduzione della regolazione di KDM1A
Lo studio ha quindi indagato la ferroptosi e la sua connessione con la proteina KDM1A. Inizialmente si è osservato che il trattamento con Rus riduceva in modo dose-dipendente e significativo l'espressione di KDM1A nelle cellule C666-1 (p < 0,001 per 50 µM) (Figura 4A), e l'analisi di docking molecolare ha predetto un'interazione diretta tra Rus e la proteina KDM1A (Figura 4B). Per stabilire un legame causale, le cellule C666-1 sono state trasfettate per sovraesprimere significativamente KDM1A (p < 0,001) (Figura 4C). I risultati hanno mostrato che il trattamento con Rus da solo aumentava significativamente i marcatori della ferroptosi, inclusa la produzione di TBARS (p < 0,001), l'accumulo di ROS lipidici (p < 0,001) e il livello di ferro ferroso intracellulare (Fe2⁺). In modo cruciale, la sovraespressione di KDM1A ha significativamente invertito questi effetti, riducendo i livelli di questi marcatori della ferroptosi nelle cellule trattate con Rus (p < 0,001 per tutti i confronti) (Figura 4D–F).
Inoltre, l'analisi delle principali proteine associate alla ferroptosi ha rivelato che il trattamento con Rus ha ridotto in modo significativo i livelli di SLC7A11 e GPX4, aumentando contemporaneamente quelli di ACSL4 e TFR1 (p < 0,001 per tutti). La sovraespressione di KDM1A ha contrastato in modo significativo questi cambiamenti (p < 0,001 per tutti), ripristinando l'espressione di queste proteine verso i livelli basali (Figura 4G). Questi dati suggeriscono fortemente che Rus promuove la ferroptosi nelle cellule NPC riducendo la regolazione di KDM1A.
L'overespressione di KDM1A inverte gli effetti inibitori della Ruscogenina sulla proliferazione, migrazione e invasione delle cellule NPC
Per confermare che gli effetti antitumorali di Rus siano mediati attraverso KDM1A, sono stati eseguiti esperimenti di recupero. L'iperespressione di KDM1A ha contrastato significativamente gli effetti antiproliferativi della Ruscogenina nelle cellule C666-1, come confermato da saggi di vitalità cellulare e di formazione di colonie (Figura 5A–B). Analogamente, la marcata riduzione indotta da Rus nei livelli proteici di Ki67 e PCNA è stata parzialmente ma significativamente ripristinata dall'iperespressione di KDM1A (p < 0,001) (Figura 5C). Inoltre, l'attività antitumorale potente in termini di inibizione della migrazione e dell'invasione cellulare esercitata dalla Ruscogenina (p < 0,001) è stata annullata dall'iperespressione di KDM1A. Sia il saggio del "wound scratch" che il saggio transwell hanno mostrato un recupero significativo delle capacità migratorie e invasive nelle cellule che iperesprimono KDM1A (p < 0,001) (Figura 5D). Tale recupero è stato accompagnato da un ripristino significativo dell'espressione proteica di MMP2 e MMP9 (p < 0,001) (Figura 5E).
L'overespressione di KDM1A attenua l'apoptosi indotta da ruscogenina nelle cellule C666-1
Infine, lo studio ha esaminato se KDM1A svolga un ruolo anche nell'apoptosi indotta da Rus. L'analisi mediante citometria a flusso e i saggi di attività della caspasi-3 hanno dimostrato che il trattamento con KDM1A attenua significativamente l'effetto pro-apoptotico di Rus (p < 0,001), portando a un tasso apoptotico inferiore e a una ridotta attività della caspasi-3 rispetto alle cellule trattate soltanto con Rus (Figura 6A–B). Questo risultato è stato confermato anche mediante Western blot, in cui la sovraespressione di Rus ha modificato significativamente l'espressione di Bcl-2 e Bax nelle cellule del carcinoma nasofaringeo, mentre la sovraespressione di KDM1A ha notevolmente invertito le alterazioni indotte da Rus nell'espressione di Bcl-2 e Bax (p < 0,001) (Figura 6C), spostando l'equilibrio da sopravvivenza cellulare a morte cellulare (Figura 6C). Pertanto, gli esperimenti di recupero hanno dimostrato che la ruscogenina inibisce la proliferazione e l'invasione e induce apoptosi e ferroptosi nelle cellule del carcinoma nasofaringeo, e gli effetti mediati dalla ruscogenina sono significativamente dipendenti dalla downregolazione di KDM1A.
DISPONIBILITÀ DEI DATI:
I dati grezzi che supportano le conclusioni di questo articolo sono disponibili liberamente nel repository Zenodo all'indirizzo https://doi.org/10.5281/zenodo.21852421.
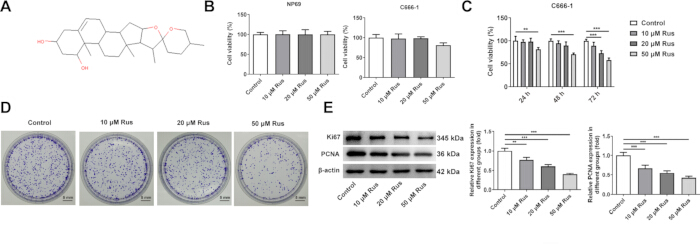
Figura 1: La ruscogenina inibisce selettivamente la vitalità e la proliferazione delle cellule del carcinoma nasofaringeo (n = 3). (A) La struttura chimica della ruscogenina (Rus). (B) È stato utilizzato un saggio con il kit per il conteggio cellulare (CCK-8) per misurare la vitalità delle cellule epiteliali nasofaringee normali NP69 dopo un trattamento di 24 ore con diverse concentrazioni di Rus. (C) Le cellule NPC C666-1 sono state trattate con le concentrazioni indicate di Rus per 24, 48 o 72 ore e la loro vitalità è stata successivamente determinata mediante saggio CCK-8. (D) Sopravvivenza clonogenica delle cellule C666-1 dopo un'esposizione di 14 giorni a Rus. Il pannello mostra immagini rappresentative e la corrispondente quantificazione. (E) I livelli di espressione delle proteine associate alla proliferazione Ki67 e PCNA nelle cellule C666-1 sono stati analizzati mediante Western blot dopo un trattamento di 24 ore con Rus, con la quantificazione riportata sotto. I valori rappresentano la media ± deviazione standard (SD) di tre esperimenti separati. I dati sono presentati come media ± deviazione standard (SD) di tre esperimenti indipendenti (n = 3). La significatività statistica è stata determinata mediante analisi della varianza unidirezionale (one-way ANOVA) con test post hoc di Tukey. * p < 0,05, ** p < 0,01 e *** p < 0,001 tra i gruppi indicati. Cliccare qui per visualizzare una versione ingrandita di questa figura.
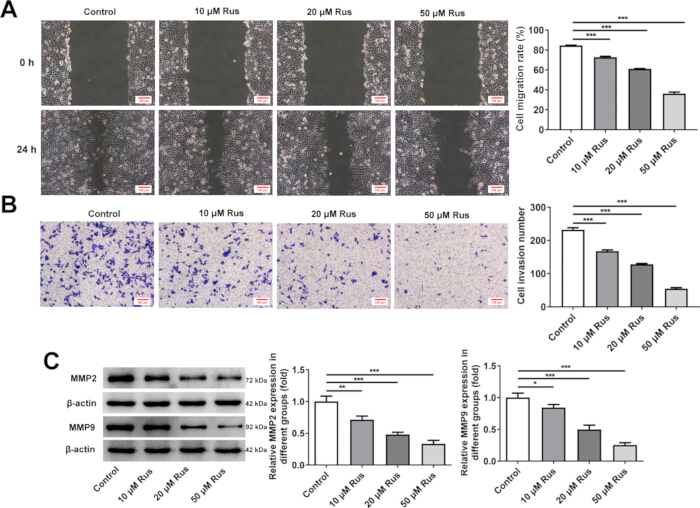
Figura 2: La ruscogenina inibisce la migrazione e l'invasione delle cellule C666-1 (n = 3). (A) È stato eseguito un saggio di guarigione della ferita per valutare l'abilità migratoria delle cellule C666-1. Le immagini rappresentative sono state acquisite a 0 e 24 h dopo il trattamento con diverse concentrazioni di Rus. Il grafico mostra la quantificazione della velocità di migrazione cellulare. (B) È stato effettuato un saggio Transwell per valutare l'abilità invasiva delle cellule C666-1 trattate con Rus. Le immagini rappresentative mostrano le cellule colorate che hanno invaso la membrana rivestita con Matrigel. Il grafico mostra la quantificazione delle cellule invase. (C) Analisi mediante Western blot e relativa quantificazione delle proteine associate alla migrazione e all'invasione, matrix metalloproteinasi 2 (MMP2) e matrix metalloproteinasi 9 (MMP9), nelle cellule C666-1. I dati sono espressi come media ± deviazione standard (DS) di tre esperimenti indipendenti (n = 3). La significatività statistica è stata determinata mediante analisi della varianza unidirezionale (ANOVA) con test post hoc di Tukey. * p < 0,05, ** p < 0,01 e *** p < 0,001 tra i gruppi indicati. Cliccare qui per visualizzare una versione ingrandita di questa figura.
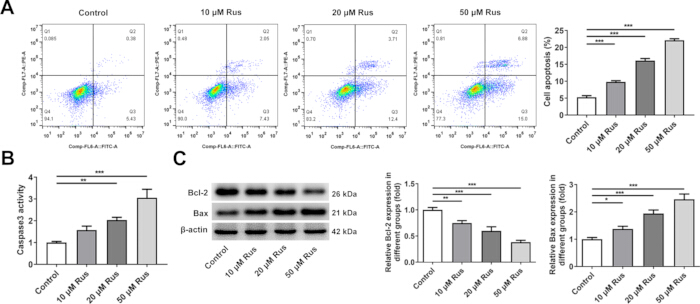
Figura 3: La ruscogenina induce apoptosi nelle cellule C666-1 (n = 3). (A) L'apoptosi nelle cellule C666-1 trattate con diverse concentrazioni di Rus è stata analizzata mediante citometria a flusso utilizzando la colorazione con Annexin-V-fluorescein isothiocyanate/propidium iodide (Annexin-V-FITC/PI). Il grafico mostra la quantificazione della percentuale di cellule apoptotiche (l'apoptosi totale è stata calcolata come somma delle popolazioni in apoptosi precoce e tardiva, Q3 + Q2). (B) L'attività della caspasi-3, una caspasi esecutrice dell'apoptosi, è stata misurata nelle cellule C666-1 trattate con Rus. (C) Analisi mediante Western blot e quantificazione della proteina anti-apoptotica Bcl-2 e della proteina pro-apoptotica Bax. Le variazioni contrastanti nei livelli di espressione di Bax e Bcl-2 indicano un effetto pro-apoptotico. I dati sono espressi come media ± deviazione standard (DS) di tre esperimenti indipendenti (n = 3). La significatività statistica è stata determinata mediante analisi della varianza unidirezionale (one-way ANOVA) con test post hoc di Tukey. * p < 0,05, ** p < 0,01 e *** p < 0,001 tra i gruppi indicati. Cliccare qui per visualizzare una versione ingrandita di questa figura.
Figura 4: La ruscogenina promuove la ferroptosi in cellule C666-1 mediante la downregolazione della lisina-specifica demetilasi 1A (KDM1A) (n = 3). (A) Immunoblotting che mostra la downregolazione dipendente dalla dose della proteina KDM1A indotta da Rus.BSimulazione di docking molecolare che mostra l'interazione di legame prevista tra Ruscogenina e KDM1A.C) Analisi di RT-qPCR (reazione a catena della polimerasi quantitativa con trascrizione inversa) e di Western blot per la validazione dell'efficacia della trasfezione del plasmide di sovraespressione di KDM1A (oe-KDM1A) a livello di mRNA e di proteina, rispettivamente.D–G) Le cellule C666-1 sono state trattate con Rus (50 µM) con o senza sovraespressione di KDM1A. (DQuantificazione della perossidazione lipidica mediante saggio delle sostanze reattive all'acido tiobarbiturico (TBARS). (E) Rilevamento della perossidazione lipidica mediante la sonda BODIPY 581/591 C11. Il rapporto tra fluorescenza verde/rossa riportato in grafico indica il livello di perossidazione lipidica.F) Rilevamento del Fe intracellulare2⁺ utilizzando la sonda Phen Green SK. (G) Analisi mediante Western blot di proteine chiave regolatrici della ferroptosi (SLC7A11, GPX4, ACSL4 e TFR1). I dati sono espressi come media ± deviazione standard (DS) di tre esperimenti indipendenti (n = 3). La significatività statistica è stata determinata mediante analisi della varianza unidirezionale (one-way ANOVA) con test post hoc di Tukey. * p < 0.05, ** p < 0,01 e *** p < 0,001 tra i gruppi indicati.
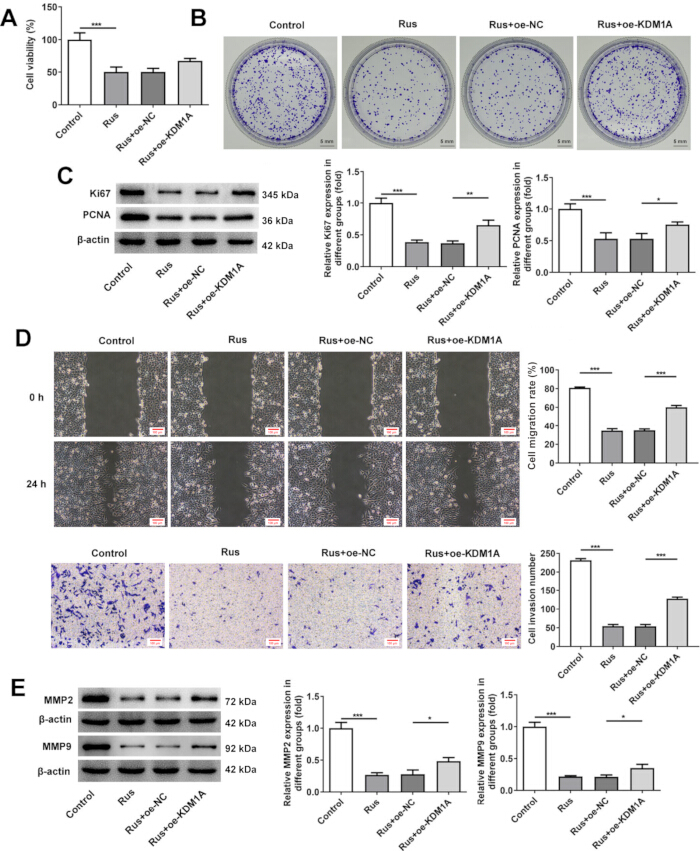
Figura 5: L'overespressione di KDM1A inverte gli effetti inibitori della Ruscogenina sulla proliferazione, migrazione e invasione delle cellule del carcinoma nasofaringeo (NPC) (n = 3). Le cellule C666-1 sono state suddivise in quattro gruppi: Controllo, Rus (50 µM), Rus + oe-NC (vettore vuoto) e Rus + oe-KDM1A. (A) La vitalità cellulare è stata valutata mediante saggio CCK-8. (B) La capacità proliferativa è stata valutata mediante saggio di formazione di colonie. (C) Analisi mediante Western blot dei marcatori di proliferazione, come Ki-67 (Ki67) e antigene nucleare delle cellule in proliferazione (PCNA). (D) La migrazione e l'invasione cellulare sono state valutate mediante saggi di guarigione della ferita (wound healing) e transwell, rispettivamente. (E) Analisi mediante Western blot delle proteine associate alla migrazione MMP2 e MMP9. I dati sono espressi come media ± deviazione standard (DS) di tre esperimenti indipendenti (n = 3). La significatività statistica è stata determinata mediante ANOVA a un fattore con test post hoc di Tukey. * p < 0,05, ** p < 0,01 e *** p < 0,001 tra i gruppi indicati. Cliccare qui per visualizzare una versione ingrandita di questa figura.
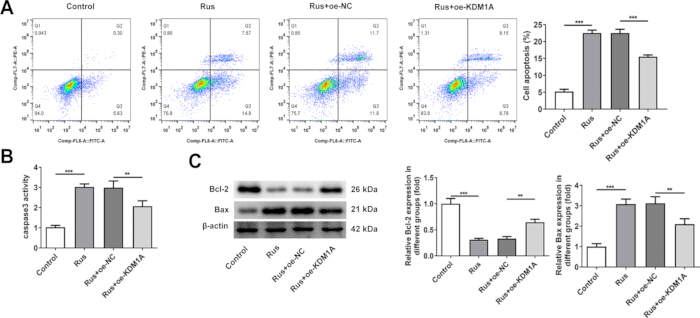
Figura 6: L'overespressione di KDM1A attenua l'apoptosi indotta da Ruscogenina nelle cellule C666-1 (n = 3). Le cellule sono state trattate come descritto nella Figura 5. (A) Le cellule apoptotiche sono state quantificate mediante citometria a flusso dopo colorazione con Annexin-V/PI. La percentuale totale di cellule apoptotiche è stata calcolata come somma delle popolazioni in apoptosi precoce e tardiva (Q3 + Q2). (B) L'attività della caspasi-3 è stata misurata per valutare il grado di esecuzione dell'apoptosi. (C) È stata eseguita un'analisi mediante Western blot per determinare i livelli di espressione delle proteine legate all'apoptosi Bcl-2 e Bax. I dati sono espressi come media ± deviazione standard (DS) di tre esperimenti indipendenti (n = 3). La significatività statistica è stata determinata mediante ANOVA a un fattore con test post hoc di Tukey. * p < 0,05, ** p < 0,01 e *** p < 0,001 tra i gruppi indicati. Cliccare qui per visualizzare una versione ingrandita di questa figura.
Discussione
Il carcinoma nasofaringeo (NPC) è una neoplasia grave caratterizzata da un'elevata prevalenza di metastasi, il che spiega l'urgente necessità di interventi più efficaci27. In questo studio si dimostra che la Ruscogenina (Rus), un prodotto naturale derivato dalla Radix ophiopogonis, esercita forti effetti antitumorali sulle cellule del NPC. Si conclude inoltre che la Rus impedisce la progressione del NPC inibendo la desmetilasi istonica KDM1A, con conseguente induzione di due diversi tipi di morte cellulare programmata, ovvero apoptosi e ferroptosi. Questo articolo illustra un asse di segnalazione Rus-KDM1A precedentemente sconosciuto nel NPC, comprendente un meccanismo d'azione doppio che potrebbe migliorarne il potenziale terapeutico.
Le capacità invasive e migratorie delle cellule tumorali sono determinanti nella metastatizzazione del tumore. La migrazione e l'abilità invasiva delle cellule tumorali rappresentano due delle principali cause della metastasi e sono strettamente associate a esiti clinici sfavorevoli. Nella maggior parte dei casi, questo processo è facilitato da enzimi proteolitici come la Matrix Metalloproteinasi 2 (MMP 2) e la MMP 9, che in questa condizione sono fortemente espressi28. Questi risultati confermano e ampliano notevolmente studi precedenti riguardo alle proprietà antitumorali della Ruscogenina. In accordo con precedenti osservazioni che ne dimostrano l'effetto antimetastatico nel carcinoma epatocellulare22 e la sua capacità di indurre ferroptosi nel cancro del pancreas14, questi risultati confermano il potenziale antitumorale a spettro ampio di questo composto naturale. Tuttavia, lo studio rappresenta un notevole progresso delle conoscenze attuali grazie all'individuazione di un meccanismo unico di morte cellulare doppia nel carcinoma nasofaringeo (NPC). Le chemioterapie tradizionali spesso incontrano ostacoli clinici a causa dello sviluppo di resistenza all'apoptosi nelle cellule tumorali. Inducendo contemporaneamente sia l'apoptosi classica sia la ferroptosi, dipendente dal ferro—due modalità di morte cellulare distinte e non sovrapposte—la ruscogenina riesce efficacemente a eludere tale resistenza. Questo attacco bifasico crea una marcata vulnerabilità sintetica nelle cellule di NPC, fornendo una solida giustificazione traslazionale per lo sviluppo di questo composto come agente terapeutico nei tumori refrattari o chemioresistenti. Mediante l'esecuzione del saggio di chiusura della ferita (wound scratch assay), del saggio transwell e del western blot, i dati hanno mostrato che il trattamento con ruscogenina esercita effetti inibitori sulle capacità migratorie e invasive delle cellule C666-1, associate a una riduzione dei livelli di MMP2 e MMP9. Un'alterazione dell'equilibrio delicato tra proliferazione cellulare e apoptosi rappresenta un fattore chiave nella tumorigenesi.29Di conseguenza, indurre l'apoptosi inibendo al contempo la proliferazione rappresenta una strategia terapeutica fondamentale per ostacolare la progressione tumorale 30. È noto che la proteina Bcl-2 sopprime l'apoptosi cellulare interrompendo il legame iniziale con la morte cellulare programmata, mentre la proteina Bax accelera l'apoptosi cellulare formando un dimero con la proteina Bcl-2, inattivando così la Bcl-231. Ki67 e PCNA sono marcatori ampiamente utilizzati nella proliferazione delle cellule tumorali32È stato dimostrato che il Rus arresta efficacemente il ciclo cellulare e induce l'apoptosi, come evidenziato dalla riduzione dei marcatori di proliferazione Ki67 e PCNA, dalla diminuzione della proteina anti-apoptotica Bcl-2 e dall'aumento della proteina pro-apoptotica Bax. Questo cambiamento nel rapporto Bax/Bcl-2, unito all'aumentata attività della caspasi-3, conferma che il Rus indirizza il destino cellulare delle cellule NPC verso la morte apoptotica, un caposaldo della terapia antitumorale efficace.
Il secondo aspetto innovativo di questa ricerca è il contributo di Rus all'induzione della ferroptosi. La morte cellulare regolata comune, inclusa la ferroptosi, che è un particolare tipo di accumulo dipendente da ferro e perossidi lipidici, rappresenta ora una significativa vulnerabilità terapeutica da sfruttare per prevenire la progressione dei NPC33. Questa malattia può quindi essere trattata inducendo la ferroptosi, considerata attualmente una modalità di trattamento efficace34. Una varietà di enzimi fondamentali regola strettamente questo processo. È importante notare che GPX4 è un inibitore antiossidante centrale; esso inibisce lo sviluppo di perossidi lipidici tossici in modo dipendente dal ferro. Inoltre, l'attività di GPX4 dipende da un antiporto cistina/glutammato chiamato Sistema Xc⁻, di cui SLC7A11 è una delle subunità principali. SLC7A11 favorisce l'assorbimento della cistina per la sintesi del glutatione, riducendo così l'ossidazione lipidica e inibendo la ferroptosi35. I dati hanno indicato che il trattamento con Rus ha provocato i sintomi cardine della ferroptosi, tra cui l'accumulo di ROS lipidici, l'aumento dei livelli intracellulari di Fe2+ e una maggiore produzione di TBARS. In modo intuitivo, Rus ha agito modificando l'espressione dei principali regolatori della ferroptosi. Ha represso la subunità dell'antiporto Sistema Xc⁻, SLC7A11, e la glutatione perossidasi GPX4, che costituiscono le principali difese contro la perossidazione lipidica. Parallelamente, Rus ha aumentato l'espressione di ACSL4 e TFR1, proteine essenziali rispettivamente per il metabolismo lipidico e l'assorbimento del ferro, predisponendo così le cellule alla morte ferroptotica. Ciò indica nuovamente che Rus è in grado di sfruttare in modo efficace la via della ferroptosi, rappresentando un approccio promettente per affrontare la resistenza ai farmaci tradizionali basati sull'apoptosi.
In questo studio, KDM1A, una istone desmetilasi, rappresenta il perno meccanicistico dell'azione di Rus. KDM1A, noto come oncoproteina nel carcinoma nasofaringeo (NPC) e in altri tumori, promuove la proliferazione e la sopravvivenza cellulare. Un'espressione aberrante di KDM1A è comunemente coinvolta nello sviluppo di diverse neoplasie, tra cui glioma, adenocarcinoma endometriale e NPC36. Inoltre, KDM1A è stato associato a diversi processi biologici che contribuiscono alla progressione tumorale, inclusa la resistenza a più farmaci, la proliferazione e l'EMT37. In particolare, studi recenti hanno riportato che la sovraespressione di KDM1A inibisce la ferroptosi nel cancro del polmone21 e promuove il passaggio del ciclo cellulare nel cancro del pancreas. I risultati ottenuti nel NPC sono perfettamente in linea con questi studi esistenti, dimostrando che la downregolazione mirata di KDM1A è sufficiente per rimuovere il blocco alla ferroptosi e arrestare la proliferazione. Ancor più importante, vengono fornite nuove evidenze biologiche che mostrano come il targeting farmacologico di un singolo regolatore epigenetico (KDM1A) mediante Ruscogenina possa contemporaneamente eliminare sia l'evasione dell'apoptosi che la resistenza alla ferroptosi. Ciò sottolinea la profonda rilevanza biologica dell'intervento epigenetico, posizionando l'asse KDM1A come un interruttore centrale nel determinare il destino della cellula tumorale. L'analisi di docking molecolare ha evidenziato una potenziale interazione diretta tra Rus e KDM1A, successivamente confermata da esperimenti in cui il trattamento con Rus ha significativamente ridotto la produzione di KDM1A. Gli esperimenti di recupero hanno dimostrato in modo inequivocabile l'essenzialità di KDM1A. La sovraespressione di KDM1A ha inoltre significativamente invertito proliferazione, migrazione e invasione, neutralizzando gli effetti pro-ferroptotici e pro-apoptotici di Rus. Questo rappresenta un forte indizio del fatto che KDM1A è un importante effettore infiammatorio a valle al centro dell'effetto antitumorale di Rus, e quindi l'asse Rus-KDM1A costituisce un punto focale terapeutico dominante.
Nonostante questi risultati promettenti, diverse limitazioni dello studio attuale indicano importanti direzioni future. In primo luogo, le evidenze attuali si basano principalmente su una singola linea cellulare di carcinoma nasofaringeo (C666-1) e interamente in vitro esperimenti. Sebbene ciò fornisca una solida prova di principio meccanicistica di base, l'eterogeneità biologica del carcinoma nasofaringeo (NPC) richiede che studi futuri convalidino l'asse Rus-KDM1A in molteplici linee cellulari di NPC e modelli di organoidi derivati da pazienti. In secondo luogo, per tradurre pienamente queste implicazioni terapeutiche preliminari in un potenziale clinico, sono urgentemente necessari rigorosi studi in vivo mediante modelli di xeno-trapianto murino. Tali studi saranno fondamentali per valutare la tossicità sistemica, la farmacocinetica e l'efficacia antitumorale reale della ruscogenina all'interno di un microambiente tumorale complesso e vivente. Infine, nonostante KDM1A sia stato identificato come un mediatore principale, la ruscogenina, essendo un composto naturale, potrebbe avere anche altri tipi di bersagli molecolari, responsabili della sua attività antitumorale complessiva. Ricerche future basate su metodi proteomici o trascrittomica possono essere impiegate per definire in modo più esaustivo il meccanismo d'azione.
In conclusione, questa ricerca dimostra che la Ruscogenina mostra un'efficacia significativa nel prevenire la malignità del carcinoma nasofaringeo. Questo effetto è ottenuto attraverso l'inibizione di KDM1A, che induce un attacco doppio alle cellule tumorali promuovendo contemporaneamente apoptosi e ferroptosi. I risultati non forniscono soltanto una giustificazione convincente allo sviluppo della Ruscogenina come agente terapeutico nel carcinoma nasofaringeo, ma supportano anche l'idea che KDM1A rappresenti un bersaglio importante e che tale effetto possa essere ottenuto mediante farmaci appropriati.
Lo studio attuale fornisce evidenze che la Ruscogenina è un potenziale candidato terapeutico per inibire la trasformazione maligna del carcinoma nasofaringeo attraverso la soppressione della proliferazione, migrazione e invasione cellulare. Il processo principale attraverso cui si realizza questa azione antitumorale è l'inibizione specifica della lisina demetilasi istonica KDM1A. L'inibizione di KDM1A indotta dalla Ruscogenina attiva una via di segnalazione pro-morte a doppio canale, che determina l'aumento simultaneo dell'apoptosi classica, caratterizzata dall'attivazione della caspasi-3, e della ferroptosi, associata alla perossidazione lipidica dipendente dal ferro. Esperimenti di recupero hanno chiaramente dimostrato che l'asse Rus-KDM1A svolge un ruolo essenziale, poiché la sovraespressione di KDM1A annulla gli effetti antitumorali della Ruscogenina. I risultati di questo studio sono inoltre preziosi perché, oltre a descrivere una nuova via d'azione della Ruscogenina, indicano un possibile approccio per superare la resistenza terapeutica attivando simultaneamente due distinti percorsi di morte cellulare. Pertanto, questi risultati rappresentano un solido indicatore dell'evoluzione continua della Ruscogenina e confermano il percorso KDM1A come nuovo bersaglio terapeutico nel carcinoma nasofaringeo.
Dichiarazioni
Gli autori dichiarano di non avere interessi finanziari in conflitto. Gli autori dichiarano che nessuno strumento di intelligenza artificiale generativa è stato utilizzato nella concezione dello studio, nella raccolta dei dati, nell'analisi dei dati o nella generazione delle figure. Le tecnologie assistite da intelligenza artificiale sono state utilizzate esclusivamente per piccole modifiche linguistiche e correzioni grammaticali durante la stesura del presente manoscritto. Gli autori si assumono piena responsabilità per il contenuto e l'integrità del lavoro pubblicato.
Ringraziamenti
Non applicabile.
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| Sistema 7500 Fast Real-Time PCR | Applied Biosystems | 4351106 | Analisi di RT-qPCR |
| Kit per l'apoptosi Annexina-V-FITC/PI | BD Biosciences | 556547 | Rilevamento dell'apoptosi mediante citometria a flusso |
| Anticorpo anti-ACSL4 | Abcam | ab155282 | Anticorpo primario per Western blot |
| Anticorpo anti-Bax | Cell Signaling Technology (CST) | 5023 | Anticorpo primario per Western blot |
| Anticorpo anti-Bcl-2 | Cell Signaling Technology (CST) | 15071 | Anticorpo primario per Western blot |
| Anticorpi | |||
| Anticorpo anti-GPX4 | Abcam | ab125066 | Anticorpo primario per Western blot |
| Anticorpo anti-KDM1A (LSD1) | Cell Signaling Technology (CST) | 2139 | Anticorpo primario per Western blot |
| Anticorpo anti-Ki67 | Abcam | ab16667 | Anticorpo primario per Western blot |
| Anticorpo anti-MMP2 | Abcam | ab92536 | Anticorpo primario per Western blot |
| Anticorpo anti-MMP9 | Abcam | ab76003 | Anticorpo primario per Western blot |
| Anticorpo anti-PCNA | Cell Signaling Technology (CST) | 13110 | Anticorpo primario per Western blot |
| Anti-IgG coniugata con HRP, da coniglio | Cell Signaling Technology (CST) | 7074 | Anticorpo secondario |
| Anticorpo anti-SLC7A11 (xCT) | Abcam | ab175186 | Anticorpo primario per Western blot |
| Anticorpo anti-TFR1 | Abcam | ab84036 | Anticorpo primario per Western blot |
| Anti-βanticorpo anti-actina | Cell Signaling Technology (CST) | 4970 | Anticorpo primario di controllo del caricamento |
| Kit per saggi | |||
| Autodock 4.2 | Scripps Research Institute | N/A | Simulazione di docking molecolare |
| Kit per saggio proteico BCA | Beyotime Biotechnology | P0012 | Quantificazione delle proteine |
| sonda BODIPY 581/591 C11 | Invitrogen (Thermo Fisher Scientific) | D3861 | Rilevamento delle ROS lipidiche (2 μM) |
| linea cellulare C666-1 | iCell Bioscience Inc. | iCell-h378 | Linea cellulare di carcinoma nasofaringeo umano |
| Kit per il saggio dell'attività della caspasi-3 | Beyotime Biotechnology | C1115 | Valutazione dell'apoptosi |
| kit per saggio CCK-8 | Dojindo Molecular Technologies | CK04 | Misurazione della vitalità cellulare |
| Prodotti chimici & Reagenti | |||
| Citometro a flusso CytoFLEX | Beckman Coulter | CytoFLEX | Analisi dell'apoptosi |
| Reagente di rilevamento ECL | MilliporeSigma | WBKLS0500 | Visualizzazione tramite Western blot (Immobilon) |
| Attrezzatura | |||
| Siero fetale bovino (FBS) | Gibco (Thermo Fisher Scientific) | 10099141 | Integratore per coltura cellulare |
| GraphPad Prism 8.0 | GraphPad Software | N/A | Analisi statistica e rappresentazione grafica |
| software ImageJ | NIH | N/A | Analisi di densitometria delle immagini |
| Mezzo privo di siero per cheratinociti | iCell Bioscience Inc. | iCell-019 | Per la coltura cellulare di NP69 |
| Microscopio confocale a scansione laser | Carl Zeiss | LSM 880 | Imaging della fluorescenza con BODIPY C11 |
| Microscopio a luce / fluorescenza | Olympus | IX73 | Graffio del tessuto, Transwell & Imaging del Fe2+ |
| LightCycler 480 SYBR Green I Master | Roche Diagnostics | 4887352001 | PCR quantitativa in tempo reale |
| reagente Lipofectamine 2000 | Invitrogen (Thermo Fisher Scientific) | 11668019 | Reagente per la trasfezione cellulare |
| Matrigel | Corning | 356234 | Matrice della membrana basale per saggio di invasione |
| Lettore di micropiastre | Molecular Devices | SpectraMax M5 | Misurazione dell'assorbanza (405, 450, 532 nm) |
| linea cellulare NP69 | iCell Bioscience Inc. | iCell-h431 | Linea cellulare epiteliale nasofaringea umana normale |
| oe-KDM1A & plasmidi oe-NC | Shanghai GenePharma Co., Ltd. | Sintesi su misura | Plasmidi per la sovraespressione di KDM1A |
| sonda Phen Green SK (PGSK) | Invitrogen (Thermo Fisher Scientific) | P14312 | Rilevamento del Fe2+ intracellulare (10 μM) |
| Pymol 3.0 | Schrödinger | N/A | Visualizzazione del docking molecolare |
| kit di trascrizione inversa | Roche Diagnostics | 4379012001 | Transcriptor First Strand cDNA Synthesis Kit |
| buffer di lisi RIPA | Solarbio (Pechino, Cina) | R0010 | Estrazione totale delle proteine |
| mezzo RPMI 1640 | iCell Bioscience Inc. | iCell-0002 | Per la coltura cellulare di C666-1 |
| Ruscogenina (Rus) | MedChemExpress (MCE) | HY-N0193 | Trattamento farmacologico, purezza ≥ 98% |
| Software | |||
| Kit per saggio TBARS | Cayman Chemical | 10009055 | Misurazione della perossidazione lipidica |
| Reagente TRizol | Invitrogen (Thermo Fisher Scientific)* | 15596026 | Estrazione dell'RNA totale |
Riferimenti
- Zhou R, Qiu L, Zhou L, Geng R, Yang S, Wu J. P4HA1 activates HMGCS1 to promote nasopharyngeal carcinoma ferroptosis resistance and progression. Cell Signal. 2023;105:110609.
- Cao JY, Liu L, Chen SP, Zhang X, Mi YJ, Liu ZG, et al. Prognostic significance and therapeutic implications of centromere protein F expression in human nasopharyngeal carcinoma. Mol Cancer. 2010;9:237.
- Dixon SJ, Lemberg KM, Lamprecht MR, Skouta R, Zaitsev EM, Gleason CE, et al. Ferroptosis: an iron-dependent form of nonapoptotic cell death. Cell. 2012;149(5):1060-72.
- Liu S, Zhang HL, Li J, Ye ZP, Du T, Li LC, et al. Tubastatin A potently inhibits GPX4 activity to potentiate cancer radiotherapy through boosting ferroptosis. Redox Biol. 2023;62:102677.
- Amos A, Jiang N, Zong D, Gu J, Zhou J, Yin L, et al. Depletion of SOD2 enhances nasopharyngeal carcinoma cell radiosensitivity via ferroptosis induction modulated by DHODH inhibition. BMC Cancer. 2023;23(1):117.
- Jiang H, Li M, Du K, Ma C, Cheng Y, Wang S, et al. Traditional Chinese medicine for adjuvant treatment of breast cancer: Taohong Siwu decoction. Chin Med. 2021;16(1):129.
- Shang L, Wang Y, Li J, Zhou F, Xiao K, Liu Y, et al. Mechanism of Sijunzi decoction in the treatment of colorectal cancer based on network pharmacology and experimental validation. J Ethnopharmacol. 2023;302(Pt A):115876.
- Yang CH, Tung KL, Wu YT, Liu C, Lin SC, Yang CC, et al. Qing Yan Li Ge Tang, a Chinese herbal formula, induces autophagic cell death through the PI3K/Akt/mTOR pathway in nasopharyngeal carcinoma cells in vitro. Evid Based Complement Alternat Med. 2021;2021:9925684.
- Ren T, Bai XY, Yang MZ, Xu N, Guo XZ, Qin LJ, et al. Gambogic acid suppresses nasopharyngeal carcinoma via rewiring the molecular network of cancer malignancy and immunosurveillance. Biomed Pharmacother. 2022;150:113012.
- Zhou T, Zhao S, Tang S, Wang Y, Wu R, Zeng X, et al. Guggulsterone promotes nasopharyngeal carcinoma cells' exosomal Circfip1L1 to mediate miR-125a-5p/VEGFA, affecting tumor angiogenesis. Curr Mol Pharmacol. 2023;16(8):870-80.
- Feng X, Shi H, Chao X, Zhao F, Song L, Wei M, et al. Deciphering the pharmacological mechanism of the herb Radix Ophiopogonis in the treatment of nasopharyngeal carcinoma by integrating iTRAQ-coupled 2-D LC-MS/MS analysis and network investigation. Front Pharmacol. 2019;10:253.
- Kim W, Lee WB, Lee J, Min BI, Lee H, Cho SH. Traditional herbal medicine as adjunctive therapy for nasopharyngeal cancer: a systematic review and meta-analysis. Integr Cancer Ther. 2015;14(3):212-20.
- Zhao J, He B, Seshadri VD, Xu S. Anticancer effect of ruscogenin in B(a)P-induced lung cancer in mice via modulation of proinflammatory cytokines and mitochondrial enzymes. Appl Biochem Biotechnol. 2022;194(12):5862-77.
- Rabitha R, Shivani S, Showket Y, Sudhandiran G. Ferroptosis regulates key signaling pathways in gastrointestinal tumors: underlying mechanisms and therapeutic strategies. World J Gastroenterol. 2023;29(16):2433-51.
- Feinberg AP, Koldobskiy MA, Göndör A. Epigenetic modulators, modifiers and mediators in cancer etiology and progression. Nat Rev Genet. 2016;17(5):284-99.
- Song Y, Wu F, Wu J. Targeting histone methylation for cancer therapy: enzymes, inhibitors, biological activity and perspectives. J Hematol Oncol. 2016;9(1):49.
- Zhang W, Ruan X, Li Y, Zhi J, Hu L, Hou X, et al. KDM1A promotes thyroid cancer progression and maintains stemness through the Wnt/β-catenin signaling pathway. Theranostics. 2022;12(4):1500-17.
- Ismail T, Lee HK, Kim C, Kwon T, Park TJ, Lee HS. KDM1A microenvironment, its oncogenic potential, and therapeutic significance. Epigenetics Chromatin. 2018;11(1):33.
- Hou X, Li Q, Yang L, Yang Z, He J, Li Q, et al. KDM1A and KDM3A promote tumor growth by upregulating cell cycle-associated genes in pancreatic cancer. Exp Biol Med (Maywood). 2021;246(17):1869-83.
- Guo D, Liu F, Zhang L, Bian N, Liu L, Kong L, et al. Long non-coding RNA AWPPH enhances malignant phenotypes in nasopharyngeal carcinoma via silencing PTEN through interacting with LSD1 and EZH2. Biochem Cell Biol. 2021;99(2):195-202.
- Lu C, Cai Y, Liu W, Peng B, Liang Q, Yan Y, et al. Aberrant expression of KDM1A inhibits ferroptosis of lung cancer cells through up-regulating c-Myc. Sci Rep. 2022;12(1):19168.
- Hua H, Zhu Y, Song YH. Ruscogenin suppressed the hepatocellular carcinoma metastasis via PI3K/Akt/mTOR signaling pathway. Biomed Pharmacother. 2018;101:115-22.
- Sun Q, Zhen P, Li D, Liu X, Ding X, Liu H. Amentoflavone promotes ferroptosis by regulating reactive oxygen species (ROS) /5'AMP-activated protein kinase (AMPK)/mammalian target of rapamycin (mTOR) to inhibit the malignant progression of endometrial carcinoma cells. Bioengineered. 2022;13(5):13269-79.
- Carlsen CU, Kurtmann L, Brüggemann DA, Hoff S, Risbo J, Skibsted LH. Investigation of oxidation in freeze-dried membranes using the fluorescent probe C11-BODIPY(581/591). Cryobiology. 2009;58(3):262-7.
- Liu J, Yuan S, Yao Y, Wang J, Scalabrino G, Jiang S, et al. Network pharmacology and molecular docking elucidate the underlying pharmacological mechanisms of Houttuynia cordata in treating SARS-CoV-2 pneumonia. Viruses. 2022;14(7).
- Zhu W, Li Y, Zhao J, Wang Y, Li Y, Wang Y. The mechanism of triptolide in the treatment of connective tissue disease-related interstitial lung disease based on network pharmacology and molecular docking. Ann Med. 2022;54(1):541-52.
- Lee AWM, Ng WT, Chan JYW, Corry J, Mäkitie A, Mendenhall WM, et al. Management of locally recurrent nasopharyngeal carcinoma. Cancer Treat Rev. 2019;79:101890.
- Li BH, Ma H, Zhu J, Chen J, Dai YQ, Zhang XJ, et al. Semisynthesis and anti-cancer properties of novel honokiol derivatives in human nasopharyngeal carcinoma CNE-2Z cells. J Enzyme Inhib Med Chem. 2023;38(1):2244694.
- Qiao H, Zhang W, Liu P, Zhu R, Zhang J, Gao J, et al. Ropivacaine inhibits proliferation and invasion and promotes apoptosis and autophagy in bladder cancer cells via inhibiting the PI3K/AKT pathway. J Biochem Mol Toxicol. 2023;37(1):e23233.
- Zhao L, Han S, Hou J, Shi W, Zhao Y, Chen Y. The local anesthetic ropivacaine suppresses the progression of breast cancer by regulating miR-27b-3p/YAP axis. Aging (Albany, NY). 2021;13(12):16341-52.
- Ghasemi A, Khanzadeh T, Zadi Heydarabad M, Khorrami A, Jahanban Esfahlan A, Ghavipanjeh S, et al. Evaluation of BAX and BCL-2 gene expression and apoptosis induction in acute lymphoblastic leukemia cell line CCRFCEM after high-dose prednisolone treatment. Asian Pac J Cancer Prev. 2018;19(8):2319-23.
- Wadey KS, Johnson JL, George SJ. Monitoring cellular proliferation and apoptosis in atherosclerotic plaques and intimal thickenings. Methods Mol Biol. 2022;2419:507-19.
- Chen P, Wang D, Xiao T, Gu W, Yang H, Yang M, et al. ACSL4 promotes ferroptosis and M1 macrophage polarization to regulate nasopharyngeal carcinoma tumorigenesis. Int Immunopharmacol. 2023;122:110629.
- Forcina GC, Dixon SJ. GPX4 at the crossroads of lipid homeostasis and ferroptosis. Proteomics. 2019;19(18):e1800311.
- Zhao Y, Li Y, Zhang R, Wang F, Wang T, Jiao Y. The role of erastin in ferroptosis and its prospects in cancer therapy. Onco Targets Ther. 2020;13:5429-41.
- Sareddy GR, Nair BC, Krishnan SK, Gonugunta VK, Zhang QG, Suzuki T, et al. KDM1 is a novel therapeutic target for glioma treatment. Oncotarget. 2013;4(1):18-28.
- Ferrari-Amorotti G, Fragliasso V, Esteki R, Prudente Z, Soliera AR, Cattelani S, et al. Inhibiting the interactions between the lysine demethylase LSD1 and snail/slug blocks cancer cell invasion. Cancer Res. 2013;73(1):235-45.