Questo protocollo descrive approcci in vivo e in vitro per studiare in che modo l'N-lactoyl-fenilalanina influisce sulla cardiomiopatia diabetica, sul metabolismo lipidico cardiaco e sulla sintesi del colesterolo, con un focus sulla via della proteina chinasi attivata dall'adenosina monofosfato alfa 1/3-idrossi-3-metilglutaril-coenzima A reduttasi.
È richiesta un abbonamento a JoVE per visualizzare questo contenuto. Accedi o inizia la tua prova gratuita.
Articolo di ricerca
La N-lattoil-fenilalanina migliora la funzione cardiaca in un modello murino di cardiomiopatia diabetica regolando il metabolismo lipidico
In questo articolo
Sommario
Abstract
La cardiomiopatia diabetica (DCM) è una delle complicanze più gravi del diabete. L'N-lattoil-fenilalanina (Lac-Phe), un metabolita endogeno, può promuovere la perdita di peso e migliorare l'omeostasi del glucosio. Questo studio ha cercato di indagare l'effetto terapeutico della Lac-Phe sulla DCM e di approfondirne il meccanismo sottostante. Topi con diabete di tipo 2 e DCM sono stati trattati con Lac-Phe. La Lac-Phe ha potenziato la funzione contrattile cardiaca, attenuato il rimodellamento patologico e ridotto l'accumulo lipidico nel cuore. In vitro, gli effetti della Lac-Phe sono stati studiati in cellule H9c2 stimolate con glucosio ad alta concentrazione e acido palmitico. La Lac-Phe ha ridotto l'accumulo lipidico diminuendo la sintesi del colesterolo nelle cellule H9c2. Dal punto di vista meccanicistico, la Lac-Phe ha promosso la fosforilazione e l'attivazione della proteina chinasi attivata dall'adenosina monofosfato alfa 1 (AMPKα1). Successivamente, l'AMPKα1 attivata ha fosforilato e inibito il suo bersaglio downstream, la 3-idrossi-3-metilglutaril-coenzima A reduttasi (HMGCR), portando a una riduzione della sintesi del colesterolo e, infine, attenuando lo squilibrio del metabolismo lipidico nelle cellule H9c2. Questi risultati indicano che la Lac-Phe migliora il metabolismo lipidico nelle cellule H9c2 nella DCM attraverso la via AMPKα1/HMGCR, potenziando così la funzione contrattile cardiaca e attenuando il rimodellamento patologico. La Lac-Phe potrebbe rappresentare un approccio terapeutico potenziale per la cardiomiopatia diabetica.
Introduzione
Il diabete è una malattia metabolica caratterizzata da iperglicemia persistente1Negli ultimi due decenni, il diabete è diventato una delle dieci principali cause di morte nel mondo, con oltre sei milioni di persone che muoiono ogni anno a causa del diabete e delle sue complicanze.2. La cardiomiopatia diabetica (DCM), una condizione patologica cardiaca causata dal diabete, rappresenta una delle complicanze più gravi associate al diabete3,4. Funziona come fattore di rischio indipendente per lo scompenso cardiaco ed è caratterizzato da alterazioni strutturali e funzionali del miocardio5,6, inclusa la fibrosi cardiaca e l'ipertrofia dei cardiomiociti, che portano infine a una disfunzione sia diastolica che sistolica. Sebbene diverse terapie cardiovascolari convenzionali, come βI beta-bloccanti, gli inibitori dell'enzima convertitore dell'angiotensina e i bloccanti del recettore di tipo 1 per l'angiotensina II sono attualmente impiegati nella gestione della miocardiopatia dilatativa (DCM)7,8, la loro efficacia rimane subottimale nelle impostazioni cliniche. Poiché i meccanismi alla base della miocardiopatia dilatativa (DCM) non sono stati studiati approfonditamente9, al momento non esiste una strategia terapeutica chiara mirata a questa malattia10,11. Le manifestazioni cliniche della miocardiopatia dilatativa progrediscono da una disfunzione diastolica asintomatica nella fase iniziale, a una disfunzione sistolica e insufficienza cardiaca clinica nella fase avanzata, fino al decesso12,13Pertanto, sussiste un'urgente necessità di esplorare e sviluppare opzioni terapeutiche efficaci per questa condizione.
Un metabolismo lipidico alterato rappresenta una caratteristica fondamentale della miocardiopatia dilatativa (DCM)14. Nella DCM, l'aumento dei livelli di acidi grassi liberi (FFAs) nel sangue può determinare un'eccessiva captazione di acidi grassi da parte dei cardiomiociti15,16. Il metabolismo degli acidi grassi nei cardiomiociti dipende principalmente dall'ossidazione degli acidi grassi. Nel tempo, l'ossidazione degli acidi grassi nei cardiomiociti non è sufficiente a metabolizzare completamente tutti gli acidi grassi ingeriti, con conseguente accumulo di acidi grassi in eccesso e dei loro metaboliti intermedi all'interno dei cardiomiociti17. Questo eccessivo carico lipidico induce lipotossicità, altera l'approvvigionamento energetico miocardico e favorisce lo stress ossidativo cardiaco e le risposte infiammatorie, causando infine gravi danni ai cardiomiociti18,19. Pertanto, una regolazione attiva del metabolismo lipidico cardiaco potrebbe rappresentare un potenziale bersaglio terapeutico per la DCM20.
L'N-lattoidrossi-fenilalanina (Lac-Phe) è un metabolita endogeno la cui concentrazione aumenta rapidamente dopo l'esercizio fisico21. Da un punto di vista meccanicistico, il Lac-Phe viene sintetizzato dall'enzima citosolico carnosina dipeptidasi 2 (CNDP2) attraverso la condensazione di lattato e fenilalanina. Questo percorso biosintetico è ampiamente distribuito in diversi tipi cellulari, inclusi macrofagi, cellule epiteliali e cellule staminali mesenchimali, che secernono Lac-Phe in circolo in seguito all'attività fisica22. È stato dimostrato che l'amministrazione cronica di Lac-Phe riduce efficacemente l'assunzione di cibo, diminuisce l'obesità e il peso corporeo e migliora l'omeostasi del glucosio21. Uno studio recente ha mostrato che il Lac-Phe può migliorare la capacità del metabolismo lipidico dei microglia/macrofagi dopo una lesione del midollo spinale23. In modo interessante, studi indicano che sia l'amministrazione acuta che cronica della metformina, un farmaco di prima linea per il diabete di tipo 2, possono aumentare i livelli di Lac-Phe e che il Lac-Phe media gli effetti anti-obesità della metformina22. Inoltre, Sha et al. hanno recentemente dimostrato che il Lac-Phe attenua la morte delle cellule miocardiche alleviando la disfunzione mitocondriale, migliorando così lo scompenso cardiaco indotto da costrizione aortica trasversa (TAC)24. L'iperglicemia prolungata e l'obesità sono fattori importanti che contribuiscono alla disregolazione del metabolismo lipidico nella miocardiopatia diabetica (DCM)25. Nel complesso, queste evidenze suggeriscono che il Lac-Phe potrebbe avere un effetto terapeutico potenziale sulla DCM. Tuttavia, ad oggi, il ruolo specifico del Lac-Phe nella DCM non è stato ancora studiato.
In questo studio, abbiamo scoperto che l'amministrazione esogena di Lac-Phe a topi con cardiomiopatia diabetica ha migliorato efficacemente la funzione contrattile cardiaca e attenuato il rimodellamento patologico del cuore. Abbiamo osservato che Lac-Phe migliora la funzione cardiaca nei topi con miocardiopatia dilatativa (DCM) regolando lo squilibrio del metabolismo lipidico. Lac-Phe riduce l'accumulo di gocce lipidiche (LD) nei cardiomiociti di topi con DCM e diminuisce il contenuto di colesterolo nel cuore. Dal punto di vista meccanicistico, Lac-Phe promuove la fosforilazione e l'attivazione della proteina chinasi AMP-attivata alfa 1 (AMPKα1), favorendo così la fosforilazione della 3-idrossi-3-metilglutaril-coenzima A reduttasi (HMGCR). La fosforilazione di HMGCR ne riduce l'attività, determinando una diminuzione della produzione di colesterolo e migliorando quindi lo squilibrio del metabolismo lipidico nei cardiomiociti. Questi risultati forniscono una base teorica per il potenziale utilizzo di Lac-Phe nel trattamento della DCM.
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Protocollo
The animal study protocol was approved by the Institutional Ethics Committee of Nanjing Drum Tower Hospital (Approval Number: 2025AE1065, 26 September 2025) and was conducted in accordance with the guidelines outlined in the Guidelines for the Care and Use of Laboratory Animals (8th Edition), published by the National Institutes of Health of the United States.
Animals
Thirty 5-week-old male C57BL/6J mice were used in this study. After 1 week of adaptive feeding, all mice were housed with access to food and water under an alternating 12 h day-night cycle at a temperature of 22°C ± 2°C and humidity of 40%–60%. An HFD combined with low-dose STZ was used to establish the DCM mouse model (Figure 1A). Four weeks after initiation of high-fat diet (HFD; 60% fat, 20% protein, and 20% carbohydrate) feeding, mice were fasted overnight and subsequently administered streptozotocin (STZ; 8 mg/mL dissolved in citrate buffer, pH 4.5) via intraperitoneal injection at a dosage of 35 mg/kg/day for three consecutive days. Control group mice were fed a control diet (10% fat, 20% protein, and 70% carbohydrate) and received equivalent volumes of citrate buffer. Following 15 additional weeks of high-fat diet maintenance, mice meeting both criteria, random blood glucose of ≥13.3 mmol/L and left ventricular ejection fraction (LVEF) of <55%, were defined as successfully established DCM models. These validated DCM mice were numbered and randomly assigned to the DCM and DCM + Lac-Phe groups using a random number table. Approximately half of the mice failed to develop the model; these animals were euthanized in accordance with animal ethics requirements. In brief, mice were divided into three groups: Control, DCM, and DCM + Lac-Phe (n = 10 for each group). All 10 mice per group underwent echocardiography, body weight measurement, and OGTT. Following the 28-day treatment period, hearts were collected for subsequent analyses. There were 10 mice in each group. Of these, three mice per group were used for transcriptome sequencing, three were used for transmission electron microscopy and histological staining, and three were used for protein expression analysis. The remaining mouse in each group was reserved as a backup. After successful establishment of the DCM model, Lac-Phe was dissolved in normal saline to a final concentration of 10 mg/mL. Mice in the DCM + Lac-Phe group received intraperitoneal Lac-Phe at 50 mg/kg/day in an injection volume of 5 mL/kg, once daily for 28 consecutive days. Mice in the Control and DCM groups were administered an equivalent volume of normal saline as vehicle control.
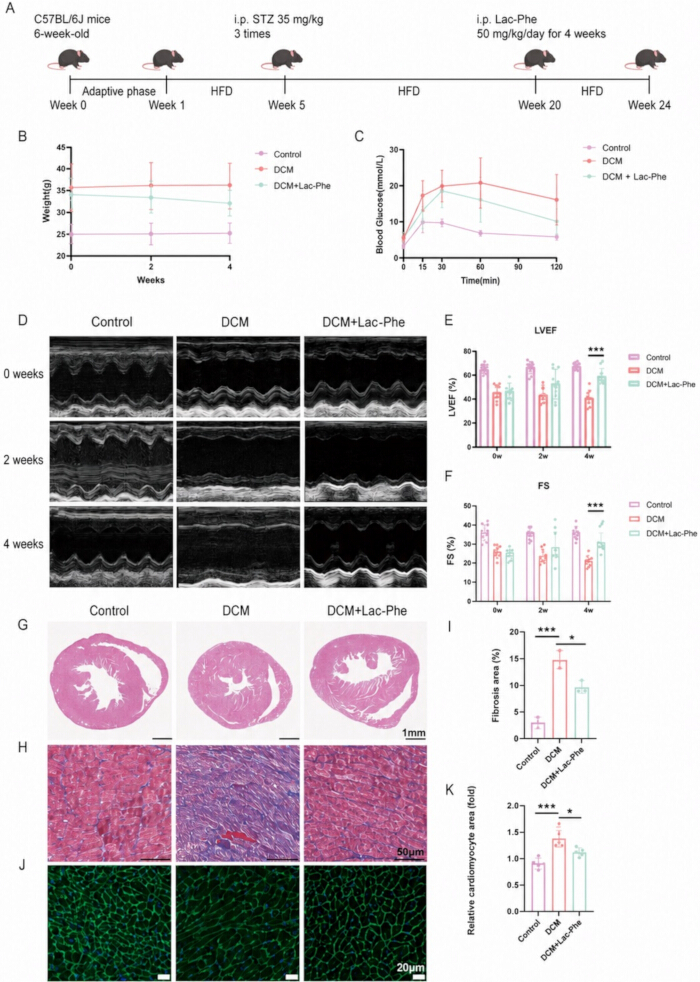
Figure 1. Lac-Phe improves cardiac function and pathological remodeling in mice with diabetic cardiomyopathy. (A) Schematic of the HFD/STZ-induced DCM mouse model and Lac-Phe treatment protocol. (B) Body weights of mice in the Control, DCM, and DCM + Lac-Phe groups during the 4-week treatment period; n = 10 per group. (C) Oral glucose tolerance test (OGTT) in the indicated groups; n = 10 per group. (D) Representative echocardiographic images at 0, 2, and 4 weeks of treatment. (E,F) Quantification of left ventricular ejection fraction (LVEF) (E) and fractional shortening (FS) (F); n = 10 per group. (G) Representative hematoxylin and eosin (H&E)-stained heart sections. Scale bar = 1 mm. (H,I) Representative Masson’s trichrome staining of heart sections (H) and quantification of fibrotic area (I); n = 3 per group. Scale bar = 50 μm. (J,K) Representative wheat germ agglutinin (WGA) staining of heart sections (J) and quantification of relative cardiomyocyte area (K); n = 3 per group. Scale bar = 20 μm. Data are presented as the mean ± standard deviation. P < 0.05, **P < 0.001. Please click here to view a larger version of this figure.
Cardiac function
Following anesthesia with isoflurane inhalation, mice were secured in a supine position on a temperature-controlled platform (37°C). Left ventricular dimensions and mitral valve blood flow velocity during diastole and systole were measured using an echocardiography machine equipped with a 40 MHz transducer, from which LVEF and shortening fraction (FS) were calculated. Three consecutive cardiac cycles were collected from each mouse.
Cell treatment
H9c2 cells were cultured in Dulbecco’s modified Eagle’s medium supplemented with 10% fetal bovine serum and 1% penicillin–streptomycin at 37°C in a humidified atmosphere containing 5% CO₂. Cells were passaged every 2–3 days upon reaching 70%–80% confluence. For experiments, cells were seeded in 10 cm dishes and then divided into three groups: Control, high glucose/palmitic acid (HG/PA), and HG/PA + Lac-Phe. Cells in the HG/PA and HG/PA + Lac-Phe groups were first exposed to 0.25 mM palmitic acid and 50 mM glucose for 24 h. Thereafter, cells in the HG/PA + Lac-Phe group were treated with 10 μg/mL Lac-Phe for an additional 24 h while HG/PA exposure was maintained; cells in the HG/PA group received an equivalent volume of PBS under the same HG/PA conditions. In the p-AMPK inhibition experiments, 10 μM AMPK-IN-3 (dissolved in DMSO) was added simultaneously with Lac-Phe for 24 h, and the corresponding control groups received an equal volume of DMSO. For the atorvastatin experiments, H9c2 cells under HG/PA conditions were treated with 10 μM atorvastatin for 24 h, either alone or in combination with 10 μg/mL Lac-Phe.
Histological staining
After 28 days of Lac-Phe administration, mouse hearts were harvested and immersion-fixed in 4% paraformaldehyde (pH 7.4) for 24 h. Fixed cardiac tissues were paraffin-embedded and sectioned into 6-μm-thick slices. Tissue sections were stained with hematoxylin and eosin, wheat germ agglutinin, and Masson’s trichrome. All staining procedures were performed strictly following the manufacturers’ protocols. Whole-slide imaging was performed at 20× magnification using a high-resolution brightfield microscope equipped with a digital camera system.
Western blot analysis
Protein concentration was determined using the Bradford assay. Tissue lysates were resolved by SDS-PAGE on 10% (w/v) acrylamide gels and electrophoretically transferred to polyvinylidene difluoride membranes. Nonspecific binding sites were blocked with 5% bovine serum albumin for 2 h at room temperature. Membranes were then incubated overnight at 4°C with primary antibodies (diluted 1:1,000), followed by six washes with TBST (5 min each) on a shaker. The membranes were then incubated with horseradish peroxidase-conjugated secondary antibodies (diluted 1:5,000) for 2 h at room temperature, followed by another six washes with TBST (5 min each). Protein bands were visualized using an enhanced chemiluminescence reagent kit. Quantification of western blot results was performed by densitometric analysis using ImageJ software. All antibodies used in this study are listed in the Table of Materials.
Transcriptomics
Total RNA was isolated from cardiac tissue of C57BL/6J mice using TRIzol Reagent and RNeasy mini kits. RNA quality was evaluated using a 2100 bioanalyzer, demonstrating high RNA purity and integrity. RNA-seq libraries were prepared according to the VAHTS Universal V10 RNA-seq Library Prep Kit and sequenced using an Illumina NovaSeq 6000 System (single-read, 150 bp). Differentially expressed genes were identified using DESeq2, with an adjusted P value < 0.05 and an absolute log₂ fold change > 1 considered statistically significant. Gene Ontology (GO) enrichment analysis was conducted on differentially expressed genes, and the significance of enrichment of differentially expressed genes in GO terms was calculated using the hypergeometric distribution algorithm.
Oil Red O staining and LD540 lipid staining
Cardiac tissue was embedded in OCT compound and then cut into 10-μm-thick sections. The frozen sections were equilibrated at room temperature for 30 min and fixed with 4% paraformaldehyde for 10 min. After washing with PBS, the sections were placed in 60% isopropyl alcohol for 15 s and covered with Oil Red O working solution for 30 min. The sections were then treated with 60% isopropyl alcohol for 15 s and washed three times with PBS. For LD540 lipid staining, H9c2 cells were washed with PBS and fixed with 4% paraformaldehyde for 10 min at room temperature. The cells were then incubated with 10 μM LD540 for 30 min at room temperature.
Transmission electron microscopy (TEM)
Fresh mouse heart tissues were cut into 1–2 mm3 pieces, fixed in electron microscope fixative at 4°C for 4 h, then washed with double-distilled water and immersed in ethanol solutions of progressively increasing concentrations. The samples were embedded, sectioned, and then observed under a transmission electron microscope.
Total cholesterol (TC) content
Total cholesterol (TC) levels in serum and H9c2 cell samples were measured using the Amplex Red Cholesterol and Cholesteryl Ester Assay Kit according to the manufacturer’s instructions.
Oral Glucose Tolerance Test (OGTT)
Mice were fasted for 14 h (from 19:00 to 9:00) and gavaged with glucose (20% stock, 2 g/kg). Blood glucose levels were determined using blood collected from the tail vein at 0, 15, 30, 60, and 120 min after gavage.
Cell counting kit-8 (CCK-8) measurement
CCK-8 was used to measure cell viability. H9c2 cells were seeded into 96-well plates at an initial density of 3 × 10⁴ cells/well. After treatment with different concentrations of Lac-Phe under HG/PA conditions for 24 h, 10 μL of the kit reagent was added to 100 μL of culture medium per well, followed by incubation at 37°C for 4 h. The absorbance was measured at 450 nm using a multimode microplate reader to obtain the optical density (OD) value.
Molecular docking
The crystal structures of Lac-Phe and AMPKα1 were downloaded from PubChem26. The molecular docking process was carried out using CB-DOCK227.
Statistical analysis
All echocardiographic measurements, histological staining, and image quantifications were performed by investigators blinded to group assignment. All data analyses were performed using Prism and SPSS 20.0. Each experiment was repeated at least three times, and the data were presented as the mean ± standard deviation. Homogeneity of variance was assessed using Levene’s test. Normality was confirmed by graphical inspection of residuals. Comparisons among multiple groups were conducted using one-way analysis of variance, followed by Tukey's post hoc test for pairwise comparisons. For OGTT data, two-way repeated-measures ANOVA was used, with group as the between-subjects factor and time as the within-subjects factor, followed by Bonferroni's post hoc test. P < 0.05 was considered statistically significant.
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Risultati
Lac-Phe migliora la funzione cardiaca nei topi con cardiomiopatia diabetica
Abbiamo indotto la DCM in topi C57BL/6J utilizzando una dieta ricca di grassi (HFD) in combinazione con iniezioni di STZ (Figura 1A) e assegnati casualmente i topi DCM in cui il modello era stato stabilizzato con successo a un gruppo non trattato (gruppo DCM) e a un gruppo trattato con Lac-Phe, utilizzando i topi C57BL/6J di controllo come controllo negativo. Secondo lo st...
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Discussione
In questo studio, forniamo evidenze a sostegno di un effetto terapeutico del Lac-Phe sulla MDC. Il Lac-Phe ha migliorato il rimodellamento cardiaco e la disfunzione cardiaca nella MDC, riducendo al contempo la produzione di colesterolo nei cardiomiociti e attenuando lo squilibrio del metabolismo lipidico. Da un punto di vista meccanicistico, il Lac-Phe ha aumentato la fosforilazione di AMPKα1. Successivamente, l'aumento della fosforilazione di AMPKα1 è stato associato a un incremento della fosforilazione e all'inibizione...
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Dichiarazioni
Conflitto di interessi:
Gli autori non hanno nulla da dichiarare.
Ringraziamenti
Desideriamo esprimere la nostra sincera gratitudine ai ricercatori e al personale del Clinical College dell'Ospedale Nanjing Drum Tower e dell'Ospedale Affiliato della Scuola di Medicina dell'Università di Nanjing per il loro supporto tecnico. Questa ricerca è stata finanziata da contributi della National Natural Science Foundation of China (numero di concessione 81870291 e 82300384), della China Postdoctoral Science Foundation (numero di concessione 2023M731625) e della Natural Science Foundation della provincia di Jiangsu (numero di concessione BK20220175). Ringraziamo inoltre per le risorse e il supporto collaborativo forniti dall'Istituto di Sintesi Avanzata della Nanjing Tech University.
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| AMPK-IN-3 (inibitore della p-AMPK) | MedChemExpress (MCE) | HY-132921 | Utilizzato a 10 μM durante esperimenti di inibizione della AMPK per inibire la segnalazione della AMPK in cellule trattate con Lac-Phe. |
| Kit per saggio Amplex Red per colesterolo e esteri del colesterolo | Beyotime | S0211S | Utilizzato per determinare i livelli totali di colesterolo in campioni di siero e cellulari H9c2. |
| Anti-AMPKα1 | Cell Signaling Technology | 2532; RRID: AB_330331 | Anticorpo primario utilizzato per l'analisi Western blot di AMPKα1. |
| Anti-GAPDH | Cell Signaling Technology | 5174; RRID: AB_10622025 | Anticorpo primario utilizzato per l'analisi di GAPDH mediante western blot |
| Anti-HMGCR | Abcam | ab174830; RRID: AB_2749818 | Anticorpo primario utilizzato per l'analisi Western blot di HMGCR. |
| Anti-p-AMPKα1 (Thr172) | Cell Signaling Technology | 2535; RRID: AB_331250 | Anticorpo primario utilizzato per l'analisi Western blot di AMPK fosforilataα1. |
| Anti-p-HMGCR (Ser872) | Abcam | ab124350 | Anticorpo primario utilizzato per l'analisi mediante western blot di HMGCR fosforilato. |
| anticorpo secondario anti-coniglio IgG coniugato con HRP | Cell Signaling Technology | 7074; RRID: AB_2099233 | Utilizzato a un'escursione 1:5.000 per la rilevazione in immunoblotting. |
| Anti-β-tubulina | Cell Signaling Technology | 2128; RRID: AB_823664 | Anticorpo primario utilizzato per l'analisi mediante western blot di β-tubulina |
| Atorvastatina | MedChemExpress (MCE) | HY-17379 | Utilizzato da solo o in combinazione con Lac-Phe per valutare gli effetti sull'accumulo di lipidi, sui livelli totali di colesterolo e sulla fosforilazione di HMGCR in cellule H9c2 trattate con HG/PA. |
| Albumina sierica bovina | Sigma-Aldrich | A7906 | Utilizzato al 5% per bloccare il legame non specifico durante l'analisi mediante western blot. |
| reattivo/sistema per saggio di Bradford | Thermo Fisher Scientific | 23200 | Utilizzato per determinare la concentrazione delle proteine prima dell'analisi mediante western blot. |
| Topi C57BL/6J (maschi, 5 settimane di età) | Centro di Ricerca sugli Animali Modello dell'Università di Nanjing | N/A | Utilizzato per stabilire il modello murino di cardiomiopatia diabetica indotto da HFD/STZ. |
| Cell Counting Kit-8 (CCK-8) | Sharebio | SB-CCK8S | Utilizzato per misurare la vitalità delle cellule H9c2 dopo il trattamento. |
| Tampone citrato | Preparato in laboratorio | N/A | Preparato a pH 4,5 e utilizzato per sciogliere la STZ e come controllo del veicolo corrispondente. |
| Dieta di controllo (10% grassi, 20% proteine, 70% carboidrati) | Research Diets, Inc. | D12450J | Utilizzato come dieta per i topi del gruppo di controllo. |
| D-(+)-Glucosio | Sigma-Aldrich | N/A | Utilizzato per il trattamento delle cellule HG/PA e per il test di tolleranza orale al glucosio. |
| Dimetilsolfossido (DMSO) | Sigma-Aldrich | D2650 | Utilizzato come solvente per AMPK-IN-3 e come controllo del veicolo corrispondente. |
| Dulbecco’s modificato di Eagle’mezzo s | Gibco, Thermo Fisher Scientific | 11965092 | Utilizzato come mezzo di coltura basale per cellule H9c2. |
| Macchina per ecocardiografia con trasduttore da 40 MHz | FUJIFILM VisualSonics | Vevo 3100 LT; trasduttore da 40 MHz | Utilizzato per misurare le dimensioni del ventricolo sinistro e la velocità del flusso sanguigno attraverso la valvola mitrale e per ricavare la frazione di eiezione del ventricolo sinistro (LVEF) e la frazione di accorciamento (FS). |
| Fissativo per microscopio elettronico | ServiceBio | G1102 | Utilizzato per fissare il tessuto cardiaco fresco di topo per la microscopia elettronica a trasmissione. |
| Etanolo | Sigma-Aldrich | E7023 | Utilizzato in concentrazioni progressivamente crescenti per la disidratazione durante la preparazione del campione per microscopia elettronica a trasmissione. |
| siero fetale bovino | Gibco, Thermo Fisher Scientific | 10099141 | Utilizzato al 10% per integrare il mezzo di coltura delle cellule H9c2. |
| linea cellulare H9c2 | Sunncell | RRID: CVCL_0286 | Utilizzato come modello cellulare cardiaco in vitro per esperimenti di trattamento con HG/PA e Lac-Phe. |
| Colorazione con ematossilina ed eosina | ServiceBio | G1005-1/2 | Utilizzato per la valutazione istologica del tessuto cardiaco. |
| Dieta ad alto contenuto di grassi (60 kcal% di grassi) | Research Diets, Inc. | D12492 | Utilizzato con STZ a basso dosaggio per stabilire il modello murino di cardiomiopatia diabetica. |
| Microscopio a campo chiaro ad alta risoluzione | Leica | DM2500 | Utilizzato per l'immagine completa di tessuto cardiaco colorato a 20× ingrandimento |
| ImageJ | Istituti Nazionali di Sanità | N/A | Utilizzato per la quantificazione densitometrica dei risultati di immunoblotting. |
| Isoflurano | Sigma-Aldrich | 792632 | Utilizzato per l'anestesia durante l'ecocardiografia nei topi. |
| alcol isopropilico | Sigma-Aldrich | I9516 | Utilizzato al 60% durante la colorazione con Oil Red O di sezioni cardiache congelate. |
| Colorazione lipidica LD540 | Beyotime | C2050S-1 | Utilizzato a 10 μM per colorare i lipidi intracellulari. |
| Masson’colorazione con tricromia s | ServiceBio | G1006 | Utilizzato per la colorazione istologica del tessuto cardiaco. |
| N-lattato-fenilalanina (Lac-Phe) | MedChemExpress (MCE) | HY-146098 | Somministrato a topi con miocardiopatia dilatativa (DCM) e utilizzato per trattare cellule H9c2 esposte a glucosio elevato/acido palmitico (HG/PA). |
| Soluzione di lavoro di Oil Red O | ServiceBio | G1015-100ML | Utilizzato per colorare i lipidi in sezioni di tessuto cardiaco congelato. |
| Kit Omni-ECL per chemiluminescenza efficiente della luce | EpiZyme | SQ203L | Utilizzato per la visualizzazione chemiluminescente delle bande proteiche dopo il western blotting. |
| Acido palmitico | Sigma-Aldrich | P0500 | Utilizzato a 0,25 mM con glucosio ad alta concentrazione per stabilire il modello di cellule H9c2 trattate con HG/PA. |
| Paraformaldeide | Sigma-Aldrich | P6148 | Preparato come soluzione al 4% e utilizzato per fissare tessuti e cellule cardiache prima della colorazione istologica o lipidica. |
| Penicillina-streptomicina | Gibco, Thermo Fisher Scientific | 15140122 | Utilizzato al 1% nel mezzo di coltura cellulare H9c2. |
| Soluzione salina tamponata al fosfato (PBS) | Gibco, Thermo Fisher Scientific | 10010023 | Utilizzato per il lavaggio durante le procedure di colorazione e come veicolo corrispondente in esperimenti di trattamento cellulare. |
| Prism | GraphPad Software | Versione 8.0 | Utilizzato per l'analisi statistica dei dati sperimentali. |
| membrana di trasferimento in PVDF, 0.45 μm | Thermo Fisher Scientific | 88518 | Utilizzato per il trasferimento elettroforetico delle proteine durante l'analisi di western blot. |
| RNeasy Mini Kit | QIAGEN | 74104 | Utilizzato per l'isolamento/la purificazione di RNA totale da tessuto cardiaco di topo. |
| Soluzione di cloruro di sodio, 0,9% (soluzione fisiologica) | Sigma-Aldrich | S8776 | Utilizzato per solubilizzare Lac-Phe e come controllo del veicolo per i topi Controllo e DCM. |
| SPSS | IBM | Versione 20.0 | Utilizzato per l'analisi statistica dei dati sperimentali. |
| Streptozotocina (STZ) | Sigma-Aldrich | S0130 | Somministrato insieme all'alimentazione con dieta ricca di grassi (HFD) per stabilire il modello murino di cardiomiopatia diabetica. |
| Tampone TBS Tween-20 (20×) | Thermo Fisher Scientific | 28360 | Utilizzato per lavare le membrane dopo l'incubazione con l'anticorpo primario e secondario durante l'analisi di western blot. |
| Tissue-Tek O.C.T. Compound | Sakura Finetek | 4583 | Utilizzato per incapsulare il tessuto cardiaco prima della preparazione di sezioni congelate per la colorazione con Oil Red O. |
| Microscopio elettronico a trasmissione | HITACHI | HT7800 | Utilizzato per esaminare le modifiche ultrastrutturali nel tessuto cardiaco del topo. |
| Reagente TRIzol | Invitrogen | 15596026 | Utilizzato per l'isolamento di RNA totale da tessuto cardiaco murino. |
| VAHTS Universal V10 RNA-seq Library Prep Kit | Vazyme | NR616-01 | Utilizzato per preparare librerie RNA-seq per l'analisi transcriptomica. |
| Wheat germ agglutinin (WGA) | ServiceBio | W7024 | Utilizzato per la valutazione istologica del tessuto cardiaco. |
Riferimenti
- Pan KL, Hsu YC, Chang ST, Chung CM, Lin CL. The role of cardiac fibrosis in diabetic cardiomyopathy: from pathophysiology to clinical diagnostic tools. Int J Mol Sci. 2023;24(10):8604.
- Saeedi P, et al. Global and regional diabetes prevalence estimates for 2019 and projections for 2030 and 2045: results from the International Diabetes Federation Diabetes Atlas, 9th edition. Diabetes Res Clin Pract. 2019;157:107843.
- Zou R, et al. PGAM5-mediated PHB2 dephosphorylation contributes to diabetic cardiomyopathy by disrupting mitochondrial quality surveillance. Research. 2022;2022:0001.
- Jia G, DeMarco VG, Sowers JR. Insulin resistance and hyperinsulinaemia in diabetic cardiomyopathy. Nat Rev Endocrinol. 2016;12(3):144–53.
- Low Wang CC, Hess CN, Hiatt WR, Goldfine AB. Clinical update: cardiovascular disease in diabetes mellitus: atherosclerotic cardiovascular disease and heart failure in type 2 diabetes mellitus—mechanisms, management, and clinical considerations. Circulation. 2016;133(24):2459–502.
- Liu P, Zhang Z, Chen H, Chen Q. Pyroptosis: mechanisms and links with diabetic cardiomyopathy. Ageing Res Rev. 2024;94:102182.
- Park JJ. Epidemiology, pathophysiology, diagnosis and treatment of heart failure in diabetes. Diabetes Metab J. 2021;45(2):146–57.
- Gilca GE, et al. Diabetic cardiomyopathy: current approach and potential diagnostic and therapeutic targets. J Diabetes Res. 2017;2017:1310265.
- Nakamura K, et al. Pathophysiology and treatment of diabetic cardiomyopathy and heart failure in patients with diabetes mellitus. Int J Mol Sci. 2022;23(7):3587.
- Han X, et al. Cardiomyocyte OTUD1 drives diabetic cardiomyopathy via directly deubiquitinating AMPKα2 and inducing mitochondrial dysfunction. Nat Commun. 2025;16(1):666.
- Jia G, Hill MA, Sowers JR. Diabetic cardiomyopathy: an update of mechanisms contributing to this clinical entity. Circ Res. 2018;122(4):624–38.
- Yao Y, Yang B, Shi J. TiO(x)(OH)(4-2x) nanosheets with catalytic antioxidative activity alleviate oxidative injury in diabetic cardiomyopathy. J Am Chem Soc. 2025;147(4):3885–95.
- Seferovic PM, et al. Diabetic myocardial disorder: a clinical consensus statement of the Heart Failure Association of the ESC and the ESC Working Group on Myocardial & Pericardial Diseases. Eur J Heart Fail. 2024;26(9):1893–903.
- Wang H, et al. Inhibition of fatty acid uptake by TGR5 prevents diabetic cardiomyopathy. Nat Metab. 2024;6(6):1161–77.
- Zhao Y, et al. Ferroptosis: roles and molecular mechanisms in diabetic cardiomyopathy. Front Endocrinol. 2023;14:1140644.
- Nakamura M. Lipotoxicity as a therapeutic target in obesity and diabetic cardiomyopathy. J Pharm Pharm Sci. 2024;27:12568.
- Nakamura M, et al. Glycogen synthase kinase-3α promotes fatty acid uptake and lipotoxic cardiomyopathy. Cell Metab. 2019;29(5):1119–34.e12.
- Ritchie RH, Abel ED. Basic mechanisms of diabetic heart disease. Circ Res. 2020;126(11):1501–25.
- Thakur M, Tupe RS. Lipoxin and glycation in SREBP signaling: insight into diabetic cardiomyopathy and associated lipotoxicity. Prostaglandins Other Lipid Mediat. 2023;164:106698.
- Dhar A, et al. A comprehensive review of the novel therapeutic targets for the treatment of diabetic cardiomyopathy. Ther Adv Cardiovasc Dis. 2023;17:17539447231210170.
- Li VL, et al. An exercise-inducible metabolite that suppresses feeding and obesity. Nature. 2022;606(7915):785–90.
- Xiao S, et al. Lac-Phe mediates the effects of metformin on food intake and body weight. Nat Metab. 2024;6(4):659–69.
- Ying W, et al. N-lactoyl-phenylalanine modulates lipid metabolism in microglia/macrophage via the AMPK-PGC1α-PPARγ pathway to promote recovery in mice with spinal cord injury. J Neuroinflammation. 2025;22(1):167.
- Sha L, et al. N-Lac-Phe ameliorates myocardial cell death by improving mitochondrial dysfunction, ultimately improving TAC-induced heart failure. Cardiovasc Drugs Ther. 2026;40:1391–401.
- Ke J, Pan J, Lin H, Gu J. Diabetic cardiomyopathy: a brief summary on lipid toxicity. ESC Heart Fail. 2023;10(2):776–90.
- PubChem. PubChem. Available from: https://pubchem.ncbi.nlm.nih.gov/. Accessed August 15, 2026.
- Liu Y, Yang X, Gan J, et al. CB-Dock2: improved protein-ligand blind docking by integrating cavity detection, docking and homologous template fitting. Nucleic Acids Res. 2022;50(W1):W159–W164.
- GeneCards. GeneCards: the Human Gene Database. Version 6.1, June 17, 2026.
- Daina A, Michielin O, Zoete V. SwissTargetPrediction: updated data and new features for efficient prediction of protein targets of small molecules. Nucleic Acids Res. 2019;47(W1):W357–W364.
- Jo Y, DeBose-Boyd RA. Post-translational regulation of HMG CoA reductase. Cold Spring Harb Perspect Biol. 2022;14(12):a041253.
- Steinberg GR, Hardie DG. New insights into activation and function of the AMPK. Nat Rev Mol Cell Biol. 2023;24(4):255–72.
- Istvan ES, Deisenhofer J. Structural mechanism for statin inhibition of HMG-CoA reductase. Science. 2001;292(5519):1160–4.
- Beaudry D, et al. Statin therapy in cardiovascular diseases other than atherosclerosis. Curr Atheroscler Rep. 2007;9(1):25–32.
- Koch CG. Statin therapy. Curr Pharm Des. 2012;18(38):6284–90.
- Dewanjee S, et al. Autophagy in the diabetic heart: a potential pharmacotherapeutic target in diabetic cardiomyopathy. Ageing Res Rev. 2021;68:101338.
- Madonna R, et al. Empagliflozin inhibits excessive autophagy through the AMPK/GSK3β signalling pathway in diabetic cardiomyopathy. Cardiovasc Res. 2023;119(5):1175–89.
- Madhavi YV, et al. Targeting AMPK in diabetes and diabetic complications: energy homeostasis, autophagy and mitochondrial health. Curr Med Chem. 2019;26(27):5207–29.
- Fang C, et al. The AMPK pathway in fatty liver disease. Front Physiol. 2022;13:970292.
- Liu S, et al. AICAR-induced activation of AMPK inhibits TSH/SREBP-2/HMGCR pathway in liver. PLoS One. 2015;10(5):e0124951.
- Zhou H, et al. Empagliflozin rescues diabetic myocardial microvascular injury via AMPK-mediated inhibition of mitochondrial fission. Redox Biol. 2018;15:335–46.
- Lu QB, et al. METRNL ameliorates diabetic cardiomyopathy via inactivation of cGAS/STING signaling dependent on LKB1/AMPK/ULK1-mediated autophagy. J Adv Res. 2023;51:161–79.
- Wang D, et al. FGF1(ΔHBS) prevents diabetic cardiomyopathy by maintaining mitochondrial homeostasis and reducing oxidative stress via AMPK/Nur77 suppression. Signal Transduct Target Ther. 2021;6(1):133.
- He L. Metformin and systemic metabolism. Trends Pharmacol Sci. 2020;41(11):868–81.
- Yang F, et al. Metformin inhibits the NLRP3 inflammasome via AMPK/mTOR-dependent effects in diabetic cardiomyopathy. Int J Biol Sci. 2019;15(5):1010–9.
- Regitz-Zagrosek V, Gebhard C. Gender medicine: effects of sex and gender on cardiovascular disease manifestation and outcomes. Nat Rev Cardiol. 2023;20(4):236–47.
- Evrony GD, Hinch AG, Luo C. Applications of single-cell DNA sequencing. Annu Rev Genomics Hum Genet. 2021;22:171–97.
- Verboom K, et al. Smarter single cell total RNA sequencing. Nucleic Acids Res. 2019;47(16):e93.
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Ristampe e permessi
Questo articolo è stato pubblicato
Video in arrivo