L'infezione da nematode reniforme riduce significativamente il rendimento del cotone e la qualità della fibra. La lignina rafforza le pareti cellulari delle piante e contribuisce alle difese strutturali contro i parassiti, ma il suo ruolo nella resistenza al nematode reniforme nel cotone non è stato esaminato. Questo studio descrive un protocollo istochimico per la visualizzazione del deposito di lignina nelle radici di genotipi di cotone (Gossypium arboreum) resistenti e suscettibili al nematode reniforme, mediante colorazione con floroglucinolo.
Articolo di ricerca
Analisi istochimica delle differenze di lignina tra genotipi di cotone resistenti e suscettibili ai nematodi reniformi
In questo articolo
Sommario
Abstract
I nematodi reniformi (Rotylenchulus reniformis) rappresentano un grave ostacolo alla produzione del cotone, in particolare nel sud degli Stati Uniti. Il nematode reniforme è il secondo parassita più importante tra oltre 400 specie di nematodi. Questi nematodi costituiscono una minaccia per la sicurezza alimentare globale. L'aumento delle preoccupazioni riguardo alla salute umana e all'ambiente, unito al costo dei nematicidi, ha intensificato l'interesse per il germoplasma di cotone resistente. La parete cellulare vegetale, in particolare la lignina, è un biopolimero fondamentale coinvolto nella resistenza allo stress biotico. Poiché i nematodi infettano i tessuti radicali, componenti della parete cellulare come la lignina potrebbero contribuire alla difesa; tuttavia, le barriere mediate dalla lignina nelle radici del cotone non sono ancora ben caratterizzate. In questo studio è stato impiegato un protocollo standardizzato di colorazione istochimica con acido floroglucinolico-HCl per visualizzare le differenze nell'accumulo di lignina in genotipi di cotone resistenti (A2-514, A2-995) e suscettibili (Gossypium arboreum) allo stadio della foglia vera, in condizioni non infette. Questo colorante si lega specificamente all'idrossicinnamilaldeide, come l'aldeide coniferilica e l'aldeide sinapilica della lignina, in presenza di acido, generando un colore violaceo-rosato che permette di visualizzare la lignina. Sono stati osservati distinti modelli di colorazione della lignina tra genotipi resistenti e suscettibili, a sostegno di un potenziale ruolo delle difese strutturali associate alla lignina.
Introduzione
Il cotone è coltivato in tutto il mondo per la sua fibra ed è altamente vulnerabile ai parassiti del suolo, in particolare ai nematodi, che possono causare notevoli perdite di resa. Tra questi, il nematode reniforme (Rotylenchulus reniformis) è un importante patogeno che colpisce il cotone e altre colture a livello globale, con impatti particolarmente evidenti nel sud degli Stati Uniti, dove le infestazioni possono ridurre la produzione di oltre il 50%1. Questo organismo microscopico, che vive nel suolo, parassitizza le radici del cotone2, compromettendo la vigoria della pianta, la biomassa e la resa della fibra attraverso l'alterazione dell'assorbimento di acqua e nutrienti e la formazione di siti di alimentazione (Figura 1). L'infezione da nematode reniforme modifica la crescita della pianta di cotone ritardando l'epoca della fioritura, riducendo le dimensioni e il numero dei capsule e compromettendo la qualità della fibra grezza3. Gravi perdite sono state segnalate in Mississippi, Alabama e Louisiana4. I nematicidi sono comunemente utilizzati per controllare le infestazioni da nematodi, ma il loro elevato costo e l'impatto negativo sull'ambiente e sulla salute umana hanno reso necessaria la ricerca di alternative5,6. Lo sviluppo di germoplasma resistente rappresenta un approccio promettente per ridurre i danni causati dal nematode reniforme4. Poiché i nematodi si nutrono all'interno dei tessuti radicali, si ipotizza che le difese basate sulla parete cellulare, in particolare la lignificazione, possano ostacolare l'invasione, inibire gli enzimi degradanti la parete cellulare prodotti dal patogeno e limitare la formazione e l'espansione dei siti di alimentazione del nematode7,8,9. Un aumento della lignificazione è stato associato a una minore suscettibilità ai patogeni in diverse specie vegetali10,11,12,13,14. Studi precedenti sul cotone hanno correlato l'espressione di geni della lignina e della laccasi alla resistenza contro Verticillium dahliae15, e ricerche condotte su cultivar resistenti e suscettibili a Fusarium hanno rivelato livelli più elevati di lignina nelle cultivar resistenti16. Osservazioni simili in Arabidopsis e nel riso, dove la soppressione dei geni biosintetici della lignina ha aumentato la suscettibilità, sottolineano l'importanza della lignificazione nella difesa vegetale.
La lignina è un biopolimero fenolico complesso presente nelle pareti cellulari secondarie delle piante vascolari, dove conferisce rigidità strutturale, resistenza meccanica e idrofobicità17. Sintetizzata attraverso le vie dello shikimato e del fenilpropanoide, la lignina è il secondo biopolimero terrestre più abbondante dopo la cellulosa, rappresentando circa il 30% del carbonio organico terrestre18,19. Rafforzando la rete cellulosa-emicellulosa, la lignina migliora i tessuti portanti e sostiene lo sviluppo complessivo della pianta. La lignina è particolarmente abbondante in tessuti altamente specializzati come il xilema, lo sclerenchima, le fibre del floema e il periderma, formando una barriera idrorepellente essenziale per il trasporto efficiente di acqua e minerali. Oltre alle funzioni strutturali, la lignina agisce come barriera difensiva biochimica e fisica, limitando l'ingresso di patogeni e riducendo i danni causati da stress biotici e abiotici20,21,22. La lignificazione è un processo dinamico centrale nella resistenza contro un'ampia gamma di patogeni, inclusi necrotrofi, biotrofi ed emibiotrofi. La sua biosintesi a partire dai monolignoli primari alcol sinapilico, alcol coniferilico e alcol p-cumarilico varia in base alla specie, al tipo di tessuto e allo stadio di sviluppo, influenzando il grado di resistenza. L'invasione da parte di patogeni o lo stress abiotico spesso induce un deposito localizzato di lignina, rafforzando ulteriormente le difese della pianta23,24.
Chiarire il ruolo della lignina nella resistenza ai nematodi reniformi è fondamentale per migliorare le strategie di gestione del cotone. La caratterizzazione visiva e biochimica della distribuzione della lignina fornisce informazioni sulle dinamiche spaziali e temporali delle modifiche della parete cellulare alla base delle risposte difensive precoci. Questo studio utilizza la colorazione istochimica con floroglucinolo per analizzare i modelli di deposizione della lignina presenti naturalmente in genotipi di cotone resistenti e suscettibili al nematode reniforme, offrendo un quadro preliminare pratico per valutare i tratti di resistenza associati alla parete cellulare e supportare programmi di miglioramento genetico volti a potenziare la resilienza delle colture.
Protocollo
Gli esperimenti sono stati condotti in una serra utilizzando i materiali vegetali descritti di seguito. Tutti i prodotti chimici, l'attrezzatura e i reagenti utilizzati in questo studio sono elencati nella Tabella dei materiali.
Materiale vegetale
Sono stati ottenuti semi sia per il germoplasma suscettibile (A2‑20, PI 129742; A2‑40, PI 183202) che per quello resistente (A2‑514, PI 616008; A2‑995, PI 629323). Inoltre, è stato incluso in questo studio Deltapine 16, una cultivar suscettibile. I semi sono stati posti in acqua sterile e lasciati in ammollo per 24 h a temperatura ambiente. Dopo l'ammollo, i semi sono stati accuratamente risciacquati con acqua sterile fresca per rimuovere contaminanti residui. I semi risciacquati sono stati quindi trasferiti su piastre di Petri sterili foderate con tovaglioli di carta pre-umidificati e sterilizzati in autoclave, e incubati per 2 giorni a temperatura ambiente per favorire la germinazione (Figura 2).
Trapianto in serra
I vasi di plastica sono stati riempiti con un terriccio pre-umidificato a controllo dell'umidità. Il terreno è stato inumidito in anticipo per due giorni prima del trapianto. Le piantine germinate sono state quindi trapiantate con cura nel terreno pre-umidificato e mantenute in condizioni controllate di serra con cicli giorno/notte di 28 °C/25 °C fino alla fase delle foglie vere (Figura 2). Per ogni genotipo sono stati piantati tre replicati biologici.
Raccolta del campione
Le piante allo stadio di foglie vere sono state delicatamente estratte dal terreno allentando il substrato circostante per minimizzare i danni alle radici. Le radici sono state risciacquate 2–3 volte con acqua per rimuovere le particelle di terreno aderenti. I tessuti radicolari e caulicolari di ciascun genotipo sono stati raccolti per la sezionatura (Figura 3).
Preparazione della soluzione colorante al floroglucinolo
Una soluzione al 3% di floroglucinolo è stata preparata sciogliendo 0,45 g di floroglucinolo in una miscela composta da due parti di etanolo al 100% (10 mL) e una parte di HCl concentrato (5 mL) in una cappa da laboratorio. La soluzione di colorazione è stata preparata seguendo un metodo precedentemente descritto16.
Preparazione delle sezioni e procedura di colorazione per l'analisi istochimica della lignina
I tessuti di radice e di fusto sono stati sezionati utilizzando una lametta sterile per ottenere sottili sezioni trasversali (Figura 3). Le sezioni fresche sono state trasferite su vetrini e ricoperte con 20 µL di soluzione colorante al 3% di floroglucinolo per 1 minuto. Successivamente, le sezioni sono state risciacquate con acqua sterile, montate sotto coprioggetti ed analizzate al microscopio (Figura 4, Figura 5, Figura 6). La stessa procedura è stata utilizzata per i tessuti del fusto (Figura Supplementare 1).
Acquisizione di immagini mediante microscopia
L'acquisizione delle immagini è stata eseguita utilizzando un microscopio digitale. Vetrini preparati contenenti campioni di tessuto colorati sono stati posizionati sulla piattaforma del microscopio per l'acquisizione. Dopo l'avvio del software di acquisizione del microscopio, sono state selezionate le ingrandimenti desiderate di 100x, 200x e 300x in modalità campo chiaro. Sono state effettuate regolazioni di fuoco grossolano e fine per visualizzare chiaramente i modelli di colorazione della lignina all'interno delle sezioni di tessuto. Le immagini sono state registrate e salvate con i rispettivi numeri di identificazione del campione. Successivamente è stata eseguita un'analisi comparativa esaminando le immagini provenienti sia da genotipi resistenti che suscettibili per valutare le differenze nella colorazione della lignina. Le immagini di genotipi resistenti e suscettibili sono state confrontate utilizzando ImageJ per determinare le differenze nella percentuale di area colorata, applicando soglie uniformi. I risultati sono stati esportati come file CSV dopo aver elaborato tutte e tre le repliche. Successivamente sono stati preparati grafici per confrontare i genotipi resistenti e suscettibili.
Risultati
Analisi istochimica di genotipi di cotone resistenti e suscettibili
L'esame istochimico di sezioni trasversali di radici e fusti allo stadio di foglia vera ha rivelato differenze visibili tra genotipi resistenti e suscettibili, come mostrato in Figura 4, Figura 5 e Figura Supplementare 1 (sezioni trasversali del fusto). Ingrandimenti maggiori (100x–300x) hanno permesso di osservare in dettaglio queste differenze (Figura 4A–C e Figura 5A–C per i genotipi resistenti e Figura 4D–F e Figura 5D–F per i genotipi suscettibili). I modelli di colorazione della lignina variavano in base ai tipi di tessuto: i genotipi resistenti mostravano un'intensità di colorazione della lignina inferiore o simile nei fusti, mentre i genotipi suscettibili presentavano una lignificazione del fusto relativamente più accentuata all'osservazione visiva (Supplementary Figure 1A–D).
Analisi quantitativa delle immagini della colorazione della lignina
Deltapine 16, un cultivar suscettibile incluso in questo studio, ha mostrato una colorazione minore della lignina (Figura 6A–C) con valori percentuali di area colorata pari a 12, 17,8 e 16,3 (Figura 6D). Il genotipo suscettibile A2-40 ha presentato valori percentuali di area colorata di 25,2, 19,9 e 28,75, mentre il genotipo resistente, A2-995, ha mostrato valori percentuali di area colorata di 54,95, 58,71 e 69,85 (Figura 7). Tuttavia, A2-20 ha mostrato valori percentuali di area colorata di 16,6, 21,3 e 20,4, mentre A2-514 ha mostrato valori percentuali di area colorata di 49,8, 34,1 e 43,38 (Figura 8). Il confronto ha prodotto un valore p di 0,06. Poiché questi valori sono stati ottenuti utilizzando soglie diverse, è stata eseguita un'analisi uniforme delle soglie con ImageJ, utilizzando identici valori di tonalità, saturazione e luminosità per garantire la riproducibilità tra le repliche. Il genotipo resistente (A2-514) ha mostrato una colorazione relativamente maggiore rispetto al genotipo suscettibile (A2-20). La percentuale di area colorata è stata calcolata come rapporto tra i pixel positivi alla lignina e i pixel totali del tessuto nella sezione. Il confronto quantitativo con soglia uniforme tra il genotipo suscettibile A2-20 e il genotipo resistente A2-514 è mostrato nella Figura 9. Nel complesso, l'analisi con soglia uniforme dimostra che esistono differenze specifiche del genotipo nella lignificazione tra questi genotipi.
DISPONIBILITÀ DEI DATI:
I dati grezzi sono allegati come File Supplementare.
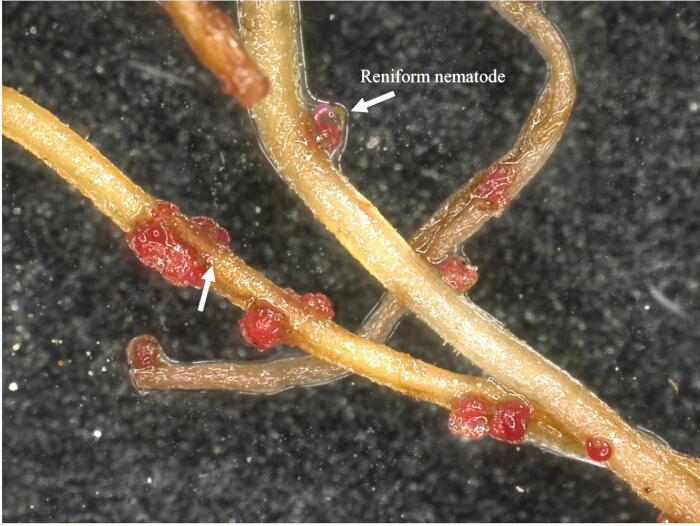
Figura 1: Vista microscopica di nematodi reniformi che si nutrono di radici di cotone. Nematodi reniformi che si nutrono di radici di cotone sono mostrati a un ingrandimento di 50x dopo colorazione con colorante alimentare rosso. Cliccare qui per visualizzare una versione ingrandita di questa figura.
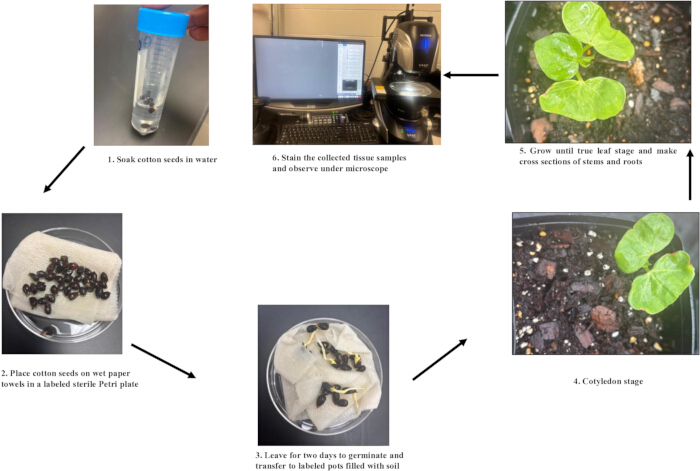
Figura 2: Preparazione del materiale vegetale per l'analisi istochimica della lignina. Il flusso di lavoro comprende i seguenti passaggi: (1) immergere i semi di cotone in acqua; (2) posizionare i semi su tovaglioli di carta bagnati in una piastra di Petri sterile etichettata; (3) far germinare i semi per 2 giorni e trasferire le piantine in vasi etichettati contenenti terreno; (4) far crescere le piantine fino allo stadio di cotiledone; (5) continuare la crescita delle piante fino allo stadio di foglia vera e preparare sezioni trasversali di fusti e radici; e (6) colorare le sezioni di tessuto raccolte ed esaminarle al microscopio. Cliccare qui per visualizzare una versione ingrandita di questa figura.
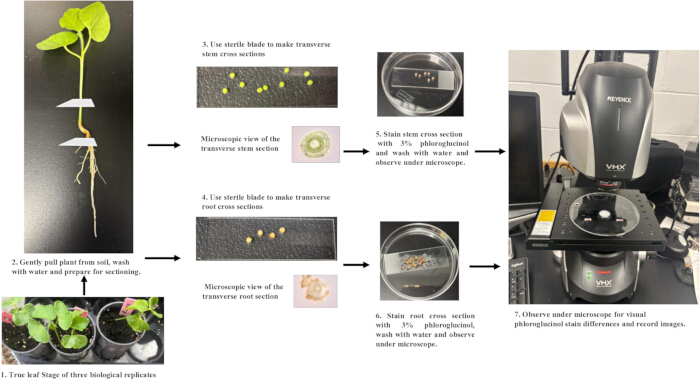
Figura 3: Raccolta e colorazione di sezioni di radice e fusto del cotone mediante phloroglucinol-HCl. Il flusso di lavoro comprende i seguenti passaggi: (1) coltivare tre repliche biologiche fino allo stadio di foglia vera; (2) rimuovere delicatamente le piante dal terreno, lavarle con acqua e prepararle per la sezionatura; (3) utilizzare una lama sterile per preparare sezioni trasversali del fusto; (4) utilizzare una lama sterile per preparare sezioni trasversali della radice; (5) colorare le sezioni del fusto con phloroglucinol-HCl al 3%, risciacquare con acqua e osservare al microscopio; (6) colorare le sezioni della radice con phloroglucinol-HCl al 3%, risciacquare con acqua e osservare al microscopio; e (7) osservare le sezioni colorate al microscopio per visualizzare le differenze di colorazione con phloroglucinol e acquisire le immagini. Cliccare qui per visualizzare una versione ingrandita di questa figura.
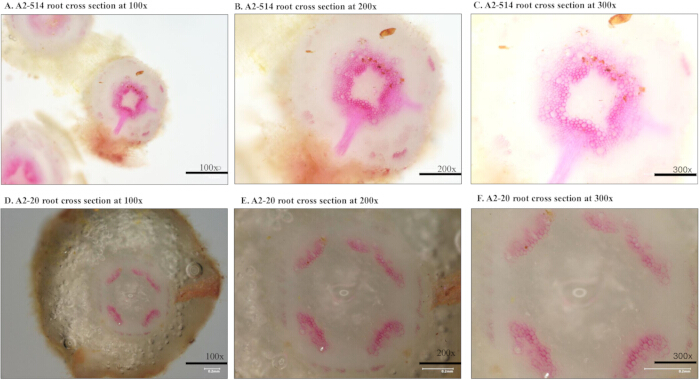
Figura 4: Colorazione della lignina in sezioni trasversali di radici dei genotipi di cotone A2-514 e A2-20. Sezioni trasversali di radici colorate per la lignina del genotipo resistente A2-514 a un ingrandimento di (A) 100x, (B) 200x e (C) 300x. Sezioni trasversali di radici colorate per la lignina del genotipo suscettibile A2–20 a un ingrandimento di (D) 100x, (E) 200x e (F) 300x. Cliccare qui per visualizzare una versione ingrandita di questa figura.
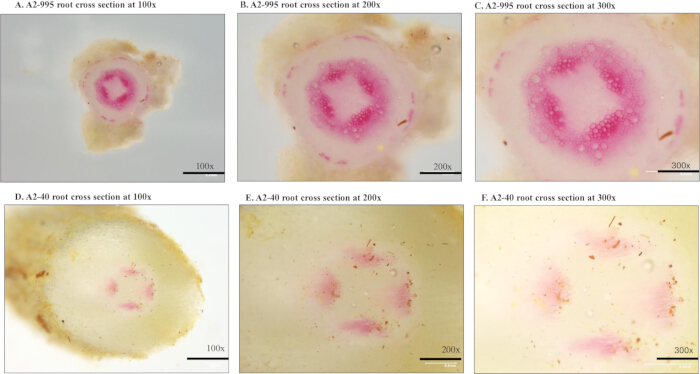
Figura 5: Colorazione della lignina in sezioni trasversali di radici dei genotipi di cotone A2-995 e A2-40. Sezioni trasversali di radici colorate per la lignina del genotipo resistente A2-995 a ingrandimenti di (A) 100x, (B) 200x e (C) 300x. Sezioni trasversali di radici colorate per la lignina del genotipo suscettibile A2-40 a ingrandimenti di (D) 100x, (E) 200x e (F) 300x. Cliccare qui per visualizzare una versione ingrandita di questa figura.
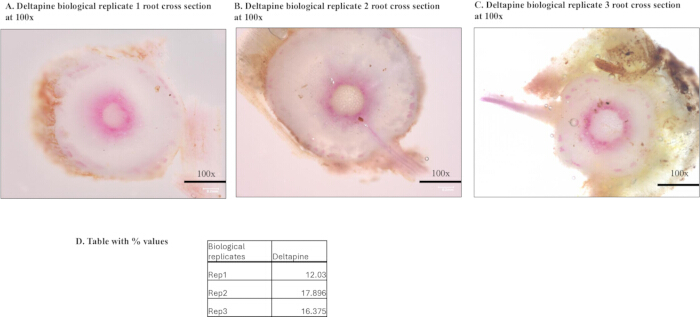
Figura 6: Colorazione della lignina e analisi quantitativa di sezioni trasversali di radice di Deltapine 16. Sezioni trasversali di radice colorate per la lignina di tre repliche biologiche del cultivar suscettibile Deltapine 16 a un ingrandimento di 100x: (A) replica biologica 1, (B) replica biologica 2 e (C) replica biologica 3. (D) Percentuale di area colorata per le tre repliche biologiche determinata mediante analisi quantitativa con ImageJ. Cliccare qui per visualizzare una versione ingrandita di questa figura.
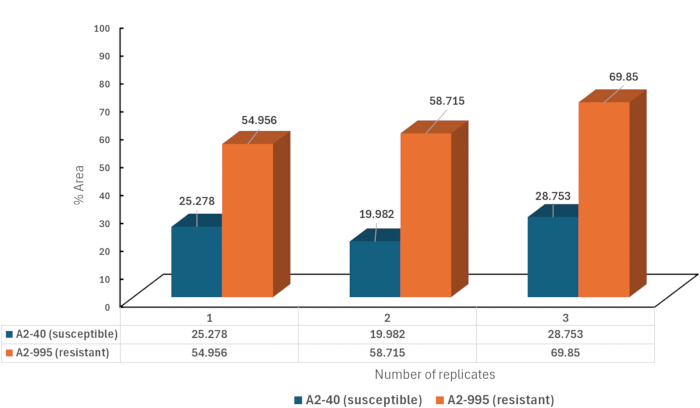
Figura 7: Analisi quantitativa della colorazione della lignina nei genotipi di cotone A2-40 e A2-995. Percentuale di area colorata determinata mediante analisi con ImageJ per tre repliche biologiche del genotipo suscettibile A2-40 e del genotipo resistente A2-995. Cliccare qui per visualizzare una versione ingrandita di questa figura.
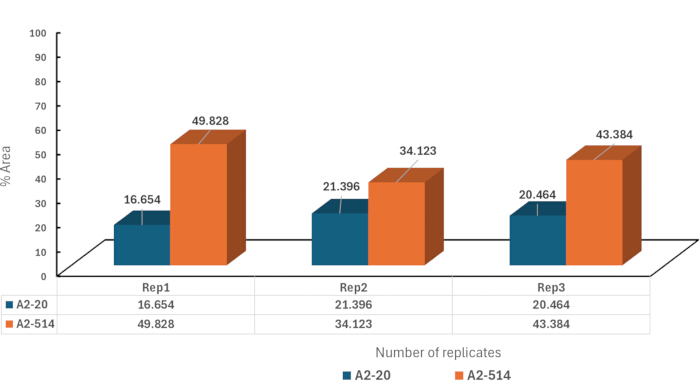
Figura 8: Analisi quantitativa della colorazione della lignina nei genotipi di cotone A2-20 e A2-514. Percentuale di area colorata determinata mediante analisi con ImageJ per tre repliche biologiche del genotipo suscettibile A2-20 e del genotipo resistente A2-514. Cliccare qui per visualizzare una versione ingrandita di questa figura.
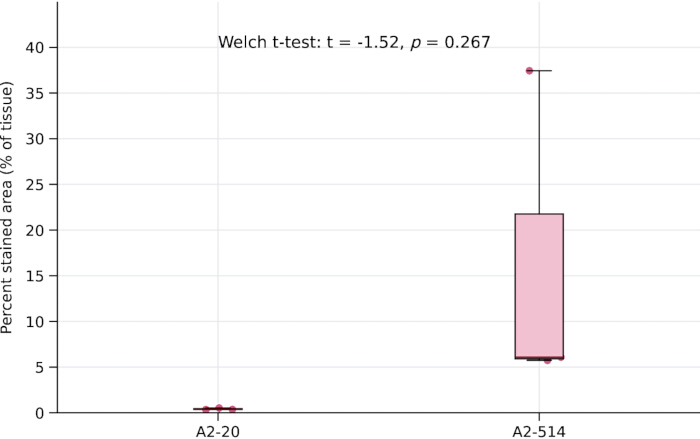
Figura 9: Quantificazione con soglia uniforme della colorazione della lignina nei genotipi di cotone A2-20 e A2-514. Percentuale di area colorata nel genotipo suscettibile A2-20 e nel genotipo resistente A2-514 dopo l'analisi dell'immagine con soglia uniforme. Il confronto statistico è stato effettuato mediante il test t di Welch (t = −1.52, p = 0.267). Cliccare qui per visualizzare una versione ingrandita di questa figura.
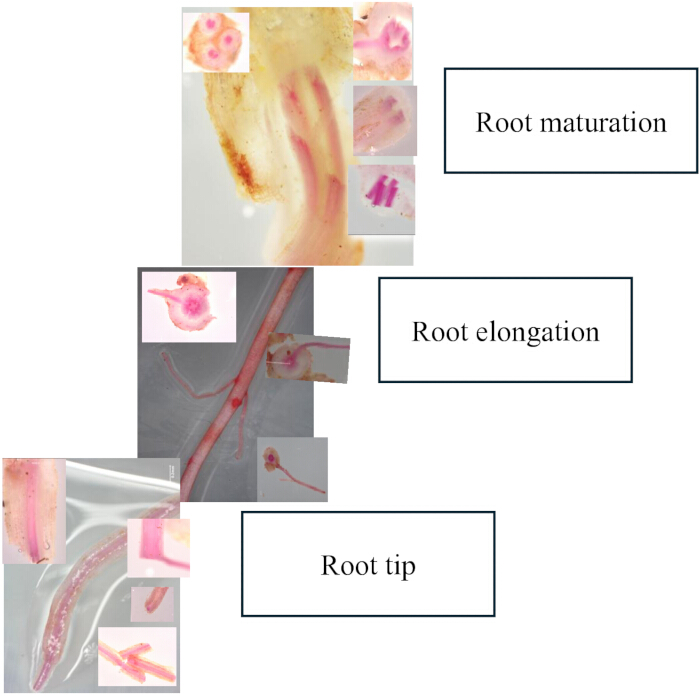
Figura 10: Visualizzazione della colorazione della lignina in diverse regioni della radice. Immagini rappresentative che mostrano la colorazione della lignina nelle regioni di maturazione della radice, di allungamento della radice e dell'apice radicale. Cliccare qui per visualizzare una versione ingrandita di questa figura.
Figura supplementare 1: Colorazione della lignina in sezioni trasversali del fusto di genotipi di cotone resistenti e suscettibili. Sezioni trasversali del fusto colorate per la lignina a 100x di ingrandimento di (A) A2-20 suscettibile, (B) A2-514 resistente, (C) A2-40 suscettibile e (D) A2-995 resistente. Cliccare qui per scaricare il file.
Discussione
La lignina associata alle pareti cellulari delle piante svolge un ruolo importante come barriera fisica contro parassiti, inclusi i nematodi. Nel presente studio, genotipi di cotone resistenti e suscettibili hanno mostrato differenze visive distinte nella colorazione della lignina, seguendo un andamento simile a quello precedentemente riportato in cultivar resistenti e suscettibili a Fusarium. La colorazione ha permesso una chiara visualizzazione della distribuzione della lignina nelle diverse regioni della radice—maturazione, allungamento e apice radicale—dove l'intensità della lignina è aumentata progressivamente dalla parte superiore della radice verso l'apiceFigura 10). Sebbene questi schemi forniscono utili informazioni anatomiche, la dinamica della lignina in risposta all'infezione da nematodi non è stata valutata nel presente studio e richiede conferma in future ricerche. Studi precedenti suggeriscono che la presenza di patogeni può indurre la biosintesi della lignina, rafforzando la necessità di esaminare le variazioni della lignina sotto pressione nematodica. L'inclusione di analisi biochimiche relative alla quantità e alla composizione della lignina permetterebbe di rafforzare ulteriormente l'interpretazione degli schemi di colorazione osservati in questi genotipi. Nel complesso, questi risultati evidenziano il ruolo delle difese strutturali mediate dalla lignina nella resistenza del cotone al nematode reniforme e dimostrano l'utilità della colorazione con floroglucinolo per la caratterizzazione di tali caratteristiche. Un'integrazione continua di approcci anatomici, biochimici e molecolari approfondirà la comprensione della biosintesi della lignina e del suo contributo allo sviluppo di una resistenza duratura ai nematodi reniformi.
Dichiarazioni
Gli autori non hanno nulla da dichiarare.
AVVERTENZE
Il USDA è un fornitore, datore di lavoro e creditore che garantisce parità di opportunità. La menzione di nomi commerciali o prodotti in questa pubblicazione ha lo scopo esclusivo di fornire informazioni specifiche e non implica raccomandazione né approvazione da parte del Dipartimento dell'Agricoltura degli Stati Uniti. I risultati e le conclusioni presenti in questo articolo sono esclusiva responsabilità dell'autore (o degli autori) e non devono essere interpretati come rappresentativi di alcuna determinazione o politica ufficiale del USDA o del Governo degli Stati Uniti.
Ringraziamenti
Gli autori ringraziano la dottoressa Katherine Parys per aver fornito accesso alle strutture del laboratorio di microscopia utilizzate in questo studio. Gli autori ringraziano inoltre il dottor Junping Chen e il dottor Abdulraheem per i loro suggerimenti e l'assistenza nel migliorare il manoscritto. Questa ricerca è stata sostenuta dal progetto USDA-ARS 6066-21000-053-00D.
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| Miscela per vasi a controllo dell'umidità | Miracle-Gro | 073561005197 032247557832 | Sito web Amazon |
| Microscopio | Keyence VHX | VHX3000 | Si può utilizzare qualsiasi microscopio a campo chiaro comparabile |
| Lame da barba sterili | Workpro | W018057 | Sito web Amazon |
| Tagliere | Freshware | 15.75"L x 9.8"W x 0.3"Th | Sito web Amazon |
| Vetrini e coprioggetti | Amscope | BS-50P-100S-22X4 | Qualsiasi marca può essere utilizzata. Questo prodotto è disponibile su Amazon. |
| Acqua sterile / Acqua distillata / acqua autoclavata | Gibco | 15230147 | Si può utilizzare acqua sterile autoclavata di qualsiasi marca |
| Colorante al floroglucinolo | Fischer Scientific | AC241761000 | Disponibile presso Fischer Scientific |
| HCl concentrato | Fischer Scientific | CAS: 7647-01-0 | Disponibile presso Fischer Scientific |
| Ethanol assoluto | Fischer Scientific | 64-17-5 | Disponibile presso Fischer Scientific |
| Vasi | BTPLASTIK | B0DSBQMXHN | Si possono utilizzare vasi di plastica qualsiasi, disponibili su Amazon |
| Piastre di Petri | Kingdder | B0BS95MCGS | Disponibili su Amazon e si può utilizzare qualsiasi altra marca |
| Carta assorbente | Tork | MB540A | Disponibile su Amazon e si può utilizzare qualsiasi altra marca |
| Image J | Software | Disponibile online | Software gratuito da utilizzare |
Riferimenti
- Robinson AF. Reniform in US cotton: when, where, why, and some remedies. Annu Rev Phytopathol. 2007;45(1):263-88.
- Li R, Erpelding JE, Stetina SR. Genome-wide association study of Gossypium arboreum resistance to reniform nematode. BMC Genet. 2018;19(1):52.
- Koebernick JC et al. Response to nematicide by cotton genotypes varying in reniform nematode resistance. Crop Sci. 2021;61(2):929-35.
- Singh B et al. Reniform nematode impact on cotton growth and management strategies: A review. Agron J. 2023;115(5):2140-58.
- Riga E. The effects of Brassica green manures on plant parasitic and free-living nematodes used in combination with reduced rates of synthetic nematicides. J Nematol. 2011;43(2):119.
- Khanal C, McGawley EC, Overstreet C, Stetina SR. The elusive search for reniform nematode resistance in cotton. Phytopathology. 2018;108(5):532-41.
- Moura JCMS et al. Abiotic and biotic stresses and changes in the lignin content and composition in plants. J Integr Plant Biol. 2010;52(4):360-76.
- Schutzendubel A, Polle A. Plant responses to abiotic stresses: heavy metal-induced oxidative stress and protection by mycorrhization. J Exp Bot. 2002;53(372):1351-65.
- Liu Q et al. Transcriptional and physiological analyses identify a regulatory role for hydrogen peroxide in the lignin biosynthesis of copper-stressed rice roots. Plant Soil. 2015;387(1-2):323-36.
- Fujimoto T, Mizukubo T, Abe H, Seo S. Sclareol induces plant resistance to root-knot nematode partially through ethylene-dependent enhancement of lignin accumulation. Mol Plant Microbe Interact. 2015;28(4):398-407.
- Wang Y et al. CmMYB19 over-expression improves aphid tolerance in chrysanthemum by promoting lignin synthesis. Int J Mol Sci. 2017;18(3):619.
- Mandal S, Kar I, Mukherjee AK, Acharya P. Elicitor-induced defense responses in Solanum lycopersicum against Ralstonia solanacearum. ScientificWorldJournal. 2013;2013(1):561056.
- Santiago R, Barros-Rios J, Malvar RA. Impact of cell wall composition on maize resistance to pests and diseases. Int J Mol Sci. 2013;14(4):6960-80.
- Gallego-Giraldo L et al. Elicitors and defense gene induction in plants with altered lignin compositions. New Phytol. 2018;219(4):1235-51.
- Smit F, Dubery IA. Cell wall reinforcement in cotton hypocotyls in response to a Verticillium dahliae elicitor. Phytochemistry. 1997;44(5):811-15.
- Mendu L et al. Lignin and cellulose content differences in roots of different cotton cultivars associated with different levels of Fusarium wilt race 4 (FOV4) resistance-response. J Agric Food Res. 2022;10:100420.
- Tiwari RK et al. Mechanistic insights on lignin-mediated plant defense against pathogen infection. Plant Physiol Biochem. 2025;228:110224.
- Ralph J et al. Lignins: Natural polymers from oxidative coupling of 4-hydroxyphenyl-propanoids. Phytochem Rev. 2004;3(1):29-60.
- Dixon RA et al. The phenylpropanoid pathway and plant defence-a genomics perspective. Mol Plant Pathol. 2002;3(5):371-90.
- Vance CP, Kirk TK, Sherwood RT. Lignification as a mechanism of disease resistance. Annu Rev Phytopathol. 1980;18(1):259-88.
- Nicholson RL, Hammerschmidt R. Phenolic compounds and their role in disease resistance. Annu Rev Phytopathol. 1992;30(1):369-89.
- Shah SWA et al. Lignin-based additive materials: A review of current status, challenges, and future perspectives. Addit Manuf. 2023;74:103711.
- Yadav S, Chattopadhyay D. Lignin: the building block of defense responses to stress in plants. J Plant Growth Regul. 2023;42(10):6652-66.
- Weng JK, Chapple C. The origin and evolution of lignin biosynthesis. New Phytol. 2010;187(2):273-85.