Questo studio dimostra che il Granulo Qiming (QMG) migliora la retinopatia diabetica (DR) modulando l'asse intestino-retina. Il QMG ha rimodellato la microbiota intestinale, soppresso l'infiammazione sistemica e ripristinato la rete regolatoria centrata su CMKLR1, invertendo così i danni istopatologici retinici. Questi risultati collocano il QMG come una promettente strategia terapeutica a livello dell'asse intestino-retina per la DR.
Articolo di ricerca
Analisi correlazionale del Granulo Qiming con la rete centrata su CMKLR1 e l'infiammazione sistemica tramite l'asse intestino-retina nella retinopatia diabetica
In questo articolo
Sommario
Abstract
La retinopatia diabetica (DR) è una complicanza neurovascolare determinata da iperglicemia cronica e infiammazione sistemica, con prove emergenti che evidenziano l'asse intestino-retina come un bersaglio terapeutico fondamentale ma ancora poco sfruttato. Questo studio indaga se il Qiming Granule (QMG) eserciti un'efficacia protettiva contro la DR modulando l'asse intestino-retina. Topi C57BL/6 sono stati assegnati casualmente a diversi gruppi sperimentali e sottoposti a interventi distinti. Le alterazioni istopatologiche retiniche sono state valutate mediante colorazione con ematossilina-eosina (HE). I livelli sierici di citochine infiammatorie (IL-1β, IL-6, TNF-α) sono state misurate mediante saggio immunoenzimatico (ELISA). L'espressione delle principali proteine regolatrici (CMKLR1, Wnt5a, PPAR-γ, AP-1, TP53) in entrambi i tessuti retinici e colici è stato rilevato mediante immunoblotting Western (WB). La composizione e la diversità della microbiota intestinale sono state caratterizzate mediante sequenziamento completo del gene 16S rDNA. Sono state effettuate analisi di correlazione per valutare le relazioni tra la microbiota intestinale e i fattori infiammatori o le proteine chiave. Il trattamento con QMG ha migliorato le alterazioni istopatologiche retiniche, come dimostrato dal ripristino dell'architettura laminare retinica e dal recupero parziale del numero di cellule gangliari retiniche (P < 0,001) e inversione dell'assottigliamento retinico (P < 0,01). Ha inoltre notevolmente ridotto i livelli sierici di IL-1β, IL-6 e TNFα livelli (P < 0,0001). Lungo l'asse intestino-retina, il QMG ha invertito l'espressione anomala di proteine regolatrici chiave, in particolare la rete centrata su CMKLR1 (Wnt5a, PPAR-γ, AP-1, TP53). Inoltre, il QMG ha ripristinato la composizione, la diversità e la funzione del microbiota intestinale, e analisi di correlazione hanno rivelato che il QMG collega l'infiammazione sistemica a queste proteine regolatorie per modulare l'asse intestino-retina. Questo studio fornisce evidenze farmacologiche preliminari che il QMG migliora la DR attraverso l'attivazione della rete regolatoria centrata su CMKLR1 (inclusi Wnt5a, PPAR-γ, AP-1 e TP53) e l'infiammazione sistemica attraverso l'asse intestino-retina, posizionando il QMG come una promettente strategia terapeutica intestino-retina per la retinopatia diabetica.
Introduzione
La retinopatia diabetica (DR), una delle complicanze microvascolari più comuni del diabete mellito (DM), è una delle principali cause di cecità negli adulti in età lavorativa a livello mondiale1. A livello globale, la DR colpisce circa il 20-30% della popolazione affetta da DM2. L'iper-glicemia cronica guida la patogenesi della DR innescando una cascata di eventi patologici, tra cui il deterioramento dell'accoppiamento neurovascolare, risposte infiammatorie accentuate e lo stress ossidativo3. Recentemente, alterazioni nella diversità e composizione della microbiota intestinale sono state osservate in pazienti diabetici con retinopatia rispetto a quelli senza4,5. Di conseguenza, l'asse intestino-retina—una rete di comunicazione bidirezionale che collega l'omeostasi intestinale alla salute retinica—si è affermata come un nuovo fattore coinvolto nella progressione della DR. Tuttavia, i mediatori molecolari specifici che traducono i segnali dell'asse intestino-retina in patologia retinica rimangono in gran parte non caratterizzati, limitando l'identificazione di biomarcatori affidabili e di bersagli terapeutici.
L'asse intestino-retina definisce una complessa rete di comunicazione bidirezionale tra la microflora intestinale e i suoi metaboliti con i tessuti retinici attraverso vie immunologiche, metaboliche, neuroendocrine e vascolari, modulandone così l'equilibrio omeostatico6. Dal punto di vista molecolare, l'asse intestino-retina è caratterizzato dalla disregolazione di proteine chiave coinvolte nella risposta allo stress e nella determinazione del destino cellulare, in particolare AP-1 e TP537,8,9. Inoltre, CMKLR1, un recettore chemochinico fondamentale, si pone come un importante mediatore della disfunzione endoteliale e della deregolazione metabolica, stabilendo un collegamento cruciale tra alterazioni della microflora intestinale e la patogenesi della retinopatia diabetica10. In particolare, la via di segnalazione Wnt regola in modo duale il mantenimento dell'omeostasi vascolare retinica e della funzione della barriera epiteliale intestinale11, mentre la segnalazione PPAR agisce come regolatore principale delle risposte infiammatorie e dei processi metabolici in entrambi i tessuti oculare e intestinale12,13. Questi fattori molecolari costituiscono collettivamente una rete di segnalazione interconnessa all'interno dell'asse intestino-retina, offrendo nuove prospettive meccanicistiche e opportunità terapeutiche per le complicanze correlate al diabete. Pertanto, intervenire sulle alterazioni strutturali e funzionali lungo questo asse rappresenta una strategia promettente per la gestione della retinopatia diabetica (DR).
La medicina tradizionale cinese (MTC) ha storicamente svolto un ruolo significativo nel trattamento del diabete e della relativa retinopatia, con decisioni terapeutiche basate sulla differenziazione dei sindromi14. Il Granulato Qiming (QMG), composto da Astragalus membranaceus, Pueraria lobata, Rehmannia glutinosa, Lycium barbarum, Senna obtusifolia, Leonurus japonicus, Typha angustifolia e Whitmania pigra, è ampiamente utilizzato nel trattamento della RD. Approvato dall'Amministrazione Nazionale Cinese per i Prodotti Farmaceutici (numero di approvazione Z20090036), il QMG ha completato con successo studi clinici ed ha ottenuto l'autorizzazione all'immissione in commercio. Il QMG esercita effetti protettivi prevenendo l'ispessimento della membrana basale nei capillari retinici, riducendo il danno ai periciti e alla microvascolatura retinica e mantenendo la morfologia patologica locale dell'occhio15, risultando così una terapia promettente per il trattamento della RD. Agendo su proteine chiave e fattori infiammatori, i componenti attivi del QMG esercitano effetti antinfiammatori, antiossidanti e antiapoptotici, fornendo una base meccanicistica alla sua modulazione dell'asse intestino-retina16. Queste proprietà forniscono una base meccanicistica al potenziale effetto modulante del QMG sull'asse intestino-retina, tuttavia pochi studi hanno esplorato questo legame. Pertanto, lo scopo di questo studio è confermare l'efficacia del QMG nella modulazione dell'asse intestino-retina, fornendo evidenze sperimentali del suo potenziale terapeutico nella RD.
Questo studio collega le previsioni teoriche con dati sperimentali in vivo per validare l'efficacia del QMG nella modulazione dell'asse intestino-retina. Questi risultati dimostrano che il QMG migliora la retinopatia diabetica accoppiando la rete regolatoria centrata su CMKLR1 (inclusi Wnt5a, PPAR-γ, AP-1 e TP53) all'infiammazione sistemica attraverso l'asse intestino-retina, posizionando il QMG come una promettente strategia terapeutica mirata all'asse intestino-retina per la retinopatia diabetica. L'abstract grafico è mostrato in Figura 1.
Protocollo
Tutti gli esperimenti sugli animali sono stati eseguiti in conformità con le linee guida ARRIVE. Lo studio è stato approvato dal Comitato di Revisione Etica di Sichuan Scientist Biotechnology Co., Ltd. (IACUC ISSUE SYST-2024-011). Una cronologia dettagliata dell'esperimento che riassume il disegno dello studio è fornita nella Figura Supplementare 1.
Preparazione e trattamento degli animali
I topi sono stati anestetizzati profondamente mediante inalazione di isoflurano al 2%. In profonda anestesia, il sangue è stato prelevato tramite enucleazione retro-orbitale. Immediatamente dopo il prelievo del sangue, i bulbi oculari sono stati enucleati per l'isolamento del tessuto retinico. Successivamente, è stata eseguita la dislocazione cervicale in profonda anestesia per garantire l'eutanasia. I tessuti del colon sono stati quindi dissecati immediatamente. Gli animali che presentavano eventi avversi sono stati immediatamente rimossi dallo studio e hanno ricevuto le opportune cure veterinarie.
Randomizzazione e cecità
Topi maschi C57BL/6, di 5 settimane di età e del peso compreso tra 20 e 30 grammi, sono stati ospitati in condizioni strettamente controllate, comprese temperatura e umidità. Dopo una settimana di ambientamento, i topi C57BL/6 sono stati assegnati casualmente a tre gruppi (gruppo controllo, gruppo modello e gruppo di intervento) mediante una sequenza di numeri casuali generata al computer. La sequenza di randomizzazione è stata generata da un ricercatore non coinvolto nella manipolazione degli animali né nella valutazione degli esiti.
Per garantire la cecità, tutte le operazioni di cura degli animali, somministrazione dei farmaci e raccolta dei dati sono state eseguite da ricercatori ignari dell'assegnazione ai gruppi. Le assegnazioni codificate ai gruppi sono state rivelate solo al termine di tutti gli esperimenti e delle analisi statistiche. La cecità è stata applicata a: il tecnico che ha effettuato la gavaggio orale; il patologo che ha valutato l'istologia retinica; e l'analista che ha quantificato le bande del Western blot (WB).
Calcolo della dimensione del campione
La dimensione del campione è stata determinata sulla base di un esperimento preliminare volto a valutare il numero di cellule gangliari retiniche (RGC) nelle stesse condizioni sperimentali. Assumendo un livello di significatività bilaterale (α) pari a 0,05 e una potenza statistica (1-β) del 0,80, erano necessari almeno 5 topi per gruppo per rilevare una differenza clinicamente rilevante nel numero di RGC tra il gruppo modello e il gruppo sottoposto all'intervento. Considerando un tasso di abbandono potenziale di circa il 20%, ogni gruppo è stato fissato a 6 topi.
Creazione di animali diabetici
Al gruppo controllo è stata somministrata una dieta standard, mentre ai gruppi di intervento e modello è stata somministrata una dieta ricca di grassi e zuccheri (HFHSD) per un periodo di quattro settimane. Al termine di questo periodo alimentare, i gruppi di intervento e modello hanno ricevuto un'iniezione intraperitoneale con una soluzione al 1% di Streptozotocina (STZ) a un dosaggio di 35 mg/kg17,18,19,20. Dopo settantadue ore dall'iniezione, i topi che presentavano livelli di glucosio nel sangue a digiuno non forzato superiori a 16,7 mmol/L erano considerati modelli di DM indotti con successo e venivano selezionati per ulteriori esperimenti. Gli animali con DM hanno proseguito con la dieta ricca di grassi e zuccheri per ulteriori quattro mesi, mentre il gruppo controllo ha mantenuto la propria dieta standard.
Convalida tassonomica e valutazione della qualità
Gli otto ingredienti presenti nel QMG sono stati validati tassonomicamente utilizzando il Modernized Plant Names Search (MPNS, http://mpns.kew.org/mpns-portal/). La qualità della segnalazione della composizione del QMG è stata valutata mediante lo strumento ConPhYMP.
Metodi di somministrazione
Nel gruppo di intervento, gli animali sono stati trattati per via orale con QMG. QMG è stato acquistato dalla Zhejiang Sansheng Mandi Pharmaceutical Co., Ltd. (Numero cinese di autorizzazione farmaceutica nazionale Z20090036). La sospensione di QMG è stata preparata mescolando uniformemente QMG con acqua distillata. I topi del gruppo di intervento hanno ricevuto la sospensione mediante sondino gastrico, in un volume equivalente a quello dei gruppi modello e di controllo. Il dosaggio è stato calcolato in base alla dose terapeutica clinica singola di 4,5 g per un adulto di 60 kg (dose unitaria standard della formulazione commerciale), utilizzando il metodo di normalizzazione per area della superficie corporea (BSA) raccomandato dalla FDA e da Reagan-Shaw21. Il fattore di conversione tra esseri umani adulti (Km = 37) e topi (Km = 3) è pari a 12,33, ottenendo così una dose per il topo di 0,9 g/kg di peso corporeo. Il gruppo modello e il gruppo di controllo hanno ricevuto un volume equivalente di soluzione salina fisiologica mediante sondino gastrico. Il trattamento è stato effettuato quotidianamente tra le 9:00 e le 11:00 per un periodo consecutivo di 3 mesi.
Osservazione e indicatori di prova
Monitoraggio generale dei segni vitali
I segni vitali generali e gli indicatori fisiologici, inclusi il peso corporeo, i livelli di glucosio nel sangue, il consumo di acqua e cibo, la diuresi, i livelli di attività e il comportamento, la temperatura corporea, nonché lo stato del pelo e della pelle, sono stati osservati e registrati sistematicamente al fine di valutare in modo completo gli interventi terapeutici e rilevare eventuali complicanze.
Osservazione dei cambiamenti morfologici nella retina mediante analisi con colorazione HE
Tutti i campioni sono stati processati mediante un disidratatore automatico utilizzando una serie di soluzioni di etanolo e xilene dopo la fissazione, seguita dall'inclusione in paraffina. Successivamente, sono state effettuate sezioni di 4 µm in paraffina, colorate con ematossilina-eosina e quindi montate con gomma neutra. Le immagini retiniche sono state acquisite mediante uno scanner 3DHISTECH Pannoramic SCAN. L'analisi delle immagini e la misurazione dei dati sono state eseguite con Image-Pro Plus.
Rilevamento di IL-6, TNF-α e IL-1β sieriche mediante analisi ELISA
I campioni di sangue sono stati prelevati mediante enucleazione retro‑orbitale. Il siero è stato separato mediante centrifugazione a 1.000 × g per 15 minuti a 4 °C e conservato a -80 °C fino all'analisi. I livelli sierici di IL‑1β, IL‑6 e TNF‑α sono stati misurati seguendo le procedure standard, compresa l'equilibratura dei reagenti, l'aggiunta del campione, l'incubazione, il lavaggio, l'aggiunta di coniugato e substrato, l'interruzione della reazione, la misurazione della densità ottica e il calcolo della concentrazione in base a una curva standard. La densità ottica è stata letta a 450 nm utilizzando un lettore di microplacche, e le concentrazioni delle citochine sono state calcolate in base alle curve standard.
Rilevamento delle principali proteine regolatrici nella retina e nel colon mediante analisi WB
Sono stati effettuati tre replicati biologici indipendenti su una singola membrana e successivamente sono state ricercate le proteine bersaglio. Tutti i replicati sono stati ottenuti da un singolo gruppo di animali sacrificati contemporaneamente. Quando il peso molecolare di una proteina bersaglio era troppo simile a quello della GAPDH (differenza <5 kDa), le analisi sono state eseguite su membrane distinte per evitare sovrapposizioni di segnale. Ogni membrana è stata sottoposta a sonda esclusivamente per la proteina bersaglio o per la GAPDH al fine di garantire una quantificazione accurata. Sono stati utilizzati i seguenti anticorpi primari: anticorpo policlonale anti-GAPDH policlonale anticorpo (1:5000), anticorpo policlonale anti-CMKLR1 (1:1000), anticorpo policlonale anti-Wnt5a (1:1000), anticorpo policlonale anti-TP53 (1:1000), anticorpo monoclonale anti-AP-1 (1:5000) e anticorpo policlonale anti-PPAR gamma (PPAR-γ) (1:1000). Le proteine totali sono state ottenute mediante lisi cellulare seguita da centrifugazione. Le concentrazioni proteiche sono state determinate utilizzando il saggio BCA. Le proteine estratte sono state separate mediante elettroforesi su gel di SDS-PAGE al 12% e successivamente trasferite su membrane. Le membrane sono state bloccate in TBST contenente il 5% di latte scremato e incubate con gli opportuni anticorpi primari durante la notte a 4 °C. Dopo il lavaggio, le membrane sono state incubate con anticorpi secondari coniugati con HRP anti-coniglio o anti-topo in un rapporto di diluizione di 1:10.000. Infine, le bande proteiche sono state visualizzate e analizzate mediante imaging chemiluminescente. Durante la visualizzazione e l'elaborazione dei dati, le membrane sono state ritagliate orizzontalmente per rimuovere le regioni di peso molecolare non rilevanti, mantenendo tutte le corsie campione senza eliminare le aree intercorrenti tra le corsie. Durante il ritaglio per rimuovere le regioni di gel non rilevanti, potrebbe verificarsi una leggera distorsione ai bordi.
Rilevamento della microbiota intestinale mediante analisi del sequenziamento del 16S rDNA
Campioni fecali freschi sono stati raccolti da ciascun topo prima delle procedure terminali. I topi sono stati posizionati singolarmente in gabbie sterili per 10–15 minuti per consentire la defecazione spontanea. I pellet fecali sono stati immediatamente raccolti con pinze sterili, trasferiti in provette sterili da 1,5 mL, congelati rapidamente in azoto liquido e conservati a -80 °C fino all'estrazione del DNA. Tutte le procedure sono state eseguite in condizioni sterili per minimizzare la contaminazione incrociata. L'intervallo tra defecazione e congelamento è stato mantenuto entro i 10 minuti per garantire l'integrità microbica. I campioni di DNA genomico fecale (gDNA) sono stati purificati utilizzando il kit di estrazione del gDNA fecale, seguiti dall'amplificazione completa del gene 16S rDNA mediante reazione a catena della polimerasi (PCR) con primer universali 8F (5’-AGAGTTTGATCATGGCTCAG-3’) e 1492R (5’-CGGTTACCTTGTTACGACTT-3’). I prodotti della PCR sono stati successivamente analizzati mediante elettroforesi su gel di agarosio, purificati e quantificati per applicazioni successive. Il sequenziamento ad alto rendimento è stato effettuato sul sequenziatore Nanopore GridION. Il processo di analisi dei dati ha incluso la chiamata delle basi, il controllo di qualità dei dati, l'annotazione delle specie, la costruzione dell'albero filogenetico, l'analisi della comunità, l'analisi della diversità alfa e beta e l'analisi delle specie differenzialmente abbondanti e la previsione della funzione della comunità. Diversi strumenti e database, come NanoFilt, Usearch, il linguaggio di programmazione R, Python e il database SILVA, sono stati utilizzati durante l'analisi.
Analisi della correlazione tra l'asse intestino-retina, l'infiammazione sistemica e la microbiota intestinale a più livelli
Per esplorare le potenziali associazioni tra la microbiota intestinale a più livelli e le citochine infiammatorie sieriche e le proteine regolatrici chiave, è stata effettuata un'analisi di correlazione utilizzando la piattaforma Luoning Bio-Cloud. Inizialmente, i dati sull'abbondanza delle specie ai livelli di Regno, Phylum, Classe, Ordine, Famiglia, Genere e Specie sono stati estratti dai risultati del sequenziamento. I fattori fisicochimici, inclusi le citochine infiammatorie sieriche e i livelli di espressione proteica, sono stati raccolti in un file di fattori ambientali. Per garantire l'affidabilità e la visualizzazione delle correlazioni, i dati sono stati normalizzati al fine di eliminare le differenze di scala tra l'abbondanza microbica e le unità di misura cliniche. Sono stati calcolati i coefficienti di correlazione (valori R) e i corrispondenti livelli di significatività (P-valori). I risultati sono stati visualizzati mediante una mappa termica di correlazione, in cui i gradienti di colore indicano l'intensità e la direzione della correlazione (rosso indica correlazione positiva, blu indica correlazione negativa) e gli asterischi (**) indicano la significatività statistica (P < 0,01).
Metodi statistici
Tutte le analisi statistiche e la visualizzazione dei dati sono state eseguite utilizzando GraphPad Prism. Per confrontare le medie, è stato utilizzato il test t per dati che seguivano una distribuzione normale. Nei casi in cui i dati si discostavano dalla normalità, è stato impiegato il test di Kruskal-Wallis. Per valutare le relazioni tra variabili, sono state effettuate analisi di correlazione di Spearman o di Pearson. Tutti i test statistici sono stati condotti come test a due code, con significatività statistica stabilita al valore di 0,05.
Risultati
General situation of experimental animals
Blood glucose levels were significantly elevated in the model group (27.21 ± 6.03 mmol/L) compared with the blank group (P < 0.001), indicating the successful induction of the DM model. During the study period, the experimental animals showed stable body weight, continuous water and food intake, normal urine output, body temperature, healthy fur and skin condition, and normal behavior during the experiment.
Composition and validation of QMG
QMG, a proprietary Chinese medicine that passed Phase III clinical trials, encompasses Astragalus membranaceus (Fisch.) Bunge [Fabaceae, Astragali radix], Pueraria lobata (Willd.) Ohwi [Fabaceae, Puerariae lobatae radix], Rehmannia glutinosa (Gaertn.) Libosch. Ex Fisch. & C.A. Mey. [Orobanchaceae; Rehmanniae radix], Lycium barbarum L. [Solanaceae; Lycii fructus], Senna obtusifolia (L.) H.S. Irwin & Barneby [Fabaceae; Cassiae semen], Leonurus japonicus Houtt. [Lamiaceae, Leonuri herba], Typha angustifolia L. [Typhaceae; Typhae pollen], Whitmania pigra Whitman [Hirudinidae; Hirudo]15. The detailed information, including the Chinese name, scientific name by MPNS validation, species, family, part used, representative bioactive compounds, was summarized in Table 1, which defined the QMG and provided a transparent, scientifically grounded basis for the formulas under investigation.
| No. | Chinese name | Scientific name by MPNS validation | Species | Family | Part Used | Representative bioactive compounds | |||||||
| 1 | HuangQi | Astragalus membranaceus (Fisch.) Bunge [Fabaceae, Astragali radix] | Astragalus mongholicus (Fisch.) Bunge | Fabaceae | Radix | Astragaloside IV, Calycosin | |||||||
| 2 | GeGen | Pueraria lobata (Willd.) Ohwi [Fabaceae, Puerariae lobatae radix] | Pueraria lobata (Willd.) | Fabaceae | Radix | Puerarin, Daidzin | |||||||
| 3 | DiHuang | Rehmannia glutinosa (Gaertn.) Libosch. Ex Fisch. & C.A. Mey. [Orobanchaceae; Rehmanniae radix] | Rehmannia glutinosa (Gaertn.) Libosch. Ex Fisch. & C.A. Mey. | Orobanchaceae | Radix | Catalpol, Rehmannioside D | |||||||
| 4 | GouQiZi | Lycium barbarum L. [Solanaceae; Lycii fructus] | Lycium barbarum L. | Solanaceae | Fructus | Lycium barbarum polysaccharides, Betaine | |||||||
| 5 | JueMingZi | Senna obtusifolia (L.) H.S. Irwin & Barneby [Fabaceae; Cassiae semen] | Senna obtusifolia (L.) H.S. Irwin & Barneby | Fabaceae | Semen | Aurantio-obtusin, Emodin | |||||||
| 6 | Chong WeiZi | Leonurus japonicus Houtt. [Lamiaceae, Leonuri fructus] | Leonurus japonicus Houtt. | Lamiaceae | Fructus | Stachydrine, Leonurine | |||||||
| 7 | PuHuang | Typha angustifolia L. [Typhaceae; Typhae pollen] | Typha angustifolia L. | Typhaceae | Pollen | Isorhamnetin, Kaempferol | |||||||
| 8 | ShuiZhi | Whitmania pigra Whitman [Hirudinidae; Hirudo] | Whitmania pigra Whitman | Hirudinidae | Body | Hirudin, Calin | |||||||
Table 1: The composition and quality information of QMG ingredients. Detailed information on the composition and quality information of QMG ingredients, including the Chinese name, scientific name by MPNS validation, species, family, part used, and representative bioactive compounds.
QMG ameliorates the retinal morphology
As depicted in Figure 2A, the retina of the blank group exhibited a well-organized structure. The cellular arrangement was dense and orderly across all layers, with no evidence of structural disruption, exudation, or inflammatory infiltration. Compared with the blank group, retinal sections from the model group (Figure 2B) exhibited marked structural disorganization, characterized by disordered cellular arrangement, a significant reduction in RGC counts (P < 0.0001, Table 2, Figure 3A), and pronounced thinning of the total retinal thickness (P < 0.0001, Figure 3B). Notably, neovascular tufts penetrating the inner limiting membrane were observed (indicated by a red arrow), confirming successful establishment of the DR model. In contrast, the intervention group (Figure 2C) demonstrated significant attenuation of histopathological abnormalities relative to the model group, as evidenced by restoration of retinal laminar architecture, partial recovery of RGC numbers (P < 0.001, Table 2, Figure 3A), and reversal of retinal thinning (P < 0.01, Table 2, Figure 3B). These data provide strong evidence for QMG as an effective intervention for DR.
QMG attenuates systemic inflammatory response in DR
Compared with the blank group, the expression levels of IL-1β, IL-6, and TNF-α were significantly upregulated in the model group (P < 0.0001), confirming that the modeling procedure successfully induced a marked inflammatory response. Conversely, compared with the model group, the expression levels of IL-1β, IL-6, and TNF-α were significantly downregulated in the intervention group (p < 0.0001), indicating a potent inhibitory effect of QMG on systemic inflammation. The serum concentrations of IL-1β, IL-6, and TNF-α across the three groups are summarized in Table 3 and illustrated in Figure 4A–C.
QMG modulates the CMKLR1-centered regulatory network along the gut–retina axis
As shown in Figure 5, Figure 6, Figure 7, and Supplementary Figure 2, the results of this study showed that in DR model mice, the expression levels of five key regulatory proteins—AP-1, Wnt5a, CMKLR1, TP53, and PPAR-γ—exhibited a consistent downward trend in both colonic and retinal tissues. Following QMG intervention, the expression of these proteins showed varying degrees of recovery, with some proteins reaching statistical significance. Specifically, after QMG intervention, the expression of AP-1, Wnt5a, and CMKLR1 in colonic tissue was significantly higher than that in the model group (P < 0.05), while in retinal tissue, the expression of CMKLR1 and TP53 was significantly higher than that in the model group (P < 0.01). These findings may suggest that AP-1 and Wnt5a are more sensitive responders in the colon, whereas TP53, as an apoptosis regulator, plays a more critical role in retinal neuroprotection. Notably, CMKLR1 was the only protein that achieved significant recovery in both tissues, indicating that QMG may facilitate bidirectional communication along the gut–retina axis through systemic regulation of CMKLR1 expression.
The consistent directionality of expression changes for these five proteins in both colonic and retinal tissues holds important biological significance. As the primary habitat of the gut microbiota, changes in colonic protein expression reflect the state of the intestinal microenvironment, while the retina is the effector organ of DR. The consistency of expression patterns between these two tissues strongly supports the gut–retina axis as an important participant in the pathophysiological processes of DR.
QMG restores and improves the composition, diversity, and function of gut microbiota
The results of the community composition
Hierarchical clustering analysis revealed distinct shifts in gut microbial composition and clustering at multiple taxonomic levels following QMG intervention. At the phylum level (Figure 8A), the model group exhibited a marked reduction in Firmicutes abundance and a significant enrichment of Bacteroidetes compared with the blank group, indicating a diabetes-driven shift in the Firmicutes/Bacteroidetes ratio; notably, the intervention restored the proportions of both Firmicutes and Bacteroidetes to levels approaching those of the blank group, accompanied by an elevated relative abundance of Proteobacteria. At the class level (Figure 8B), the model group manifested an elevation in Bacteroidia and Clostridia and a lessening in Bacilli and Erysipelotrichia compared with the blank group; in contrast, the intervention group showed restoration in Bacteroidia and Erysipelotrichia to levels approaching those of the blank group, accompanied by elevated relative abundance of Clostridia and Alphaproteobacteria. At the order level (Figure 8C), the model group demonstrated an elevated proportion of Bacteroidales, and a decreased proportion of Erysipelotrichales and Lactobacillales compared with the blank group; conversely, the intervention group restored the proportions of Bacteroidales and Erysipelotrichales to levels approaching those of the blank group, accompanied by an elevated relative abundance of Clostridiales. At the family level (Figure 8D), the model group presented a growth in Odoribacteraceae, Peptostreptococcaceae, Rikenellaceae, and Tannerellaceae, and a decrease in Erysipelotrichaceae, Lactobacillaceae, Muribaculaceae, and Ruminococcaceae compared with the blank group; in contrast, the intervention group downregulated the proportions of Odoribacteraceae and Peptostreptococcaceae compared with the model group; restored the proportions of Erysipelotrichaceae and Ruminococcaceae to levels approaching those of the blank group, accompanied by an elevated relative abundance of Lachnospiraceae. At the genus level (Figure 8E), the model group exhibited an upward trend in Odoribacter, Paeniclostridium, Alistipes, Parabacteroides, and Clostridioides, and a decrease trend in Lactobacillus, Faecalibaculum, Ruminococcus, Bacteroides, and Muribaculum compared with the blank group; notably, the intervention group downregulated the proportions of Odoribacter, Clostridioides, and Paeniclostridium compared with the model group; restored the proportions of Faecalibaculum and Ruminococcus to levels approaching those of the blank group; and increased the relative abundance of Lachnoclostridium, Sphingomonas, Flavonifractor, and Blautia. At the species level (Figure 8F), the model group showed an increase in Odoribacter splanchnicus, Clostridioides difficile, and Paeniclostridium sordellii, and a decrease in Faecalibaculum rodentium, Bacteroides salanitronis, Muribaculum intestinale compared with the blank group; in contrast, the intervention group downregulated the proportion of Odoribacter splanchnicus and Clostridioides difficile compared with the model group; restored the proportions of Faecalibaculum rodentium, and Muribaculum intestinale, accompanied by elevated relative abundance of Lachnoclostridium phocaeense, and Flavonifractor plautii. Collectively, these findings indicate that QMG restored gut microbial composition across multiple taxonomic levels, shifting the community structure toward a homeostatic state.
The results of the Alpha diversity and Beta diversity
As indicated by the Alpha diversity results (Figure 9A), the intervention group exhibited the highest Chao1, PD, Simpson, and Shannon indices, while the model group displayed the lowest, with the blank group showing intermediate levels. These findings underscore the detrimental impact of DR on gut microbiota diversity and demonstrate that QMG intervention effectively restores and enhances microbial richness and evenness in DR mice.
As indicated by the Beta diversity representative results (Figure 9B,C), the principal coordinates analysis (PCoA) plots revealed a distinct separation of microbial communities across the three groups, which was statistically supported by the Permutational Multivariate Analysis of Variance (PERMANOVA). Specifically, the Bray-Curtis-based analysis indicated a significant structural divergence (PERMANOVA: R2 = 0.67, P < 0.001), suggesting that the DR model and QMG intervention accounted for a substantial proportion of the variation in microbial community composition. Consistent with this, the analysis based on Weighted unique fraction (UniFrac) distance, which incorporates phylogenetic relationships between taxa, further confirmed the significant community shift (PERMANOVA: R2 = 0.58, P < 0.01).
As displayed by the Beta diversity results (Figure 9D), the non-metric multidimensional scaling (NMDS) ordination plot demonstrated a clear spatial clustering of samples according to the respective groups, with a stress value of 0.04. Given that a stress value below 0.05 is generally considered to represent an excellent representation of the community structure in a reduced-dimensional space, these results collectively suggest that the QMG intervention significantly altered the global composition of the gut microbiota.
The results of the differential abundance analysis
According to the linear discriminant analysis effect size (LEfSe) analysis (Figure 9E), the results revealed that Clostridia, Clostridiales, Lachnospiraceae, and Lachnoclostridium were remarkably enriched in the intervention group, whereas Odoribacteraceae, Odoribacter, Peptostreptococcaceae, and Paeniclostridium were notably enriched in the model group. Therefore, the above gut microbiota might be the primary differential microbiota responsible for the intergroup differences between the model and intervention groups.
The results of community function prediction
The predicted functional profiles at Level 2 and Level 3 showed distinct clustering patterns across the three groups (Figure 9F,G). Specifically, compared with the blank group, the model group exhibited a significant deviation in the relative abundance of metabolic pathways. Notably, this functional perturbation in the model group was largely ameliorated in the intervention group. The functional composition of the intervention group showed a substantial shift back towards the profile observed in the blank group, indicating that the QMG intervention effectively modulated the gut microbial functional structure. These results suggest that the intervention not only reshaped the taxonomic composition and structure of the gut microbiota but also restored its functional metabolic capacity toward a homeostatic state.
QMG modulates the gut–retina axis by coupling systemic inflammation and key regulatory proteins
Associations at global levels
At the kingdom level (Figure 10A–C), QMG improved the CMKLR1-centered network mainly by modulating Bacteria along the gut-retina axis. Specifically, Bacteria positively correlated with retinal PPAR-γ in the blank group (P < 0.01), but this association was not observed in the model group. Following QMG intervention, bacterial abundance positively correlated with retinal CMKLR1 and Wnt5a yet negatively correlated with colonic TP53 and PPAR-γ (P < 0.01).
At the phylum level (Figure 10D–F), QMG improved the CMKLR1-centered network mainly by modulating Candidatus and Bacteroidetes along the gut-retina axis. Specifically, the positive correlation between Candidatus and colonic CMKLR1 observed in the blank group was lost following DR induction, but was restored by QMG intervention, which was accompanied by a negative correlation with serum IL-1β and TNF-α, while positively correlated with retinal PPAR-γ, AP-1, TP53, colonic AP-1, and serum IL-6 (P < 0.01). Proteobacteria in the model group negatively correlated with colonic CMKLR1 (P < 0.01), a trend that persisted following QMG intervention. Meanwhile, Firmicutes were positively correlated with retinal CMKLR1 in the model group, whereas Bacteroidetes and Tenericutes were negatively correlated with retinal CMKLR1 (P < 0.01). Following QMG intervention, Bacteroidetes shifted to positive correlations with retinal PPAR-γ, AP-1, TP53, and colonic CMKLR1 (P < 0.01). Additionally, Actinobacteria positively correlated with retinal CMKLR1 and Wnt5a (P < 0.01).
At the class level (Figure 10G–I), QMG improved the CMKLR1-centered network mainly by regulating Cytophagia and Bacteroidia along the gut-retina axis. Specifically, Cytophagia and Chitinophagia negatively correlated with retinal CMKLR1 in the blank group (P < 0.01). In the model group, Cytophagia, Bacteroidia, and Mollicutes negatively correlated with retinal CMKLR1, while colonic CMKLR1 positively correlated with Flavobacteriia and Epsilonproteobacteria, yet negatively with Tissierellia, Alphaproteobacteria, Clostridia, and Bacilli (P < 0.01). Following QMG intervention, Bacteroidia and Cytophagia positively correlated with colonic CMKLR1, retinal PPAR-γ, AP-1, TP53, colonic AP-1 and serum IL-6, whereas Mollicutes, Deltaproteobacteria, Alphaproteobacteria, and Gammaproteobacteria showed the opposite pattern (P < 0.01). Moreover, Chlamydiia, Actinobacteria, Tissierellia, Bacilli, and Negativicute negatively correlated with retinal CMKLR1 and Wnt5a, while Coriobacteriia exhibited the reverse correlation (P < 0.01).
At the order level (Figure 10J–L), QMG improved the CMKLR1-centered network mainly by modulating Bacteroidales, Bacillales, and Clostridiales along the gut–retina axis. Specifically, Cytophagales and Chitinophagales negatively correlated with retinal CMKLR1, whereas Marinilabiliales positively correlated with colonic CMKLR1 in the blank group (P < 0.01). In the model group, Mycoplasmatales, Cytophagales, Bacteroidales, and Marinilabiliales negatively correlated with retinal CMKLR1, while colonic CMKLR1 positively correlated with Flavobacteriales and Campylobacterales, yet negatively with Tissierellales, Bacillales, Sphingomonadales, Clostridiales, and Lactobacillales (P < 0.01). Following QMG intervention, Bacteroidales and Clostridiales positively correlated with colonic CMKLR1, AP-1, retinal PPAR-γ, AP-1, TP53, and serum IL-6, whereas Desulfovibrionales, Rhizobiales, Sphingomonadales, and Enterobacterales showed the opposite pattern (P < 0.01). Moreover, Eggerthellales and Coriobacteriales positively correlated with retinal CMKLR1 and Wnt5a, yet negatively with colonic TP53 and PPAR-γ, whereas Chlamydiales, Thermoanaerobacterales, Corynebacteriales, Tissierellales, and Bacillales exhibited the reverse correlation (P < 0.01).
Associations at Fine levels
At the family level (Figure 11A–C), QMG improved the CMKLR1-centered network primarily by modulating Lachnospiraceae, Bacteroidaceae, and Lactobacillaceae along the gut–retina axis. Specifically, Ruminococcaceae negatively correlated with retinal CMKLR1, whereas Lachnospiraceae positively correlated with retinal CMKLR1 in the blank group (P < 0.01). In the model group, Peptostreptococcaceae positively correlated with retinal CMKLR1, while Tannerellaceae, Bacteroidaceae, Odoribacteraceae, and Lachnospiraceae showed the opposite pattern (P < 0.01). Meanwhile, colonic CMKLR1 positively correlated with Marinilabiliaceae, Rikenellaceae, and Flavobacteriaceae, yet negatively with Lachnospiraceae and Lactobacillaceae (P < 0.01). Following QMG intervention, Enterobacteriaceae, Sphingomonadaceae, and Oscillospiraceae negatively correlated with colonic CMKLR1, AP-1, and serum IL-6, as well as retinal PPAR-γ, AP-1, and TP53, while positively correlating with serum IL-1β and TNF-α, whereas Peptococcaceae, Bacteroidaceae, Muribaculaceae, and Rikenellaceae showed the opposite pattern (P < 0.01). Moreover, Veillonellaceae, Peptostreptococcaceae, Lactobacillaceae, and Ruminococcaceae negatively correlated with retinal CMKLR1 and Wnt5a, yet positively with colonic TP53 and PPAR-γ, whereas Eggerthellaceae, Lachnospiraceae, and Hungateiclostridiaceae exhibited the reverse correlation (P < 0.01).
At the genus level (Figure 11D–F), QMG improved the CMKLR1-centered network primarily by modulating Lachnoclostridium, Clostridioides, and Bacteroides along the gut–retina axis. Specifically, Ruminococcus negatively correlated with retinal CMKLR1, whereas Lachnoclostridium showed the opposite pattern in the blank group (P < 0.01). In the model group, Lactobacillus and Sphingomonas negatively correlated with colonic CMKLR1, while Alistipes and Croceibacter positively correlated with colonic CMKLR1 (P < 0.01). Meanwhile, retinal CMKLR1 positively correlated with Paeniclostridium and Clostridioides, yet negatively with Mucinivorans, Intestinimonas, Flavonifractor, Parabacteroides, Bacteroides, Odoribacter, and Lachnoclostridium (P < 0.01). Following QMG intervention, Sphingomonas and Oscillibacter negatively correlated with colonic CMKLR1, AP-1, and serum IL-6, as well as retinal PPAR-γ, AP-1, and TP53, while positively correlating with serum IL-1β and TNF-α, whereas Bacteroides, Muribaculum, and Alistipes showed the opposite pattern (P < 0.01). Moreover, Dialister, Flavonifractor, Clostridioides, Ruminococcus, and Paeniclostridium negatively correlated with retinal CMKLR1 and Wnt5a, yet positively with colonic TP53 and PPAR-γ, whereas Pseudoclostridium, Lachnoclostridium, and Blautia exhibited the reverse correlation (P < 0.01).
At the species level (Figure 11G–I), QMG improved the CMKLR1-centered network primarily by modulating Clostridioides difficile, Alistipes shahii, and Paeniclostridium sordellii along the gut–retina axis. Specifically, Ruminococcus bicirculans and endosymbiont 'TC1' of Trimyema compressum negatively correlated with retinal CMKLR1, whereas Lactobacillus fermentum and Lactobacillus helveticus displayed the opposite pattern in the blank group (P < 0.01). In the model group, Croceibacter atlanticus, Alkalitalea saponilacus, Alistipes finegoldii, and Alistipes shahii positively correlated with colonic CMKLR1, while Sphingomonas panacis, Paeniclostridium sordellii, Clostridioides difficile, and Lactobacillus murinus positively correlated with retinal CMKLR1, yet Odoribacter splanchnicus, Mucinivorans hirudinis, Lachnoclostridium phocaense, Flavonifractor plautii, and Intestinimonas butyriciproducens showed the opposite pattern (P < 0.01). Following QMG intervention, Alistipes shahii and Muribaculum intestinale positively correlated with colonic CMKLR1, AP-1, and serum IL-6, as well as retinal PPAR-γ, AP-1, and TP53, while negatively correlating with serum IL-1β and TNF-α, whereas Sphingomonas panacis, Oscillibacter sp. PEA192, and Oscillibacter valericigenes exhibited the reverse pattern (P < 0.01). Moreover, Pseudoclostridium thermosuccinogenes, Lachnoclostridium phocaense, Bacteroides salanitronis, and Blautia sp. N6H1-15 positively correlated with retinal CMKLR1 and Wnt5a, yet negatively with colonic TP53 and PPAR-γ, whereas Paeniclostridium sordellii, Flavonifractor plautii, endosymbiont 'TC1' of Trimyema compressum, Clostridioides difficile, and Dialister pneumosintes showed the reverse correlation (P < 0.01). The detailed correlation results at kingdom, phylum, class, order, family, genus, and species levels are presented in Supplementary File 1.
DATA AVAILABILITY:
The 16S rDNA sequencing datasets generated and analyzed during the current study are available in the National Center for Biotechnology Information (NCBI) Sequence Read Archive (SRA) repository under the BioProject accession number: PRJNA1281561. All other data generated or analyzed during this study are included in this article.
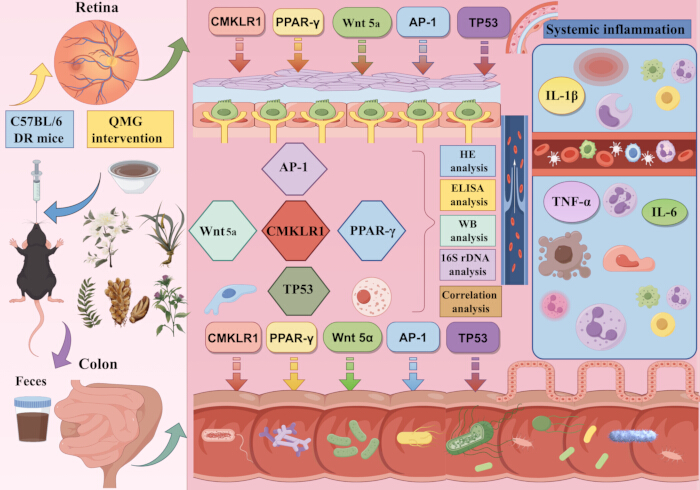
Figure 1: Graphical abstract. The graphical abstract shows the process of this study. Please click here to view a larger version of this figure.
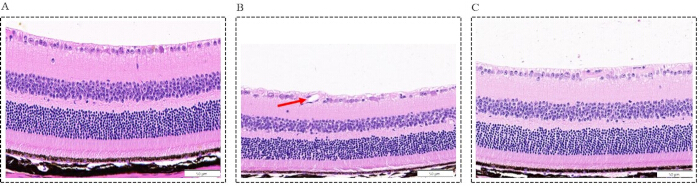
Figure 2: Morphological changes in the retina across the three groups (Scale bar = 50 µm, Magnification: ×400). (A) Blank group: representative photomicrographs of hematoxylin-eosin (HE)-stained retinal sections, showing an intact, well-organized retinal architecture with neatly arranged cellular layers; (B) Model group: representative photomicrographs of HE-stained retinal sections, showing marked structural disorganization, characterized by disordered cellular arrangement, a significant reduction in retinal ganglion cell (RGC) counts (P < 0.0001), pronounced thinning of the retinal thickness (P < 0.0001), and neovascular tufts penetrating the inner limiting membrane (indicated by a red arrow); (C) Intervention group: representative photomicrographs of HE-stained retinal sections, showing significant attenuation of histopathological abnormalities relative to the model group, as evidenced by restoration of retinal laminar architecture, partial recovery of RGC numbers (P < 0.001), and restoration of retinal thinning (P < 0.01). Please click here to view a larger version of this figure.
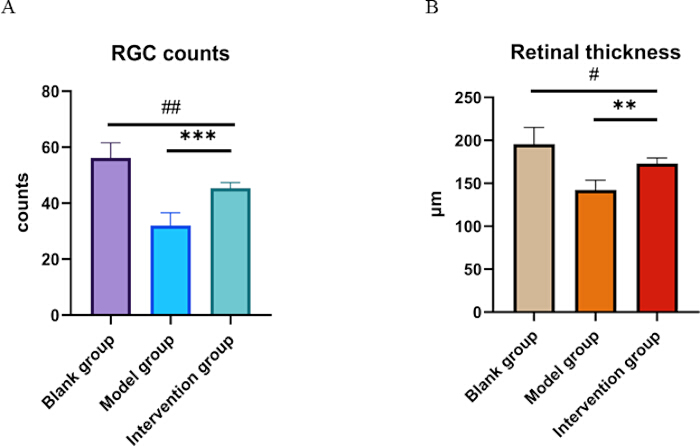
Figure 3: Histological quantification of RGC counts and retinal thickness. (A) Quantification of RGC counts in the ganglion cell layer. (B) Measurement of total retinal thickness (µm). Data are shown as mean ± SD (n = 6 per group). Compared with the blank group: #P <0.05, ##P <0.01; compared with the model group: **P <0.01, ***P <0.001. Please click here to view a larger version of this figure.
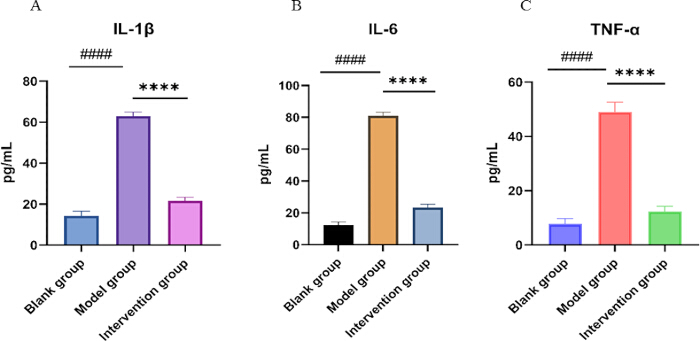
Figure 4: Serum concentrations of inflammatory cytokines in the three groups. Bar charts showing ELISA‑based quantification of serum IL‑1β (A), IL‑6 (B), and TNF‑α (C) levels in the blank control, model group, and intervention groups. Data are expressed as mean ± SD (n = 6 per group). Compared with the blank group: ####P < 0.0001; compared with the model group: ****P < 0.0001. Please click here to view a larger version of this figure.
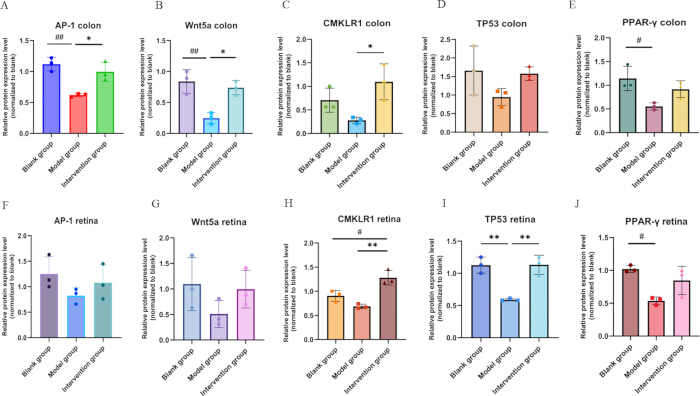
Figure 5: Bar chart of the expression levels of key regulatory proteins in the retina and colon. (A) Relative protein expression level (normalized to blank) of AP-1 in the colon (n = 3); (B) Relative protein expression level (normalized to blank) of Wnt5a in the colon (n = 3); (C) Relative protein expression level (normalized to blank) of CMKLR1 in the colon (n = 3); (D) Relative protein expression level (normalized to blank) of TP53 in the colon (n = 3); (E) Relative protein expression level (normalized to blank) of PPAR-γ in the colon (n = 3); (F) Relative protein expression level (normalized to blank) of AP-1 in the retina (n = 3); (G) Relative protein expression level (normalized to blank) of Wnt5a in the retina (n = 3); (H) Relative protein expression level (normalized to blank) of CMKLR1 in the retina (n = 3); (I) Relative protein expression level (normalized to blank) of TP53 in the retina (n = 3); (J) Relative protein expression level (normalized to blank) of PPAR-γ in the retina (n = 3). Compared with the blank group: #P < 0.05, ##P < 0.01; compared with the model group: *P < 0.05, **P < 0.01. Please click here to view a larger version of this figure.
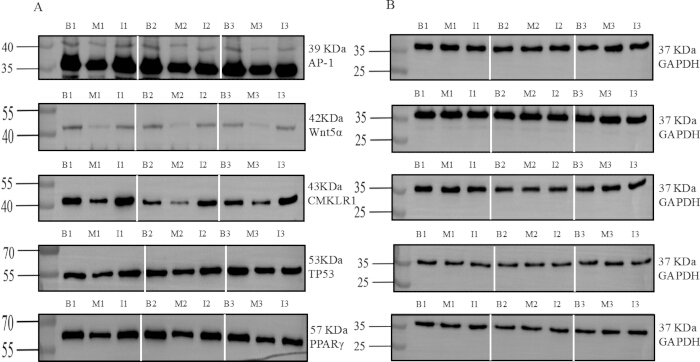
Figure 6: Representative WB grayscale blots of key regulatory proteins in the colon. (A) Target protein expression: AP-1, Wnt5a, CMKLR1, TP53, and PPAR-γ; (B) Loading control: GAPDH. Vertical white lines separate replicate sets (Rep1, Rep2, Rep3); Molecular weight markers (kDa) are indicated on the left, and protein names with corresponding kDa are shown on the right. Lanes are labeled as: B1 (Blank group 1), M1 (Model group 1), I1 (Intervention group 1); B2 (Blank group 2), M2 (Model group 2), I2 (Intervention group 2); B3 (Blank group 3), M3 (Model group 3), I3 (Intervention group 3). Full-length, uncropped Western blot (WB) images with visible molecular weight markers have been provided as Supplementary Figure 2. Please click here to view a larger version of this figure.
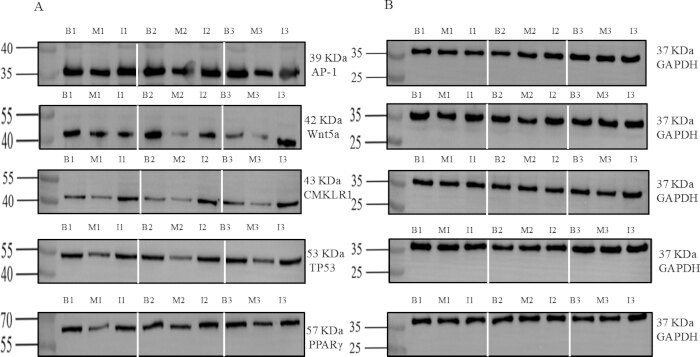
Figure 7: Representative WB grayscale blots of key regulatory proteins in the retina. (A) Target protein expression: AP-1, Wnt5a, CMKLR1, TP53, and PPAR-γ; (B) Loading control: GAPDH. Vertical white lines separate replicate sets (Rep1, Rep2, Rep3); Molecular weight markers (kDa) are indicated on the left, and protein names with corresponding kDa are shown on the right. Lanes are labeled as: B1 (Blank group 1), M1 (Model group 1), I1 (Intervention group 1); B2 (Blank group 2), M2 (Model group 2), I2 (Intervention group 2); B3 (Blank group 3), M3 (Model group 3), I3 (Intervention group 3). Full-length, uncropped WB images with visible molecular weight markers have been provided as Supplementary Figure 2. Please click here to view a larger version of this figure.
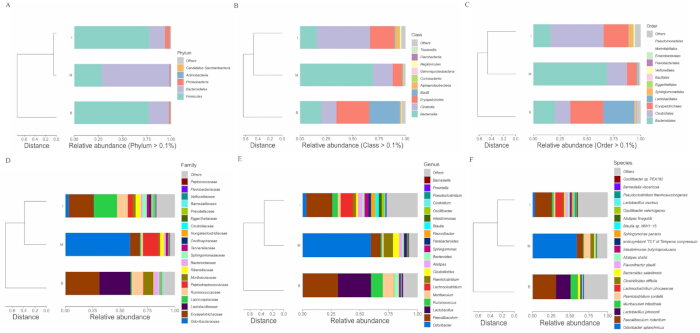
Figure 8: Hierarchical clustering of gut microbiota composition at different levels. Hierarchical clustering dendrogram based on Bray-Curtis dissimilarity among the blank control (B), model group(M), and intervention group (I). The branch length represents the degree of structural divergence. Stacked bar chart depicting the relative abundances of dominant phyla across the three groups. Phyla falling below the threshold are aggregated as “Others”. (A) Qiming granule (QMG) rebalances the gut microbiota composition at the phylum level; (B) QMG rebalances the gut microbiota composition at the class level; (C) QMG rebalances the gut microbiota composition at the order level; (D) QMG rebalances the gut microbiota composition at the family level; (E) QMG rebalances the gut microbiota composition at the genus level; (F) QMG rebalances the gut microbiota composition at the species level. Abbreviation: B, blank group; M, model group; I, intervention group. Please click here to view a larger version of this figure.
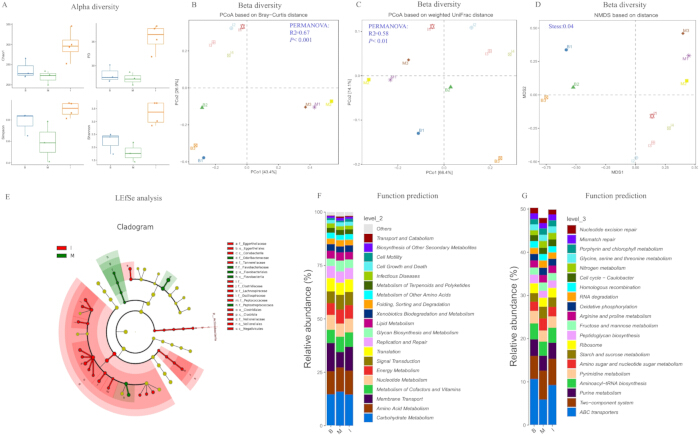
Figure 9: Analysis of gut microbiota diversity, differential abundance, and predicted functional pathways. (A) Alpha diversity analysis assessed by Chao1, PD, Simpson, and Shannon indices revealed that the intervention group exhibited higher microbial diversity than the model group, indicating that QMG treatment effectively restores gut microbial richness and evenness. (B) Beta diversity analysis assessed by principal coordinates analysis (PCoA) based on Bray-Curtis distance revealed significant differences among groups (PERMANOVA: R2=0.67, P < 0.001), indicating that the DR model and QMG intervention accounted for a substantial proportion of the variation in microbial community composition. (C) Beta diversity analysis assessed by PCoA based on weighted unique fraction (UniFrac) distance further confirmed the significant community shift (PERMANOVA: R2= 0.58, P < 0.01). (D) Beta diversity analysis assessed by non-metric multidimensional scaling (NMDS) ordination demonstrated a stress value of 0.04, suggesting that the QMG intervention significantly altered the global composition of the gut microbiota. (E) Cladogram of differential abundance analysis assessed by linear discriminant analysis effect size (LEfSe) revealed the primary differential microbiota between the model and intervention groups. Functional prediction of the gut microbiota at KEGG Level 2 (F) and KEGG Level 3 (G) suggested that the intervention not only reshaped the taxonomic composition and structure of the gut microbiota but also restored its functional metabolic capacity toward a homeostatic state. Please click here to view a larger version of this figure.
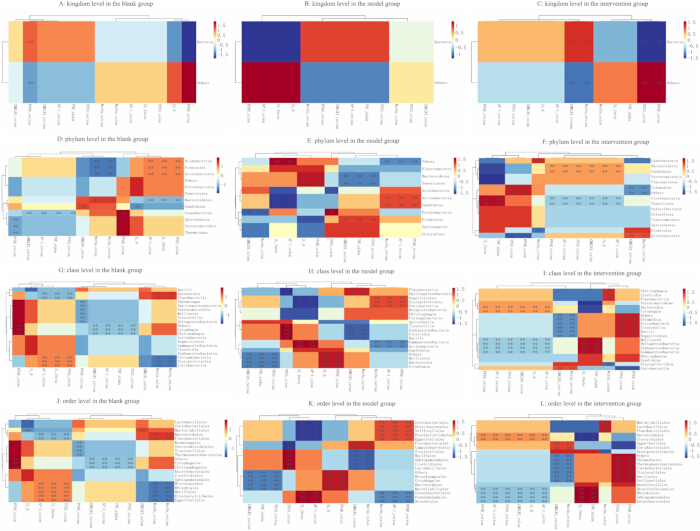
Figure 10: Global association of gut microbiota with inflammatory and regulatory factors. (A) Association of gut microbiota at kingdom level in the blank group; (B) Association of gut microbiota at kingdom level in the model group; (C) Association of gut microbiota at kingdom level in the intervention group; (D) Association of gut microbiota at phylum level in the blank group; (E) Association of gut microbiota at phylum level in the model group; (F) Association of gut microbiota at phylum level in the intervention group; (G) Association of gut microbiota at class level in the blank group; (H) Association of gut microbiota at class level in the model group; (I) Association of gut microbiota at class level in the intervention group; (J) Association of gut microbiota at order level in the blank group; (K) Association of gut microbiota at order level in the model group; (L) Association of gut microbiota at order level in the intervention group. Please click here to view a larger version of this figure.
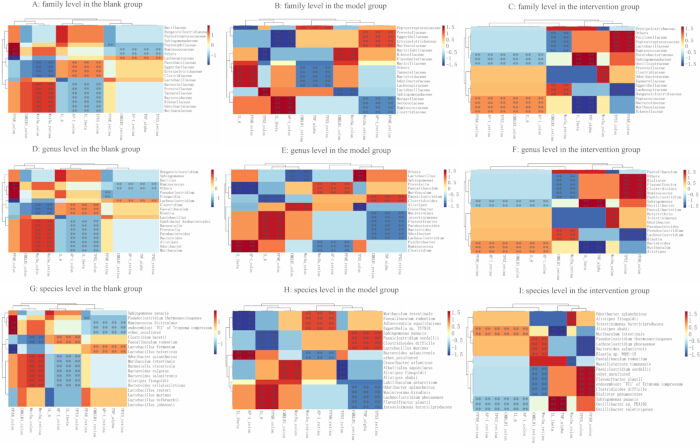
Figure 11: Fine association of gut microbiota with inflammatory and regulatory factors. (A) Association of gut microbiota at the family level in the blank group; (B) Association of gut microbiota at the family level in the model group. (C) Association of gut microbiota at family level in the intervention group; (D) Association of gut microbiota at genus level in the blank group; (E) Association of gut microbiota at genus level in the model group; (F) Association of gut microbiota at genus level in the intervention group; (G) Association of gut microbiota at species level in the blank group; (H) Association of gut microbiota at species level in the model group;(I) Association of gut microbiota at species level in the intervention group. Please click here to view a larger version of this figure.
| Groups (n = 6) | RGCs counts | Retinal thickness |
| Blank group | 56.17 ± 5.382 | 195.50 ± 19.54 μm |
| Model group | 32.00 ± 4.561#### | 142.30 ± 11.34 μm#### |
| Intervention group | 45.33 ± 2.066 ##*** | 173.00 ± 6.575 μm#** |
| p | <0.0001 | <0.0001 |
Table 2: Quantitative analysis of RGC counts and retinal thickness in the three experimental groups. Data are presented as Mean ± SD (n = 6 per group). Compared with the blank group: #P <0.05, ##P <0.01, ####P <0.0001; compared with the model group: **P <0.01, ***P <0.001.
| Groups (n = 6) | IL-1β | IL-6 | TNF-α |
| Blank group | 14.31 ± 2.28 | 12.48 ± 1.774 | 7.728 ± 2.048 |
| Model group | 62.88 ± 2.01#### | 80.95 ± 2.247#### | 49.00 ± 3.647#### |
| Intervention group | 21.7 ± 1.654**** | 23.27 ± 2.074**** | 12.35 ± 1.891**** |
| P | <0.0001 | <0.0001 | <0.0001 |
Table 3: Serum expression levels of IL-1β, IL-6, and TNF-α in the three experimental groups. Data are presented as Mean ± SD (n = 6 per group). Cytokine concentrations were determined by enzyme‑linked immunosorbent assay (ELISA) and are reported in pg/mL. Compared with the blank group: ####P < 0.0001; compared with the model group: ****P < 0.0001.
Supplementary Figure 1: Experimental Design and Study Timeline. Schematic overview of the experimental design.Please click here to download this file.
Supplementary Figure 2: Original, full-length, uncropped WB images corresponding to Figure 6 and Figure 7. Raw images without modification contain all molecular weight markers in colon and retina blots for AP-1, Wnt5a, TP53, CMKLR1, PPAR-γ, and loading control GAPDH. Molecular weight markers (kDa) are indicated. Lanes are labeled: B1 (Blank group 1), M1 (Model group 1), I1 (Intervention group 1); B2 (Blank group 2), M2(Model group 2), I2 (Intervention group 2); B3 (Blank group 3), M3 (Model group 3), I3 (Intervention group 3). The original blots were not subjected to high-contrast adjustments.Please click here to download this file.
Supplementary File 1: Detailed correlation analyses of gut microbiota with inflammatory and regulatory factors.Please click here to download this file.
Discussione
La retinopatia diabetica (DR) è una complicanza neurovascolare complessa causata da iperglicemia cronica, infiammazione e alterazioni del metabolismo22. L'Accademia Americana di Oftalmologia classifica la DR in forma non proliferativa e forma proliferativa, caratterizzata dall'insorgenza di neovascolarizzazione23. Date le limitazioni delle attuali strategie terapeutiche, l'esplorazione di nuovi meccanismi si è rivelata una direzione promettente per affrontare la DR. In particolare, recenti scoperte hanno identificato l'asse intestino-retina come un bersaglio terapeutico fondamentale, sebbene ancora poco sfruttato, per la DR. L'asse intestino-retina, introdotto e descritto per la prima volta da Sheldon Rowan nel 20176, ha acquisito rilevanza nei processi fisiopatologici delle malattie oculari. Tuttavia, i meccanismi molecolari specifici alla base del ruolo dell'asse intestino-retina nella patogenesi e nel decorso della DR non sono ancora chiari, il che ostacola lo sviluppo e l'applicazione clinica di strategie terapeutiche mirate a questo asse.
In questo studio, abbiamo valutato sistematicamente l'efficacia e i meccanismi alla base dell'azione di QMG contro la DR. Questi risultati forniscono evidenze preliminari che QMG attenua i danni istopatologici retinici, sopprime l'infiammazione sistemica, ripristina l'omeostasi della microbiota intestinale e modula in modo bidirezionale proteine regolatorie chiave (la rete regolatoria centrata su CMKLR1) sia nel colon che nella retina, stabilendo così QMG come un potenziale modulatore dell'asse intestino-retina. L'infiammazione sistemica cronica a bassa intensità è un tratto distintivo del DM ed un importante fattore trainante dei danni microvascolari retinici e della progressione della DR24. I risultati dell'ELISA hanno dimostrato che i livelli sierici di IL-1β, IL-6 e TNF-α erano significativamente aumentati nei topi modello di DR (P < 0,0001), confermando la presenza di una marcata risposta infiammatoria sistemica nello stato di DR. Il rilascio incontrollato di queste citochine può alterare la barriera emato-retinica, promuovere l'apoptosi dei neuroni gangliari retinici (RGC) e indurre neovascolarizzazione patologica. Dopo l'intervento con QMG, i livelli di queste citochine sono risultati significativamente ridotti (P < 0,0001), mentre è stata ripristinata l'integrità strutturale della retina, aumentata la sopravvivenza dei RGC e preservato lo spessore retinico. Questi risultati indicano che gli effetti protettivi di QMG sulla retina sono strettamente associati alla sua potente attività anti-infiammatoria sistemica. In particolare, tale effetto anti-infiammatorio sistemico non si verifica in modo isolato, ma è associato alla modulazione operata da QMG della microbiota intestinale e al ripristino di proteine regolatorie chiave nel colon, suggerendo che QMG possa esercitare i suoi effetti terapeutici attraverso un asse «intestino-infiammazione sistemica-retina».
Per chiarire ulteriormente il meccanismo molecolare attraverso cui QMG esercita i suoi effetti anti-DR lungo l'asse intestino-retina, è stata esaminata l'espressione proteica della rete regolatoria centrata su CMKLR1 (inclusi CMKLR1, Wnt5a, TP53, AP-1 e PPAR-γ) in tessuti colici e retinici. I risultati hanno mostrato che dopo l'induzione del modello di DR, tutte e cinque le proteine hanno mostrato una tendenza costantemente discendente sia nel colon che nella retina, suggerendo che la comunicazione segnale tra intestino e retina possa essere bloccata sistematicamente in condizioni di DR. Dopo l'intervento con QMG, CMKLR1 è risultato significativamente upregolato sia nel colon che nella retina (P < 0,05 e P < 0,01), indicando che QMG potrebbe ripristinare la comunicazione bidirezionale lungo l'asse intestino-retina attraverso l'attivazione sistemica di CMKLR1. Inoltre, QMG ha ripristinato significativamente l'espressione di AP-1 e Wnt5a nel colon, nonché l'espressione di TP53 nella retina, suggerendo che diverse proteine possano svolgere ruoli funzionali specifici per tessuto lungo l'asse: AP-1 e Wnt5a sono rispondenti più sensibili a QMG nel colon, mentre TP53, come regolatore dell'apoptosi, svolge un ruolo più critico nella neuroprotezione retinica. Un'ulteriore analisi di correlazione ha rivelato che l'espressione colica di AP-1, CMKLR1, PPAR-γ e Wnt5a era significativamente negativamente correlata ai livelli sistemici di citochine infiammatorie (IL-1β, IL-6, TNF-α) (P < 0,05 fino a P < 0,001), mentre non è stata osservata alcuna correlazione diretta tra citochine sieriche ed espressione proteica retinica. Questa discrepanza ha importanti implicazioni meccanistiche: QMG potrebbe agire principalmente sull'ambiente microintestinale ripristinando l'espressione di proteine regolatrici chiave nel colon, sopprimendo così l'infiammazione sistemica; il recupero delle proteine retiniche, al contrario, potrebbe avvenire attraverso vie indirette, come la traslocazione di metaboliti derivati dalla microbiota intestinale nella circolazione, che quindi regolano a distanza le cascate di segnalazione retinica, piuttosto che essere direttamente mediate da fattori infiammatori sistemici. Questo risultato supporta un modello regolatorio assiale «intestino-infiammazione sistemica-retina» e fornisce prove meccanistiche fondamentali per l'effetto terapeutico di QMG sulla DR attraverso l'asse intestino-retina. Tra i bersagli indagati, CMKLR1 ha mostrato alterazioni significative sia nei tessuti retinici che colici, emergendo come un potenziale biomarcatore primario che collega l'asse intestino-retina. Studi precedenti hanno implicato CMKLR1 nel metabolismo glicolipidico, nella gravità della DR e nella modulazione della microbiota intestinale25,26,27,28,29,30, suggerendo che la sua espressione differenziale lungo l'asse intestino-retina possa riflettere il coinvolgimento in diversi processi patologici. Questi risultati collocano CMKLR1 come un promettente candidato biomarcatore per la diagnosi e l'intervento terapeutico della DR, giustificando ulteriori validazioni meccanistiche.
Mentre CMKLR1 funge da nodo centrale nell'asse intestino-retina, l'effetto terapeutico di QMG si ottiene attraverso una rete regolatoria multidimensionale in cui Wnt5a, TP53, AP-1 e PPAR-γ forniscono un supporto sinergico essenziale. La segnalazione Wnt è fondamentale per l'omeostasi dell'epitelio intestinale e la salute del colon, inclusi i ruoli nell'integrità epiteliale, nella modulazione dell'infiammazione e nella protezione della mucosa mediata dalla microbiota31,32,33,34. PPAR-γ regola le risposte infiammatorie ed è stato dimostrato che inibisce i fagociti attivati dai lipidi nella retinopatia diabetica e promuove la sopravvivenza dei fotorecettori mediante modulazione dei microglia35,36,37. AP-1 agisce come fattore di trascrizione attraverso il quale i metaboliti microbici intestinali, come l'acido deossicolico, influenzano l'omeostasi infiammatoria e immunitaria38,39,40,41. TP53 è coinvolto nell'autofagia, nell'apoptosi e nel danno neuronale retinico in condizioni di iperglicemia42,43,44,45. Nel complesso, questi nodi di segnalazione formano una rete interconnessa che collega la dinamica microbica intestinale alla patologia retinica, spingendoci a indagare se QMG moduli questa rete lungo l'asse intestino-retina.
Un meccanismo fondamentale attraverso cui viene regolata l'infiammazione sistemica origina dall'ecosistema intestinale. L'analisi mediante sequenziamento del 16S rDNA ha rivelato una disbiosi strutturale indotta dal diabete nel gruppo modello, caratterizzata da un significativo squilibrio nel rapporto tra Firmicutes e Bacteroidetes, un arricchimento di taxa potenzialmente patogeni (ad esempio Odoribacter e Clostridioides) e una riduzione di taxa benefici (ad esempio Lactobacillus e Faecalibaculum). In modo notevole, il trattamento con QMG ha agito come agente di ripristino della microbiota, invertendo tali alterazioni patologiche mediante: (i) Ripristino dell'omeostasi microbica: normalizzazione delle proporzioni di famiglie e generi chiave (Faecalibaculum, Ruminococcus, Erysipelotrichaceae) verso i valori di base del gruppo controllo; (ii) Modulazione mirata dei patobionti: riduzione della proliferazione eccessiva associata al diabete di Odoribacter splanchnicus e Clostridioides difficile; (iii) Promozione dell'assemblaggio di comunità benefiche: induzione della proliferazione di taxa produttori di metaboliti o con attività antinfiammatoria, come Lachnoclostridium, Blautia e Flavonifractor plautii. Inoltre, le analisi della diversità e l'analisi di correlazione di Spearman a più livelli hanno indicato che l'intervento con QMG riequilibra efficacemente la composizione centrale a più livelli in modo da favorire interazioni protettive tra l'ospite e i microrganismi lungo l'asse intestino-retina. Questo risultato non solo conferma l'effetto regolatorio di QMG sulla microbiota intestinale, ma rivela anche una potenziale strategia terapeutica attraverso cui QMG coordina la rimodulazione della microbiota con l'attività di proteine regolatrici chiave (ad esempio IL-6, TP53) per sopprimere congiuntamente l'infiammazione sistemica e alleviare la retinopatia diabetica.
Studi recenti hanno ha verificato che la medicina tradizionale cinese esercita una regolazione multibersaglio sull'asse microbiota-metabolismo-immunità, distinguendola dagli agenti farmacologici a bersaglio singolo46. Sempre più evidenze hanno dimostrato il potenziale terapeutico di QMG nella retinopatia diabetica (DR) e nelle condizioni oculari correlate. Uno studio randomizzato controllato multicentrico ha mostrato che QMG riduce significativamente il tempo di circolazione arterovenosa retinica nei pazienti con DR, suggerendo un miglioramento del flusso ematico retinico e dell'ipossia47. Le meta-analisi hanno ulteriormente confermato che il QMG, somministrato in associazione al trattamento convenzionale, migliora in modo significativo lo spessore maculare centrale, l'acuità visiva e la percentuale complessiva di efficacia nell'edema maculare diabetico48e anche un prolungamento del tempo di rottura del film lacrimale e un aumento della secrezione lacrimale in pazienti con sindrome dell'occhio secco49In pazienti con danno nervoso associato a NPDR, il QMG ha dimostrato non inferiorità rispetto al dobesilato di calcio nel preservare lo spessore del layer delle fibre nervose retiniche e l'area della zona avascolare foveale50Studi meccanicistici hanno rivelato che il QMG protegge contro i danni retinici attraverso multipli vie, inclusa l'inibizione della pirosi delle cellule di Müller e dell'infiammazione immunitaria tramite la via P2X7R/NLRP351, l'attivazione della via di segnalazione PI3K/Akt per ridurre l'apoptosi e la modulazione delle proteine delle giunzioni strette per preservare l'integrità della barriera emato-retinica52. Le analisi di farmacologia delle reti hanno identificato numerosi composti bioattivi nel QMG che agiscono in modo sinergico su bersagli associati al DR16e studi clinici non hanno riportato eventi avversi gravi, indicando un profilo di sicurezza favorevole50. L'efficacia terapeutica del QMG è attribuita alle azioni sinergiche dei suoi componenti attivi, tra cui quercetina, kaempferolo, isorhamnetina, formononetina e β‑sitosterolo, che collettivamente esercitano effetti anti-infiammatori, antiossidanti e anti-apoptotici agendo su IL-6, TNF-α, TP53 e AP-153,54,55,56,57,58,59Il presente studio amplia questa conoscenza dimostrando che gli effetti protettivi della QMG sono mediati anche attraverso la modulazione dell'asse intestino-retina, in particolare ripristinando l'omeostasi della microbiota intestinale e regolando la rete molecolare centrata su CMKLR1 per sopprimere l'infiammazione sistemica e alleviare i danni retinici.
Diversi limiti di questo studio devono essere evidenziati e richiedono ulteriori indagini in ricerche future. In primo luogo, la relazione causale tra le alterazioni del microbiota intestinale e il miglioramento della funzione retinica necessita di ulteriore validazione. Sebbene siano state osservate forti correlazioni tra la rimodulazione del microbiota indotta da QMG e i fenotipi protettivi retinici, esperimenti diretti per inferire causalità, come il trapianto di microbiota fecale, modelli animali germ-free o la deplezione del microbiota indotta da antibiotici, sarebbero utili per confermare questa relazione in studi futuri. In secondo luogo, è stata utilizzata la sequenza del 16S rDNA per profilare la composizione microbica, che fornisce una risoluzione tassonomica adeguata a livello di genere e superiore, ma ha una capacità limitata di fornire informazioni funzionali a livello di ceppo o potenzialità metaboliche precise. In studi successivi verranno effettuati sequenziamenti metagenomici o analisi metabolomiche per identificare le principali vie funzionali microbiche regolate da QMG. In terzo luogo, le variazioni microbiche sono state valutate soltanto al termine dell'esperimento, impedendo un monitoraggio dinamico dell'evoluzione temporale della ricostruzione del microbiota durante l'intervento con QMG. Campionamenti longitudinali in studi futuri aiuteranno a definire la cinetica del rimodellamento del microbiota indotto da QMG e la sua relazione temporale con la protezione retinica. In quarto luogo, sebbene l'analisi istopatologica abbia rilevato un assottigliamento retinico, la perdita delle cellule gangliari retiniche (RGC) e la formazione di ciuffi neovascolari, studi futuri dovrebbero esplorare protocolli di iniezione multipla di STZ e modelli di diabete genetico, nonché fornire una caratterizzazione più completa del fenotipo della retinopatia diabetica (DR).
In sintesi, questo studio dimostra che QMG migliora la retinopatia diabetica (DR) accoppiando la rete molecolare centrata su CMKLR1 all'infiammazione sistemica attraverso l'asse intestino-retina. Il meccanismo d'azione di QMG si manifesta a tre livelli: a livello microbico, QMG inverte la disbiosi intestinale indotta dal diabete (ad esempio, ripristinando il rapporto tra Firmicutes e Bacteroidetes, sopprimendo Odoribacter e Clostridioides, e promuovendo batteri benefici come Faecalibaculum); a livello molecolare, QMG regola la via CMKLR1/Wnt5a/PPAR-γ/AP-1/TP53 e attenua l'infiammazione sistemica; a livello tissutale, QMG protegge la morfologia retinica. Questi risultati supportano QMG come una promettente strategia terapeutica gut–retina per la DR e forniscono una base meccanicistica per l'applicazione della medicina tradizionale cinese (TCM) nel trattamento delle complicanze diabetiche.
Dichiarazioni
Gli autori dichiarano di non avere interessi finanziari concorrenti noti o relazioni personali che potrebbero aver influenzato il lavoro descritto in questo articolo.
Ringraziamenti
L'autore desidera riconoscere tutti i membri del proprio team che hanno fornito un notevole sostegno e assistenza per portare a termine questa ricerca.
Questa ricerca è stata sostenuta dalla National Natural Science Foundation of China (numero di concessione: 82474580) e dal progetto di esplorazione libera del fondo ospedaliero dell'Ospedale dell'Università di Medicina Tradizionale Cinese di Chengdu (n. 23ZYTS1601).
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| Anticorpo monoclonale AP-1 | Proteintech | 66313-1-IG | 1:5000 |
| Anticorpo policlonale CMKLR1 | Affinity | AF5291 | 1:1000 |
| Anticorpo policlonale GAPDH | Affinity | AF7021 | 1:5000 |
| GoatAnti-Mouse IgG(H+L) HRP | MULTI SCIENCES | GAM0072 | 1:10000 |
| GoatAnti-Rabbit IgG(H+L) HRP | MULTI SCIENCES | GAR0072 | 1:10000 |
| GraphPad Prism | / | versione 9.5 | |
| Image-Pro Plus | Media Cybernetics, Inc., Rockville, MD, USA | versione 6.0 | |
| Piattaforma Luoning Bio-Cloud | http://www.biomediv.cn/login.html | ||
| Kit ELISA per IL-1β murina (Interleuchina 1 Beta) | Elabscience | E-EL-M0037 | Rilevamento citochine sieriche |
| Kit ELISA per IL-6 murina (Interleuchina-6) | Elabscience | E-EL-M0044 | Rilevamento citochine sieriche |
| Kit ELISA per TNF-α murino (Fattore di Necrosi Tumorale Alfa) | Elabscience | E-EL-M3063 | Rilevamento citochine sieriche |
| NanoFilt | / | versione 2.7.1 | |
| Sequenziatore Nanopore GridION | Oxford Nanopore Technologies | https://store.nanoporetech.com/gridion.html | |
| Pannoramic SCAN II | Scanner 3DHISTECH Pannoramic SCAN | https://www.3dhistech.com/scanners/pannoramic-scan-ii-digital-scanner/ | |
| Anticorpo policlonale PPAR gamma (PPAR-γ) | ImmunoWay | bs-0530R | 1:1000 |
| Python | / | versione 3.7.4 | |
| Granuli Qiming | Zhejiang Sansheng Mandi Pharmaceutical Co., Ltd. | Numero di Approvazione Nazionale Cinese per Farmaci Z20090036 | 0,9 g/kg, per gavaggio orale |
| Linguaggio di programmazione R | / | versione 4.0.3 | |
| Database SILVA | / | versione 138 | |
| Streptozotocina (STZ) | Sigma-Aldrich | S0130 | 35 mg/kg, i.p. |
| Anticorpo policlonale TP53 | Abcam | ab131442 | 1:1000 |
| Usearch | / | versione 10.0.240 | |
| Anticorpo policlonale Wnt5a | Proteintech | 55184-1-AP | 1:1000 |
| Kit Zymo Research BIOMICS DNA Microprep | Zymo Research | D4301 | Estrazione di gDNA fecale |
Riferimenti
- Lei C, et al. Homocysteine and diabetic retinopathy. Exp Eye Res. 2026;262:110729.
- Owens DR, et al. IDF diabetes Atlas: A worldwide review of studies utilizing retinal photography to screen for diabetic retinopathy from 2017 to 2024 inclusive. Diabetes Res Clin Pract. 2025;226:112346.
- Zhu J, Huang J, Sun Y, Xu W, Qian H. Emerging role of extracellular vesicles in diabetic retinopathy. Theranostics. 2024;14(4):1631–1646.
- Xie L, Lin W. The role of gut microbiota dysbiosis in the inflammatory pathogenesis of diabetic retinopathy. Front Immunol. 2025;16:1604315.
- Niu J, Liu Y, Peng H, Chen J, Chen L. Early-stage diabetic retinopathy: gut-metabolic triggers, immune-neurodegeneration, and interventions. Graefes Arch Clin Exp Ophthalmol. 2025;263(10):2723–2736.
- Rowan S, et al. Involvement of a gut-retina axis in protection against dietary glycemia-induced age-related macular degeneration. Proc Natl Acad Sci U S A. 2017;114(22):E4472–E4481.
- Rzeczycki P, Pęciak O, Plust M, Droździk M. Gut Microbiota in the Regulation of Intestinal Drug Transporters: Molecular Mechanisms and Pharmacokinetic Implications. Int J Mol Sci. 2025;26(24):11897.
- Yang H, et al. Mediating role of aging and obesity in the relationship between dietary index for gut microbiota and metabolic syndrome and its potential regulatory mechanisms. Eur J Med Res. 2025;31(1):137.
- Zahavi EE, et al. Repeat-element RNAs integrate a neuronal growth circuit. Cell. 2025;188(16):4350–4365.e22.
- Dander E, et al. The chemerin/CMKLR1 axis regulates intestinal graft-versus-host disease. JCI Insight. 2023;8(5):e154440.
- Zhang J, et al. Therapeutic targets in the Wnt signaling pathway: Treating cancer with specificity. Biochem Pharmacol. 2025;236:116848.
- Liu M, Lim ST, Song W, Coffman TM, Wang X. Beyond lipids: fenofibrate in diabetic retinopathy and nephropathy. Trends Pharmacol Sci. 2026;47(3):325–341.
- Wu Y, et al. The active ingredient β-sitosterol in the anti-inflammatory agents alleviates perianal inflammation in rats by inhibiting the expression of Srebf2, activating the PPAR signaling pathway, and altering the composition of gut microbiota. Int Immunopharmacol. 2025;152:114470.
- Lin T, Chen C, Zhao LC, Zhu HY, Li W. The beneficial effects of Traditional Chinese Medicine on diabetic retinopathy: mechanisms, therapeutics, and prospects. Acupunct Herb Med 2026;6(2):188–204.
- Huo J, et al. Evaluation of individualized treatment of nonproliferative diabetic retinopathy: a multicenter, randomized, parallel-controlled study. J Tradit Chin Med. 2022;42(1):90–95.
- Huang Y, et al. Pharmacological mechanism and clinical study of Qiming granules in treating diabetic retinopathy based on network pharmacology and literature review. J Ethnopharmacol. 2023;302(Pt A):115861.
- Salma B, et al. Ameliorative Efficacy of the Cassia auriculata Root Against High-Fat-Diet + STZ-Induced Type-2 Diabetes in C57BL/6 Mice. ACS Omega. 2020;6(1):492–504.
- Srinivasan K, Viswanad B, Asrat L, Kaul CL, Ramarao P. Combination of high-fat diet-fed and low-dose streptozotocin-treated rat: a model for type 2 diabetes and pharmacological screening. Pharmacol Res. 2005;52(4):313–320.
- Liu Y, Deng J, Fan D. Ginsenoside Rk3 ameliorates high-fat-diet/streptozocin-induced type 2 diabetes mellitus in mice via the AMPK/Akt signaling pathway. Food Funct. 2019;10(5):2538–2551.
- Hu RY, et al. AFG Ameliorates Diabetic Retinopathy through AMPK-Dependent Autolysosomal Pathway: From Network Pharmacology to In Vivo and In Vitro Validation. J Agric Food Chem. 2026;74(2):2124–2139.
- Reagan-Shaw S, Nihal M, Ahmad N. Dose translation from animal to human studies revisited. FASEB J. 2008;22(3):659–661.
- Zou Q, et al. Oxidative stress in diabetic retinopathy. Clin Chim Acta. 2026;584:120871.
- Clements JN, Mesawich J, Twisdale C. Current and Emerging Pharmacologic Therapies for Diabetic Retinopathy. Pharmacotherapy. 2026;46(3):e70119.
- Rezvani Z, Khani F, Afarid M, Asadian F, Takhshid MA. Clinical values of systemic inflammatory indices in diabetic retinopathy. Clin Exp Optom. 2026;109(3):371–385.
- Zhu Z, et al. Targeting the CMKLR1-Mediated Signaling Rebalances Immunometabolism State in Middle-Age Testicular Macrophages. Adv Sci (Weinh). 2026;13(14):e15166.
- Lin Y, et al. Epithelial chemerin-CMKLR1 signaling restricts microbiota-driven colonic neutrophilia and tumorigenesis by up-regulating lactoperoxidase. Proc Natl Acad Sci U S A. 2022;119(29):e2205574119.
- Puthanmadhom Narayanan S, et al. Epigenetic Alterations Are Associated With Gastric Emptying Disturbances in Diabetes Mellitus. Clin Transl Gastroenterol. 2020;11(3):e00136.
- Wang L, et al. Chemerin/CMKLR1 Axis Promotes the Progression of Proliferative Diabetic Retinopathy. Int J Endocrinol. 2021;2021:4468625.
- Zheng C, et al. α-NETA down-regulates CMKLR1 mRNA expression in ileum and prevents body weight gains collaborating with ERK inhibitor PD98059 in turn to alleviate hepatic steatosis in HFD-induced obese mice but no impact on ileal mucosal integrity and steatohepatitis progression. BMC Endocr Disord. 2023;23(1):9.
- Dranse HJ, et al. The impact of chemerin or chemokine-like receptor 1 loss on the mouse gut microbiome. PeerJ. 2018;6:e5494.
- Flores-Hernández E, et al. Canonical and non-canonical Wnt signaling are simultaneously activated by Wnts in colon cancer cells. Cell Signal. 2020;72:109636.
- Qi Y, et al. Heat-inactivated Bifidobacterium adolescentis ameliorates colon senescence through Paneth-like-cell-mediated stem cell activation. Nat Commun. 2023;14(1):6121.
- Ou W, et al. Cooperation of Wnt/β-catenin and Dll1-mediated Notch pathway in Lgr5-positive intestinal stem cells regulates the mucosal injury and repair in DSS-induced colitis mice model. Gastroenterol Rep (Oxf). 2024;12:goae090.
- Dong Y, et al. Berberine ameliorates DSS-induced intestinal mucosal barrier dysfunction through microbiota-dependence and Wnt/β-catenin pathway. Int J Biol Sci. 2022;18(4):1381–1397.
- Escandon P, et al. The role of peroxisome proliferator-activated receptors in healthy and diseased eyes. Exp Eye Res. 2021;208:108617.
- Blot G, et al. Perilipin 2-positive mononuclear phagocytes accumulate in the diabetic retina and promote PPARγ-dependent vasodegeneration. J Clin Invest. 2023;133(19):e161348.
- Zhou W, et al. TREM2-dependent activation of microglial cell protects photoreceptor cell during retinal degeneration via PPARγ and CD36. Cell Death Dis. 2024;15(8):623.
- Bala Kumar S, et al. Gut microbial metabolites targeting JUN in renal cell carcinoma via IL-17 signaling pathway: network pharmacology approach. Mol Divers. 2026;30(1):613–632.
- Wang L, et al. Gut microbial bile acid metabolite skews macrophage polarization and contributes to high-fat diet-induced colonic inflammation. Gut Microbes. 2020;12(1):1–20.
- Hagan T, et al. Antibiotics-Driven Gut Microbiome Perturbation Alters Immunity to Vaccines in Humans. Cell. 2019;178(6):1313–1328.e13.
- Meng Y, et al. Jinlida ameliorates diabetic kidney disease via gut microbiota-dependent production of pyridoxamine targeting renal AGEs/RAGE and TGF-β pathways. Phytomedicine. 2026;150:157744.
- Zhou H, Zhang L, Ding C, Zhou Y, Li Y. Upregulation of HMOX1 associated with M2 macrophage infiltration and ferroptosis in proliferative diabetic retinopathy. Int Immunopharmacol. 2024;134:112231.
- Mohammad HMF, et al. Neuroprotective effect of levetiracetam in mouse diabetic retinopathy: Effect on glucose transporter-1 and GAP43 expression. Life Sci. 2019;232:116588.
- Peng H, et al. Autophagy and senescence of rat retinal precursor cells under high glucose. Front Endocrinol (Lausanne). 2023;13:1047642.
- Ding Y, Chen L, Xu J, Feng Y, Liu Q. APAF1 Silencing Ameliorates Diabetic Retinopathy by Suppressing Inflammation, Oxidative Stress, and Caspase-3/GSDME-Dependent Pyroptosis. Diabetes Metab Syndr Obes. 2024;17:1635–1649.
- Yang T, et al. Clinical study on the modulating effects of Jiaotaiwan on the modulating effects of microbiota–SCFAs–neurotransmitter/immune axis in patients with depression. Acupunct Herb Med 2025;5(4):456–468.
- Luo XX, et al. Effect of qiming granule on retinal blood circulation of diabetic retinopathy: a multicenter clinical trial. Chin J Integr Med. 2009;15(5):384–388.
- Hu Z, et al. Add-on effect of Qiming granule, a Chinese patent medicine, in treating diabetic macular edema: A systematic review and meta-analysis. Phytother Res. 2021;35(2):587–602.
- Yang M, et al. The Efficacy and Safety of Qiming Granule for Dry Eye Disease: A Systematic Review and Meta-Analysis. Front Pharmacol. 2020;11:580.
- Ma XF, et al. Efficacy and Safety of Qiming Granule for Nerve Injury Associated with Non-proliferative Diabetic Retinopathy: A Multicenter, Randomized, Non-inferiority, Active-Controlled Clinical Trial. Chin J Integr Med. 2026;32(3):195–203.
- Zhou Q, et al. Qiming granules regulate Müller cell pyroptosis and the P2X7R/NLRP3 immune inflammatory pathway in diabetic retinopathy. Chin Med. 2026;21(1):89.
- Zhou L, Qin T, Lv Y, Wu Z. Qiming Granules Ameliorate Diabetic Retinopathy by Regulating the PI3K/Akt Signaling Pathway. J Ocul Pharmacol Ther. 2026;42(3):202–212.
- Li HD, Li MX, Zhang WH, Zhang SW, Gong YB. Effectiveness and safety of traditional Chinese medicine for diabetic retinopathy: A systematic review and network meta-analysis of randomized clinical trials. World J Diabetes. 2023;14(9):1422–1449.
- Chen F, et al. Isorhamnetin promotes functional recovery in rats with spinal cord injury by abating oxidative stress and modulating M2 macrophages/microglia polarization. Eur J Pharmacol. 2021;895:173878.
- Naudhani M, Thakur K, Ni ZJ, Zhang JG, Wei ZJ. Formononetin reshapes the gut microbiota, prevents progression of obesity and improves host metabolism. Food Funct. 2021;12(24):12303–12324.
- Qu Y, et al. Kaempferol Alleviates Murine Experimental Colitis by Restoring Gut Microbiota and Inhibiting the LPS-TLR4-NF-κB Axis. Front Immunol. 2021;12:679897.
- Saikia L, et al. Therapeutic Potential of Quercetin in Diabetic Neuropathy and Retinopathy: Exploring Molecular Mechanisms. Curr Top Med Chem. 2024;24(27):2351–2361.
- Yao H, et al. Kaempferol Protects Blood Vessels From Damage Induced by Oxidative Stress and Inflammation in Association With the Nrf2/HO-1 Signaling Pathway. Front Pharmacol. 2020;11:1118.
- Zhang HX, Li YY, Liu ZJ, Wang JF. Quercetin effectively improves LPS-induced intestinal inflammation, pyroptosis, and disruption of the barrier function through the TLR4/NF-κB/NLRP3 signaling pathway in vivo and in vitro. Food Nutr Res. 2022;66:10.