Questo protocollo descrive la quantificazione mirata mediante HPLC di rutina e quercetina nell'estratto di gemme di Styphnolobium japonicum e valuta l'estratto in modelli di ipertensione da carenza di ossido nitrico, di microglia e di co-coltura microglia-neurone. Il flusso di lavoro collega la preparazione dell'estratto a parametri di neuroinfiammazione, stress neuronale, pressione sanguigna e nucleo paraventricolare.
Articolo di ricerca
Estratto di Styphnolobium japonicum quantificato mediante HPLC attenua l'infiammazione microgliale e l'ipertensione in ratti trattati con L-NAME
* These authors contributed equally
In questo articolo
Sommario
Abstract
L'infiammazione neurologica nel nucleo paraventricolare ipotalamico (PVN) può contribuire all'eccitazione simpatica e all'ipertensione. Abbiamo valutato un estratto di gemme di Styphnolobium japonicum (SJBE; in passato noto come Sophora japonica), quantificato per rutina e quercetina mediante cromatografia liquida ad alte prestazioni mirata (HPLC). L'estratto è stato testato in microglia BV-2 stimolate dall'angiotensina II (Ang II), in co-colture BV-2/mHypoA-2/10 mediante fattori solubili, in una condizione in vitro di stress neuronale indotta da elevata concentrazione di sodio e in ratti con ipertensione indotta da deficienza di ossido nitrico mediante Nω-nitro-L-arginina metil estere (L-NAME). A concentrazioni non citotossiche, SJBE ha ridotto i parametri infiammatori e da stress ossidativo nelle cellule BV-2 ed è stato associato a livelli più elevati di marcatori dell'enzima convertitore dell'angiotensina 2 (ACE2), del recettore Mas (MasR) e dell'angiotensina-(1-7) [Ang-(1-7)]. Nella co-coltura, SJBE ha ridotto il trasferimento infiammatorio e lo stress neuronale. L'assunzione orale di SJBE ha ridotto le misurazioni della pressione sanguigna effettuate mediante metodo della coda e si è associata a livelli più elevati di ACE2/MasR e Ang-(1-7) nel PVN, a una minore colorazione per Iba-1 e c-Fos, nonché a livelli circolanti più bassi di noradrenalina e citochine. L'MLN-4760 ha fornito un supporto funzionale in vitro per il coinvolgimento di ACE2, ma non sono stati effettuati blocchi di via in vivo né studi farmacocinetici sulla penetrazione cerebrale. I risultati supportano quindi un'associazione tra il trattamento con SJBE, la riduzione del segnale neuroinfiammatorio e una minore pressione sanguigna, senza tuttavia dimostrare una causalità diretta lungo le vie centrali.
Introduzione
Gli estratti botanici sono oggetto di studio sempre crescente come modulatori multicomponente delle malattie vascolari e neuroimmunitarie. La loro interpretazione dipende da un'identità chiara della fonte, da un'adeguata portata analitica e da una costanza chimica. Styphnolobium japonicum (L.) Schott, storicamente noto come Sophora japonica L., fornisce il materiale di gemma fiorale essiccato noto come Flos Sophorae Immaturus o Huai Mi1,2La rutina è un importante marcatore qualitativo di questo materiale, che contiene anche altri flavonoidi bioattivi.3. Gli studi di estrazione hanno valutato approcci convenzionali e intensificati per il recupero della rutina e dei flavonoidi ad essa correlati4,5,6Uno studio recente descrive anche un processo di estrazione più ecologico della rutina da S. japonicum7. L'HPLC mirata consente una quantificazione efficiente di marcatori predefiniti, mentre per valutare la coerenza chimica complessiva e da lotto a lotto è necessario un impronta cromatografica o un profilo multicomponente; pertanto, le attuali misurazioni di rutina e quercetina non devono essere interpretate come un profilo fitochimico completo.
La rutina e la quercetina forniscono una base farmacologica plausibile per lo studio di estratti derivati da S. japonicum nell'infiammazione neurovascolare. La rutina e preparazioni a base di fiori di S. japonicum sono state associate a una riduzione del segnale infiammatorio, comprese le risposte legate a NF-kappaB e la neuroinfiammazione8. Modelli sperimentali collegano inoltre la rutina a una riduzione della neuroinfiammazione e del danno tissutale associato a NF-kappaB9. La quercetina è stata anche associata a bioattività cardiovascolare e a un miglioramento dell'equilibrio infiammatorio-redox10,11. In modelli di microglia, la quercetina può inibire l'attivazione, lo stress ossidativo e il segnale infiammatorio associato al recettore Toll-like 4 (TLR4)12,13.
L'ipertensione non è soltanto un disturbo vascolare. Anche i circuiti infiammatori centrali possono sostenere l'attività simpatica. Il nucleo paraventricolare (PVN) integra segnali neuroendocrini e autonomi che regolano il tono cardiovascolare. Si è riscontrato un legame tra le citochine microgliali nel cervello e nel PVN e l'ipertensione neurogena14, e le microglia del PVN possono percepire alterazioni emodinamiche e favorire l'eccitazione simpatica15. Queste osservazioni indicano che la comunicazione tra microglia e neuroni all'interno del PVN rappresenta un bersaglio rilevante per interventi volti a ridurre l'aumento pressorio di origine neurogena16.
Il ramo ACE2/Ang-(1-7)/recettore Mas (MasR) del sistema renina-angiotensina fornisce un percorso protettivo all'interno di questa rete centrale17,18. L'iperespressione di ACE2 nel nucleo paraventricolare (PVN) attenua l'ipertensione indotta dall'angiotensina II ed è stata associata a una riduzione della neuroinfiammazione19. La segnalazione endogena di Ang-(1-7) nel PVN modula inoltre l'attività simpatica20. L'Ang II può attivare vie redox correlate ai recettori di tipo 1 per l'angiotensina II (AT1) e ai TLR4 nelle microglia del PVN, collegando lo stress del sistema renina-angiotensina alla neuroinfiammazione21. La condizione cellulare ad alto contenuto di sodio è stata utilizzata esclusivamente come sfida da stress in vitro, non come surrogato del modello animale con L-NAME. Non è ancora chiaro se l'estratto di gemme di S. japonicum (SJBE), quantificato per rutina e quercetina mediante HPLC mirata, possa inibire l'infiammazione microgliale a questo livello di interfaccia microglia-neurone. Il presente protocollo combina la quantificazione mirata di marcatori con un co-coltura di microglia e fattori solubili, e modelli di ipertensione indotta da carenza di ossido nitrico mediante L-NAME. È concepito per un confronto basato su ipotesi di una preparazione definita di SJBE, non per un profilo fitochimico completo né per dimostrare l'esposizione cerebrale; l'esperimento con L-NAME non modella specificamente l'ipertensione neurogena mediata dal PVN. In questo studio abbiamo verificato se lo SJBE sopprima l'infiammazione microgliale indotta da Ang II, limiti la segnalazione infiammatoria nei neuroni ipotalamici e riduca la pressione arteriosa nei ratti trattati con L-NAME, e se tali effetti siano associati ai marcatori del sistema ACE2/Ang-(1-7)/MasR.
Protocollo
Tutte le procedure sugli animali sono state approvate dal Comitato di Revisione per l’Etica nella Ricerca Biomedica dell’Università di Shanxi Datong (Numero di approvazione: 2021029; periodo di validità dell'approvazione, agosto 2021 - febbraio 2024) e sono state condotte in conformità con le linee guida istituzionali per la cura e l'uso degli animali da laboratorio. I reagenti e l'equipaggiamento utilizzati sono elencati nella Tabella dei Materiali.
Materiali e reagenti
Sono stati utilizzati boccioli fiorali essiccati e non aperti di Styphnolobium japonicum (L.) Schott (sin. Sophora japonica L.; Fabaceae; Flos Sophorae Immaturus/Huai Mi). Il materiale botanico è stato autenticato mediante confronto con materiale di riferimento certificato di Sophorae Flos proveniente dagli Istituti Nazionali per il Controllo degli Alimenti e dei Farmaci (NIFDC), Pechino, Cina (n. cat. 121270; lotto n. 121270-201403), prima dell'estrazione. La rutina (98%, HPLC) e la quercetina (98%, HPLC) sono state utilizzate come standard di riferimento. Ang II, MLN-4760, L-NAME e valsartan sono stati utilizzati come indicato. Altri reagenti e attrezzature sono elencati nella Tabella dei Materiali.
Preparazione e controllo della qualità dell'estratto di gemme di S. japonicum
I boccioli floreali sono stati essiccati in forno a 80 °C fino a peso costante, macinati e setacciati attraverso un setaccio da 85 maglie. La polvere è stata sottoposta a estrazione per riflusso due volte con etanolo al 85% in un rapporto materiale-solvente di 1:20 (p/v) a 80 °C per 1,5 h per ogni estrazione. I filtrati sono stati combinati e concentrati sotto pressione ridotta a 60 °C fino a ottenere un estratto denso, precongelato a −80 °C e liofilizzato per 48–72 h. La resa di estrazione è stata calcolata come massa dell'estratto secco divisa per la massa del farmaco grezzo secco, e la polvere di SJBE aliquotata è stata conservata in condizioni che ne hanno evitato cicli ripetuti di congelamento-scongelamento o l'esposizione all'umidità.
La cromatografia liquida ad alte prestazioni (HPLC) è stata eseguita utilizzando un apparato dotato di un rivelatore a matrice di fotodiodi UV-visibile. Gli analiti sono stati separati su una colonna in fase inversa C18 (250 mm × 4,6 mm, 5 µm) con una fase mobile costante di metanolo-acqua (65:35, v/v) erogata in modo isocratico a 1,0 mL/min. La colonna è stata mantenuta a 35 °C, la rilevazione è stata impostata a 360 nm, il volume di iniezione è stato di 20 µL e il tempo di acquisizione è stato di 20 min. L'SJBE è stato preparato a 1,0 mg/mL in metanolo. Sono stati preparati sette livelli di calibrazione della rutina a 10 µg/mL, 25 µg/mL, 50 µg/mL, 100 µg/mL, 200 µg/mL, 300 µg/mL e 400 µg/mL, e sette livelli di calibrazione della quercetina a 0,5 µg/mL, 1 µg/mL, 2,5 µg/mL, 5 µg/mL, 10 µg/mL, 25 µg/mL e 50 µg/mL. Standard e campioni sono stati filtrati attraverso membrane in politetrafluoroetilene da 0,22 µm; i primi 0,5 mL del filtrato sono stati scartati e il resto è stato trasferito in vial per HPLC. Ogni livello di calibrazione è stato iniettato in duplicato e ogni preparazione di SJBE è stata iniettata in triplice replicazione. Rutina e quercetina sono state identificate confrontando i tempi di ritenzione con quelli di standard autentici entro una tolleranza del ±2% e sulla base di spettri concordanti registrati dal rivelatore a matrice di fotodiodi. Ogni marcatore è stato quantificato mediante calibrazione con standard esterno; i campioni diluiti sono stati analizzati nuovamente qualora la risposta del rivelatore fosse al di fuori del campo di calibrazione applicabile.
Prestazioni analitiche, idoneità del sistema e valutazione del lotto
La linearità è stata valutata mediante regressione ai minimi quadrati dell'area del picco in funzione della concentrazione su sette livelli specificati. La calibrazione è stata considerata accettabile quando il valore di R2 era almeno pari a 0,999 e il grafico dei residui non mostrava andamenti sistematici. Il limite di rilevabilità e il limite di quantificazione sono stati determinati a rapporti segnale-rumore di circa 3 e 10, rispettivamente. La specificità è stata dimostrata utilizzando un bianco di metanolo, una soluzione standard mista e un campione di SJBE; è stata confermata l'assenza di interferenze coeluenti e la concordanza degli spettri degli analiti con quelli dei campioni di riferimento.
La precisione dell'iniezione è stata valutata mediante sei iniezioni consecutive di uno standard misto. La precisione intra-giornaliera è stata valutata mediante sei determinazioni effettuate nello stesso giorno, mentre la precisione inter-giornaliera è stata valutata in tre giorni consecutivi. La ripetibilità è stata valutata utilizzando sei soluzioni di SJBE preparate indipendentemente, mentre la stabilità del campionatore automatico è stata valutata ai tempi 0 h, 4 h, 8 h, 12 h e 24 h. Il recupero è stato valutato all'80%, 100% e 120% del livello del marcatore nativo, utilizzando tre preparazioni arricchite indipendentemente per ciascun livello. La precisione dell'iniezione è stata considerata accettabile con una RSD dell'area del picco ≤2,0%; la precisione, la ripetibilità e la stabilità sono state considerate accettabili con una RSD ≤3,0%; il recupero medio è stato considerato accettabile tra il 95,0% e il 105,0% con una RSD del recupero ≤3,0%.
Prima di ogni sequenza analitica, lo standard misto è stato iniettato sei volte. La conformità del sistema è stata considerata accettabile quando la deviazione standard relativa (RSD) del tempo di ritenzione era ≤1,0%, la RSD dell'area del picco era ≤2,0%, la risoluzione era ≥1,5, il fattore di allungamento della coda era ≤2,0 e il numero di piatti teorici per il picco della rutina era almeno 5.000. La colonna è stata ri-equilibrata e il test di conformità del sistema è stato ripetuto ogni volta che uno dei criteri non era soddisfatto.
Sono stati preparati e analizzati tre lotti indipendenti di estratto di SJBE. Per ciascun lotto è stato registrato il cromatogramma completo a 360 nm; la rutina è stata definita come picco di riferimento; i picchi comuni riproducibili sono stati allineati e sono stati calcolati il tempo di ritenzione relativo, l'area relativa del picco e la similarità complessiva del profilo. La coerenza dell'orma digitale a livello di lotto è stata considerata accettabile quando la similarità era ≥0,90, la RSD del tempo di ritenzione relativo dei picchi comuni era ≤2,0% e la RSD dell'area relativa del picco era ≤5,0%. I contenuti di rutina e quercetina sono stati riportati per ciascun lotto, insieme alla media generale, alla deviazione standard e al coefficiente di variazione.
Coltura cellulare e trattamenti
La linea cellulare microgliale murina BV-2 e la linea cellulare neuronale ipotalamica murina mHypoA-2/10 sono state ottenute da fonti commerciali. Le cellule sono state scongelate da scorte certificate dal fornitore, espanse per due passaggi, verificate per l'identità della specie mediante un metodo PCR specifico per specie e confermate negative per micoplasma prima degli esperimenti e dopo lo scongelamento di ogni nuova provetta. Sono state utilizzate cellule comprese tra il terzo e il ventesimo passaggio.
Le cellule BV-2 e mHypoA-2/10 sono state coltivate in DMEM ad alto contenuto di glucosio integrato con siero fetale bovino al 10% e penicillina-streptomicina all'1% a 37 °C in un incubatore umidificato con 5% di CO₂. Il mezzo di coltura è stato sostituito ogni 2 d, e le cellule sono state ripassate al raggiungimento di una confluenza del 70%–80% utilizzando tripsina-EDTA allo 0,25%. Le cellule sono state seminate 24 h prima del trattamento, e gli esperimenti sono stati avviati quando le cellule avevano raggiunto una confluenza del 70%–80%.
Per la valutazione della vitalità cellulare, le cellule BV-2 sono state esposte a SJBE a concentrazioni di 0 µg/mL, 25 µg/mL, 50 µg/mL, 100 µg/mL, 200 µg/mL o 400 µg/mL per 24 h. Per gli esperimenti infiammatori, le cellule sono state preincubate con SJBE alla concentrazione specificata in figura o con rutina (50 µmol/L) per 1 h, dopodiché è stato aggiunto Ang II (100 nmol/L) senza sostituzione del mezzo per ulteriori 24 h. Per gli esperimenti di inibizione di ACE2, MLN-4760 (10 µmol/L) è stato aggiunto 30 min prima di SJBE, seguito da Ang II 1 h dopo l'aggiunta di SJBE; tutti i composti sono stati mantenuti per l'intero periodo di stimolazione di 24 h. Per gli esperimenti meccanistici successivi, SJBE è stato utilizzato alla concentrazione di 100 µg/mL. Ang II e SJBE sono stati preparati in mezzo di coltura sterile, mentre MLN-4760 e la rutina sono stati preparati come soluzioni stock in dimetilsolfossido. La concentrazione finale di dimetilsolfossido è stata mantenuta al 0,1% (v/v) in tutti i gruppi pertinenti, compreso il controllo con veicolo. Sono stati effettuati tre esperimenti indipendenti di coltura, e i pozzetti tecnici all'interno di ciascun esperimento sono stati mediati.
Saggio di vitalità cellulare
Le cellule BV-2 sono state seminate in piastre a 96 pozzetti a una densità di 5 × 10³ cellule/pozzetto e coltivate per 24 ore. Il mezzo è stato sostituito con mezzo fresco contenente 0 µg/mL, 25 µg/mL, 50 µg/mL, 100 µg/mL, 200 µg/mL oppure 400 µg/mL di SJBE. Dopo 24 ore, sono stati aggiunti 10 µL di reagente CCK-8 e le cellule sono state incubate a 37 °C per 1 ora. L'assorbanza è stata misurata a 450 nm e la vitalità cellulare è stata espressa in rapporto ai pozzetti di controllo non trattati. Preparazioni indipendenti di colture sono state utilizzate come repliche biologiche, mentre i pozzetti tecnici sono stati impiegati esclusivamente per la media all'interno di ciascun esperimento.
Rilevamento del livello di ROS
Dopo il trattamento, le cellule BV-2 sono state incubate con mezzo privo di siero contenente 10 µmol/L di DCFH-DA a 37 °C al buio per 30 min. Le cellule sono state lavate due volte con PBS, staccate, filtrate attraverso un filtro cellulare da 40 µm e risospese in PBS freddo. Sono stati acquisiti almeno 10.000 eventi singoletti per campione mediante citometria a flusso, utilizzando un'illuminazione a 488 nm e il canale di emissione FITC/530 ± 15 nm. La popolazione cellulare principale è stata selezionata in base all'area dello scattering anterogrado e laterale, le coppie cellulari sono state escluse utilizzando l'area dello scattering anterogrado rispetto all'altezza, e il limite di fluorescenza è stato stabilito mediante un controllo non colorato. Non è stata richiesta compensazione spettrale per questo saggio monocromatico. Lo stesso modello di selezione è stato applicato a tutti i campioni codificati e l'intensità media di fluorescenza è stata riportata.
Colorazione TUNEL
Dopo la co-coltura, le cellule neuronali del compartimento inferiore sono state fissate con paraformaldeide al 4% per 30 minuti, lavate tre volte con PBS e permeabilizzate con Triton X-100 allo 0,3% in PBS per 5 minuti. Sono stati aggiunti 50 µL di miscela di reazione TUNEL per pozzetto e le cellule sono state incubate a 37 °C al buio per 60 minuti. I campioni sono stati lavati tre volte, i nuclei sono stati controcolorati con DAPI a 1 µg/mL per 10 minuti e quindi montati. Per ciascuna delle cinque co-colture preparate indipendentemente per gruppo, sono stati acquisiti tre campi preselezionati e non sovrapposti a un ingrandimento di 200×, utilizzando impostazioni di esposizione identiche. I nuclei positivi al test TUNEL sono stati quantificati come percentuale rispetto ai nuclei positivi al DAPI, applicando una soglia fissa in ImageJ. I tre campi sono stati mediati per ottenere un singolo valore a livello di coltura, prima dell'analisi statistica.
Esperimento di co-coltura neurone-microglia
Inserti Transwell a 24 pozzetti con membrane in policarbonato da 0,4 µm e un'area di crescita di circa 0,33 cm2 sono stati utilizzati per modellare la comunicazione non in contatto mediata da fattori solubili. Le cellule mHypoA-2/10 sono state seminate nei pozzetti inferiori a 1 × 10⁵ cellule in 600 µL di mezzo, e le cellule BV-2 sono state seminate negli inserti a 2 × 10⁵ cellule in 100 µL di mezzo. Le cellule sono state coltivate per una notte prima del montaggio. Ang II, SJBE, MLN-4760, rutina e i relativi veicoli sono stati aggiunti al compartimento superiore delle BV-2 secondo la sequenza di trattamento descritta in precedenza. Per i gruppi aggiuntivi sottoposti a stress da sodio elevato, il NaCl è stato aggiunto al compartimento neuronale inferiore per aumentare la concentrazione finale di 30 mmol/L. Le colture co-ibride assemblate sono state mantenute per 24 ore.
Il mezzo della camera superiore e le cellule BV-2 sono stati raccolti per analisi citochiniche e di segnalazione microgliale, mentre il mezzo della camera inferiore e le cellule neuronali sono stati raccolti separatamente per analisi di Ang-(1-7), qPCR, immunoblotting e TUNEL. Una coppia inserto-camera inferiore assemblata è stata considerata un'unità sperimentale, e sono stati effettuati tre esperimenti di co-coltura indipendenti. Questa configurazione ha valutato lo scambio di fattori solubili ma non ha potuto identificare la microglia come l'unico bersaglio diretto di SJBE. Poiché non è stato incluso un controllo isoosmotico, la condizione con NaCl non ha potuto distinguere gli effetti specifici del sodio dagli effetti osmotici.
Modello animale di ipertensione
Ratti maschi Wistar, liberi da agenti patogeni specifici, di età compresa tra 6 e 8 settimane e del peso di 180–220 g, sono stati ottenuti da fornitori commerciali. Tre ratti sono stati alloggiati per gabbia a 22 °C ± 2 °C e un'umidità relativa del 50%–60%, con un ciclo luce/buio di 12 h, con libero accesso a cibo e acqua. La lettiera è stata sostituita due volte alla settimana e gli animali sono stati adattati per 7 giorni. Gli animali sono stati osservati quotidianamente e il peso corporeo è stato registrato due volte alla settimana. L'ipertensione indotta da carenza di ossido nitrico è stata indotta mediante somministrazione orale di L-NAME (40 mg/kg/giorno in CMC-Na 0,5%; 10 mL/kg) per 3 settimane. L'idoneità al modello è stata definita prima della randomizzazione come pressione arteriosa sistolica ≥140 mmHg in due misurazioni consecutive. Questo modello riproduce l'ipertensione indotta da carenza di ossido nitrico e non è specifico per l'ipertensione neurogena.
Raggruppamento, somministrazione e raccolta dei campioni
I ratti sono stati suddivisi in un gruppo di controllo normale e un gruppo modello con L-NAME. Dopo aver verificato l'idoneità al modello, i ratti ipertesi idonei sono stati assegnati ai gruppi trattati con veicolo del modello, SJBE 100 mg/kg/giorno, 200 mg/kg/giorno o 400 mg/kg/giorno, oppure valsartan 10 mg/kg/giorno. Tutte le formulazioni per sondino gastrico sono state somministrate una volta al giorno a un volume di 10 mL/kg, mentre ai gruppi di controllo è stato somministrato lo stesso volume di CMC-Na 0,5%. Il campione finale sottoposto ad analisi comprendeva sei ratti per gruppo (36 ratti in totale). Il numero iniziale di animali arruolati, i decessi e le esclusioni sono stati riportati per gruppo e per motivazione. La somministrazione giornaliera per sondino gastrico è proseguita per 6 settimane, mentre i gruppi derivati dal modello sono rimasti sotto il protocollo con L-NAME.
Alla fine dell'esperimento, i ratti sono stati anestetizzati con pentobarbital sodico (50 mg/kg, per via intraperitoneale) e la perdita del riflesso di ritrazione plantare è stata confermata. Dal'aorta addominale è stato prelevato sangue (4–6 mL) in provette con EDTA. I ratti sono stati soppressi mediante esanguinamento sotto anestesia profonda e perfusi transcardialmente con circa 200 mL di soluzione fisiologica allo 0,9% fredda di ghiaccio. I campioni di sangue sono stati centrifugati a 2.000 × g per 15 minuti a 4 °C e il plasma è stato conservato a −80 °C. I cervelli sono stati rimossi immediatamente. Utilizzando un atlante del cervello del ratto, è stato preparato un blocco coronale compreso tra circa −1,3 mm e −2,1 mm rispetto al bregma, e i nuclei paraventricolari bilaterali (PVN) sono stati microdissecati entro circa 0,3–0,6 mm lateralmente rispetto alla linea mediana e 7,4–8,2 mm in posizione ventrale rispetto alla superficie del cranio. Il tessuto è stato congelato rapidamente per le analisi di RNA e proteine oppure incluso per la preparazione di sezioni congelate da 20 µm.
Casualizzazione, occultamento della distribuzione, mascheramento e criteri di esclusione
I ratti ipertesi idonei sono stati stratificati in base al peso corporeo e alla pressione arteriosa sistolica basale e assegnati mediante una lista di randomizzazione a blocchi generata al computer, con blocchi di sei. Un ricercatore che non ha eseguito la somministrazione dei farmaci o la valutazione degli esiti ha generato la sequenza, preparato codici di gruppo sequenziali e nascosto l'elenco di assegnazione finché tutti gli animali non hanno soddisfatto i criteri di idoneità. L'animale è stato considerato l'unità sperimentale per gli endpoint di pressione arteriosa, molecolari, biochimici e istologici.
Le formulazioni per la gavaggio, le provette per i campioni, gli aliquote di tessuto, le sezioni, le immagini e le piastre per i saggi sono state etichettate con codici randomizzati di tre cifre attribuiti agli animali. I ricercatori che eseguivano le misurazioni della pressione sanguigna, la densitometria, il test ELISA, l'acquisizione delle immagini e l'analisi delle immagini erano ignari dell'assegnazione al trattamento. Il codice è stato rivelato solo al termine dei controlli di qualità predeterminati e dell'analisi primaria. Gli animali sono stati esclusi soltanto in caso di morte non correlata al trattamento, malattia grave o lesione. >Perdita di peso corporeo del 20%, fallimento della somministrazione per via orale, fallimento nell'induzione del modello, tracciati insufficienti con il metodo della fascetta caudale dopo la ripetizione della procedura, perdita del campione o accertato fallimento del saggio. Tutte le esclusioni sono state riportate per gruppo e per motivazione. Poiché non era disponibile un calcolo a priori dell'ampiezza del campione, si è considerato n = 6/gruppo come un campione esplorativo di tipo meccanicistico.
Misurazione della pressione arteriosa con metodo della coda
La pressione arteriosa è stata misurata utilizzando un sistema non invasivo con cuffia caudale in una stanza tranquilla tra le 09:00 e le 12:00. I ratti sono stati abituati per 5 giorni consecutivi posizionandoli nel contenitore di restrizione per 15 min/giorno. In ciascun giorno di misurazione, gli animali sono stati riscaldati a 33 °C ± 1 °C per 10 min, seguiti da ulteriori 5 min nel contenitore di restrizione. I primi cinque cicli di gonfiaggio-sgonfiaggio sono stati scartati e sono stati registrati 10–15 cicli aggiuntivi. Una sessione è stata considerata valida quando almeno cinque letture tecnicamente valide presentavano un coefficiente di variazione ≤10%. Il valore di pressione arteriosa per ciascun animale è stato calcolato come media delle letture valide. Quando questo criterio non veniva soddisfatto, l'animale veniva riposato per 10 min e un set di cicli veniva ripetuto. Se il criterio non veniva ancora soddisfatto, la sessione veniva ripetuta il giorno successivo e la sessione originale veniva registrata come mancante, invece di rimuovere selettivamente singole letture. Le misurazioni con la cuffia caudale fornivano stime intermittenti della pressione arteriosa e non permettevano un monitoraggio continuo mediante telemetria.
ELISA
I supernatanti di colture cellulari, i supernatanti di omogenati dell'ipotalamo paraventricolare (PVN) e il plasma sono stati processati utilizzando kit per saggio specifici per l'analita e per la specie: TNF-α murino, IL-1β murina, IL-6 murina, TNF-α ratto, IL-1β ratto, Ang-(1-7) e noradrenalina. I supernatanti cellulari sono stati chiarificati a 1.000 × g per 10 min a 4 °C. Il tessuto della PVN è stato omogenizzato nel rapporto 1:9 (p/v) in PBS ghiacciato contenente inibitori delle proteasi e centrifugato a 12.000 × g per 15 min a 4 °C. Il plasma è stato scongelato una sola volta sul ghiaccio. I reagenti sono stati portati a temperatura ambiente per 30 min. Un volume di 100 µL di standard e campioni è stato aggiunto in duplicato tecnico e incubato per 2 h a 37 °C, seguito da cinque lavaggi con 300 µL di soluzione di lavaggio. Successivamente, sono stati aggiunti 100 µL di anticorpo di rilevamento biotinilato e incubati per 1 h a 37 °C. Le piastre sono state lavate cinque volte, quindi sono stati aggiunti 100 µL di coniugato con perossidasi di rafano e incubati per 30 min a 37 °C. Dopo un ulteriore passaggio di lavaggio, sono stati aggiunti 90 µL di substrato TMB e le piastre sono state sviluppate per 15 min al buio. Sono stati quindi aggiunti 50 µL di soluzione di arresto e l'assorbanza è stata misurata a 450 nm entro 5 min utilizzando un lettore di microplacche. Le concentrazioni sono state calcolate utilizzando una curva standard logistica a quattro parametri. Le misurazioni duplicate sono state accettate quando il coefficiente di variazione era ≤15%; i campioni al di fuori del range calibrato sono stati diluiti e sottoposti nuovamente al saggio.
PCR Quantitativa in Tempo Reale
L'RNA totale è stato estratto da cellule o tessuto PVN utilizzando il reagente TRIzol. La purezza dell'RNA è stata valutata mediante il rapporto A260/A280 e 1 µg di RNA sono stati utilizzati per la sintesi di cDNA con il premix per la retrotrascrizione Evo M-MLV. Ogni reazione di qPCR da 20 µL conteneva 10 µL di master mix 2× SYBR Green, 0,4 µL di primer forward e reverse a 10 µmol/L, 2 µL di cDNA diluito e 7,2 µL di acqua priva di nucleasi. Le reazioni sono state eseguite in triplicato tecnico su un sistema di rilevamento in tempo reale per PCR. Le condizioni di ciclaggio prevedevano 95 °C per 30 s, seguiti da 40 cicli di 95 °C per 5 s e 60 °C per 30 s. Successivamente, è stata generata una curva di denaturazione da 65 °C a 95 °C con incrementi di 0,5 °C. Sono stati inclusi controlli senza stampo e senza retrotrascrizione. Un saggio è stato accettato solo quando è stato osservato un singolo picco di fusione e un'efficienza della curva standard compresa tra il 90% e il 110%. L'espressione genica relativa è stata calcolata utilizzando il metodo 2⁻ΔΔCt con Gapdh come gene di riferimento. Le sequenze dei primer utilizzate nello studio sono elencate in Tabella 1.
Western blot
Le proteine totali sono state estratte da cellule o tessuto PVN utilizzando un tampone RIPA freddo contenente inibitori della proteasi e della fosfatasi. I lisati sono stati chiarificati a 12.000 × g per 15 min a 4 °C e la concentrazione proteica è stata determinata mediante saggio BCA. Sono stati caricati 30 µg di proteina per pozzetto su un gel di poliacrilamide SDS all'8%–12%, scelto in base al peso molecolare della proteina bersaglio, e trasferiti su una membrana in PVDF da 0,45 µm a 300 mA per 90 min su ghiaccio. Le membrane sono state bloccate per 1 h a temperatura ambiente con albumina sierica bovina al 5% per le fosfoproteine o con latte scremato al 5% per gli altri bersagli. Gli anticorpi primari sono stati incubati tutta la notte a 4 °C alle diluizioni specificate nella Tabella dei materiali, inclusi l'anticorpo anti-CREB totale. Le membrane sono state lavate tre volte per 10 min con TBST e incubate con l'anticorpo secondario coniugato con perossidasi di rafano (1:5.000) per 1 h a temperatura ambiente, seguito da ulteriori lavaggi. Le bande sono state rilevate mediante chemiluminescenza migliorata utilizzando esposizioni non saturate. La densità delle bande è stata quantificata utilizzando ImageJ. Le fosfoproteine sono state normalizzate rispetto alla corrispondente proteina totale, mentre le altre proteine bersaglio sono state normalizzate rispetto a GAPDH.
Colorazione mediante immunofluorescenza
Sezioni congelate coronali (20 µm) attraverso il nucleo paraventricolare (PVN) sono state preparate da circa −1,3 a −2,1 mm rispetto alla bregma. Per ciascun ratto sono state selezionate tre sezioni anatomicamente corrispondenti a intervalli di 120 µm. Le sezioni sono state equilibrate per 20 min a temperatura ambiente, lavate tre volte con PBS, quindi bloccate e permeabilizzate con Triton X-100 allo 0,3% e siero di capra al 5% per 1 h. Le sezioni sono state incubate con l'anticorpo primario Iba-1 o c-Fos durante la notte a 4 °C, lavate e successivamente incubate con l'anticorpo secondario fluorescente appropriato per 1 h a temperatura ambiente al buio. I nuclei sono stati contrastati con DAPI per 10 min. Le immagini bilaterali del PVN sono state acquisite a un ingrandimento di 200× mediante un microscopio a fluorescenza invertito, mantenendo costanti i parametri di esposizione e guadagno per ciascun marcatore. È stata applicata una soglia predeterminata di ImageJ a immagini codificate e quantificata l'area positiva per Iba-1 o i nuclei positivi per c-Fos. Le misurazioni provenienti dalle tre sezioni sono state mediate per ottenere un singolo valore per animale.
Sicurezza e smaltimento dei rifiuti
Metanolo, etanolo, paraformaldeide, DCFH-DA, reagenti per elettroforesi e tessuti animali sono stati manipolati in conformità con le procedure istituzionali per la sicurezza chimica e biologica. I solventi volatili e la paraformaldeide sono stati manipolati all'interno di una cappa chimica certificata, indossando l'adeguata attrezzatura di protezione individuale. I rifiuti contenenti solventi organici alogenati e quelli contenenti formaldeide sono stati separati, i rifiuti biologici sono stati decontaminati, mentre aghi e carcasse animali sono stati smaltiti attraverso canali istituzionali approvati. Le categorie locali di rifiuti e le procedure di emergenza sono state verificate prima dell'utilizzo.
Analisi statistica
I dati sono stati presentati come media ± deviazione standard e analizzati mediante software statistici e grafici. Ogni preparazione indipendente di colture o animale è stata utilizzata come unità sperimentale biologica, e i pozzetti tecnici, i campi o le misurazioni ripetute sono stati mediati all'interno di ciascuna unità prima dell'inferenza statistica. Le assunzioni sulla distribuzione e i modelli di varianza sono stati valutati prima delle analisi parametriche. I set di dati con endpoint multipli sono stati analizzati mediante analisi della varianza ad un fattore seguita da confronti multipli corretti con il metodo di Tukey. La pressione arteriosa sistolica longitudinale è stata descritta come media ± deviazione standard, e gli esiti finali della pressione arteriosa sono stati analizzati mediante analisi della varianza ad un fattore con correzione di Tukey. Sono stati riportati i valori p aggiustati, le differenze medie e gli intervalli di confidenza al 95%. Un valore p bilaterale < 0,05 è stato considerato statisticamente significativo, e tutte le esclusioni e i valori mancanti sono stati dichiarati.
Risultati
SJBE quantificato mediante HPLC mirato inibisce l'infiammazione microgliale indotta da Ang II
L'estrazione con etanolo in riflusso ha prodotto la polvere di SJBE pari al 25,5 ± 0,7% del materiale iniziale (Figura 1A). L'analisi HPLC mirata ha quantificato rutina e quercetina rispettivamente a 276,1 mg/g ± 9,2 mg/g e 12,5 mg/g ± 0,9 mg/g (Figura 1B), fornendo una caratterizzazione quantitativa basata su marcatori della preparazione di SJBE utilizzata in tutti gli esperimenti biologici.
SJBE non ha mostrato alcun effetto rilevabile sulla vitalità cellulare di BV-2 a concentrazioni fino a 200 µg/mL, mentre si è osservata una riduzione significativa della vitalità a 400 µg/mL (Figura 1C). Sulla base di questi risultati, è stata selezionata la concentrazione di 100 µg/mL per successivi esperimenti meccanicistici. L'Ang II ha notevolmente aumentato il rilascio di TNF-α e IL-1β dalle cellule BV-2, mentre SJBE ha ridotto entrambe le citochine infiammatorie nell'intero intervallo di concentrazioni non citotossiche testato (Figura 1D,E), indicando un effetto antinfiammatorio dipendente dalla concentrazione in presenza di stimolazione con Ang II.
SJBE è associato a marcatori ACE2/MasR più elevati e a una minore segnalazione NF-κB e stress ossidativo
La stimolazione con Ang II ha ridotto l'espressione di ACE2 e MasR sia a livello proteico che di mRNA ed è stata accompagnata da un aumento della fosforilazione di NF-κB p65. Il trattamento con SJBE ha invertito questi effetti, aumentando l'espressione di ACE2 e MasR e riducendo la fosforilazione di p65 (Figura 2A–E).
In linea con questi cambiamenti molecolari, SJBE ha ridotto le concentrazioni di TNF-α da 135 pg/mL ± 12 pg/mL a 55 pg/mL ± 6 pg/mL e quelle di IL-1β da 102 pg/mL ± 10 pg/mL a 42 pg/mL ± 5 pg/mL nei soprannatanti di colture stimolate con Ang II. L'aggiunta dell'inibitore ACE2 MLN-4760 ha notevolmente attenuato questi effetti, con un aumento delle concentrazioni di TNF-α e IL-1β rispettivamente a 125 pg/mL ± 11 pg/mL e 95 pg/mL ± 9 pg/mL. Il trattamento con rutina ha riprodotto in parte la risposta anti-infiammatoria osservata con l'estratto completo (Figura 2F).
SJBE ha inoltre notevolmente ridotto la fluorescenza intracellulare di DCFH-DA dopo la stimolazione con Ang II, indicando una minore accumulazione di specie reattive dell'ossigeno intracellulari. Questa riduzione è stata attenuata da MLN-4760 (Figura 2G,H). Nel complesso, questi risultati indicano che gli effetti antinfiammatori e antiossidanti di SJBE in cellule BV-2 stimolate con Ang II sono accompagnati dal ripristino della segnalazione ACE2/MasR ed è sensibile all'inibizione farmacologica di ACE2.
SJBE limita il trasferimento infiammatorio dai microglia ai neuroni ipotalamici
Per verificare se gli effetti antinfiammatori di SJBE influenzano la comunicazione microglia-neuroni, le cellule BV-2 e i neuroni ipotalamici mHypoA-2/10 sono stati coltivati in un sistema Transwell senza contatto diretto. La stimolazione con Ang II ha aumentato le concentrazioni di TNF-α e IL-1β nel sistema di co-coltura, mentre SJBE ha ridotto il TNF-α da 150 ± pg/mL 15 pg/mL a 65 pg/mL ± 8 pg/mL e l'IL-1β da 110 pg/mL ± 12 pg/mL a 48 pg/mL ± 6 pg/mL (Figura 3A). L'Ang II ha inoltre ridotto l'espressione di Ace2 e Mas1, entrambe ripristinate verso i livelli di controllo dopo il trattamento con SJBE (Figura 3B).
Sono state osservate modifiche corrispondenti nei neuroni ipotalamici coltivati nella camera inferiore. L'esposizione all'ambiente di co-coltura stimolato dall'Ang II ha aumentato l'espressione di c-Fos e COX-2 e alterato l'espressione di Avp e Oxtr, mentre SJBE ha attenuato tali risposte (Figura 3C–G). Il profilo protettivo è stato ridotto da MLN-4760, ulteriormente collegando l'attività di ACE2 agli effetti osservati nel sistema di co-coltura.
Questi risultati dimostrano che SJBE sopprime l'ambiente infiammatorio generato in seguito alla stimolazione con Ang II ed è associato a una ridotta attivazione delle risposte neuronali ipotalamiche a valle nel modello Transwell.
SJBE è associato alla segnalazione di Ang-(1-7) e a un ridotto danno neuronale in condizioni di stress combinato da alto sodio e Ang II
L'esposizione ad Ang II ha ridotto le concentrazioni di Ang-(1-7) nel surnatante della coltura condivisa e aumentato il rapporto fosfo-CREB/CREB nei neuroni. Il trattamento con SJBE ha aumentato l'Ang-(1-7) e ridotto la fosforilazione di CREB verso livelli di controllo (Figura 4A–C), in accordo con il ripristino del profilo di segnalazione associato ad ACE2/Ang-(1-7)/MasR osservato negli esperimenti precedenti.
Sotto stimolazione combinata con NaCl 30 mmol/L e Ang II, i neuroni ipotalamici hanno mostrato un'espressione aumentata di Avp e una maggiore proporzione di cellule positive al TUNEL. SJBE ha attenuato in modo significativo entrambe le risposte (Figura 4D–F), indicando una riduzione dello stress neuronale e del danno in condizioni di sfida combinata. Per l'analisi TUNEL, ogni valore rappresenta una coltura co-impiegata preparata in modo indipendente, con la media di tre campi microscopici calcolata all'interno di ciascun replicato biologico prima dell'analisi statistica (n = 5 per gruppo).
SJBE riduce la pressione arteriosa misurata con il metodo della coda e si associa a livelli più elevati di marcatori ACE2/Ang-(1-7)/MasR nel nucleo paraventricolare (PVN) nei ratti trattati con L-NAME
L'amministrazione giornaliera di L-NAME ha determinato un aumento progressivo della pressione arteriosa sistolica durante l'induzione del modello. Dopo l'instaurazione dell'ipertensione, il trattamento con SJBE ha ridotto settimanalmente la pressione arteriosa misurata con il metodo della coda in cinque settimane successive, con la risposta più pronunciata osservata nel gruppo ad alta dose (Figura 5A).
All'endpoint dello studio, la pressione arteriosa sistolica era di 165 ± 8 mmHg nel gruppo modello L-NAME rispetto a 115 ± 5 mmHg nei ratti di controllo. L'assunzione di SJBE ad alta dose ha ridotto la pressione arteriosa sistolica a 130 ± 6 mmHg. La pressione arteriosa diastolica è diminuita da 110 ± 6 mmHg a 85 ± 4 mmHg, mentre la pressione arteriosa media si è ridotta da 128 ± 7 mmHg a 100 ± 5 mmHg dopo il trattamento con SJBE ad alta dose (tutti i valori aggiustati p < 0,0001 rispetto al gruppo modello; Figura 5B). Questi risultati dimostrano una risposta antipertensiva sostenuta a SJBE durante il periodo di intervento.
L'analisi del tessuto del nucleo paraventricolare (PVN) ha rivelato cambiamenti molecolari paralleli. Il trattamento con L-NAME ha ridotto l'espressione proteica di ACE2 e MasR nonché le concentrazioni di Ang-(1-7), mentre SJBE ha ripristinato tutti e tre i marcatori in modo dose-dipendente. Nel gruppo ad alta dose, ACE2 è aumentato da 0,40 ± 0,07 a 1,50 ± 0,18 volte l'espressione relativa, MasR da 0,45 ± 0,08 a 1,35 ± 0,16 volte, e Ang-(1-7) da 9 pg/mg ± 2 pg/mg a 32 pg/mg ± 5 pg/mg di proteina rispetto al gruppo modello (Figura 5C–E). Pertanto, l'effetto ipotensivo di SJBE è stato accompagnato dal ripristino del profilo molecolare associato al sistema ACE2/Ang-(1-7)/MasR all'interno del PVN.
SJBE è associata a una minore attivazione infiammatoria del nucleo paraventricolare (PVN) e a ridotti marcatori dell'attività simpatica sistemica
L'ipertensione indotta da L-NAME è stata accompagnata da una marcata attivazione infiammatoria all'interno del nucleo paraventricolare (PVN). I livelli di mRNA di Tnf e Il1b erano aumentati nei ratti del modello, mentre l'elevata dose di SJBE ha ridotto l'espressione di Tnf da 4,5 ± 0,5 a 1,8 ± 0,2 volte e l'espressione di Il1b da 3,8 ± 0,4 a 1,6 ± 0,18 volte (Figura 6A).
L'analisi di immunofluorescenza ha mostrato cambiamenti cellulari concordanti. La colorazione per Iba-1, indicativa dell'attivazione microgliale, era aumentata nel nucleo paraventricolare (PVN) dei ratti trattati con L-NAME e ridotta dopo la somministrazione di SJBE. La colorazione per c-Fos ha mostrato un andamento simile, con una minore attivazione neuronale dopo il trattamento con SJBE rispetto al gruppo modello non trattato (Figura 6B–D).
Questi cambiamenti infiammatori centrali sono stati accompagnati da miglioramenti nei marcatori infiammatori e simpatici circolanti. Le concentrazioni plasmatiche di TNF-α e IL-1β erano elevate nei ratti del modello e significativamente ridotte dopo il trattamento con SJBE. Nel gruppo ad alta dose, il TNF-α è diminuito da 45 pg/mL ± 6 pg/mL a 20 pg/mL ± 3 pg/mL e l'IL-1β da 35 pg/mL ± 5 pg/mL a 15 pg/mL ± 3 pg/mL (Figura 6E). La noradrenalina plasmatica è diminuita in modo simile, da 400 pg/mL ± 45 pg/mL a 180 pg/mL ± 25 pg/mL (Figura 6F).
Nel complesso, questi risultati in vivo mostrano che il trattamento con SJBE riduce la pressione sanguigna nei ratti trattati con L-NAME in parallelo con il ripristino dei marcatori associati a ACE2/Ang-(1-7)/MasR nel nucleo paraventricolare (PVN), l'attenuazione dell'attivazione infiammatoria del PVN e la riduzione delle citochine infiammatorie e della noradrenalina circolanti.
DISPONIBILITÀ DEI DATI:
I dati numerici di origine sottostanti alle figure e alle relative uscite statistiche sono forniti in File Supplementare 1.
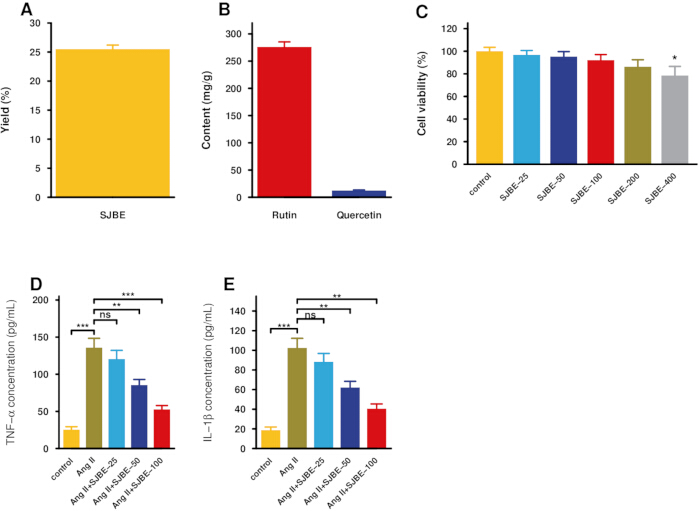
Figura 1: Quantificazione mirata mediante HPLC e primi esperimenti su BV-2. (A) Resa di estrazione. (B) Contenuto di rutina e quercetina in SJBE quantificato mediante HPLC mirata. (C) Vitalità delle cellule BV-2 dopo 24 ore di esposizione a SJBE. (D,E) TNF-α e IL-1β nei supernatanti di BV-2 stimolati con Ang II. I dati sono espressi come media ± DS; n = 3 esperimenti indipendenti per i pannelli quantitativi disponibili. È stato utilizzato il test ANOVA a una via con confronti aggiustati secondo Tukey. Abbreviazioni: ns, non significativo; *p < 0,05, **p < 0,01, ***p < 0,001, ****p < 0,0001. Cliccare qui per visualizzare una versione ingrandita di questa figura.
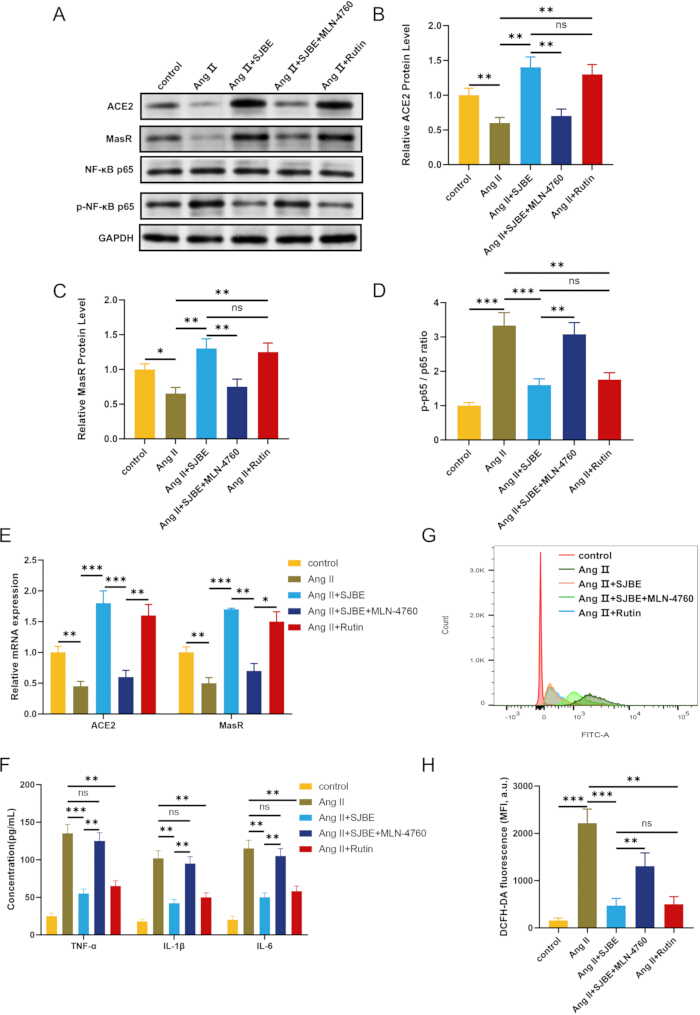
Figura 2: SJBE è associato a marker più elevati di ACE2/MasR e a una minore segnalazione di NF-κB e stress ossidativo nelle cellule BV-2. (A–D) Immunoblot e quantificazione di ACE2, MasR, p65 fosforilato e p65 totale. (E) mRNA di Ace2 e Mas1. (F) TNF-α, IL-1β e IL-6. (G,H) Output della citometria a flusso per ROS e quantificazione della fluorescenza. I dati sono espressi come media ± DS; n = 3 esperimenti indipendenti. È stata utilizzata l'ANOVA a un fattore con confronti aggiustati con il metodo di Tukey. ns, non significativo; *p < 0,05, **p < 0,01, ***p < 0,001, ****p < 0,0001. Cliccare qui per visualizzare una versione ingrandita di questa figura.
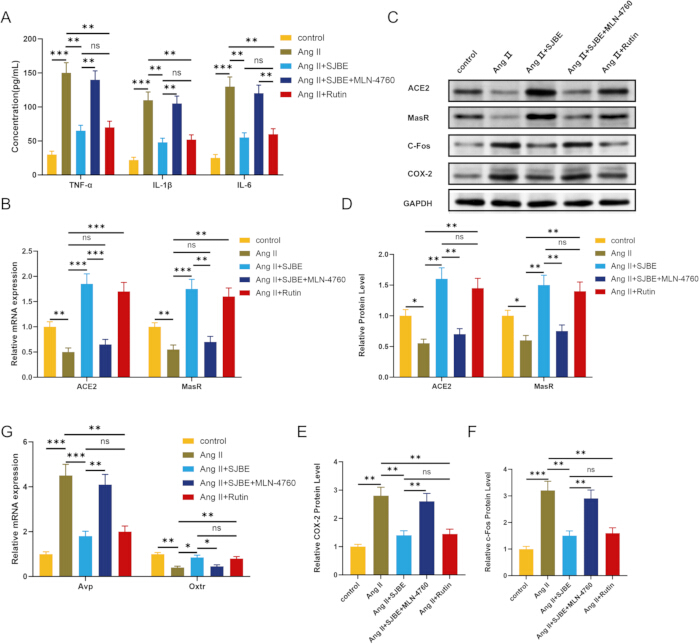
Figura 3: SJBE limita il segnale infiammatorio in un modello di co-coltura a fattori solubili BV-2/mHypoA-2/10. (A) Citochine nel supernatante della co-coltura. (B) mRNA di Ace2 e Mas1. (C–F) Immunoblot e quantificazione di ACE2, MasR, c-Fos e COX-2. (G) Espressione di Avp e Oxtr nei neuroni della camera inferiore. I dati sono espressi come media ± DS; n = 3 esperimenti indipendenti. È stata utilizzata l'analisi della varianza unidirezionale (ANOVA) con confronti aggiustati con il metodo di Tukey. ns, non significativo; *p < 0,05, **p < 0,01, ***p < 0,001, ****p < 0,0001. Cliccare qui per visualizzare una versione ingrandita di questa figura.
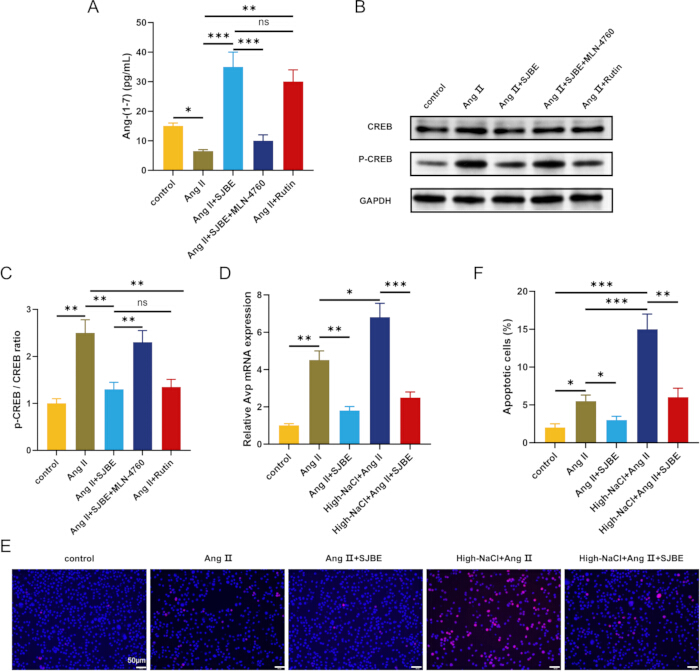
Figura 4: SJBE è associato al segnale di Ang-(1-7) e a un minor danno neuronale legato allo stress. (A) Ang-(1-7) nel soprannatante della co-coltura. (B,C) CREB fosforilato e CREB totale nei neuroni della camera inferiore. (D) Avp nelle condizioni combinate di stress da NaCl/Ang II. (E,F) Rappresentazione di immagini TUNEL e relativa quantificazione; barra della scala, 50 µm. I dati sono espressi come media ± DS; n = 3 esperimenti indipendenti per i pannelli A, C e D; n = 5 preparazioni indipendenti di co-coltura per il pannello F, con tre campi mediati per ogni preparazione. È stata utilizzata l'analisi della varianza unidirezionale (ANOVA) con confronti aggiustati con il metodo di Tukey. ns, non significativo; *p < 0,05, **p < 0,01, ***p < 0,001, ****p < 0,0001. Cliccare qui per visualizzare una versione ingrandita di questa figura.
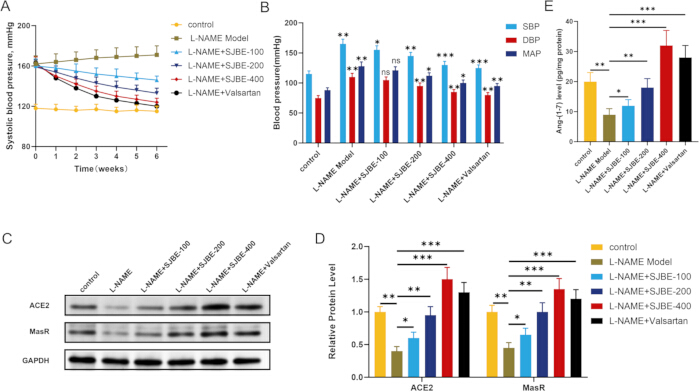
Figura 5: SJBE riduce la pressione sanguigna misurata alla coda ed è associato a livelli più elevati di marcatori ACE2/Ang-(1-7)/MasR nel nucleo paraventricolare (PVN) nei ratti trattati con L-NAME. (A) Pressione sistolica longitudinale. (B) Pressione sistolica, diastolica e media arteriosa al termine dell'esperimento. (C,D) Immunoblot e quantificazione di ACE2 e MasR nei tessuti del PVN. (E) Ang-(1-7) negli omogenati del PVN. I dati sono espressi come media ± DS; n = 6 ratti/gruppo. La pressione sistolica longitudinale è riportata in forma descrittiva; per le misurazioni finali è stata utilizzata l'analisi della varianza ad un fattore (ANOVA) con confronti corretti secondo Tukey. ns, non significativo; *p < 0,05, **p < 0,01, ***p < 0,001, ****p < 0,0001. Cliccare qui per visualizzare una versione ingrandita di questa figura.
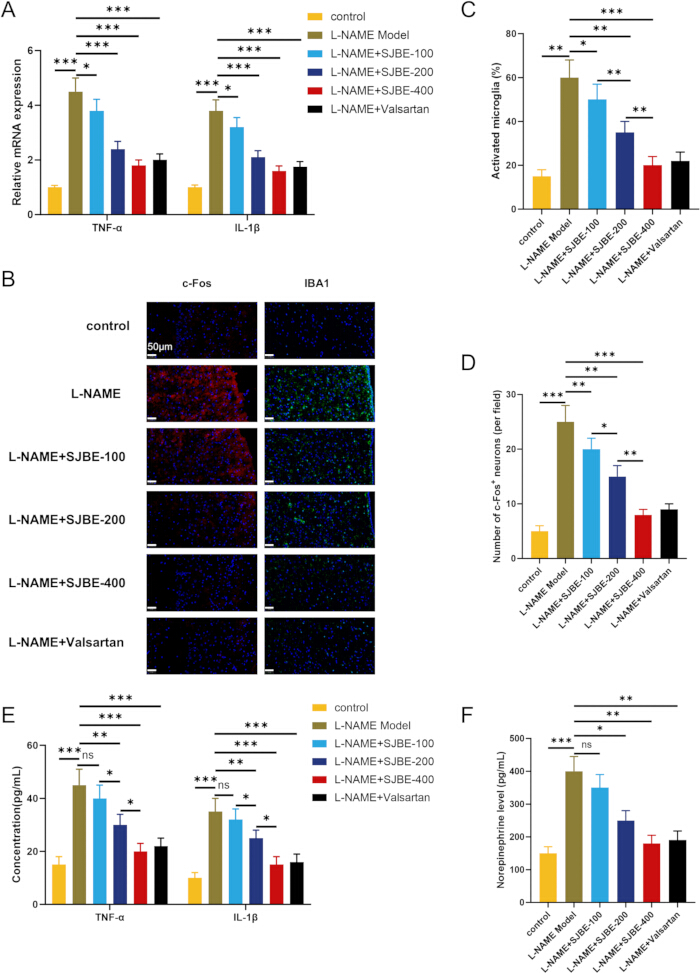
Figura 6: SJBE è associato a una riduzione dell'attivazione infiammatoria nel nucleo paraventricolare (PVN) e dei marcatori dell'output simpatico sistemico nei ratti trattati con L-NAME. (A) mRNA di Tnf e Il1b nel tessuto del PVN. (B–D) Immunofluorescenza e quantificazione di Iba-1 e c-Fos; barre della scala, 50 µm. (E) TNF-α e IL-1β plasmatici. (F) Noradrenalina plasmatica. I dati sono espressi come media ± DS; n = 6 ratti/gruppo. È stata utilizzata l'analisi della varianza unidirezionale (ANOVA) con confronti aggiustati con il metodo di Tukey. *p < 0,05, **p < 0,01, ***p < 0,001, ****p < 0,0001. Cliccare qui per visualizzare una versione ingrandita di questa figura.
| Gene | Primer diretto (5'-3') | Primer inverso (5'-3') |
| Gapdh | CACCCACTCCTCCACCTTTGAC | GTCCACCACCCTGTTGCTGTAG |
| Tnf | CCTGCTGCACTTTGGAGTGA | GCTTGAGGGTTTGCTACAACA |
| Il1b | CAGTGAGGAGAATGACCTGTTC | CGAGATGCTGCTGTGAGATT |
| Ace2 | TCCATTGGTCTTCTGCCATCCG | AGACCATCCACCTCCACTTCTC |
| Mas1 | TCCACCATCAATAGCAGCG | AAGCCACCCACATTCAGGC |
| Avp | TCGCCATGATGCTCAACACTACGC | ACACTGTCTCAGCTCCATGTCGGATG |
| Oxtr | GTGTCGAGTTGGACCTCGGG | CCAGGAACAGAATGAGGCACAG |
Tabella 1: Sequenze dei primer utilizzate nello studio.
File supplementare 1: I dati numerici di origine alla base delle figure e le relative uscite statistiche. Cliccare qui per scaricare questo file.
Discussione
Questo studio associa l'estratto di gemma di S. japonicum quantificato mediante HPLC mirato a una riduzione del segnale infiammatorio nei modelli di co-coltura di microglia e fattori solubili, nonché a una minore pressione arteriosa misurata con il metodo della cuffia caudale in ratti trattati con L-NAME. Nei diversi sistemi sperimentali, il trattamento con SJBE è stato associato a un aumento dei marcatori ACE2/Ang-(1-7)/MasR, a una riduzione dell'attivazione di NF-κB e dello stress ossidativo, e a una diminuzione dei marcatori di attivazione infiammatoria nel nucleo paraventricolare (PVN). Queste osservazioni convergenti sostengono un'ipotesi di tipo neuroimmunitario, ma non dimostrano che la via centrale media l'effetto antipertensivo.
I risultati sono coerenti con quanto riportato in letteratura riguardo al fatto che i costituenti floreali di S. japonicum e la rutina riducono i segnali infiammatori e la neuroinfiammazione8,9,22, e con le evidenze che il quercetina modula il tono infiammatorio cardiovascolare e il segnale redox delle microglia12,13. Il presente studio estende tali osservazioni a modelli neuroimmunitari ipotalamici utilizzando un estratto botanico completo. Poiché MLN-4760 ha attenuato la risposta protettiva solo in vitro, l'ACE2 deve essere interpretata meglio come un contributo funzionale alla risposta antinfiammatoria cellulare piuttosto che come mediatore accertato dell'effetto sulla pressione sanguigna in vivo.
I risultati relativi al nucleo paraventricolare collocano le osservazioni cellulari all'interno di una regione deputata al controllo cardiovascolare. Studi precedenti hanno dimostrato che le microglia e le citochine infiammatorie contribuiscono all'ipertensione neurogena e all'eccitazione simpatica23,24. Il segnale dell'Ang-(1-7) all'interno del nucleo paraventricolare può regolare l'attività simpatica in uscita, mentre l'Ang II può indurre stress redox microgliale dipendente dai recettori AT1/TLR420,21. Di conseguenza, la riduzione di Iba-1, c-Fos, citochine infiammatorie e noradrenalina plasmatica dopo il trattamento con SJBE è coerente con una minore attivazione infiammatoria nel nucleo paraventricolare, ma i dati non permettono di stabilire se tali modifiche siano la causa della riduzione della pressione arteriosa o se seguano un miglioramento sistemico.
I modelli Ang II e L-NAME forniscono contesti di stress complementari piuttosto che meccanismi di malattia identici. La stimolazione con Ang II induce un'infiammazione microgliale mediata dal sistema renina-angiotensina, mentre il modello con L-NAME riproduce l'ipertensione da carenza di ossido nitrico, con disfunzione vascolare e stress ossidativo25,26. Altri modelli implicano comunque l'attivazione della microglia nel nucleo paraventricolare (PVN) nella regolazione simpatica14,27, ma lo studio attuale con L-NAME non è specifico per l'ipertensione neurogena guidata dal PVN. La condizione di co-coltura ad alto contenuto di sodio è stata una sfida allo stress neuronale in vitro senza un controllo isoosmotico e non deve essere interpretata come un modello in vivo di ipertensione da sale.
Per un'applicazione riproducibile, i passaggi più critici sono la documentazione della fonte botanica, l'estrazione e lo stoccaggio costanti, la densità cellulare standardizzata e i tempi di trattamento, l'assegnazione corretta dei compartimenti Transwell, l'abituazione e il riscaldamento del collare caudale, il campionamento accurato del nucleo paraventricolare (PVN) e la quantificazione finale in cieco. Un resa variabile nell'estrazione dovrebbe indurre a verificare l'umidità del materiale, il rapporto tra i solventi, le condizioni di riflusso, la filtrazione e la liofilizzazione; spostamenti nel tempo di ritenzione in HPLC dovrebbero indurre a verificare la preparazione degli standard, la fase mobile, la velocità di flusso, la temperatura, l'equilibrazione della colonna e la validazione del sistema. Risultati inconsistenti nei co-coltura o con il collare caudale dovrebbero essere affrontati verificando l'integrità dell'inserto e la collocazione del trattamento oppure ripetendo un'abituazione standardizzata, piuttosto che escludendo selettivamente alcune misurazioni. Tecniche alternative adeguate per domande al di fuori del presente protocollo includono il fingerprinting cromatografico o LC-MS/MS, disegni di co-coltura primari o selettivi per tipo cellulare, telemetria, farmacocinetica cerebrale/plasmatica e esperimenti di perdita di funzione del recettore ACE2/MasR a livello centrale. L'evolvente ricerca interdisciplinare sui rimodellamenti del microambiente neuronale e sull'integrazione di imaging e intelligenza artificiale illustra direzioni metodologiche più ampie per l'analisi di sistemi biologici complessi28,29.
Diversi limiti definiscono l'ambito di applicazione. MLN-4760 ha fornito soltanto evidenze funzionali in vitro; non sono state effettuate misurazioni di blocco di ACE2/MasR in vivo né valutazioni dell'esposizione nel plasma, nel cervello o nel nucleo paraventricolare. La concentrazione di 100 µg/mL è pertanto una concentrazione operativa in vitro non citotossica e non corrisponde a un'esposizione equivalente in vivo. Il disegno sperimentale con Transwell non permette di dimostrare un'azione specifica sulle microglia, e il piccolo numero di animali, non calibrato prospetticamente per la potenza statistica, limita la precisione. Le misurazioni mediante cintura caudale sono intermittenti e sensibili al contenimento. Infine, la quantificazione mirata di rutina e quercetina non stabilisce un profilo chimico, una completa validazione analitica, l'attribuzione dei costituenti o la coerenza tra lotti indipendenti. Entro questi limiti, il protocollo supporta la generazione di ipotesi riguardo a SJBE, al segnale neuroinfiammatorio e alla regolazione della pressione sanguigna, piuttosto che affermazioni definitive di tipo causale o traslazionale.
Dichiarazioni
Gli autori dichiarano di non avere interessi concorrenti.
Ringraziamenti
Gli autori ringraziano per il supporto istituzionale e tecnico associato ai laboratori partecipanti.
Finanziamento:
Questo lavoro è stato sostenuto dal National Natural Science Foundation of China (n. 82600861); dal Progetto Giovani del Programma di Ricerca Fondamentale della Provincia di Shanxi (nn. 202203021212491, 202303021222205); dal Progetto Generale del Programma di Ricerca Fondamentale della Provincia di Shanxi (n. 202203021221210); e dal Progetto di Avvio della Ricerca Dottorale dell'Università di Shanxi Datong (n. 2018-B-36).
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| Inserti Transwell da 0,4 µm | Corning Incorporated | 3413 | Inserti con membrana in policarbonato da 24 pozzetti per co-coltura non in contatto di BV-2/mHypoA-2/10 |
| Anticorpo ACE2 | Cell Signaling Technology | 92485; RRID: AB_3741093 | ACE2 (E5O6J) mAb coniglio; WB 1:1.000; IHC/IF 1:100–1:200 |
| Alexa Fluor 488 anti-coniglio IgG | Cell Signaling Technology | 4412; RRID: AB_1904025 | Anticorpo secondario per immunofluorescenza; 1:500 |
| Alexa Fluor 594 anti-coniglio IgG | Cell Signaling Technology | 8889; RRID: AB_2716249 | Anticorpo secondario per immunofluorescenza; 1:500 |
| Angiotensina II | Sigma-Aldrich | A9525 | Peptide sintetico di Ang II; stimolazione dei microglia |
| Kit per saggio Angiotensina-(1-7) | Cloud-Clone Corp. | CES085Mi | Quantificazione di Ang-(1-7) |
| Kit per saggio proteico BCA | Beyotime Biotechnology | P0012 | Quantificazione delle proteine |
| Cellule BV-2 | Procell Life Science & Technology Co., Ltd. | CL-0493; RRID: CVCL_0182 | Linea cellulare di microglia murina; passaggi 3–20 |
| Colonna HPLC C18 | Shimadzu Corporation | Shim-pack GIST C18; P/N 227-30017-08 | 250 × 4,6 mm, 5 µm; metanolo–acqua (65:35, v/v), 1,0 mL/min, 35 °C |
| Reagente CCK-8 | Beyotime Biotechnology | C0038 | Saggio di vitalità cellulare |
| Anticorpo c-Fos | Cell Signaling Technology | 2250; RRID: AB_2247211 | c-Fos (9F6) mAb coniglio; WB 1:1.000; IF 1:200 |
| Anticorpo COX-2 | Cell Signaling Technology | 12282; RRID: AB_2571729 | COX-2 (D5H5) mAb coniglio; WB 1:1.000; IHC/IF 1:200 |
| Probo DCFH-DA | Beyotime Biotechnology | S0033S | Rilevamento delle ROS mediante citometria a flusso |
| DMEM, alto contenuto di glucosio | Gibco/Thermo Fisher Scientific | 11965092 | Mezzo di coltura cellulare |
| Kit premiscelato per trascrizione inversa Evo M-MLV | Accurate Biotechnology | AG11706 | Sintesi del cDNA per qPCR |
| Siero fetale bovino | Gibco/Thermo Fisher Scientific | 10099141 | Supplemento per coltura cellulare |
| Citometro a flusso | BD Biosciences | BD Accuri C6 Plus | Acquisizione della fluorescenza delle ROS |
| Microscopio a fluorescenza | Olympus/Evident Scientific | IX73 | Microscopio a fluorescenza invertito per imaging TUNEL e PVN |
| Anticorpo GAPDH | Cell Signaling Technology | 5174; RRID: AB_10622025 | GAPDH (D16H11) mAb coniglio; WB 1:1.000–1:5.000 |
| Siero di capra | Beyotime Biotechnology | C0265 | Reagente bloccante per immunofluorescenza |
| Sistema HPLC | Shimadzu Corporation, Kyoto, Giappone | Prominence LC-20A | Saggio di controllo qualità mirato per rutina/quercetina |
| Anticorpo secondario anti-topo IgG coniugato a HRP | Cell Signaling Technology | 7076; RRID: AB_330924 | Anticorpo secondario per Western blot; 1:3.000–1:5.000 |
| Anticorpo secondario anti-coniglio IgG coniugato a HRP | Cell Signaling Technology | 7074; RRID: AB_2099233 | Anticorpo secondario per Western blot; 1:3.000–1:5.000 |
| Anticorpo Iba-1/AIF-1 | Cell Signaling Technology | 17198; RRID: AB_2820254 | Iba-1/AIF-1 (E4O4W) mAb coniglio; WB 1:1.000; IHC/IF 1:200 |
| Kit ELISA per IL-6 | Beyotime Biotechnology | PY2782 | Quantificazione dell'IL-6 murino |
| L-NAME | Beyotime Biotechnology | S0006 | Inibitore della NOS per ipertensione da carenza di ossido nitrico |
| Ratti Wistar maschi | Beijing HFK Bioscience Co., Ltd. | Wistar; SCXK (Jing) 2019-0008 | Maschi specific-pathogen-free, 6–8 settimane, 180–220 g |
| Anticorpo MasR | Alomone Labs | AAR-013; RRID: AB_2039972 | Anticorpo anti-recettore Mas; WB 1:200; IHC/IF 1:100 |
| Cellule mHypoA-2/10 | Cedarlane Laboratories Ltd. | CLU176; RRID: CVCL_D384 | Linea cellulare neuronale ipotalamica murina; passaggi 3–20 |
| Lettore per microtiter | Thermo Scientific | Multiskan FC; Cat. No. 51119000 | Misurazioni di assorbanza per CCK-8 ed ELISA |
| MLN-4760 | Beyotime Biotechnology | SF1197 | Inibitore dell'ACE2; 10 µmol/L negli esperimenti cellulari |
| Kit ELISA per IL-1β murina | Invitrogen/Thermo Fisher Scientific | 88-7013A-88 | Quantificazione dell'IL-1β murina |
| Kit ELISA per TNF-α murino | Beyotime Biotechnology | PT512 | Quantificazione del TNF-α murino |
| Anticorpo NF-κB p65 | Cell Signaling Technology | 8242; RRID: AB_10859369 | NF-κB p65 (D14E12) XP mAb coniglio; WB 1:1.000 |
| Sistema non invasivo per misurazione della pressione arteriosa tramite coda | Visitech Systems | BP-2000-R-4 | Sistema per acquisizione della pressione arteriosa e riscaldamento tramite cintura caudale nei ratti |
| Kit per saggio della noradrenalina | Cloud-Clone Corp. | HEA907Ge | Quantificazione della noradrenalina |
| Anticorpo p-CREB | Cell Signaling Technology | 9198; RRID: AB_2561044 | Phospho-CREB (Ser133) (87G3) mAb coniglio; WB 1:1.000 |
| Penicillina–Streptomicina | Gibco/Thermo Fisher Scientific | 15140122 | Supplemento antibiotico per coltura cellulare |
| Rivelatore a diodo fotovoltaico | Shimadzu Corporation | SPD-M20A | Rilevamento UV–visibile/PDA in HPLC a 360 nm |
| Anticorpo p-NF-κB p65 | Cell Signaling Technology | 3031; RRID: AB_330559 | Anticorpo Phospho-NF-κB p65 (Ser536); WB 1:1.000 |
| Membrana PVDF | Beyotime Biotechnology | FFP77 | Membrana per Western blot da 0,45 µm |
| Standard di quercetina | Beyotime Biotechnology | SM2147 | Standard di riferimento per quercetina; purezza 98% mediante HPLC |
| Kit ELISA per IL-1β ratto | Elabscience Biotechnology Inc. | E-HSEL-R0002 | Quantificazione dell'IL-1β ratto |
| Kit ELISA per TNF-α ratto | Elabscience Biotechnology Inc. | E-HSEL-R0001 | Quantificazione del TNF-α ratto |
| Sistema per PCR in tempo reale | Bio-Rad Laboratories, Inc. | CFX96 Touch; Cat. No. 1855195 | Amplificazione e analisi della curva di fusione in qPCR in tempo reale |
| Tampone di lisi RIPA | Beyotime Biotechnology | P0013B | Estrazione delle proteine |
| Standard di rutina | Beyotime Biotechnology | SM2159 | Standard di riferimento per rutina; purezza 98% mediante HPLC |
| Materiale di riferimento di Sophorae Flos | National Institutes for Food and Drug Control (NIFDC), Pechino, Cina | 121270; Batch No. 121270-201403 | Materiale botanico di riferimento certificato per l'autenticazione delle gemme floreali di S. japonicum |
| Gemme floreali di Styphnolobium japonicum | Materiale botanico dello studio | Non applicabile | Gemme floreali non ancora aperte, essiccate, autenticate rispetto al materiale di riferimento Sophorae Flos del NIFDC |
| Anticorpo totale CREB | Proteintech Group, Inc. | 12208-1-AP; RRID: AB_2245417 | Anticorpo policlonale totale CREB coniglio per normalizzazione di phospho-CREB |
| Reagente TRIzol | Invitrogen/Thermo Fisher Scientific | 15596026 | Isolamento dell'RNA |
| Kit per rilevamento dell'apoptosi mediante TUNEL | Beyotime Biotechnology | C1086 | Rilevamento dell'apoptosi neuronale |
| Valsartan | Sigma-Aldrich | SML0142 | Antagonista del recettore AT1; controllo positivo antipertensivo |
Riferimenti
- He X, et al. Local and traditional uses, phytochemistry, and pharmacology of Sophora japonica L.: a review. J Ethnopharmacol. 2016;187:160-182.
- Madden E, McLachlan C, Oketch-Rabah H, Calderon AI. United States Pharmacopeia comprehensive safety review of Styphnolobium japonicum flower and flower bud. Phytother Res. 2022;36(5):2061-2071.
- Shi W, et al. Bioactive flavonoids from Flos Sophorae. J Nat Med. 2017;71(3):513-22.
- Paniwnyk L, Beaufoy E, Lorimer JP, Mason TJ. The extraction of rutin from flower buds of Sophora japonica. Ultrason Sonochem. 2001;8(3):299-301.
- Xie Z, et al. Extraction and isolation of flavonoid glycosides from Flos Sophorae Immaturus using ultrasonic-assisted extraction followed by high-speed countercurrent chromatography. J Sep Sci. 2014;37(8):957-965.
- Wang G, et al. Efficient extraction of flavonoids from Flos Sophorae Immaturus by tailored and sustainable deep eutectic solvent as green extraction media. J Pharm Biomed Anal. 2019;170:285-294.
- Le NT, Nguyen TPD, Ho DV, Phung HT, Nguyen HT. A green method to extract rutin from Sophora japonica L. MethodsX. 2023;11:102479.
- Liu Y, et al. Sophora japonica flowers and their main phytochemical, rutin, regulate chemically induced murine colitis in association with targeting the NF-kappaB signaling pathway and gut microbiota. Food Chem. 2022;393:133395.
- Hao G, et al. Rutin inhibits neuroinflammation and provides neuroprotection in an experimental rat model of subarachnoid hemorrhage, possibly through suppressing the RAGE-NF-kappaB inflammatory signaling pathway. Neurochem Res. 2016;41(6):1496-1504.
- Dabeek WM, Marra MV. Dietary quercetin and kaempferol: bioavailability and potential cardiovascular-related bioactivity in humans. Nutrients. 2019;11(10):2288.
- Patel RV, et al. Therapeutic potential of quercetin as a cardiovascular agent. Eur J Med Chem. 2018;155:889-904.
- Han X, et al. Quercetin hinders microglial activation to alleviate neurotoxicity via the interplay between NLRP3 inflammasome and mitophagy. Redox Biol. 2021;44:102010.
- Le K, et al. Quercetin alleviates neonatal hypoxic-ischemic brain injury by inhibiting microglia-derived oxidative stress and TLR4-mediated inflammation. Inflamm Res. 2020;69(12):1201-1213.
- Mi Y, Wu Q, Yuan W, Chen F, Du D. Role of microglia M1/M2 polarisation in the paraventricular nucleus: new insight into the development of stress-induced hypertension in rats. Auton Neurosci. 2018;213:71-80.
- Wei B, et al. Microglia in the hypothalamic paraventricular nucleus sense hemodynamic disturbance and promote sympathetic excitation in hypertension. Immunity. 2024;57(9):2030-42.e8.
- Wang M, et al. Microglia-mediated neuroinflammation: a potential target for the treatment of cardiovascular diseases. J Inflamm Res. 2022;15:3083-3094.
- Xu P, Sriramula S, Lazartigues E. ACE2/ANG-(1-7)/Mas pathway in the brain: the axis of good. Am J Physiol Regul Integr Comp Physiol. 2011;300(4):R804-817.
- Bader M. ACE2, angiotensin-(1-7), and Mas: the other side of the coin. Pflugers Arch. 2013;465(1):79-85.
- Sriramula S, Cardinale JP, Lazartigues E, Francis J. ACE2 overexpression in the paraventricular nucleus attenuates angiotensin II-induced hypertension. Cardiovasc Res. 2011;92(3):401-408.
- Silva AQ, Santos RA, Fontes MA. Blockade of endogenous angiotensin-(1-7) in the hypothalamic paraventricular nucleus reduces renal sympathetic tone. Hypertension. 2005;46(2):341-348.
- Biancardi VC, Stranahan AM, Krause EG, de Kloet AD, Stern JE. Cross talk between AT1 receptors and Toll-like receptor 4 in microglia contributes to angiotensin II-derived ROS production in the hypothalamic paraventricular nucleus. Am J Physiol Heart Circ Physiol. 2016;310(3):H404-115.
- Sun XY, et al. Rutin prevents tau pathology and neuroinflammation in a mouse model of Alzheimer’s disease. J Neuroinflammation. 2021;18(1):131.
- Shi P, et al. Brain microglial cytokines in neurogenic hypertension. Hypertension. 2010;56(2):297-303.
- Shen XZ, et al. Microglia participate in neurogenic regulation of hypertension. Hypertension. 2015;66(2):309-316.
- Simko F, et al. Effect of melatonin on the renin-angiotensin-aldosterone system in L-NAME-induced hypertension. Molecules. 2018;23(2):265.
- Selamoglu Talas Z. Propolis reduces oxidative stress in L-NAME-induced hypertension rats. Cell Biochem Funct. 2014;32(2):150-154.
- Moreira JD, et al. Inhibition of microglial activation in rats attenuates paraventricular nucleus inflammation in Gαi2 protein-dependent, salt-sensitive hypertension. Exp Physiol. 2019;104(12):1892-910.
- Wu Y, Sun R, Ren S, Zengin G, Li M. Neuronal reshaping of the tumor microenvironment in tumorigenesis and metastasis: bench to clinic. Medicine Advances. 2025;3(4):364-371.
- Xu J et al. Advancements in imaging technologies and AI integration for neurodegenerative disease management: a narrative review. Mol Imaging. 2025;24:15353508251393056.