Questo lavoro presenta un protocollo per ottenere embrioni clonati di una specie di cervo in pericolo utilizzando ovociti enucleati provenienti da bovini. Descriviamo qui la metodologia dettagliata del trasferimento nucleare somatico interspecifico e l'uso di ovociti privi della zona pellucida come citoplasmi. Inoltre, i risultati ottenuti vengono discussi in modo approfondito.
Articolo metodologico
Trasferimento Nucleare Somatocellulare Inter-specie Utilizzando Oociti Privi di Zona Pellucida di Bovino (Bos taurus) e Fibroblasti di Cervide (Mazama americana)
In questo articolo
Sommario
Abstract
Le biotecnologie riproduttive utilizzate negli animali permettono di aumentare le popolazioni di specie con elevato valore genetico. Inoltre, queste tecnologie contribuiscono alla conservazione, preservazione e diffusione del materiale genetico di individui con caratteristiche superiori. Il salvataggio genetico di individui selezionati ha portato a numerosi studi su specie domestiche volti a estendere i risultati ad altre popolazioni animali o a individui specifici. Uno di questi approcci è il trasferimento nucleare di cellule somatiche (SCNT), o clonazione, utilizzato per produrre embrioni con materiale genetico identico a quello di un esemplare esistente. Tra i limiti di questa tecnica vi è la disponibilità limitata di ovociti provenienti da animali selvatici. Pertanto, come alternativa, è emerso il trasferimento nucleare somatico interspecifico (iSCNT), che utilizza una cellula somatica (carioplasma) della specie da clonare come donatore nucleare e il suo inserimento in un ovocita enucleato (citoplasma) ottenuto da una specie appartenente a un ordine o taxon diverso. Questo approccio rende possibile ottenere embrioni clonati vitali. In Brasile esistono nove specie di cervidi, molte delle quali sono in pericolo a causa della caccia indiscriminata, della perdita dell'habitat e di altre cause. Il cervo mateiro (Mazama americana) è una delle specie colpite da queste condizioni. Pertanto, questo studio presenta una metodologia per ottenere embrioni clonati di cervo mateiro mediante la tecnica iSCNT, al fine di istituire una banca embrionale per il successivo trasferimento in femmine riceventi e contribuire così alla sopravvivenza della specie.
Introduzione
La famiglia dei Cervidi comprende attualmente 55 specie di mammiferi ungulati con vere corna – strutture ossee esposte sulla parte superiore del cranio dei maschi, con l'eccezione della renna (Rangifer tarandus), in cui entrambi i sessi le possiedono1, e del cervo d'acqua cinese (Hydropotes inermis), in cui nessun sesso le possiede2. I cervidi appartengono all'ordine dei Cetartiodattili, che include anche le famiglie dei procavidonti, dei bovidi, dei suini, dei tayasuidi, dei cammelli, dei tang, delle giraffe e degli ippopotami. In generale, i cervidi sono ruminanti erbivori che abitano una vasta gamma di habitat in tutto il mondo, ad eccezione del continente antartico3.
Nove specie appartenenti alla famiglia Cervidae sono attualmente riconosciute in Brasile: Odocoileus virginianus (cervo della Virginia), Blastocerus dichotomus (cervo palustre), Ozotoceros bezoarticus (cervo delle pampas), Mazama americana, Mazama rufa, Mazama jucunda, Mazama nana, Subulo gouazoubira, e Passalites nemorivagus4.
Questa tassonomia riflette recenti studi molecolari che dimostrano come il genere Mazama sia polifiletico5, portando al riconoscimento di Subulo6 e Passalites7 come generi validi e distinti. Molti di questi cervidi neotropicali sono sempre più minacciati da pressioni antropogeniche, tra cui la perdita di habitat, la frammentazione del paesaggio e la conseguente riduzione della diversità genetica associata all'isolamento delle popolazioni8.
Negli ultimi 100 anni, le tecniche di riproduzione assistita sono state implementate con successo inizialmente nei mammiferi di laboratorio e stanno gradualmente venendo trasferite a specie selvatiche con elevata priorità conservazionistica9. Di conseguenza, la stragrande maggioranza delle biotecnologie riproduttive si è sviluppata utilizzando il modello mammifero, e pertanto questo gruppo ha ricevuto la maggior parte dell'attenzione della ricerca. Diverse tecnologie riproduttive sono state adattate con successo per i mammiferi, tra cui l'inseminazione artificiale, il trasferimento embrionale, la fecondazione in vitro, il sesso dei gameti e degli embrioni, e la criopreservazione delle risorse genetiche10. Tuttavia, una tecnica in particolare, il trasferimento nucleare di cellule somatiche (SCNT), si è distinta dalle altre per i risultati ottenuti e il potenziale impatto quando utilizzata in specie in pericolo11.
Tra le biotecnologie riproduttive disponibili, il clonaggio permette la generazione di individui geneticamente identici all'animale donatore. Il trasferimento nucleare di cellule somatiche (SCNT) è la strategia principale utilizzata per il clonaggio, in cui il nucleo di una cellula somatica viene introdotto in un'ovocita enucleata. Nel contesto delle specie selvatiche, tuttavia, la sua applicazione è spesso limitata dalla scarsità di donatrici di ovociti e dalle difficoltà tecniche associate al recupero degli ovociti12. Questi limiti hanno portato allo sviluppo del trasferimento nucleare interspecifico di cellule somatiche (iSCNT) come approccio complementare nei programmi di conservazione, in cui vengono utilizzati ovociti di animali domestici come citoplasmi riceventi per nuclei derivati da specie in pericolo (Figura 1). La fattibilità di questo approccio è stata dimostrata dalla produzione con successo di prole vitale di diverse specie selvatiche mediante iSCNT13,14,15.
Sono state proposte diverse strategie per la produzione di embrioni clonati, a seconda del modo in cui vengono manipolati gli ovociti e le cellule donatrici. Nell'approccio convenzionale, gli ovociti con zona pellucida integra vengono enucleati, dopodiché la cellula donatrice viene introdotta nello spazio perivitellino e fusa mediante elettrofusione16. Un'altra possibilità è l'iniezione diretta del nucleo somatico in un ovocita circondato dalla zona pellucida, mediante tecniche di micromanipolazione come la microiniezione17. Al contrario, i sistemi privi di zona pellucida (ZP-free) semplificano la procedura di clonazione evitando diversi passaggi di micromanipolazione, poiché l'enucleazione può essere eseguita utilizzando una pipetta smussata senza la necessità di apparecchiature complesse18. In questo saggio, proponiamo di utilizzare ovociti privi di zona pellucida come citoplasti durante l'iSCNT per ottenere embrioni clonati impiegando citoplasma bovino e carioplasma di cervo.
Protocollo
Una femmina adulta di capriolo rosso è stata recuperata da parte delle autorità ambientali a Guaramiranga, Ceará, Brasile (4°13'53.0'' S, 38°56'42.6'' W). L'animale è stato ricevuto morto presso il Laboratorio per la Conservazione dei Cervidi Neotropicali (LACCERNE), Università Statale del Ceará (UECE), Fortaleza, Brasile. Gli esiti dell'esame necroscopico hanno indicato che la morte è stata causata da multiple lesioni traumatiche provocate da un proiettile d'arma da fuoco entrato attraverso la regione addominale dorsolaterale sinistra. L'uso di questo esemplare è stato autorizzato dal Comitato Etico per la Sperimentazione Animale dell'Università Statale del Ceará (CEUA-UECE, numero di protocollo 450620/2022) e dall'Istituto Brasiliano dell'Ambiente e delle Risorse Naturali Rinnovabili (IBAMA, numero di protocollo 02027.014734/99-34). Inoltre, l'uso di ovari bovini è stato approvato dal CEUA/UECE (numero di protocollo 31032.004671/2024-81). I dettagli di tutti i reagenti e delle attrezzature utilizzate sono elencati nella Tabella dei Materiali. I dati a supporto di questo studio sono disponibili su Zenodo al numero DOI 10.5281/zenodo.22129414.
1. Soluzioni e terreni di coltura
NOTA: Eseguire tutte le operazioni di filtrazione attraverso un filtro sterile da 0,22 µm e conservare il filtrato a 4 °C per un massimo di una settimana. Conservare la soluzione madre a -20 °C.
- Mezzo di trasporto: aggiungere 8,1 g di NaCl e 0,045 g di pentabiotico e portare a 900 mL con acqua distillata.
- Soluzione salina fosfato (PBS): aggiungere 0,4 g di NaCl, 0,01 g di KCl, 0,077 g di NaH2PO4 e 0,01 g di KH2PO4, e portare a 50 mL con acqua ultrapura.
- Mezzo di coltura cellulare: Dulbecco's Modified Eagle Medium (DMEM) integrato con 10% (v/v) di siero fetale bovino (FBS) e 1,0% (v/v) di soluzione di penicillina, streptomicina e anfotericina B (ATB).
- Soluzione per la crioconservazione dei fibroblasti: DMEM integrato con 10% (v/v) di FBS e 10% (v/v) di dimetilsulfossido (DMSO) e 2,0% (v/v) di soluzione ATB.
- Tripsina-EDTA (0,25%).
- Mezzo di manipolazione: mezzo di Tyrode tamponato con HEPES contenente albumina, lattato e piruvato (H-TALP). Utilizzare questo mezzo per tutte le procedure eseguite al di fuori dell'incubatore. Per 1 L, aggiungere 6,763 g di NaCl, 0,239 g di KCl, 0,294 g di CaCl2·2H2O, 0,048 g di MgCl2, 0,168 g di NaHCO3 e 3,575 g di HEPES a 981,86 mL di acqua sterile testata per embrioni. Mescolare delicatamente e aggiungere 10 mL di antibiotico-antimicotico, 1 mL di rosso fenolo, 1,44 mL di lattato di sodio, 1 mL di soluzione madre di piruvato di sodio 100 mM e 3 g di albumina sierica bovina (BSA). Regolare l'osmolarità a 280 mOsm e il pH a un valore compreso tra 7,2 e 7,4. Dividere in aliquote da 50 mL e conservare a 4 °C per un mese.
- Mezzo per la maturazione in vitro: Medium 199 (TCM-199) integrato con 10% (v/v) di FBS, 10 ng/mL di fattore di crescita epidermico (EGF), 1 mM di piruvato di sodio, 100 µM di cisteamina, 10 µg/mL di ormone follicolostimolante (FSH), 1 µg/mL di estradiolo e 1% (v/v) di soluzione ATB. Regolare il pH a 7,2–7,4.
- Soluzione di ialuronidasi (concentrazione finale: 1 mg/mL): sciogliere 10 mg di ialuronidasi in 10 mL di H-TALP. Preparare aliquote da 200 µL in provette da 1,5 mL, pronte all'uso.
- Soluzione di pronasi (concentrazione finale: 1,5 mg/mL): sciogliere 15 mg di pronasi in 10 mL di H-TALP. Preparare aliquote da 200 µL in provette da 1,5 mL, pronte all'uso.
- Demecolcina (concentrazione finale: 0,4 µg/mL): sciogliere 5 mg di demecolcina (DMC) in 125 µL di DMSO e preparare aliquote da 5 µL (soluzione madre). Congelare le aliquote fino all'uso. Diluire mescolando 2 µL della soluzione madre con 1998 µL di TCM per ottenere la soluzione di lavoro. Prima dell'uso, aggiungere 5 µL della soluzione di lavoro a 495 µL di fluido oviduttale sintetico (SOF).
- Hoechst (concentrazione finale: 10 µg/mL): sciogliere 1 mg/mL di Hoechst 33342 in H-TALP. Preparare aliquote da 5 µL e diluizioni 1:100 nel mezzo di coltura SOF.
ATTENZIONE: Hoechst 33342, utilizzato per visualizzare il DNA nucleare sotto luce UV, è un agente intercalante e un potente mutageno. Manipolarlo indossando idonei dispositivi di protezione individuale. - Fitoemagglutinina (concentrazione finale: 1 mg/mL): sciogliere 5 mg di fitoemagglutinina (PHA) in 500 µL di H-TALP. Preparare aliquote da 10 µL in provette da 200 µL. Per l'uso, aggiungere 90 µL di H-TALP.
- Mezzi per la fusione cellulare: 0,3 M mannosio, 0,1 mM MgSO4, 0,05 mM CaCl2, HEPES 0,5 mM e 1 mg/mL di alcol polivinilico (PVA) in acqua ultrapura. Utilizzare nello stesso giorno della preparazione.
- Ionomicina (concentrazione finale: 5 µM): aggiungere 1 mL di DMSO al flaconcino di ionomicina (1 mg/flaconcino). Aggiungere 1,67 mL di TCM-199. Congelare aliquote da 10 µL in provette da 1,5 mL a -20 °C. Per l'uso, aggiungere 990 µL di H-TALP al contenuto di ciascuna provetta da 1,5 mL. Proteggere dalla luce.
- 6-Dimetilaminopurina (concentrazione finale: 2 mM): sciogliere 10 mg di 6-dimetilaminopurina (6-DMAP). Congelare aliquote da 50 µL in provette da 1,5 mL a -20 °C. Per l'uso, aggiungere 950 µL di SOF al contenuto di ciascuna provetta da 1,5 mL.
- Mezzo di coltura degli embrioni: 0,2 mM L-glutammina, 0,2 mM piruvato di sodio, 2% di aminoacidi essenziali Basal Medium Eagle (BME), 1% di aminoacidi non essenziali MEM 100×, 1,0% (v/v) di soluzione ATB, 2,77 mM mio-inositolo, 2,5% (v/v) di FBS, 10 µL/mL di ITS (miscela di insulina, transferrina umana e selenito di sodio) e 3 g/L di BSA.
2. Raccolta e manipolazione del campione di tessuto donatore
- Lavare e rasare la superficie dell'orecchio della femmina donatrice con sapone e acqua; quindi disinfettare la zona con alcol (70%).
- Prelevare un piccolo campione di orecchio (1 × 2 cm) mediante lama di bisturi, porlo in una soluzione di PBS contenente 4% ATB e trasportarlo in laboratorio mantenendolo a 4 °C.
- Tagliare il campione bioptico in piccoli pezzi utilizzando una lama di bisturi e posizionarli in una piastra di Petri da 35 mm ricoperta con mezzo di coltura. Coltivare a 38,5 °C in umidità satura con 5% di CO₂.
- Sostituire il mezzo di coltura ogni 48 ore fino al raggiungimento della confluenza cellulare, al fine di prevenire contaminazioni.
- Rimuovere il mezzo di coltura dalla piastra confluenziale e aggiungere 1 mL di tripsina-EDTA 0,25% in una piastra di Petri da 35 mm per 2 minuti.
- Per inattivare la tripsina, aggiungere 2 mL di mezzo di coltura cellulare. Trasferire la sospensione cellulare in un tubo da 15 mL e centrifugare a 200 x g per 10 minuti a temperatura ambiente (≈ 25 °C).
- Rimuovere il soprannatante e risospendere il pellet cellulare in 10 mL di mezzo di coltura. Passaggiare la coltura di fibroblasti ogni 5 giorni.
- Criopreservare i fibroblasti risospendendo il pellet cellulare in 1 mL di soluzione criopreservante. Trasferire la sospensione cellulare in crioprovette, posizionarle a -80 °C in un contenitore per congelamento a velocità controllata per 18 ore e successivamente trasferirle in un serbatoio di azoto liquido (-196 °C) fino all'uso. Dopo la criopreservazione dei fibroblasti, la manipolazione cellulare può essere interrotta e ripresa soltanto al momento della sincronizzazione del ciclo cellulare.
- Scongelare e coltivare i fibroblasti da 1 a 2 settimane prima del loro utilizzo per l'iSCNT.
3. Sincronizzazione del ciclo cellulare
- Sincronizzare il ciclo cellulare mediante confluenza nella fase G0/G1.
- Rimuovere il mezzo di coltura dalla piastra confluenziale e aggiungere 1 mL di tripsina-EDTA 0,25% in una capsula di Petri da 35 mm per 2 minuti nell'incubatrice a CO₂ a 38,5 °C. Aggiungere 2 mL di mezzo di coltura per inattivare la tripsina.
- Trasferire la sospensione cellulare in un tubo da 15 mL e centrifugare a 200 x g per 10 minuti.
- Rimuovere il soprannatante e risospendere il sedimento cellulare in 1-3 mL di mezzo di coltura cellulare per iSCNT.
4. Raccolta degli ovociti
- Prelevare le ovaie bovine da giovenche o vacche immediatamente dopo la macellazione e trasportarle in laboratorio in un thermos contenente mezzo di trasporto, mantenendo una temperatura di 25-30 °C.
- Lavare le ovaie due volte con mezzo di coltura e posizionarle in un becher immerso in un bagno termico a 38,5 °C.
- Aspirare il liquido follicolare dai follicoli di diametro compreso tra 2 e 8 mm utilizzando un ago da 18 gauge collegato a una siringa da 10 mL contenente mezzo H-TALP.
- Trasferire il liquido follicolare aspirato in un tubo conico da 50 mL e lasciarlo in riposo per almeno 15 minuti in un bagno termico a 38,5 °C.
5. Maturazione e denudazione degli ovociti
- Dopo 15 min, trasferire con attenzione l'intero pellet utilizzando una pipetta Pasteur in plastica in una piastra di Petri (100 × 15 mm).
- Utilizzare un microscopio stereoscopico per selezionare i complessi cumulo-oocitari (COC) che presentano almeno tre strati compatti di cellule del cumulo ed appartengono ai gradi da I a III (Tabella 1)19.
- Lavare i COC tre volte con H-TALP dimezzato e successivamente due volte con mezzo di maturazione in vitro.
- Trasferire 20-25 COC in ciascuna goccia di 100 µL di mezzo di maturazione in vitro ricoperta con olio minerale. Incubarli a 38,5 °C in un'atmosfera contenente 5% di CO₂ e umidità satura per 20-22 h.
- Rimuovere le cellule dall'aggregato COC aspirando delicatamente in 200 µL di soluzione di ialuronidasi per 2 min.
- Lavare gli oociti privi delle cellule del cumulo in 2 mL di mezzo H-TALP.
- Sotto un microscopio stereoscopico, selezionare gli oociti che mostrano l'espulsione del primo corpo polare (metafase II - MII) per i passaggi successivi.
6. Rimozione della zona pellucida, enucleazione e ricostruzione di ovociti privi di zona pellucida
- Incubare gli ovociti allo stadio MII in una goccia di 100 µL di soluzione di pronasi a 38,5 °C per 1-2 minuti. Osservare al microscopio stereoscopico fino a quando la zona pellucida inizia ad assottigliarsi.
- Recuperare immediatamente gli ovociti e trasferirli nel mezzo di coltura integrato con 20% di FBS per inattivare la pronasi.
- Incubare gli ovociti privi della zona pellucida nel mezzo SOF contenente 0,4 µg/mL di demecolcina per 20 minuti per indurre una protrusione citoplasmatica contenente DNA, seguita da una seconda incubazione di 20 minuti nello stesso mezzo arricchito con 10 µg/mL di Hoechst.
- Trasferire gli ovociti privi della zona pellucida in gocce di H-TALP ed eseguire l'enucleazione utilizzando micromanipolatori collegati a un microscopio invertito.
- Posizionare l'ovocita accanto alla pipetta di ritenzione.
- Ruotare l'ovocita fino a quando la protrusione si trova alla posizione delle tre in punto ed aspirare la protrusione insieme al 5-10% del citoplasma utilizzando una pipetta da iniezione con punta smussata da 25 µm.
- Verificare l'avvenuta enucleazione osservando il citoplasma aspirato alla luce ultravioletta (Figura 2).
ATTENZIONE: L'esposizione degli ovociti a coloranti per il DNA e alla luce ultravioletta danneggia il materiale genetico e induce stress ossidativo. Ridurre al minimo il tempo di esposizione.
7. Fusione cellulare
- Assemblare la camera di fusione sotto un microscopio stereoscopico e riempirla con 2 mL di mezzo di fusione a pH 7.
- In una piastra di Petri da 60 mm, preparare cinque soluzioni da 100-µL gocce e una 30-µL una goccia di H-TALP e aggiungere 50 µL di PHA.
- Aggiungere 5 µL di fibroblasti al 30 µL goccia di H-TALP, selezionare le cellule uniformi e rifrangenti, e trasferirle in un 100 µL goccia di H-TALP
- Trasferire gli oociti enucleati in un 100 µL goccia di H-TALP
- Esporre l'ovocita alla goccia di PHA per 4 s, posizionarla su una cellula e verificare l'adesione tra le due. Successivamente, trasferire il complesso in una goccia di TALP-H priva di qualsiasi contenuto.
- Dopo che l'ovocita e la cellula si sono aderiti, trasferirli in una piastra contenente 2 mL di mezzo di fusione per permettere loro di sedimentare. Successivamente, posizionare il complesso nella camera di fusione tra gli elettrodi, disponendo la cellula alla posizione delle sei o delle dodici.
ATTENZIONE: I tamponi di attivazione utilizzati durante l'elettrofusione contengono ionomicina, sostanza che altera l'omeostasi del calcio cellulare. I campi elettrici ad alta tensione presentano il rischio di scosse elettriche o scariche se l'apparecchiatura è bagnata o maneggiata in modo improprio. - Eseguire la fusione utilizzando una camera di microfusione con un intervallo tra gli elettrodi di 0,2 mm. Mediante un elettroporatore, applicare un singolo treno di impulsi costituito da due impulsi di corrente continua unidirezionali a 0,72 kV/cm, ciascuno della durata di 30 µs e un intervallo di 0,1 s tra gli impulsi.
- Dopo aver applicato l'impulso, trasferire ogni coppia ovocito-cellula singolarmente in 5-µL microgocce di SOF integrate con FBS al 2,5% e coltivarle a 38.5 °C in un'atmosfera al 5% di CO₂₂ atmosfera
- Valutare singolarmente la fusione a 30 minuti al microscopio stereoscopico.
- Sottoporre le strutture non fuse a un secondo ciclo di fusione.
- Considerare i complessi fusi come embrioni reinnestati privi della zona pellucida e incubarli per 2 h fino all'attivazione (tempo di riprogrammazione).
8. Attivazione degli ovociti e coltura degli embrioni
- Incubare le strutture ricostruite in gocce da 100 µL di mezzo H-TALP contenente 5 µM di ionomicina per 4 min.
- Lavare le strutture ricostruite in quattro gocce da 100 µL di mezzo H-TALP.
- Incubare le strutture ricostruite in gocce da 100 µL di mezzo SOF contenente 2 mM di 6-DMAP per 3 h.
- Lavare le strutture ricostruite in quattro gocce da 100 µL di mezzo SOF.
- Produrre piastre con micropozzetti utilizzando una capillare di vetro riscaldata premuta leggermente sul fondo di una piastra di Petri da 35 × 10 mm. Creare tra 20 e 25 micropozzetti, ciascuno di diametro 500 µm e profondità 250 µm20.
- Posizionare gli embrioni ricostruiti singolarmente nei pozzi della micropiastra modificata, coprirli con 100 µL di mezzo SOF e infine con 3 mL di olio minerale. Collocare le micropiastre in un incubatore a tre gas con 5% CO₂, 5% O₂ e 90% N₂ per 7 giorni.
Risultati
I risultati sono stati analizzati utilizzando il software R (v.4.5.2). I tassi di scissione e di blastocisti sono stati confrontati tra le coppie (cervo/bovino contro bovino/bovino) mediante il test esatto di Fisher. Sono state effettuate dieci repliche: quattro della coppia cervo/bovino e sei della coppia bovino/bovino. Inoltre, per tutte le analisi, il livello di significatività è stato fissato al 5%.
Durante il saggio, sono stati utilizzati 472 ovociti bovini ottenuti da un macello locale come riceventi di citoplasma. Tuttavia, dopo la maturazione in vitro e la successiva elettrofusione, 73 strutture non sono riuscite a fondersi ed sono state escluse dai passaggi successivi, ottenendo così 399 strutture karioplasma/citoplasma fuse con successo. Da questo totale, sono state utilizzate le seguenti coppie (karioplasma/citoplasma): quattro repliche di cervo/bovino (n = 175) e sei repliche di bovino/bovino (n = 224) (Tabella 2).
Per valutare l'impatto della iSCNT, gli embrioni ricostruiti privi della zona pellucida sono stati coltivati in micropozzetti fino al giorno 7. Microfotografie rappresentative di morula e blastocisti senza zona pellucida sono mostrate nella Figura 3.
Tabella 2 presenta i tassi di scissione e di blastocisti ottenuti in questo esperimento. Il tasso di scissione non ha mostrato differenze significative (P = 0,74) tra i gruppi (coppie cervo/bovino e bovino/bovino). D'altra parte, per quanto riguarda il tasso di formazione dei blastocisti, è stata osservata una differenza statistica (P=0,02), con una percentuale maggiore nel gruppo di clonazione intraspecifica. Tuttavia, è importante sottolineare la limitazione statistica di potenza per questo tipo di esperimento, in cui il numero di cloni interspecifici è comunemente ridotto.
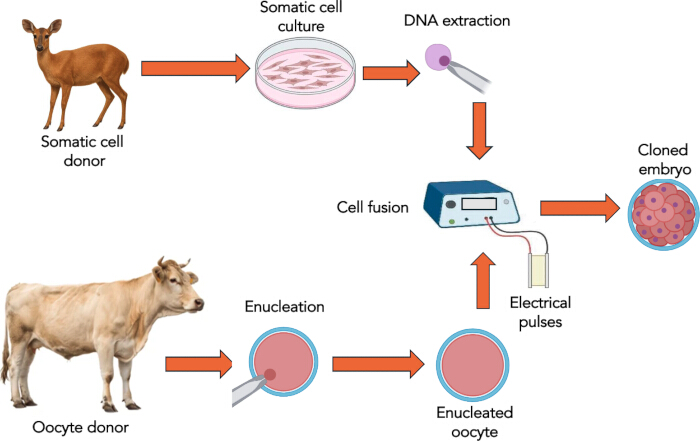
Figura 1: Fasi schematiche del Trasferimento Nucleare di Cellule Somatice interspecifico. I bovini vengono utilizzati come donatori di citoplasma, mentre i cervi vengono utilizzati come donatori di carioplasma. Dopo aver ottenuto l'embrione clonato, questo può essere trasferito in femmine riceventi oppure criopreservato per un successivo trasferimento. Cliccare qui per visualizzare una versione ingrandita di questa figura.
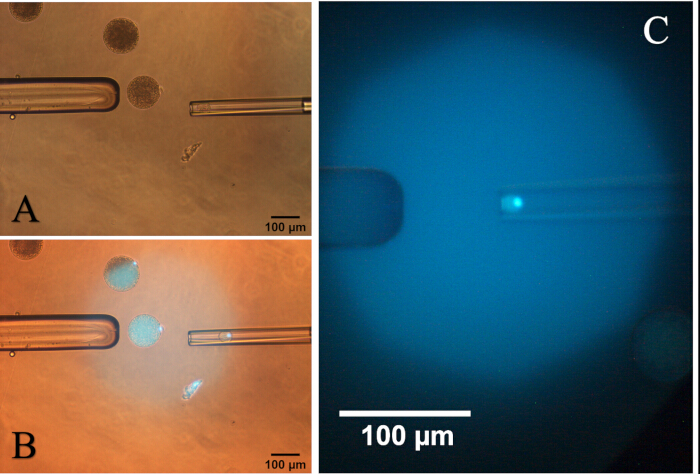
Figura 2: Fotomicrografia di un ovocita attivato con una protrusione citoplasmatica. (A) Rotazione dell'ovocita per posizionare la protrusione alla posizione delle tre in punto. (B) Aspirazione della protrusione con il 5-10% del citoplasma sotto esposizione alla luce ultravioletta. (C) Citoplasma e la sua protrusione all'interno della pipetta di aspirazione sotto luce ultravioletta. Cliccare qui per visualizzare una versione ingrandita di questa figura.
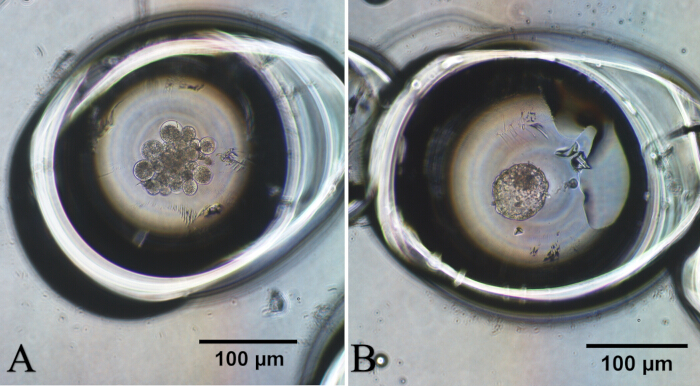
Figura 3: Fotomicrografia di embrioni di cervo prodotti mediante Trasferimento Nucleare di Cellule Somatice interspecifico. (A) Embrione clonato allo stadio di morula. (B) Embrione clonato allo stadio di blastocisti. Cliccare qui per visualizzare una versione ingrandita di questa figura.
| Grado | Numero di strati di cumulo | Espansione del cumulo |
| I | > 3 | Copertura completa del cumulo con diversi strati cellulari compatti e leggermente lenti |
| II | 2 - 3 | Leggera espansione negli strati cellulari esterni |
| III | 1 | Copertura parziale del cumulo e strati cellulari lenti |
| IV | 0 | Assenza di cumulo |
Tabella 1: Classificazione degli oociti bovini da enucleare successivamente e utilizzare come citoplasmi durante il trasferimento nucleare somatico interspecifico (adattato da Aguila et al.)19.
| Gruppi (carioplasto/citoplasto) | Numero di repliche | Numero di embrioni ricostruiti | Numero di scissione (%) | Numero di blastocisti (%) |
| Cervo/bovino | 4 | 175 | 122 (69,7)a | 8 (4,6)a |
| Bovino/bovino | 6 | 224 | 160 (71,4)a | 24 (10,7)b |
| Lettere diverse nella stessa colonna indicano una differenza statistica. | ||||
| Tasso di scissione: P = 0,74 | ||||
| Tasso di blastocisti: P = 0,02 | ||||
Tabella 2: Sviluppo in vitro di embrioni clonati di cervo brocket rosso utilizzando citoplasma bovino. Sono state effettuate dieci ripetizioni: quattro con coppia cervo/bovino e sei con coppia bovino/bovino. I tassi di scissione e di blastocisti sono stati calcolati utilizzando il numero di embrioni ricostruiti come denominatore.
Discussione
È già ben documentato che il genoma di specie in pericolo può essere riprogrammato utilizzando ovociti di animali da allevamento, in particolare bovini e suini, che rappresentano la fonte più abbondante di citoplasmi21. Uno dei progressi più significativi ottenuti nella iSCNT è stato il clonaggio dello stambecco dei Pirenei (Capra pyrenaica pyrenaica), una sottospecie scomparsa in seguito alla morte dell'ultimo individuo conosciuto. Gli embrioni ricostruiti sono stati ottenuti fondendo cellule epiteliali dello stambecco con ovociti di capra (Capra hircus). Gli autori hanno ottenuto la nascita di una femmina, priva di anomalie morfologiche esterne. Tuttavia, la prole ha presentato una grave insufficienza respiratoria ed è deceduta pochi minuti dopo la nascita22.
Uno dei candidati più forti per la "resurrezione" è il mammut lanoso (Mammuthus primigenius). Per rendere possibile il clonaggio, è fondamentale disporre di tessuti vitali con nuclei identificabili, condizione difficile da soddisfare per una specie scomparsa circa 10.000 anni fa. Tuttavia, i corpi di mammut ritrovati negli strati gelati del terreno soddisfano i requisiti minimi per l'iSCNT23. Nonostante ciò, forse le specie in pericolo sono i candidati più adatti a trarre beneficio dall'uso di questa tecnica.
Il tasso di segmentazione osservato nel nostro studio ha dimostrato che l'attivazione e la prima divisione embrionale non sono stati influenzati dalla combinazione interspecifica di nucleo e citoplasma. Durante la fase di ricostruzione, la manipolazione e la fusione delle strutture (carioplasma/citoplasma) hanno presentato la stessa facilità tecnica in entrambi i gruppi, suggerendo una compatibilità strutturale tra le specie. Per quanto riguarda il tasso di blastocisti, i risultati indicano che, sebbene la ricostruzione e l'attivazione precoce dell'embrione iSCNT non rappresentino un fattore limitante, esiste un'incompatibilità nucleo-citoplasmatica che si manifesta in fasi successive dello sviluppo, probabilmente legata a un incompleto riprogrammazione epigenetica o alla transizione materna-zigotica, che compromette la capacità dell'embrione ibrido di raggiungere lo stadio di blastocisti24. L'efficienza dell'iSCNT tende ad essere maggiore quando i carioplasmi e i citoplasmi derivano da specie filogeneticamente correlate, poiché la produzione naturale di prole ibrida vitale indica un certo grado di compatibilità nucleocitoplasmatica tra le due specie23. Pertanto, la SCNT intersottospecie ha già dimostrato di produrre prole sana. Gli autori hanno utilizzato citoplasma di cagna e fibroblasti di lupo, trasferendo gli embrioni in 12 femmine, con conseguente nascita di un individuo25.
L'uso dell'iSCNT presenta un importante "limite di efficienza" nella sua efficacia biologica e nello sviluppo, che diminuisce drasticamente all'aumentare della distanza evolutiva tra il nucleo donatore e l'ovocita ricevente. Mentre ha successo tra specie strettamente correlate (ad esempio, bovini domestici e gaur)26, fallisce regolarmente nel produrre prole vitale o linee cellulari embrionali stabili quando si tenta di superare confini tassonomici più distanti.
Il clonaggio rappresenta uno strumento importante per i programmi di allevamento e conservazione animale, in quanto consente la moltiplicazione di individui geneticamente superiori, supporta la generazione di animali transgenici e contribuisce alla conservazione a lungo termine di risorse genetiche preziose attraverso banche del genoma. Tuttavia, l'adozione del clonaggio nei programmi di allevamento del bestiame è ancora limitata dal basso numero di animali nati vivi rispetto al numero di embrioni trasferiti18. Gli approcci attuali per la produzione di embrioni clonati sono generalmente suddivisi in due categorie: clonaggio convenzionale e clonaggio senza zona pellucida (ZP-free). Nell'approccio convenzionale, è necessario un micromanipolatore per rimuovere il nucleo dell'ovocita e introdurre la cellula somatica donatrice nel citoplasma ricevente26. A differenza del clonaggio convenzionale, il metodo ZP-free viene eseguito senza micromanipolazione27. I risultati ottenuti nel nostro studio sono risultati molto simili a quelli verificati con l'uso dell'iSCNT, sia per quanto riguarda il tasso di scissione che per la produzione di blastocisti20,21.
Infine, tenendo conto dei diversi passaggi di questa procedura, è importante evidenziare i punti critici e le soluzioni pratiche ai problemi riscontrati. Per quanto riguarda la rimozione della ZP, il clonaggio senza ZP offre diversi vantaggi, tra cui facilità di esecuzione, convenienza economica e un tasso di natalità vivente per embrione trasferito relativamente migliore28. La conferma della completa rimozione del nucleo (enucleazione) senza indurre danni fatali al citoplasma determina se la struttura ricostruita possa sostenere con successo un embrione clonato. Sebbene si sappia che l'esposizione ai raggi UV ha effetti dannosi29, essa è stata regolarmente utilizzata nella maggior parte dei laboratori di clonaggio. Infine, la coltura di embrioni senza ZP manca del rivestimento esterno protettivo di glicoproteine, causando problemi significativi come elevata fragilità fisica durante la manipolazione e dissociazione dei blastomeri30.
In conclusione, i risultati ottenuti nel nostro studio devono essere interpretati come una prova preliminare della fattibilità tecnica del protocollo di iSCNT nella combinazione cervo/bovino, piuttosto che come una dimostrazione definitiva della sua efficacia produttiva. Pertanto, sono necessari ulteriori studi con un numero maggiore di repliche per confermare questi risultati.
Dichiarazioni
Gli autori non hanno conflitti di interessi da dichiarare.
Ringraziamenti
Questo lavoro è stato sostenuto dalla Fondazione Cearense per il Sostegno allo Sviluppo Scientifico e Tecnologico (FUNCAP, Fortaleza, Brasile, numero della borsa di studio 11212233/2022) e dagli Istituti Nazionali di Scienza e Tecnologia (INCT/CNPq, numero della borsa di studio 406866/2022-8).
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| Ago per aspirazione (18G) | LABIMPORT | 353601 | Ago monouso, taglio corto |
| 6-Dimetilaminopurina (6-DMAP) | Sigma-Aldrich | D2629 | |
| Antibiotico–antimicotico | Gibco, Thermo Fisher Scientific | 15240062 | |
| Albumina sierica bovina | Sigma-Aldrich | A9647 | |
| Cloruro di calcio diidrato (CaCl2·2H2O) | Sigma-Aldrich | C7902 | |
| Flacone per coltura cellulare T-25 | Corning | 430639 | |
| Microiniettore CellTram | Eppendorf | 5196 000.021 | |
| Centrifuga | Eppendorf | 5702 | Utilizzata per la centrifugazione delle cellule a 200 × g per 10 minuti al fine di formare il pellet e lavare i campioni prima delle procedure di trasferimento nucleare. |
| Tubi da centrifuga (50 mL) | Corning | CLS430291 | |
| Crioprovetta (1,8 mL) | Nunc / Thermo Fisher | 368632 | |
| Cisteina | Sigma-Aldrich | M9768 | |
| Demecolcina | Sigma-Aldrich | D1925 | |
| Acqua distillata. | _ | _ | |
| DMSO (congelamento cellule) | Sigma-Aldrich | D2650 | Crioprotettante al 10% per la criopreservazione delle cellule donatrici |
| Mezzo di Eagle modificato di Dulbecco (DMEM) | Gibco / Thermo Fisher | 11995065 | |
| Pipetta per enucleazione (20–25 µm ID) | Narishige | GD-1 | |
| Fattore di crescita epidermico (EGF) | Sigma-Aldrich | E4127 | |
| Aminoacidi essenziali BME | Sigma-Aldrich | M5550 | |
| Estradiolo | Sigma-Aldrich | E8875 | |
| Incubatore EVE (5% O2, 5% CO2, 90% N2) | WTA medical | REF. 23578 | |
| Siero fetale bovino (FBS) | Bio Nutrientes, Induslab | FEN-500 | |
| FSH (Folltropin-V) | Vetoquinol | Q-7090-124 | |
| Capillare di vetro con filamento | Narishige | GD-1 | Questo capillare di vetro viene utilizzato per creare micropozzetti nella piastra di Petri |
| Piastra riscaldata | WTA medical | 17656 | |
| Hepes | Sigma-Aldrich | H6147 | |
| Hoechst 33342 (colorante per DNA) | Sigma-Aldrich | B2261 | |
| Pipetta di ritenzione (120 μm OD) | Narishige | GD-1 | |
| Ialuronidasi | Sigma-Aldrich | H4272 | |
| Microscopio invertito ECLIPSE | Nikon | TE2000-U | |
| Ionomicina (ionoforo del calcio A23187) | Sigma-Aldrich | I0634 | |
| ITS | Sigma-Aldrich | I2771 | |
| KCl | Sigma-Aldrich | P5405 | |
| KH2PO4 | Sigma-Aldrich | P5655 | |
| Cappa a flusso laminare Isocide | Esco | 2120765 | Cappa a flusso laminare che fornisce un ambiente di lavoro sterile per le procedure di coltura di cellule ed embrioni. |
| L-Glutammina | Sigma-Aldrich | G8540 | |
| Dewar per stoccaggio in azoto liquido | Nitroagro | Varia | |
| Solfato di magnesio (MgSO4) | Sigma-Aldrich | M2643 | |
| Mezzo di fusione al mannosio (0,3 M) | Sigma-Aldrich | M9546 | |
| MgCl2 | Sigma-Aldrich | M8266 | |
| Microforgiatrice MF-900 | Narishige | MF-900 | |
| Sistema di micromanipolazione | Narishige | MM-89 / TransferMan 4r | |
| Tiratore di micropipette | Narishige | Narishige PC-100 | |
| Micropipette (10 µL, 20 µL, 100 µL, 200 µL, 1000 µL) | Eppendorf | Serie Research Plus | |
| Camera di microfusione | Eppendorf | 12816532 | È un accessorio specializzato con un intervallo di 0,2 mm progettato per applicazioni di elettroporazione |
| Olio minerale (testato per embrioni) | Sigma-Aldrich | M8410 | |
| Multiporatore | Eppendorf | 4308 000.015 | |
| Mio-inositolo | Sigma-Aldrich | I7508 | |
| NaCl | Sigma-Aldrich | S5886 | |
| NaH2PO4 | Sigma-Aldrich | S5011 | |
| NaHCO3 | Sigma-Aldrich | S4219 | |
| Aminoacidi non essenziali MEM | Sigma-Aldrich | M7145 | |
| Pentabiotico | Zoetis | 10005048 | Fiala da 2.400.000 UI. |
| Piastra di Petri da 35 mm (testata per embrioni) | Corning | 430165 | |
| Piastra di Petri da 60 mm (testata per embrioni) | Corning | 430196 | |
| Rosso fenolo | Sigma-Aldrich | P0290 | |
| Punte per pipetta da 1000 µL | Eppendorf | 9401030 | |
| Punte per pipetta da 200 µL | Eppendorf | 94052300 | |
| Punte per pipetta senza filtro (0,5–10 µL) | Axygen | T-300 | |
| Poli(vinil alcol) (PVA) | Sigma-Aldrich | P8136 | |
| Pronasi (proteasi da S. griseus) | Sigma-Aldrich | P8811 | |
| Lattato di sodio | Sigma-Aldrich | L7900 | |
| Piruvato di sodio | Sigma- Aldrich | P4562 | |
| Stereomicroscopio | Nikon | SMZ800 | |
| Acqua sterile testata per embrioni | Sigma-Aldrich | W3500 | |
| Filtro sterile (0,22 μm) | Corning | 431154 | |
| TCM-199 | Sigma-Aldrich | M2154 | |
| Incubatore a tre gas (5% O2, 5% CO2, 90% N2) | WTA medical | REF. 23578 | |
| Tripsina-EDTA (0,25%) | Gibco / Thermo Fisher | 25200056 | |
| Acqua ultrapuraá | Sigma-Aldrich | W3500 | |
| Lampada UV / modulo di fluorescenza | Leica / Olympus | Varia | Breve esposizione a UV per verificare l'enucleazione; minimizzare la fototossicità |
Riferimenti
- Flagstad O, Roed KH. Refugial origins of reindeer (Rangifer tarandus.) inferred from mitochondrial DNA sequences. Evolution. 2003;57(3):658-70.
- Schilling AM, Rössner GE. The (sleeping) beauty in the beast—a review on the water deer, Hydropotes inermis. Hystrix It J Mamm. 2017;28(2):121-33.
- Newman BA, D’Angelo GJ. A review of cervidae visual ecology. Animals (Basel). 2024;14(3):420.
- Rola LD. Integrating cryobiology and conservation: the role of biobanks for neotropical deer in Latin America. Biopreserv Biobank. 2025;23(6):575-88.
- Duarte JMB, González S, Maldonado JE. The surprising evolutionary history of South American deer. Mol Phylogenet Evol. 2008;49:17-22.
- Bernegossi AM, et al. Resurrection of the genus Subulo. for the gray brocket deer, with designation of a neotype. J Mammal. 2023;104(3):619-33.
- Morales-Donoso JA, et al. Revalidation of Passalites Gloger, 1841 for the Amazon brown brocket deer P. nemorivagus. (Cuvier, 1817) (Mammalia, Artiodactyla, Cervidae). ZooKeys. 2023;1167:241-64.
- El Bizri HR. Exposing illegal hunting and wildlife depletion in the world's largest tropical country through social media data. Conserv Biol. 2024;38:e14334.
- Pasquariello R, et al. Use of assisted reproductive technologies (ARTs) to shorten the generational interval in ruminants: current status and perspectives. Theriogenology. 2024;225(1):16-32.
- Herrick JR. Assisted reproductive technologies for endangered species conservation: developing sophisticated protocols with limited access to animals with unique reproductive mechanisms. Biol Reprod. 2019;100:1158-70.
- Iqbal A, et al. Conservation of endangered species through somatic cell nuclear transfer (SCNT). Conserv Genet Resour. 2021;13:349-57.
- Hwang I. Successful cloning of coyotes through interspecies somatic cell nuclear transfer (iSCNT) using domestic dog oocytes. Biol Reprod. 2012;87(1):56.
- Loi P, et al. Genetic rescue of an endangered mammal by cross-species nuclear transfer using post-mortem somatic cells. Nat Biotechnol. 2001;19:962-4.
- Gómez MC, et al. Birth of African wildcat cloned kittens born from domestic cats. Cloning Stem Cells. 2004;6:247-58.
- Wani NA, Vettical BS, Hong SB. First cloned Bactrian camel (Camelus bactrianus.) calf produced by interspecies somatic cell nuclear transfer: a step towards preserving the critically endangered wild Bactrian camels. PLoS One. 2017;12:e0177800.
- Ross PJ, Cibelli JB. Bovine somatic cell nuclear transfer. Methods Mol Biol. 2010;636:155-77.
- Choi YH, Velez IC, Macias-Garcia B, Hinrichs K. Timing factors affecting blastocyst development in equine somatic cell nuclear transfer. Cell Reprogram. 2015;17:124-30.
- Herrid H, Van Eenennaam H. Application of zona-free cloning technologies to livestock breeding programmes. Anim Reprod Sci. 2026;287:108107.
- Aguila L, et al. Oocyte selection for in vitro embryo production in bovine species: noninvasive approaches for new challenges of oocyte competence. Animals. 2020;10:2196.
- Vajta G, et al. New method for culture of zona-included or zona-free embryos: the well of the well (WOW) system. Mol Reprod Dev. 2000;55(3):256-64.
- Lagutina I, Fulka H, Lazzari G, Galli C. Interspecies somatic cell nuclear transfer: advancements and problems. Cell Reprogram. 2013;15:374-84.
- Folch J, et al. First birth of an animal from an extinct subspecies (Capra pyrenaica pyrenaica.) by cloning. Theriogenology. 2009;71:1026-34.
- Loi P, Saragusty J, Ptak G. Cloning the mammoth: a complicated task or just a dream. Adv Exp Med Biol. 2014;753:489-502.
- Mastromonaco GF, et al. The influence of nuclear content on developmental competence of gaur cattle hybrid in vitro fertilized and somatic cell nuclear transfer embryos. Biol Reprod. 2007;76:514-23.
- Kim MK, et al. Endangered wolves cloned from adult somatic cells. Cloning Stem Cells. 2007;9:130-7.
- Lanza RP, et al. Cloning of an endangered species (Bos gaurus.) using interspecies nuclear transfer. Cloning. 2000;2(2):79-90.
- Hill J, et al. The effect of donor cell serum starvation and oocyte activation compounds on the development of somatic cell cloned embryos. Cloning. 1999;1:201-8.
- Verma G, et al. Handmade cloning: recent advances, potential and pitfalls. J Anim Sci Biotechnol. 2015;6:43.
- Takenaka M, Horiuchi T, Yanagimachi R. Effect of light on development of mammalian zygote. Proc Natl Acad Sci U S A. 2007;104:14289-93.
- Madani S, Machaty Z, Vajta G. An alternative way to improve mammalian embryo development in vitro: culture of zona pellucida-free embryos. Cell Reprogram. 2022;24(3):111-7.
Ristampe e permessi
Questo articolo è stato pubblicato
Video in arrivo