Questo studio integra la farmacologia delle reti, il docking molecolare validato e esperimenti in vitro per valutare le relazioni tra composti candidati e bersagli tra i costituenti del Cordyceps sinensis e i processi associati alla glomerulonefrite cronica. Il β-sitosterolo è stato selezionato per la validazione a livello del composto ed è risultato attenuare l'attivazione infiammatoria e profibrotica nei modelli di cellule mesangiali.
Articolo metodologico
Valutazione guidata da rete del $\beta$-sitosterolo in modelli di cellule mesangiali infiammatorie e profibrotiche pertinenti alla glomerulonefrite cronica
* These authors contributed equally
In questo articolo
Sommario
Abstract
La glomerulonefrite cronica (CGN) è caratterizzata da un danno infiammatorio persistente e da un rimodellamento fibrotico progressivo, tuttavia le relazioni tra composti e bersagli alla base degli interventi basati su prodotti naturali non sono ancora completamente definite. Questo studio ha integrato la farmacologia di rete, il docking molecolare validato e esperimenti in vitro per valutare i costituenti candidati del Cordyceps sinensis (C. sinensis) nei processi patologici associati alla CGN. Sono stati selezionati i costituenti candidati del C. sinensis e i bersagli associati ai composti derivati dalla Traditional Chinese Medicine Systems Pharmacology Database and Analysis Platform sono stati incrociati con i geni associati alla CGN. Sono state utilizzate analisi di arricchimento funzionale e di interazione proteina-proteina per individuare i processi biologici e i bersagli centrali prioritari. PTGS2 è stato identificato come un bersaglio sovrapposto chiave. Il docking molecolare è stato eseguito utilizzando una struttura di COX-2 legata al celecoxib. Il re-docking del ligando celecoxib co-cristallizzato ha riprodotto la conformazione cristallografica con un RMSD di 0,876 Å, supportando così il protocollo di docking. Il β-sitosterolo e l'acetato di linoleile hanno mostrato una compatibilità predetta con la regione di docking di COX-2, con affinità di legame rispettivamente di −7,2 e −7,5 kcal/mol. Il β-sitosterolo è stato selezionato per la validazione a livello di composto in cellule mesangiali glomerulari di ratto HBZY-1. Tra 0,5 e 10 µM, il β-sitosterolo non ha ridotto in modo significativo la vitalità cellulare. In cellule stimolate dal lipopolisaccaride (LPS), il β-sitosterolo ha ridotto l'espressione di Tnf, Il6 e Ptgs2, ha diminuito la produzione di prostaglandina E2 (PGE2) e ha ridotto l'abbondanza proteica della cicloossigenasi-2 (COX-2). In cellule trattate con fattore di crescita trasformante β1 (TGF-β1), il β-sitosterolo ha ridotto l'espressione di Col1a1 e Acta2 e ha diminuito l'abbondanza proteica dell'actina alfa del muscolo liscio (α-SMA). Questi risultati forniscono evidenze generatrici di ipotesi secondo cui il β-sitosterolo modula l'attivazione infiammatoria e profibrotica nei modelli di cellule mesangiali, ma non dimostrano un'inibizione diretta dell'attività enzimatica della COX-2 né un'efficacia terapeutica nella CGN.
Introduzione
La glomerulonefrite cronica (CGN) comprende un gruppo eterogeneo di disturbi glomerulari che possono progredire fino a malattia renale cronica e insufficienza renale terminale1. È caratterizzata da danno glomerulare persistente, attivazione infiammatoria e rimodellamento fibrotico progressivo2,3. Sebbene corticosteroidi e agenti immunosoppressori vengano utilizzati in pazienti selezionati, il controllo a lungo termine della malattia rimane difficile in molti casi, e gli effetti avversi correlati al trattamento sono comuni1,4,5. La progressione della CGN coinvolge processi patologici interagenti, tra cui attivazione immunitaria, disfunzione endoteliale, stress ossidativo e accumulo della matrice extracellulare3,6,7. Pertanto, l'identificazione di nodi molecolari che collegano le risposte infiammatorie e profibrotiche potrebbe contribuire a generare ipotesi verificabili per strategie terapeutiche pertinenti alla malattia.
Cordyceps sinensis (C. sinensis) è stato utilizzato in contesti clinici e sperimentali legati ai reni ed è stato riportato per esercitare effetti anti-infiammatori, anti-apoptotici e citoprotettivi in diversi modelli di malattia8,9,10. Tuttavia, la base molecolare attraverso la quale i suoi costituenti candidati potrebbero interagire con bersagli rilevanti per la glomerulonefrite rimane insufficientemente definita11. Data la natura multicomponente di C. sinensis e l'eterogeneità meccanicistica della CGN, la farmacologia di rete fornisce un quadro utile per prioritizzare le relazioni tra composti candidati, bersagli e percorsi biologici12,13.
In questo studio, lo screening di composti, il recupero di target, l'analisi dell'intersezione geni-malattia, l'arricchimento funzionale, l'analisi della rete di interazione proteina-proteina, il docking molecolare e la validazione in vitro sono stati integrati per esplorare potenziali relazioni molecolari tra i costituenti candidati di C. sinensis e i processi patologici associati alla CGN. La prostaglandina-endoperossido sintasi 2 (PTGS2) è stata identificata come target centrale nella rete composti-malattia ed è stata valutata mediante docking molecolare utilizzando una struttura della cicloossigenasi-2 (COX-2) legata al celecoxib, con validazione mediante redocking. Sulla base dei risultati della rete, dell'analisi di docking e delle evidenze precedenti relative all'attività antinfiammatoria e antifibrotica, il β-sitosterolo è stato selezionato come composto candidato rappresentativo per la validazione successiva14,15,16. Sono state utilizzate cellule mesangiali stimolate dal lipopolisaccaride (LPS) per valutare l'attivazione infiammatoria e la risposta associata a COX-2/prostaglandina E2 (PGE2), mentre è stato incluso un modello indotto da fattore di crescita trasformante β1 (TGF-β1) per valutare l'espressione dei marcatori profibrotici.
Protocollo
Le analisi di farmacologia delle reti e di bioinformatica si sono basate su database pubblicamente disponibili e non hanno coinvolto partecipanti umani o animali. Gli esperimenti in vitro sono stati condotti utilizzando una linea cellulare stabilita e non richiedevano l'approvazione etica secondo i requisiti istituzionali.
Selezione dei costituenti candidati e recupero delle proteine bersaglio
I costituenti candidati e i loro corrispondenti bersagli sono stati recuperati dal Traditional Chinese Medicine Systems Pharmacology Database and Analysis Platform (TCMSP) utilizzando il termine di ricerca “dongchongxiacao” il 13 luglio 2025. Sono stati mantenuti i composti con una biodisponibilità orale predetta di almeno il 30% e una somiglianza ai farmaci di almeno 0,18. Sette costituenti candidati hanno soddisfatto entrambi i criteri di selezione. Il peso molecolare, la biodisponibilità orale, la somiglianza ai farmaci e altri descrittori farmacocinetici disponibili sono stati registrati dal TCMSP per un confronto descrittivo.
Le informazioni relazionate a composti e target associate ai costituenti conservati sono state scaricate direttamente da TCMSP. Le voci duplicate dei target sono state rimosse manualmente durante la costruzione del set di target non ridondante, mentre le relazioni originali tra composti e target sono state mantenute per la successiva costruzione della rete. Poiché TCMSP forniva i nomi dei target nella loro forma estesa anziché con simboli genici standardizzati, ciascun target è stato ricercato nel database UniProt (accesso effettuato il 14 luglio 2025). È stata selezionata la voce corrispondente all'essere umano e il nome del target è stato convertito nel relativo simbolo genico ufficiale. Il dataset standardizzato di composti e target è stato utilizzato per l'analisi dell'intersezione con i target delle malattie e per la costruzione della rete composto-target.
Raccolta di geni associati alla glomerulonefrite e intersezione degli obiettivi
I geni associati alla malattia sono stati recuperati da GeneCards, DisGeNET, PharmGKB e dal Therapeutic Target Database utilizzando il termine di ricerca “glomerulonephritis” il 14 luglio 2025. Per GeneCards, sono state mantenute le voci con punteggi di rilevanza superiori al punteggio mediano di 10. Le voci idonee provenienti dagli altri database sono state incluse in base alle loro annotazioni curate tra malattia e bersaglio. I nomi dei geni sono stati standardizzati ai simboli ufficiali dei geni umani e le voci duplicate sono state rimosse. Questa procedura ha prodotto 1.134 geni unici associati alla glomerulonefrite. Poiché la ricerca ha utilizzato il termine più generale “glomerulonephritis”, si è ritenuto che il set di dati risultante fosse pertinente ai processi molecolari associati alla glomerulonefrite cronica piuttosto che specifico per un singolo sottotipo istopatologico.
I bersagli associati ai composti derivati da TCMSP sono stati incrociati con il set genico associato alla malattia utilizzando R. Sono stati identificati 23 bersagli sovrapposti. I diagrammi di Venn sono stati generati utilizzando il pacchetto R venn, mentre la rete tra composti e bersagli sovrapposti è stata costruita e visualizzata mediante Cytoscape. Le relazioni tra i costituenti candidati e i bersagli sovrapposti sono riassunte nella Tabella 1.
Analisi di arricchimento funzionale e interazioni proteina-proteina
Sono state eseguite analisi di arricchimento Gene Ontology (GO) e Kyoto Encyclopedia of Genes and Genomes (KEGG) in R utilizzando clusterProfiler e org.Hs.eg.db. I termini Gene Ontology sono stati analizzati nelle categorie processo biologico, componente cellulare e funzione molecolare. I valori P sono stati corretti per i test multipli mediante il metodo di Benjamini-Hochberg e sono stati mantenuti i termini o i percorsi con valori P corretti inferiori a 0,05. I termini e i percorsi arricchiti sono stati visualizzati utilizzando grafici a barre e grafici a punti generati autonomamente.
I 23 bersagli sovrapposti sono stati sottoposti a STRING, selezionando Homo sapiens come organismo e un punteggio minimo di interazione superiore a 0,4. La rete di interazione proteina-proteina risultante è stata importata in Cytoscape. La topologia della rete è stata valutata utilizzando CytoNCA in base al grado, alla centralità di intermediazione, alla centralità di vicinanza, alla centralità degli autovettori, alla connettività media locale e alla centralità della rete. I bersagli principali (hub) sono stati definiti come nodi per i quali i valori di grado, centralità di intermediazione, centralità di vicinanza, centralità degli autovettori, connettività media locale e centralità della rete erano tutti superiori ai rispettivi valori mediani della rete. Questa analisi ha individuato nove bersagli principali per l'interpretazione successiva.
Docking molecolare e validazione mediante redocking
Il docking molecolare è stato eseguito utilizzando la struttura della cicloossigenasi-2 legata al celecoxib, con identificativo PDB 3LN1. La catena A e il relativo gruppo eme sono state mantenute come recettore, mentre durante la preparazione del recettore sono state rimosse le molecole di acqua cristallografica e il ligando di celecoxib co-cristallizzato. La conformazione nativa del celecoxib è stata estratta separatamente dalla catena A per la validazione mediante redocking. Gli atomi di idrogeno polari e le cariche di Gasteiger sono stati aggiunti utilizzando AutoDockTools, e il recettore è stato salvato in formato PDBQT. L'identificativo PDB 3LN1 corrisponde a una struttura della COX-2 murina legata al celecoxib con risoluzione di 2,40 Å. Le strutture del β-sitosterolo e dell'acetato di linoleile sono state ottenute da PubChem e preparate utilizzando Open Babel. Sono stati aggiunti atomi di idrogeno e cariche parziali di Gasteiger, sono stati assegnati i legami ruotabili e ciascun ligando è stato convertito in formato PDBQT. Celecoxib, β-sitosterolo e acetato di linoleile sono stati sottoposti a docking utilizzando AutoDock Vina con lo stesso recettore e gli stessi parametri di ricerca.
La scatola di docking è stata centrata sulla regione di legame nativa della celecoxib utilizzando le seguenti coordinate: center_x = 30,9886 center_y = -22,2836 center_z = -16,5072 size_x = 26 Å size_y = 26 Å size_z = 26 Å. Il valore di esauribilità è stato impostato a 16, il numero di modalità di output a 10 e l'intervallo energetico a 3 kcal/mol. La conformazione con il punteggio migliore, basata sull'energia di legame prevista più bassa, è stata mantenuta per la visualizzazione. Per la validazione del protocollo, la celecoxib nativa è stata re-dockata nelle stesse condizioni e la deviazione quadratica media degli atomi pesanti tra le conformazioni cristallografica e re-dockata è stata calcolata utilizzando PyMOL. Una deviazione quadratica media inferiore a 2 Å è stata considerata una riproduzione accettabile della conformazione di riferimento. I residui situati entro 4 Å da ciascun ligando dockato sono stati identificati in PyMOL. I punteggi di docking e le conformazioni sono stati interpretati come stime della compatibilità strutturale e non come prova diretta di legame al bersaglio o di inibizione enzimatica.
Coltura cellulare e preparazione del composto
Le cellule mesangiali glomerulari di ratto HBZY-1 sono state coltivate in terreno di Eagle modificato da Dulbecco ad alto contenuto di glucosio, integrato con siero fetale bovino al 10% e penicillina-streptomicina all'1%, a 37 °C in condizioni umidificate con 5% di CO₂. Per tutti gli esperimenti sono state utilizzate cellule ai passaggi 2–7, e lo stato privo di micoplasmi è stato verificato prima dell'uso. Il β-sitosterolo e la celecoxib sono stati utilizzati come composti chimicamente definiti. Il β-sitosterolo è stato disciolto in etanolo assoluto per ottenere una soluzione madre da 10 mM (circa 4,15 mg/mL). Se necessario, sono state effettuate brevi sonificazioni e riscaldamento a 50–60 °C per ottenere una soluzione chiara alla vista. La celecoxib è stata disciolta in dimetilsulfossido per preparare una soluzione madre da 10 mM (circa 3,81 mg/mL). Le soluzioni madri sono state allicate e conservate a −20 °C. Prima del trattamento, le soluzioni madri sono state diluite direttamente nel mezzo di coltura preriscaldato e immediatamente miscelate.
Le concentrazioni del veicolo sono state bilanciate all'interno di ciascun esperimento. Nel saggio di vitalità cellulare, la concentrazione finale di etanolo è stata aggiustata allo 0,2% v/v in tutti i gruppi poiché la concentrazione più alta di β-sitosterolo testata era di 20 µM. Nell'esperimento infiammatorio indotto da LPS, le concentrazioni finali di etanolo e dimetilsulfossido sono state aggiustate rispettivamente allo 0,1% e allo 0,01% v/v in tutti i gruppi. Nell'esperimento profibrotico indotto da TGF-β1, la concentrazione finale di etanolo è stata aggiustata allo 0,1% v/v in tutti i gruppi. Sono stati aggiunti volumi equivalenti dei rispettivi veicoli ai gruppi Controllo, LPS e TGF-β1.
Saggio di vitalità cellulare
Le cellule sono state seminate in piastre a 96 pozzetti a una densità di 5 × 10³ cellule per pozzetto in 100 µL di mezzo completo e lasciate aderire per 24 h. Per valutare l'intervallo di concentrazione del β-sitosterolo, le cellule sono state incubate con 0,5, 1, 5, 10 o 20 µM di β-sitosterolo per 24 h. Per il saggio di vitalità cellulare correlato alla LPS, le cellule sono state pretrattate con β-sitosterolo a 1, 5 o 10 µM per 2 h, seguito da esposizione a 1 µg/mL di lipopolisaccaride per ulteriori 24 h.
I gruppi di trattamento erano: Controllo, β-sitosterolo a 0,5 µM, β-sitosterolo a 1 µM, β-sitosterolo a 5 µM, β-sitosterolo a 10 µM, β-sitosterolo a 20 µM, LPS, LPS più β-sitosterolo a 1 µM, LPS più β-sitosterolo a 5 µM e LPS più β-sitosterolo a 10 µM. Il reagente del Cell Counting Kit-8 è stato aggiunto in quantità di 10 µL per pozzetto e le piastre sono state incubate per 2 h. Successivamente, l'assorbanza è stata registrata a 450 nm. La vitalità cellulare è stata determinata sottraendo il valore del bianco senza cellule ed espressa in rapporto al gruppo di Controllo. Ogni condizione comprendeva sei pozzetti tecnici per ciascuno dei sei esperimenti biologici indipendenti. I valori dei pozzetti tecnici di ogni esperimento sono stati mediati per ottenere un singolo valore di replicato biologico da utilizzare nell'analisi statistica.
Attivazione infiammatoria indotta da LPS
Per esperimenti di attivazione infiammatoria, le cellule HBZY-1 sono state seminate in piastre a 6 pozzetti a una densità di 2 × 10⁵ cellule per pozzetto e trattate dopo aver raggiunto una confluenza di circa il 70%–80%. Le cellule sono state mantenute in mezzo integrato con il 1% di siero fetale bovino per 12 h prima del trattamento. Il β-sitosterolo o il celecoxib sono stati somministrati 2 h prima della stimolazione con LPS. Successivamente, le cellule sono state esposte a 1 µg/mL di LPS per 24 h.
I gruppi sperimentali erano: Controllo, β-sitosterolo a 10 µM, LPS, LPS più β-sitosterolo a 1 µM, LPS più β-sitosterolo a 5 µM, LPS più β-sitosterolo a 10 µM e LPS più celecoxib a 1 µM. Il celecoxib è stato incluso come controllo positivo funzionale per l'inibizione della produzione di prostaglandine dipendente da COX-2. Al termine del trattamento, i supernatanti di coltura sono stati raccolti per la misurazione del PGE2. Le cellule sono state raccolte separatamente per l'analisi quantitativa in tempo reale mediante PCR di Tnf, Il6 e Ptgs2 e per l'analisi mediante western blot di COX-2.
Attivazione profibrotica indotta da TGF-β1
È stato utilizzato un modello indotto da TGF-β1 separato per valutare l'attivazione profibrotica. Le cellule HBZY-1 sono state seminate in piastre a 6 pozzetti a una densità di 2 × 10⁵ cellule per pozzetto e mantenute in mezzo integrato con 1% di siero fetale bovino per 12 h prima del trattamento. Le cellule sono state pretrattate con β-sitosterolo per 2 h, seguite da stimolazione con 10 ng/mL di TGF-β1 ricombinante per 48 h.
I gruppi di trattamento includevano Controllo, β-sitosterolo (10 µM), TGF-β1, TGF-β1 + β-sitosterolo (5 µM) e TGF-β1 + β-sitosterolo (10 µM). Al termine del periodo di trattamento, le cellule sono state raccolte per l'analisi di Col1a1 e Acta2 mediante PCR quantitativa in tempo reale e per l'analisi della proteina alfa-actina muscolare liscia (α-SMA) mediante western blot.
PCR quantitativa in tempo reale
L'RNA totale è stato isolato da cellule trattate utilizzando un reagente per l'estrazione dell'RNA a base di fenolo-guanidinio, seguendo il protocollo del produttore. La concentrazione e la purezza dell'RNA sono state determinate mediante spettrofotometro. Solo i campioni con un rapporto A260/A280 compreso tra 1,8 e 2,0 sono stati utilizzati per la trascrizione inversa. Per ciascun campione, 1 µg di RNA totale è stato trascritto in DNA complementare in un volume finale di reazione di 20 µL. Il DNA complementare ottenuto è stato diluito di cinque volte con acqua priva di nucleasi prima della PCR quantitativa. La PCR quantitativa è stata eseguita in un volume totale di 20 µL contenente 10 µL di master mix 2× SYBR Green, 0,4 µL ciascuno di primer diretto e inverso a 10 µM, 2 µL di DNA complementare diluito e 7,2 µL di acqua priva di nucleasi. Le condizioni di amplificazione prevedevano un passaggio iniziale di denaturazione a 95 °C per 30 s, seguito da 40 cicli di denaturazione a 95 °C per 5 s e di ibridazione-estensione a 60 °C per 30 s. Successivamente, è stata effettuata un'analisi della curva di denaturazione da 65 °C a 95 °C per verificare la specificità dell'amplificazione.
I geni misurati erano Tnf, Il6, Ptgs2, Col1a1, Acta2 e Gapdh. Gapdh è stato utilizzato come gene di riferimento interno. L'espressione genica relativa è stata determinata utilizzando il metodo 2−ΔΔCt, con il gruppo Controllo utilizzato come calibratore. Le sequenze dei primer sono riportate nella Tabella Supplementare 1. Ogni campione è stato analizzato in triplicato tecnico e sono stati eseguiti sei esperimenti biologici indipendenti. I valori ottenuti dai replicati tecnici sono stati mediati prima dell'analisi statistica.
Misurazione del PGE2 mediante saggio immunoenzimatico (ELISA)
I supernatanti di coltura sono stati raccolti dopo 24 h di stimolazione con LPS e centrifugati a 1.000 ×g per 10 min a 4 °C per rimuovere i detriti cellulari. Le concentrazioni di PGE2 sono state determinate utilizzando un kit commerciale per saggio immunoenzimatico (ELISA) secondo le istruzioni del produttore.
Standard e campioni sono stati caricati sulla piastra del saggio in duplicato. Al termine dei passaggi di legame dell'anticorpo e di sviluppo del colore, l'assorbanza è stata registrata a 450 nm utilizzando un lettore per micropiastre. Le concentrazioni di PGE2 sono state determinate mediante una curva standard logistica a quattro parametri ed espresse in pg/mL. Sono stati analizzati i sopranatanti di sei esperimenti cellulari indipendenti. Le misurazioni duplicate per ciascun campione biologico sono state mediate prima dell'analisi statistica.
Immunoblotting
Le cellule trattate sono state lisate in un buffer per saggio di immunoprecipitazione radioattiva integrato con una miscela di inibitori delle proteasi. I lisati sono stati incubati sul ghiaccio per 30 minuti e centrifugati a 12.000 × g per 15 minuti a 4 °C. Le concentrazioni proteiche nei soprannatanti sono state determinate mediante un saggio proteico con acido bicinconinico. Quantità uguali di proteina (30 µg per pozzetto) sono state mescolate con buffer di caricamento e denaturate a 95 °C per 5 minuti. Le proteine provenienti dagli esperimenti con LPS sono state separate su gel di elettroforesi in poliacrilamide contenenti dodecilsolfato di sodio al 10%, mentre quelle provenienti dagli esperimenti con TGF-β1 sono state separate su gel al 12%. Le proteine separate sono state successivamente trasferite su membrane di fluoruro di polivinilidene.
Le membrane sono state bloccate con latte scremato al 5% in soluzione salina tamponata al Tris contenente Tween 20 allo 0,1% per 1 h a temperatura ambiente, quindi incubate tutta la notte a 4 °C con anticorpi primari contro COX-2 (1:1000), α-SMA (1:1000) e GAPDH (1:5000). L'analisi di COX-2 è stata effettuata su campioni provenienti dall'esperimento con LPS, mentre l'analisi di α-SMA è stata effettuata su campioni provenienti dall'esperimento con TGF-β1. Dopo il lavaggio, le membrane sono state incubate con anticorpi secondari marcati con perossidasi di rafano (1:5000) per 1 h a temperatura ambiente. Le bande proteiche sono state visualizzate mediante un substrato chemiluminescente migliorato e acquisite con un sistema di imaging chemiluminescente. I tempi di esposizione sono stati di circa 10 s per COX-2, 10 s per α-SMA e 2 s per GAPDH.
Le intensità delle bande sono state quantificate utilizzando ImageJ. I segnali di COX-2 e α-SMA sono stati normalizzati rispetto al corrispondente segnale di GAPDH. Il western blotting è stato eseguito utilizzando campioni proteici ottenuti da sei esperimenti indipendenti di coltura cellulare e trattamento.
Analisi statistica
Le analisi statistiche sono state effettuate utilizzando GraphPad Prism. I dati sono presentati come media ± deviazione standard. Per ogni analisi quantitativa sono stati eseguiti sei esperimenti indipendenti di coltura cellulare e trattamento, ciascuno dei quali rappresenta un replicato biologico. Le misurazioni dei replicati tecnici ottenute dallo stesso esperimento biologico sono state mediate prima dell'analisi statistica e non sono state considerate osservazioni indipendenti.
Per il saggio di vitalità cellulare, ogni esperimento biologico includeva sei pozzetti tecnici per ogni condizione. Le reazioni di PCR quantitativa sono state eseguite in triplicato tecnico per ogni campione biologico, e le misurazioni di PGE2 sono state effettuate in duplicato. La quantificazione del Western blot si basava su sei campioni proteici preparati indipendentemente. Pertanto, ogni barra quantitativa contiene sei valori provenienti da replicati biologici individuali.
Le differenze tra più gruppi sono state analizzate mediante analisi della varianza ad un fattore seguita dal test di confronto multiplo di Tukey. Un valore di P bilaterale < 0,05 è stato considerato statisticamente significativo. I valori individuali dei replicati biologici sono stati mostrati insieme alla media e alla deviazione standard.
Risultati
Selezione dei costituenti candidati, recupero delle proteine bersaglio e intersezione dei bersagli
Il flusso di lavoro per l'identificazione dei potenziali bersagli comuni tra composti e malattie è riassunto nella Figura 1A. Sette composti candidati di C. sinensis hanno soddisfatto i criteri predeterminati di screening, con un OB ≥30% e un DL ≥0,18, tra cui acido arachidonico, acetato di linoleile, β-sitosterolo, perossiergosterolo, cerevisterolo, palmitato di colesterolo e CLR (Tabella 2). Parallelamente, sono stati recuperati 1.134 geni associati alla glomerulonefrite da GeneCards, DisGeNET, PharmGKB e TTD, e la loro distribuzione nei quattro database è mostrata nella Figura 1B. L'analisi di intersezione tra l'insieme di bersagli associati ai composti e l'insieme di geni associati alla malattia ha identificato 23 bersagli sovrapposti (Tabella 1, Figura 1C). La rete corrispondente tra composti e bersagli sovrapposti è presentata nella Figura 1D, che illustra le relazioni tra i composti candidati rappresentativi, i bersagli sovrapposti e la CGN. Tra questi bersagli sovrapposti figurano diversi geni coinvolti nella regolazione dell'infiammazione, nell'apoptosi e nei segnali associati ai vasi sanguigni, come PTGS2, CASP3, MAPK1, PPARG, TNFRSF1A e NOS3.
Analisi di arricchimento funzionale e interazioni proteina-proteina
Per indagare il significato biologico delle 23 proteine sovrapposte, sono state effettuate analisi di arricchimento delle vie GO e KEGG. I risultati hanno rivelato che queste proteine sono significativamente arricchite in molteplici vie correlate all'infiammazione e al metabolismo.
L'analisi GO ha classificato le proteine bersaglio nelle categorie di processo biologico (BP), componente cellulare (CC) e funzione molecolare (MF). I termini BP più significativamente arricchiti includevano la risposta al lipopolisaccaride, la risposta a molecole di origine batterica e la regolazione dei processi del sistema muscolare. A livello cellulare, i bersagli erano arricchiti nei compartimenti del raft della membrana, della caveola e del granulo alfa delle piastrine, mentre i termini MF come l'attività di ossidoriduttasi e il legame ai recettori nucleari indicavano ulteriormente ruoli nello stress ossidativo e nella regolazione trascrizionale (Figura 2A).
L'analisi KEGG ha rivelato che il percorso metabolico dei lipidi e dell'aterosclerosi (hsa05417) era il più significativamente arricchito (q-value <1 × 10⁻⁶), insieme a percorsi come la segnalazione AGE–RAGE nelle complicanze del diabete, la segnalazione del TNF, la segnalazione dell'IL-17 e la segnalazione dell'HIF-1 (Figura 2B). In particolare, il percorso metabolico dei lipidi e dell'aterosclerosi coinvolgeva 10 dei 23 bersagli, tra cui CASP3, MAPK1, PPARG, NOS3 e TNFRSF1A.
Nel complesso, questi risultati di arricchimento indicano che le proteine bersaglio sovrapposte sono funzionalmente associate a processi biologici infiammatori, di risposta allo stress e correlati all'endotelio, rilevanti per la CGN.
Analisi della Rete di Interazione Proteina-Proteina
È stata costruita una rete di interazioni proteina-proteina (PPI) per i 23 bersagli sovrapposti utilizzando STRING, ottenendo una rete composta da 23 nodi e 102 archi (Figura 3A). L'analisi topologica effettuata con CytoNCA ha identificato nove bersagli centrali altamente connessi: PTGS2, MAPK1, PPARG, CASP3, EGF, JUN, PECAM1, BCL2 e PRKCA (Figura 3B). Tra questi bersagli, PTGS2 ha mostrato una marcata centralità nella rete ed è stato pertanto selezionato per l'analisi successiva di docking molecolare. Questi risultati evidenziano un sottoinsieme di regolatori candidati prioritizzati dalla rete, potenzialmente rilevanti per l'intersezione tra composto e malattia.
Validazione del Docking Molecolare e del Redocking
Per valutare ulteriormente la plausibilità strutturale delle relazioni candidate associate a PTGS2 identificate mediante analisi di rete, è stato effettuato un docking molecolare utilizzando una struttura della COX-2 legata al celecoxib. È stata selezionata la struttura cristallina con identificativo PDB 3LN1 poiché contiene celecoxib legato al sito attivo della COX-2, fornendo così una cavità di legame del ligando definita sperimentalmente per la validazione del docking. Il ligando celecoxib co-cristallizzato è stato inizialmente estratto e successivamente re-inserito (re-docked) nella stessa cavità di legame. La posizione (pose) del celecoxib re-inserito ha riprodotto in modo molto accurato quella cristallografica, con una deviazione quadratica media (RMSD) di riposizionamento di 0,876 Å e un'affinità di legame prevista di -12,3 kcal/mol (Figura 4A). Questo risultato ha indicato che il protocollo di docking era in grado di riprodurre la posizione nota di legame del ligando nelle condizioni di docking selezionate.
Utilizzando lo stesso recettore, box della griglia e parametri di docking, il β-sitosterolo è stato inserito nella regione di legame della COX-2 definita dal celecoxib. Il β-sitosterolo ha mostrato un'affinità di legame prevista di -7,2 kcal/mol (Figura 4B). La conformazione ottenuta si trovava all'interno della regione di docking della COX-2 precedentemente definita, e i residui che circondavano la conformazione del β-sitosterolo includevano ASN567, ASP333, GLN178, GLN336, GLY340, HIS337, HIS80, PRO500, THR79 e TYR341.
Il linoleato di acetile è stato valutato anche come candidato secondario nel calcolo, poiché è stato mantenuto nell'elenco dei costituenti candidati ed è risultato associato a PTGS2 nell'analisi della rete. Nelle stesse condizioni di docking, il linoleato di acetile ha mostrato un'affinità di legame prevista di -7,5 kcal/mol, leggermente più favorevole rispetto a quella del β-sitosterolo (Figura 4C). La posizione prevista si è collocata vicino al ligando di riferimento celecoxib all'interno della regione di docking. I residui che circondano il linoleato di acetile includevano ALA502, ALA513, ARG106, ARG499, GLN178, GLY512, HIS75, ILE503, LEU338, LEU345, LEU517, MET508, PHE504, SER339, SER516, TRP373, TYR371, VAL102, VAL335 e VAL509.
Viabilità cellulare, attivazione infiammatoria e attivazione profibrotica
Il β-sitosterolo è stato selezionato per la validazione a livello di composto perché era stato identificato come un candidato associato a PTGS2 nell'analisi della rete ed era già supportato da evidenze sperimentali riguardo alla sua attività antinfiammatoria e antifibrotica. La vitalità cellulare è stata innanzitutto valutata per determinare il range di concentrazioni adatto per i successivi esperimenti. Il trattamento con β-sitosterolo a 0,5, 1, 5 e 10 µM non ha ridotto in modo significativo la vitalità cellulare rispetto al gruppo di controllo, mentre a 20 µM il β-sitosterolo ha causato un lieve calo. L'esposizione a LPS ha ridotto la vitalità cellulare e il trattamento concomitante con β-sitosterolo ha migliorato parzialmente la vitalità cellulare in condizioni di stimolazione con LPS, con l'effetto più evidente osservato a 10 µM (Figura 5A). Sulla base di questi risultati, le concentrazioni di 1, 5 e 10 µM di β-sitosterolo sono state utilizzate nei successivi esperimenti di attivazione infiammatoria indotta da LPS.
La stimolazione con LPS ha notevolmente aumentato l'espressione mRNA dei geni infiammatori nelle cellule HBZY-1. Rispetto al gruppo di controllo, il gruppo trattato con LPS ha mostrato livelli di espressione più elevati di Tnf, Il6 e Ptgs2 (Figura 5B-D). Il trattamento con β-sitosterolo ha ridotto l'upregolazione indotta da LPS di questi geni in maniera dose-dipendente. La tendenza inibitoria è risultata più evidente nel gruppo con LPS più 10 µM di β-sitosterolo. Il celecoxib, incluso come controllo funzionale di un inibitore della COX-2, ha ridotto in una certa misura anche l'espressione dei geni infiammatori, sebbene il suo effetto sia risultato meno pronunciato rispetto a quello osservato con 10 µM di β-sitosterolo per diversi marcatori trascrizionali (Figura 5B-D).
Poiché Ptgs2 codifica per COX-2 e PGE2 è un principale prodotto prostaglandinico a valle dell'attività di COX-2, la secrezione di PGE2 è stata misurata mediante ELISA. Il trattamento con LPS ha aumentato la concentrazione di PGE2 nel sopranatante di coltura rispetto al gruppo di controllo. Il β-sitosterolo ha ridotto la produzione di PGE2 indotta da LPS in maniera dose-dipendente. Anche il celecoxib ha ridotto la produzione di PGE2 ed è stato utilizzato come controllo positivo per l'inibizione funzionale dell'asse COX-2/PGE2 (Figura 5E). L'analisi mediante Western blot ha inoltre mostrato che la LPS aumenta l'abbondanza proteica di COX-2. Il trattamento con β-sitosterolo ha ridotto i livelli proteici di COX-2 in condizioni di stimolazione con LPS, con una riduzione più marcata osservata alla concentrazione più elevata. Al contrario, il celecoxib ha ridotto la produzione di PGE2 ma ha mostrato un effetto più limitato sull'abbondanza proteica di COX-2 (Figura 5F).
Per integrare il modello infiammatorio indotto da LPS, è stato utilizzato un modello di attivazione profibrotica indotto da TGF-β1 per valutare se il β-sitosterolo influenzasse l'espressione dei marcatori fibrotici nelle cellule mesangiali. Il TGF-β1 ha aumentato in modo significativo l'espressione mRNA di Col1a1 e Acta2 rispetto al gruppo di controllo (Figura 6A,B). Il β-sitosterolo ha ridotto l'aumento indotto da TGF-β1 in entrambi i marcatori, e la riduzione è risultata più evidente a 10 µM rispetto a 5 µM (Figura 6A,B). L'analisi mediante Western blot ha mostrato un aumento corrispondente dell'espressione proteica di α-SMA dopo la stimolazione con TGF-β1, mentre il trattamento con β-sitosterolo ha ridotto l'abbondanza della proteina α-SMA nelle cellule trattate con TGF-β1 (Figura 6C).
DISPONIBILITÀ DEI DATI:
I dati grezzi e quelli elaborati a supporto di questo studio sono stati depositati su Zenodo con DOI: https://zenodo.org/records/21649482. Le immagini a scansione completa del bullone western sono fornite nel File Supplementare 1.
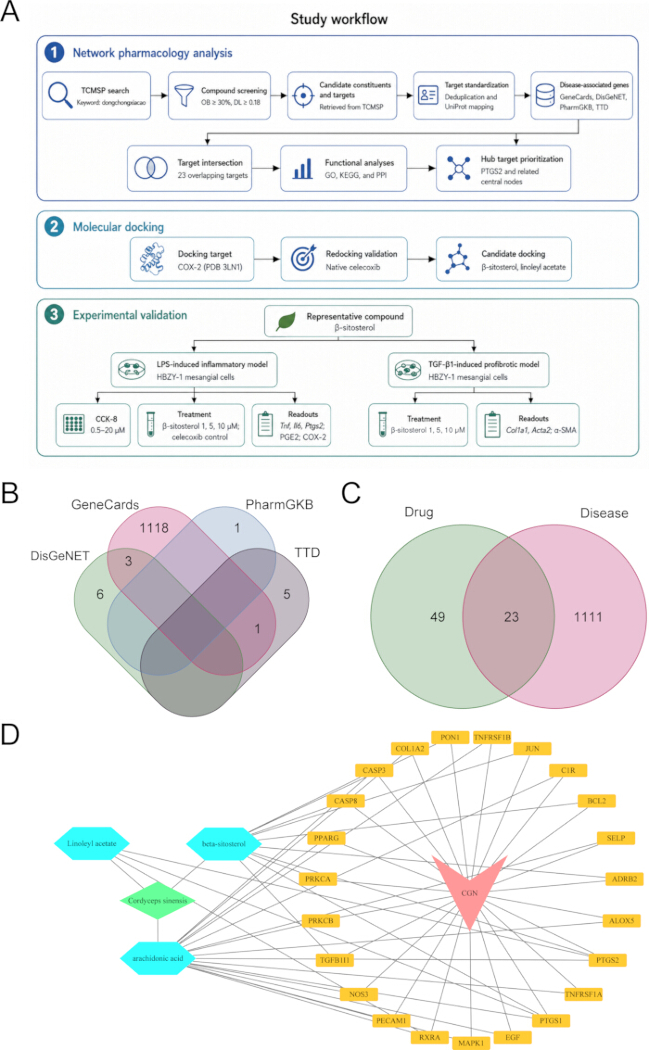
Figura 1. Identificazione basata su flusso di lavoro e su rete dei bersagli sovrapposti candidati di composti e malattie di C. sinensis nella glomerulonefrite. (A) Flusso di lavoro schematizzato che illustra l'identificazione dei composti candidati, il recupero e la standardizzazione dei bersagli associati ai composti, il recupero dei geni associati alla glomerulonefrite, l'analisi dell'intersezione e la costruzione della rete bersaglio sovrapposto–composto. (B) Diagramma di Venn che illustra la distribuzione dei geni associati alla glomerulonefrite recuperati da GeneCards, DisGeNET, PharmGKB e TTD. (C) Diagramma di Venn che mostra la sovrapposizione tra i bersagli associati ai composti derivati da TCMSP e i geni associati alla malattia, ottenendo 23 bersagli sovrapposti. (D) Rete bersaglio sovrapposto–composto. Il rombo verde rappresenta C. sinensis, gli esagoni blu indicano i composti candidati, i cerchi gialli indicano i bersagli sovrapposti e il triangolo rosa rappresenta CGN. I collegamenti indicano le corrispondenti relazioni tra composto–bersaglio o malattia–bersaglio. Cliccare qui per visualizzare una versione ingrandita di questa figura.
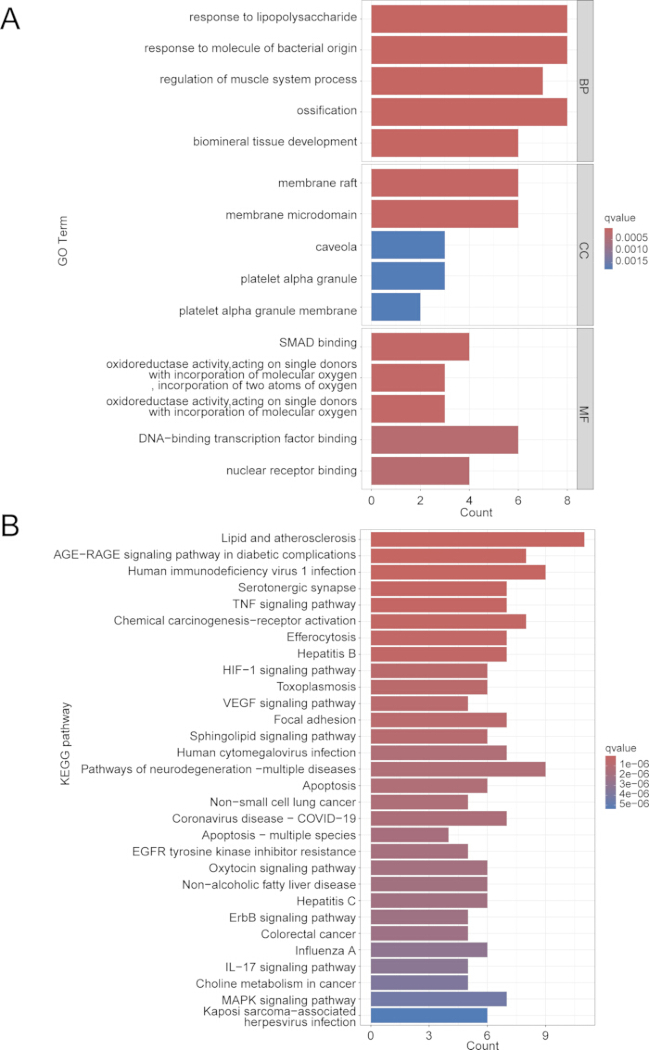
Figura 2. Analisi di arricchimento funzionale delle proteine sovrapposte. (A) Analisi di arricchimento GO delle 23 proteine sovrapposte. Sono stati identificati i principali termini BP, CC e MF. La lunghezza delle barre indica il numero di geni; il gradiente di colore rappresenta il valore q. (B) Analisi di arricchimento KEGG delle 23 proteine sovrapposte. I percorsi sono ordinati in base al numero di geni e alla significatività statistica. Cliccare qui per visualizzare una versione ingrandita di questa figura.
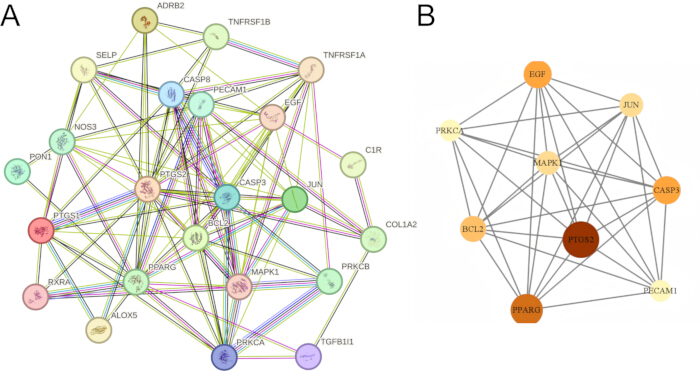
Figura 3. Rete di interazioni proteina-proteina e priorizzazione dei bersagli centrali tra i bersagli sovrapposti. (A) Rete di interazioni proteina-proteina costruita a partire dai 23 bersagli sovrapposti utilizzando STRING con una soglia del punteggio di interazione >0,4. (B) I nove principali bersagli centrali sono stati prioritizzati mediante analisi della topologia della rete basata su CytoNCA. PTGS2 ha mostrato una marcata centralità nella rete ed è stato selezionato per l'analisi successiva di docking molecolare. Cliccare qui per visualizzare una versione ingrandita di questa figura.
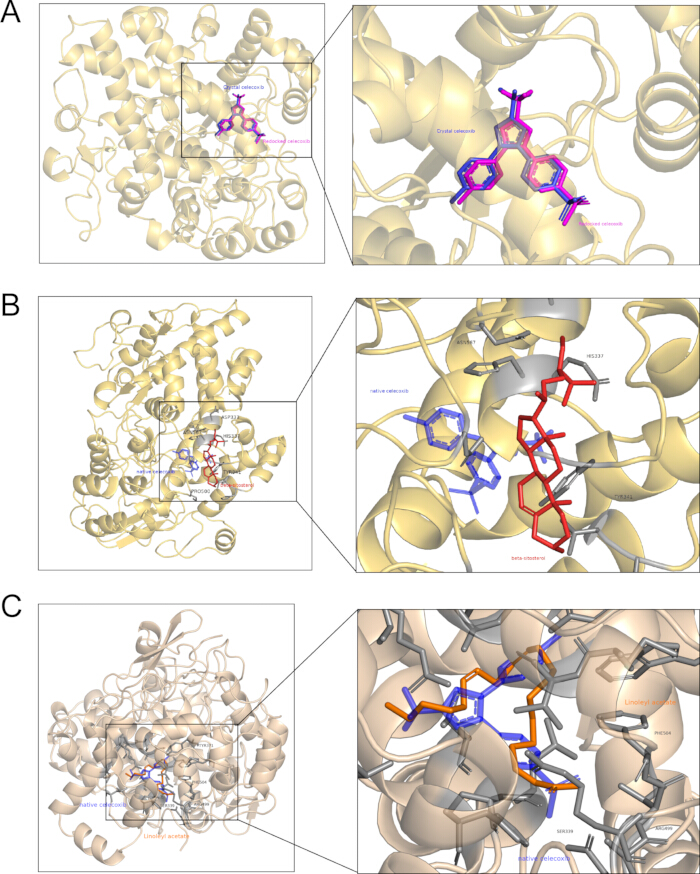
Figura 4. Docking molecolare e validazione del redocking di composti candidati selezionati con COX-2. (A) Sovrapposizione della posa cristallografica di celecoxib e della posa redocked con punteggio più alto nella struttura murina di COX-2 legata al celecoxib (PDB ID 3LN1). Il redocking ha riprodotto l'orientamento sperimentale del legame. (B) Posa di docking con punteggio più alto di β-sitosterolo all'interno della regione di docking di COX-2 definita dal celecoxib. La posa cristallografica del celecoxib è inclusa come riferimento spaziale. (C) Posa di docking con punteggio più alto di acetato di linoleile all'interno della stessa regione di docking. Cliccare qui per visualizzare una versione ingrandita di questa figura.
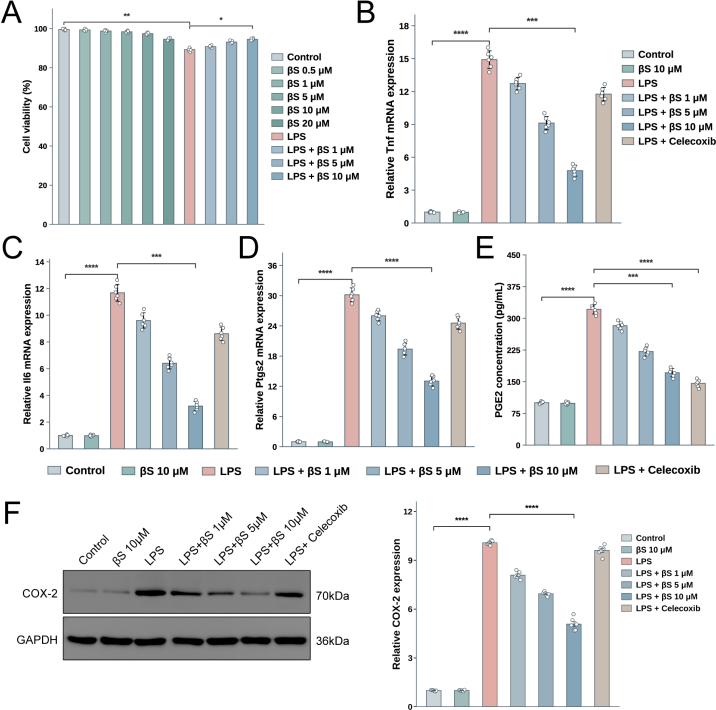
Figura 5. Il β-sitosterolo attenua l'attivazione infiammatoria indotta da LPS e la produzione di PGE2 nelle cellule mesangiali HBZY-1. (A) La vitalità cellulare è stata misurata mediante saggio con il Cell Counting Kit-8. Le cellule sono state trattate con β-sitosterolo a 0,5, 1, 5, 10 o 20 µM per 24 h. Nei gruppi stimolati con LPS, le cellule sono state pretrattate con β-sitosterolo a 1, 5 o 10 µM per 2 h prima dell'esposizione a 1 µg/mL di LPS per 24 h. La vitalità cellulare è espressa rispetto al gruppo Controllo. (B–D) Analisi quantitativa mediante PCR in tempo reale dell'espressione mRNA di Tnf (B), Il6 (C) e Ptgs2 (D). L'espressione genica è stata normalizzata rispetto a Gapdh ed espressa rispetto al gruppo Controllo. (E) Concentrazioni di PGE2 nei supernatanti di coltura misurate mediante saggio immunoenzimatico (ELISA). Il celecoxib è stato incluso come controllo positivo funzionale per l'inibizione della produzione di prostaglandine dipendente da COX-2. (F) Immagini rappresentative di immunoblotting di COX-2 e GAPDH nei gruppi di trattamento indicati. I dati sono espressi come media ± DS di sei esperimenti biologici indipendenti, con i valori individuali di ciascun replicato biologico mostrati. I valori dei replicati tecnici sono stati mediati prima dell'analisi. I confronti sono stati effettuati mediante ANOVA a un fattore seguita dal test post hoc di Tukey per confronti multipli. La significatività è indicata da parentesi nei singoli pannelli: *P < 0,05, **P < 0,01, ***P < 0,001 e ****P < 0,0001. Cliccare qui per visualizzare una versione ingrandita di questa figura.
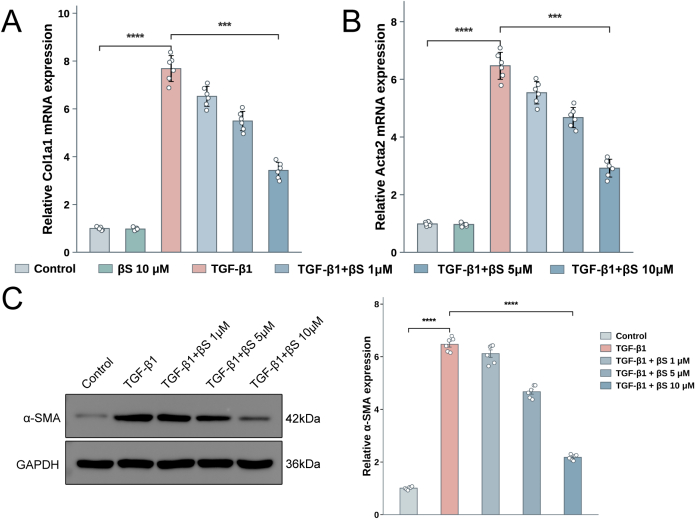
Figura 6. Il β-sitosterolo riduce l'espressione dei marcatori profibrotici indotta da TGF-β1 nelle cellule mesangiali HBZY-1. (A–B) Analisi di PCR quantitativa in tempo reale dell'espressione dell'mRNA di Col1a1 (A) e Acta2 (B). L'espressione genica è stata normalizzata rispetto a Gapdh ed espressa in relazione al gruppo Controllo. (C) Immagini rappresentative di immunoblotting per α-SMA e GAPDH nei gruppi di trattamento indicati. I dati sono espressi come media ± DS di sei esperimenti biologici indipendenti, con i valori individuali di ciascun replicato biologico mostrati. I valori dei replicati tecnici sono stati mediati prima dell'analisi. I confronti sono stati effettuati mediante ANOVA a un fattore seguita dal test post hoc di Tukey per confronti multipli. La significatività è indicata da parentesi nei singoli pannelli: *P < 0,05, **P < 0,01, ***P < 0,001 e ****P < 0,0001. Cliccare qui per visualizzare una versione ingrandita di questa figura.
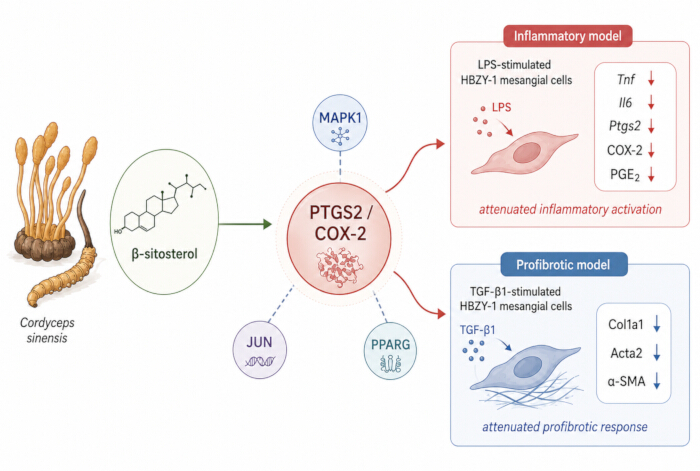
Figura 7. Interpretazione integrata delle risposte infiammatorie e profibrotiche associate al β-sitosterolo nelle cellule HBZY-1. Le analisi di rete e docking hanno individuato PTGS2/COX-2 in un contesto più ampio che includeva MAPK1, JUN e PPARG. Il trattamento con β-sitosterolo è stato associato a una riduzione dell'espressione di Tnf, Il6 e Ptgs2 indotta da LPS, all'abbondanza proteica di COX-2 e alla produzione di PGE2, nonché a una riduzione dell'espressione di Col1a1, Acta2 e di α-SMA indotta da TGF-β1. Cliccare qui per visualizzare una versione ingrandita di questa figura.
| N. | Target sovrapposto | Composto(i) candidato associato(i) al target |
| 1 | PTGS1 | β-sitosterolo; acetato di linoleile; acido arachidonico |
| 2 | PTGS2 | β-sitosterolo; acetato di linoleile; acido arachidonico |
| 3 | CASP3 | β-sitosterolo; acido arachidonico |
| 4 | CASP8 | β-sitosterolo |
| 5 | BCL2 | β-sitosterolo |
| 6 | JUN | β-sitosterolo |
| 7 | PON1 | β-sitosterolo |
| 8 | PRKCA | β-sitosterolo |
| 9 | TGFB1I1 | β-sitosterolo |
| 10 | ADRB2 | β-sitosterolo |
| 11 | RXRA | acetato di linoleile; acido arachidonico |
| 12 | TNFRSF1A | acido arachidonico |
| 13 | TNFRSF1B | acido arachidonico |
| 14 | ALOX5 | acido arachidonico |
| 15 | SELP | acido arachidonico |
| 16 | C1R | acido arachidonico |
| 17 | COL1A2 | acido arachidonico |
| 18 | PPARG | acido arachidonico |
| 19 | PRKCB | acido arachidonico |
| 20 | NOS3 | acido arachidonico |
| 21 | PECAM1 | acido arachidonico |
| 22 | MAPK1 | acido arachidonico |
| 23 | EGF | acido arachidonico |
Tabella 1: Target sovrapposti tra i geni associati ai composti derivati da TCMSP e i geni associati alla glomerulonefrite. I record composti-target sono stati recuperati da TCMSP, deduplicati manualmente e standardizzati utilizzando i simboli ufficiali dei geni umani tramite UniProt.
| Nome della molecola | MW | AlogP | OB (%) | Caco-2 | BBB | DL | FASA | HL |
| Acido arachidonico | 304.52 | 6.41 | 45.57 | 1.2 | 0.58 | 0.2 | 0.28 | 4.39 |
| Acetato di linoleile | 308.56 | 6.85 | 42.1 | 1.36 | 1.08 | 0.2 | 0.21 | 7.48 |
| β-sitosterolo | 414.79 | 8.08 | 36.91 | 1.32 | 0.99 | 0.75 | 0.23 | 5.36 |
| Peroxiergosterolo | 428.72 | 6.73 | 44.39 | 0.86 | -0.29 | 0.82 | 0.24 | 4.06 |
| Cerevisterolo | 432.76 | 5.26 | 39.52 | 0.35 | -0.29 | 0.77 | 0.22 | 5.08 |
| Palmitato di colesterile | 625.19 | 14.35 | 31.05 | 1.45 | 0.68 | 0.45 | 0.18 | 7.93 |
| Colesterolo (CLR) | 386.73 | 7.38 | 37.87 | 1.43 | 1.13 | 0.68 | 0.2 | 4.52 |
Tabella 2: Costituenti candidati di C. sinensis recuperati da TCMSP utilizzando criteri di screening di biodisponibilità orale e somiglianza ai farmaci. Sono stati mantenuti i composti con una biodisponibilità orale di almeno il 30% e una somiglianza ai farmaci di almeno 0,18. MW, peso molecolare; ALogP, coefficiente di partizione ottanolo-acqua predetto; OB, biodisponibilità orale; Caco-2, permeabilità predetta per Caco-2; BBB, penetrazione della barriera ematoencefalica; DL, somiglianza ai farmaci; FASA, area superficiale accessibile negativa frazionaria; HL, emivita.
Tabella supplementare 1. Sequenze dei primer utilizzate per la PCR quantitativa in tempo reale in cellule mesangiali glomerulari di ratto HBZY-1. Tutte le sequenze sono riportate nella direzione 5′ a 3′.Cliccare qui per scaricare il file.
File supplementare 1. Immagini a scansione completa per il Western blot.Cliccare qui per scaricare il file.
Discussione
Questo studio ha integrato la farmacologia delle reti, il docking molecolare validato mediante ligandi di riferimento e esperimenti a livello di composti per esaminare un'ipotesi associata a PTGS2, derivata da costituenti candidati di C. sinensis. Sette costituenti hanno soddisfatto i criteri predeterminati di screening TCMSP e 23 bersagli si sono sovrapposti all'insieme genico associato alla glomerulonefrite. L'analisi dell'interazione proteica ha individuato nove bersagli centrali, tra cui PTGS2 è stato selezionato per il docking e la valutazione sperimentale. Il redocking del celecoxib ha riprodotto la sua conformazione cristallografica, mentre il β-sitosterolo e l'acetato di linoleile hanno mostrato una compatibilità prevista moderata con la regione di docking della COX-2. In cellule mesangiali HBZY-1, il β-sitosterolo ha ridotto l'espressione genica infiammatoria indotta da LPS, l'abbondanza di COX-2 e la produzione di PGE2, oltre a ridurre l'espressione dei marcatori profibrotici indotta da TGF-β1. Questi risultati collegano il riprioritizzazione computazionale ai fenotipi cellulari, ma supportano una relazione regolatoria candidata piuttosto che un meccanismo terapeutico definito.
I risultati di arricchimento hanno posizionato le proteine sovrapposte in processi biologici legati alla stimolazione infiammatoria, allo stress cellulare, alla regolazione dei lipidi, alla funzione vascolare e al rimodellamento dei tessuti. L'arricchimento delle risposte al lipopolisaccaride e ai prodotti batterici era coerente con il modello infiammatorio utilizzato per la validazione sperimentale. Le vie associate a TNF, IL-17, AGE-RAGE e HIF-1 hanno inoltre fornito un contesto funzionale plausibile per l'infiammazione glomerulare e il rimodellamento maladattivo6,17,18,19. Tuttavia, l'arricchimento delle vie rappresenta una concentrazione statistica di geni annotati e non dimostra l'attivazione o l'inibizione di una via da parte del β-sitosterolo12. L'annotazione evidente relativa a lipidi e aterosclerosi deve pertanto essere interpretata come una condivisione di meccanismi infiammatori, apoptotici e vascolari, piuttosto che come prova che l'aterosclerosi rappresenti il meccanismo principale della malattia nella CGN. Analogamente, i dati relativi alla biodisponibilità orale, alla somiglianza ai farmaci e ai bersagli basati su TCMSP sono stati utilizzati per selezionare i candidati.
PTGS2 si è rivelato un nodo rilevante poiché era presente nell'intersezione delle malattie indotte dal composto, mostrava un'elevata centralità nella rete ed era collegato sperimentalmente a modifiche della trascrizione di Ptgs2, dell'abbondanza della proteina COX-2 e della produzione di PGE2. L'accordo tra livelli computazionali e cellulari rafforza la giustificazione per l'analisi della risposta associata a PTGS2. Tuttavia, ciò non implica che PTGS2 sia uniformemente patogenico nel rene. I prostanoidi derivati dalla COX partecipano al flusso ematico renale, alla gestione del sale e all'omeostasi adattativa, e possono esercitare effetti protettivi o dannosi a seconda del tipo cellulare, della distribuzione dei recettori, della fase della malattia e della concentrazione locale20,21. Nella nefrite sperimentale, il celecoxib ha ridotto l'output legato al PGE2, mentre lo stesso PGE2 ha influenzato l'espressione dei recettori per i prostaglandini nelle cellule mesangiali22. Queste osservazioni illustrano che le conseguenze biologiche di COX-2 e PGE2 vanno oltre un semplice percorso proinfiammatorio lineare20,23. Il confronto con il celecoxib aiuta a distinguere l'espressione del bersaglio dalla funzione enzimatica. Il celecoxib ha prodotto la riduzione più netta di PGE2, coerentemente con il suo ruolo di inibitore funzionale della COX-2, ma ha avuto un effetto più limitato sull'espressione di Ptgs2 e sull'abbondanza della proteina COX-222. Il β-sitosterolo ha mostrato un profilo più ampio, che includeva una riduzione di Tnf, Il6, Ptgs2, COX-2 e PGE2. Questa differenza non indica una maggiore potenza inibitoria sulla COX-2. Piuttosto, suggerisce che il β-sitosterolo possa modificare lo stato infiammatorio in cui PTGS2 viene indotto, mentre il celecoxib limita principalmente la sintesi dei prostaglandini attraverso l'inibizione dell'attività catalitica. Sarebbero necessari saggi enzimatici diretti, studi sull'interazione con il bersaglio e perturbazioni di PTGS2 per determinare se il β-sitosterolo interagisce funzionalmente anche con COX-2.
I risultati della rete indicano anche che PTGS2 non dovrebbe essere interpretato come un nodo molecolare isolato. MAPK1, JUN e PPARG sono stati co-prioritizzati nella rete di interazione proteica, collocando la sintesi dei prostanoidi in un contesto più ampio di segnalazione e regolazione trascrizionale. In cellule mesangiali renali, la sfingosina 1-fosfato ha aumentato l'espressione di COX-2 e la formazione di PGE2 attraverso la segnalazione p42/p44 MAPK dipendente dal recettore S1P2, fornendo evidenza diretta che l'attività di MAPK può trovarsi a monte della risposta COX-2/PGE2 in questo tipo cellulare24. Poiché JUN è un componente principale del complesso del fattore di trascrizione AP-1, AP-1 potrebbe rappresentare un'interfaccia tra l'attivazione di MAPK e la trascrizione di PTGS2. In accordo con questa possibilità, il 15-deossi-Δ12,14-prostaglandina J2 ha soppresso l'espressione di COX-2 indotta da IL-1β insieme all'attività di AP-1 in cellule mesangiali coltivate25. In modelli cellulari non renali, il β-sitosterolo ha ridotto l'attivazione di ERK e p38, la segnalazione di NF-κB, l'espressione di COX-2 e la produzione di citochine infiammatorie dopo esposizione a LPS14,15. Queste osservazioni forniscono un contesto plausibile per le riduzioni coordinate di Tnf, Il6, Ptgs2, COX-2 e PGE2 osservate nel presente studio. Tuttavia, gli studi citati sul β-sitosterolo sono stati condotti in cellule microgliali o endoteliali e non in cellule mesangiali renali, e in questo studio non è stata misurata la fosforilazione di MAPK1 né l'attività di JUN. I risultati attuali, pertanto, non dimostrano un meccanismo di regolazione di PTGS2 da parte del β-sitosterolo dipendente da MAPK1 o da JUN. PPARG potrebbe interagire con la rete centrata su PTGS2 attraverso una regolazione trascrizionale sensibile ai lipidi e la modulazione del fenotipo profibrotico delle cellule mesangiali, piuttosto che come semplice effettore lineare a valle di PTGS2. In cellule mesangiali glomerulari, ligandi naturali e sintetici di PPARγ hanno inibito l'espressione di fibronectina indotta da TGF-β1, mentre altri studi hanno mostrato che gli agonisti di PPARγ riducono l'attivazione delle cellule mesangiali, l'espressione di α-SMA e l'accumulo di collagene IV indotti da TGF-β attraverso l'attenuazione della segnalazione PKA e CREB26,27. Lavori più recenti in topi diabetici e in cellule mesangiali glomerulari stimolate con elevata concentrazione di glucosio hanno collocato NF-κB/COX-2 e PPARγ/UCP2 in assi regolatori paralleli associati all'infiammazione e alla fibrosi renale, suggerendo una possibile convergenza funzionale senza tuttavia dimostrare un accoppiamento diretto tra PTGS2 e PPARG28. Questi risultati forniscono un contesto biologicamente plausibile per le riduzioni di Col1a1, Acta2 e α-SMA osservate nel presente modello con TGF-β1. Tuttavia, non è stata valutata l'espressione di PPARG, la sua attività trascrizionale né il legame con ligandi. I dati attuali, pertanto, non permettono di attribuire la risposta profibrotica osservata a un'attivazione di PPARG né di definire un percorso di segnalazione sequenziale MAPK1-PTGS2-PPARG. È importante sottolineare che MAPK1 e PPARG sono stati prioritizzati a livello della rete integrata composto-malattia e non dovrebbero essere interpretati come target diretti del β-sitosterolo sulla base dell'analisi attuale.
L'analisi di docking deve essere interpretata all'interno dello stesso limite di evidenza. Un valore RMSD di redocking di 0,876 Å ha indicato che il protocollo di docking selezionato era in grado di riprodurre l'orientamento noto del celecoxib nella struttura 3LN1. Le affinità previste sostanzialmente meno favorevoli del β-sitosterolo e dell'acetato di linoleile rispetto al celecoxib supportano un alloggiamento spaziale all'interno della regione predefinita, ma non un'analoga forza di legame o un'azione farmacologica29,30. La differenza di 0,3 kcal/mol tra l'acetato di linoleile e il β-sitosterolo è troppo piccola per giustificare un ordinamento biologico basato esclusivamente su questo parametro. Il β-sitosterolo è stato selezionato per i test successivi perché la sua associazione nella rete era accompagnata da una letteratura sperimentale più ampia relativa all'infiammazione e alla fibrosi14,15,16. Studi precedenti hanno riportato riduzioni di TNF-α, IL-6 e COX-2 in cellule microgliali ed endoteliali esposte a LPS, insieme a modifiche nella segnalazione MAPK e NF-κB14,15. L'acido arachidonico richiede un'interpretazione diversa poiché è un substrato endogeno della COX21. La sua presenza nella rete derivata da TCMSP non indica un'azione inibitoria anti-infiammatoria e illustra come le relazioni tra composti e target basate su database non definiscano la direzionalità. Le riduzioni correlate alla concentrazione di marcatori infiammatori osservate nelle cellule HBZY-1 sono coerenti con questi precedenti risultati cellulari, estendendo l'evidenza a un contesto mesangiale glomerulare14,15. Il modello con TGF-β1 ha affrontato un aspetto distinto del processo patologico31. Il β-sitosterolo ha ridotto la trascrizione di Col1a1 e Acta2 e ha diminuito l'abbondanza di α-SMA dopo la stimolazione con TGF-β1. Lavori precedenti in cellule epiteliali alveolari umane hanno riscontrato in modo analogo che il β-sitosterolo riduceva l'espressione di collagene, fibronectina e α-SMA indotta da TGF-β1, sebbene tale studio riguardasse un tessuto e un processo cellulare differenti16. I risultati attuali supportano quindi un'attività contro un fenotipo profibrotico nelle cellule mesangiali, ma non dimostrano l'inibizione di un recettore specifico per TGF-β o di un meccanismo dipendente da SMAD31.
Diversi limiti definiscono l'ambito di interpretazione. L'insieme dei geni associati alla malattia è stato ottenuto utilizzando il termine generico glomerulonefrite e non è specifico per un singolo sottotipo clinico o istologico di CGN. L'analisi computazionale ha utilizzato annotazioni umane, il docking è stato effettuato su una struttura murina di COX-2 e gli esperimenti sono stati condotti in cellule HBZY-1 di ratto. Le relazioni ortologhe supportano il confronto, ma rimangono possibili differenze dipendenti dalla specie nella regolazione e nel riconoscimento dei ligandi. Una singola linea cellulare mesangiale immortalizzata non può rappresentare le interazioni tra cellule mesangiali, podociti, cellule endoteliali, cellule immunitarie infiltranti e il compartimento tubulo-interstiziale. Lo studio inoltre non ha valutato il legame diretto, l'attività enzimatica della COX-2, la dipendenza da PTGS2, cellule renali primarie umane, l'efficacia in vivo, la farmacocinetica o l'esposizione renale. Infine, l'utilizzo di una preparazione definita di β-sitosterolo risolve l'incoerenza precedente tra i costituenti predetti e un estratto non caratterizzato, ma non dimostra che il β-sitosterolo sia responsabile degli effetti dell'intero C. sinensis né esclude che altri costituenti possano essere inattivi.
Nel complesso, i risultati ottenuti dall'analisi della rete, dal docking e dagli esperimenti cellulari supportano il β-sitosterolo come un candidato rappresentativo associato alla riduzione dell'attivazione infiammatoria e profibrotica nelle cellule HBZY-1. I risultati sono coerenti con una modulazione della risposta legata a PTGS2/COX-2/PGE2, ma non dimostrano un legame diretto con COX-2, una causalità dipendente da PTGS2 o un'efficacia terapeutica nella CGN. Sono necessari ulteriori studi sul coinvolgimento del bersaglio, su perturbazioni genetiche, su cellule primarie e in vivo (Figura 7).
Dichiarazioni
Gli autori dichiarano di non avere interessi concorrenti. Strumenti basati sull'intelligenza artificiale (ChatGPT, OpenAI) sono stati utilizzati per assistere nella revisione linguistica e nella progettazione preliminare delle figure schematiche. L'intelligenza artificiale generativa è stata impiegata per assistere nella preparazione di bozze grafiche preliminari delle Figure 1A e 7, successivamente rivedute e modificate dagli autori per garantire coerenza con i metodi e i risultati riportati. Tutti gli output assistiti dall'IA sono stati attentamente valutati e approvati dagli autori. Gli autori hanno verificato il contenuto finale delle figure e si assumono piena responsabilità per l'integrità e l'accuratezza del manoscritto.
Ringraziamenti
Questo studio è stato sostenuto dalla Specialità Caratteristica di Nefropatia con Medicina Tradizionale Cinese Integrata e Medicina Occidentale (ZYTSZK2-3) e dallo Studio sulla Strategia di Intervento della Medicina Tradizionale Cinese nella Malattia Renale Cronica dal Punto di Vista della Gestione delle Malattie Croniche (202240169).
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| Etanolo assoluto | Sigma-Aldrich/Merck | E7023 | Etanolo di grado biologia molecolare, 200 proof, non denaturato; solvente per la soluzione madre di β-sitosterolo. |
| AutoDock Vina | Scripps Research | Versione 1.1.2 | Simulazione di docking molecolare |
| Cappa a sicurezza biologica | Thermo Fisher Scientific | 1300 Series A2 | Operazioni sterili per colture cellulari |
| Celecoxib | MedChemExpress | HY-14398 | Inibitore selettivo della COX-2 utilizzato come controllo positivo; soluzione madre da 10 mM in DMSO. |
| Cell Counting Kit-8 | Dojindo Molecular Technologies, Inc. | CK04 | Saggio colorimetrico WST-8 per la vitalità cellulare; assorbanza misurata a 450 nm. |
| Sistema di imaging chemiluminescente | Bio-Rad Laboratories | ChemiDoc MP | Acquisizione di immagini di Western blot |
| Pacchetto R clusterProfiler | Bioconductor | Versione 4.10.0 | Analisi di arricchimento GO e KEGG |
| Incubatore per colture cellulari a CO2 | Thermo Fisher Scientific | Forma Series II 3111 | Incubazione delle colture cellulari a 37 °C e 5% CO2 |
| Anticorpo monoclonale coniglio anti-COX-2 (D5H5) | Cell Signaling Technology | 12282 | Validato per Western blot per COX-2 umana, murina e di ratto; utilizzato in diluizione 1:1.000. |
| Plugin CytoNCA | Negozio di applicazioni Cytoscape | Versione 2.1.6 | Analisi topologica dei target centrali |
| Software Cytoscape | Consortium Cytoscape | Versione 3.8.0 | Visualizzazione e analisi di reti |
| Dietilsolfossido | Sigma-Aldrich/Merck | D2650 | Reagente BioReagent filtrato sterile, ≥99,7%; solvente per la soluzione madre di celecoxib. |
| Database DisGeNET | Gruppo di Informatica Biomedica Integrata | Non applicabile | Recupero geni-malattia per glomerulonefrite |
| Mezzo di Eagle modificato di Dulbecco (DMEM) | Gibco/Thermo Fisher Scientific | C11995500BT | Mezzo basale per la coltura cellulare HBZY-1 |
| Substrato chemiluminescente potenziato | Beyotime Biotechnology | P0018S | Visualizzazione delle bande in Western blot |
| Serum fetale bovino | Gibco/Thermo Fisher Scientific | 10099-141C | Integratore sierico per colture cellulari |
| Anticorpo monoclonale coniglio anti-GAPDH (D16H11) | Cell Signaling Technology | 5174 | Controllo di caricamento per Western blot; reattivo per GAPDH umana, murina e di ratto; utilizzato in diluizione 1:5.000 dopo ottimizzazione in laboratorio. |
| Database GeneCards | Istituto Weizmann di Scienze | NA | Recupero di geni associati alla glomerulonefrite |
| GraphPad Prism | GraphPad Software | Versione 9.0.0.121 | Analisi statistica dei dati sperimentali in vitro |
| Anticorpo secondario capra anti-IgG coniugato con HRP | Proteintech Group | SA00001-2 | Anticorpo secondario per anticorpi primari conigli |
| Software ImageJ | Istituti Nazionali di Salute | Versione 1.54 | Analisi densitometrica di Western blot |
| Microscopio invertito a contrasto di fase | Olympus | CKX53 | Osservazione della morfologia cellulare |
| Pacchetto R org.Hs.eg.db | Bioconductor | Versione 3.18.0 | Annotazione genica umana per analisi di arricchimento |
| Soluzione di penicillina-streptomicina | Gibco/Thermo Fisher Scientific | 15140122 | Integratore antibiotico per colture cellulari |
| Kit per saggio parametri PGE2 | R&D Systems, marchio Bio-Techne | KGE004B | ELISA competitivo multispécie per supernatanti di colture cellulari; intervallo del saggio 39–2.500 pg/mL; rilevamento colorimetrico a 450 nm. |
| Database PharmGKB | Pharmacogenomics Knowledgebase | NA | Recupero di target associati a malattie |
| Database PubChem | Centro Nazionale per l'Informatica Biotecnologica | NA | Recupero di strutture di ligandi |
| Membrana PVDF | Millipore/Merck | IPVH00010 | Membrana per trasferimento proteico in Western blot |
| Sistema grafico molecolare PyMOL | Schrödinger, LLC | Versione 2.6.2 | Visualizzazione delle pose di docking |
| Software R | Fondazione R per il Calcolo Statistico | Versione 4.3.2 | Analisi di intersezione e arricchimento dei target |
| Linea cellulare di cellule mesangiali glomerulari di ratto (HBZY-1) | Procell Life Science & Technology Co., Ltd. | CL-0117 | Modello di validazione in vitro per cellule mesangiali |
| RCSB Protein Data Bank | Research Collaboratory for Structural Bioinformatics | ID PDB: 3LN1 | Recupero della struttura cristallina di PTGS2/COX2 |
| Proteina ricombinante umana TGF-β1 | PeproTech, marchio Thermo Fisher Scientific | 100-21-10UG | TGF-β1 umana ricombinante derivata da HEK293; stimolazione profibrotica a 10 ng/mL. |
| Sistema di elettroforesi SDS-PAGE | Bio-Rad Laboratories | Mini-PROTEAN Tetra | Separazione proteica mediante SDS-PAGE |
| Database STRING | ELIXIR/Consortium STRING | Versione 12.0 | Costruzione di reti di interazione proteina-proteina |
| Database TCMSP | Traditional Chinese Medicine Systems Pharmacology Database | NA | Selezione di composti candidati da Cordyceps sinensis |
| Therapeutic Target Database | Gruppo di Ricerca su Farmaci Innovativi e Informatica Biomedica | NA | Recupero di target terapeutici |
| Anticorpo primario anti-α-SMA | Proteintech Group | 14395-1-AP | Rilevamento dell'espressione proteica di α-SMA |
| β-Sitosterolo (purezza >98%) | MedChemExpress | HY-N0171A | CAS 83-46-5; composto definito utilizzato per il trattamento cellulare; soluzione madre da 10 mM in etanolo assoluto. |
Riferimenti
- Kidney Disease: Improving Global Outcomes Glomerular Diseases Work G. KDIGO 2021 Clinical Practice Guideline for the Management of Glomerular Diseases. Kidney Int. 2021;100(4S):S1–S276.
- Roccatello D. et al. From inflammation to renal fibrosis: A one-way road in autoimmunity? Autoimmun Rev. 2024;23(4):103466.
- Reiss AB. et al. Fibrosis in Chronic Kidney Disease: Pathophysiology and Therapeutic Targets. J Clin Med. 2024;13(7).
- Kant S, Kronbichler A, Geetha D. Principles of Immunosuppression in the Management of Kidney Disease: Core Curriculum 2022. Am J Kidney Dis. 2022;80(3):393–405.
- El Karoui K, Fervenza FC, De Vriese AS. Treatment of IgA Nephropathy: A Rapidly Evolving Field. J Am Soc Nephrol. 2024;35(1):103–16.
- Stenvinkel P. et al. Chronic Inflammation in Chronic Kidney Disease Progression: Role of Nrf2. Kidney Int Rep. 2021;6(7):1775–87.
- Tanaka S, Portilla D, Okusa MD. Role of perivascular cells in kidney homeostasis, inflammation, repair and fibrosis. Nat Rev Nephrol. 2023;19(11):721–32.
- Liu W. et al. Mechanism of Cordyceps sinensis and its Extracts in the Treatment of Diabetic Kidney Disease: A Review. Front Pharmacol. 2022;13:881835.
- Yan G. et al. The effects of Ophiocordyceps sinensis combined with ACEI/ARB on diabetic kidney disease: A systematic review and meta-analysis. Phytomedicine. 2023;108:154531.
- Li S, Pang W, Wang Y, Zhang Y. Cordyceps sinensis extract protects against acute kidney injury by inhibiting perforin expression in NK cells via the STING/IRF3 pathway. Aging (Albany NY). 2024;16(7):5887–904.
- Zhang Y, Li K, Zhang C, Liao H, Li R. Research Progress of Cordyceps sinensis and Its Fermented Mycelium Products on Ameliorating Renal Fibrosis by Reducing Epithelial-to-Mesenchymal Transition. J Inflamm Res. 2023;16:2817–30.
- Zhao L. et al. Network pharmacology, a promising approach to reveal the pharmacology mechanism of Chinese medicine formula. J Ethnopharmacol. 2023;309:116306.
- Ru J. et al. TCMSP: a database of systems pharmacology for drug discovery from herbal medicines. J Cheminform. 2014;6:13.
- Bi Y. et al. beta-Sitosterol Suppresses LPS-Induced Cytokine Production in Human Umbilical Vein Endothelial Cells via MAPKs and NF-kappaB Signaling Pathway. Evid Based Complement Alternat Med. 2023;2023:9241090.
- Sun Y, Gao L, Hou W, Wu J. beta-Sitosterol Alleviates Inflammatory Response via Inhibiting the Activation of ERK/p38 and NF-kappaB Pathways in LPS-Exposed BV2 Cells. Biomed Res Int. 2020;2020:7532306.
- Park YJ. et al. Effects of beta-Sitosterol from Corn Silk on TGF-beta1-Induced Epithelial-Mesenchymal Transition in Lung Alveolar Epithelial Cells. J Agric Food Chem. 2019;67(35):9789–95.
- Li DD. et al. RTEC-intrinsic IL-17-driven inflammatory circuit amplifies antibody-induced glomerulonephritis and is constrained by Regnase-1. JCI Insight. 2021;6(13).
- Martin-Carro B. et al. Role of Klotho and AGE/RAGE-Wnt/beta-Catenin Signalling Pathway on the Development of Cardiac and Renal Fibrosis in Diabetes. Int J Mol Sci. 2023;24(6).
- Naas S, Schiffer M, Schodel J. Hypoxia and renal fibrosis. Am J Physiol Cell Physiol. 2023;325(4):C999–C1016.
- Harris RC, Breyer MD. Physiological regulation of cyclooxygenase-2 in the kidney. Am J Physiol Renal Physiol. 2001;281(1):F1–11.
- Calder PC. Eicosanoids. Essays Biochem. 2020;64(3):423–41.
- Waldner C, Heise G, Schror K, Heering P. COX-2 inhibition and prostaglandin receptors in experimental nephritis. Eur J Clin Invest. 2003;33(11):969–75.
- Pan Y. et al. Myeloid cyclooxygenase-2/prostaglandin E2/E-type prostanoid receptor 4 promotes transcription factor MafB-dependent inflammatory resolution in acute kidney injury. Kidney Int. 2022;101(1):79–91.
- Volzke A, Koch A, Meyer Zu Heringdorf D, Huwiler A, Pfeilschifter J. Sphingosine 1-phosphate (S1P) induces COX-2 expression and PGE2 formation via S1P receptor 2 in renal mesangial cells. Biochim Biophys Acta. 2014;1841(1):11–21.
- Sawano H. et al. 15-Deoxy-Delta12,14-prostaglandin J2 inhibits IL-1beta-induced cyclooxygenase-2 expression in mesangial cells. Kidney Int. 2002;61(6):1957–67.
- Guo B. et al. Peroxisome proliferator-activated receptor-gamma ligands inhibit TGF-beta 1-induced fibronectin expression in glomerular mesangial cells. Diabetes. 2004;53(1):200–8.
- Zou R. et al. PPARgamma agonists inhibit TGF-beta-PKA signaling in glomerulosclerosis. Acta Pharmacol Sin. 2010;31(1):43–50.
- Wei J. et al. PP2 Ameliorates Renal Fibrosis by Regulating the NF-kappaB/COX-2 and PPARgamma/UCP2 Pathway in Diabetic Mice. Oxid Med Cell Longev. 2021;2021:7394344.
- Yang C, Chen EA, Zhang Y. Protein-Ligand Docking in the Machine-Learning Era. Molecules. 2022;27(14).
- Quiroga R, Villarreal MA. Developing Generalizable Scoring Functions for Molecular Docking: Challenges and Perspectives. Curr Med Chem. 2025;32(28):5960–72.
- Li J. et al. TGF-beta/Smad signaling in chronic kidney disease: Exploring post-translational regulatory perspectives (Review). Mol Med Rep. 2024;30(2).