Utilizzando analisi trascrittomique bulk, di singola cellula e spaziali, insieme a modelli predittivi di sopravvivenza basati sull'apprendimento automatico e a una validazione sperimentale, questo studio propone PPARG come gene prognostico candidato associato alla senescenza nell'osteosarcoma, collegando la sua ridotta espressione a un esito sfavorevole in termini di sopravvivenza nel TARGET-OS e a caratteristiche vascolari e del microambiente.
Articolo di ricerca
Analisi integrate di trascrittomica bulk, a singola cellula e spaziale identificano PPARG come gene prognostico candidato correlato alla senescenza nell'osteosarcoma
* These authors contributed equally
In questo articolo
Sommario
Abstract
L'osteosarcoma rimane una patologia difficile da trattare nei casi metastatici, ricorrenti o resistenti alla terapia. Questo studio ha avuto lo scopo di identificare geni prognostici legati alla senescenza e di caratterizzarne i contesti spaziali. È stata effettuata un'analisi differenziale di espressione accoppiata nel dataset GSE99671 utilizzando DESeq2, seguita dall'intersezione con il set genico di senescenza CellAge. I dati trascrittomici del coorte TARGET-OS sono stati ottenuti da UCSC Xena. I geni candidati sono stati valutati mediante regressione di Cox univariata, analisi di Kaplan-Meier, analisi della caratteristica operativa del ricevitore dipendente dal tempo, regressione di Cox con metodo LASSO, analisi LASSO ripetute e modellizzazione con random survival forest, incorporando covariate cliniche nei modelli di Cox aggiustati. Arricchimento funzionale, analisi del microambiente immunitario, trascrittomica a singola cellula, trascrittomica spaziale SP_BS3, validazione dell'espressione in GSE36001 e validazione mediante qRT-PCR e Western blot in cellule di osteosarcoma 143B e cellule osteoblastiche sono stati utilizzati per la caratterizzazione. In GSE99671, 2.248 geni sono risultati differenzialmente espressi con P aggiustato < 0,05, e l'intersezione con i 866 geni CellAge ha prodotto 105 geni differenzialmente espressi legati alla senescenza. Nel coorte TARGET-OS, un'espressione più bassa di PPARG era associata a un rischio maggiore di mortalità (HR univariata = 0,603, IC 95% = 0,454–0,802, P = 0,000494; HR aggiustata = 0,224, IC 95% = 0,085–0,589, P = 0,00241). L'aggiunta di PPARG al modello clinico ha aumentato l'indice C da 0,707 a 0,829. PPARG risultava sotto-regolato sia in GSE99671 che in GSE36001, e qRT-PCR e immunoblotting hanno confermato una minore espressione di mRNA e proteina PPARG nelle cellule di osteosarcoma 143B rispetto alle cellule osteoblastiche. L'analisi a singola cellula ha localizzato PPARG in cellule endoteliali, periciti, macrofagi/monociti e cellule stromali associate al tumore. L'analisi trascrittomica spaziale ha mostrato correlazioni positive deboli ma significative tra l'espressione di PPARG e i punteggi relativi alla senescenza CellAge, alle cellule endoteliali e ai periciti. Questi risultati indicano PPARG come un biomarcatore prognostico candidato derivato da CellAge, associato a una sopravvivenza sfavorevole e a caratteristiche del microambiente vascolare nell'osteosarcoma, sostenendo ulteriori indagini sulla sua potenziale rilevanza nella stratificazione del rischio e nel microambiente tumorale legato alla senescenza. GSE36001 ha fornito soltanto una validazione esterna dell'espressione; non è stata effettuata una validazione indipendente della sopravvivenza.
Introduzione
L'osteosarcoma è il tumore osseo maligno primitivo più comune nei bambini, negli adolescenti e nei giovani adulti1. Sebbene la chemioterapia con più agenti combinata alla chirurgia abbia migliorato i risultati nei casi localizzati2,3, i pazienti con osteosarcoma metastatico, ricorrente o resistente alla terapia continuano ad avere una scarsa sopravvivenza a lungo termine3,4. Evidenze recenti indicano che la rimodellazione epigenetica indotta dallo stress ossidativo può favorire l'adattamento metastatico e la progressione tumorale, evidenziando la complessa plasticità molecolare alla base dei fenotipi tumorali aggressivi5. Biomarcatori robusti, al contempo interpretabili clinicamente e informativi dal punto di vista biologico, rimangono limitati. Pertanto, risulta fondamentale identificare caratteristiche molecolari in grado di catturare l'eterogeneità dell'osteosarcoma e il rischio prognostico attraverso multipli livelli di dati.
La senescenza cellulare è un programma di arresto stabile del ciclo cellulare indotto da disfunzione dei telomeri, danni al DNA, stress ossidativo, attivazione di oncogeni e pressione terapeutica6. La senescenza può limitare la proliferazione anomala; tuttavia, le cellule senescenti possono anche rimodellare il microambiente tumorale attraverso programmi infiammatori, chemochine, fattori di crescita e rimodellamento della matrice extracellulare7,8. Nell'osteosarcoma, i geni associati alla senescenza possono riflettere sia stati di stress intrinseci alle cellule tumorali sia compartimenti microambientali non maligni, ma la loro rilevanza prognostica e organizzazione spaziale non sono state ancora valutate sistematicamente.
PPARG codifica il recettore nucleare attivato da proliferatori di perossisomi gamma, un recettore nucleare attivato da ligandi coinvolto nel metabolismo dei lipidi, nella regolazione dell'infiammazione, nella differenziazione cellulare e nella modulazione immunitaria9. Il ruolo di PPARG nel cancro dipende dal contesto10. In alcuni contesti, PPARG è associato a stati di differenziazione e anti-infiammatori, mentre in altri può sostenere programmi tumorali o stromali adattativi. Tuttavia, il suo profilo di espressione, il valore prognostico e la localizzazione cellulare e spaziale nell'osteosarcoma non sono ancora completamente caratterizzati.
Nello studio attuale, sono stati identificati i geni differenzialmente espressi in GSE99671 e incrociati con il set genico di senescenza CellAge, ottenendo 105 geni differenzialmente espressi associati alla senescenza. Successivamente, sono stati utilizzati i dati di sopravvivenza di TARGET-OS, diversi approcci di modellizzazione della sopravvivenza e di machine learning, e un aggiustamento clinico per identificare PPARG come gene centrale. PPARG è stato ulteriormente caratterizzato mediante analisi funzionali su dati bulk e analisi del microambiente immunitario, trascrittomica single-cell, trascrittomica spaziale, convalida esterna dell'espressione da GSE36001 e convalida mediante qRT-PCR e Western blot nella linea cellulare di osteosarcoma 143B e negli osteoblasti umani.
Protocollo
Questo studio ha utilizzato set di dati pubblici e linee cellulari per l'analisi e la validazione e non ha coinvolto partecipanti umani o campioni di tessuto clinico; pertanto, non era richiesta l'approvazione etica.
Analisi dell'espressione differenziale nell'intersezione tra GSE99671 e CellAge
I dati di conteggio grezzi e le informazioni sul raggruppamento dei campioni per GSE99671 sono stati ottenuti da GEO11,12. Sono state analizzate diciotto coppie di campioni di osteosarcoma e tessuti normali abbinati. È stata eseguita un'analisi dell'espressione differenziale accoppiata utilizzando DESeq2 con la formula di progettazione ~ pair_id + condition, in cui pair_id tiene conto degli effetti individuali accoppiati e condition confronta il tessuto tumorale con il tessuto normale13. Sono stati mantenuti i geni con conteggi di letture di almeno 10 in almeno tre campioni. L'espressione differenziale è stata definita come un valore di P corretto < 0,05, ed è stata applicata una soglia più rigorosa di valore di P corretto < 0,05 e |log2FC| ≥ 1 per la visualizzazione. I geni con espressione differenziale sono stati incrociati con i 866 geni di senescenza di CellAge dopo aver convertito i simboli genici in maiuscolo14. L'analisi dell'espressione differenziale è stata eseguita in R (versione 4.3.2) utilizzando DESeq2 (versione 1.40.2), e i valori di P corretti sono stati calcolati mediante il metodo di Benjamini-Hochberg.
Cohorte TARGET-OS e modellizzazione prognostica
I dati trascrittomici e clinici della coorte TARGET-OS sono stati ottenuti da UCSC Xena15. Sono stati estratti i valori di espressione per i 105 geni differenzialmente espressi associati alla senescenza. Sono stati inclusi 85 pazienti con dati completi riguardo al tempo di sopravvivenza, allo stato di sopravvivenza e all'espressione dei geni candidati, con 27 eventi di decesso. I valori standardizzati di espressione genica sono stati analizzati mediante regressione di Cox univariata16, analisi di sopravvivenza di Kaplan-Meier e analisi ROC (caratteristica operativa del ricevitore) dipendente dal tempo17. Sono state utilizzate la regressione di Cox con penalizzazione LASSO18, l'analisi ripetuta della stabilità LASSO e il modello random survival forest per valutare la stabilità della selezione e l'importanza delle variabili19. Il punteggio integrato dell'hub e il ranking integrato clinico sono stati calcolati utilizzando i criteri binari espliciti descritti di seguito. Le analisi di sopravvivenza sono state eseguite in R mediante i pacchetti survival (versione 3.5-7), timeROC (versione 0.4), glmnet (versione 4.1-8) e randomForestSRC (versione 3.2.2). Per la selezione iniziale univariata di Cox sui 105 geni candidati, è stata applicata la correzione del tasso di falsa scoperta (FDR) di Benjamini-Hochberg, e i geni con FDR < 0,05 sono stati considerati statisticamente significativi.
Pre-elaborazione del modello, raggruppamento di PPARG e analisi ROC dipendente dal tempo
Tra 85 pazienti con 27 decessi, i geni con varianza nulla sono stati esclusi, i valori mancanti di espressione dei geni candidati sono stati sostituiti con la mediana e l'espressione di ciascun gene candidato è stata standardizzata con il punteggio z. Per l'analisi di Kaplan-Meier, l'espressione è stata dicotomizzata in base alla mediana del gruppo: i valori strettamente superiori alla mediana sono stati assegnati al gruppo ad alta espressione, mentre i valori uguali o inferiori alla mediana al gruppo a bassa espressione (PPARG: n = 42 alto e n = 43 basso). I test del log-rank erano a due code. Le analisi ROC dipendenti dal tempo hanno utilizzato timeROC con causa dell'evento = 1, pesatura marginale inversa della probabilità di censura, tempi di valutazione di 365, 1.095 e 1.825 giorni e iid = FALSE. Per garantire che valori più elevati del marcatore indichino sempre un rischio maggiore, sono stati utilizzati i valori di espressione standardizzati per i geni con coefficienti di Cox positivi e moltiplicati per -1 per i geni protettivi con coefficienti negativi.
LASSO e LASSO ripetuto
Il modello Cox LASSO è stato adattato utilizzando glmnet con family = "cox", alpha = 1, standardizzazione preliminare dei punteggi z (quindi standardize = FALSE), cross-validation a cinque ripetizioni, type.measure = "deviance" e seme casuale 123. La soluzione principale dei coefficienti ha utilizzato lambda.min. L'analisi di stabilità ha ripetuto la stessa cross-validation a cinque ripetizioni 300 volte; per la ripetizione b è stato utilizzato il seme 1000 + b (b = 1,...,300). Per ogni gene, la frequenza di selezione corrispondeva alla proporzione di ripetizioni con un coefficiente diverso da zero a lambda.min; è stata inoltre registrata la selezione diversa da zero a lambda.1se.
Foresta di sopravvivenza casuale
Una foresta di sopravvivenza è stata adattata a tutti i 105 geni candidati standardizzati utilizzando randomForestSRC (versione 3.2.2), con seme 123, ntree = 1.000, importance = TRUE e na.action = "na.impute". Sono stati mantenuti i valori predefiniti del pacchetto per i dati di sopravvivenza: suddivisione basata sul log-rank, mtry = 11 (il valore superiore della radice quadrata di 105 predittori), dimensione minima del nodo terminale = 15, nsplit = 10 punti di suddivisione casuali, campionamento senza reimmissione con frazione di campionamento 0,632 e importanza delle variabili con metodo anti-split.
Punteggio integrato dell'hub
Ciascuno dei 105 geni candidati differenzialmente espressi associati a CellAge ha ricevuto un punto per ognuno dei sei criteri binari: (1) appartenenza all'intersezione espressione differenziale/CellAge (tutti i candidati hanno ottenuto questo punto poiché era richiesto un valore di P corretto < 0,05 prima dell'assegnazione del punteggio); (2) valore di P univariato di Cox nominale < 0,05; (3) valore di P del test log-rank di Kaplan-Meier < 0,05; (4) AUC media dipendente dal tempo a 3 e 5 anni ≥ 0,65; (5) frequenza di selezione lambda.min nel LASSO ripetuto pari o superiore al 70° percentile tra i candidati e > 0; e (6) importanza nel random survival forest pari o superiore al 70° percentile tra i candidati e > 0. Tutti i criteri avevano un peso unitario uguale, producendo un punteggio dell'hub compreso tra 0 e 6; i geni con punteggio ≥ 4 sono stati selezionati per l'aggiustamento clinico (18 geni). Sono stati inoltre riportati i valori FDR di Cox univariato, e il valore FDR < 0,05 è stato utilizzato per indicare la significatività per confronti multipli, ma l'indicatore di punteggio predeterminato ha utilizzato il valore di P nominale < 0,05.
Classificazione integrata clinica
Dopo aver unito i dati di espressione e quelli clinici, le analisi aggiustate hanno incluso 40 pazienti con dati completi sui covarianti e 13 decessi. Il punteggio finale corrispondeva al punteggio iniziale della centralità (hub score) più un punto per ciascuno dei sette criteri seguenti: valore di P aggiustato di Cox < 0,05, valore di P aggiustato di Cox < 0,10, valore di P di Cox per la sensibilità < 0,05 dopo l'esclusione della chirurgia definitiva, valore di P di Cox per la sensibilità < 0,10, AUC media a 3 e 5 anni ≥ 0,65, valore di P del test del rapporto di verosimiglianza < 0,10 per il modello clinico-più-gene rispetto al modello solo clinico e delta AIC < 0. Poiché le soglie 0,05 e 0,10 erano annidate, un valore di P < 0,05 contribuiva con due punti, attribuendo così un peso maggiore alle evidenze di Cox aggiustate e di sensibilità chiaramente significative. Il punteggio totale variava da 0 a 13; in caso di parità, la posizione era determinata dal valore di P aggiustato di Cox più basso, seguito dall'AUC media a 3/5 anni più alta. PPARG ha ottenuto tutti e sei i punti iniziali e tutti e sette i punti di integrazione clinica (13/13), piazzandosi al primo posto. Il miglioramento dell'indice C è stato riportato in forma descrittiva e non è stato assegnato alcun punteggio.
Aggiustamento clinico
I geni hub candidati sono stati integrati con le variabili cliniche del TARGET-OS, tra cui sesso, età, stato della malattia alla diagnosi, sito primario del tumore, regione tumorale specifica e intervento chirurgico definitivo. Quaranta pazienti con dati completi di espressione e cartelle cliniche, inclusi 13 decessi, sono stati inclusi nelle analisi aggiustate per variabili cliniche. I modelli di Cox contenenti solo variabili cliniche sono stati confrontati con modelli che includevano variabili cliniche più l'espressione genica. Il valore C, il criterio informativo di Akaike (AIC) e i valori P del test del rapporto di verosimiglianza sono stati utilizzati per valutare il miglioramento del modello. È stata effettuata un'analisi di sensibilità dopo la rimozione della variabile relativa all'intervento chirurgico.
Analisi dell'arricchimento funzionale e del microambiente immunitario
I campioni di TARGET-OS sono stati stratificati in base all'espressione di PPARG. L'espressione differenziale tra i gruppi PPARG-alto e PPARG-basso è stata utilizzata per generare liste geniche ordinate per l'analisi di arricchimento dei set di geni (GSEA)20. I percorsi mostrati sono: Nemeth Inflammatory Response LPS Up, Burton Adipogenesis 5, Burton Adipogenesis 6, Krieg KDM3A Targets Not Hypoxia, Reactome: Transcriptional Regulation By TP53, Fulcher Inflammatory Response Lectin Vs LPS Dn, Hollmann Apoptosis Via CD40 Dn, Zhou Inflammatory Response Live Dn, WP: Fatty Acids And Lipoproteins Transport In Hepatocytes, Sweet Lung Cancer KRAS Up, KEGG Medicus Pathogen HIV Tat To TLR2/4 NF-kB Signaling Pathway e Reactome: Fatty Acids. È stato calcolato un punteggio di senescenza CellAge su dati bulk e l'analisi della correlazione di Spearman è stata utilizzata per valutare le associazioni tra PPARG e geni della senescenza o firme del microambiente immunitario21. Le differenze nei punteggi del microambiente tra i gruppi PPARG-alto e PPARG-basso sono state valutate mediante test non parametrici con correzione per confronti multipli.
Analisi trascrittomica a singola cellula
Un dataset trascrittomica a singola cellula pubblicato sul sarcoma osteogenico umano è stato analizzato utilizzando un oggetto preelaborato per il quale il controllo di qualità, la riduzione della dimensionalità, il clustering e l'annotazione manuale erano già stati completati22,23,24. Sono state incluse complessivamente 68.336 cellule e 32.297 geni. Per l'interpretazione del testo principale, le annotazioni sono state semplificate in 13 tipi cellulari principali: cellule B, CAF, cellule in ciclo, cellule endoteliali, cellule eritroidi, macrofagi/monociti, cellule maligne del sarcoma osteogenico, cellule miogeniche, neutrofili, cellule simili agli osteoclasti, periciti, cellule T/NK e cellule stromali associate al tumore. La riduzione della dimensionalità, l'espressione delle caratteristiche, i grafici a punti e i grafici a violino sono stati utilizzati per visualizzare la localizzazione di PPARG. Le cellule positive per PPARG sono state definite come cellule con espressione maggiore di zero. Le differenze tra i tipi cellulari sono state valutate mediante test di Kruskal-Wallis e test della somma dei ranghi di Wilcoxon con correzione di Benjamini-Hochberg. Le analisi a singola cellula sono state eseguite in R utilizzando Seurat (versione 5.0.1).
Analisi trascrittomica spaziale
Il campione trascrittomica spaziale SP_BS3 è stato utilizzato per costruire un oggetto di espressione spaziale25,26. Le soglie di controllo qualità erano nFeature_Spatial ≥ 200 e percent.mt ≤ 30, lasciando 4.572 spot per l'analisi. I dati sono stati normalizzati, sono stati selezionati 3.000 geni altamente variabili e sono state eseguite la scalatura dei dati, l'analisi delle componenti principali, la costruzione del grafo di vicinato, il clustering spaziale degli spot e la riduzione della dimensionalità. Un punteggio spaziale di senescenza CellAge è stato calcolato dopo aver rimosso PPARG dal set genico per evitare una correlazione circolare. Sono state costruite e valutate le firme di endoteliali, periciti, macrofagi/monociti, stromali associati al tumore, osteosarcomi maligni e simili agli osteoclasti. È stata utilizzata l'analisi della correlazione di Spearman per valutare le associazioni tra l'espressione di PPARG e i punteggi spaziali. Il trasferimento di etichetta è stato effettuato utilizzando il dataset singola-cellula come riferimento e il dataset spaziale come query per inferire i punteggi previsti per tipo cellulare per ogni spot23,24. Le analisi trascrittomiche spaziali sono state eseguite in R utilizzando Seurat (versione 5.0.1) e la correzione FDR di Benjamini-Hochberg è stata applicata a tutti i valori P di correlazione spaziale.
Convalida dell'espressione esterna in GSE36001
Il set di dati GEO GSE36001 è stato utilizzato esclusivamente come coorte indipendente per la convalida dell'espressione; poiché i dati sugli esiti di sopravvivenza non erano disponibili, non è stato impiegato per la convalida prognostica11,27. Il set di dati comprendeva 19 campioni di osteosarcoma e sei campioni di controllo normali. È stata utilizzata l'annotazione della piattaforma GPL6102 per convertire gli identificatori delle sonde in simboli genici. Quando più sonde corrispondevano allo stesso gene, è stata mantenuta quella con l'espressione media più elevata. L'espressione differenziale tra i gruppi tumorali e normali è stata valutata mediante limma28. Le analisi sono state eseguite in R utilizzando limma (versione 3.56.2) e i valori di P aggiustati sono stati calcolati con il metodo di Benjamini-Hochberg.
Validazione mediante qRT-PCR e Western blot
La validazione sperimentale è stata eseguita utilizzando la linea cellulare di osteosarcoma umano 143B e cellule di osteoblasti umani. Le cellule di osteosarcoma sono state coltivate in mezzo di Eagle modificato di Dulbecco (DMEM) integrato con il 10% di siero fetale bovino e l'1% di penicillina-streptomicina a 37 °C in un'atmosfera umidificata contenente il 5% di CO₂, e passate con tripsina-EDTA 0,25% al raggiungimento di una confluenza dell'80–90%. Le cellule di osteoblasti umani sono state mantenute nelle condizioni di coltura raccomandate. Tutte le linee cellulari sono state verificate per l'assenza di contaminazione da micoplasma. Per la qRT-PCR, l'RNA totale è stato estratto utilizzando un reagente per l'estrazione dell'RNA a base di fenolo-guanidinio, e la concentrazione e la purezza dell'RNA sono state valutate mediante spettrofotometria. Un microgrammo di RNA totale è stato retrotrascritto utilizzando un reagente per la retrotrascrizione seguendo il protocollo raccomandato. La qRT-PCR è stata eseguita impiegando una chimica basata su colorante fluorescente legante il DNA, con le seguenti condizioni di ciclatura: denaturazione iniziale a 95 °C per 30 s, seguita da 40 cicli a 95 °C per 5 s e 60 °C per 30 s, con analisi della curva di denaturazione per confermare la specificità dell'amplificazione. Ogni reazione è stata eseguita in triplicato tecnico e sono stati condotti tre esperimenti biologici indipendenti. Il gene GAPDH è stato utilizzato come controllo interno e l'espressione relativa di PPARG è stata calcolata con il metodo 2-ΔΔCt29. Il primer forward per PPARG era 5'-CGAAGACATTCCATTCACAAGAACAG-3', mentre il primer reverse era 5'-AGATGCAGGCTCCACTTTGATTG-3'.
Il Western blot è stato eseguito per analizzare l'espressione proteica di PPARG. Le cellule sono state lisate in buffer per saggio di radioimmunoprecipitazione supplementato con inibitori delle proteasi e le concentrazioni proteiche sono state determinate mediante saggio con acido bicinconinico. Quantità uguali di proteina (30 µg per pozzetto) sono state separate mediante elettroforesi su gel di poliacrilammide in presenza di dodecilsolfato di sodio al 10% e trasferite su membrane di difluoruro di polivinilidene. Dopo il blocco con latte scremato al 5% per 1 h a temperatura ambiente, le membrane sono state incubate tutta la notte a 4 °C con anticorpi primari contro PPARG (1:1.000) e GAPDH (1:5.000), seguiti dall'incubazione con un anticorpo secondario coniugato con perossidasi di rafano (1:5.000) per 1 h a temperatura ambiente. Le bande proteiche sono state visualizzate mediante rilevamento chemiluminescente, e sono stati eseguiti tre esperimenti indipendenti. Le intensità delle bande sono state quantificate utilizzando un software di analisi delle immagini30. Le differenze tra i gruppi sono state analizzate utilizzando il test t di Student non appaiato a due code t test. I dati sono stati presentati come media ± deviazione standard (DS) di tre esperimenti indipendenti, e P < Un valore di 0,05 è stato considerato statisticamente significativo. Le analisi statistiche dei dati sperimentali sono state effettuate utilizzando un software di analisi statistica (versione 9.0).
Analisi statistica
Se non diversamente specificato, tutte le analisi bioinformatiche sono state eseguite in R (versione 4.3.2). Bilaterali P valori < 0,05 sono stati considerati statisticamente significativi. Le correlazioni sono state valutate utilizzando il coefficiente di correlazione rank di Spearman (ρ). La correzione per test multipli è stata eseguita utilizzando il metodo FDR di Benjamini-Hochberg, quando applicabile. I dati sperimentali sono stati espressi come media ± SD e sono stati confrontati utilizzando un test t di Student non appaiato a due code t test. Le analisi statistiche sperimentali sono state eseguite utilizzando un software di analisi statistica (versione 9.0).
Risultati
GSE99671 ha identificato 105 geni differenzialmente espressi associati alla senescenza in base al database CellAge
GSE99671 includeva 36 campioni provenienti da 18 tessuti appaiati. Dopo il filtraggio dei conteggi bassi, sono stati mantenuti 16.683 geni. Con un valore di P corretto < 0,05, 2.248 geni risultavano differenzialmente espressi. Applicando la soglia più rigorosa di valore di P corretto < 0,05 e |log2FC| ≥ 1, 594 geni risultavano significativi, inclusi 102 geni upregolati e 492 geni downregolati nei tumori (Figura 1A,B). L'intersezione tra i 2.248 geni differenzialmente espressi e i 866 geni di CellAge ha prodotto 105 geni differenzialmente espressi associati alla senescenza (Figura 1C). PPARG risultava downregolato in GSE99671, con log2FC = -0,644, P = 0,00451 e valore di P corretto = 0,0309. In 13 su 18 coppie, l'espressione di PPARG era maggiore nel tessuto normale rispetto al tessuto tumorale, con un valore di P di Wilcoxon per dati appaiati pari a 0,0294 (Figura 1D).
Il screening prognostico multimodale ha identificato PPARG come gene candidato principale
Nel TARGET-OS sono stati inclusi 85 pazienti con 27 eventi di morte. Lo screening integrato dei 105 geni differenzialmente espressi correlati alla senescenza, effettuato mediante regressione univariata di Cox, analisi di Kaplan-Meier, analisi ROC per la sopravvivenza, LASSO, LASSO ripetuto e modellizzazione con random survival forest, ha prodotto 18 geni candidati hub prima dell'aggiustamento clinico (Figura 2A). PPARG si è dimostrato associato alla sopravvivenza globale nell'analisi univariata di Cox (HR = 0,603, IC 95% = 0,454–0,802, P = 0,000494, FDR = 0,0447), indicando che un'espressione più elevata di PPARG era associata a un rischio di mortalità inferiore. L'analisi di Kaplan-Meier, che ha confrontato i gruppi ad alta e bassa espressione, ha fornito un valore di P = 0,00784 (Figura 2B). Le AUC dipendenti dal tempo a 1, 3 e 5 anni sono state rispettivamente 0,603, 0,760 e 0,776 (Figura 2C). PPARG ha mostrato una frequenza di selezione nel LASSO ripetuto pari a 0,920 e un'importanza nel random survival forest di 0,0398 (Figura 2D–F). Il punteggio iniziale di hub per PPARG era 6/6 poiché soddisfaceva tutti e sei i criteri di screening prefissati.
La correzione clinica ha confermato l'associazione prognostica di PPARG
Dopo l'inclusione dei covarianti clinici, PPARG è rimasto significativamente associato alla sopravvivenza globale (HR aggiustato = 0,224, IC 95% = 0,085–0,589, P = 0,00241; Figura 2G). Il modello basato esclusivamente su parametri clinici presentava un indice C di 0,707 e un AIC di 89,921 (Tabella supplementare 1). L'aggiunta di PPARG ha aumentato l'indice C a 0,829, ridotto l'AIC a 78,466 e migliorato significativamente l'adattamento del modello secondo il test del rapporto di verosimiglianza (P = 0,000244; Tabella supplementare 2, Figura 2H,I). Un'analisi di sensibilità escludendo i pazienti sottoposti a chirurgia definitiva ha mantenuto l'associazione protettiva di PPARG (HR = 0,249, P = 0,00185; Tabella supplementare 3, Figura 2J). PPARG ha ottenuto il punteggio clinico-integrato più alto, pari a 13 (punteggio iniziale del nodo centrale 6 più sette punti di integrazione clinica) e ha mostrato un'area sotto la curva (AUC) finale a 3 e 5 anni rispettivamente di 0,770 e 0,813 (Figura 2K).
Caratteristiche funzionali e dell'ambiente immunitario associati a PPARG
L'analisi GSEA che confrontava i gruppi con espressione elevata e bassa di PPARG ha mostrato un arricchimento per Nemeth Inflammatory Response LPS Up, Burton Adipogenesis 5, Burton Adipogenesis 6, Krieg KDM3A Targets Not Hypoxia, Reactome: Transcriptional Regulation By TP53, Fulcher Inflammatory Response Lectin Vs LPS Dn, Hollmann Apoptosis Via CD40 Dn, Zhou Inflammatory Response Live Dn, WP: Fatty Acids And Lipoproteins Transport In Hepatocytes, Sweet Lung Cancer KRAS Up, KEGG Medicus Pathogen HIV Tat To TLR2/4 NF-kB Signaling Pathway e Reactome: Fatty Acids (Figura 3A). Nei dati bulk di TARGET-OS, PPARG non era significativamente correlato con il punteggio complessivo di senescenza CellAge (Spearman ρ = 0.022, P = 0.837; Figura 3B), ma mostrava correlazione con diversi singoli geni di CellAge (Figura 3C). L'analisi dell'ambiente immunitario ha rivelato correlazioni positive tra PPARG e macrofagi (ρ = 0,485, FDR = 2,7 × 10⁻⁵), cellule T CD8 (ρ = 0,410, FDR = 5,88 × 10⁻⁴), la firma di tipo osteoclasto (ρ = 0,383, FDR = 0,00120), neutrofili (ρ = 0,376, FDR = 0,00120), e cellule dendritiche (ρ = 0,370, FDR = 0,00123). I tumori con elevata espressione di PPARG mostravano firme più elevate per cellule di tipo osteoclasto, macrofagi, cellule T CD8, cellule dendritiche, monociti, neutrofili, cellule NK e cellule endoteliali dopo correzione per FDR (Tabella Supplementare 4, Figura 3D,E).
La trascrittomica a singola cellula ha localizzato PPARG nei compartimenti vascolari e microambientali
Il dataset a singola cellula comprendeva 68.336 cellule e 32.297 geni. L'espressione di PPARG differiva significativamente tra i diversi tipi cellulari (Figura 4A). L'espressione media più elevata è stata osservata nelle cellule endoteliali (espressione media = 0,540; rapporto positivo = 44,33%), nei periciti (espressione media = 0,439; rapporto positivo = 41,61%), nei macrofagi/monociti (espressione media = 0,363; rapporto positivo = 31,62%) e nelle cellule stromali associate al tumore (espressione media = 0,361; rapporto positivo = 44,10%; Figura 4B–E). Un sottoinsieme di cellule maligne di osteosarcoma esprimeva PPARG (espressione media = 0,163; rapporto positivo = 16,70%), ma l'espressione in queste cellule non era significativamente più alta rispetto a quella nelle altre cellule (FDR = 0,151). Questi risultati suggerivano che l'espressione di PPARG nell'osteosarcoma riflettesse prevalentemente lo stato vascolare, mieloide e stromale del microambiente, piuttosto che essere limitata alle cellule maligne (Figura 4F).
La trascrittomica spaziale ha associato PPARG a stati spaziali legati alla senescenza e a nicchie vascolari
Dopo il controllo di qualità, sono stati mantenuti 4.572 spot spaziali SP_BS3, raggruppati in sette cluster spaziali (Figura 5A). Figura 5B mostra la distribuzione spaziale di nFeature_Spatial (geni rilevati per spot). Tra i 866 geni di CellAge, 845 sono stati rilevati nella matrice di espressione spaziale (97,58%). PPARG ha mostrato un'espressione spaziale focale (Figura 5C). Il punteggio spaziale di senescenza di CellAge, calcolato dopo l'esclusione di PPARG, ha evidenziato una correlazione positiva debole ma statisticamente significativa con l'espressione di PPARG (ρ = 0,0692, P = 3,0 × 10⁻⁶, FDR = 1,9 × 10⁻⁵; Figura 5D). L'analisi del punteggio delle nicchie spaziali ha mostrato correlazioni positive tra PPARG e il punteggio endoteliale (ρ = 0,0433, FDR = 0,00592) e il punteggio dei periciti (ρ = 0,0367, FDR = 0,0181), mentre PPARG risultava negativamente correlato con il punteggio delle cellule maligne di osteosarcoma (ρ = -0,0592, FDR = 0,000219) e con il punteggio dello stroma tumorale (ρ = -0,0531, FDR = 0,000774; Tabella Supplementare 5, Figura 5E). L'analisi di trasferimento dell'etichetta ha mostrato in modo analogo correlazioni positive con il punteggio predittivo endoteliale (ρ = 0,0507, FDR = 0,00120) e con il punteggio predittivo dei periciti (ρ = 0,0394, FDR = 0,0123), insieme a una correlazione negativa con il punteggio predittivo delle cellule maligne di osteosarcoma (ρ = -0,0699, FDR = 1,1 × 10⁻⁵; Figure 5F–H).
L'espressione esterna e la validazione sperimentale hanno supportato la downregolazione di PPARG
GSE36001 includeva 19 campioni di osteosarcoma e sei controlli normali. PPARG risultava significativamente downregolato nell'osteosarcoma (logFC = -1.429, P = 0.00730, valore P aggiustato = 0.0435; Figura 6A). Nella validazione cellulare, l'espressione di mRNA di PPARG era significativamente più bassa nelle cellule di osteosarcoma 143B rispetto alle cellule osteoblastiche umane, come evidenziato da qRT-PCR (P < 0.001; Figura 6B). L'espressione proteica di PPARG era inoltre significativamente ridotta nelle cellule 143B mediante Western blotting (P < 0.01; Figura 6C,D). Questi risultati provenienti da coorte esterna e a livello di mRNA e di proteina hanno coerentemente supportato una ridotta espressione di PPARG nell'osteosarcoma. GSE36001 non includeva dati sugli esiti di sopravvivenza e pertanto ha fornito soltanto una validazione esterna dell'espressione, non una validazione prognostica indipendente.
DISPONIBILITÀ DEI DATI:
Tutti i set di dati utilizzati in questo studio sono disponibili pubblicamente. I dati GSE99671 e GSE36001 sono stati ottenuti dal database Gene Expression Omnibus (https://www.ncbi.nlm.nih.gov/geo/query/acc.cgi/acc=GSE99671; https://www.ncbi.nlm.nih.gov/geo/query/acc.cgi/acc=GSE36001). I dati trascrittomici e clinici di TARGET-OS sono stati scaricati da UCSC Xena (https://xena.ucsc.edu/). I geni associati alla senescenza sono stati ottenuti da CellAge: The Database of Cell Senescence Genes, parte delle Human Ageing Genomic Resources (https://genomics.senescence.info/cells/). I set di dati trascrittomici singola-cellula e spaziali del sarcoma osteogenico umano sono stati ottenuti dall'atlante pubblicato e dal relativo repository GitHub (https://github.com/zhengxj1/A-Single-Cell-and-Spatially-Resolved-Atlas-of-Human-Osteosarcomas). I set di geni per l'analisi di arricchimento sono stati ottenuti da MSigDB (https://www.gsea-msigdb.org/gsea/msigdb/). I dati elaborati generati in questo studio e gli script di analisi utilizzati per riprodurre i risultati riportati sono stati raccolti e inviati come File Supplementare 1.
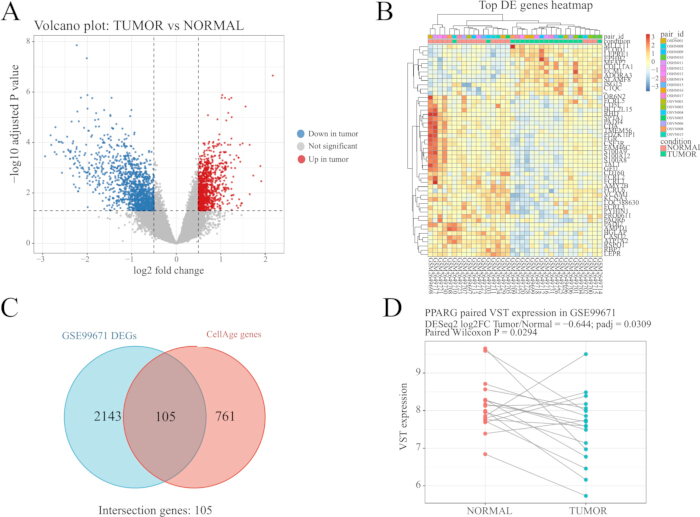
Figura 1: Identificazione di geni espressi in modo differenziale e di geni candidati associati alla senescenza derivati da CellAge nel osteosarcoma. (A) Diagramma a vulcano che mostra i geni espressi in modo differenziale tra tessuti di osteosarcoma e tessuti di controllo non tumorali abbinati nel dataset GSE99671. I geni significativamente sovraespressi e sottoregolati sono evidenziati in base ai criteri di cutoff predefiniti. (B) Mappa termica che mostra i profili di espressione di geni rappresentativi espressi in modo differenziale nei campioni di osteosarcoma e nei campioni di controllo abbinati nel dataset GSE99671. (C) Diagramma di Venn che mostra l'intersezione tra i geni espressi in modo differenziale nel dataset GSE99671 e i geni associati alla senescenza presenti in CellAge. (D) Confronto dell'espressione accoppiata di PPARG tra tessuti di osteosarcoma e tessuti di controllo non tumorali abbinati nel dataset GSE99671. Cliccare qui per visualizzare una versione ingrandita di questa figura.
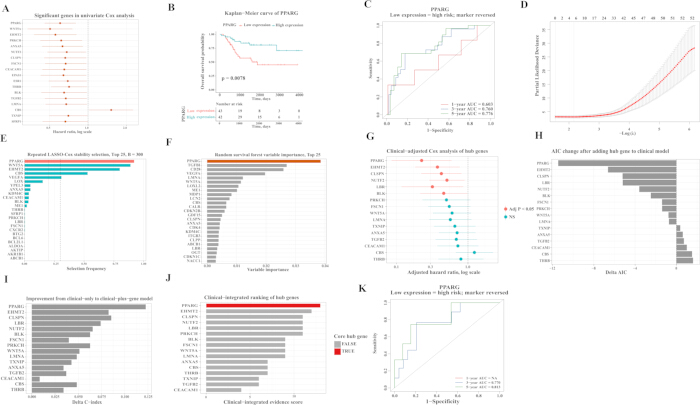
Figura 2: Analisi di sopravvivenza basate su apprendimento automatico e aggiustate clinicamente identificano PPARG come gene centrale prognostico associato alla senescenza nell'osteosarcoma. (A) Grafico a foreste che mostra i risultati della regressione di Cox univariata per i geni candidati correlati alla senescenza nel gruppo TARGET-OS. (B) Curva di sopravvivenza di Kaplan-Meier che confronta la sopravvivenza globale tra pazienti con espressione elevata di PPARG e pazienti con espressione bassa di PPARG. (C) Curve ROC dipendenti dal tempo per valutare le prestazioni predittive di PPARG per la sopravvivenza globale. (D) Curva di validazione incrociata della regressione di Cox LASSO per la selezione dei geni candidati prognostici. (E) Analisi di stabilità LASSO ripetuta che mostra le frequenze di selezione di lambda.min su 300 ripetizioni a cinque ripiegamenti. (F) Analisi di foresta di sopravvivenza casuale che mostra i punteggi di importanza delle variabili ottenuti da 1.000 alberi. (G) Grafico a foreste che mostra i risultati della regressione di Cox aggiustata clinicamente per i geni centrali candidati. (H) Variazioni dell'AIC dopo l'aggiunta di singoli geni centrali al modello clinico. (I) Miglioramento dell'indice C dopo l'aggiunta di singoli geni centrali al modello clinico. (J) Classificazione finale del punteggio integrato clinico (intervallo 0–13) per il gene centrale candidato. (K) Curve ROC dipendenti dal tempo di PPARG nel sottogruppo di 40 pazienti sottoposti ad analisi clinica, che mostrano le AUC a 3 e 5 anni; l'AUC a 1 anno non era stimabile. Cliccare qui per visualizzare una versione ingrandita di questa figura.
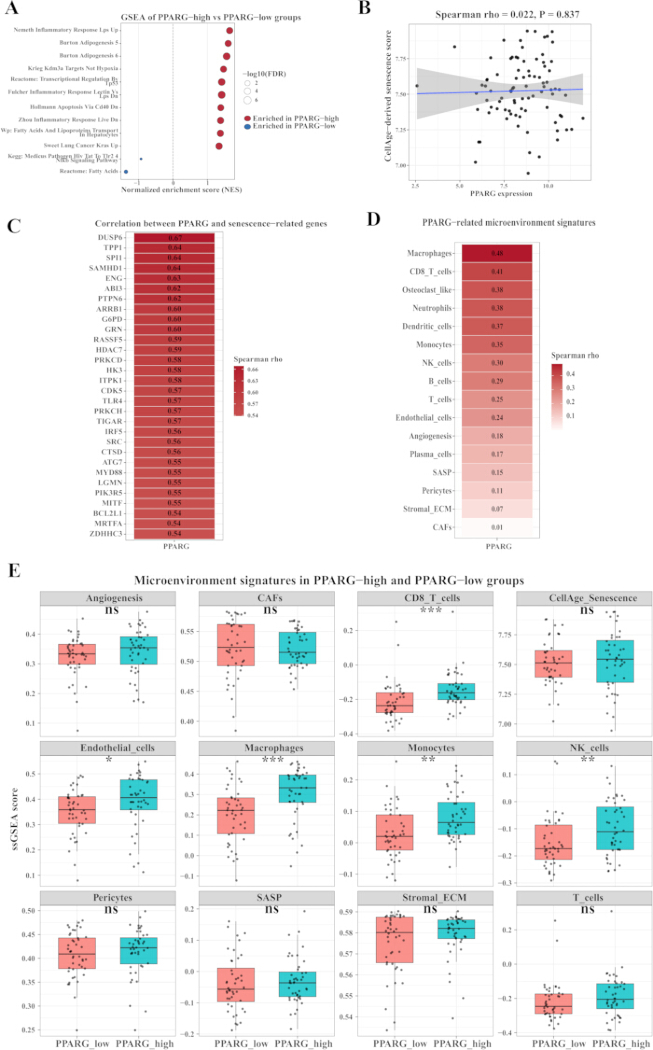
Figura 3: Arricchimento funzionale associato a PPARG e analisi del microambiente immunitario. (A) Grafico a bolle GSEA che confronta i gruppi con espressione elevata (PPARG-high) e bassa (PPARG-low) di PPARG, mostrando Nemeth Inflammatory Response LPS Up, Burton Adipogenesis 5, Burton Adipogenesis 6, Krieg KDM3A Targets Not Hypoxia, Reactome: Transcriptional Regulation By TP53, Fulcher Inflammatory Response Lectin Vs LPS Dn, Hollmann Apoptosis Via CD40 Dn, Zhou Inflammatory Response Live Dn, WP: Fatty Acids And Lipoproteins Transport In Hepatocytes, Sweet Lung Cancer KRAS Up, KEGG Medicus Pathogen HIV Tat To TLR2/4 NF-kB Signaling Pathway e Reactome: Fatty Acids. (B) Correlazione tra PPARG e il punteggio complessivo di senescenza CellAge nei dati bulk di TARGET-OS. (C) Correlazioni tra PPARG e singoli geni di CellAge. (D) Correlazioni tra PPARG e firme del microambiente immunitario. (E) Differenze nei punteggi del microambiente tra i gruppi PPARG-high e PPARG-low. Le correlazioni sono state valutate mediante il coefficiente di correlazione di Spearman (ρ) e i valori P aggiustati sono stati calcolati utilizzando il metodo di Benjamini-Hochberg. Abbreviazioni: GSEA = analisi di arricchimento di insiemi genici; NF-κB = fattore nucleare kappa-B; JAK-STAT = Janus chinasi-trasduttore del segnale e attivatore della trascrizione; IL-12 = interleuchina-12; FDR = tasso di falsa scoperta. Cliccare qui per visualizzare una versione ingrandita di questa figura.
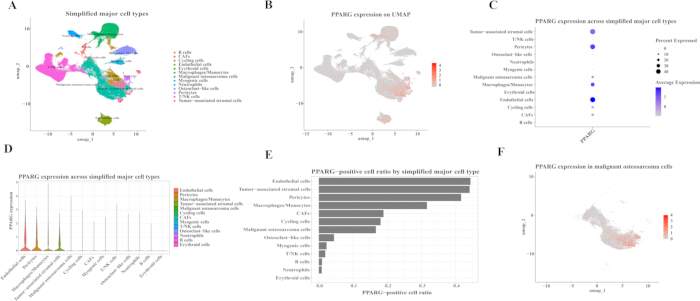
Figura 4: Localizzazione di PPARG nei diversi compartimenti cellulari nei dati trascrittomici a singola cellula del osteosarcoma. (A) Visualizzazione UMAP dei principali tipi cellulari nel dataset trascrittomico a singola cellula del osteosarcoma umano dopo annotazione manuale semplificata. (B) FeaturePlot che mostra la distribuzione globale dell'espressione di PPARG tra le singole cellule. (C) DotPlot che mostra l'espressione di PPARG nei principali tipi cellulari. (D) Grafico a violino che mostra i livelli di espressione di PPARG in diversi tipi cellulari. (E) Grafico a barre che mostra la proporzione di cellule positive a PPARG in ciascun tipo cellulare principale. (F) Visualizzazione UMAP che mostra l'espressione di PPARG nelle cellule di osteosarcoma maligno. Abbreviazione: UMAP = uniform manifold approximation and projection. Cliccare qui per visualizzare una versione ingrandita di questa figura.
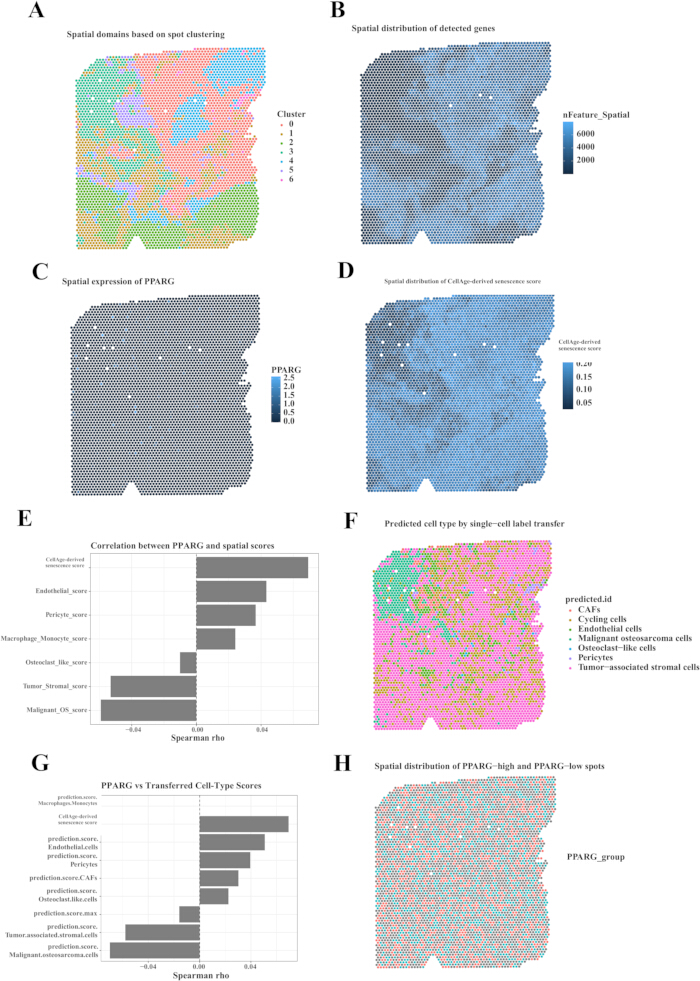
Figura 5: Localizzazione trascrittomica spaziale di PPARG e di caratteristiche spaziali associate alla senescenza nell'osteosarcoma. (A) Distribuzione spaziale dei cluster definiti dal trascrittoma nella sezione trascrittomica spaziale SP_BS3 dell'osteosarcoma. (B) Distribuzione spaziale del numero di geni rilevati per spot, mostrata da nFeature_Spatial. (C) Pattern di espressione spaziale di PPARG negli spot SP_BS3. (D) Distribuzione spaziale del punteggio di senescenza derivato da CellAge. (E) Analisi della correlazione tra l'espressione di PPARG e il punteggio di senescenza spaziale derivato da CellAge o i punteggi di nicchia ecologica cellulare. (F) Mappa predittiva del trasferimento di etichetta che mostra il tipo cellulare dominante derivato da singola cellula per ogni spot spaziale. (G) Analisi della correlazione tra espressione di PPARG, punteggio di senescenza derivato da CellAge e punteggi predittivi del tipo cellulare derivati dal trasferimento di etichetta. (H) Distribuzione spaziale degli spot PPARG-alto e PPARG-basso. Cliccare qui per visualizzare una versione ingrandita di questa figura.
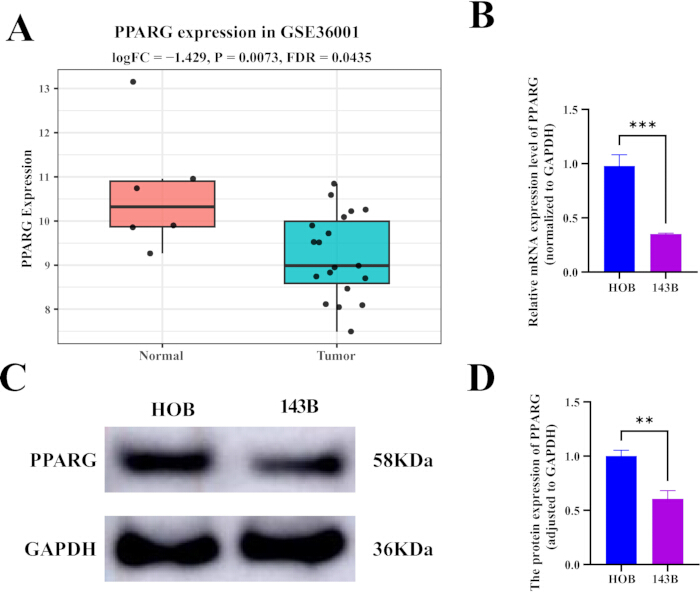
Figura 6: Espressione esterna e validazione sperimentale della downregolazione di PPARG nell'osteosarcoma. (ABoxplot che mostra i livelli di espressione di PPARG in campioni di osteosarcoma (n = 19) e campioni normali di controllo (n = 6) nel dataset GSE36001.B) Analisi di espressione dell'mRNA di PPARG mediante qRT-PCR in cellule umane di osteosarcoma 143B e cellule di controllo umane osteoblastiche.C) Immunoblotting rappresentativo che mostra l'espressione proteica di PPARG e GAPDH in cellule osteoblastiche umane di controllo e in cellule di osteosarcoma 143B. GAPDH è stato utilizzato come controllo di caricamento.D) Quantificazione densitometrica delle bande di Western blot che mostrano i livelli relativi della proteina PPARG normalizzati a GAPDH. In (B) e (D), i dati sono presentati come media ± Deviazione standard da tre esperimenti indipendenti. P < 0,01 e P < 0,001 rispetto al gruppo di controllo di osteoblasti umani, come determinato mediante un test t di Student non appaiato a due code t-test. Abbreviazioni: qRT-PCR = reazione a catena della polimerasi con trascrizione inversa quantitativa; GAPDH = deidrogenasi del gliceraldeide-3-fosfato; SD = deviazione standard. Cliccare qui per visualizzare una versione ingrandita di questa figura.
Tabella supplementare 1: Prestazioni del modello di Cox basato esclusivamente su dati clinici nella coorte TARGET-OS. Indice C, AIC e sommario del modello di Cox costruito utilizzando solo variabili cliniche, tra cui sesso, età, stato della malattia alla diagnosi, sito del tumore primario, regione tumorale specifica e stato di chirurgia definitiva. Abbreviazione: AIC = criterio di informazione di Akaike. Cliccare qui per scaricare il file.
Tabella supplementare 2: Confronto tra modelli di Cox clinici e modelli clinici più genetici. Risultati del confronto tra modelli dopo l'aggiunta di singoli geni candidati hub al modello clinico, inclusi indice C, AIC, statistiche del test del rapporto di verosimiglianza e metriche di miglioramento del modello. Abbreviazione: AIC = criterio di informazione di Akaike. Cliccare qui per scaricare il file.
Tabella supplementare 3: Analisi di sensibilità dopo la rimozione della variabile relativa all'intervento chirurgico definitivo. Risultati della regressione di Cox per l'analisi di sensibilità, volti a valutare se le associazioni prognostiche dei geni hub candidati, in particolare PPARG, sono rimaste stabili dopo l'esclusione della variabile relativa all'intervento chirurgico definitivo dal modello clinico aggiustato. Cliccare qui per scaricare il file.
Tabella supplementare 4: Firme dell'ambiente immunitario e stromale associate a PPARG in TARGET-OS. Risultati delle correlazioni e dei confronti tra gruppi relativi all'espressione di PPARG e le firme ssGSEA associate a componenti immunitari, stromali, vascolari, infiammatori e alla SASP, inclusi i coefficienti di correlazione di Spearman, valori di P, valori di P aggiustati e confronti tra PPARG-alto e PPARG-basso. Abbreviazioni: SASP = fenotipo secretorio associato alla senescenza; ssGSEA = analisi di arricchimento di set di geni da singolo campione. Cliccare qui per scaricare il file.
Tabella Supplementare 5: Analisi della correlazione trascrittomica spaziale di PPARG in SP_BS3. Risultati della correlazione tra l'espressione di PPARG e il punteggio di senescenza derivato da CellAge spaziale, i punteggi di nicchia ecologica cellulare e i punteggi di previsione del tipo cellulare derivati dal trasferimento di etichetta nella sezione trascrittomica spaziale dell'osteosarcoma SP_BS3. Cliccare qui per scaricare questo file.
Discussione
Questo studio ha identificato PPARG come gene prognostico candidato associato alla senescenza nell'osteosarcoma, integrando un'analisi dell'espressione differenziale, l'intersezione con i geni di CellAge, la modellizzazione della sopravvivenza in TARGET-OS, l'aggiustamento clinico, la localizzazione multi-omica e la validazione sperimentale. Questo schema analitico è coerente con l'attuale enfasi sulla ricerca sull'osteosarcoma informata a livello molecolare e sulle risorse curate di geni legati alla senescenza per l'interpretazione della biologia associata alla senescenza14,31. PPARG risultava sotto-regolato nell'osteosarcoma rispetto al tessuto normale, ed un'espressione più bassa di PPARG era associata a una peggiore sopravvivenza globale in TARGET-OS. Questi risultati suggeriscono che PPARG non solo è alterato a livello trascrizionale nell'osteosarcoma, ma potrebbe anche fornire informazioni prognostiche clinicamente rilevanti. Tuttavia, poiché la selezione del candidato e la valutazione del modello sono state effettuate sullo stesso coorte TARGET-OS (85 pazienti, 27 eventi di morte), il miglioramento osservato nelle prestazioni del modello potrebbe essere influenzato da un eccesso di ottimismo e da overfitting; pertanto, il valore prognostico di PPARG dovrebbe essere considerato generatore di ipotesi fino a quando non verrà convalidato in un coorte indipendente di sopravvivenza per osteosarcoma. Tuttavia, la biologia di PPARG deve essere interpretata in modo dipendente dal contesto, poiché studi sperimentali sull'osteosarcoma hanno riportato sia effetti antitumorali della modulazione del recettore nucleare PPAR-gamma, sia programmi di PPARG associati agli osteoclasti che potrebbero favorire la progressione della malattia32,33,34.
Una sfumatura importante era che PPARG non doveva essere interpretato come un semplice surrogato del punteggio complessivo di CellAge. Nei dati bulk di TARGET-OS, PPARG non mostrava una correlazione significativa con il punteggio globale di senescenza CellAge, mentre nella trascrittomica spaziale, PPARG mostrava una correlazione debole ma significativa con un punteggio CellAge calcolato escludendo PPARG. Questa differenza potrebbe riflettere effetti legati alla composizione cellulare nei dati bulk, la natura multifunzionale degli insiemi genici di senescenza e l'arricchimento locale di nicchie microambientali nei punti spaziali. Studi di consenso e trascrittomica hanno sottolineato che la senescenza cellulare è eterogenea, dinamica e dipendente dal tipo cellulare, dallo stressore e dal contesto tissutale, mentre i programmi SASP possono esercitare effetti opposti durante la progressione del cancro25,35,36,37. PPARG è stato quindi definito in modo conservativo come un gene prognostico legato alla senescenza derivato da CellAge, piuttosto che come un effettivo attivatore della senescenza. Di conseguenza, l'attribuzione di PPARG come gene legato alla senescenza riflette l'appartenenza all'insieme genico CellAge piuttosto che un coinvolgimento meccanicistico dimostrato nella senescenza, e PPARG non deve essere utilizzato come surrogato quantitativo dell'attività complessiva di senescenza.
Più in generale, questi risultati spaziali hanno illustrato la distinzione tra significatività statistica e rilevanza biologica. Con 4.572 punti spaziali, anche correlazioni molto deboli potrebbero superare le soglie convenzionali di significatività; ad esempio, la correlazione tra PPARG e il punteggio spaziale di senescenza CellAge (ρ = 0,0692) spiegava solo circa lo 0,48% della varianza, ma raggiungeva un valore di P pari a 3,0 × 10⁻⁶ poiché il gran numero di punti forniva un’elevata potenza statistica. Tali associazioni a livello di singolo punto devono pertanto essere considerate segnali statisticamente rilevabili ma biologicamente modesti, utili per generare ipotesi, e le loro dimensioni dell'effetto, piuttosto che i soli valori di P, dovrebbero guidare l'interpretazione biologica. La significatività statistica in dataset ampi a livello di singolo punto non deve essere equiparata a effetti biologici forti.
Le analisi a singola cellula e spaziali hanno fornito un contesto biologico per PPARG. PPARG risultava arricchito nelle cellule endoteliali, nei periciti, nei macrofagi/monociti e nelle cellule stromali associate al tumore, ed era associato spazialmente ai punteggi di cellule endoteliali e periciti. Questi risultati suggerivano che l'informazione prognostica trasportata da PPARG potrebbe essere legata ai compartimenti vascolari e microambientali nell'osteosarcoma. Questa interpretazione era compatibile con le recenti atlanti a singola cellula e spaziali sull'osteosarcoma e con evidenze più ampie secondo cui nicchie immunitarie, vascolari e stromali modellano l'eterogeneità tumorale, la risposta al trattamento e la progressione25,38,39. Poiché le cellule tumorali maligne dell'osteosarcoma esprimevano PPARG solo in un sottoinsieme di cellule e non mostravano un'espressione significativamente più elevata rispetto ad altre cellule, un'interpretazione basata esclusivamente sulle cellule tumorali sarebbe risultata incompleta. Al contrario, la ridotta espressione a livello complessivo (bulk-level) di PPARG osservata nei dataset GSE99671 e GSE36001 potrebbe in parte riflettere differenze nella composizione cellulare stromale, vascolare, del midollo osseo, adipogenica o immunitaria tra tessuto tumorale e tessuto normale, piuttosto che una reale downregolazione nelle cellule tumorali maligne dell'osteosarcoma. Poiché la purezza tumorale e l'abbondanza dei tipi cellulari non erano state esplicitamente corrette nelle analisi bulk, questa possibilità non poteva essere esclusa e richiedeva un'indagine mirata.
Le analisi del microambiente funzionale e immunitario erano coerenti con questa interpretazione. PPARG si correlava con firme di macrofagi, cellule T CD8, cellule dendritiche, neutrofili, cellule NK e endoteliali, e l'analisi GSEA ha evidenziato vie associate all'infiammazione, alla segnalazione NF-κB, JAK-STAT/IL-12, alla regolazione di TP53 e ai punti di controllo del danno al DNA. Nel complesso, questi risultati suggerivano che PPARG potrebbe indicare uno stato microambientale composito che coinvolge stress associato alla senescenza, infiltrazione immunitaria e compartimenti vascolari e stromali. Questa interpretazione era biologicamente plausibile poiché PPAR-gamma ha ruoli consolidati nell'inibire l'attivazione infiammatoria di macrofagi/monociti, compresi gli effetti su programmi trascrizionali legati ad AP-1, STAT e NF-κB, e poiché il microambiente immunitario dell'osteosarcoma contiene elementi mieloidi, linfoidi e vascolari con funzioni sia promotorie sia inibitorie del tumore38,40,41. Queste osservazioni a singola cellula e spaziali erano descrittive e generatrici di ipotesi; di per sé non hanno stabilito meccanismi legati al nicchio vascolare, programmi di senescenza o vie prognostiche.
Vanno riconosciute diverse limitazioni. In primo luogo, l'analisi prognostica principale si è basata sul coorte pubblico retrospettivo TARGET-OS, con una dimensione campionaria limitata e un numero ridotto di eventi; pertanto, il valore prognostico di PPARG dovrebbe essere convalidato in coorti indipendenti seguendo i principi accettati per la segnalazione e la validazione dei marcatori tumorali42. In particolare, lo screening dei candidati è stato effettuato su 85 pazienti con osteosarcoma del TARGET-OS, di cui 27 deceduti, mentre la valutazione del modello aggiustato per dati clinici ha utilizzato un sottogruppo sovrapposto di 40 pazienti con 13 decessi. Poiché entrambe le analisi derivano dallo stesso coorte di origine, il miglioramento del C-index riportato (da 0,707 a 0,829) e la riduzione dell'AIC sono probabilmente ottimistiche. Non era disponibile un coorte di sopravvivenza indipendente per convalidare esternamente il valore prognostico di PPARG; GSE36001 è stato utilizzato esclusivamente per la convalida dell'espressione nei confronti tra tumore e tessuto normale. Inoltre, il punteggio integrato dell'hub era un'euristica interna esplorativa per il ranking, piuttosto che uno strumento prognostico validato. In secondo luogo, l'analisi trascrittomica spaziale si è basata su un singolo campione SP_BS3; sebbene le correlazioni fossero statisticamente significative, le dimensioni degli effetti erano ridotte e richiedono convalida su ulteriori campioni spaziali. In particolare, aumentare il numero di campioni trascrittomica spaziale provenienti da pazienti indipendenti sarà essenziale per ottenere stime più robuste di queste deboli associazioni, e sono necessari studi basati su coorti spaziali più ampie. La trascrittomica spaziale fornisce un contesto molecolare prezioso in situ, ma l'interpretazione rimane influenzata dalla risoluzione della piattaforma, dalla strategia di campionamento, dalla qualità del tessuto e dalle scelte computazionali di integrazione43. Inoltre, l'analisi spaziale si è basata su un oggetto pubblico preelaborato a singola cellula con annotazioni semplificate e su punteggi computazionali e trasferimento di etichette; data la ridotta entità degli effetti, questi dati supportano affermazioni descrittive sulla localizzazione piuttosto che conclusioni meccanicistiche riguardo ai nicchi vascolari o ai programmi di senescenza. In terzo luogo, la convalida sperimentale si è basata sulla linea cellulare di osteosarcoma 143B e sugli osteoblasti umani; sono necessarie ulteriori linee cellulari di osteosarcoma e campioni clinici, e la convalida su una singola linea cellulare non può stabilire specificità per tipo cellulare, rilevanza prognostica clinica o biologia della senescenza. In quarto luogo, questo studio ha dimostrato un'associazione piuttosto che una causalità. Sarà necessaria una perturbazione funzionale di PPARG in modelli cellulari di osteosarcoma e nel microambiente per determinare se PPARG regola direttamente programmi legati alla senescenza, nicchi vascolari o la progressione tumorale. In quinto luogo, la relazione con la senescenza è stata definita in base all'overlap con il set genico CellAge, e PPARG non è risultato correlato al punteggio di senescenza CellAge globale nel TARGET-OS. Inoltre, i confronti globali tra tumore e normale non sono stati aggiustati per purezza tumorale o composizione per tipo cellulare, quindi la downregolazione osservata potrebbe riflettere in parte differenze nella composizione del microambiente piuttosto che modifiche intrinseche alle cellule maligne.
PPARG è un gene derivato da CellAge il cui livello ridotto di espressione è associato a una sopravvivenza complessiva sfavorevole nella coorte TARGET-OS. La sua downregolazione nei confronti su osteosarcoma bulk, insieme all'arricchimento nei compartimenti vascolare, mieloide e stromale, suggerisce che i livelli bulk di PPARG potrebbero riflettere in parte la composizione cellulare del microambiente piuttosto che l'espressione intrinseca delle cellule maligne. I risultati ottenuti mediante singola-cellula e analisi spaziale sono descrittivi, e l'associazione prognostica non è stata validata indipendentemente per quanto riguarda la sopravvivenza, richiedendo pertanto conferma in una coorte esterna con esiti di sopravvivenza. Questi risultati propongono PPARG come biomarcatore candidato per la valutazione prognostica nell'osteosarcoma e per la ricerca sui microambienti legati alla senescenza, in attesa di validazione esterna e studi funzionali. Nella trascrittomica spaziale, le correlazioni tra PPARG e i punteggi relativi alle nicchie senescenti o vascolari erano deboli nell'entità dell'effetto, sebbene statisticamente significative a causa del grande numero di spot spaziali, e pertanto devono essere interpretate con cautela.
Dichiarazioni
Gli autori dichiarano di non avere interessi concorrenti.
CONTRIBUTI DEGLI AUTORI:
Yongwen Li e Wentao Qin hanno concepito e progettato lo studio. Yongwen Li ha eseguito le analisi bioinformatiche e computazionali. Tuo Liang ha eseguito la validazione sperimentale. Rubiao Qiu e Zide Zhang hanno contribuito alla preparazione delle figure. Rubiao Qiu e Zide Zhang hanno supervisionato lo studio e rivisto criticamente il manoscritto. Tutti gli autori hanno esaminato e approvato il manoscritto finale
Ringraziamenti
Gli autori ringraziano con gratitudine i ricercatori e i collaboratori dei progetti GEO, TARGET-OS, UCSC Xena, CellAge, MSigDB e dell'atlante trascrittomico singola-cellula e spaziale del sarcoma osteogenico umano per aver reso disponibili pubblicamente set di dati e risorse che hanno permesso questo studio. Questo lavoro è stato sostenuto dalla Guangxi Natural Science Foundation (No. 2023GXNSFAA026111).
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| Anticorpo primario anti-GAPDH | Proteintech Group, Wuhan, China | 10494-1-AP | Anticorpo primario utilizzato per rilevare GAPDH come controllo di caricamento nel western blot; diluizione 1:5.000. |
| Anticorpo primario anti-PPARG | Proteintech Group, Wuhan, China | 16643-1-AP | Anticorpo primario utilizzato per il rilevamento della proteina PPARG mediante western blot; diluizione 1:1.000. |
| Kit per saggio proteico BCA | Beijing Solarbio Science & Technology Co., Ltd., Beijing, China | PC0020 | Saggio colorimetrico utilizzato per determinare la concentrazione totale di proteine prima dell'elettroforesi. |
| DESeq2 | Bioconductor | Versione 1.40.2 | Pacchetto R utilizzato per l'analisi differenziale dell'espressione genica di dati trascrittomici basati su conteggi. |
| Mezzo Dulbecco modificato di Eagle (DMEM) | Beijing Solarbio Science & Technology Co., Ltd., Beijing, China | 11995 | Mezzo basale di coltura utilizzato per il mantenimento delle cellule di osteosarcoma 143B. |
| Reagente di rivelazione ECL | Beijing Solarbio Science & Technology Co., Ltd., Beijing, China | PE0010 | Substrato chemiluminescente utilizzato per il rilevamento di anticorpi coniugati con perossidasi di rafano nel western blot. |
| Siero bovino fetale (FBS) | Zhejiang Tianhang Biotechnology Co., Ltd. (Sijiqing), Huzhou, Zhejiang, China | 11011-8611 | Integratore sierico aggiunto al mezzo di coltura per sostenere la crescita e la vitalità cellulare. |
| glmnet | CRAN | Versione 4.1-8 | Pacchetto R utilizzato per analisi di regressione penalizzata, inclusi modelli LASSO e rete elastica. |
| GraphPad Prism | GraphPad Software, San Diego, CA, USA | Versione 9.0 | Software utilizzato per l'analisi statistica, la generazione di grafici e la visualizzazione dei dati sperimentali. |
| Anticorpo secondario coniugato con HRP | Proteintech Group, Wuhan, China | SA00001-2 | Anticorpo secondario coniugato con perossidasi di rafano utilizzato per il rilevamento nel western blot; diluizione 1:5.000. |
| Cellule di osteoblasti umani | Cell Applications, Inc., San Diego, CA, USA | 406-05A | Cellule primarie di osteoblasti umani utilizzate come tipo cellulare di controllo non maligno. |
| Linea cellulare di osteosarcoma umano 143B | American Type Culture Collection (ATCC), Manassas, VA, USA | CRL-8303 | Linea cellulare di osteosarcoma umano utilizzata per esperimenti di validazione in vitro e saggi molecolari. |
| ImageJ | National Institutes of Health (NIH), USA | Versione 1.53 | Software di analisi delle immagini utilizzato per l'analisi quantitativa delle immagini sperimentali. |
| limma | Bioconductor | Versione 3.56.2 | Pacchetto R utilizzato per l'analisi dell'espressione differenziale e test statistici basati su modelli lineari. |
| Penicillina-streptomicina | Beijing Solarbio Science & Technology Co., Ltd., Beijing, China | P1400 | Integratore antibiotico utilizzato nel mezzo di coltura cellulare per ridurre la contaminazione batterica. |
| Primer per PPARG e GAPDH | Sangon Biotech (Shanghai) Co., Ltd., Shanghai, China | Sintesi su misura; le sequenze sono fornite nei Metodi | Primer oligonucleotidici su misura utilizzati per l'analisi qPCR dell'espressione di PPARG e GAPDH. |
| Membrane in PVDF, 0.45 µm | Beijing Solarbio Science & Technology Co., Ltd., Beijing, China | YA1701 | Membrane utilizzate per il trasferimento proteico durante il western blot. |
| Software statistico R | R Foundation for Statistical Computing, Vienna, Austria | Versione 4.3.2 | Ambiente di calcolo statistico utilizzato per analisi bioinformatiche, costruzione di modelli e visualizzazione. |
| randomForestSRC | CRAN | Versione 3.2.2 | Pacchetto R utilizzato per la modellizzazione con foreste casuali di sopravvivenza e analisi dell'importanza delle caratteristiche. |
| Kit di trascrizione inversa | Beyotime Biotech Inc., Shanghai, China | D7168M | Utilizzato per la sintesi del DNA complementare (cDNA) a partire da RNA isolato prima della PCR quantitativa. |
| Tampone di lisi RIPA | Beijing Solarbio Science & Technology Co., Ltd., Beijing, China | R0010 | Tampone per l'estrazione delle proteine utilizzato per lisare le cellule per l'analisi mediante western blot. |
| Seurat | Satija Laboratory | Versione 5.0.1 | Pacchetto R utilizzato per l'elaborazione, l'integrazione, il clustering e la visualizzazione dei dati di sequenziamento dell'RNA a singola cellula. |
| survival | CRAN | Versione 3.5-7 | Pacchetto R utilizzato per l'analisi della sopravvivenza, inclusa la modellizzazione dei rischi proporzionali di Cox. |
| Mix master qPCR con SYBR Green | Beijing Solarbio Science & Technology Co., Ltd., Beijing, China | SR1110 | Mix fluorescente master utilizzato per l'amplificazione PCR quantitativa in tempo reale. |
| timeROC | CRAN | Versione 0.4 | Pacchetto R utilizzato per generare curve ROC dipendenti dal tempo e calcolare le prestazioni predittive nel tempo. |
| Reagente TRIzol | Invitrogen, Thermo Fisher Scientific, Waltham, MA, USA | 15596026CN | Reagente utilizzato per l'estrazione di RNA totale da cellule in coltura. |
| Tripsina-EDTA, 0,25% | Beijing Solarbio Science & Technology Co., Ltd., Beijing, China | T1300 | Reagente di dissociazione cellulare utilizzato per il passaggio e il raccolto di cellule aderenti. |
Riferimenti
- Mirabello L, Troisi RJ, Savage SA. Osteosarcoma incidence and survival rates from 1973 to 2004: data from the Surveillance, Epidemiology, and End Results Program. Cancer. 2009;115:1531-1543.
- Bielack SS, et al. Prognostic factors in high-grade osteosarcoma of the extremities or trunk: an analysis of 1,702 patients treated on neoadjuvant cooperative osteosarcoma study group protocols. J Clin Oncol. 2002;20:776-790.
- Isakoff MS, Bielack SS, Meltzer P, Gorlick R. Osteosarcoma: Current Treatment and a Collaborative Pathway to Success. J Clin Oncol. 2015;33:3029-3035.
- Kansara M, Teng MW, Smyth MJ, Thomas DM. Translational biology of osteosarcoma. Nat Rev Cancer. 2014;14:722-735.
- Peng P, et al. Epigenetic remodeling under oxidative stress: Mechanisms driving tumor metastasis. MedComm - Oncology. 2024;3.
- Muñoz-Espín D, Serrano M. Cellular senescence: from physiology to pathology. Nat Rev Mol Cell Biol. 2014;15:482-496.
- Coppé JP, Desprez PY, Krtolica A, Campisi J. The senescence-associated secretory phenotype: the dark side of tumor suppression. Annu Rev Pathol. 2010;5:99-118.
- Collado M, Serrano M. Senescence in tumours: evidence from mice and humans. Nat Rev Cancer. 2010;10:51-57.
- Lehrke M, Lazar MA. The many faces of PPARgamma. Cell. 2005;123:993-999.
- Peters JM, Shah YM, Gonzalez FJ. The role of peroxisome proliferator-activated receptors in carcinogenesis and chemoprevention. Nat Rev Cancer. 2012;12:181-195.
- Barrett T, et al. NCBI GEO: archive for functional genomics data sets--update. Nucleic Acids Res. 2013;41.
- Ho XD, et al. Whole transcriptome analysis identifies differentially regulated networks between osteosarcoma and normal bone samples. Exp Biol Med (Maywood). 2017;242:1802-1811.
- Love MI, Huber W, Anders S. Moderated estimation of fold change and dispersion for RNA-seq data with DESeq2. Genome Biol. 2014;15:550.
- Avelar RA, et al. A multidimensional systems biology analysis of cellular senescence in aging and disease. Genome Biol. 2020;21:91.
- Goldman MJ, et al. Visualizing and interpreting cancer genomics data via the Xena platform. Nat Biotechnol. 2020;38:675-678.
- Prentice RL, Zhao S. Regression Models and Multivariate Life Tables. J Am Stat Assoc. 2021;116:1330-1345.
- Heagerty PJ, Lumley T, Pepe MS. Time-dependent ROC curves for censored survival data and a diagnostic marker. Biometrics. 2000;56:337-344.
- Tibshirani R. The lasso method for variable selection in the Cox model. Stat Med. 1997;16:385-395.
- Jaeger BC, et al. OBLIQUE RANDOM SURVIVAL FORESTS. Ann Appl Stat. 2019;13:1847-1883.
- Subramanian A, et al. Gene set enrichment analysis: a knowledge-based approach for interpreting genome-wide expression profiles. Proc Natl Acad Sci U S A. 2005;102:15545-15550.
- Newman AM, et al. Robust enumeration of cell subsets from tissue expression profiles. Nat Methods. 2015;12:453-457.
- Zhou Y, et al. Single-cell RNA landscape of intratumoral heterogeneity and immunosuppressive microenvironment in advanced osteosarcoma. Nat Commun. 2020;11:6322.
- Stuart T, et al. Comprehensive Integration of Single-Cell Data. Cell. 2019;177:1888-1902.e21.
- Hao Y, et al. Integrated analysis of multimodal single-cell data. Cell. 2021;184:3573-3587.e29.
- Zheng X, et al. A single-cell and spatially resolved atlas of human osteosarcomas. J Hematol Oncol. 2024;17:71.
- Ståhl PL, et al. Visualization and analysis of gene expression in tissue sections by spatial transcriptomics. Science. 2016;353:78-82.
- Kresse SH, et al. Integrative analysis reveals relationships of genetic and epigenetic alterations in osteosarcoma. PLoS One. 2012;7.
- Ritchie ME, et al. limma powers differential expression analyses for RNA-sequencing and microarray studies. Nucleic Acids Res. 2015;43.
- Livak KJ, Schmittgen TD. Analysis of relative gene expression data using real-time quantitative PCR and the 2(-Delta Delta C(T)) Method. Methods. 2001;25:402-408.
- Schneider CA, Rasband WS, Eliceiri KW. NIH Image to ImageJ: 25 years of image analysis. Nat Methods. 2012;9:671-675.
- Gill J, Gorlick R. Advancing therapy for osteosarcoma. Nat Rev Clin Oncol. 2021;18:609-624.
- Sun L, et al. Single-cell RNA sequencing revealed PPARG promoted osteosarcoma progression: based on osteoclast proliferation. Front Immunol. 2024;15:1506225.
- Yuan B, et al. Nuclear receptor modulators inhibit osteosarcoma cell proliferation and tumour growth by regulating the mTOR signaling pathway. Cell Death Dis. 2023;14:51.
- Lu Y, et al. Oridonin exerts anticancer effect on osteosarcoma by activating PPAR-γ and inhibiting Nrf2 pathway. Cell Death Dis. 2018;9:15.
- Gorgoulis V, et al. Cellular Senescence: Defining a Path Forward. Cell. 2019;179:813-827.
- Faget DV, Ren Q, Stewart SA. Unmasking senescence: context-dependent effects of SASP in cancer. Nat Rev Cancer. 2019;19:439-453.
- Hernandez-Segura A, et al. Unmasking Transcriptional Heterogeneity in Senescent Cells. Curr Biol. 2017;27:2652-2660.e4.
- Tian H, et al. Managing the immune microenvironment of osteosarcoma: the outlook for osteosarcoma treatment. Bone Res. 2023;11:11.
- Hanahan D. Hallmarks of Cancer: New Dimensions. Cancer Discov. 2022;12:31-46.
- Ricote M, Li AC, Willson TM, Kelly CJ, Glass CK. The peroxisome proliferator-activated receptor-gamma is a negative regulator of macrophage activation. Nature. 1998;391:79-82.
- Jiang C, Ting AT, Seed B. PPAR-gamma agonists inhibit production of monocyte inflammatory cytokines. Nature. 1998;391:82-86.
- McShane LM, et al. REporting recommendations for tumour MARKer prognostic studies (REMARK). Br J Cancer. 2005;93:387-391.
- Moses L, Pachter L. Publisher Correction: Museum of spatial transcriptomics. Nat Methods. 2022;19:628.