Questo studio valuta gli effetti protettivi della capsula Yangjing sulla disfunzione spermatogenica indotta dal ciclofosfamide nei topi e ne esamina il coinvolgimento nel percorso di segnalazione lncRNA NONMMUT031883.2/QKI-5/p38 MAPK.
È richiesta un abbonamento a JoVE per visualizzare questo contenuto. Accedi o inizia la tua prova gratuita.
Articolo di ricerca
La capsula Yangjing attenua la disfunzione spermatogenica nei topi inibendo la via QKI-5/p38 MAPK attraverso l'upregolazione dell'incRNA NONMMUT031883.2
In questo articolo
Sommario
Abstract
La disfunzione spermatogenica è una causa importante di infertilità maschile e il ciclofosfamide (CP) può compromettere la spermatogenesi inducendo apoptosi anormale degli spermatogoni. La capsula Yangjing (YC) è stata utilizzata per migliorare la funzione riproduttiva, ma il suo meccanismo molecolare sottostante rimane poco chiaro. Questo studio ha indagato gli effetti protettivi della YC in un modello murino di disfunzione spermatogenica indotta da CP e in cellule spermatogoniali GC-1. Sono stati valutati il numero e la motilità degli spermatozoi, la fertilità maschile, i livelli sierici degli ormoni sessuali e le alterazioni istopatologiche nei testicoli e nell'epididimo. Nelle cellule GC-1 sono stati analizzati la vitalità cellulare, il rilascio di lattato deidrogenasi, l'apoptosi e le proteine correlate all'apoptosi. Sono state utilizzate la reazione a catena della polimerasi con trascrizione inversa quantitativa, saggi di pull-down dell'RNA, immunofluorescenza e Western blotting per esaminare l'RNA lungo NONMMUT031883.2, la Quaking-5 (QKI-5) e la via di segnalazione della p38 mitogen-activated protein kinase (MAPK). La YC ha migliorato in modo dose-dipendente la qualità dello sperma, i livelli sierici degli ormoni sessuali, la morfologia degli organi riproduttivi, l'istopatologia testicolare e la fertilità nei topi trattati con CP. Nelle cellule GC-1, la YC ha aumentato la vitalità cellulare e ridotto i danni cellulari e l'apoptosi. L'RNA lungo NONMMUT031883.2 ha interagito fisicamente con QKI-5 e il trattamento con YC ha aumentato l'espressione dell'RNA lungo NONMMUT031883.2, riducendo al contempo l'espressione di QKI-5 e la fosforilazione della p38. Il trattamento con YC ha inibito l'apoptosi indotta dal silenziamento dell'RNA lungo NONMMUT031883.2 nelle cellule GC-1, mentre la sovraespressione di QKI-5 ha ridotto gli effetti antiapoptotici della YC. Questi risultati suggeriscono che la YC attenua la disfunzione spermatogenica indotta dal CP e che i suoi effetti protettivi sono mediati dalla regolazione della via lncRNA NONMMUT031883.2/QKI-5/p38 MAPK.
Introduzione
La disfunzione spermatogenetica indica un'alterazione riproduttiva causata da anomalie nella produzione, maturazione o funzione degli spermatozoi nel sistema riproduttivo maschile. È caratterizzata da ridotto numero di spermatozoi, diminuita motilità e aumento della frequenza di anomalie spermatiche.1,2La patogenesi della disfunzione spermatogenica è complessa e associata a fattori genetici, disturbi autoimmuni, tossine ambientali, danni indotti dalla chemioterapia e lesioni degli organi riproduttivi3-5. Farmaci chemioterapici come il ciclofosfamide (CP) possono danneggiare direttamente i tubuli seminiferi testicolari e indurre l'apoptosi degli spermatogoni, contribuendo così alla disfunzione spermatogenica maschile6,7. Attualmente vengono utilizzate come interventi clinici la terapia sostitutiva ormonale, la supplementazione con antiossidanti e le tecnologie di riproduzione assistita. Tuttavia, questi approcci presentano un'efficacia inconsistente e notevoli effetti avversi.8,9,10Pertanto, identificare interventi sicuri ed efficaci e chiarirne le relative molecole bersaglio riveste un'importanza clinica fondamentale per migliorare i risultati sulla fertilità nei pazienti con disfunzione della spermatogenesi.
La medicina erboristica cinese ha mostrato un potenziale nel proteggere la funzione riproduttiva maschile e nel trattare la disfunzione spermatogenetica grazie alle sue proprietà multitarget e alla tossicità relativamente bassa11,12. La capsula Yangjing (YC) è un medicinale brevettato tradizionale cinese composto da Rehmannia glutinosa, Epimedium, placenta, Polygonatum sibiricum, Angelica sinensis e altre erbe cinesi. È utilizzata per tonificare il rene e l'essenza, nutrire il sangue e il midollo e regolare la funzione riproduttiva13. Studi precedenti hanno dimostrato che la YC può regolare i livelli ormonali sessuali negli animali maschi, migliorare la qualità dello sperma, riparare i danni ai tessuti testicolari e proteggere dalle lesioni riproduttive indotte da agenti chimici14,15. Le cellule spermatogoniali costituiscono la base della spermatogenesi e l'apoptosi anomala delle spermatogonie rappresenta un evento centrale nello sviluppo della disfunzione spermatogenetica16. È stato inoltre riportato che la YC migliora la vitalità delle spermatogonie, aumenta la proporzione di cellule in fase S e inibisce l'apoptosi17. Tuttavia, i suoi effetti protettivi e i meccanismi molecolari specifici nella disfunzione spermatogenetica indotta da CP rimangono poco chiari.
Gli RNA non codificanti lunghi (lncRNA) sono molecole di RNA più lunghe di 200 nucleotidi che non possiedono capacità di codifica proteica18. Gli lncRNA possono regolare l'espressione genica attraverso meccanismi che includono il silenziamento cromosomico, la modificazione della cromatina, l'imprinting genomico e l'attivazione trascrizionale19,20. La proteina legante l'RNA Quaking-5 (QKI-5) partecipa a processi fisiologici e patologici, inclusi la proliferazione cellulare e l'apoptosi, regolando lo splicing alternativo di geni downstream21. La via di segnalazione della chinasi mitogen-attivata p38 (p38 MAPK) è coinvolta nella regolazione dell'apoptosi e svolge anche un ruolo importante nella fertilità maschile e nello sviluppo testicolare22,23. Uno studio precedente ha dimostrato che la sovraespressione di QKI-5 attiva la via p38 MAPK nelle cellule di carcinoma epatocellulare24. Inoltre, è stato mostrato che l'lncRNA NONMMUT074098.2 si lega a QKI-5 nelle spermatogonie, mentre il silenziamento di QKI-5 inibisce la via p38 MAPK e riduce l'apoptosi delle spermatogonie25. Questo studio ha utilizzato un modello murino di disfunzione spermatogenica indotta da CP per indagare se YC regola l'espressione dell'lncRNA NONMMUT031883.2 e l'asse di segnalazione QKI-5/p38 MAPK, riducendo così l'apoptosi anomala delle spermatogonie e attenuando la disfunzione spermatogenica indotta da CP (Figura 1). L'obiettivo era chiarire il meccanismo molecolare alla base degli effetti protettivi di YC sulla spermatogenesi e approfondire la comprensione del suo ruolo farmacologico nella protezione della funzione riproduttiva maschile.
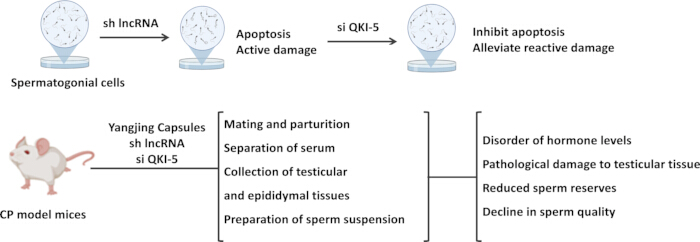
Figura 1: Schema del disegno sperimentale. Il pannello superiore riassume gli esperimenti in vitro effettuati su cellule spermatogoniali GC-1. L'abbattimento dell'RNA lungo non codificante NONMMUT031883.2 è stato utilizzato per indurre apoptosi e danno cellulare, seguito dall'abbattimento di QKI-5 per valutarne gli effetti sull'apoptosi e sul danno cellulare. Il pannello inferiore riassume gli esperimenti in vivo condotti su modelli murini di disfunzione spermatogenetica indotta da ciclofosfamide (CP). I topi hanno ricevuto il trattamento con Yangjing Capsule e/o interventi sull'RNA lungo non codificante NONMMUT031883.2 o su QKI-5. Successivamente sono stati valutati fertilità, livelli sierici di ormoni, tessuti testicolari ed epididimali, sospensione spermatica, riserve spermatiche, qualità dello sperma e danno istopatologico testicolare. Cliccare qui per visualizzare una versione ingrandita di questa figura.
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Protocollo
Tutti gli esperimenti sugli animali sono stati eseguiti in conformità con le linee guida ARRIVE e con la guida degli Istituti Nazionali di Salute per la Cura e l'Uso degli Animali da Laboratorio. Tutti i protocolli sperimentali sono stati esaminati e approvati dal Comitato Etico per gli Animali dell'Università del Sudest (numero di approvazione 20230216022).
1. Preparazione del siero contenente Yangjing Capsules (YC)
Due Yangjing Capsules (YC; 0,5 g/capsula) sono state aperte e 0,8 g del contenuto è stato pesato. È stato aggiunto del fisiologico fino a un volume finale di 10 mL, quindi la miscela è stata vortexata accuratamente per preparare una sospensione da 80 mg/mL. Topi maschi BALB/c specific pathogen-free del peso di 22–25 g e di 8 settimane di età sono stati mantenuti a 22 °C e umidità del 55%–60% in un ciclo luce/buio di 12 ore, con cibo e acqua disponibili ad libitum. Dopo una settimana di ambientamento, i topi hanno ricevuto YC per gavaggio orale a una dose di 800 mg/kg di peso corporeo in un volume di 10 mL/kg, una volta al giorno per 5 giorni consecutivi. Due ore dopo l’ultima somministrazione, i topi sono stati anestetizzati mediante iniezione intraperitoneale di pentobarbital sodico al 1%, e sono stati prelevati campioni di sangue per la preparazione del siero contenente YC. Il siero è stato inattivato a 56 °C per 30 minuti, filtrato attraverso una membrana da 0,22 µm e conservato a −80 °C fino all’uso.
2. Coltura cellulare e trasfezione
Le cellule spermatogoniali murine GC-1 sono state mantenute in DMEM contenente 1% di penicillina-streptomicina e 10% di siero fetale bovino. Tutte le colture sono state mantenute a 37 °C in un'atmosfera contenente 5% di CO₂ (v/v).
Sono stati sintetizzati e costruiti un RNA a forcina corta specifico per lncRNA (sh-lncRNA), un plasmide di sovraespressione di QKI-5 (OE-QKI-5), un RNA interferente specifico per QKI-5 (si-QKI-5) e i corrispondenti controlli negativi (sh-NC, OE-NC e si-NC). Le cellule GC-1 sono state trasfettate con sh-lncRNA o sh-NC, si-QKI-5 o si-NC, oppure OE-QKI-5 o OE-NC seguendo le istruzioni del reagente di trasfezione. Dopo un'incubazione di 48 h, l'efficienza di trasfezione è stata valutata misurando l'espressione dell'lncRNA NONMMUT031883.2 o di QKI-5.
Per il gruppo sh-lncRNA + si-QKI-5 + etoposide, le cellule GC-1 sono state trasfettate con sh-lncRNA e si-QKI-5 e successivamente trattate con 100 µM di etoposide per 12 h26. Per i successivi saggi di vitalità cellulare, le cellule GC-1 sono state coltivate in mezzo integrato con siero contenente YC al 5%, 10% o 20% e designate rispettivamente come gruppi YC a bassa dose (L-YC), YC a dose media (M-YC) e YC ad alta dose (H-YC). Le concentrazioni di siero contenente YC (5%, 10% e 20% YC) sono state determinate in base ai risultati di esperimenti preliminari a gradiente di concentrazione. Per i gruppi sh-lncRNA + H-YC + OE-NC e sh-lncRNA + H-YC + OE-QKI-5, le cellule GC-1 sono state trasfettate con sh-lncRNA più OE-NC o con sh-lncRNA più OE-QKI-5 per 48 h e successivamente esposte a siero contenente YC al 20% per 24 h.
3. Saggio con Cell Counting Kit-8
Le cellule GC-1 sono state seminate in piastre a 96 pozzetti a una densità di 5 × 10³ cellule/pozzetto e coltivate per 24 h. Dopo l'adesione cellulare, il mezzo originale è stato sostituito con 100 µL di mezzo completo integrato con siero contenente YC, e le cellule sono state incubate per 6, 12 o 24 h. Al termine dell'incubazione, sono stati aggiunti 10 µL di reagente Cell Counting Kit-8 in ogni pozzetto, seguiti da un'ulteriore incubazione a 37 °C al buio per 2 h. L'assorbanza a 450 nm è stata misurata utilizzando un lettore per micropiastre.
4. Saggio della lattato deidrogenasi
Dopo 48 h di trasfezione con sh-NC o sh-lncRNA, il mezzo di coltura cellulare GC-1 è stato raccolto ed è stato ottenuto il sopranatante mediante centrifugazione. Secondo le istruzioni del kit per il saggio della lattato deidrogenasi, il sopranatante è stato delicatamente mescolato con la soluzione di rilevamento working e trasferito in una piastra a 96 pozzetti. La piastra è stata incubata a 25 °C al buio per 30 min. L'assorbanza a 490 nm è stata misurata utilizzando un lettore per micropiastre e il rilascio della lattato deidrogenasi è stato calcolato per valutare il danno cellulare.
5. Colorazione con Calcein AM/ioduro di propidio
Dopo 48 h di trasfezione con sh-NC o sh-lncRNA, la sopravvivenza delle cellule GC-1 è stata valutata mediante colorazione con Calcein AM/ioduro di propidio (PI). Le cellule sono state seminate in piastre da 12 pozzetti a una densità di 5 × 10⁴ cellule/pozzetto e coltivate fino al raggiungimento di una confluenza del 60%–70%. Le cellule sono state delicatamente risciacquate con soluzione salina tamponata al fosfato e in ogni pozzetto sono stati aggiunti 500 µL di soluzione di colorazione con Calcein AM/PI. Le cellule sono state quindi incubate a 37 °C al buio per 30 minuti e osservate al microscopio a fluorescenza. Il numero di cellule vive e morte è stato determinato mediante software di analisi delle immagini e la proporzione di cellule sopravvissute è stata calcolata.
6. Citometria a flusso
Le cellule GC-1 sono state raccolte mediante centrifugazione e delicatamente lavate con soluzione salina tamponata al fosfato. Il pellet cellulare è stato risospeso in 500 µL di buffer di legame a una densità di 5 × 10⁵ cellule/mL. Sono stati quindi aggiunti 5 µL di Annexina V-APC e 5 µL di PI, e la sospensione è stata mescolata accuratamente e incubata a 25 °C al buio per 10 minuti. L'apoptosi è stata analizzata mediante citometria a flusso utilizzando lunghezze d'onda di eccitazione/emissione di 633/660 nm per APC e 488/630 nm per PI. Il tasso di apoptosi è stato valutato mediante software di analisi per citometria a flusso.
7. Saggio di attività della caspasi-3
Dopo i trattamenti indicati, circa 1 × 10⁶ cellule GC-1 sono state raccolte, lavate e risospese in soluzione salina tamponata al fosfato. Le cellule sono state mescolate con 100 µL del reagente II del kit per il saggio di attività della caspasi-3 e lisate sul ghiaccio per 15 minuti. Dopo la centrifugazione, sono stati prelevati 50 µL del sopranatante del lisato e mescolati con 40 µL del reagente I e 10 µL del reagente III. La miscela è stata incubata a 37 °C per 2 ore. L'assorbanza a 405 nm è stata misurata utilizzando un lettore di micropiastre e l'attività della caspasi-3 è stata valutata secondo le istruzioni del kit.
8. Saggio di pull-down dell'RNA
I filamenti senso e antisenso dell'RNA lungo NONMMUT031883.2 sono stati sintetizzati in base alla sequenza corrispondente e marcati con biotina. Le cellule sono state lisate nel buffer di lisi per immunoprecipitazione su ghiaccio per 30 minuti, e il sopranatante contenente le proteine è stato raccolto mediante centrifugazione. Le perle magnetiche di streptavidina sono state lavate tre volte con buffer di legame per l'RNA e incubate nel buffer di legame contenente il 1% di albumina sierica bovina per 30 minuti.
Le perle pretrattate sono state combinate con le sonde marcate con biotina e incubate a 25 °C per 30 min. Le sonde non legate sono state rimosse mediante separazione magnetica. Successivamente è stato aggiunto il surnatante del lisato cellulare, e la miscela è stata incubata a 4 °C per 4 h per formare complessi di perle magnetiche-RNA-proteina. Le perle magnetiche sono state lavate tre volte con tampone di lavaggio per rimuovere le proteine legate in modo non specifico. Il tampone di lavaggio è stato rimosso mediante separazione magnetica, ed è stato aggiunto un buffer di caricamento SDS 2×. I campioni sono stati riscaldati a 95 °C per 10 min, e il surnatante è stato raccolto mediante separazione magnetica per l'analisi successiva mediante Western blot.
9. Costruzione di un modello murino di disfunzione della spermatogenesi
Dopo 5 giorni di ambientamento, topi maschi BALB/c specificati come liberi da agenti patogeni, del peso di 22–25 g e di 8 settimane di età, hanno ricevuto ciclofosfamide (CP) per via intraperitoneale a 50 mg/kg una volta al giorno per 7 giorni al fine di stabilire un modello di disfunzione della spermatogenesi14,27. I topi correttamente modellati sono stati assegnati casualmente, mediante una tabella di numeri casuali, ai gruppi CP, YC 200 mg/kg, YC 400 mg/kg, YC 800 mg/kg, YC 800 mg/kg + sh-NC e YC 800 mg/kg + sh-lncRNA, con sei topi per ciascun gruppo.
I topi nei gruppi trattati con YC hanno ricevuto la dose corrispondente di YC per via orale una volta al giorno per 30 giorni13. Per i gruppi 800 mg/kg YC + sh-NC e 800 mg/kg YC + sh-lncRNA, dopo il corretto completamento del modello, i topi sono stati anestetizzati mediante inalazione di isoflurano al 2%. Dopo aver verificato l'assenza del riflesso di ritrazione plantare e la stabilità della frequenza respiratoria in ciascun topo, l'area chirurgica è stata rasata e disinfettata con iodopovidone. In condizioni asettiche, è stata eseguita un'incisione mediana ventrale attraverso la cute e la parete corporea, in posizione anteriore ai genitali. Il testicolo è stato esposto manipolando con attenzione il cuscinetto adiposo epididimale, avendo cura di evitare danni vascolari. Utilizzando un micromanipolatore, sono stati visualizzati i tubuli seminiferi e 1 µL di sospensione adenovirale (1 × 10¹⁰ TU/mL) sono stati iniettati lentamente mediante un ago per microiniezione28. L'ago è stato mantenuto in sede per 5 minuti dopo l'iniezione, prima di essere estratto lentamente, e l'emostasi è stata ottenuta con un batuffolo di cotone sterile. La stessa procedura è stata successivamente eseguita sul testicolo controlaterale. L'incisione è stata quindi suturata e i topi sono stati lasciati riprendere conoscenza su un tappetino riscaldante nel periodo postoperatorio. I topi del gruppo di controllo hanno ricevuto giornalmente un volume equivalente di soluzione salina sia per via orale che mediante iniezione.
10. Valutazione della fertilità
Al termine della somministrazione del farmaco, i topi maschi di ciascun gruppo sono stati accoppiati liberamente con topi femmine BALB/c in un rapporto di 1:2 per 7 giorni. La formazione del tappo vaginale nelle femmine è stata monitorata e registrata quotidianamente. Dopo aver confermato l'accoppiamento avvenuto, i maschi sono stati rimossi e le femmine sono state alloggiate singolarmente fino al parto naturale. Sono state ottenute e incluse nell'analisi nove femmine gravide per gruppo. La dimensione media della nidiata è stata registrata per valutare la fertilità maschile in ciascun gruppo.
Al termine del periodo sperimentale, i topi sono stati sottoposti a eutanasia mediante somministrazione intraperitoneale di pentobarbital sodico a 100 mg/kg. Questo metodo di eutanasia è stato approvato dal Comitato Etico per gli Animali dell'Università del Sudest (numero di approvazione 20230216022). I testicoli e le epididimi sono stati accuratamente separati, fotografati e pesati. Gli indici di testicolo ed epididimo sono stati calcolati come rapporto tra peso dell'organo e peso corporeo. Da ciascun topo è stato prelevato un epididimo, tagliato in pezzi, posto in 1 mL di soluzione salina tamponata al fosfato preriscaldata (37 °C) ed incubato per 20 minuti per consentire allo sperma di fuoriuscire29. La sospensione spermatica è stata delicatamente mescolata e 10 µL della sospensione sono stati posizionati su una piastra per il conteggio delle cellule del sangue preriscaldata. Lo sperma è stato contato manualmente al microscopio ottico con un ingrandimento di 200× e i risultati sono stati espressi in 106/L. Inoltre, la percentuale di spermatozoi con movimento progressivo rispetto al numero totale di spermatozoi è stata calcolata come motilità spermatica13.
11. Determinazione dei livelli degli ormoni sessuali
Il sangue è stato prelevato dalla vena orbitale dei topi di ciascun gruppo ed è stato lasciato riposare a 25 °C per 30 min. Il siero è stato ottenuto mediante centrifugazione a 3.000 × g per 10 min30. I livelli sierici di testosterone, ormone luteinizzante (LH) e ormone follicolo-stimolante (FSH) sono stati misurati utilizzando i corrispondenti kit per saggio immunoenzimatico (ELISA).
12. Saggio di stabilità dell'RNA
Le cellule GC-1 sono state seminate in piastre da coltura a 96 pozzetti, trasfettate con si-QKI-5 o si-NC e coltivate per 48 h. È stato quindi aggiunto attinomicina D a 5 µg/mL e le cellule sono state raccolte a 0, 3, 6 e 9 h. È stato isolato l'RNA totale e il livello di espressione relativo dell'RNA lungo non codificante NONMMUT031883.2 è stato determinato mediante reazione a catena della polimerasi quantitativa con trascrizione inversa a seguito di trascrizione inversa. Il livello relativo di RNA in ciascun punto temporale è stato calcolato utilizzando il livello di espressione a 0 h come 100%.
13. Reazione a catena della polimerasi con trascrizione inversa quantitativa
Le cellule GC-1 e i tessuti testicolari di topo sono stati lavati con soluzione salina tamponata al fosfato e lisati per l'isolamento dell'RNA totale. Il DNA complementare è stato ottenuto mediante trascrizione inversa utilizzando la trascrittasi inversa AMV. L'amplificazione mediante reazione a catena della polimerasi è stata eseguita utilizzando un sistema di PCR in tempo reale e un kit di PCR quantitativa, impiegando il DNA complementare come stampo per l'amplificazione. U6 è stato utilizzato come riferimento interno per l'RNA lungo non codificante NONMMUT031883.2, e GAPDH è stato utilizzato come riferimento interno per QKI-5. L'espressione relativa del gene bersaglio è stata calcolata utilizzando il 2−ΔΔCt metodo25L'RNA è stato inoltre isolato separatamente dalle frazioni citoplasmatica e nucleare per determinare la localizzazione subcellulare dell'lncRNA NONMMUT031883.2. Le sequenze dei primer sono fornite in Tabella 1.
| Gene | Primer diretto (5' a 3') | Primer inverso (5' a 3') |
| QKI-5 | CTGTCATGCCAAACGGAAC | GATGGACACGCATATCGTG |
| GAPDH | AGGTCGGTGTGAACGGATTTG | TGTAGACCATGTAGTTGAGGTCA |
| lncRNA NONMMUT031883.2 | CCACTGTGGCACATTGAAGTA | TTAAGTTAATGGGTGCTGTGTT |
| U6 RNA | CTCGCTTCGGCAGCACA | AACGCTTCACGAATTTGCGT |
Tabella 1: Sequenze di primer utilizzate per la reazione a catena della polimerasi quantitativa con trascrizione inversa. Le sequenze dei primer diretti e inversi sono elencate nella direzione 5′–3′ per l'RNA lungo non codificante NONMMUT031883.2, QKI-5, U6 e GAPDH.
14. Colorazione con ematossilina ed eosina
I tessuti testicolari ed epididimali di topo sono stati immersi in paraformaldeide al 4% e fissati a 4 °C per 24 h. Dopo il lavaggio con soluzione salina fosfato tampone, i tessuti sono stati disidratati mediante una serie di etanolo a concentrazione crescente, inclusi in paraffina e tagliati in sezioni di 5 µm. Le sezioni sono state riscaldate a 60 °C per 60 min e desparaffinate in xilolo per 30 min.
Dopo l'idratazione mediante una serie di etanolo a concentrazione crescente, i campioni sono stati colorati con ematossilina per 5 min, trattati con soluzione differenziante di acido cloridrico-etanolo per 10 s, lavati con acqua corrente per la rivelazione della tonalità blu, e colorati con eosina al 1% per 2 min. I campioni sono stati quindi disidratati in etanolo al 95% e in etanolo assoluto e chiarificati in xilene per 30 min. Dopo l'essiccazione all'aria, i campioni sono stati montati con gomma neutra. I cambiamenti morfologici nei testicoli e nelle vie spermatiche sono stati osservati al microscopio.
15. Immunofluorescenza
Sezioni paraffiniche di testicolo murino sono state disparaffinate e idratate mediante una serie di etanoli a concentrazione decrescente, seguite da recupero dell'antigene mediato da microonde in tampone citrato a pH 6,0. Dopo raffreddamento spontaneo a temperatura ambiente, le sezioni sono state incubate con Triton X-100 al 0,3% per 10 minuti. Le sezioni sono state bloccate con albumina sierica bovina al 5% a 25 °C per 60 minuti, risciacquate con soluzione salina fosfato tampone e incubate per tutta la notte a 4 °C con un anticorpo primario anti-Ki67. Il giorno successivo, è stato applicato un anticorpo secondario di immunoglobulina G marcato con fluorocromo, e le sezioni sono state incubate a 37 °C al buio per 60 minuti. Dopo il risciacquo con soluzione salina fosfato tampone, le sezioni sono state controcolorate con DAPI per 10 minuti ed esaminate al microscopio a fluorescenza. L'intensità della fluorescenza è stata analizzata mediante software di analisi delle immagini.
Per la colorazione mediante immunofluorescenza delle cellule GC-1, le cellule sono state seminate in piastre da 12 pozzetti a una densità di 1 × 10⁵ cellule/pozzetto e incubate per 24 h. Le cellule sono state fissate con paraformaldeide al 4% per 30 minuti, permeabilizzate con Triton X-100 allo 0,3% per 10 minuti, bloccate con albumina sierica bovina al 5% ed incubate tutta la notte a 4 °C con un anticorpo primario contro QKI-5. La procedura rimanente è stata eseguita come descritto per le sezioni di tessuto testicolare.
16. Colorazione TUNEL
Sezioni paraffiniche di testicolo murino sono state disparaffinate, idratate mediante una serie alcolica graduale e incubate con il 0,1% di Triton X-100 per 5 minuti per aumentare la permeabilità della membrana cellulare. È stata applicata uniformemente una soluzione working di proteinasi K a 20 µg/mL senza DNasi, seguita da incubazione a 37 °C per 15 minuti. È stata aggiunta la soluzione di rilevamento TUNEL e le sezioni sono state incubate a 37 °C al buio per 90 minuti. Dopo l'incubazione con DAPI per 10 minuti, è stato applicato un mezzo di montaggio antifade e il tessuto testicolare è stato osservato al microscopio a fluorescenza.
Le cellule GC-1 sono state seminate in piastre da 12 pozzetti e fissate con paraformaldeide al 4% per 30 minuti. Dopo la permeabilizzazione con Triton X-100 allo 0,1% per 5 minuti, è stata applicata alle cellule la soluzione di rilevamento TUNEL, seguita da incubazione al buio per 60 minuti. Le cellule sono state quindi colorate con DAPI per 10 minuti e osservate al microscopio a fluorescenza.
17. Immunoblotting
I tessuti testicolari di topo e le cellule GC-1 sono stati lisati nel buffer di lisi cellulare per immunoprecipitazione su ghiaccio per 30 minuti e sottoposti a ultrasuoni. Dopo la centrifugazione, è stato raccolto il sopranatante contenente le proteine e la concentrazione proteica è stata determinata utilizzando un kit per saggio con acido bicinconinico. Il sopranatante proteico è stato mescolato con buffer di caricamento SDS e riscaldato in acqua bollente per 10 minuti. Dopo la separazione mediante elettroforesi su gel, le proteine sono state trasferite su membrane di fluoruro di polivinilidene e bloccate con albumina sierica bovina al 5% per 2 h31.
Le membrane sono state incubate durante la notte a 4 °C con anticorpi primari contro caspasi-3 clivata (1:500), Bcl-2 (1:1000), caspasi-3 (1:2000), Bax (1:500), QKI-5 (1:1000), p38 fosforilata (1:1000) o p38 (1:500). Il giorno successivo, le membrane sono state risciacquate con soluzione salina tamponata al Tris contenente Tween 20 e incubate con immunoglobulina G anti-coniglio prodotta in capra in rapporto 1:10000 per 2 h a 25 °C. È stata applicata sulla superficie delle membrane la soluzione di lavoro per chemiluminescenza avanzata e le bande proteiche sono state visualizzate mediante un sistema di imaging per gel. L'intensità delle bande è stata analizzata utilizzando un software di analisi delle immagini e l'espressione proteica relativa è stata normalizzata rispetto a GAPDH (1:3000).
Cicloesimidina a 50 µg/mL è stata utilizzata per inibire la sintesi proteica. Per determinare l'emivita di QKI-5, le cellule sono state raccolte a 0, 3, 6 e 9 h, e i livelli proteici di QKI-5 sono stati successivamente determinati mediante immunoblotting25.
18. Analisi statistica
Tutti i dati sono stati analizzati statisticamente e rappresentati graficamente mediante software statistici, di grafica e di analisi delle immagini. Il test di Shapiro-Wilk è stato utilizzato per valutare la normalità dei dati. I dati sperimentali sono espressi come media ± deviazione standard. Per valutare le differenze tra i gruppi è stata utilizzata l'analisi della varianza ad un fattore. Il test t di LSD è stato impiegato per confronti a coppie post hoc quando le varianze erano omogenee, mentre il test T3 di Dunnett è stato utilizzato quando le varianze erano eterogenee. Un valore di p < 0,05 è stato considerato statisticamente significativo.
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Risultati
L'inibizione dell'RNA lungo non codificante NONMMUT031883.2 induce l'apoptosi negli spermatogoni
Le cellule GC-1 sono state trasfettate con sh-RNA lungo non codificante per ridurre l'espressione dell'RNA lungo non codificante NONMMUT031883.2. Rispetto alle cellule trasfettate con sh-NC, il livello trascrizionale dell'RNA lungo non codificante NONMMUT031883.2 è risultato notevolmente ridotto dopo la trasfezione con sh-RNA lungo non codificante, confermando un efficace abbattimento dell'espressione (...
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Discussione
La disfunzione spermatogenica acquisita indotta dalla chemioterapia è una causa importante di infertilità maschile32,33,34. Tuttavia, i meccanismi molecolari specifici non sono ancora completamente compresi. I risultati di questo studio dimostrano che la Yangjing Capsule (YC) migliora in modo dose-dipendente le alterazioni degli ormoni sessuali, i danni istopatologici testicolari e il deterioramento della fertilità indotti dal c...
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Dichiarazioni
Gli autori dichiarano di non avere conflitti di interessi finanziari o non finanziari.
Ringraziamenti
Questo lavoro è stato sostenuto dal National Natural Science Foundation of China (grant no. 82374257), dal Quarto Batch del Programma di Formazione per il Personale Accademico di Eccellenza dell'Ospedale Provinciale di Medicina Cinese del Jiangsu (grant no. k2026yrc74) e dai Progetti di Ricerca Scientifica sulla Medicina Tradizionale Cinese e sulla Medicina Integrata Cinese e Occidentale della Provincia di Jiangsu (grant no. CYTF2026019).
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| Actinomicina D | MedChemExpress, Monmouth Junction, NJ, USA | HY-17559 | Inibitore della trascrizione utilizzato per saggi di stabilità dell'RNA |
| Trascrittasi inversa AMV | Takara, Tokyo, Giappone | 2621 | Enzima per la sintesi del DNA complementare |
| Kit di rilevamento Annexina V-APC/PI | BioLab Technology, Pechino, Cina | KFS191 | Kit per l'analisi citofluorimetrica dell'apoptosi |
| Mezzo di montaggio antiossidante | MedChemExpress, Monmouth Junction, NJ, USA | HY-K1042 | Mezzo di montaggio per la conservazione della fluorescenza |
| Anticorpo primario Bax | Affinity Biosciences, OH, USA | AF0120 | Anticorpo primario per il rilevamento di Bax |
| Kit BCA | Macklin, Shanghai, Cina | B917925 | Kit per la determinazione della concentrazione proteica |
| Anticorpo primario Bcl-2 | Affinity Biosciences, OH, USA | AF0769 | Anticorpo primario per il rilevamento di Bcl-2 |
| Albumina sierica bovina | BioLab Technology, Pechino, Cina | BTN131070 | Reagente bloccante |
| Kit di rilevamento Calceina/PI | Beyotime, Shanghai, Cina | C2015M | Kit per la colorazione di cellule vive/morte |
| Kit per saggio dell'attività della caspasi-3 | BioLab Technology, Pechino, Cina | QN2866 | Kit per la misurazione dell'attività della caspasi-3 |
| Anticorpo primario caspasi-3 | Abcam, MA, USA | ab184787 | Anticorpo primario per il rilevamento della caspasi-3 |
| Reagente CCK-8 | MedChemExpress, Monmouth Junction, NJ, USA | HY-K0301 | Reagente per la valutazione della vitalità cellulare |
| Anticorpo primario caspasi-3 clivata | Abcam, MA, USA | ab32042 | Anticorpo primario per il rilevamento della caspasi-3 clivata |
| Cicloesimide | Macklin, Shanghai, Cina | H823111 | Inibitore della sintesi proteica utilizzato per saggi di stabilità proteica |
| Ciclofosfamide | MedChemExpress, Monmouth Junction, NJ, USA | HY-17420 | Utilizzato per indurre disfunzione spermatogenetica |
| Reagente DAPI | Beyotime, Shanghai, Cina | C1006 | Controstain nucleare |
| Mezzo DMEM | Wuhan Sunncell Biotechnology, Hubei, Cina | SNLM-302 | Mezzo di coltura cellulare per cellule GC-1 |
| Soluzione lavorativa ECL | Solarbio, Pechino, Cina | SW2030 | Substrato chemiluminescente per il rilevamento di bande proteiche |
| Etoposide | MedChemExpress, Monmouth Junction, NJ, USA | HY-13629 | Agente induttore dell'apoptosi |
| Citometro a flusso | BD Biosciences, CA, USA | BD FACSCalibur | Strumento per l'analisi dell'apoptosi |
| Software FlowJo | BD Biosciences, CA, USA | v10.8 | Software per l'analisi dei dati di citometria a flusso |
| Microscopio a fluorescenza | Leica, Heidelberg, Germania | DM3000 | Strumento per l'imaging a fluorescenza |
| Anticorpo secondario IgG marcato con fluorescenza | Servicebio, Wuhan, Cina | GB22303 | Anticorpo secondario per il rilevamento immunofluorescente |
| Kit ELISA per ormone follicolostimolante | Huamei Biotech, Wuhan, Cina | CSB-E06871m | Kit per la misurazione dell'ormone follicolostimolante sierico |
| Anticorpo primario GAPDH | Affinity Biosciences, OH, USA | T0004 | Anticorpo di controllo di carico per il Western blotting |
| Cellule GC-1 | Wuhan Sunncell Biotechnology, Hubei, Cina | SNL-302 | Linea cellulare di spermatogoni murini |
| Sistema di imaging per gel | Jinpeng Analysis Instrument, Shanghai, Cina | JP-2880 | Sistema di imaging per la visualizzazione di gel e blot |
| Sistema di imaging per gel | Invitrogen, Carlsbad, CA, USA | iBright CL1500 | Sistema di imaging chemiluminescente per Western blot |
| Capra anti-coniglio IgG | Servicebio, Wuhan, Cina | GB23303 | Anticorpo secondario per il Western blotting |
| Soluzione di ematossilina | BioLab Technology, Pechino, Cina | YT165 | Colorante nucleare per l'analisi istologica |
| Soluzione di differenziazione etanolo-acido cloridrico | Beyotime, Shanghai, Cina | C0163S | Reagente di differenziazione per la colorazione con ematossilina |
| Software ImageJ | National Institutes of Health, USA | 1.54h | Software per la quantificazione delle immagini |
| Tampone di lisi cellulare per immunoprecipitazione (IP) | Beyotime, Shanghai, Cina | P0013 | Tampone di lisi per immunoprecipitazione ed estrazione proteica |
| Anticorpo primario Ki67 | Affinity Biosciences, OH, USA | AF0198 | Anticorpo primario per il rilevamento di Ki67 |
| Kit per saggio di citotossicità LDH | Beyotime, Shanghai, Cina | C0016 | Kit per la misurazione del rilascio di lattato deidrogenasi e del danno cellulare |
| Microscopio ottico | Olympus, Tokyo, Giappone | CKX53 | Utilizzato per il conteggio degli spermatozoi e l'osservazione morfologica |
| Lipofectamina 3000 | Invitrogen, Carlsbad, CA, USA | L3000001 | Reagente di trasfezione |
| Lettore di micropiastre | Molecular Devices, CA, USA | SpectraMax Mini | Strumento per misurazioni di assorbanza |
| Kit ELISA per ormone luteinizzante murino | Huamei Biotech, Wuhan, Cina | CSB-E12770m | Kit per la misurazione dell'ormone luteinizzante sierico |
| Kit ELISA per testosterone murino | Huamei Biotech, Wuhan, Cina | CSB-E05101m | Kit per la misurazione del testosterone sierico |
| Gomma neutra | BioLab Technology, Pechino, Cina | QN1253 | Mezzo di montaggio per sezioni istologiche |
| Anticorpo primario p38 | Affinity Biosciences, OH, USA | AF6456 | Anticorpo primario per il rilevamento di p38 totale |
| Paraformaldeide | MedChemExpress, Monmouth Junction, NJ, USA | HY-Y0333 | Fissativo per cellule e tessuti |
| Kit PARIS | Invitrogen, Carlsbad, CA, USA | AM1921 | Kit per la frazionatura dell'RNA nucleare e citoplasmatico |
| Sistema PCR | ABI, CA, USA | ABI PRISM 7300 | Strumento per PCR in tempo reale |
| Anticorpo primario p-p38 | Affinity Biosciences, OH, USA | AF3455 | Anticorpo primario per il rilevamento di p38 fosforilata |
| Soluzione di proteinasi K | Beyotime, Shanghai, Cina | ST532 | Reagente per la permeabilizzazione del tessuto prima della colorazione TUNEL |
| Membrane PVDF | Millipore, MA, USA | ISEQ00010 | Membrane per il trasferimento proteico nel Western blotting |
| Anticorpo primario QKI-5 | Abcam, MA, USA | ab126742 | Anticorpo primario per il rilevamento di QKI-5 |
| Tampone di legame per RNA | Invitrogen, Carlsbad, CA, USA | 65040D | Tampone per reazioni di legame RNA-proteina |
| Tampone di caricamento SDS | Beyotime, Shanghai, Cina | P0286 | Tampone di caricamento del campione per SDS-PAGE |
| Perle magnetiche streptavidina | MedChemExpress, Monmouth Junction, NJ, USA | HY-K0208 | Perle magnetiche per il catturare sonde per RNA marcate con biotina |
| Kit TB Green FAST qPCR | Takara, Tokyo, Giappone | CN830S | Kit di reagenti per PCR quantitativa |
| Triton X-100 | Macklin, Shanghai, Cina | T824275 | Reagente di permeabilizzazione |
| Reagente TRIzol | Invitrogen, Carlsbad, CA, USA | 15596018CN | Reagente per l'estrazione totale di RNA |
| Soluzione di rilevamento TUNEL | Beyotime, Shanghai, Cina | C1086 | Reagente per il rilevamento della frammentazione del DNA |
| Xilene | Macklin, Shanghai, Cina | X821391 | Reagente per la rimozione della paraffina e la chiarificazione del tessuto |
Riferimenti
- Bhattacharya I, Sharma SS, Majumdar SS. Etiology of male infertility: an update. Reprod Sci. 2024;31(4):942-965.
- Dong S, et al. Testicular aging, male fertility and beyond. Front Endocrinol (Lausanne). 2022;13:1012119.
- Wang X, et al. Decoding the pathogenesis of spermatogenic failure in cryptorchidism through single-cell transcriptomic profiling. Cell Rep Med. 2024;5(9):101709.
- Stallmeyer B, et al. Inherited defects of piRNA biogenesis cause transposon de-repression, impaired spermatogenesis, and human male infertility. Nat Commun. 2024;15(1):6637.
- Szlachcikowska D, Koszła O, Sołek P, Tabęcka-Łonczyńska A. Non-canonical apoptosis mediates oxaliplatin-induced disruption of spermatogenic cells: implications for male fertility. Chem Biol Interact. 2026;431:112009.
- Chi YN, et al. Geniposide attenuates spermatogenic dysfunction via .inhibition of endoplasmic reticulum stress in male mice. Chem Biol Interact. 2022;366:110144.
- Guo XB, et al. Protective effect of bone marrow mesenchymal stem cell-derived exosomes against the reproductive toxicity of cyclophosphamide is associated with the p38 MAPK/ERK and AKT signaling pathways. Asian J Androl. 2021;23(4):386-391.
- Lamb DJ. Chromosome defects and male factor infertility. Fertil Steril. 2025;123(6):933-942.
- Kathrins M, Niederberger C. Diagnosis and treatment of infertility-related male hormonal dysfunction. Nat Rev Urol. 2016;13(6):309-323.
- Piechka A, et al. Molecular mechanisms of cellular dysfunction in testes from men with non-obstructive azoospermia. Nat Rev Urol. 2024;21(2):67-90.
- Li Z, et al. The role of Cistanches Herba and its ingredients in improving reproductive outcomes: a comprehensive review. Phytomedicine. 2024;129:155681.
- Jiang X, et al. Shenling Baizhu San improves spermatogenic dysfunction in hyperuricemia mice by regulating Sirt3/Nrf2 to inhibit testicular ferroptosis. J Ethnopharmacol. 2025;340:119310.
- Deng W, Sun D, Cai B, Jin B. Yangjing capsule improves oligoasthenozoospermia by promoting nitric oxide production through the PLCγ1/AKT/eNOS pathway. Front Pharmacol. 2023;14:1056091.
- Zhao H, et al. Yangjing Capsule ameliorates spermatogenesis in male mice exposed to cyclophosphamide. Evid Based Complement Alternat Med. 2015;2015:980583.
- Jin B, et al. Yangjing Capsule improves testicular angiogenesis by activating the VEGFA/eNOS signaling pathway. Evid Based Complement Alternat Med. 2020;2020:1957267.
- Guo W, et al. Chlorocholine chloride exposure induced spermatogenic dysfunction via .iron overload caused by AhR/PERK axis-dependent ferritinophagy activation. Ecotoxicol Environ Saf. 2024;274:116193.
- Wang Z, et al. Yangjing Capsule extract promotes proliferation of GC-1 Spg cells. Evid Based Complement Alternat Med. 2014;2014:640857.
- Zhang P, et al. LncRNA-mediated adipogenesis in different adipocytes. Int J Mol Sci. 2022;23(13).
- Núñez-Martínez HN, Recillas-Targa F. Emerging functions of lncRNA loci beyond the transcript itself. Int J Mol Sci. 2022;23(11).
- Herman AB, Tsitsipatis D, Gorospe M. Integrated lncRNA function upon genomic and epigenomic regulation. Mol Cell. 2022;82(12):2252-2266.
- Wang JZ, et al. QKI-5 regulates the alternative splicing of the cytoskeletal gene ADD3 in lung cancer. J Mol Cell Biol. 2021;13(5):347-360.
- Zeng Y, et al. Nickel induces blood-testis barrier damage through ROS-mediated p38 MAPK pathways in mice. Redox Biol. 2023;67:102886.
- Luo D, He Z, Yu C, Guan Q. Role of p38 MAPK signaling in testis development and male fertility. Oxid Med Cell Longev. 2022;2022:6891897.
- Xia C, et al. LncRNA CCAT1 enhances chemoresistance in hepatocellular carcinoma by targeting QKI-5. Sci Rep. 2022;12(1):7826.
- Li K, et al. A long noncoding RNA binding to QKI-5 regulates germ cell apoptosis via .the p38 MAPK signaling pathway. Cell Death Dis. 2019;10(10):699.
- Zhou X, et al. ANKRD49 inhibits etoposide-induced intrinsic apoptosis of GC-1 cells by modulating NF-κB signaling. Mol Cell Biochem. 2019;457(1-2):21-29.
- Fang C, et al. Integrative proteomics and metabolomics approach to identify the key roles of icariin-mediated protective effects against cyclophosphamide-induced spermatogenesis dysfunction in mice. Front Pharmacol. 2022;13:1040544.
- Li K, et al. Adeno-associated-virus-mediated delivery of CRISPR-CasRx induces efficient RNA knockdown in the mouse testis. Theranostics. 2024;14(10):3827-3842.
- Yi H, et al. Retinoic acid mitigates NSC319726-induced spermatogenesis dysfunction through cuproptosis-independent mechanisms. Cell Biol Toxicol. 2024;40(1):26.
- Guo Y, Wang A, Liu X, Li E. Effects of resveratrol on reducing spermatogenic dysfunction caused by high-intensity exercise. Reprod Biol Endocrinol. 2019;17(1):42.
- Beeraka NM, et al. Ginsenoside Rh4 suppresses Notch3 and PI3K/Akt signaling to inhibit the growth and metastasis of gastric cancer cells. J Cancer Biomol Ther. 2025;2(1):145-156.
- Li P, et al. Proteomic analysis of cisplatin-induced spermatogenesis defects in mice. Ann Med. 2026;58(1):2612816.
- Wang Z, et al. Melatonin ameliorates paclitaxel-induced spermatogenesis and fertility defects in mice. J Cell Mol Med. 2022;26(4):1219-1228.
- Abdi M, et al. Cyclophosphamide-induced infertility and the impact of antioxidants. Am J Reprod Immunol. 2024;92(6):e70014.
- Özbilgin MK, Demirören S, Üçöz M, Oztatlici M. Cyclophosphamide suppresses spermatogenesis in the testes of mice through downregulation of miR-34b and miR-34c. Andrologia. 2021;53(7):e14071.
- Poojary KK, et al. Curcumin nanocrystals attenuate cyclophosphamide-induced testicular toxicity in mice. Toxicol Appl Pharmacol. 2021;433:115772.
- Cao J, et al. Single-cell map of human azoospermic testes caused by cyclophosphamide chemotherapy. Sci Data. 2024;11(1):163.
- Dong Y, et al. New insights into polycyclic aromatic hydrocarbons: Phenanthrene targets ribosomes to induce neuronal apoptosis. Aquat. Toxicol. 2026;298:107884.
- Wang Y, et al. Interplay between elemental imbalance-related PI3K/Akt/mTOR-regulated apoptosis and autophagy in arsenic (III)-induced jejunum toxicity of chicken. Environ. Sci. Pollut. Res. Int. 2018;25(19):18662-18672.
- Liu H, et al. Integrating network toxicology, transcriptomics and experimental validation to elucidate the potential mechanisms of fluoride-induced neurotoxicity in zebrafish. Comp. Biochem. Physiol. C Toxicol. Pharmacol. 2026;306:110549.
- Saleh DO, et al. Cyclophosphamide-induced testicular injury: the role of chrysin in mitigating iron overload and ferroptosis. Naunyn Schmiedebergs Arch Pharmacol. 2025;398(5):5475-5489.
- Dong S, et al. Loss of lncRNAs 1700101O22Rik and 1700027A15Rik causes sperm malformation and subfertility. Andrology. 2025;13(5):1223-1235.
- Liu W, et al. A novel meiosis-related lncRNA, Rbakdn, contributes to spermatogenesis by stabilizing Ptbp2. Front Genet. 2021;12:752495.
- Sun TC, et al. LncRNAs induce oxidative stress and spermatogenesis by regulating endoplasmic reticulum genes and pathways. Aging (Albany NY). 2021;13(10):13764-13787.
- Hua R, et al. DNM3OS enhances the apoptosis and senescence of spermatogonia associated with nonobstructive azoospermia by providing miR-214-5p and decreasing E2F2 expression. Anal Cell Pathol (Amst). 2023;2023:1477658.
- Wang S, et al. Quaking 5 suppresses TGF-β-induced epithelial-mesenchymal transition and cell invasion in lung adenocarcinoma. EMBO Rep. 2021;22(6):e52079.
- Chen X, et al. The emerging roles of the RNA-binding protein QKI in cardiovascular development and function. Front Cell Dev Biol. 2021;9:668659.
- Li J, et al. Qiangjing tablets repair blood-testis barrier dysfunction in rats by regulating oxidative stress and the p38 MAPK pathway. BMC Complement Med Ther. 2022;22(1):133.
- Tang Z, et al. MRE11 is essential for the long-term viability of undifferentiated spermatogonia. Cell Prolif. 2024;57(9):e13685.
- Jiao Y, Feng Z, Zhang T, Chen X. Impact of Vitamin D(3) Supplementation on Androgens and Semen Parameters in Infertile Men: A Systematic Review and Meta-Analysis Based on Prospective Randomised Controlled Trials. Arch. Esp. 2025;78(6):772-781.
Accesso limitato. Accedi o avvia una prova gratuita per visualizzare questo contenuto.