Questo protocollo descrive un modello murino di miopia indotta da iniezioni subcongiuntivali di TGF-β2, privo di occhiali o sutura delle palpebre, che attiva l'asse NLRP3/IL-1β-MMP2 causando un allungamento assiale, mentre un regime di registrazione biometrica suddiviso minimizza gli artefatti dovuti all'anestesia per dati ad alta fedeltà.
Articolo metodologico
Istituzione di un modello di miopia nel roditore indotta da TGF-β mediante iniezioni sottocongiuntivali
In questo articolo
Sommario
Abstract
La miopia è un problema significativo di salute pubblica a livello globale, caratterizzato da un'eccessiva allungamento assiale e da un rimodellamento della matrice extracellulare (ECM) della sclera. Sebbene i modelli sperimentali siano essenziali per lo studio di questi meccanismi, i tradizionali metodi basati sul defocus ottico in piccoli roditori presentano limitazioni tecniche. In questo studio, è stato sviluppato e valutato un modello farmacologico standardizzabile di miopia mediante iniezioni sottocute ripetute di fattore di crescita trasformante-beta (TGF-β). Per ottenere un rilascio mirato, è stata ideata una tecnica chirurgica di stabilizzazione bimanuale per evertere la palpebra superiore, consentendo a un ago da 33 gauge di raggiungere la congiuntiva palpebrale con un angolo ridotto compreso tra 20° e 30°. Mediante screening in vivo su ratti, è stato identificato TGF-β2 (500 pg/occhio) come potente induttore della crescita posteriore dell'occhio. Successive titolazioni di dose-risposta nei topi hanno rivelato un andamento a forma di U rovesciata. Nel gruppo principale di validazione, la dose più bassa (250 pg/occhio) ha indotto un marcato allungamento assiale (0,197 ± 0,012 mm) e spostamenti refrattivi miopici (−1,58 ± 0,63 D). A livello molecolare, la somministrazione ripetuta di TGF-β2 ha attivato nella retina la cascata dell'inflammasoma della famiglia di recettori simili a NOD con dominio pirina 3 (NLRP3) / interleuchina-1β (IL-1β) e ha aumentato l'espressione della metalloproteasi matriciale 2 (MMP2) in entrambe le specie. Abbinato a un regime di rilevamento biometrico suddiviso in due giorni, che minimizza gli artefatti associati all'anestesia, questo protocollo fornisce una piattaforma affidabile e scalabile per valutare interventi anti-miopia.
Introduzione
La miopia è diventata una preoccupazione sanitaria pubblica globale di grande rilevanza, con una prevalenza prevista che interesserà quasi il 50% della popolazione mondiale entro il 20501,2. Il principale fattore patologico alla base della miopia progressiva è l'eccessiva elongazione assiale dell'occhio, che provoca un rimodellamento attivo della matrice extracellulare e una degenerazione tissutale, portando ad un assottigliamento strutturale dei rivestimenti oculari posteriori3. Queste alterazioni dinamiche comprendono sia un rimodellamento strutturale (caratterizzato dalla degradazione della matrice extracellulare sclerale, dalla perdita di collagene e dall'assottigliamento degli strati posteriori) sia un rimodellamento funzionale (contraddistinto da una ridotta rigidità biomeccanica, da una perfusione coroideale alterata e da un segnale infiammatorio retino-RPE anomalo), che insieme aumentano il rischio, per tutta la vita, di complicanze minacciose per la vista e di deficit visivo irreversibile, inclusi la maculopatia miopica, il distacco di retina, il glaucoma e le cataratte premature4,5,6,7. Nonostante il notevole impatto clinico e socioeconomico di questa condizione, i precisi meccanismi molecolari iniziali che regolano la crescita oculare anomala non sono ancora completamente compresi. Pertanto, chiarire le vie di segnalazione responsabili dell'elongazione assiale e sviluppare modelli animali riproducibili e standardizzati rappresentano passaggi fondamentali per identificare nuovi bersagli terapeutici e gestire l'epidemia globale di miopia.
Sebbene la miopia indotta da privazione visiva (FDM) e la miopia indotta da lente (LIM) rappresentino standard di riferimento per lo studio del difetto di messa a fuoco ottica e dell'emmetropizzazione8,9,10,11, l'applicazione di questi modelli di difetto ottico in piccoli roditori—in particolare nei topi—presenta notevoli difficoltà tecniche. Il comportamento attivo di pulizia del topo provoca frequentemente il distacco degli occhialini, rendendo necessarie misure correttive stressanti come collari protettivi12. Inoltre, l'attrito meccanico, la sutura delle palpebre e l'alterazione del microambiente sotto l'occludente causano regolarmente complicazioni corneali secondarie, come opacità o ulcere corneali13,14,15. Sebbene FDM e LIM rimangano paradigmi fondamentali per lo studio del difetto visivo, complicazioni secondarie a carico della superficie oculare—come opacità corneale, attrito meccanico o irritazione da sutura palpebrale—possono interferire con le misurazioni biométriche ottiche15. Questi artefatti procedurali compromettono la stabilità del film lacrimale e la trasparenza corneale, portando a tassi più elevati di esclusione sperimentale e a un aumento del rumore di misurazione13,16. Al contrario, l'induzione farmacologica evita l'uso di occludenti fisici, preservando la chiarezza corneale e facilitando biomisurazioni ottiche e ultrasoniche affidabili e riproducibili. Nella miopia, un'eccessiva allungamento oculare è determinato da un rimodellamento alterato della matrice extracellulare (ECM) nella sclera posteriore17, dove gli isoformi del fattore di crescita trasformante-beta (TGF-β) agiscono come regolatori chiave della sintesi di collagene e proteoglicani18,19. Evidenze recenti suggeriscono che la via di segnalazione del TGF-β potrebbe interagire con un'infiammazione oculare di basso grado e con la degradazione della matrice mediata dalla metalloproteasi 2 (MMP2)20, contribuendo potenzialmente al rimodellamento sclerale e all'allungamento assiale21,22,23,24. Questo è supportato da livelli elevati di fattore di crescita trasformante-beta 2 (TGF-β2), interleuchina-6 (IL-6) e MMP2 riscontrati nell'umore acqueo degli occhi miopi25,26,27, nonché dall'attivazione dell'asse TGF-β / fattore nucleare kappa B (NF-κB) / MMP2 in modelli sperimentali20,21. Sebbene questi risultati riflettano una dinamica di segnalazione molecolare intraoculare durante la progressione miopica, i relativi contributi anatomici ai marcatori nell'umore acqueo—sia per secrezione anteriore locale, flusso da deposito sottocute, o diffusione posteriore dal vitreo—devono ancora essere completamente chiariti. Tuttavia, è necessario riconoscere l'ambito e le limitazioni intrinseche di questo modello farmacologico. Poiché la somministrazione sottocute di TGF-β bypassa il difetto ottico e le vie di elaborazione visiva, questo modello è particolarmente adatto per analizzare le cascate biochimiche a valle—specificamente il rimodellamento della matrice extracellulare sclerale mediato da TGF-β2 / recettore della famiglia NOD con dominio pirina 3 (NLRP3) / interleuchina-1β (IL-1β) / MMP2—e per lo screening di agenti terapeutici candidati che agiscono su vie infiammatorie o di degradazione della matrice. Al contrario, non è adatto per studiare la trasduzione del segnale visivo a monte, la segnalazione ottica dalla retina alla sclera o i meccanismi di emmetropizzazione guidati dalla luce ambientale, ambiti in cui i modelli tradizionali FDM o LIM rimangono indispensabili.
Per affrontare queste lacune metodologiche, è stato sviluppato e convalidato un modello di miopia mediante iniezioni subcongiuntivali ripetute di TGF-β in ratti e topi, offrendo un approccio perfezionato che minimizza il trauma meccanico e l'irritazione della superficie oculare. Evitando l'uso di occludenti fisici, questo protocollo consente un controllo preciso della somministrazione farmacologica e dei tempi sperimentali, riducendo al contempo in modo significativo i possibili fattori di confondimento comportamentali associati all'uso di dispositivi montati sulla testa. In questo studio, è stata valutata l'efficacia di tre isoforme ricombinanti umane di TGF-β (che presentano una cross-reattività funzionale convalidata nei tessuti di roditore, supportata dalla conservazione della sequenza28) nei ratti ed è stata mappata la cinetica non lineare della risposta dose-effetto del TGF-β2 nei topi. In particolare, questo regime standardizzato ha indotto in modo efficiente una miopia fenotipica—caratterizzata da allungamento assiale e spostamenti refrattivi miopici concorrenti—attivando l'inflammasoma della famiglia di recettori simili ai NOD contenente il dominio pirina 3 (NLRP3) / interleuchina-1β (IL-1β) e l'asse MMP2. In definitiva, questo protocollo fornisce un quadro fattibile e definito a livello molecolare per mirare al rimodellamento sclerale a valle, descrivendone nel dettaglio i limiti operativi specifici.
Protocollo
All animal experiments were conducted in accordance with the guidelines and regulations of the Institutional Animal Care and Use Committee (IACUC) of China Medical University (CMU). All procedures complied with the Association for Research in Vision and Ophthalmology (ARVO) Statement for the Use of Animals in Ophthalmic and Vision Research. Full approval from the CMU-IACUC was obtained prior to the initiation of all experiments. Animals were euthanized at the experimental endpoint in strict accordance with the guidelines of the Institutional Animal Care and Use Committee (IACUC) of China Medical University (CMU) and local animal welfare regulations.
1. Animals and ethical approval
- Obtain male Brown Norway (BN) rats (3–4 weeks of age, 60–80 g) and male C57BL/6 (B6) mice (3–4 weeks of age, 15–20 g) from an appropriate laboratory animal supplier.
- House all animals in a controlled environment (12 h light/dark cycle, 22 °C ± 2 °C, 50% ± 10% relative humidity) with ad libitum access to standard chow and water.
- Allow a minimum of 3 days of acclimatization prior to initiating any experimental procedure.
- Assign rats or mice randomly to treatment groups: vehicle control group and TGF-β2 injection group. Use a minimum of N = 5 animals per cohort to ensure adequate statistical power.
NOTE: A between-subjects design was used. Both eyes of an individual animal received identical treatments (either bilateral vehicle control [1–2 µL BSS] or bilateral active rhTGF-β2).- Measure bilateral ocular parameters (axial length and refractive error) for each animal.
NOTE: Ensure written CMU-IACUC approval is secured and that all personnel performing procedures are appropriately trained and certified.
- Measure bilateral ocular parameters (axial length and refractive error) for each animal.
2. Preparation of TGF-β2 solution
NOTE: Perform all reconstitution and dilution steps inside a certified biosafety cabinet using strict aseptic techniques.
- Reconstitute lyophilized recombinant human TGF-β2 in sterile 50% glycerol containing 0.1% bovine serum albumin (BSA) to prepare a 100 µg/mL stock solution.
- Prepare working solutions by performing serial dilutions of the stock solution in sterile Balanced Salt Solution (BSS).
- For rat cohorts (500 pg dose), dilute the stock solution to a final concentration of 250 ng/mL (250 pg/µL) for a 2 µL injection volume per eye.
- For mouse dose-response cohorts, prepare three independent working solutions at concentrations of 250 ng/mL, 375 ng/mL, and 500 ng/mL (250, 375, and 500 pg/µL) for a 1 µL injection volume per eye.
- Prepare single-use 15–20 µL aliquots in sterile microcentrifuge tubes, snap-freeze in liquid nitrogen, and store at -20 °C. Thaw aliquots on ice immediately prior to use.
CAUTION: Liquid nitrogen can cause severe cold burns and presents an asphyxiation hazard. Wear appropriate cryogenic PPE and handle it in a well-ventilated area in accordance with institutional safety procedures. - Prepare the vehicle control solution in parallel using sterile BSS supplemented with an equivalent matrix of 50% glycerol and 0.1% BSA.
3. Subconjunctival injection procedure
- Place animals in an induction chamber with 3–4% isoflurane for anesthetic induction. Subsequently, transfer the animal to a nose cone delivering 1.5–2% isoflurane for anesthetic maintenance.
CAUTION: Isoflurane is a volatile anesthetic. Use an appropriate scavenging system and handle it in accordance with institutional occupational health and safety procedures. - Verify an adequate depth of anesthesia by confirming the absence of a toe-pinch withdrawal reflex.
- Position the animal prone under a fiber-optic spotlight. Gently grasp, elevate, and slightly evert the superior eyelid using fine-tipped microforceps to fully expose the palpebral conjunctiva and conjunctival fornix (Figure 1B).
- Pre-wet a 10 µL glass micro-syringe and 33-gauge needle 2–3 times with the working solution to eliminate dead space. Load the target volume (2 µL for rats or 1 µL for mice) and purge all microbubbles.
CAUTION: Handle needles and other sharps carefully and dispose of them in an approved sharps container in accordance with institutional regulations. - Orient the 33-G needle with the bevel facing upward (bevel-up) and target the designated insertion site on the exposed palpebral conjunctival surface (Figure 1B,C).
- Insert the needle tip through the conjunctival epithelium at a shallow 20°–30° angle (Figure 1C).
- Gently advance the needle through the narrow submucosal space past the conjunctival fornix into the palpebral subconjunctival domain (Figure 1C).
CRITICAL STEP (structures to avoid): Strictly avoid penetrating the underlying meibomian glands or accidentally perforating deeper ocular structures. Visually confirm proper superficial placement under the spotlight by ensuring the needle bevel remains visible beneath the translucent conjunctival surface throughout advancement. - Slowly inject the solution over 5–10 s. Hold the needle in place for an additional 5 s before slowly withdrawing to prevent fluid backflow.
NOTE: Proper subconjunctival delivery is confirmed by immediate localized conjunctival elevation and blanching (bleb formation).- If a bleb fails to form or significant leakage occurs, perform a single re-injection at the inferior palpebral conjunctival space and record the deviation in the experimental log.
NOTE: Limit re-injections strictly to one attempt per eye per session; exclude animals with persistent delivery failure from longitudinal analysis.
- If a bleb fails to form or significant leakage occurs, perform a single re-injection at the inferior palpebral conjunctival space and record the deviation in the experimental log.
- Sanitize the micro-syringe cavity between individual animal injections within the same group by flushing 3 times with sterile 70% ethanol, followed by 5 times with sterile saline.
- Inspect the 33-G needle tip under magnification every 3–5 injections, and replace the needle immediately if tip dulling or bending occurs.
- Inject all vehicle-control animals first, before handling or injecting treatment cohorts, to eliminate the risk of pharmacological cross-contamination. Repeat the syringe sanitization cycle prior to transitioning to treatment groups.
- Rinse the syringe barrel and plunger with a dedicated micro-syringe cleaning solution, then with ultrapure water and absolute ethanol after each experimental session, and store dry.
- Repeat subconjunctival injections once weekly for 3 consecutive weeks (Days 0, 7, and 14). Perform longitudinal biometric assessments at baseline (Days −1 and 0) and endpoint (Days 20 and 21) as detailed in Section 4.
- Place the animal in a warm recovery cage lined with paper towels following the injection. Monitor the animal continuously until full sternal recumbency and normal ambulatory activity are regained.
- Inspect eyes under a stereomicroscope post-recovery to exclude intraocular hemorrhage, corneal opacity, or acute mechanical trauma. Monitor animals daily for signs of distress or localized infection.
4. Model validation methods
- Ocular refractive error assessment
- Place rodents on a thermostatically controlled heating pad to maintain physiological body temperature and prevent anesthetic cataracts. Maintain animals under light isoflurane anesthesia (1–1.5%) via a nose cone to ensure consistent anesthetic depth.
- Instill 1 drop of Mydrin-P (0.5% tropicamide and 0.5% phenylephrine hydrochloride) into each eye 10–15 min prior to measurement to induce complete cycloplegia and pupillary dilation.
- Position the animal in sternal recumbency under dim, indirect ambient lighting. Apply sterile BSS continuously right up to the moment of optical acquisition to preserve corneal transparency.
- Measure ocular refraction using an automated infrared photorefractometer within a strict 5–10 min window post-anesthetic induction. For BN rats, gently retract the eyelids manually to fully expose the dilated pupil during acquisition.
- Acquire three independent optical readings per eye and average the values to determine the baseline or endpoint refractive error.
CRITICAL STEP (Timing & Sequence): Conduct photorefraction on Day 1 of the evaluation sequence (Day –1 for baseline; Day 20 for endpoint) under dim lighting prior to any contact procedures. Performing photorefraction after contact ultrasonography or acoustic gel application severely disrupts corneal optics, scatters infrared light, and invalidates automated refractive readings.
- Axial length measurement via high-frequency B-scan ultrasonography
- On the following day (Day 0 for baseline or Day 21 for endpoint), evaluate ocular axial length under light isoflurane anesthesia (1–1.5%) using a handheld 16 MHz linear ultrasound probe calibrated to rodent tissue acoustic velocity (1532–1550 m/s).
- For B6 mice (direct corneal interface): Apply a baseline protective layer of Ginpol carbomer gel (0.2%) directly onto the cornea, followed by a layer of standard acoustic gel.
NOTE: Ensure the gel layer completely covers the corneal surface without introducing trapped air bubbles, which cause acoustic attenuation. - For BN Rats (transpalpebral interface): Position the animal with closed eyelids, apply ultrasound gel onto the outer eyelid surface, and acquire measurements transpalpebrally.
NOTE: Transpalpebral measurement eliminates direct corneal contact, significantly reducing the risk of corneal abrasion in larger rodent eyes.
- For B6 mice (direct corneal interface): Apply a baseline protective layer of Ginpol carbomer gel (0.2%) directly onto the cornea, followed by a layer of standard acoustic gel.
- Align the ultrasound probe and measure axial length along the central optical axis from the anterior ocular interface to the posterior scleral echo wall.
- Acquire ten independent replicate B-scan traces per eye and calculate the mean axial length.
- Gently flush residual acoustic gel from the eye using sterile BSS immediately following acquisition to prevent post-procedural corneal irritation.
CRITICAL STEP (zero-pressure touch): Place the ultrasound probe onto the gel interface with an extremely light, zero-pressure touch. Any downward physical pressure on the corneal apex artificially compresses the anterior chamber depth and introduces false axial length shortening. - Record the averaged axial length and refractive error measurements for subsequent analysis.
- On the following day (Day 0 for baseline or Day 21 for endpoint), evaluate ocular axial length under light isoflurane anesthesia (1–1.5%) using a handheld 16 MHz linear ultrasound probe calibrated to rodent tissue acoustic velocity (1532–1550 m/s).
Risultati
Stabilimento e validazione anatomica del modello di iniezione sottocute
Per affrontare la variabilità tecnica associata all'uso di occhiali ottici o alla sutura delle palpebre, lo spazio sottocute è stato convalidato tra la congiuntiva palpebrale e quella bulbare come serbatoio localizzato mirato per farmaci (Figura 1A). L'accesso anatomico attraverso il fornice superiore ha garantito un'esposizione costante del sito bersaglio mantenendo l'integrità della superficie oculare (Figura 1B). Lo stabilimento riuscito del modello è stato confermato da criteri operativi e biometrici specifici, inclusa la verifica immediata mediante transilluminazione di una bleb sottomucosa localizzata, piena di liquido (chemosi), sopra lo spazio sottocute palpebrale bersaglio, senza perforazione sclerale, emorragia tissutale o lesione delle ghiandole di Meibomio (Figura 1C), nonché la verifica biometrica longitudinale di un contemporaneo allungamento assiale (Δ AL > 0,15 mm nei topi; >0,40 mm nei ratti) accompagnato da uno spostamento refrattivo miopico (Δ Refrazione < −1,0 D) al Giorno 21 rispetto ai controlli trattati con veicolo. Al contrario, esiti non riusciti o subottimali sono stati identificati da specifiche modalità di fallimento tecnico e fisiologico. Il fallimento tecnico—come il reflusso prematuro del liquido al ritiro dell'ago o una penetrazione involontaria nei tessuti profondi della palpebra o orbitali—ha determinato una formazione minima o assente della bleb, portando a un'insufficiente ritenzione farmacologica e all'incapacità di indurre spostamenti miopici; gli animali che mostravano perdite persistenti sono stati documentati ed esclusi secondo il Passaggio 3.8.1 del Protocollo. Inoltre, complicazioni della superficie oculare dovute a un errato posizionamento profondo dell'ago o a trazione meccanica eccessiva hanno causato emorragia sottocute localizzata o trauma corneale, introducendo risposte infiammatorie confondenti. Esiti fenotipici subottimali sono stati osservati anche durante le valutazioni dose-risposta, in cui l'amministrazione di concentrazioni sopra la soglia (ad esempio, 500 pg/occhio nei topi) ha prodotto una risposta a forma di U attenuata con riduzione dell'allungamento assiale, sottolineando la necessità fisiologica di un rigoroso ottimizzazione della dose. La confermata ritenzione localizzata del farmaco secondo questi criteri standardizzati ha assicurato un targeting tissutale ad alta fedeltà per analisi biometriche e molecolari successive.
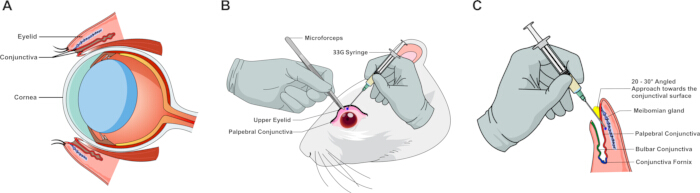
Figura 1: Punti di repère anatomici e illustrazione schematica della procedura di iniezione sottocute in roditori. (A) Sezione sagittale dell'occhio del roditore che mostra i principali punti di repère anatomici, inclusi palpebra, cornea, sacco congiuntivale e spazio sottocute bersaglio. (B) Dimostrazione chirurgica della stabilizzazione del tessuto e dell'esposizione della congiuntiva palpebrale mediante microforceps; il punto blu indica il sito di inserimento dell'ago per la microiniezione, eseguita con una siringa da 33 gauge. (C) Illustrazione schematica ad alta magnificazione che mostra l'orientamento dell'ago e la traiettoria di inserimento rispetto alla superficie della congiuntiva palpebrale, al fornice congiuntivale e alle strutture oculari sottostanti. Cliccare qui per visualizzare una versione ingrandita di questa figura.
Selezione degli isoformi di TGF-β in ratti e titolazione della risposta alla dose di TGF-β2 in topi per l'allungamento assiale
Gli esperimenti sono stati condotti in coorti sperimentali sequenziali e indipendenti, costituite dalle coorti di selezione della dose (Figura 2) e dalle coorti principali di convalida (Figura 3). I parametri bilaterali sono stati misurati attraverso le coorti, con singoli animali (N) indicati come replica biologica primaria. Le dipendenze tra occhi (OD rispetto a OS nello stesso animale) sono state tenute in considerazione mediante ANOVA a due fattori con misure ripetute o modelli a effetti misti, ove appropriato. I dati continui sono riportati come media ± DS. Le differenze tra i gruppi di controllo e i gruppi trattati sono state valutate utilizzando test t di Student a due code, ANOVA ad una via o ANOVA a due fattori con misure ripetute, ove appropriato. Un valore di p < 0,05 è stato considerato statisticamente significativo.
Per determinare l'isoforma del fattore di crescita trasformante-β (TGF-β) più potente e stabilire un regime posologico ottimale per indurre l'allungamento assiale, sono stati valutati gli effetti di iniezioni sottoconjuntivali ripetute in gruppi di ratti e topi dal basale (Giorno 0) al Giorno 21 (Figura 2). Le registrazioni biometriche sono state effettuate utilizzando un regime suddiviso in due giorni per prevenire artefatti indotti dall'anestesia.
I tre isoformi ricombinanti umani di TGF-β (TGF-β1, TGF-β2 e TGF-β3) sono stati inizialmente testati nel gruppo di ratti a una concentrazione standardizzata di 500 pg/occhio (Figura 2A). L'analisi della varianza unidirezionale (ANOVA), seguita da confronti multipli post hoc, ha rivelato che tutti e tre gli isoformi hanno stimolato in modo significativo la crescita oculare posteriore rispetto al gruppo controllo trattato con il veicolo durante il periodo di 21 giorni. Mentre sia il TGF-β1 (0,444 ± 0,042 mm) che il TGF-β3 (0,454 ± 0,049 mm) hanno indotto un allungamento assiale significativo (p < 0,05 e p < 0,01 rispetto al controllo di 0,328 ± 0,071 mm, rispettivamente), il TGF-β2 ha provocato l'aumento maggiore della lunghezza assiale (0,486 ± 0,074 mm) e ha mostrato la significatività statistica più elevata (p < 0,001), risultando così l'induttore più efficace del fenotipo miopico.
Sulla base dei risultati dello screening nel ratto, è stata eseguita una titolazione dose-risposta di TGF-β2 nel gruppo di topi, testando tre concentrazioni: 250, 375 e 500 pg/occhio (Figura 2B). La somministrazione subcongiuntivale di TGF-β2 ha prodotto un profilo dose-risposta a forma di U capovolta. La dose più bassa (250 pg/occhio) ha determinato l'accelerazione più significativa dell'allungamento assiale rispetto ai controlli con veicolo (0,177 ± 0,038 mm contro 0,044 ± 0,011 mm; p < 0,0001). A dosi più elevate (375 e 500 pg/occhio), l'entità del cambiamento della lunghezza assiale è progressivamente diminuita, sebbene sia rimasta significativamente superiore rispetto ai controlli (0,123 ± 0,029 mm; p < 0,001 e 0,095 ± 0,024 mm; p < 0,01, rispettivamente).
Nel complesso, questi dati stabiliscono un regime settimanale di somministrazione sottocute di 500 pg/occhio per i ratti e di 250 pg/occhio per i topi come parametri ottimali per successive indagini strutturali e molecolari.
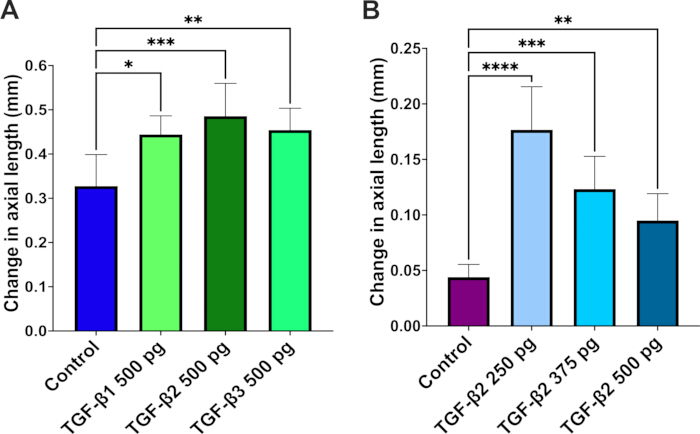
Figura 2: Selezione del dosaggio degli isoformi del fattore di crescita trasformante-β (TGF-β) e delle loro concentrazioni sulla lunghezza assiale negli occhi di ratto e di topo. (A) Variazione della lunghezza assiale nei ratti (gruppo di screening iniziale), calcolata come differenza tra il valore basale (Giorno 0, prima della prima iniezione) e il punto finale (Giorno 21), dopo tre iniezioni sottocute consecutive di TGF-β1, TGF-β2 o TGF-β3 (500 pg/occhio somministrati ai Giorni 0, 7 e 14), rispetto ai controlli trattati con veicolo. (B) Variazione della lunghezza assiale nei topi (gruppo di screening del dosaggio), calcolata come differenza tra il valore basale (Giorno 0) e il Giorno 21, dopo tre iniezioni sottocute consecutive di TGF-β2 a tre concentrazioni distinte (250, 375 o 500 pg/occhio somministrati ai Giorni 0, 7 e 14), rispetto ai controlli trattati con veicolo. I dati sono espressi come media ± DS (N = 5 animali/gruppo, corrispondenti a 10 occhi per gruppo). La significatività statistica è stata valutata mediante ANOVA a un fattore seguita da confronti multipli post hoc; *p < 0,05, **p < 0,01, ***p < 0,001, ****p < 0,0001 rispetto al gruppo controllo con veicolo. Cliccare qui per visualizzare una versione ingrandita di questa figura.
Iniezioni subcongiuntivali ripetute di TGF-β2 inducono un allungamento assiale oculare e spostamenti miopici in ratti e topi
Per valutare l'impatto biometrico della somministrazione ripetuta di TGF-β2 per via subcongiuntivale (3 iniezioni settimanali), sono stati monitorati i cambiamenti longitudinali della lunghezza assiale oculare e del difetto refrattivo dal basale alla Settimana 3 sia nei modelli di ratto che di topo (Figura 3). Il protocollo suddiviso in due giorni (valutazione dello stato refrattivo al Giorno 20, seguita da ecografia in modo B al Giorno 21) ha minimizzato gli artefatti potenziali dovuti all'anestesia e lo stress oculare. Entrambe le specie hanno mostrato modifiche fenotipiche compatibili con lo sviluppo di miopia sperimentale a seguito di questo regime multifase.
Nel gruppo di ratti, gli animali sottoposti a iniezioni subcongiuntivali ripetute di 500 pg/occhio di TGF-β2 hanno mostrato un aumento significativamente maggiore della lunghezza assiale nel periodo di 21 giorni rispetto ai controlli trattati con veicolo (0,466 ± 0,045 mm contro 0,388 ± 0,032 mm; p < 0,01; Figura 3A). Questo allungamento è stato accompagnato da un significativo spostamento miopico nell'errore refrattivo (p < 0,05; Figura 3B). Mentre gli occhi del gruppo controllo hanno mostrato una leggera deriva ipermetropica attesa (+0,31 ± 0,93 D), gli occhi trattati con TGF-β2 sono passati a uno stato refrattivo miopico (−1,38 ± 0,91 D).
In linea con i dati ottenuti nei ratti, anche i topi trattati con 250 pg/occhio di TGF-β2 hanno mostrato cambiamenti strutturali e refrattivi distinti. L'allungamento assiale è risultato significativamente maggiore nei topi trattati con TGF-β2 rispetto ai controlli con veicolo (0,197 ± 0,012 mm contro 0,110 ± 0,014 mm; p < 0,0001; Figura 3C). Inoltre, questo allungamento strutturale ha determinato un significativo spostamento miopico (p < 0,05; Figura 3D), invertendo efficacemente la rifrazione ipermetropica naturale osservata nei topi di controllo (+2,25 ± 1,77 D) in un profilo miopico (−1,58 ± 0,63 D).
Per verificare la simmetria della risposta interoculare e confermare che la combinazione delle misurazioni oculari bilaterali non introduca un bias statistico, la dinamica dell'allungamento assiale è stata valutata separatamente per l'occhio sinistro (OS, n = 5) e l'occhio destro (OD, n = 5) all'interno di ciascun gruppo (Supplementary Figure 1). In entrambi i ratti (Supplementary Figure 1A) e i topi (Supplementary Figure 1B), non è stata osservata alcuna differenza statisticamente significativa tra gli occhi OS e OD né nel gruppo controllo con veicolo né in quello trattato con TGF-β2, confermando dinamiche di risposta simmetriche tra gli occhi. Inoltre, sia gli occhi OS che OD negli animali trattati con TGF-β2 hanno mostrato un allungamento assiale costante e marcato rispetto ai rispettivi controlli con veicolo (p < 0,05 per i ratti; p < 0,0001 per i topi), sostenendo la validità dell'inclusione delle misurazioni bilaterali nell'analisi biométrica principale.
Nel complesso, questi risultati dimostrano che l'amministrazione subcongiuntivale ripetuta di TGF-β2 induce efficacemente la crescita oculare posteriore e un corrispondente spostamento refrattivo miopico in entrambi i modelli murini (Figura 3 e Figura supplementare 1).
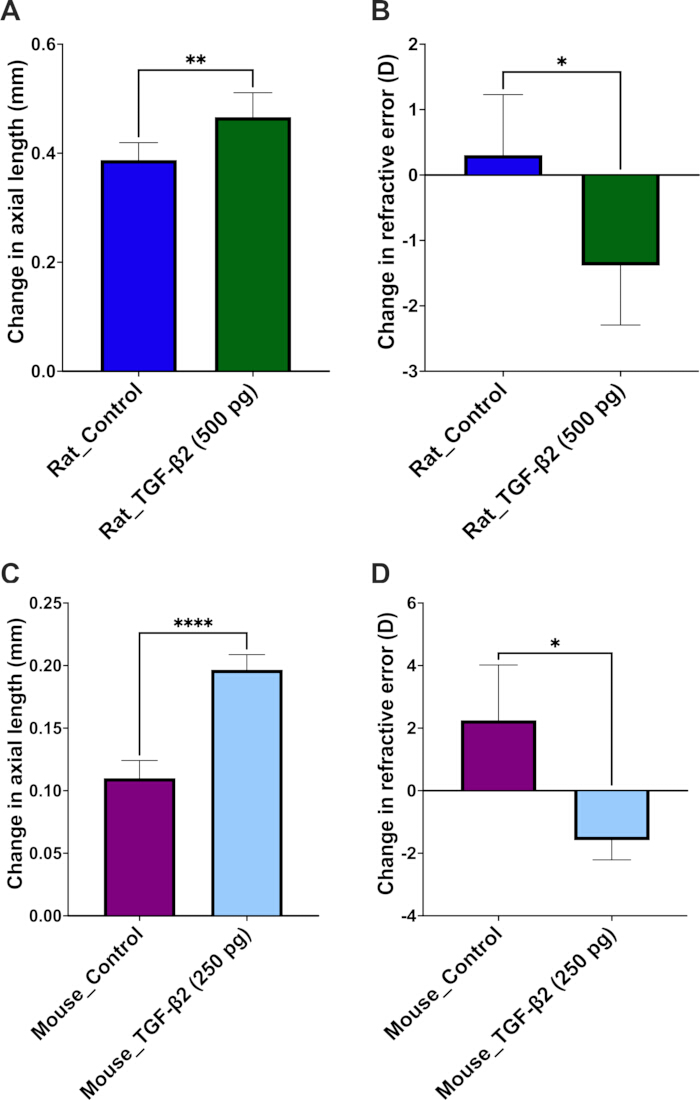
Figura 3: Validazione primaria degli effetti di TGF-β2 sull'allungamento assiale e sull'errore refrattivo in coorti indipendenti di ratti e topi. (A) Variazione della lunghezza assiale nei ratti, calcolata come differenza tra il valore basale e il punto finale alla Settimana 3 negli occhi trattati con TGF-β2 sottocute (500 pg/occhio somministrati in modo sequenziale ai Giorni 0, 7 e 14) o con controllo placebo. (B) Variazione dell'errore refrattivo negli stessi occhi di ratto, che evidenzia uno spostamento miopico significativo nel gruppo trattato con TGF-β2 rispetto al gruppo controllo placebo. (C) Variazione della lunghezza assiale nei topi (coorte indipendente di validazione primaria), calcolata come differenza tra il valore basale e il punto finale alla Settimana 3 negli occhi trattati con TGF-β2 sottocute (250 pg/occhio somministrati ai Giorni 0, 7 e 14) o con controllo placebo. (D) Variazione dell'errore refrattivo negli stessi occhi di topo, che rivela uno spostamento diottrico negativo corrispondente in seguito all'induzione ottimale di TGF-β2. I dati sono riportati come media ± DS (N = 5 animali/gruppo, corrispondenti a 10 occhi per gruppo). La significatività statistica è stata valutata rigorosamente mediante test t a due code non appaiati; *p < 0,05, **p < 0,01, ****p < 0,0001 rispetto al corrispondente gruppo controllo placebo. Cliccare qui per visualizzare una versione ingrandita di questa figura.
L'amministrazione subcongiuntivale di TGF-β2 aumenta l'espressione di MMP2 nella sclera durante la progressione della miopia sperimentale
Per valutare il rimodellamento tissutale a valle lungo l'asse retino-sclerale, è stata analizzata l'espressione della matrice metalloproteasi 2 (MMP2) in sezioni trasversali della sclera dopo l'amministrazione subcongiuntivale di TGF-β2 (Figura 4). Un'analisi quantitativa mediante immunofluorescenza di sezioni oculari posteriori nel modello ratto ha dimostrato un significativo aumento dei livelli proteici di MMP2 nella stroma sclerale degli occhi trattati con TGF-β2 (500 pg/occhio) al giorno 21 rispetto ai controlli con veicolo (p < 0,0001; Figura 4A, B).
Un forte segnale fluorescente di MMP2 è stato localizzato in tutta la matrice sclerale sottostante l'epitelio pigmentato retinico (RPE) e i livelli coroidei, confermando un rimodellamento localizzato della matrice extracellulare (ECM) associato a MMP2 nel rivestimento oculare esterno durante lo sviluppo della miopia sperimentale. Questi cambiamenti strutturali nella sclera hanno indotto ulteriori indagini sulle alterazioni molecolari a monte all'interno della retina adiacente.
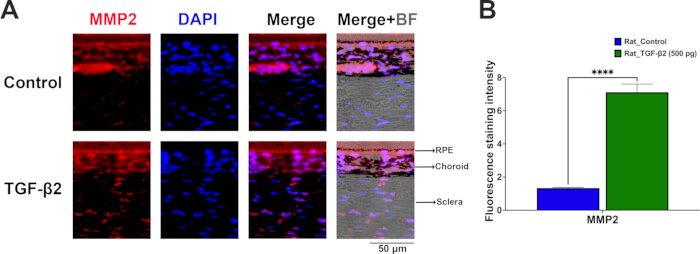
Figura 4: L'amministrazione subcongiuntivale di TGF-β2 aumenta l'espressione di MMP2 nella sclera del ratto. (A) Immagini rappresentative di immunofluorescenza di sezioni trasversali posteriori dell'occhio che mostrano l'espressione di MMP2 sclerale (rosso) in ratti trattati con veicolo-controllo e con TGF-β2 (500 pg/occhio) al giorno 21. I nuclei cellulari sono stati contrastati con DAPI (blu). L'immagine sovrapposta in campo chiaro (Merge+BF) delimita i confini anatomici dell'epitelio pigmentato retinico (RPE), della coroide e della sclera. Barra della scala = 50 µm. (B) Analisi quantitativa dell'intensità della colorazione di fluorescenza che conferma un aumento significativo dell'espressione di MMP2 sclerale negli occhi di ratti trattati con TGF-β2. I dati sono espressi come media ± DS (N = 3 replicati biologici indipendenti per gruppo, 1 occhio per animale). La significatività statistica è stata valutata mediante un test t a due code non appaiato; ****p < 0,0001 rispetto al gruppo controllo con veicolo. Abbreviazioni: RPE, epitelio pigmentato retinico; BF, campo chiaro. Cliccare qui per visualizzare una versione ingrandita di questa figura.
L'induzione di TGF-β2 aumenta l'espressione di MMP2 e di proteine associate all'inflammasoma sia nella retina di ratto che di topo
Per analizzare le alterazioni molecolari a valle indotte da iniezioni sottocute ripetute, è stata eseguita una colorazione mediante immunofluorescenza su sezioni oculari posteriori di ratti Brown Norway e topi C57BL/6 al giorno 21 (Figura 5A–D). Tutte le valutazioni sono state effettuate su sezioni retiniche sagittali allineate rigorosamente rispetto alla testa del nervo ottico, al fine di garantire un orientamento spaziale costante. Un'analisi quantitativa ha rivelato che la somministrazione settimanale di TGF-β2 ha modificato in modo significativo i profili di espressione proteica specifici all'interno dei diversi strati retinici in entrambe le specie, rispetto ai controlli trattati con veicolo (Figura 5E,F).
Nel modello ratto, la somministrazione di 500 pg/occhio di TGF-β2 ha determinato un aumento significativo dei livelli retinici di TGF-β2 (p < 0,0001; Figura 5A,E). Questo aumento è stato accompagnato da un'espressione elevata della metalloproteasi della matrice 2 (MMP2) (p < 0,0001; Figura 5B,E), indicativo di un rimodellamento attivo della matrice extracellulare. Inoltre, il trattamento con TGF-β2 ha attivato la cascata infiammatoria retinica, come dimostrato dall'upregolazione del sensore dell'inflammasoma NLRP3 (p < 0,0001; Figura 5C,E) e della citochina pro-infiammatoria IL-1β (p < 0,0001; Figura 5D,E).
Analogamente, i topi trattati con 250 pg/occhio di TGF-β2 hanno mostrato tendenze crescenti costanti in questi biomarcatori (Figura 5F). Le espressioni retiniche di TGF-β2 (p < 0,01; Figura 5A,F) e MMP2 (p < 0,001; Figura 5B,F) sono risultate significativamente aumentate. Anche la via dell'inflammasoma è stata attivata nella retina del topo, con incrementi significativi nell'espressione di NLRP3 (p < 0,01; Figura 5C,F) e un marcato upregolamento di IL-1β (p < 0,0001; Figura 5D,F) rispetto ai livelli basali quasi non rilevabili nel gruppo di controllo.
Nel complesso, questi risultati dimostrano che l'amministrazione subcongiuntivale di TGF-β2 promuove i fattori di rimodellamento della matrice mediati da MMP2 retinica e attiva la via dell'inflammasoma NLRP3/IL-1β nella retina posteriore di entrambe le specie di roditori.
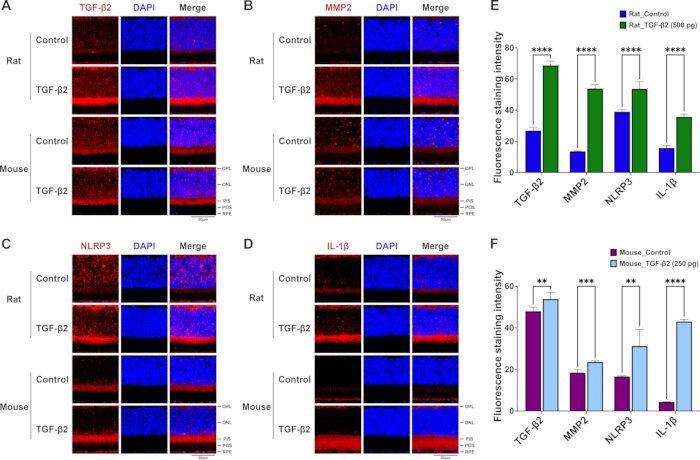
Figura 5: La somministrazione ripetuta di TGF-β2 per via sottocute aumenta l'espressione delle proteine MMP2 e associate all'inflammasoma nella retina posteriore di ratti e topi. (A–D) Immagini rappresentative di immunofluorescenza di sezioni sagittali retiniche da gruppi di controllo e trattati con TGF-β2 in ratti (pannelli superiori) e topi (pannelli inferiori), colorate per (A) TGF-β2, (B) MMP2, (C) NLRP3 e (D) IL-1β (rosso), con nuclei controcolorati con DAPI (blu). Barra della scala = 50 µm. I campi rappresentativi mostrano selettivamente le alterazioni negli strati retinici esterni, evidenziando un'espressione proteica prominente che si estende dallo strato plessiforme esterno (OPL) fino al complesso basale dell'epitelio pigmentato retinico (RPE). (E) Quantificazione dell'intensità della colorazione di fluorescenza per TGF-β2, MMP2, NLRP3 e IL-1β in retine di ratti appartenenti al gruppo di controllo e al gruppo trattato con TGF-β2 (500 pg). (F) Quantificazione dell'intensità della colorazione di fluorescenza per TGF-β2, MMP2, NLRP3 e IL-1β in retine di topi appartenenti al gruppo di controllo e al gruppo trattato con TGF-β2 (250 pg). I dati sono espressi come media ± DS (N = 3 replicati biologici indipendenti per gruppo, 1 occhio per animale). La significatività statistica è stata rigorosamente valutata mediante test t a due code non appaiati; **p < 0,01, ***p < 0,001, ****p < 0,0001 rispetto al rispettivo gruppo controllo con veicolo. Abbreviazioni: OPL, strato plessiforme esterno; ONL, strato nucleare esterno; PIS, segmenti interni dei fotoricettori; POS, segmenti esterni dei fotoricettori; RPE, epitelio pigmentato retinico. Cliccare qui per visualizzare una versione ingrandita di questa figura.
Figura supplementare 1: Simmetria interoculare e valutazione della combinazione dei dati bilaterali dopo somministrazione sottocute di TGF-β2. (A) Analisi comparativa delle variazioni della lunghezza assiale tra occhi sinistri (OS, n = 5) e occhi destri (OD, n = 5) in ratti trattati con soluzione veicolare o con TGF-β2 sottocute bilaterale (500 pg/occhio). (B) Corrispondente confronto interoculare tra occhi OS (n = 5) e OD (n = 5) in topi trattati con soluzione veicolare o con TGF-β2 bilaterale (250 pg/occhio). I test statistici hanno confermato l'assenza di differenze significative tra occhi OS e OD all'interno dello stesso gruppo di trattamento, dimostrando che la combinazione dei dati bilaterali non introduce un bias interoculare. Allo stesso tempo, sia gli occhi OS che OD negli animali trattati con TGF-β2 hanno mostrato un allungamento assiale significativo rispetto ai rispettivi controlli con veicolo. I dati sono espressi come media ± DS (N = 5 animali per gruppo, corrispondenti a 5 occhi OS e 5 occhi OD per gruppo). La significatività statistica è stata valutata mediante ANOVA a due vie con misure ripetute seguita dal test post hoc di Sidak; *p < 0,05, ****p < 0,0001 rispetto al corrispondente controllo con veicolo. Abbreviazioni: OS, oculus sinister (occhio sinistro); OD, oculus dexter (occhio destro). Cliccare qui per scaricare questo file.
Figura supplementare 2: Valutazione della sicurezza dell'integrità strutturale della retina e della funzione elettrofisiologica dopo somministrazione subcongiuntivale di TGF-β2 somministrazioni. (A) Ematossilina ed eosina rappresentative (H&Sezioni retiniche sagittali colorate con #38;E) da soggetti di controllo e da soggetti TGF-βtopi trattati (250 pg/occhio) e ratti (500 pg/occhio) al giorno 21, che mostrano un'architettura conservata degli strati retinici tra le specie (N = 3 replicati biologici indipendenti per gruppo). Barre della scala = 20 µm. (B) Forme d'onda rappresentative di elettroretinografia scotopica (ERG) registrate da topi al Giorno 21, confronto tra occhi trattati con veicolo (linea grigia) e occhi trattati con TGF-βocchi trattati (linea rossa). La dinamica comparabile delle risposte dell'onda a e dell'onda b conferma la preservata risposta alla luce della retina e la sicurezza elettrofisiologica (N = 3 topi per gruppo, corrispondenti a 6 occhi per gruppo). Abbreviazioni: GCL, strato delle cellule gangliari; INL, strato nucleare interno; ONL, strato nucleare esterno. Fare clic qui per scaricare questo file.
Discussione
A notable finding in the study is the non-linear, inverted U-shaped dose-response profile elicited by TGF-β2 in the mouse cohort, where the lowest administered dose (250 pg/eye) induced the most prominent axial elongation (Figure 2B). This biphasic phenomenon is characteristic of many potent cytokine signaling pathways, including the TGF-β superfamily29,30. Excessively high concentrations of exogenous TGF-β2 may lead to receptor saturation or trigger intracellular negative feedback loops—such as the upregulation of inhibitory SMAD family member 7 (Smad7) or receptor-mediated endocytosis—thereby attenuating downstream biological responses31,32. The immunofluorescence data further support this pharmacological window; while the 250 pg dose in mice (and 500 pg in rats) resulted in a moderate elevation in retinal TGF-β2 retention, it simultaneously triggered a robust downstream inflammatory cascade (Figure 5F). This suggests that the optimized low-dose threshold resides within a highly sensitive physiological window, maximizing targeted tissue efficacy while avoiding ligand-induced desensitization or localized suppression33. Therefore, these findings highlight the necessity of rigorous dose titration when establishing reproducible rodent models of chemical-induced myopia.
Compared with traditional form-deprivation myopia (FDM) or hyperopic defocus lens-induced myopia (LIM) models—which require customized hardware and are prone to lens displacement, grooming-induced detachment, and corneal complications—the subconjunctival protocol offers direct pharmacological control and minimal equipment costs13,34. Consistent with prior work showing that periocular delivery modulates scleral and retinal TGF-β signaling35, these data demonstrate posterior-segment biological responses following anterior subconjunctival TGF-β2 administration (Figure 4 and Figure 5). This efficient posterior targeting is attributed to the unique ocular scale and fluid dynamics of small rodents. Given the compact axial length of rodent eyes (~3 mm in mice and ~6 mm in rats), subconjunctival administration bathes a relatively large proportion of the episcleral plane. Driven by high transscleral permeability and the anatomical continuity of the sub-Tenon space, the injected formulation may diffuse across the sclera and choroid toward the posterior pole. Crucially, this route is associated with biological effects in posterior ocular tissues while avoiding the severe risks of globe perforation and optic nerve injury inherent to deep posterior sub-Tenon or intravitreal injections in small rodents. This approach avoids the mechanical and behavioral confounds of head-mounted lenses13,36, as well as the well-documented risks of retinal detachment and endophthalmitis associated with intravitreal injection37,38. Furthermore, partitioning the biometric measurements into two brief sessions improves upon conventional single-session paradigms. Prolonged anesthetic exposure frequently causes ocular disruptions—such as anesthetic cataracts in mice and spontaneous palpebral closure in rats—which compromise the accuracy of refractive and axial measurements39,40. By separating the refractive error (Days –1 and 20) and axial length (Days 0 and 21) assessments, the protocol is designed to minimize potential cumulative ocular stress and maintain consistent imaging conditions, which may help mitigate intra-experimental variability. To further eliminate potential confounding variables arising from systemic cross-contamination—such as systemic vascular absorption or lymphatic transport affecting non-target tissue—as well as contralateral sympathetic responses, a strictly between-subject design was implemented. By administering bilateral vehicle control or bilateral active rhTGF-β2 within individual animals, this paradigm prevents interocular contamination while ensuring robust pharmacological evaluation. Consistently, separate biometric analyses of the paired left and right eyes confirmed high inter-ocular symmetry, validating that bilateral data pooling did not introduce statistical or physiological bias across treatment cohorts (Supplementary Figure 1).
This rodent model effectively recapitulates the TGF-β2–driven inflammatory and matrix-remodeling axis previously established in studies by the authors in tree shrews and Brown Norway rats21,41. Previous investigations by the authors showed that exogenous TGF-β or TGF-β2 amplified intraocular inflammation—specifically via NF-κB and IL-1β activation—while upregulating MMP2 expression, depleting scleral collagen I, and driving axial elongation42,43. Conversely, dampening complement and inflammasome activity via complement decay-accelerating factor (CD55) suppressed both localized inflammation and myopia progression41,44. Similar chronic inflammatory signatures, marked by elevated MMP2 activation and subsequent collagen I loss, are also evident in classical form-deprivation models and in patients with pathological high myopia42,43,45,46. Importantly, rather than functioning as an isolated or universal primary inducer operating uniformly across all tissues, TGF-β (specifically the TGF-β2 isoform) acts as a context-dependent signaling bridge. It links early-stage retinal/RPE inflammatory signaling—specifically via NLRP3 inflammasome and complement activation—to downstream scleral extracellular matrix (ECM) execution21,41. Recognizing this spatiotemporal transition resolves apparent literature inconsistencies regarding TGF-β expression, as its dynamics shift between early local inflammatory amplification in the retina/RPE and late MMP-mediated matrix degradation in the sclera47,48. Specifically, while the structural execution of scleral ECM degradation ultimately dictates physical eye elongation (Figure 4), the molecular findings highlight the outer retina and RPE as the primary upstream signaling origin (Figure 5). Here, while the present study exclusively utilized quantitative immunofluorescence (IF) to map the in situ spatial distribution and laminar upregulation of these markers, the overall gene and protein dynamics (via RT-qPCR and Western blot, respectively) of this retinal phosphorylated nuclear factor kappa B (p-NF-κB)/IL-1β/tumor necrosis factor-alpha (TNF-α)/NLRP3 cascade under identical TGF-β2 induction paradigms have been independently established in the previous studies by the authors46,49. Subconjunctival TGF-β2 activates the NLRP3/IL-1β–MMP2 cascade within the retina/RPE, which propagates across the retino-choroidal-scleral axis to drive downstream scleral MMP2 expression and matrix remodeling. These parallels strongly support the central role of low-grade inflammation and MMP-mediated remodeling of the scleral extracellular matrix (ECM) in accelerated eye growth.
Despite these procedural advantages, several limitations of the present protocol warrant consideration. First, as a purely pharmacological model driven by exogenous cytokine delivery, this approach bypasses the optical defocus and retina-to-sclera light signal transduction pathways characteristic of traditional form-deprivation myopia (FDM) or lens-induced myopia (LIM) models16,50. Consequently, while highly suitable for targeting downstream biochemical cascades—specifically the inflammatory-MMP2 remodeling axis—it is complementary to, rather than a replacement for, models investigating upstream visual processing or optical manipulations51. Second, although subconjunctival injection avoids systemic toxicity and intravitreal risks, the requirement for repeated micro-injections (once weekly for 3 weeks) introduces transient localized mechanical perturbation and brief anesthesia exposure, which could subtly influence ocular surface homeostasis if not rigorously executed38,52. Achieving reproducible induction of experimental myopia via this route relies heavily on precise technical execution during subconjunctival delivery. The primary technical determinant of success is the correct shallow bevel insertion beneath the palpebral conjunctiva to establish a localized, well-circumscribed submucosal bleb (chemosis). Verification via immediate transillumination ensures that fluid remains within the tissue plane, preventing inadvertent scleral perforation, deep orbital extravasation, or microvascular laceration. To prevent post-injection fluid reflux or active leakage—a common failure mode that compromises effective pharmacological dosing—the micro-needle should be held in situ for 5 s post-delivery before slow, steady withdrawal under visual control. In cases where immediate reflux, insufficient bleb height, or inadvertent tissue hemorrhage occurs upon withdrawal, animals should be documented and excluded according to pre-specified criteria to avoid confounding variability. Adherence to these strict technical benchmarks guarantees high-fidelity, targeted posterior drug retention while minimizing ocular surface trauma. Furthermore, while the absolute refractive status (e.g., -1.58 D in mice and -1.38 D in rats) in rodent models may appear modest relative to their high baseline dioptric power, the net myopic shifts relative to vehicle controls are substantial (+3.83 D in mice and +1.69 D in rats; both p < 0.05) and strictly concordant with structural axial elongation and downstream scleral MMP2 upregulation across both species. Importantly, safety and physiological tolerability evaluations confirmed the non-cytotoxic nature of this low-dose subconjunctival administration paradigm. Histological cross-sections (H&E) revealed well-preserved retinal layer architecture across both mice and rats, while scotopic electroretinography (ERG) at Day 21 demonstrated intact a-wave and b-wave responses without implicit time delays or amplitude depression (Supplementary Figure 2), confirming that localized TGF-β2 delivery induces targeted axial elongation without causing structural retinopathy or electrophysiological impairment. Third, the endpoint evaluations at Week 3 capture acute-to-subacute inflammatory responses and matrix remodeling; long-term studies are needed to determine whether these phenotypic changes persist post-treatment or exhibit recovery dynamics following washout41,53. Finally, while direct pharmacokinetic and ocular tissue penetration analyses of exogenous TGF-β2 were beyond the scope of this model validation study, the robust and consistent biometric shifts (axial elongation and refractive error change), alongside the specific retinal/RPE molecular activations established in the previous studies by authors46,49, support effective biological action in posterior ocular structures. Future studies incorporating further protein expression profiling (e.g., Western blotting), RT-qPCR, or fluorescently tagged TGF-β2 tracking will further clarify its precise tissue distribution and clearance kinetics. Recognizing these boundaries will guide researchers in selecting this model for appropriate therapeutic screening and mechanistic validation.
By demonstrating that subconjunctival TGF-β2 activates the NLRP3/IL-1β–MMP2 axis within the outer retina and retinal pigment epithelium (RPE) of both Brown Norway rats and C57BL/6 mice, the protocol provides a pharmacologically defined framework that validates these inflammatory and matrix-remodeling pathways across rodent species. Consequently, the TGF-β2–induced model serves as a reliable platform for standardizing the induction of axial elongation, dissecting retino-scleral signaling cascades, and screening preclinical interventions targeting TGF-β2, complement components, the inflammasome, or MMP2.
Dichiarazioni
Gli autori non hanno dichiarazioni o conflitti di interessi da segnalare relativi a questo studio. Strumenti linguistici assistiti dall'intelligenza artificiale sono stati utilizzati esclusivamente per la correzione grammaticale e il perfezionamento della sintassi inglese durante la preparazione del manoscritto. Nessuno strumento di intelligenza artificiale generativa è stato impiegato nell'acquisizione dei dati, nell'elaborazione delle immagini, nell'analisi quantitativa o nella costruzione delle figure.
Ringraziamenti
Experiments and data analysis were performed in part through the use of the Medical Research Core Facilities, Office of Research & Development, at China Medical University, Taichung, Taiwan, R.O.C. The authors sincerely thank the National Center for Biomodels (NCB, NIAR, Taiwan) and BioLASCO Taiwan Co., Ltd. for their exceptional technical support in contract breeding and animal supply services. Additionally, the schematic architecture and microsurgical procedures illustrated in Figure 1 were designed and custom-tailored using high-resolution vector assets from Mind the Graph (mindthegraph.com, Premium License) and were professionally compiled and refined utilizing Affinity Designer (Serif Europe Ltd.). Research funding was provided in part by the National Science and Technology Council, Taiwan, R.O.C. (NSTC-112-2314-B-039-029; 115-2320-B-039-056), China Medical University Hospital, Taichung, Taiwan (DMR-114-091; DMR-115-117), and China Medical University, Taichung, Taiwan (CMU114-MF-78; CMU-114-ASIA-10). The funders had no role in the study design, data collection and analysis, the decision to publish, or preparation of the manuscript. The sponsor or funding organization had no role in the design or conduct of this research.
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| Fotorefrattometro Infrarosso Automatico | StriaTech GmbH (Tübingen, Germania) | ST-PR.01 | Con preset specifici per specie topo/ratto |
| Soluzione Salina Bilanciata (BSS) | Alcon Laboratories, Inc. (Fort Worth, USA) | N/A | Soluzione sterile per irrigazione intraoculare |
| Albumina Sierica Bovina (BSA) | Sigma-Aldrich (St. Louis, USA) | A3059 | Polvere liofilizzata, frazione V allo 0,1% |
| Ratti Brown Norway (BN) | BioLASCO Taiwan Co., Ltd. e/o il National Center for Biomodels | https://www.biolasco.com.tw/product/brown-norway-rats/ | |
| Topi C57BL/6 (B6) | BioLASCO Taiwan Co., Ltd. e/o il National Center for Biomodels | https://www.ncb.niar.org.tw/p3_animal2_detail.asp?cid=1&nid=3&ppage=0&type=1 | |
| Soluzione DAPI (1 mg/mL) | Thermo Scientific (Thermo Fisher Scientific, Waltham, USA) | 62248 | Utilizzata in una diluizione di lavoro di 1:500 per immunofluorescenza. |
| Etilene Assoluto (≥99,5%) | J.T.Baker (Avantor Performance Materials, Radnor, USA) | N/A | Grado reagente, 75% per risciacquo, 20%–100% per disidratazione |
| Illuminatore a Fibra Ottica (150 W, Doppio Collo d'Oca) | Stoelting Co. (Wood Dale, USA) | N/A | Sorgente luminosa ad alta intensità |
| Micropinzette a Punta Fine | Stephens Instruments (Lexington, USA) | S5-1375 | Dritte, zigrinate, con perno guida |
| Gel Oftalmico Ginpol | Winston Medical Supply Co., Ltd. (Tainan, Taiwan) | N/A | Carbomero 0,2%, protezione corneale |
| Glicerolo (Biologia Molecolare, ≥99,0%) | Sigma-Aldrich (St. Louis, USA) | G5516 | Grado reagente, matrice di lavoro al 50% |
| Anticorpo Secondario Anti-IgG Coniglio (H+L), Alexa Fluor Plus 555 | Invitrogen (Thermo Fisher Scientific, Waltham, USA) | A32732 | Utilizzato in una diluizione di lavoro di 1:800 per immunofluorescenza. |
| Sistema Elettroretinografico Portatile Multispecie (HMSERG) | OcuScience (Henderson, USA) | Modello 2000 (HMsERG-2000), sistema ERG a campo completo con flash per roditori con software ERGView. | |
| Fissativo di Hartman′s (Fissativo di Davidson) | Sigma-Aldrich (St. Louis, USA) | H0290 | Cocktail di fissazione rapida per geometria oculare |
| Probo di Ultrasuoni ad Alta Frequenza | ASUSTeK Computer Inc. (Taipei, Taiwan) | LU710LH | Portatile, frequenza 16 MHz |
| Ago per Microiniezione (33-G) | Hamilton Company (Reno, USA) | 7803-05 | Stile di punta 4, angolo di smusso ridotto |
| Siringa per Microiniezione (10 µL) | Hamilton Company (Reno, USA) | 80014 (#1701) | Siringa microlettrica ermetica |
| Soluzione Oftalmica Mydrin-P | Santen Pharmaceutical Co., Ltd. (Osaka, Giappone) | N/A | Tropicamide 0,5% / Fenilefrina 0,5% |
| Suero Normale di Capra | Jackson ImmunoResearch Laboratories, Inc. (West Grove, USA) | 005-000-121 | Utilizzato come soluzione bloccante al 10% per immunofluorescenza. |
| Software di Acquisizione Fotorefrattometro | StriaTech GmbH (Tübingen, Germania) | N/A | Elaborazione Automatica dell'Equivalente Sferico Medio |
| Anticorpo Monoclonale Coniglio Anti-IL1 beta (HL1421) | GeneTex, Inc. (Irvine, USA) | GTX636887 | Utilizzato in una diluizione di lavoro di 1:500 per immunofluorescenza. |
| Anticorpo Policlonale Coniglio Anti-MMP2 | GeneTex, Inc. (Irvine, USA) | GTX104577 | Utilizzato in una diluizione di lavoro di 1:500 per immunofluorescenza. |
| Anticorpo Policlonale Coniglio Anti-NLRP3 | Abcam (Cambridge, Regno Unito) | ab214185 | Utilizzato in una diluizione di lavoro di 1:400 per immunofluorescenza. |
| Anticorpo Policlonale Coniglio Anti-TGF-beta 2 | AbboMax, Inc. (San Jose, USA) | 500-3784 | Utilizzato in una diluizione di lavoro di 1:250 per immunofluorescenza. |
| TGF-β1 Umano Ricombinante | PeproTech (Thermo Fisher Scientific, Cranbury, USA) | 100-21 | Polvere liofilizzata, alta purezza |
| TGF-β2 Umano Ricombinante | PeproTech (Thermo Fisher Scientific, Cranbury, USA) | 100-35 | Polvere liofilizzata, alta purezza |
| TGF-β3 Umano Ricombinante | PeproTech (Thermo Fisher Scientific, Cranbury, USA) | 100-36 | Polvere liofilizzata, alta purezza |
| Gel Ultrasuoni Sterile Aquasonic 100 | Parker Laboratories, Inc. (Fairfield, USA) | N/A | Matrice standard di accoppiamento acustico |
| Software per Imaging a Ultrasuoni | ASUSTeK Computer Inc. (Taipei, Taiwan) | N/A | Per visualizzazione in tempo reale B-scan e calibrazione |
Riferimenti
- Holden BA, et al. Myopia: a growing global problem with sight-threatening complications. Community eye health. 2015;28(90):35.
- Holden BA, et al. Global prevalence of myopia and high myopia and temporal trends from 2000 through 2050. Ophthalmology. 2016;123(5):1036-42.
- McMonnies CW. An examination of the relation between intraocular pressure, fundal stretching, and myopic pathology. Clinical and Experimental Optometry. 2016;99(2):113-9.
- Fledelius HC. Myopia and significant visual impairment: global aspects [Presentation]. Presented at: 7th International Conference on Myopia; Taipei, Taiwan; 1998.
- Park SC, Liebmann JM, Ritch R. Glaucoma in myopia. Pathologic Myopia: Springer; 2013. p. 283-92.
- Gale J, Ikuno Y. Ii. B. Myopic Vitreopathy. Vitreous: In Health and Disease: Springer; 2014. p. 113-29.
- Saw SM, Gazzard G, Shih-Yen EC, Chua WH. Myopia and associated pathological complications. Ophthalmic and Physiological Optics. 2005;25(5):381-91.
- Tkatchenko TV, Shen Y, Tkatchenko AV. Mouse Experimental Myopia Has Features of Primate Myopia. Investigative Ophthalmology & Visual Science. 2010;51(3):1297-303.
- Morgan IG, Ashby RS, Nickla DL. Form deprivation and lens-induced myopia: are they different? Ophthalmic Physiol Opt. 2013;33(3):355-61.
- Barathi VA, Boopathi VG, Yap EP, Beuerman RW. Two models of experimental myopia in the mouse. Vision Res. 2008;48(7):904-16.
- Zhao HL, Wang RQ, Wu MQ, Jiang J. Dynamic changes of ocular biometric parameters: a modified form-deprivation myopia model of young guinea pigs. Int J Ophthalmol. 2011;4(5):484-8.
- Wu XH, et al. Unaltered retinal dopamine levels in a C57BL/6 mouse model of form-deprivation myopia. Invest Ophthalmol Vis Sci. 2015;56(2):967-77.
- Faulkner AE, Kim MK, Iuvone PM, Pardue MT. Head-mounted goggles for murine form deprivation myopia. J Neurosci Methods. 2007;161(1):96-100.
- Wang Y, Zhang Y, Tian N. Cause and Management of Suture-related Ocular Complications after Buried-suture Double-eyelid Blepharoplasty. J Plast Reconstr Aesthet Surg. 2021;74(12):3431-6.
- Pang K, Lennikov A, Yang M. Hypoxia adaptation in the cornea: Current animal models and underlying mechanisms. Animal Model Exp Med. 2021;4(4):300-10.
- Schaeffel F, Feldkaemper M. Animal models in myopia research. Clinical and Experimental Optometry. 2015;98(6):507-17.
- Harper AR, Summers JA. The dynamic sclera: extracellular matrix remodeling in normal ocular growth and myopia development. Exp Eye Res. 2015;133:100-11.
- Jobling AI, Nguyen M, Gentle A, McBrien NA. Isoform-specific changes in scleral transforming growth factor-beta expression and the regulation of collagen synthesis during myopia progression. J Biol Chem. 2004;279(18):18121-6.
- Vranka JA, Kelley MJ, Acott TS, Keller KE. Extracellular matrix in the trabecular meshwork: intraocular pressure regulation and dysregulation in glaucoma. Exp Eye Res. 2015;133:112-25.
- Tien P-T, et al. Diacerein inhibits myopia progression through lowering inflammation in retinal pigment epithelial cell. Mediators of Inflammation. 2021;2021(1):6660640.
- Ku H, et al. The role of transforming growth factor beta in myopia development. Molecular immunology. 2024;167:34-42.
- Yin X, Ge J. The role of scleral changes in the progression of myopia: a review and future directions. Clinical Ophthalmology. 2025:1699-707.
- Schippert R, Brand C, Schaeffel F, Feldkaemper MP. Changes in scleral MMP-2, TIMP-2 and TGFβ-2 mRNA expression after imposed myopic and hyperopic defocus in chickens. Experimental eye research. 2006;82(4):710-9.
- Xin J, et al. Crosstalk between myopia and inflammation: a mini review. International journal of medical sciences. 2024;21(9):1589.
- Zhang K, et al. Elevated Transforming Growth Factor-β2 in the Aqueous Humor: A Possible Explanation for High Rate of Capsular Contraction Syndrome in High Myopia. Journal of Ophthalmology. 2016;2016(1):5438676.
- Zhang M, et al. Complement and local ocular inflammatory response: Chronic immune factors in myopia. Science Progress. 2025;108(3):00368504251383046.
- Meng L, et al. Aqueous Humour Cytokines as Predictors of Axial Elongation in High Myopia: A 2-Year Longitudinal Cohort Study. Clinical & Experimental Ophthalmology. 2026;54(6):756-768.
- Miller DA, et al. Murine transforming growth factor-β2 cDNA sequence and expression in adult tissues and embryos. Molecular Endocrinology. 1989;3(7):1108-14.
- Langer JC, Henckaerts E, Orenstein J, Snoeck HW. Quantitative trait analysis reveals transforming growth factor-beta2 as a positive regulator of early hematopoietic progenitor and stem cell function. J Exp Med. 2004;199(1):5-14.
- Shinar DM, Rodan GA. Biphasic effects of transforming growth factor-beta on the production of osteoclast-like cells in mouse bone marrow cultures: the role of prostaglandins in the generation of these cells. Endocrinology. 1990;126(6):3153-8.
- Heldin CH, Moustakas A. Signaling Receptors for TGF-β Family Members. Cold Spring Harb Perspect Biol. 2016;8(8).
- Zhao B, Chen YG. Regulation of TGF-β Signal Transduction. Scientifica (Cairo). 2014;2014:874065.
- Akhurst RJ. Targeting TGF-β Signaling for Therapeutic Gain. Cold Spring Harb Perspect Biol. 2017;9(10).
- Pardue MT, Stone RA, Iuvone PM. Investigating mechanisms of myopia in mice. Exp Eye Res. 2013;114:96-105.
- Cordeiro MF, Gay JA, Khaw PT. Human Anti-Transforming Growth Factor-β2 Antibody: A New Glaucoma Anti-Scarring Agent. Investigative Ophthalmology & Visual Science. 1999;40(10):2225-34.
- Guo ZV, et al. Procedures for Behavioral Experiments in Head-Fixed Mice. PLOS ONE. 2014;9(2):e88678.
- Jager RD, Aiello LP, Patel SC, Cunningham ET, Jr. Risks of intravitreous injection: a comprehensive review. Retina. 2004;24(5):676-98.
- Lommatzsch AP, et al. Endophthalmitis als schwere Komplikation der intravitrealen Medikamentengabe. Klin Monbl Augenheilkd. 2013;230(11):1130-4.
- Li XT, Qin Y, Zhao JY, Zhang JS. Acute lens opacity induced by different kinds of anesthetic drugs in mice. Int J Ophthalmol. 2019;12(6):904-8.
- Tkatchenko TV, Tkatchenko AV. Ketamine-xylazine anesthesia causes hyperopic refractive shift in mice. J Neurosci Methods. 2010;193(1):67-71.
- Lin S-C, et al. The Function of Transforming Growth Factor 2 in Facilitating Inflammas ome Activation to Enhance the Development of Myopia via Complement Sys tem. Cells. 2025;14(16):1295.
- Wei CC, et al. Allergic Conjunctivitis-induced Retinal Inflammation Promotes Myopia Progression. EBioMedicine. 2018;28:274-86.
- Wei CC, et al. Corrigendum to "Allergic Conjunctivitis-induced Retinal Inflammation Promotes Myopia Progression" [EBioMedicine 28 (2018) 274-286]. EBioMedicine. 2019;41:717-8.
- Lin HJ, et al. Role of Chronic Inflammation in Myopia Progression: Clinical Evidence and Experimental Validation. EBioMedicine. 2016;10:269-81.
- Lin HJ, et al. Sclera-related gene polymorphisms in high myopia. Mol Vis. 2009;15:1655-63.
- Lin CF, et al. Harnessing Lactiplantibacillus plantarum EP21 and its membrane vesicles to inhibit myopia development. Gut Microbes. 2025;17(1):2534677.
- Chou Y-L, et al. Complement decay-accelerating factor inhibits inflammation-induced myopia development. Molecular Immunology. 2024;171:47-55.
- Ku H, et al. Myopia development in tree shrew is associated with chronic inflammatory reactions. Current Issues in Molecular Biology. 2022;44(9):4303-13.
- Chou Y-L, et al. Vitamin D3 Reshapes Gut Microbiota and Metabolite Profiles in a Rat Model of Inflammation-Induced Myopia. Biomolecules. 2026;16(7):939.
- Wallman J, Winawer J. Homeostasis of eye growth and the question of myopia. Neuron. 2004;43(4):447-68.
- Morgan IG, et al. IMI Risk Factors for Myopia. Investigative Ophthalmology & Visual Science. 2021;62(5).
- Wildsoet C, et al. IMI-interventions for controlling myopia onset and progression report. Investigative Ophthalmology and Visual Science. 2019;60(3):M106-M31.
- Rada JAS, Shelton S, Norton TT. The sclera and myopia. Experimental eye research. 2006;82(2):185-200.
Ristampe e permessi
Questo articolo è stato pubblicato
Video in arrivo