Questo studio dimostra che miR-1298 è strettamente associato all'invasione e alla migrazione nel CRC e potrebbe funzionare come soppressore tumorale inibendo la progressione del CRC, evidenziandone il potenziale come nuovo bersaglio terapeutico per il trattamento del CRC.
Articolo di ricerca
Ruolo dell'asse miR-1298/Proteina morfogenetica dell'osso 7 nel cancro colorettale
* These authors contributed equally
In questo articolo
Sommario
Abstract
L'incidenza del cancro del colon-retto (CRC) è in costante aumento negli ultimi anni. Abbiamo esplorato il significato clinico e i meccanismi molecolari di miR-1298 nel CRC. Sono stati arruolati complessivamente 85 pazienti affetti da CRC. Tutti i livelli genici sono stati valutati mediante RT-qPCR. Nelle cellule del CRC, i livelli di miR-1298 e della proteina morfogenetica ossea 7 (BMP7) sono stati regolati mediante trasfezione cellulare. La previsione del bersaglio di miR-1298 è stata effettuata tramite analisi bioinformatiche ed è stata confermata mediante il sistema del reporter a doppia luciferasi. La funzionalità delle cellule del CRC è stata valutata utilizzando il saggio CCK-8, il saggio Transwell e la citometria a flusso. La correlazione tra miR-1298 e BMP7 nei tessuti del CRC è stata analizzata mediante il coefficiente di correlazione di Pearson. miR-1298 risultava significativamente sotto-regolato nel CRC ed era associato a caratteristiche clinicopatologiche maligne. Nelle cellule del CRC, miR-1298 inibiva proliferazione, migrazione e invasione, e aumentava l'apoptosi. BMP7 rappresentava un bersaglio a valle di miR-1298 ed era negativamente correlato a miR-1298. L'overespressione di BMP7 ha parzialmente invertito l'effetto inibitorio di miR-1298 sulla proliferazione, migrazione e invasione delle cellule del CRC, nonché il suo effetto pro-apoptotico. miR-1298 è correlato a invasione e migrazione e potrebbe inibire la progressione del CRC. BMP7 potrebbe rappresentare un mediatore funzionale potenziale di miR-1298 nel CRC.
Introduzione
Il carcinoma del colon-retto (CRC) rappresenta un notevole onere sanitario a livello mondiale, classificandosi tra le principali cause di morte per cancro a livello globale1. Il CRC origina dalle cellule epiteliali del colon-retto, sviluppandosi solitamente in modo graduale attraverso un processo multistadio noto come progressione da adenoma a carcinoma, un processo che richiede diversi anni2. Le conseguenze del CRC sono ampie e multifaccettate. Oltre al rischio di morte, il CRC può avere un impatto significativo sulla vita quotidiana dei pazienti. Il trattamento richiede tipicamente un intervento chirurgico importante, che può comportare complicanze come una colostomia permanente, disfunzioni intestinali o disfunzioni sessuali e urinarie3. Inoltre, l'onere economico derivante dalla chemioterapia, dalla terapia mirata e dal monitoraggio a lungo termine rappresenta un notevole peso sia per i pazienti sia per il sistema sanitario. Pertanto, lo studio dei meccanismi molecolari alla base del CRC rimane una priorità fondamentale nel campo della salute pubblica.
Nel carcinoma del colon-retto (CRC), la disregolazione di specifici microRNA (miRNA) rappresenta una caratteristica distintiva della tumorigenesi e influenza processi chiave4. L'identificazione di questi miRNA differenzialmente espressi non solo migliora la comprensione della patogenesi del CRC, ma offre anche potenziali percorsi per nuovi biomarcatori diagnostici e bersagli terapeutici. Tra i numerosi miRNA associati al cancro, miR-1298 si è affermato come un importante obiettivo della ricerca. Le evidenze attuali indicano che miR-1298 agisce frequentemente come soppressore tumorale in diversi tipi di cancro. Ad esempio, nel carcinoma polmonare non a piccole cellule (NSCLC), inibisce la crescita e l'invasione cellulare attraverso il targeting di vie oncogeniche chiave5. Analogamente, nei tumori cerebrali, la sua downregolazione è associata allo sviluppo tumorale, mentre il suo ripristino inibisce la progressione della malattia6. Considerato il ruolo soppressore tumorale già dimostrato in altri tumori, il ruolo specifico di miR-1298 nella carcinogenesi colorettale—in particolare i suoi bersagli a valle e le conseguenze funzionali nel CRC—rimane in gran parte inesplorato. Questa lacuna conoscitiva è significativa, data la peculiarità del paesaggio molecolare del CRC rispetto ad altre neoplasie.
BMP7 è una citochina secreta e funzionalmente versatile appartenente alla superfamiglia del fattore di crescita trasformante-β (TGF-β)7. Nel carcinoma del colon-retto (CRC), BMP7 svolge principalmente un ruolo di promozione tumorale. BMP7 è comunemente sovraespressa nei tessuti e nelle cellule del CRC8. BMP7 aumenta l'invasività, la migrazione e le proprietà simili a quelle delle cellule staminali delle cellule tumorali, probabilmente attivando cascate di segnalazione pro-invasive e modulando il microambiente tumorale per favorire la migrazione9. In diversi tipi di cancro, specifiche miRNA sono state identificate come repressori post-trascrizionali diretti di BMP7. Ad esempio, miR-137 bersaglia BMP7 nel carcinoma polmonare non a piccole cellule (NSCLC) inibendo la crescita cellulare10. Alla luce di questi risultati, ipotizziamo che BMP7 possa essere coinvolta nel CRC. Tuttavia, non è stato ancora validato sperimentalmente se miR-1298 bersagli direttamente BMP7 nel CRC. Inoltre, nessuno studio ha finora caratterizzato in modo esaustivo l'asse miR-1298/BMP7 nel CRC integrando la validazione meccanicistica, il fenotipaggio funzionale e la correlazione clinica.
Pertanto, abbiamo inteso: (1) indagare il profilo regolatorio di miR-1298 nel carcinoma colorettale (CRC) e la sua associazione con caratteristiche clinicopatologiche; (2) caratterizzare funzionalmente gli effetti di miR-1298 sulla proliferazione, apoptosi, invasione e migrazione nel CRC; (3) confermare sperimentalmente BMP7 come bersaglio di miR-1298 nel CRC; e (4) valutare il valore diagnostico e prognostico di miR-1298 nei pazienti affetti da CRC. Integrando questi approcci complementari, abbiamo cercato di fornire una comprensione completa dell'asse miR-1298/BMP7 nel CRC e di identificare nuovi biomarcatori e bersagli terapeutici per questa malattia.
Protocollo
Lo studio è stato approvato dal Comitato Etico dell'Ospedale Neurologico di Wuhan (numero di approvazione: 20220826). Tutti i partecipanti hanno fornito consenso informato scritto prima dell'arruolamento. Lo studio è stato condotto in conformità con la Dichiarazione di Helsinki. È stato ottenuto il consenso alla pubblicazione da tutti i partecipanti i cui dati sono stati inclusi. I dettagli sui reagenti, kit, anticorpi, linee cellulari, plasmidi e attrezzature utilizzati nello studio, compresi i produttori e le informazioni sui cataloghi, sono riportati nella Tabella dei Materiali.
Pazienti e campioni
Da maggio 2022 ad agosto 2024, abbiamo raccolto campioni accoppiati di tessuto tumorale e tessuto non tumorale adiacente da 85 pazienti con CRC. Nessuno dei partecipanti aveva anamnesi di cancro, chemioterapia o radioterapia. Inoltre, lo studio ha incluso 71 soggetti sani sottoposti a esame fisico.
Prognosi
I valori critici per i gruppi di espressione alta/bassa di miR-1298 sono stati determinati in base al livello mediano di espressione nei campioni di tessuto CRC. Il periodo di follow-up è stato di 12 mesi, con il follow-up effettuato tramite telefono o rivalutazione clinica. L'evento conclusivo è stato il decesso. Tra i 85 pazienti, sono stati registrati 14 decessi durante il periodo di follow-up, e non ci sono stati pazienti censurati.
Cultura cellulare e trasfezione cellulare
Sono state ottenute la linea cellulare normale di colon umano FHC e le linee cellulari di CRC umano SW480 e HCT-116. Le cellule sono state coltivate in Dulbecco's Modified Eagle Medium (DMEM) integrato con il 10% di siero fetale bovino (FBS). Il mimico o l'inibitore di miR-1298 sono stati trasfettati nelle cellule SW480 e HCT-116 utilizzando Lipofectamine 3000. Successivamente, il mimico di miR-1298 e il plasmide pcDNA3.1-BMP7 (OE-BMP7) o il vettore pcDNA3.1 (OE-NC) sono stati co-trasfettati nelle cellule SW480 e HCT-116. I passaggi specifici sono stati i seguenti: le cellule sono state coltivate a 37 °C con 5% di CO₂ fino al raggiungimento di una confluenza del 70%–80%. Le cellule sono state seminate a una densità di 5 x 10⁴ cellule per pozzetto in una piastra a 24 pozzetti e incubate durante la notte. È stato preparato un mix di trasfezione contenente 250 µL di Opti-MEM, 1,25 µL di Lipofectamine 3000, 1,5 µL di P3000, 50 nM di miRNA e 1 µg di plasmide, incubato per 15 minuti prima di essere aggiunto alle cellule. Dopo 6 ore, il mezzo è stato sostituito con DMEM completo e i campioni sono stati raccolti a 48 ore.
Analisi bioinformatica
La sequenza bersaglio di miR-1298 è stata prevista utilizzando il database TargetScan 8.0 (https://www.targetscan.org/vert_80/). Successivamente è stato identificato il sito di legame previsto tra miR-1298 e BMP7.
Saggio del reporter dual-luciferasi
Il tipo selvaggio e il mutante 3′- Le sequenze UTR di BMP7 contenenti il sito di legame predetto per miR-1298 sono state clonate nel vettore reporter duale luciferasi pmirGLO per generare rispettivamente i plasmidi reporter BMP7 Wt e BMP7 Mut. Per il saggio della luciferasi, le cellule SW480 e HCT-116 sono state co-trasfettate con il plasmide BMP7 Wt o BMP7 Mut insieme al mimico di miR-1298, all'inibitore o ai corrispondenti controlli negativi. I passaggi specifici sono stati i seguenti: le cellule sono state seminate in piastre a 24 pozzetti a 4 x 10⁴ cellule per pozzetto. Ogni pozzetto è stato co-trasfettato con 0.8 µg di plasmide reporter, 50 nM di mimico o inibitore di miR-1298 o controllo negativo corrispondente e Lipofectamine 3000. Dopo 8 h, il mezzo di coltura è stato aspirato e le cellule sono state lisate aggiungendo 100 µL di tampone di lisi passiva (PLB) per 15 min. A 20 µL un'aliquote del lisato è stata trasferita in una piastra per saggio bianca, 50 µL di LAR II è stato aggiunto e l'attività della luciferasi di lucerna è stata misurata. Un ulteriore 50 µL Ferma&Il reagente #38;Glo è stato aggiunto per misurare Renilla. Infine, è stata completata la normalizzazione dei dati.
RT-qPCR
L'RNA è stato estratto da cellule in coltura, siero e tessuti di CRC congelati utilizzando il reagente TRIzol. In breve, le cellule sono state lisate direttamente in 1 mL di TRIzol per ogni piastra da 10 cm; i frammenti di tessuto sono stati omogeneizzati in TRIzol su ghiaccio. Dopo la separazione delle fasi con cloroformio e la precipitazione con isopropanolo, i pellet di RNA sono stati lavati con etanolo al 75%, essiccati all'aria e sciolti in acqua priva di RNasi. La purezza e la concentrazione dell'RNA sono state determinate mediante uno spettrofotometro a microvolume (A260/A280 = 1,8–2,1, A260/A230 > 2,0). Per l'analisi dell'mRNA, il DNA genomico residuo è stato eliminato con gDNA Eraser e 500 ng di RNA sono stati retrotrascritti utilizzando il PrimeScript RT Reagent Kit con oligo(dT) ed esameri casuali (37 °C per 15 min e 85 °C per 5 s). Per l'analisi del miRNA, 100 ng di RNA sono stati retrotrascritti con un primer a stem-loop specifico per miR-1298-5p o U6 utilizzando il Mir-X miRNA First-Strand Synthesis Kit (16 °C per 30 min, 42 °C per 30 min e 85 °C per 5 s). In ogni esperimento sono stati inclusi controlli senza retrotrascrizione (no-RT) e senza template (no-template). Il cDNA è stato diluito in modo appropriato e conservato a −80 °C fino all'analisi mediante qPCR. I livelli di miR-1298 e BMP7 sono stati quantificati utilizzando la chimica SYBR Green. U6 e GAPDH sono stati utilizzati come controlli endogeni per la normalizzazione del miRNA e dell'mRNA, rispettivamente. L'espressione relativa è stata calcolata utilizzando il metodo comparativo 2−ΔΔCt. Le sequenze dei primer (5′–3′) erano le seguenti: miR-1298-forward: TCGGCAGGTTCATTCGGCTGTC, reverse: CTCAACTGGTGTCGTGGA; U6-forward: CTCGCTTCGGCAGCACA, reverse: AACGCTTCACGAATTTGCGT; BMP7-forward: CAAGAACCAGGAAGCCCTGC, reverse: TTCTTACAGGCCTGCCTCTGG; e GAPDH-forward: GACATGCCGCCTGGAGAAAC, reverse: AGCCCAGGATGCCCTTTAGT. Le condizioni di reazione per la qPCR erano le seguenti: 95 °C per 2 min, 35 cicli di 95 °C per 30 s, 60 °C per 30 s e 72 °C per 60 s. I template di cDNA sono stati diluiti in serie (5 volte) per generare curve standard. L'efficienza di amplificazione E è stata calcolata utilizzando la formula: E = (10-1/pendenza-1) x 100%. L'efficienza di amplificazione dei primer è stata calcolata come segue: EmiR-1298 = 102,1%, EBMP7 = 96,3%, EGAPDH = 100,3%, EU6 = 99,8%. Tutti i primer rientravano nell'intervallo di efficienza accettabile (90–110%). Tutti gli esperimenti di RT-qPCR includevano tre replicati biologici indipendenti, ciascuno con 3 replicati tecnici. La stabilità di U6 e GAPDH è stata valutata utilizzando l'algoritmo geNorm. I valori M di entrambi i geni erano al di sotto della soglia raccomandata di 1,5, confermandone l'idoneità.
Saggio con kit per il conteggio delle cellule-8 (CCK-8)
Le cellule SW480 e HCT-116 sono state seminate in piastre a 96 pozzetti a una densità di 2 x 10³ cellule/pozzetto in 100 µL di DMEM completo e incubate per 24 h. A 48 h dal transfezione, le piastre sono state incubate per 1 h a 37 °C. L'assorbanza a 450 nm è stata misurata utilizzando un lettore per micropiastre. Sono stati utilizzati sei pozzetti replicati per gruppo, e come bianco è stato sottratto un campione contenente mezzo più CCK-8 senza cellule.
Citometria a flusso
L'apoptosi è stata valutata mediante citometria a flusso utilizzando un Kit per il rilevamento dell'apoptosi Annexin V-FITC/PI. A 48 h dal transfezionamento, le cellule SW480 e HCT-116 sono state raccolte mediante tripsinizzazione, lavate due volte con PBS freddo e sospese nel buffer di legame 1x a una concentrazione di 1 x 10⁶ cellule/mL. Aliquote di 1 x 10⁵ cellule sono state trasferite in provette FACS, colorate con 5 µL di Annexin V-FITC e 5 µL di PI per 15 min a temperatura ambiente al buio, quindi diluite con 400 µL di buffer di legame prima dell'acquisizione. Sono stati inclusi controlli negativi non colorati, singolarmente colorati e trattati con staurosporina come controlli positivi, per la compensazione e l'impostazione delle finestre di analisi. I dati sono stati analizzati utilizzando il software FlowJo (FlowJo 10.2).
Migrazione e invasione cellulare
La migrazione e l'invasione cellulare sono state valutate utilizzando camere Transwell a 24 pozzetti con membrane PET da 8 µm di diametro dei pori. Per i saggi di invasione, la membrana superiore è stata pre-ricoperta con 50 µL di Matrigel a 37 °C per 2 h e reidratata con DMEM privo di siero per 30 min prima della semina; nei saggi di migrazione questo passaggio di rivestimento è stato omesso. Le cellule SW480 e HCT-116 trasfettate sono state sottoposte a siero privazione in DMEM senza siero per 12 h, dopodiché 2 x 10⁴ cellule in 100 µL di DMEM senza siero contenente lo 0,1% di BSA sono state seminate nel compartimento superiore. Il compartimento inferiore è stato riempito con 600 µL di DMEM contenente il 10% di FBS come chemiotattrante. Dopo 24 h (migrazione) o 48 h (invasione) a 37 °C, le cellule non migrate sulla superficie superiore sono state rimosse con un bastoncino di cotone. Le cellule sulla superficie inferiore sono state fissate con paraformaldeide al 4% per 15 min, colorate con violetto cristallo allo 0,1% per 20 min, risciacquate e lasciate asciugare all'aria. Per ogni membrana, cinque campi scelti casualmente sono stati acquisiti a 200x di ingrandimento mediante microscopio invertito e contati manualmente da due osservatori indipendenti.
Western blot
Le proteine cellulari totali sono state estratte omogeneizzando le cellule in un buffer di lisi RIPA integrato con una miscela di inibitori della proteasi. Le concentrazioni proteiche sono state determinate utilizzando un Kit per saggio proteico BCA. Quantità equivalenti di lisati proteici (50 µg) sono state separate mediante elettroforesi su gel di poliacrilamide al 10% in presenza di SDS e successivamente trasferite su membrane in PVDF. Dopo il blocco dei siti di legame non specifici con BSA al 2%, le membrane sono state incubate con anticorpi primari diretti contro BMP7 (1:1.000) e GAPDH (1:2.000) per 90 minuti a 37 °C. Dopo tre lavaggi con PBST, le membrane sono state incubate con un anticorpo secondario coniugato con perossidasi di rafano (HRP). Le bande proteiche sono state visualizzate utilizzando un reagente chemiluminescente ECL.
Analisi statistica
I dati sono stati analizzati utilizzando SPSS 27.0. Tutti i valori sono stati riportati come media ± deviazione standard (SD), salvo indicazione contraria. Il test di Shapiro-Wilk è stato applicato per verificare la distribuzione normale. Le differenze tra gruppi sono state determinate mediante un test t di Student non appaiato a due code. Il confronto dell'espressione di miR-1298 tra tessuti tumorali del CRC e tessuti adiacenti non cancerosi è stato effettuato utilizzando un test t di Student appaiato. Prima di eseguire il test parametrico, il test di Levene è stato utilizzato per valutare l'omogeneità delle varianze. Per i confronti tra più gruppi, i dati parametrici sono stati analizzati mediante ANOVA a un fattore, con il test HSD di Tukey per confronti a coppie post hoc. La correlazione tra miR-1298 e BMP7 nei tessuti del CRC è stata valutata mediante analisi di correlazione di Pearson. Un valore di p < 0,05 è stato considerato statisticamente significativo.
Risultati
miR-1298 era notevolmente ridotto nel CRC
Nei tessuti di CRC, i livelli di miR-1298 erano inferiori rispetto ai tessuti non tumorali adiacenti (Figura 1A). L'analisi della metastasi ai linfonodi ha rivelato che i livelli di miR-1298 erano più bassi nei pazienti con metastasi linfonodale rispetto a quelli senza metastasi linfonodale (Figura 1B). Nei pazienti con CRC il cui tumore aveva dimensioni > 5 cm, miR-1298 era significativamente più basso rispetto ai pazienti con tumore di dimensioni ≤ 5 cm (p = 0.017; Figura 1C). miR-1298 diminuiva con l'avanzare dello stadio tumorale, con differenze significative tra lo stadio 1 e lo stadio 3 (p = 0.047) e tra lo stadio 1 e lo stadio 4 (p = 0.009; Figura 1D). Nel siero dei pazienti con CRC, miR-1298 era notevolmente ridotto (Figura 1E), e l'analisi della curva ROC ha mostrato un AUC di 0.889, con una sensibilità del 78,82% e una specificità dell'83,10% (Figura 1F).
Sulla base del livello mediano di espressione di miR-1298, i pazienti con CRC sono stati suddivisi in gruppi a bassa e alta espressione. Nei pazienti con CRC, miR-1298 era strettamente associato allo stadio TNM (p < 0,001), dimensioni del tumore (p = 0,003), metastasi linfonodali (p = 0,003) e differenziazione del tumore (p = 0,035). Tuttavia, miR-1298 non era associato all'età (p = 0,832) o sesso (p = 0.165) (Tabella 1). L'analisi di Kaplan-Meier ha mostrato che i pazienti con carcinoma del colon-retto (CRC) con bassa espressione di miR-1298 presentavano una sopravvivenza complessiva più breve rispetto a quelli con alta espressione di miR-1298 (log-rank p = 0.039; Figura 1G). L'analisi di regressione di Cox ha indicato che una ridotta espressione di miR-1298 potrebbe rappresentare un possibile indicatore prognostico nei pazienti con carcinoma del colon-retto (CRC) (p = 0.035, Tabella 2).
miR-1298 ha soppresso la proliferazione e ha promosso l'apoptosi nelle cellule di CRC
Nelle cellule SW480, la trasfezione con il mimico o l'inibitore di miR-1298 ha modificato efficacemente l'espressione di miR-1298, con una differenza significativa tra i gruppi inibitore NC e inibitore di miR-1298 (p = 0,005; Figura 2A). L'overespressione di miR-1298 ha ridotto la vitalità cellulare e ha promosso l'apoptosi, mentre la soppressione di miR-1298 ha aumentato la vitalità cellulare e ridotto l'apoptosi; l'apoptosi differiva in modo significativo tra i gruppi inibitore NC e inibitore di miR-1298 (p = 0,008; Figura 2B,C). Nelle cellule HCT-116, la trasfezione ha modificato in modo analogo l'espressione di miR-1298 (p = 0,002; Figura 2D), e sono state osservate differenze significative tra i gruppi inibitore NC e inibitore di miR-1298 per quanto riguarda la vitalità cellulare (p = 0,007; Figura 2E) e l'apoptosi (p = 0,005; Figura 2F).
miR-1298 ha soppresso la migrazione e l'invasione delle cellule CRC
L'overespressione di miR-1298 ha ridotto il numero di cellule SW480 e HCT-116 migrate e invasive, mentre l'inibizione di miR-1298 ha aumentato la migrazione e l'invasione cellulare (Figura 3A–D). Nelle cellule SW480, il numero di cellule invasive era sostanzialmente inferiore nel gruppo trattato con il mimico di miR-1298 rispetto al gruppo con mimico NC (p = 0.004; Figura 3B).
BMP7 era un bersaglio di miR-1298 nel CRC
TargetScan ha indicato che BMP7 potrebbe essere un bersaglio di miR-1298 (Figura 4A). Saggi con reporter a doppia luciferasi in cellule SW480 e HCT-116 hanno mostrato che la sovraespressione o l'inibizione di miR-1298 modificava l'attività luciferasica del reporter BMP7 Wt, ma non quella del reporter BMP7 Mut (Figura 4B,C). Nelle cellule HCT-116, l'attività luciferasica del reporter BMP7 Wt era significativamente inferiore nel gruppo con mimico di miR-1298 rispetto al gruppo con mimico NC (p = 0,002; Figura 4C). Nei tessuti di CRC, BMP7 era notevolmente aumentato (Figura 4D). Inoltre, BMP7 e miR-1298 mostravano una correlazione negativa (Figura 4E). In cellule SW480 e HCT-116, la sovraespressione di miR-1298 inibiva BMP7 a livello sia di RNA che di proteina, mentre l'inibizione di miR-1298 aumentava l'espressione di BMP7 (Figura 4F,G).
miR-1298 potrebbe esercitare un effetto soppressore del tumore nel CRC attraverso la regolazione di BMP7
Nelle cellule SW480, è stata confermata una modulazione efficace dell'espressione di BMP7 (Figura 5A). L'overespressione di BMP7 ha parzialmente invertito la riduzione della vitalità cellulare e l'aumento dell'apoptosi indotti dall'overespressione di miR-1298, mentre il silenziamento di BMP7 ha ulteriormente ridotto la vitalità cellulare e aumentato l'apoptosi (Figura 5B,C). Nelle cellule HCT-116, è stata confermata anche una modulazione efficace dell'espressione di BMP7 (Figura 5D), con effetti corrispondenti sulla vitalità cellulare e sull'apoptosi (Figura 5E,F). Nelle cellule SW480, l'espressione di BMP7 e la vitalità cellulare erano significativamente più basse nel gruppo miR-1298 mimic + si-BMP7 rispetto al gruppo miR-1298 mimic + si-NC (p = 0,002 e p = 0,005, rispettivamente; Figura 5A,B). L'apoptosi differiva significativamente tra i gruppi miR-1298 mimic + OE-BMP7 e miR-1298 mimic + OE-NC (p = 0,001; Figura 5C). Nelle cellule HCT-116, la vitalità cellulare era significativamente più bassa nel gruppo miR-1298 mimic + si-BMP7 rispetto al gruppo miR-1298 mimic + si-NC (p = 0,002; Figura 5E). L'elevata espressione di BMP7 ha parzialmente invertito gli effetti inibitori di miR-1298 sulla migrazione e sull'invasione delle cellule del CRC, mentre il silenziamento di BMP7 ha potenziato tali effetti inibitori (Figura 6A–D). Nelle cellule SW480, il silenziamento di BMP7 ha ridotto significativamente il numero di cellule migrate e invasive rispetto al gruppo si-NC (p = 0,003 e p = 0,020, rispettivamente; Figura 6A,B). Nelle cellule HCT-116, l'overespressione di BMP7 ha modificato significativamente il numero di cellule migrate rispetto al gruppo OE-NC (p = 0,030; Figura 6C), mentre il silenziamento di BMP7 ha ridotto significativamente il numero di cellule invasive rispetto al gruppo si-NC (p = 0,007; Figura 6D).
DISPONIBILITÀ DEI DATI:
I dati a supporto dei risultati di questo studio sono forniti come File Supplementare.
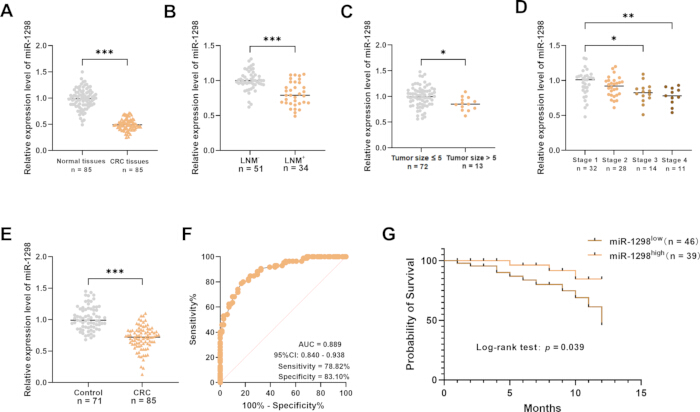
Figura 1: Espressione di miR-1298 nei tessuti CRC. (A) Espressione relativa di miR-1298 nei tessuti CRC e nei tessuti adiacenti non cancerosi. (B) Espressione relativa di miR-1298 nei tessuti CRC di pazienti con (LNM+) e senza (LNM−) metastasi linfonodali. (C) Espressione relativa di miR-1298 nei tessuti CRC in base alle dimensioni del tumore. (D) Espressione relativa di miR-1298 nei tessuti CRC in base allo stadio del tumore. (E) Espressione relativa di miR-1298 sierica in pazienti con CRC e controlli sani. (F) Curva caratteristica operativa del ricevitore (ROC) per miR-1298 sierica nel distinguere pazienti con CRC da controlli sani. (G) Curve di sopravvivenza globale di Kaplan–Meier per pazienti con CRC in base a bassa e alta espressione di miR-1298. *p < 0,05; **p < 0,01; ***p < 0,001. Cliccare qui per visualizzare una versione ingrandita di questa figura.
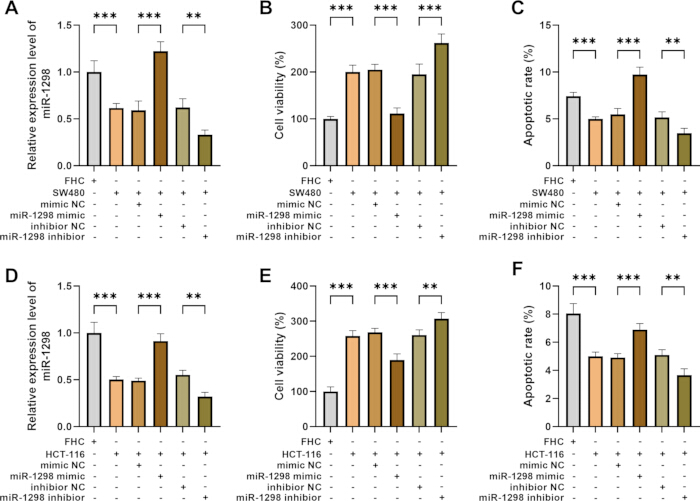
Figura 2: Effetti di miR-1298 sulla proliferazione e sull'apoptosi delle cellule CRC. (A) Espressione relativa di miR-1298 nelle cellule FHC e SW480 dopo la trasfezione con miR-1298 mimic, mimic NC, inibitore di miR-1298 o inibitore NC. (B) Vitalità cellulare delle cellule SW480 dopo sovraespressione o inibizione di miR-1298. (C) Apoptosi delle cellule SW480 dopo sovraespressione o inibizione di miR-1298. (D) Espressione relativa di miR-1298 nelle cellule FHC e HCT-116 dopo la trasfezione con miR-1298 mimic, mimic NC, inibitore di miR-1298 o inibitore NC. (E) Vitalità cellulare delle cellule HCT-116 dopo sovraespressione o inibizione di miR-1298. (F) Apoptosi delle cellule HCT-116 dopo sovraespressione o inibizione di miR-1298. I dati sono espressi come media ± DS. Le barre di errore rappresentano la DS. **p < 0,01; ***p < 0,001. Cliccare qui per visualizzare una versione ingrandita di questa figura.
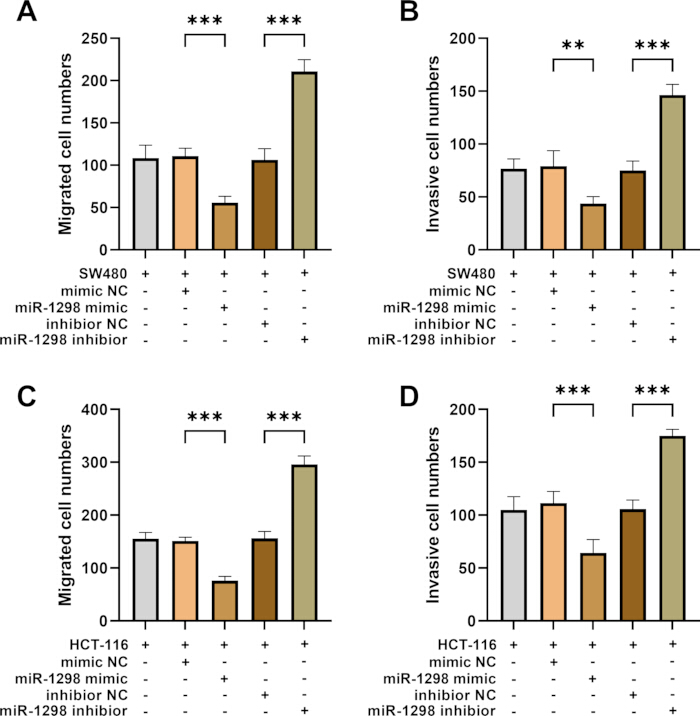
Figura 3: Effetti di miR-1298 sulla migrazione e sull'invasione di CRC cellule (ANumero di cellule migrate nelle cellule SW480 dopo trasfezione con mimico di miR-1298, mimico NC, inibitore di miR-1298 o inibitore NC.BNumero di cellule invasive nelle cellule SW480 dopo trasfezione con mimico di miR-1298, mimico NC, inibitore di miR-1298 o inibitore NC.CNumero di cellule migrate nelle cellule HCT-116 dopo trasfezione con mimico di miR-1298, mimico NC, inibitore di miR-1298 o inibitore NC.DNumero di cellule invasive nelle cellule HCT-116 dopo trasfezione con miR-1298 mimic, mimic NC, inibitore di miR-1298 o inibitore NC. I dati sono espressi come media ± SD. Le barre di errore rappresentano la DS.p < 0.01; ***p < 0.001. Cliccare qui per visualizzare una versione ingrandita di questa figura.
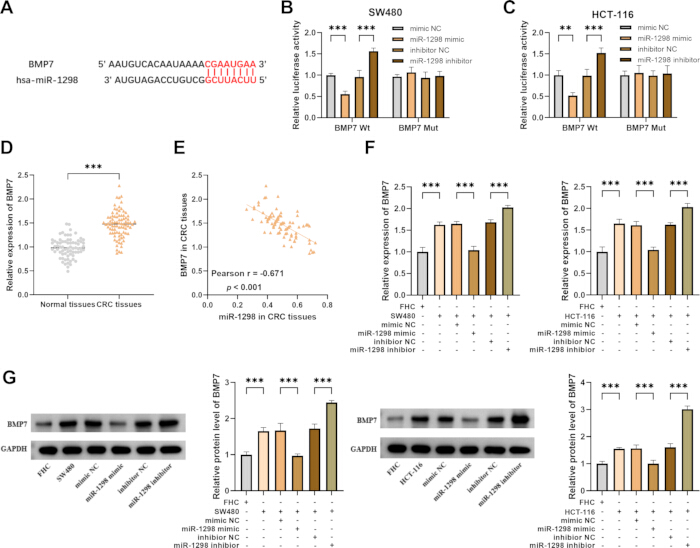
Figura 4: Relazione di targeting tra miR-1298 e BMP7. (A) Sito di legame previsto tra miR-1298 e la regione 3′ UTR di BMP7. (B) Attività relativa della luciferasi dei reporter BMP7 Wt e BMP7 Mut dopo sovraespressione o inibizione di miR-1298 in cellule SW480. (C) Attività relativa della luciferasi dei reporter BMP7 Wt e BMP7 Mut dopo sovraespressione o inibizione di miR-1298 in cellule HCT-116. (D) Espressione relativa di BMP7 nei tessuti CRC e nei tessuti adiacenti non cancerosi. (E) Correlazione tra l'espressione di miR-1298 e quella di BMP7 nei tessuti CRC. (F) Espressione relativa di BMP7 in cellule SW480 e HCT-116 dopo trasfezione con mimico di miR-1298, mimico NC, inibitore di miR-1298 o inibitore NC. (G) Livelli proteici relativi di BMP7 in cellule SW480 e HCT-116 dopo trasfezione con mimico di miR-1298, mimico NC, inibitore di miR-1298 o inibitore NC. **p < 0.01; ***p < 0.001. Cliccare qui per visualizzare una versione ingrandita di questa figura.
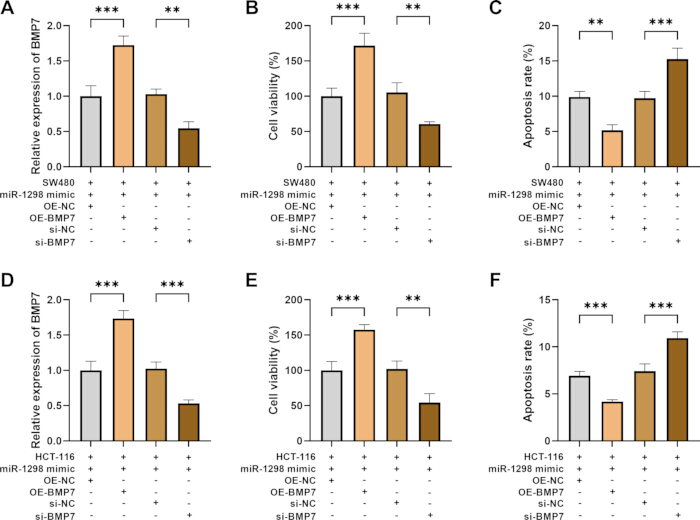
Figura 5: Co-regolazione di miR-1298 e BMP7 sulla proliferazione e sull'apoptosi nelle cellule CRC. Le cellule SW480 e HCT-116 sono state co-trasfettate con il mimico di miR-1298 e OE-NC, OE-BMP7, si-NC o si-BMP7. (A) Espressione relativa di BMP7 nelle cellule SW480. (B) Vitalità cellulare nelle cellule SW480. (C) Apoptosi nelle cellule SW480. (D) Espressione relativa di BMP7 nelle cellule HCT-116. (E) Vitalità cellulare nelle cellule HCT-116. (F) Apoptosi nelle cellule HCT-116. I dati sono espressi come media ± DS. Le barre di errore rappresentano la DS. **p < 0,01; ***p < 0,001. Abbreviazioni: OE-NC = controllo negativo per l'overespressione; OE-BMP7 = overespressione di BMP7; si-NC = controllo negativo per l'RNA interferente; si-BMP7 = RNA interferente specifico per BMP7. Cliccare qui per visualizzare una versione ingrandita di questa figura.
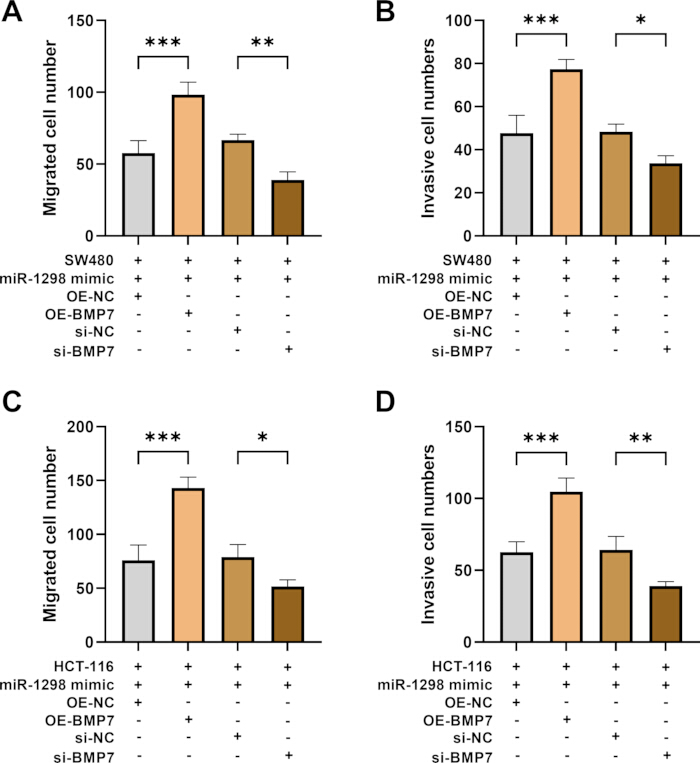
Figura 6: Co-regolazione di miR-1298 e BMP7 sulla migrazione e l'invasione delle cellule CRC. Le cellule SW480 e HCT-116 sono state co-trasfettate con il mimico di miR-1298 e OE-NC, OE-BMP7, si-NC o si-BMP7. (A) Numero di cellule migrate nelle cellule SW480. (B) Numero di cellule invasive nelle cellule SW480. (C) Numero di cellule migrate nelle cellule HCT-116. (D) Numero di cellule invasive nelle cellule HCT-116. I dati sono espressi come media ± DS. Le barre di errore rappresentano la DS. *p < 0,05; **p < 0,01; ***p < 0,001. Abbreviazioni: OE-NC = controllo negativo per l'overespressione; OE-BMP7 = overespressione di BMP7; si-NC = controllo negativo per RNA interferente; si-BMP7 = RNA interferente mirato a BMP7. Cliccare qui per visualizzare una versione ingrandita di questa figura.
| Variabile | Totale | miR-1298 | p valore | |
| (n = 85) | Basso (n = 46) | Alto (n = 39) | ||
| Età (anni) | ||||
| ≤50 | 49 | 27 | 22 | 0.832 |
| >50 | 36 | 19 | 17 | |
| Sesso (maschio/femmina) | ||||
| Maschio | 44 | 27 | 17 | 0.165 |
| Femmina | 41 | 19 | 22 | |
| Stadio TNM | ||||
| 1–2 | 60 | 41 | 19 | <0.001*** |
| 3–4 | 25 | 5 | 20 | |
| Dimensione del tumore (cm) | ||||
| ≤5 | 72 | 34 | 38 | 0.003** |
| >5 | 13 | 12 | 1 | |
| Metastasi linfonodali | ||||
| Sì | 34 | 25 | 9 | 0.003** |
| No | 51 | 21 | 30 | |
| Differenziazione del tumore | ||||
| Basso grado | 53 | 24 | 29 | 0.035* |
| Alto grado | 32 | 22 | 10 | |
Tabella 1: Associazione tra caratteristiche clinicopatologiche e livelli di espressione di miR-1298 in pazienti con CRC. I pazienti sono stati suddivisi in gruppi con espressione bassa (n = 46) e alta (n = 39) di miR-1298, e sono state valutate le associazioni tra l'espressione di miR-1298 e le caratteristiche clinicopatologiche. *p < 0,05; **p < 0,01; ***p < 0,001. Abbreviazioni: CRC = cancro del colon-retto; TNM = tumore, linfonodi, metastasi.
| Variabile | Rapporto di rischio | IC 95% | Valore p | |
| Inferiore | Superiore | |||
| Età | 0.776 | 0.186 | 3.242 | 0.728 |
| Sesso | 0.614 | 0.152 | 2.474 | 0.492 |
| Stadio TNM | 4.62 | 1.181 | 18.078 | 0.028* |
| Dimensione del tumore | 8.078 | 1.833 | 35.587 | 0.006** |
| Metastasi linfonodale | 6.584 | 1.134 | 38.245 | 0.036* |
| Differenziazione del tumore | 6.392 | 1.748 | 23.377 | 0.005** |
| miR-1298 | 0.145 | 0.024 | 0.87 | 0.035* |
Tabella 2: Analisi di regressione di Cox dei fattori prognostici nei pazienti con CRC. È stata eseguita un'analisi di regressione di Cox per valutare l'associazione tra caratteristiche clinicopatologiche e l'espressione di miR-1298 con la prognosi nei pazienti con CRC. *p < 0,05; **p< 0,01. Abbreviazioni: CI = intervallo di confidenza; CRC = cancro del colon-retto; TNM = tumore, linfonodi, metastasi.
File supplementare. Cliccare qui per scaricare questo file.
Discussione
Il carcinoma del colon-retto (CRC) rappresenta un notevole onere per gli individui e la società a causa dell'elevata incidenza e dei tassi di mortalità. Nonostante programmi di screening come la colonscopia, un gran numero di pazienti con CRC viene ancora diagnosticato in stadio avanzato, evidenziando l'urgente necessità di biomarcatori più efficaci e non invasivi per la diagnosi precoce11. Inoltre, la prognosi del CRC metastatico rimane scarsa, con resistenza ai farmaci e recidiva della malattia relativamente comuni12. Pertanto, una comprensione approfondita dei meccanismi molecolari alla base dell'insorgenza, della progressione e della metastatizzazione del CRC è essenziale per sviluppare nuove terapie mirate e superare la resistenza al trattamento. Il CRC è altamente eterogeneo, il che significa che tumori apparentemente simili possono presentare differenze significative nel comportamento13. La ricerca in corso è quindi fondamentale per migliorare la diagnosi precoce, avanzare terapie personalizzate e, in ultima analisi, migliorare la sopravvivenza nei pazienti affetti da CRC.
Anomalie nei miRNA sono coinvolte nello sviluppo, stadio e prognosi del CRC14. Grazie alla loro stabilità nei fluidi corporei, i miRNA presentano anche un notevole potenziale come biomarcatori diagnostici e prognostici non invasivi15. In questo studio, miR-1298 risultava sotto-regolato nei tessuti del CRC, e la sua espressione era associata allo stadio TNM e alla metastasi linfonodale, suggerendo un possibile ruolo nella progressione del CRC. In particolare, il nostro studio è il primo a caratterizzare in modo esaustivo l'espressione di miR-1298 in una coorte clinica di pazienti con CRC e a dimostrarne l'associazione con parametri clinico-patologici chiave, tra cui lo stadio TNM, la metastasi linfonodale e il grado di differenziazione tumorale.
La disregolazione di processi cellulari fondamentali—come la proliferazione, l'apoptosi, la migrazione e l'invasione—è un fattore chiave nello sviluppo e nella mortalità del cancro16. La proliferazione incontrollata consente alle cellule tumorali di subire un'espansione clonale iniziale. Allo stesso tempo, l'evasione dell'apoptosi permette a queste cellule di sopravvivere e accumularsi nonostante danni interni o stress esterni. Questa combinazione porta alla crescita del tumore primario17,18. Pertanto, terapie mirate che agiscono sui fattori molecolari responsabili di tali caratteristiche sono fondamentali per lo sviluppo di trattamenti efficaci per il carcinoma del colon-retto (CRC). Le miRNA contribuiscono allo sviluppo tumorale regolando il fenotipo maligno delle cellule tumorali19. miR-1298 è una di queste miRNA. Ad esempio, la riduzione dell'espressione di miR-1298-5p promuove la progressione del cancro gastrico20. L'aumento dell'espressione di miR-1298 sopprime la proliferazione delle cellule del cancro al seno, induce l'apoptosi e provoca l'arresto del ciclo cellulare21. Inoltre, miR-1298-5p agisce anche da soppressore tumorale nel cancro della vescica22. I risultati di questo studio hanno indicato che l'iperespressione di miR-1298 inibisce la proliferazione, la migrazione e l'invasione e aumenta l'apoptosi, suggerendo che potrebbe sopprimere il fenotipo maligno del CRC. In modo significativo, il nostro studio si è spinto oltre le precedenti segnalazioni valutando sistematicamente i principali fenotipi maligni nelle cellule del CRC, fornendo una caratterizzazione funzionale più completa di miR-1298 in questo specifico tipo di cancro.
Per quanto riguarda i suoi effetti promotori del tumore, BMP7 può favorire la proliferazione delle cellule tumorali regolando vie di segnalazione come PI3K/AKT23. Modulando il livello di fattori anti-apoptotici come Bcl-2, BMP7 conferisce resistenza all'apoptosi nelle cellule tumorali24. Inoltre, BMP7 potenzia principalmente la migrazione e l'invasione delle cellule tumorali inducendo la transizione epitelio-mesenchimale (EMT)25. Il coinvolgimento di BMP7 nella promozione del cancro è in linea con la nostra scoperta secondo cui BMP7 era aumentato nei tessuti del CRC. Un'analisi bioinformatica ha suggerito che BMP7 potrebbe essere un bersaglio di miR-1298 e ha identificato un sito di legame previsto tra miR-1298 e BMP7. Inoltre, esperimenti di recupero hanno indicato che BMP7 agisce probabilmente come mediatore funzionale di miR-1298 nel CRC. Considerando le vie di segnalazione associate a BMP7 nel cancro, abbiamo ulteriormente ipotizzato che l'asse miR-1298/BMP7 regoli le vie di segnalazione a valle (SMAD, PI3K/AKT, EMT) che controllano il comportamento delle cellule del CRC. Fondamentalmente, abbiamo validato sperimentalmente questa previsione mediante saggi con reporter luciferasi, confermando il legame diretto di miR-1298 con la regione 3′ UTR di BMP7. Inoltre, esperimenti di recupero hanno dimostrato che il ripristino di BMP7 inverte parzialmente gli effetti soppressori del tumore indotti dalla sovraespressione di miR-1298, fornendo evidenze funzionali che BMP7 è un mediatore a valle di miR-1298 nel CRC. Per quanto ne sappiamo, questo è il primo studio che identifica l'asse regolatorio miR-1298/BMP7 nel cancro del colon-retto.
Oltre a fornire informazioni meccanicistiche, il nostro studio ha offerto evidenze traslazionali a sostegno dell'utilità clinica di miR-1298. L'analisi della curva ROC ha dimostrato che miR-1298 potrebbe avere valore diagnostico nel carcinoma del colon-retto (CRC). L'analisi della sopravvivenza ha inoltre rivelato che un'espressione bassa di miR-1298 era associata a una prognosi peggiore, e l'analisi di regressione di Cox ha indicato che la riduzione di miR-1298 potrebbe rappresentare un fattore prognostico per il CRC, sostenendo il potenziale valore di miR-1298 come biomarcatore diagnostico e prognostico per il CRC.
Questo studio presenta alcuni limiti. Per quanto riguarda i campioni clinici, poiché lo studio si è basato principalmente su dati provenienti da un singolo centro, sono necessari futuri studi di convalida multicentrici per confermare in modo più solido il ruolo soppressore tumorale del miR-1298 nel CRC. Lo studio si è concentrato su esperimenti cellulari in vitro, che non hanno pienamente catturato la complessità del microambiente tumorale in vivo. L'assenza di modelli di tumore xenotrapiantato è stato uno dei limiti di questo studio. Ricerche future dovrebbero includere una convalida in vivo per chiarire ulteriormente il ruolo dell'asse miR-1298/BMP7 nel microambiente tumorale. Inoltre, esperimenti futuri potrebbero validare ulteriormente le vie a monte e a valle dell'asse miR-1298/BMP7 mediante previsioni di bioinformatica ed esperimenti in vitro e in vivo. Il periodo di follow-up è stato relativamente breve, il che ha limitato la maturità della stima della sopravvivenza a lungo termine. Sebbene siano state effettuate analisi di Kaplan-Meier e di regressione di Cox, i risultati potrebbero essere stati influenzati dal periodo di follow-up relativamente breve. Un follow-up prolungato è attualmente in corso per verificare il valore prognostico del miR-1298 nel CRC. Inoltre, le vie di segnalazione a valle (SMAD, PI3K/AKT, EMT) regolate dall'asse miR-1298/BMP7 nel controllo del comportamento delle cellule del CRC non sono state verificate sperimentalmente in questo studio e richiedono ulteriori indagini. Lo studio non ha effettuato esperimenti di recupero inverso (inibitore del miR-1298 + siRNA per BMP7). Tali esperimenti fornirebbero prove complementari sull'eventualità che il silenziamento di BMP7 possa invertire gli effetti promotori del tumore indotti dall'inibizione del miR-1298. L'assenza di questo tipo di esperimento di recupero indebolisce le nostre conclusioni meccanicistiche. Sono necessari studi futuri che includano questo disegno sperimentale di recupero inverso e una convalida in vivo per stabilire pienamente la funzione dell'asse miR-1298/BMP7 nel CRC.
In sintesi, miR-1298 potrebbe essere associato alla progressione del CRC. Funzionalmente, miR-1298 potrebbe inibire la proliferazione, l'invasione e la migrazione delle cellule del CRC. BMP7 potrebbe essere un mediatore funzionale potenziale di miR-1298 nel CRC.
Dichiarazioni
Gli autori non hanno interessi finanziari o non finanziari rilevanti da dichiarare.
Ringraziamenti
Gli autori dichiarano che non sono stati ricevuti fondi, sovvenzioni o altri tipi di supporto durante la preparazione di questo manoscritto.
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| Soluzione di violetto cristallo allo 0,1% | Sigma-Aldrich | C0775 | |
| Kit SDS-PAGE al 10% | Epizyme | PG112 | |
| Paraformaldeide al 4% | Sigma-Aldrich | P6148 | |
| Piastra per coltura cellulare a 6 pozzetti | Corning | 3516 | |
| Piastra per coltura cellulare a 96 pozzetti | Corning | 3599 | |
| Kit di rilevamento dell'apoptosi Annexina V-FITC/PI | Varie (ad es., Elabscience, BD Biosciences) | E-CK-A211 (Elabscience) o 556547 (BD) | |
| Anticorpo anti-BMP7 | Abcam | ab176707 | |
| Anticorpo anti-GAPDH | Abcam | ab181602 | |
| Kit BCA | Sangon | C503021 | |
| Plasmide reporter del 3‘-UTR mutante di BMP7 | Costruito su misura (clonato in pmirGLO) | Personalizzato | |
| Primer per BMP7 | Sangon Biotech (Shanghai, Cina) | Sintesi personalizzata | |
| Plasmide reporter del 3‘-UTR selvaggio di BMP7 | Costruito su misura (clonato in pmirGLO) | Personalizzato | |
| Cell Counting Kit-8 (CCK-8) | Dojindo (Giappone) | CK04 | |
| Flacone per coltura cellulare (T-25) | Corning | 430639 | |
| DMEM (Dulbecco‘s Modified Eagle Medium) | Invitrogen (Thermo Fisher Scientific) | 11995065 | |
| Siero bovino fetale (FBS) | Invitrogen (Thermo Fisher Scientific) | 16140071 | |
| Linea cellulare FHC (epitelio colonnare umano normale) | ATCC | CRL-1831 | |
| Citometro a flusso | BD Biosciences | FACSCanto™ II | |
| Software FlowJo V10 | FlowJo, LLC | — | |
| Primer per GAPDH (controllo endogeno per mRNA) | Sangon Biotech (Shanghai, Cina) | Sintesi personalizzata | |
| Linea cellulare HCT-116 (carcinoma colorettale umano) | ATCC | CCL-247 | |
| Anticorpo secondario coniugato con HRP | Beyotime | A0208 | |
| Microscopio invertito | Nikon (o equivalente) | Eclipse Ts2 | |
| Reagente per trasfezione Lipofectamin 3000 | Invitrogen (Thermo Fisher Scientific) | L3000015 | |
| Sistema per saggio della luciferasi | Promega | E1500 | |
| Matrice di membrana basale Matrigel | Corning | 354230 | |
| Lettore per micropiastre | BioTek (Agilent) | Synergy H1 | |
| Inibitore di miR-1298 | GenePharma (Shanghai, Cina) | Personalizzato (sintetizzato su ordinazione) | |
| Mimico di miR-1298 | GenePharma (Shanghai, Cina) | Personalizzato (sintetizzato su ordinazione) | |
| Primer per miR-1298 | Sangon Biotech (Shanghai, Cina) | Sintesi personalizzata | |
| Mir-X miRNA First-Strand Synthesis Kit | Takara Bio | 638313 | |
| OE-NC | GenePharma (Shanghai, Cina) | Personalizzato (sintetizzato su ordinazione) | |
| Opti-MEM | Gibco | 31985070 | |
| Buffer di lisi passivo | Promega | E194A | |
| Vettore pcDNA3.1 (controllo con vettore vuoto) | Invitrogen (Thermo Fisher Scientific) | V79020 | |
| Plasmide di sovraespressione pcDNA3.1-BMP7 (OE-BMP7) | GenePharma (Shanghai, Cina) | Personalizzato (sintetizzato su ordinazione) | |
| Vettore di espressione per mirna bersaglio con doppia luciferasi pmirGLO | Promega | E1330 | |
| PMSF | Beyotime | ST506 | |
| PrimeScript RT Reagent Kit (Perfect Real Time) | Takara (Giappone) | RR037A | |
| PrimeScript RT reagent Kit con gDNA Eraser | Takara Bio | RR047A | |
| Cocktail di inibitori delle proteasi | Thermo | 78429 | |
| PVDF | Absin | abs935 | |
| RIPA | Abcam | ab156034 | |
| Provette microcentrifuga senza RNasi (1,5 mL) | Axygen (Corning) | MCT-150-C | |
| Punte per pipetta senza RNasi | Axygen (Corning) | T-300 (10 µL), T-200-Y (200 µL), T-1000-B (1000 µL) | |
| si-BMP7 | GenePharma (Shanghai, Cina) | Personalizzato (sintetizzato su ordinazione) | |
| si-NC | GenePharma (Shanghai, Cina) | Personalizzato (sintetizzato su ordinazione) | |
| Staurosporina (controllo positivo per apoptosi) | Sigma-Aldrich | S5921 | |
| Linea cellulare SW480 (adenocarcinoma colorettale umano) | ATCC | CCL-228 | |
| Master Mix per qPCR con SYBR Green | Takara (Giappone) | RR036A | |
| Camera Transwell (24 pozzetti, dimensione dei pori 8,0 µm) | Corning (Costar) | 3422 | |
| Reagente TRIzol | Invitrogen (Thermo Fisher Scientific) | 15596026 | |
| Primer per U6 (controllo endogeno per miRNA) | Sangon Biotech (Shanghai, Cina) | Sintesi personalizzata |
Riferimenti
- Ali EAM, Altaie AM, Talaat IM, Hamoudi R. Putative role of Tie2-expressing monocytes/macrophages in colorectal cancer progression through enhancement of angiogenesis and metastasis. Cancers (Basel). 2025;17(17):2856.
- Golfinopoulou R, Hatziagapiou K, Mavrikou S, Kintzios S. Unveiling colorectal cancer biomarkers: harnessing biosensor technology for volatile organic compound detection. Sensors (Basel). 2024;24(14):4712.
- Islind AS, et al. Individualized blended care for patients with colorectal cancer: the patient's view on informational support. Support Care Cancer. 2021;29(6):3061-67.
- Sun Y, et al. IGF2BP3 enhances ferroptosis resistance in colon cancer by stabilizing SLC7A11 and is regulated by miR-98-5p. Front Oncol. 2025;15:1576895.
- Du Z, et al. MicroRNA-1298 is downregulated in non-small cell lung cancer and suppresses tumor progression in tumor cells. Diagn Pathol. 2019;14(1):132.
- Qi Y, et al. The dual role of glioma exosomal microRNAs: glioma eliminates tumor suppressor miR-1298-5p via exosomes to promote immunosuppressive effects of MDSCs. Cell Death Dis. 2022;13(5):426.
- Vasan R, et al. High BMP7 expression is associated with poor prognosis in ovarian cancer. J Cell Mol Med. 2023;27(21):3378-87.
- Motoyama K, et al. Clinical significance of BMP7 in human colorectal cancer. Ann Surg Oncol. 2008;15(5):1530-37.
- Shi Q, et al. Analysis of the role of the BMP7-Smad4-Id2 signaling pathway in SW480 colorectal carcinoma cells. Mol Med Rep. 2011;4(4):627-31.
- Yang YR, et al. MicroRNA-137 inhibits cell migration and invasion by targeting bone morphogenetic protein-7 (BMP7) in non-small cell lung cancer cells. Int J Clin Exp Pathol. 2015;8(9):10847-53.
- Yan T, et al. Oxidative stress gene expression in ulcerative colitis: implications for colon cancer biomarker discovery. Sci Rep. 2025;15(1):22641.
- Zhou Y, et al. Interleukin-17F suppressed colon cancer by enhancing caspase 4 mediated pyroptosis of endothelial cells. Sci Rep. 2024;14(1):18363.
- Ku X, et al. In-depth characterization of mass spectrometry-based proteomic profiles revealed novel signature proteins associated with liver metastatic colorectal cancers. Anal Cell Pathol (Amst). 2019;2019:7653230.
- Wang Y, et al. Overexpression of microRNA-216a inhibits autophagy by targeting regulated MAP1S in colorectal cancer. Onco Targets Ther. 2019;12:4621-29.
- Correa-Gallego C, et al. Circulating plasma levels of microRNA-21 and microRNA-221 are potential diagnostic markers for primary intrahepatic cholangiocarcinoma. PLoS One. 2016;11(9):e0163699.
- Qin Y, Zhou Y. Heterogeneous nuclear ribonucleoprotein K in cancer biology and its therapeutic applications (review). Mol Med Rep. 2026;33(5):144.
- Louis L, Chee BS, McAfee M, Nugent M. Electrospun drug-loaded and gene-loaded nanofibres: the holy grail of glioblastoma therapy? Pharmaceutics. 2023;15(6):1649.
- Termini D, Den Hartogh DJ, Jaglanian A, Tsiani E. Curcumin against prostate cancer: current evidence. Biomolecules. 2020;10(11):1536.
- Wu SR, Wu Q, Shi YQ. Recent advances of miRNAs in the development and clinical application of gastric cancer. Chin Med J (Engl). 2020;133(15):1856-67.
- Li X, et al. MiR-1298-5p level downregulation induced by Helicobacter pylori infection inhibits autophagy and promotes gastric cancer development by targeting MAP2K6. Cell Signal. 2022;93:110286.
- Chen W, et al. microRNA-1298 inhibits the malignant behaviors of breast cancer cells via targeting ADAM9. Biosci Rep. 2020;40(12):BSR20201215.
- Zhang X, et al. Circular RNA TAF4B promotes bladder cancer progression by sponging miR-1298-5p and regulating TGFA expression. Front Oncol. 2021;11:643362.
- Leinhauser I, et al. Oncogenic features of the bone morphogenic protein 7 (BMP7) in pheochromocytoma. Oncotarget. 2015;6(36):39111-26.
- Guan J, et al. Bone morphogenetic protein-7 (BMP-7) mediates ischemic preconditioning-induced ischemic tolerance via attenuating apoptosis in rat brain. Biochem Biophys Res Commun. 2013;441(3):560-66.
- Lim M, Chuong CM, Roy-Burman P. PI3K, Erk signaling in BMP7-induced epithelial-mesenchymal transition (EMT) of PC-3 prostate cancer cells in 2- and 3-dimensional cultures. Horm Cancer. 2011;2(5):298-309.