Questo articolo presenta un flusso di lavoro rapido e riproducibile per modellare i deficit di memoria di riconoscimento indotti dalla privazione del sonno nei topi, combinando la privazione del sonno mediante manipolazione delicata, il test di riconoscimento dell'oggetto nuovo e l'analisi dei biomarcatori ippocampali negli stessi animali all'interno di un percorso di 10 giorni, con registrazione strutturata delle interazioni e criteri predeterminati di controllo qualità.
Articolo metodologico
Un flusso di lavoro rapido per la modellizzazione dei deficit della memoria di riconoscimento indotti dalla deprivazione del sonno nei topi utilizzando il riconoscimento di nuovi oggetti e biomarcatori ippocampali
* These authors contributed equally
In questo articolo
Sommario
Abstract
Un sonno inadeguato contribuisce al declino cognitivo e può accelerare i processi neurodegenerativi. Questo articolo presenta un flusso di lavoro rapido e riproducibile per modellare deficit della memoria di riconoscimento indotti dalla privazione del sonno nei topi, collegando gli esiti comportamentali a alterazioni molecolari nell'ippocampo. Il protocollo utilizza un paradigma di privazione del sonno mediante manipolazione delicata della durata di 5 ore, applicato immediatamente dopo una sessione standardizzata di familiarizzazione di 10 minuti con l'oggetto nuovo (NOR). La memoria di riconoscimento viene valutata mediante un test NOR di 5 minuti dopo un intervallo di ritenzione precisamente definito di 5 ore, seguito dal prelievo immediato dell'ippocampo dagli stessi animali per la quantificazione di citochine pro-infiammatorie, tra cui interleuchina-1 beta (IL-1β), interleuchina-6 (IL-6) e fattore di necrosi tumorale-alfa (TNF-α), e di marcatori dello stress ossidativo, tra cui superossido dismutasi (SOD), glutatione perossidasi (GPx) e malondialdeide (MDA). Il principale avanzamento metodologico non risiede nelle singole tecniche comportamentali o biochimiche, che sono ben consolidate, ma nella loro standardizzazione operativa all'interno di un unico flusso di lavoro integrato. Il protocollo richiede un registro strutturato e quantificabile degli interventi di manipolazione delicata, fissa l'addestramento e la privazione a un punto temporale circadiano costante, preserva i collegamenti a livello individuale tra le registrazioni NOR e i campioni di tessuto, e predetermina criteri di controllo qualità e analitici. La procedura è progettata per minimizzare il contenimento fisico e l'esercizio forzato, può essere completata in una breve finestra sperimentale ed è proposta come flusso di lavoro di riferimento che singoli laboratori possono utilizzare per confrontare la propria implementazione della privazione del sonno mediante manipolazione delicata, in attesa di replicazioni indipendenti.
Introduzione
Il sonno è un processo fisiologico fondamentale essenziale per la funzione cerebrale, l'apprendimento e la consolidazione della memoria1. La carenza di sonno è associata a disfunzioni cognitive, disturbi dell'umore e al progresso delle malattie neurodegenerative2. La privazione sperimentale di sonno (SD) nei roditori è ampiamente utilizzata per studiare le conseguenze neurobiologiche della perdita acuta di sonno. L'ippocampo, una regione cerebrale centrale per la memoria dichiarativa e spaziale, è particolarmente vulnerabile alla privazione del sonno3.
Sono disponibili diverse procedure per indurre la privazione del sonno nei roditori. Il metodo modificato delle piattaforme multiple può ridurre efficacemente il sonno a onde rapide, ma potrebbe introdurre uno stress considerevole e affaticamento fisico4. Al contrario, il metodo del "gentle handling" (GH) mantiene la veglia attraverso una lieve stimolazione sensoriale, come il picchiettamento sulla gabbia, la perturbazione della lettiera o la presentazione di materiale nuovo per il nido quando compaiono segni di sonno. Un breve periodo di GH applicato immediatamente dopo l'apprendimento può interferire con la consolidazione della memoria dipendente dall'ippocampo, evitando al contempo molti degli effetti confondenti associati ai paradigmi di privazione prolungata5. Poiché gli interventi in questo protocollo sono innescati da indizi posturali e comportamentali di veglia piuttosto che da rilevazione EEG del sonno REM, il GH così implementato costituisce un metodo consolidato di privazione totale del sonno e non una tecnica specifica per il sonno REM, ed è stato utilizzato in questa forma per diversi decenni6.
Il test di riconoscimento dell'oggetto nuovo (NOR) è un saggio ampiamente utilizzato per valutare la memoria di riconoscimento. Si basa sulla tendenza naturale dei roditori a esplorare un oggetto nuovo più a lungo di uno familiare, senza richiedere ricompense, punizioni o addestramenti intensivi7,8. Si è dimostrato che la privazione acuta di sonno compromette la discriminazione tra oggetti nuovi, fornendo così un indicatore comportamentale efficace del deterioramento della consolidazione della memoria9. A livello molecolare, la mancanza di sonno può indurre neuroinfiammazione e stress ossidativo nell'ippocampo, inclusi aumenti dei livelli di citochine pro-infiammatorie e di prodotti della perossidazione lipidica, insieme a una ridotta capacità antiossidante10,11.
La sfida nell'applicare questo modello non risiede nella disponibilità dei singoli elementi, ma nella mancanza di coerenza operativa tra gli studi. La manipolazione delicata è spesso riportata senza un registro strutturato dell'intensità dell'intervento; gli endpoint comportamentali e molecolari vengono frequentemente raccolti in coorti distinte; e i criteri di controllo qualità per il comportamento esplorativo e la pianificazione della dimensione del campione non sono sempre espliciti. L'obiettivo generale del presente articolo è fornire un flusso di lavoro standardizzato per modellare i deficit di memoria di riconoscimento indotti dalla privazione del sonno, collegando allo stesso tempo gli esiti comportamentali a misurazioni molecolari ippocampali negli stessi animali. Il metodo affronta queste lacune in termini di riproducibilità combinando una finestra di 5 h di manipolazione delicata post-addestramento, un registro dell'intensità dell'intervento, la raccolta di dati comportamentali e di tessuti nella stessa coorte e criteri analitici predeterminati in un unico percorso della durata di 10 giorni (Figura 1). La mancanza di standardizzazione nell'applicazione della manipolazione delicata è stata precedentemente segnalata nella letteratura metodologica sulla ricerca sul sonno6.
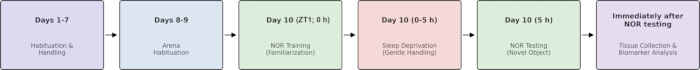
Figura 1. Rappresentazione schematica del flusso di lavoro sperimentale. Il protocollo si estende per 10 giorni, compresi manipolazione e abituazione, seguiti da un giorno critico di test che include una fase di familiarizzazione di 10 min con il NOR, 5 h di privazione del sonno GH, un test NOR di 5 min e il prelievo immediato di tessuto ippocampale dagli stessi animali per l'analisi dei biomarcatori. Cliccare qui per visualizzare una versione ingrandita di questa figura.
Protocollo
Tutte le procedure sugli animali sono state esaminate e approvate dal Comitato per il Benessere e l'Etica degli Animali da Laboratorio di AILIMO (Zhejiang AILIMO Biotechnology Co., Ltd.) su richiesta dell'Ospedale Nanjing Drum Tower (Responsabile Scientifico: Yuan Liu), numero di approvazione AP CODE: ALM202605070, approvato il 7 maggio 2026 (valido per 4 anni), in conformità con le normative istituzionali e nazionali applicabili. Utilizzare topi maschi adulti C57BL/6J (8–12 settimane di età) per il protocollo descritto di seguito.
1. Preparazione e ambientamento dell'animale
- Allevare i topi in condizioni standard di laboratorio a 22°C ± 1°C e umidità del 50%–60% con un ciclo di 12 h di luce e 12 h di buio (accensione luci alle 07:00, definita come ZT0). Fornire libero accesso a mangime standard per roditori e acqua.
- Manipolare ogni topo per 3–5 minuti ogni giorno per almeno 7 giorni consecutivi prima del test.
NOTA: Questa procedura riduce al minimo lo stress indotto dalla manipolazione, che potrebbe alterare il comportamento esplorativo. - Preparare un'arena opaca quadrata per il test NOR di dimensioni 40 cm × 40 cm × 40 cm con pareti non riflettenti. Utilizzare un colore dell'arena che contrasti con il colore del mantello degli animali.
- Scegliere oggetti per il test NOR abbastanza pesanti da impedirne lo spostamento e realizzati in materiale non poroso. Utilizzare oggetti distinguibili per forma e texture, mantenendoli simili per dimensione complessiva.
NOTA: Figura 2 mostra la configurazione di addestramento e di prova. - Nei Giorni 8 e 9, trasferire i topi nella stanza dei test 1 ora prima dell'abituazione. Posizionare ogni topo nell'arena vuota per 10 minuti, quindi riportarlo nella sua gabbia di provenienza.
- Pulire l'arena e gli oggetti con etanolo al 70% tra un animale e l'altro. Lasciare evaporare l'etanolo per circa 3–5 minuti in condizioni normali di ventilazione del laboratorio prima di introdurre l'animale successivo.
ATTENZIONE: L'etanolo è altamente infiammabile. Assicurarsi di avere una ventilazione adeguata e mantenerlo lontano da fonti di accensione.
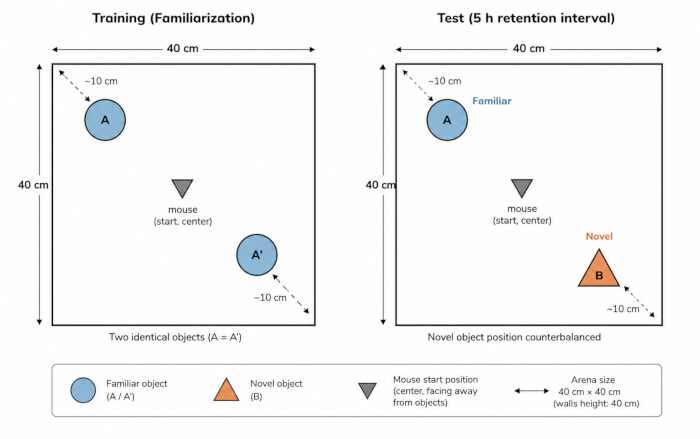
Figura 2. Schema dell'apparato per il riconoscimento di un oggetto nuovo e del disegno sperimentale. Durante la fase di familiarizzazione, posizionare due oggetti identici (A e A′) negli angoli opposti dell'arena. Durante la fase di prova, dopo un intervallo di memorizzazione di 5 h, sostituire uno dei due oggetti familiari con un oggetto nuovo (B). Bilanciare la posizione dell'oggetto nuovo tra la posizione sinistra e destra tra gli animali, assegnando a circa metà degli animali di ciascun gruppo l'oggetto nuovo in ciascuna posizione, al fine di ridurre al minimo il bias spaziale. Cliccare qui per visualizzare una versione ingrandita di questa figura.
2. Allenamento NOR (Familiarizzazione)
- Al giorno 10, iniziare la sessione di allenamento NOR a ZT1 (08:00 secondo l'orario di luce indicato). Mantenere questo orario di inizio per tutti i gruppi al fine di minimizzare le variazioni circadiane.
- Trasferire i topi nella stanza dei test 1 ora prima dell'inizio della sessione di allenamento. Posizionare due oggetti identici (A e A′) negli angoli opposti dell'arena, a circa 10 cm dalle pareti.
- Fissare gli oggetti al pavimento quando necessario.
- Posizionare il topo al centro dell'arena con il muso rivolto lontano dagli oggetti. Consentire al topo di esplorare liberamente per 10 minuti.
- Registrare il comportamento mediante un sistema video di tracciamento dall'alto. Definire l'esplorazione attiva come il dirigere il muso verso un oggetto a una distanza di ≤2 cm, annusare l'oggetto o toccarlo con il muso.
NOTA: Non considerare come esplorazione dell'oggetto il semplice stare seduti sopra o arrampicarsi sull'oggetto senza annusare attivamente. - Registrare e analizzare il comportamento NOR utilizzando EthoVision XT versione 17.5 con una telecamera Basler acA1300-60gm posizionata dall'alto. Configurare il software di tracciamento con una zona di rilevamento del punto del muso di ≤2 cm da ciascun oggetto per quantificare l'esplorazione attiva, in accordo con i criteri definiti al punto 2.5.
- Al termine della sessione di familiarizzazione di 10 minuti, rimuovere immediatamente il topo dall'arena.
- Pulire accuratamente l'arena e gli oggetti con etanolo al 70% prima di introdurre l'animale successivo.
3. Deprivazione del sonno mediante manipolazione delicata
- Prima della sessione di addestramento del Giorno 10, assegnare a ciascun animale un codice identificativo univoco. Mantenere lo stesso codice identificativo durante la registrazione del comportamento e il prelievo dei tessuti.
- Assegnare gli animali ai gruppi SD e NSD in rapporto 1:1 utilizzando numeri casuali generati tramite la funzione CASUALE() di Excel.
- Immediatamente dopo l'addestramento NOR, riportare i topi NSD nelle loro gabbie di origine e lasciarli indisturbati per 5 h. Mantenere gli animali SD e NSD in condizioni ambientali equivalenti e all'interno della stessa finestra temporale circadiana.
- Immediatamente dopo l'addestramento NOR, iniziare la privazione del sonno GH per i topi SD. Mantenere lo stato di veglia per 5 ore consecutive all'interno della gabbia di origine.
- Sorvegliare continuamente gli animali. Intervenire quando un topo assume posture associate al sonno, come arrotolarsi su se stesso, chiudere gli occhi o rimanere immobile per periodi prolungati.
- Applicare stimoli in modo progressivo, iniziando con leggeri colpetti sulla gabbia. Se necessario, perturbare leggermente la lettiera, introdurre un nuovo oggetto pulito come un tubo di carta o toccare delicatamente l'animale con un pennello morbido.
- Evitare il blocco fisico, la locomozione forzata e stimoli avversivi o dolorosi.
- Compilare il registro degli interventi riportato nella Tabella 1 per ciascuna gabbia durante l'intero periodo di 5 h di privazione GH. Registrare il numero approssimativo di interventi per ora, il tipo di intervento predominante e qualsiasi deviazione dal protocollo o problema relativo al benessere animale.
- Utilizzare lo stesso modello di registro degli interventi per tutti i gruppi.
ATTENZIONE: Non utilizzare blocco fisico, esercizio forzato o stimoli dolorosi, poiché questi fattori possono influenzare autonomamente la memoria, lo stress e le risposte infiammatorie.
| Identificativo della gabbia/coorte | H1 | H2 | H3 | H4 | H5 | Tipo(i) dominante(i) di intervento | Deviazione o osservazione sul benessere |
| Identificativo del record | Numero del record H1 | Numero del record H2 | Numero del record H3 | Numero del record H4 | Numero del record H5 | Tap / lettiera / oggetto nuovo / spazzola morbida | Registrare se presente |
Tabella 1: Modello di registro per l'intervento di manipolazione delicata. Registrare l'ID della gabbia o del gruppo, il numero di interventi di manipolazione delicata effettuati ogni ora durante il periodo di privazione del sonno di 5 h (H1–H5), il tipo o i tipi di intervento predominanti e qualsiasi deviazione dal protocollo o osservazione relativa al benessere.
4. Fase del test NOR
- Esattamente 5 h dopo il completamento della sessione di addestramento NOR, iniziare la fase di test NOR per mantenere un intervallo di ritenzione fisso di 5 h.
- Posizionare un oggetto familiare (A) e un oggetto nuovo (B) nell'arena.
- Bilanciare la posizione dell'oggetto nuovo tra gli animali alternandone la collocazione tra la posizione sinistra e destra, in modo che circa metà degli animali in ciascun gruppo riceva l'oggetto nuovo a sinistra e metà a destra.
- Posizionare il topo al centro dell'arena. Consentire al topo di esplorare liberamente per 5 min.
- Registrare la sessione utilizzando lo stesso sistema video di tracciamento dall'alto impiegato durante la fase di familiarizzazione. Applicare la definizione di esplorazione specificata al punto 2.5.
- Pulire l'arena e gli oggetti con etanolo al 70% tra un animale e l'altro.
5. Raccolta dei tessuti e dissezione dell'ippocampo dallo stesso gruppo di animali
- Immediatamente dopo il test NOR, identificare lo stesso animale sottoposto a test comportamentale per la raccolta dei tessuti.
- Sacrificare l'animale per decapitazione senza anestesia, in conformità al protocollo animale approvato, per evitare possibili effetti confondenti degli agenti anestetici sui biomarcatori infiammatori e su quelli dipendenti dalla fosforilazione. Raccogliere il tessuto cerebrale immediatamente dopo l'eutanasia.
- Conservare l'ID univoco di registrazione del comportamento dell'animale su tutte le provette e i documenti, in modo da garantire che ogni campione molecolare rimanga direttamente associato al risultato NOR di quell'animale.
- Estrarre rapidamente il cervello e posizionarlo su una superficie sterile e ghiacciata per la dissezione.
- Separare gli emisferi mediante un taglio medio-sagittale. Dissecare l'ippocampo da ciascun emisfero utilizzando microspatole refrigerate.
- Congelare rapidamente gli ippocampi dissecati in azoto liquido. Conservare i campioni a −80°C fino all'analisi.
ATTENZIONE: L'azoto liquido può causare gravi lesioni da freddo. Indossare idonei dispositivi di protezione personale criogenici.
6. Quantificazione dei biomarcatori dell'ippocampo
- Integrare il buffer di lisi RIPA freddo di ghiaccio con un cocktail combinato di inibitori delle proteasi e delle fosfatasi a una concentrazione di lavoro 1× (10 µL per mL di buffer di lisi, partendo da una soluzione madre 100×).
- Omogeneizzare il tessuto ippocampale in rapporto 1:10 (tessuto:buffer, p/v) nel buffer di lisi RIPA freddo di ghiaccio arricchito (10 µL di buffer di lisi per mg di tessuto). Per una massa tipica di tessuto ippocampale di circa 25–30 mg per emisfero, utilizzare circa 250–300 µL di buffer di lisi per emisfero, oppure circa 500–600 µL per circa 50–60 mg di tessuto ippocampale bilaterale.
- Centrifugare l'omogenato RIPA a 14.000 × g per 15 min a 4°C e raccogliere il soprannatante. Utilizzare il soprannatante per la quantificazione delle proteine totali e per i tre dosaggi ELISA delle citochine.
NOTA: Utilizzare i buffer di omogeneizzazione specifici per ciascun kit per i dosaggi di SOD, GPx e MDA, seguendo le raccomandazioni del produttore per preservare l'attività enzimatica. - Preparare un omogenato ippocampale separato al 10% (p/v) per le misurazioni di SOD, GPx e MDA in rapporto 1:9 (tessuto:buffer), utilizzando il buffer di omogeneizzazione specifico per il kit corrispondente anziché il buffer di lisi RIPA.
- Determinare la concentrazione totale di proteine mediante saggio proteico BCA.
- Quantificare IL-1β, IL-6, TNF-α, SOD, GPx e MDA utilizzando i kit ELISA o biochimici specifici per ciascun bersaglio elencati nella Tabella dei Materiali. Seguire le istruzioni del produttore per ciascun dosaggio.
- Preparare gli standard nel buffer di dosaggio corrispondente. Diluire i campioni in modo che i valori di densità ottica rientrino nella porzione lineare della curva standard.
- Diluire i campioni ippocampali per gli ELISA delle citochine approssimativamente 1:5 con il diluente di dosaggio corrispondente. Regolare la diluizione nell'intervallo 1:2–1:10 secondo necessità per ottenere valori di densità ottica entro la porzione lineare della curva standard.
- Utilizzare direttamente i soprannatanti degli omogenati ippocampali al 10% (p/v) descritti al punto 6.4 per i dosaggi di SOD, GPx e MDA. Non applicare lo schema di diluizione per gli ELISA delle citochine descritto al punto 6.8 a questi tre dosaggi.
- Per gli ELISA di IL-1β, IL-6 e TNF-α, aggiungere 100 µL di standard o di campione ippocampale opportunamente diluito per pozzetto in duplicato e incubare a 37°C per 90 min. Aggiungere 100 µL di anticorpo rivelatore biotinilato e incubare a 37°C per 60 min.
- Aggiungere 100 µL di coniugato HRP in ogni pozzetto dell'ELISA per citochine e incubare a 37°C per 30 min. Sviluppare con substrato TMB a 37°C al buio per circa 15 min.
- Per il dosaggio della SOD, mescolare 20 µL di soprannatante dell'omogenato ippocampale con 20 µL di soluzione enzimatica di lavoro e 200 µL di soluzione substrato. Incubare a 37°C per 20 min e misurare l'assorbanza a 450 nm.
- Per il dosaggio della GPx, combinare 200 µL di soprannatante dell'omogenato ippocampale con la miscela di reazione contenente GSH e incubare a 37°C per 5 min. Arrestare la reazione e centrifugare la miscela a 3500 × g per 10 min a 4°C. Sottoporre il soprannatante allo sviluppo del colore per circa 15 min e misurare l'assorbanza a 412 nm utilizzando 200 µL del soprannatante di reazione.
- Per il dosaggio del MDA, mescolare 100 µL di soprannatante dell'omogenato ippocampale con 1,0 mL di reagente di lavoro per MDA e incubare in bagno d'acqua a 95°C per 40 min. Raffreddare e centrifugare la miscela. Trasferire circa 250 µL del soprannatante in una micropiastra e misurare l'assorbanza a 532 nm.
- Per gli ELISA delle citochine, leggere l'assorbanza alla lunghezza d'onda specificata dal kit, tipicamente 450 nm, utilizzando la correzione con lunghezza d'onda di riferimento quando disponibile.
- Generare una curva standard utilizzando un modello appropriato, come la regressione logistica a quattro parametri. Normalizzare ogni misurazione del biomarcatore al contenuto totale di proteine.
- Esprimere le concentrazioni delle citochine in pg/mg di proteina, le attività degli enzimi antiossidanti in U/mg di proteina e il MDA in nmol/mg di proteina, laddove compatibile con il kit selezionato.
7. Analisi dei dati e controllo di qualità
- Estrarre il tempo di esplorazione rivolto verso l'oggetto familiare (Tfamiliare) e l'oggetto nuovo (Tnuovo) durante la fase del test NOR.
- Calcolare l'indice di discriminazione (DI) come segue:
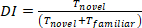 .
NOTA: Un valore di DI superiore a 0,5 indica una preferenza per l'oggetto nuovo. - Escludere un animale dall'analisi NOR quando il tempo totale di esplorazione degli oggetti (Tnuovo + Tfamiliare) è inferiore a 10 s. Applicare questo criterio prima dell'analisi a livello di gruppo e riportare tutte le esclusioni.
- Valutare la normalità per ciascun gruppo mediante il test di Shapiro–Wilk e l'omogeneità della varianza mediante il test di Levene. Per ogni gruppo, confrontare il valore di DI con il livello di casualità 0,5 utilizzando un test t a un campione bilaterale; se l'assunzione di normalità non è soddisfatta, utilizzare invece il test dei ranghi con segno di Wilcoxon a un campione rispetto a 0,5.
- Impostare il valore alfa a 0,05 per tutti i test statistici, salvo diversamente specificato.
- Confrontare il DI tra gruppi indipendenti NSD e SD utilizzando un test t non appaiato bilaterale quando sono soddisfatte le assunzioni di normalità e di omogeneità della varianza. In caso contrario, utilizzare il test U di Mann–Whitney.
- Analizzare il tempo di esplorazione di oggetto familiare rispetto a oggetto nuovo mediante un'analisi della varianza a due vie con misure ripetute, con Gruppo e Tipo di Oggetto come fattori. Eseguire confronti post hoc a coppie corretti con il metodo di Sidak e riportare gli intervalli di confidenza al 95% insieme a tutte le stime di confronto tra gruppi.
- Confrontare ciascun biomarcatore ippocampale tra gruppi indipendenti NSD e SD utilizzando un test t non appaiato bilaterale quando sono soddisfatte le assunzioni di normalità e di omogeneità della varianza. In caso contrario, utilizzare il test U di Mann–Whitney.
- Quando si valutano più biomarcatori provenienti dallo stesso coorte, controllare il tasso di falsa scoperta (FDR) attraverso l'intero pannello di biomarcatori utilizzando la procedura di Benjamini–Hochberg. Riportare sia i valori p nominali sia quelli aggiustati per FDR.
- Eseguire l'analisi a priori della potenza statistica utilizzando G*Power versione 3.1 per un confronto bilaterale tra campioni indipendenti, considerando l'indice di discriminazione NOR come esito primario. Basare l'effetto atteso su studi precedentemente pubblicati che dimostrano un marcato deficit nella preferenza per l'oggetto nuovo in seguito alla privazione del sonno dopo l'apprendimento.
- Eseguire l'analisi a priori della potenza statistica utilizzando una dimensione dell'effetto standardizzata di Cohen’s d = 1,35, un alfa bilaterale di 0,05, una potenza dell'80% e un rapporto di assegnazione 1:1. Questi parametri portano a una dimensione minima calcolata del campione di 10 animali per gruppo.
NOTA: La dimensione dell'effetto è stata stimata da dati precedentemente pubblicati relativi al riconoscimento di oggetti9. Palchykova et al. hanno riportato un effetto di gruppo significativo sulla durata dell'esplorazione dell'oggetto nuovo durante la fase di test (F(1,16) = 8,26, p < 0,007) in topi privati del sonno immediatamente dopo l'addestramento rispetto a controlli abbinati per tempo (n = 9 per gruppo), corrispondente a un valore di Cohen’s d ≈ 1,36. È stato quindi adottato un valore di dimensione dell'effetto standardizzata di d = 1,35 per l'analisi a priori della potenza statistica. - Aumentare la dimensione pianificata del campione del 20%, portandola a 12 animali per gruppo (24 animali in totale) per consentire esclusioni comportamentali o tecniche predefinite. Definire a priori come criteri di esclusione: tempo totale di esplorazione <10 s durante il test NOR, esclusioni legate al benessere, registrazioni video non utilizzabili e fallimenti tecnici nei saggi su tessuti o campioni.
- Non escludere animali sulla base della direzione o dell'entità dell'effetto del trattamento osservato.
- Eseguire le analisi statistiche utilizzando Python versione 3.12, SciPy versione 1.17 per i test di ipotesi e il calcolo delle dimensioni dell'effetto, e statsmodels versione 0.14 per la correzione del tasso di falsa scoperta di Benjamini–Hochberg.
- Quando si utilizza questo protocollo per generare un dataset formale, riportare le dimensioni dell'effetto (ad esempio, Cohen's d per i confronti tra gruppi) insieme ai valori p per tutti i test statistici specificati nei passaggi da 7.4 a 7.9.
Risultati
Un'implementazione corretta di questo protocollo dovrebbe produrre un modello coerente di risultati comportamentali e molecolari, senza richiedere l'interpretazione di alcun singolo parametro in isolamento. L'intera sequenza sperimentale è illustrata in Figura 1e l'apparato NOR e il disegno sperimentale sono mostrati in Figura 2. Nel gruppo NSD, i topi dovrebbero mostrare una chiara preferenza per l'oggetto nuovo, riflessa da un indice di discriminazione (DI) superiore al livello di casualità dello 0,5. I topi esposti al protocollo GH a 5 h dall'addestramento dovrebbero mostrare una ridotta preferenza per l'oggetto nuovo e un DI inferiore rispetto ai controlli NSD. Il tempo totale di esplorazione degli oggetti dovrebbe rimanere comparabile tra i gruppi; una riduzione globale dell'esplorazione suggerirebbe la presenza di fattori confondenti legati alla motricità, all'ansia o alla procedura, piuttosto che un deficit selettivo della memoria di riconoscimento. Nella coorte attuale (NSD, n = 12; SD, n = 12, di cui un animale è stato escluso in base alla soglia predeterminata di esplorazione totale indicata al passaggio 7.3, lasciando n = 11 per l'analisi NOR; tale esclusione è stata applicata in modo coerente sia all'analisi dell'indice di discriminazione sia all'analisi del tempo totale di esplorazione riportate di seguito), i topi NSD hanno mostrato un DI medio di 0,70 ± 0,05 (media ± SD), significativamente superiore al livello di casualità di 0,5 (test t per un campione, t(11) = 15.21, p < 0,0001), mentre i topi SD hanno mostrato un DI medio di 0,51 ± 0,05, non significativamente diverso dal caso (t(10) = 0.49, p = 0,638). L'indice DI differiva in modo significativo tra i gruppi (test t non appaiato, t(21) = 9.28, p < 0,0001; di Cohen d = 3,87; differenza media = 0,19, IC 95% [0,15, 0,23]) (Figura 3A). Il tempo totale di esplorazione non differiva in modo significativo tra i gruppi (NSD: 33,5 ± 8,7 s; DS: 29,9 ± 6,2 s t(21) = 1.13, p = 0.272) (Figura 3B), coerente con un effetto selettivo sulla memoria di riconoscimento piuttosto che con una riduzione generalizzata del comportamento esplorativo.
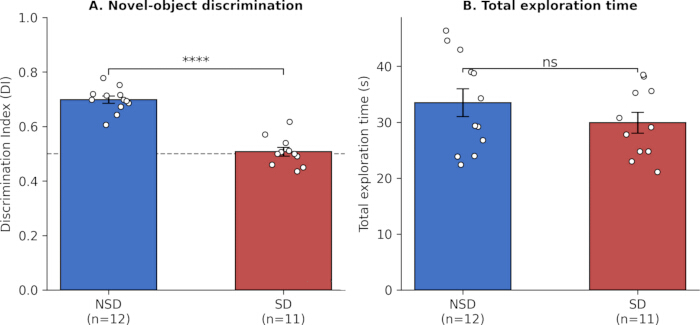
Figura 3. Prestazione nel test di riconoscimento di un oggetto nuovo. (A) Indice di discriminazione (DI) per i gruppi NSD (n = 12) e SD (n = 11; un animale è stato escluso in base alla soglia prestabilita del tempo totale di esplorazione). La linea tratteggiata indica il valore casuale pari a 0,5. (B) Tempo totale di esplorazione degli oggetti durante la fase di test per i gruppi NSD (n = 12) e SD (n = 11; la stessa esclusione del pannello A). Le barre rappresentano la media ± SEM; i cerchi vuoti indicano i singoli animali. ****p < 0,0001; ns, non significativo (test t non appaiato a due code). Cliccare qui per visualizzare una versione ingrandita di questa figura.
Il registro delle interazioni (Tabella 1) dovrebbe mostrare che la GH è stata mantenuta mediante interventi sensoriali lievi e progressivamente intensificati, piuttosto che con restrizioni fisiche o locomozione forzata. Grandi differenze nei conteggi orari delle interazioni tra i gruppi devono indurre a rivedere le condizioni delle gabbie, la coerenza degli osservatori e le pratiche di manipolazione, prima di interpretare eventuali differenze comportamentali. Nei 12 gruppi registrati in questo studio, il numero di interazioni orarie durante la finestra di 5 h di GH è variato da 1 a 6 per ora, consistendo prevalentemente in colpetti sulla gabbia e perturbazione del lettiera, mentre l'uso di spazzole morbide e oggetti nuovi si è verificato con minore frequenza; nessuna gabbia ha richiesto restrizione fisica o locomozione forzata, e non sono state osservate deviazioni in termini di benessere.
Le misure biochimiche raccolte dagli stessi animali dovrebbero fornire un contesto molecolare al fenotipo comportamentale. Ci si aspetta che un modello di SD ben riuscito mostri un profilo coordinato di aumento del carico di citochine pro-infiammatorie nell'ippocampo, ridotta attività degli enzimi antiossidanti e aumento dei marcatori di perossidazione lipidica rispetto ai controlli NSD abbinati. L'associazione di ogni campione tissutale al corrispondente dato NOR consente una valutazione a livello animale della concordanza tra aspetti comportamentali e molecolari, evitando la variabilità di lotto introdotta da coorti comportamentali e biochimiche separate. Nella coorte attuale (NSD, n = 12; SD, n = 12), tutti e sei i biomarcatori ippocampali differivano in modo significativo tra i gruppi nella direzione attesa e sono rimasti significativi anche dopo la correzione FDR di Benjamini–Hochberg applicata all'insieme dei sei marcatori: IL-1β (NSD 43,4 ± 7,5 vs. DS 58,6 ± 5,3 pg/mg di proteina; t(22) = −5,73, nominale p < 0,0001, aggiustato per FDR p < 0.0001, d = −2,34), IL-6 (57,8 ± 8,1 contro 71,8 ± 7,4 pg/mg; t(22) = −4,42, nominale p = 0,0002, aggiustato per FDR p = 0.0002, d = −1,81), TNF-α (40.5 ± 7,8 contro 55,1 ± 7,8 pg/mg; t(22) = −4,60, nominale p = 0,0001, aggiustato per FDR p = 0.0002, d = −1,88), SOD (18,0 ± 2,0 rispetto a 14,0 ± 1,8 U/mg; t(22) = 5,16, nominale p < 0,0001, aggiustato per FDR p < 0.0001, d = 2,11), GPx (13,2 ± 0,9 vs. 10,8 ± 1,4 U/mg; t(22) = 4,92, nominale p < 0,0001, aggiustato per FDR p < 0.0001, d = 2,01) e MDA (3,5 ± 0,3 contro 4,9 ± 0,8 nmol/mg t(22) = −5,59, nominale p < 0,0001, aggiustato per FDR p < 0.0001, d = −2,28). Questi dati sono mostrati in Figura 4. I singoli punti dati mostrati in Figura 3 e Figura 4 sono le misurazioni sperimentali effettive ottenute in questo gruppo, e tutte le medie riportate, le dimensioni dell'effetto, i valori p e gli intervalli di confidenza sono stati calcolati direttamente da questi stessi dati di base.
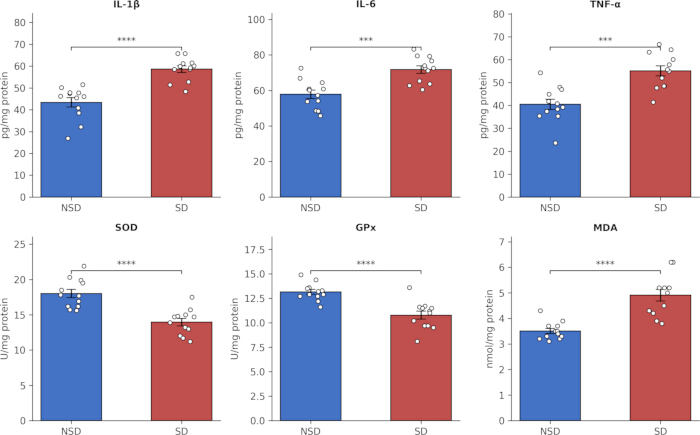
Figura 4. Biomarcatori ippocampali nei topi NSD rispetto ai topi SD. Livelli ippocampali di IL-1β, IL-6 e TNF-α (citochine pro-infiammatorie), SOD e GPx (enzimi antiossidanti) e MDA (marcatore della perossidazione lipidica) in topi NSD (n = 12) e SD (n = 12). Le barre indicano la media ± SEM; i cerchi vuoti rappresentano i singoli animali. I simboli di significatività riflettono i valori p aggiustati per FDR secondo Benjamini–Hochberg nel pannello di sei marcatori. ***p < 0,001 e ****p < 0,0001 dopo correzione FDR (test t non appaiati a due code). Cliccare qui per visualizzare una versione ingrandita di questa figura.
Se i topi NSD non mostrano una preferenza per l'oggetto nuovo, se l'esplorazione totale scende al di sotto della soglia predefinita o se la varianza del biomarcatore è inaspettatamente elevata, verificare l'abituazione, la selezione degli oggetti, la coerenza dell'intervento, l'identificazione del campione e i tempi di lavorazione del tessuto prima di ripetere il gruppo, come riassunto nella Tabella 2. Questi risultati rappresentano esiti sperimentali subottimali che richiedono un'analisi diagnostica prima dell'interpretazione. Nel gruppo attuale, un animale SD (M19) è stato escluso dall'analisi NOR in base alla soglia predeterminata di esplorazione totale (8,7 s; Passaggio 7.3), a dimostrazione del tipo di esito subottimale affrontato da questo criterio; nessun animale NSD ha mancato di mostrare una preferenza per l'oggetto nuovo e nessun gruppo ha mostrato una varianza del biomarcatore inaspettatamente elevata che richiedesse la ripetizione del gruppo in questo dataset.
| Problema | Causa possibile | Soluzione |
| Esplorazione complessiva ridotta nel test NOR | Abituazione insufficiente, ansia elevata o disturbo ambientale eccessivo | Estendere la manipolazione giornaliera; verificare che l’ambiente di prova sia tranquillo e poco illuminato; controllare l’abituazione all’arena prima dell’addestramento. |
| Assenza di preferenza per l’oggetto nuovo nei controlli NSD | Gli oggetti differiscono per preferenza innata o non sono sufficientemente distinti | Valutare preventivamente gli oggetti in animali naïve; utilizzare oggetti con texture/forme chiaramente diverse ma dimensioni e accessibilità equivalenti. |
| Elevata variabilità nei conteggi delle interazioni GH | Soglie di osservazione non uniformi o condizioni delle gabbie inconsistenti | Formare gli osservatori utilizzando gli stessi criteri di veglia; utilizzare lo stesso registro di interventi; standardizzare lettiera, arricchimento della gabbia e condizioni ambientali. |
| Elevata variabilità nelle misurazioni dei biomarcatori | Dissezione ritardata, identità del campione non uniforme o degradazione del campione | Mantenere l’associazione tra comportamento e identità del campione; standardizzare i tempi della dissezione; congelare rapidamente; mantenere i campioni sul ghiaccio durante l’omogeneizzazione. |
| I topi SD mostrano segni evidenti di malessere | Manipolazione troppo intensa | Utilizzare esclusivamente interventi sensoriali lievi; interrompere e seguire le procedure di benessere approvate qualora si osservi malessere. |
Tabella 2: Risoluzione dei problemi. Problemi comuni riscontrati durante il test NOR, la privazione del sonno con manipolazione delicata e il protocollo per i biomarcatori ippocampali, insieme alle possibili cause e alle azioni correttive raccomandate.
Discussione
Questo articolo fornisce un quadro rapido e riproducibile per lo studio dei deficit della memoria di riconoscimento indotti dalla privazione acuta del sonno e delle relative modificazioni molecolari nell'ippocampo. Applicando 5 h di manipolazione delicata immediatamente dopo una fase di apprendimento standardizzata della durata di 10 min, la procedura mira a una finestra di consolidamento post-apprendimento ben definita ed è stata progettata per ridurre il carico fisico associato ai modelli di privazione prolungata o alle procedure basate su movimento forzato4,5. Tuttavia, questa presentazione non include misurazioni dirette degli ormoni dello stress per confermare una risposta fisiologica allo stress inferiore, come discusso più avanti sotto i limiti del metodo.
I fattori tecnici più critici sono l'abituazione, la selezione costante degli oggetti, il tempo fisso dell'intervallo di ritenzione di 5 h e un monitoraggio continuo ma non avversivo durante la GH. Poiché il NOR si basa sull'esplorazione spontanea, un'ansia residua o una scarsa abituazione all'arena possono inibire l'esplorazione degli oggetti e oscurare gli effetti legati alla memoria8. Il criterio di esclusione predefinito relativo al tempo di esplorazione e il registro delle interazioni forniscono controlli pratici di qualità che aiutano a distinguere un saggio comportamentale fallito da un autentico fenotipo di memoria. Quando l'esplorazione complessiva è bassa, la preferenza per l'oggetto nuovo è assente nei controlli NSD, il numero di interventi durante la GH varia notevolmente, le misurazioni dei biomarcatori mostrano un'elevata variabilità o i topi SD mostrano segni evidenti di stress, i ricercatori dovrebbero consultare le corrispondenti procedure di risoluzione dei problemi riportate nella Tabella 2 prima di ripetere o interpretare l'esperimento.
Piuttosto che rappresentare una semplice concatenazione di tecniche precedentemente stabilite, il contributo incrementale di questo protocollo risiede in quattro elementi operativi specifici volti a garantire la riproducibilità piuttosto che la disponibilità delle tecniche. In primo luogo, il registro obbligatorio delle interazioni (Protocollo Passaggio 3 e Tabella 1) introduce un registro quantificabile e confrontabile per standardizzare l'intensità della deprivazione totale di sonno (GH) tra diversi gruppi e studi. La tecnica in sé ha una storia consolidata, mentre il presente protocollo enfatizza la standardizzazione operativa della sua applicazione. Questo approccio è coerente con la consolidata tradizione della GH come tecnica di deprivazione totale del sonno e con la già menzionata mancanza di standardizzazione nella sua applicazione tra diversi studi6. In secondo luogo, il protocollo impone un disegno sperimentale all'interno dello stesso gruppo, in cui gli endpoint comportamentali e molecolari vengono raccolti dagli stessi animali, identificati singolarmente, all'interno di un unico percorso di 10 giorni; questo disegno mira a ridurre la variabilità associata alla raccolta di endpoint comportamentali e biochimici in gruppi separati. In terzo luogo, il protocollo fissa la finestra di addestramento e deprivazione a un punto di riferimento circadiano definito (ZT1, Protocollo Passaggio 2) e richiede che i gruppi NSD e SD siano mantenuti in condizioni di luce equivalenti (Protocollo Passaggio 3), controllando così il timing circadiano all'interno del flusso di lavoro. In quarto luogo, il protocollo specifica a priori criteri di controllo qualità e analitici, inclusa una soglia minima di tempo di esplorazione (Protocollo Passaggio 7), la segnalazione trasparente delle esclusioni, la pianificazione prospettica della potenza statistica, test del valore discriminante (DI) rispetto al livello di casualità 0,5, verifica degli assunti, correzione per confronti multipli tra biomarcatori e la segnalazione dell'ampiezza dell'effetto (effect size). Nel complesso, questi elementi trasformano metodi singolarmente consolidati in un flusso di lavoro esplicito e trasferibile, proposto come un possibile quadro di riferimento rispetto al quale singoli laboratori possono confrontare la propria implementazione, in attesa di adozione indipendente e replicazione, piuttosto che come relazione di un risultato biologico specifico.
Il flusso di lavoro presenta diversi limiti. La tecnica GH è laboriosa e richiede un'attenzione continua da parte dell'operatore, il che ne limita la produttività. Inoltre, GH mantiene lo stato di veglia ma di per sé non quantifica l'architettura del sonno. Applicazioni future potrebbero includere una validazione pilota con EEG/EMG per documentare gli stati di vigilanza e verificare l'entità della privazione di sonno indotta dalla procedura GH prima di applicare il flusso di lavoro a un intero gruppo sperimentale. Applicazioni future potrebbero inoltre includere misurazioni di corticosterone per valutare gli effetti legati allo stress dell'intervento. Tali misurazioni non fanno parte del presente protocollo e pertanto non devono essere interpretate come una validazione effettuata in questo studio. Il test NOR è sensibile alla memoria di riconoscimento ma non valuta in modo esaustivo la navigazione spaziale o la memoria di lavoro; saggi complementari come il labirinto a Y, il labirinto di Barnes o altri compiti a prova singola possono essere aggiunti quando è richiesto un profilo cognitivo più ampio. Il metodo modificato delle piattaforme multiple rappresenta un approccio alternativo per indurre sperimentalmente la privazione di sonno ed è stato utilizzato per quantificare la perdita e il recupero del sonno4; al contrario, il presente flusso di lavoro GH enfatizza un intervento sensoriale lieve senza locomozione forzata. Tuttavia, poiché i marcatori dello stress fisiologico non sono stati misurati direttamente in questo protocollo, non è possibile trarre conclusioni sull'eventuale minore risposta allo stress fisiologico indotta da GH.
Il metodo deve quindi essere considerato piuttosto come una piattaforma standardizzata di ingresso che non come un modello completo di tutte le conseguenze cognitive della privazione del sonno. Il suo valore risiede nel collegamento esplicito tra un intervento controllato di GH post-apprendimento, un output comportamentale progettato per minimizzare il manipolamento fisico rispetto ai paradigmi di locomozione forzata, il prelievo ippocampale nello stesso animale e controlli di qualità trasparenti. Il NOR fornisce un approccio consolidato in un singolo tentativo per valutare la memoria di riconoscimento7,8, e la privazione del sonno è stata precedentemente associata a un deficit nel riconoscimento di oggetti9, alterazioni neuroinfiammatorie nell'ippocampo10 e stress ossidativo ippocampale con deficit di memoria11. Di conseguenza, questo schema può facilitare confronti tra diversi gruppi e fornire una base pratica per studi meccanicistici e per lo screening di interventi volti a mitigare il deterioramento cognitivo associato alla privazione del sonno; lavori precedenti hanno inoltre esaminato interventi mirati al deterioramento cognitivo e alla neuroinfiammazione associati alla privazione del sonno12. In linea con questo obiettivo, il presente contributo si concentra sull'implementazione e sulla standardizzazione di un flusso di lavoro riproducibile, fornendo dati rappresentativi che dimostrano l'efficacia del protocollo; un insieme di dati più completo e un'interpretazione biologica più ampia potranno essere riportati separatamente in lavori futuri.
Dichiarazioni
Gli autori dichiarano di non avere conflitti di interessi.
Ringraziamenti
Questo lavoro è stato sostenuto dal Fondo per la Coltivazione dei Giovani dell'Ospedale Nanjing Drum Tower, dalla Fondazione Nazionale delle Scienze Naturali della Cina (Grant No. 82502706) e dal Programma di Ricerca di Base del Jiangsu (Grant No. BK20250258). Strumenti assistiti dall'intelligenza artificiale sono stati utilizzati durante la preparazione e la revisione del manoscritto, inclusi la stesura e il perfezionamento del testo e la generazione e il perfezionamento di figure schematiche.
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| Etanolo al 70% | Qualsiasi fornitore | N/D | Pulizia dell'arena NOR e degli oggetti |
| Topi maschi adulti C57BL/6J (8–12 settimane) | Zhejiang AILIMO Biotechnology Co., Ltd. | N/D | Animali sperimentali |
| Kit per saggio proteine BCA | Thermo Fisher Scientific (Pierce) | 23225 | Determinazione e normalizzazione delle proteine totali |
| Software per analisi del comportamento | Noldus Information Technology B.V. | EthoVision XT versione 17.5 | Valutazione e analisi dell'esplorazione NOR |
| Centrifuga capace di 14.000 × g a 4 °C | Eppendorf | Centrifuga 5424 R; Cat. 5404000610 | Chiarificazione degli omogeneati ippocampali |
| Tubi di carta puliti | Qualsiasi fornitore | N/D | Intervento di manipolazione delicata |
| Equipaggiamento di protezione personale criogenico | Qualsiasi fornitore | N/D | Manipolazione sicura dell'azoto liquido |
| Kit per saggio della Glutatione Perossidasi | Abcam | ab102530 | Quantificazione della GPx |
| Omogeneizzatore per tessuto ippocampale | IKA-Werke GmbH & Co. KG | T 10 basic ULTRA-TURRAX; Cat. 0003737000 | Omogeneizzazione del tessuto ippocampale in buffer di lisi |
| Azoto liquido | Qualsiasi fornitore | N/D | Congelamento rapido degli ippocampi sezionati |
| Kit per saggio MDA | Sigma-Aldrich | MAK085 | Quantificazione del MDA |
| Lettore di micropiastre | Agilent Technologies / BioTek | BioTek Epoch 2 Microplate Spectrophotometer | Misurazione dell'assorbanza alle lunghezze d'onda specificate per il kit |
| Microspatole | Qualsiasi fornitore | N/D | Sezione ippocampale; utilizzate fredde |
| Kit ELISA per IL-1β nei topi | R&D Systems | MLB00C | Quantificazione dell'IL-1β |
| Kit ELISA per IL-6 nei topi | R&D Systems | M6000B | Quantificazione dell'IL-6 |
| Kit ELISA per TNF-α nei topi | R&D Systems | MTA00B | Quantificazione del TNF-α |
| Insiemi di oggetti A/A′ e B | Qualsiasi fornitore | N/D | Fasi di familiarizzazione e test NOR |
| Arena NOR opaca (40 cm × 40 cm × 40 cm) | Qualsiasi fornitore | N/D | Test comportamentali |
| Sistema di videoregistrazione dall'alto | Basler AG | acA1300-60gm | Videoregistrazione delle sessioni di familiarizzazione e test NOR |
| Cocktail inibitore di proteasi/fosfatasi | Thermo Fisher Scientific (Thermo Scientific) | 78440 | Aggiunto al buffer di lisi a concentrazione lavorativa 1× (10 µL/mL da una soluzione madre 100×) |
| Buffer di lisi RIPA | Thermo Fisher Scientific | 89900 | Omogeneizzazione del tessuto ippocampale |
| Provette adatte per conservazione criogenica | Thermo Fisher Scientific (Nunc) | Nunc CryoTube, 1,8 mL; Cat. 375418 | Mantenimento dell'identificativo specifico per animale e conservazione del tessuto ippocampale sezionato |
| Spazzola morbida | Qualsiasi fornitore | N/D | Intervento di manipolazione delicata |
| Kit per saggio SOD | Sigma-Aldrich | 19160 | Quantificazione della SOD |
| Software statistico e per analisi della potenza | G*Power; Python Software Foundation | G*Power versione 3.1; Python versione 3.12 (SciPy 1.17; statsmodels 0.14) | Analisi della potenza a priori e analisi statistiche descritte nella Sezione 7 del Protocollo |
| Alimento standard per roditori | Jiangsu Xietong Pharmaceutical Bio-engineering Co., Ltd. | Dieta irradiata per mantenimento di ratti/topi; XTI01WC-010 | Alimentazione libera degli animali |
| Freezer a −80 °C | Haier Biomedical | DW-86L626 | Conservazione a lungo termine del tessuto ippocampale congelato rapidamente |
Riferimenti
- Walker MP, Stickgold R. Sleep, memory, and plasticity. Annual Review of Psychology. 2006;57:139-166.
- Musiek ES, Holtzman DM. Mechanisms linking circadian clocks, sleep, and neurodegeneration. Science. 2016;354(6315):1004-1008.
- Havekes R, Abel T. The tired hippocampus: the molecular impact of sleep deprivation on learning and memory. Current Opinion in Neurobiology. 2017;44:33-39.
- Machado RB, Hipólide DC, Benedito-Silva AA, Tufik S. Sleep deprivation induced by the modified multiple platform technique: quantification of sleep loss and recovery. Brain Research. 2004;1004(1-2):45-51.
- Hagewoud R, et al. Sleep deprivation impairs spatial working memory and reduces clearance of hippocampal β-amyloid in rats. Neurobiology of Aging. 2013;34(1):22-30.
- Fenzl T, et al. Fully automated sleep deprivation in mice as a tool in sleep research. J Neurosci Methods. 2007;166(2):229-35.
- Ennaceur A, Delacour J. A new one-trial test for neurobiological studies of memory in rats. 1: Behavioral data. Behavioural Brain Research. 1988;31(1):47-59.
- Leger M, et al. Object recognition test in mice. Nature Protocols. 2013;8(12):2531-2537.
- Palchykova S, et al. Sleep deprivation impairs object recognition in mice. Neurobiology of Learning and Memory. 2006;85(3):263-271.
- Wadhwa M, et al. Sleep deprivation induces spatial memory impairment by altered hippocampus neuroinflammation and microglia activation in rats. Journal of Neuroimmunology. 2011;238(1-2):14-23.
- Silva RH, et al. Role of hippocampal oxidative stress in memory deficits induced by sleep deprivation in mice. Neuropharmacology. 2016;104:1-8.
- Wang Y, et al. Ellagic acid ameliorates sleep deprivation-induced cognitive impairment and neuroinflammation in mice. Aging. 2020;12(10):10327-10340.