Questo studio ha esaminato i livelli di espressione sierica del miR-3619-5p nei pazienti con diabete di tipo 2 e ha indagato il ruolo regolatorio di questa molecola nella funzione delle cellule β pancreatiche. Il miR-3619-5p è sotto-regolato nel DT2 e potrebbe essere coinvolto nella regolazione della funzione delle cellule β pancreatiche attraverso il targeting di MTA3.
Articolo di ricerca
Significato clinico dell'espressione di miR-3619-5p in pazienti con diabete di tipo 2 e la sua regolazione della proliferazione delle cellule β pancreatiche
In questo articolo
Sommario
Abstract
La caratteristica patologica fondamentale del diabete mellito di tipo 2 (T2DM) è il fallimento delle cellule β pancreatiche; pertanto, l'identificazione di biomarcatori circolanti efficaci e di bersagli molecolari che regolano l'omeostasi delle cellule β pancreatiche riveste un'importanza pratica notevole. In quanto molecole regolatrici chiave dell'espressione genica, le miRNA svolgono un ruolo importante nella proliferazione, nell'apoptosi e nella secrezione di insulina delle cellule β pancreatiche. Lo scopo di questo studio è analizzare i profili di espressione e il valore clinico di miR-3619-5p nel siero dei pazienti con T2DM e chiarire il suo ruolo regolatorio nella proliferazione delle cellule β pancreatiche. L'espressione di miR-3619-5p e di MTA3 è stata rilevata mediante RT-qPCR. Le curve ROC sono state utilizzate per valutare le prestazioni diagnostiche. Analisi bioinformatiche e saggi con dual-luciferasi sono stati impiegati per confermare la relazione tra bersaglio e ligando. La proliferazione cellulare è stata misurata mediante saggio CCK-8, mentre l'apoptosi è stata valutata mediante citometria a flusso. I livelli di secrezione di insulina sono stati misurati utilizzando il saggio ELISA. I risultati hanno mostrato che miR-3619-5p e MTA3 sono sottoregolati nei pazienti con T2DM e nelle cellule β pancreatiche. miR-3619-5p potrebbe rappresentare un biomarcatore per la diagnosi del T2DM; il suo sovraespressione promuove la proliferazione cellulare, inibisce l'apoptosi e potenzia la secrezione di insulina. miR-3619-5p riconosce e regola MTA3, e i due sono significativamente positivamente correlati. Il mimico di miR-3619-5p è in grado di invertire il danno causato da si-MTA3 alla funzione delle cellule β pancreatiche. In sintesi, miR-3619-5p è sottoregolato nel T2DM e possiede valore diagnostico. miR-3619-5p potrebbe partecipare alla regolazione della funzione delle cellule β pancreatiche attraverso il targeting di MTA3.
Introduzione
Il diabete mellito di tipo 2 (T2DM), una patologia metabolica cronica, si manifesta principalmente con resistenza all'insulina accompagnata da una progressiva perdita della funzione secretoria dell'insulina, ed è responsabile di oltre l'80% di tutti i casi di diabete1. La sua patogenesi è complessa e coinvolge una combinazione di fattori genetici e ambientali, nonché anomalie nella regolazione cellulare e molecolare2,3. Poiché le cellule β pancreatiche sono le principali cellule responsabili della secrezione di insulina, un declino anomalo della loro capacità proliferativa rappresenta una causa chiave della secrezione insufficiente di insulina nel T2DM4. Attualmente, la diagnosi clinica del T2DM si basa principalmente su indicatori tradizionali come la glicemia e l'emoglobina glicata (HbA1c); tuttavia, la loro sensibilità per lo screening precoce e la previsione dell'evoluzione della malattia è limitata5. È urgente identificare biomarcatori sensibili e specifici, nonché bersagli regolatori chiave, per fornire nuove strategie per la diagnosi e il trattamento preciso del T2DM.
Sotto l'influenza della glucotossicità indotta da iperglicemia prolungata, la proliferazione delle cellule β pancreatiche è limitata e l'apoptosi aumenta, portando a una progressiva perdita della secrezione di insulina dipendente dal glucosio; questo processo rappresenta un fattore chiave che determina il progredire continuo della malattia6,7. Gli microRNA (miRNA) sono coinvolti in diversi processi fisiologici cellulari8 ed esercitano un effetto regolatorio cruciale su processi fisiologici quali la proliferazione delle cellule delle isole pancreatiche, l'apoptosi e la secrezione di insulina9,10. Diversi studi hanno dimostrato che numerosi miRNA sono espressi in modo anomalo nel DT2 e sono strettamente coinvolti nella patogenesi della malattia11,12,13. miR-3619-5p partecipa a processi biologici quali la proliferazione cellulare e l'apoptosi, e le attuali ricerche su di esso si sono concentrate principalmente nel campo dell'oncologia14,15. Un'espressione anomala di miR-3619-5p è stata osservata in tumori maligni, tra cui il carcinoma a cellule squamose della pelle, il cancro del polmone, il cancro del colon-retto e il cancro gastrico, dove regola geni bersaglio influenzando la proliferazione, la metastasi e l'apoptosi delle cellule tumorali16,17,18,19. Tuttavia, permane un chiaro vuoto nella ricerca riguardo alle caratteristiche di espressione clinica, alla rilevanza clinica e ai meccanismi di regolazione della funzione pancreatica di miR-3619-5p nel DT2.
Come membro principale della famiglia MTA, MTA3 media le interazioni proteina-proteina e la regolazione della trascrizione genica, ed è ampiamente coinvolto in processi fisiologici chiave, tra cui la proliferazione cellulare, l'apoptosi e il metabolismo20. Le ricerche attuali su MTA3 si sono concentrate principalmente nell'oncologia21,22,23, con studi limitati che ne indagano il ruolo nelle malattie metaboliche, in particolare nel diabete di tipo 2 (T2DM). Alcuni studi hanno dimostrato che MTA3, come gene associato al diabete, partecipa alla regolazione della fibrosi epatica indotta da iperglicemia24. Questo suggerisce che MTA3 potrebbe essere coinvolto nella progressione del T2DM; tuttavia, se esso sia regolato da miR-3619-5p nel contesto del T2DM rimane da confermare.
In sintesi, le ricerche esistenti su miR-3619-5p si sono finora concentrate principalmente su modelli tumorali e infiammatori; il suo profilo di espressione clinica nel diabete mellito di tipo 2 (T2DM) e il suo ruolo nell'omeostasi delle cellule β pancreatiche e nei disturbi del metabolismo del glucosio rimangono da chiarire. Pertanto, questo studio mira a verificare la relazione tra miR-3619-5p e MTA3 valutando l'espressione e il significato clinico di miR-3619-5p nel siero dei pazienti con T2DM, nonché ad approfondire il suo ruolo regolatorio nella proliferazione delle cellule β pancreatiche, fornendo così una nuova base teorica per la ricerca sulla patogenesi del T2DM e per la diagnosi e il trattamento clinico.
Protocollo
Lo studio è stato approvato dal Comitato Etico dell'Ospedale Popolare di TongzhouBay (Numero di approvazione: 2024122001). Le procedure utilizzate nello studio rispettano i principi della Dichiarazione di Helsinki. Il consenso informato è stato ottenuto da tutti i partecipanti inclusi nello studio. È stato ottenuto il consenso alla pubblicazione per i dati di ogni singola persona inclusa nello studio.
Soggetti della ricerca
Lo studio ha selezionato retrospettivamente 102 pazienti con DMT2 diagnosticati presso il nostro ospedale tra gennaio 2022 e giugno 2023. I partecipanti idonei soddisfacevano i criteri diagnostici per il DMT2, inclusi glucosio ematico a digiuno ≥7,0 mmol/L e glucosio ematico post-prandiale a 2 ore ≥11,1 mmol/L, non avevano ricevuto trattamenti con insulina o farmaci antidiabetici di nuova generazione nei precedenti 3 mesi, non presentavano complicanze gravi a carico di cuore, fegato, reni o altri organi e non avevano storia di tumori maligni, malattie autoimmuni o malattie infettive, e disponevano di cartelle cliniche complete. Sono stati esclusi i pazienti con diabete di tipo 1 o altre forme specifiche di diabete, coloro che si trovavano in stato di stress a causa di infezioni gravi, traumi, interventi chirurgici o altre cause, coloro che avevano assunto glucocorticoidi, immunosoppressori o farmaci simili nei precedenti 3 mesi, e le donne in stato di gravidanza o in allattamento. È stato incluso anche un gruppo di controllo composto da 80 individui sottoposti a esami sanitari di routine presso il nostro ospedale nello stesso periodo.
Raccolta del campione
Tutti i partecipanti allo studio hanno osservato un digiuno di almeno 8–12 h; 5 mL di sangue venoso sono stati raccolti al mattino presto e trasferiti in provette EP prive di RNasi, centrifugati (3000 × g, 10 min) per separare il siero e conservati a -80 °C per utilizzi futuri.
Coltura cellulare e trattamento
La linea cellulare β di isolotti pancreatici di ratto INS-1 è stata coltivata in mezzo RPMI 1640 contenente 10% di FBS e 1% di penicillina-streptomicina. Le cellule INS-1 sono state coltivate in mezzo contenente 25 mM di glucosio per stabilire un modello di danno cellulare indotto da glucosio elevato (HG)25. Nel gruppo non trattato, le cellule INS-1 sono state coltivate in mezzo RPMI 1640 (contenente 11,1 mM di glucosio).
La trasfezione è stata eseguita utilizzando il kit di trasfezione con mimici di miR-3619-5p, controllo negativo per miRNA (miR-NC), si-MTA3 e un controllo negativo (si-NC). I mimici di miR-3619-5p, l'inibitore di miR-3619-5p, l'RNAinterferente (siRNA) e i relativi controlli negativi sono stati tutti acquistati da RiboBio. Concentrazione del mimico di miRNA: 50 nM; concentrazione dell'inibitore di miRNA: 100 nM; concentrazione di siRNA: 50 nM. I successivi esperimenti sono stati effettuati 48 ore dopo la trasfezione. Le sequenze pertinenti sono riportate nella Tabella Supplementare 1.
Reazione a catena della polimerasi con trascrizione inversa quantitativa (RT-qPCR)
Il reagente TRIzol è stato utilizzato per estrarre l'RNA totale dal siero, mentre il kit miRNeasy Mini è stato impiegato per estrarre l'RNA totale dalle cellule. Per la rilevazione di miR-3619-5p, la trascrizione inversa è stata eseguita utilizzando un kit di trascrizione inversa; dopo la sintesi del cDNA, è stato utilizzato un kit di quantificazione dell'RNA micro, con U6 come controllo interno. Per la rilevazione di MTA3, la trascrizione inversa in cDNA è stata effettuata mediante un kit di trascrizione inversa per mRNA e la RT-qPCR è stata eseguita utilizzando un kit di quantificazione dell'mRNA, con GAPDH come controllo interno. Le variazioni nell'espressione di miR-3619-5p e MTA3 sono state analizzate mediante il metodo 2-ΔΔCt. Le sequenze dei primer sono riportate nella Tabella Supplementare 1.
Saggio del reporter a doppia luciferasi (DLR)
Le regioni 3'-UTR wild-type (WT) e mutate (MUT) di MTA3, contenenti il sito di legame per miR-3619-5p, sono state clonate nel vettore pmirGLO. Il vettore è stato co-trasfettato con il mimico di miR-3619-5p e con l'inibitore di miR-3619-5p in cellule 293T mediante reagenti di trasfezione. I gruppi di controllo della trasfezione includevano: il gruppo con plasmide reporter vuoto (Controllo) e il gruppo con trasfezione del controllo negativo per miRNA (miR-NC). Dopo 48 h, l'attività relativa della luciferasi è stata misurata utilizzando un sistema a doppia luciferasi, impiegando l'attività della luciferasi Renilla come controllo interno. Ogni gruppo comprende tre repliche biologiche indipendenti, ciascuna costituita da tre repliche tecniche.
Saggio di proliferazione cellulare
Seminare le cellule transfezionate in una piastra a 96 pozzetti. Dopo averle coltivate rispettivamente per 0 h, 24 h, 48 h e 72 h, aggiungere 10 μL di reagente CCK-8 in ogni pozzetto, incubare a 37 °C per 2 h e misurare l'assorbanza a 450 nm utilizzando un lettore per micropiastre.
Saggio di apoptosi
Lavare le cellule tre volte con PBS, quindi risospendere in 200 μL di buffer di legame contenente 10 μL di Annexin V-FITC e 5 μL di PI. Incubare per 15 min a temperatura ambiente al buio. Aggiungere 300 μL di buffer di legame, quindi analizzare immediatamente le cellule mediante citometria a flusso per calcolare la percentuale di apoptosi.
Saggio immunoenzimatico (ELISA)
Le cellule trasfettate sono state seminate in una piastra a 96 pozzetti e sottoposte a digiuno notturno a 37 °C. Il mezzo di coltura è stato sostituito con una soluzione contenente 25 mM di glucosio e le cellule sono state coltivate per 1 h; successivamente, il mezzo di coltura delle cellule INS-1 trattate è stato raccolto per misurare la secrezione di insulina. Le cellule INS-1 sono state risospese in metanolo acido, sottoposte a sonicazione e il soprannatante è stato raccolto per determinare il contenuto totale di insulina. È stato utilizzato il Kit ELISA per Insulina di Ratto e il saggio è stato eseguito secondo le istruzioni del produttore. Il saggio utilizza gli standard di riferimento forniti con il kit per costruire una curva di calibrazione; la concentrazione assoluta di insulina viene calcolata in base ai valori di assorbanza dei campioni, con l'unità di concentrazione assoluta espressa in μIU/mL. Infine, la capacità di secrezione di insulina è stata valutata normalizzando i livelli di insulina misurati nel mezzo di coltura rispetto al contenuto totale intracellulare di insulina. I dati nei grafici statistici sono presentati come variazioni di fold, calcolate in rapporto al gruppo di controllo.
Western blot
Le cellule trasfettate di ogni gruppo sono state raccolte e aggiunte al buffer di lisi RIPA. La concentrazione totale di proteine è stata determinata mediante il metodo BCA. 50 μg di proteina totale sono stati mescolati con buffer di caricamento 5× e bolliti per 10 minuti. Dopo l'elettroforesi su gel di poliacrilamide al 10% in SDS, le proteine sono state trasferite su una membrana di fluoruro di polivinilidene. La membrana è stata bloccata con latte scremato al 5% per 1 ora; sono stati aggiunti gli anticorpi primari MTA3 (1:1000) e GAPDH (1:1000) e incubati tutta la notte a 4 °C; la membrana è stata lavata con TBST, quindi è stato aggiunto l'anticorpo secondario caprino anti-coniglio IgG marcato con HRP (1:1000) e incubato a temperatura ambiente per 1 ora; la rivelazione è avvenuta mediante il metodo chemiluminescente ECL.
Analisi statistica
I dati quantitativi sono espressi come media ± deviazione standard. Prima di effettuare l'analisi statistica, il test di Shapiro–Wilk è stato utilizzato per verificare la normalità dei dati e il test di Levene per valutare l'omogeneità delle varianze, al fine di determinare l'applicabilità dei test parametrici. I risultati di questi test hanno indicato che tutti i dati quantitativi di questo studio seguivano una distribuzione normale e soddisfacevano l'assunzione di omogeneità delle varianze; pertanto, sono stati utilizzati test parametrici per l'analisi statistica. Un test t per campioni indipendenti è stato impiegato per analizzare i dati di due gruppi, mentre l'analisi della varianza a un fattore (ANOVA) con test post-hoc di Tukey è stata utilizzata per confronti tra più gruppi. Sono stati utilizzati grafici a dispersione per valutare le relazioni lineari tra le variabili. È stata applicata l'analisi della correlazione di Pearson, laddove erano soddisfatte le assunzioni di normalità e linearità. L'analisi della correlazione di Pearson ha incluso tutti i 102 partecipanti; nessun valore anomalo è stato escluso. L'aggregazione dei punti osservata nel grafico a dispersione è dovuta alla sovrapposizione delle osservazioni campione. Tutti gli esperimenti includevano tre campioni replicati e ogni esperimento è stato ripetuto tre volte. Un valore di p <0,05 è stato considerato statisticamente significativo.
Risultati
Confronto delle caratteristiche demografiche e dei parametri metabolici clinici tra i partecipanti allo studio
I risultati del confronto hanno mostrato che i livelli di glicemia a digiuno (FBG) e di emoglobina glicata (HbA1c) erano significativamente aumentati nei pazienti con diabete di tipo 2 (T2DM) (P < 0,001), mentre non si sono osservate differenze significative in altri parametri (P > 0,05) (Tabella 1).
Espressione e significato clinico di miR-3619-5p
L'analisi RT-qPCR ha rivelato che l'espressione di miR-3619-5p nel siero dei pazienti con diabete di tipo 2 (T2DM) era significativamente ridotta (P < 0,001; Figura 1A). L'analisi della curva ROC ha mostrato che l'area sotto la curva (AUC) per miR-3619-5p nella diagnosi del T2DM era pari a 0,871 (IC 95%: 0,820–0,922) (Figura 1B). Inoltre, i risultati di un'analisi di correlazione di Pearson effettuata su 102 pazienti con T2DM hanno mostrato che l'espressione di miR‑3619‑5p era significativamente e inversamente correlata alla glicemia a digiuno (FBG) (Figura 1C) e all'emoglobina glicata (HbA1c) (Figura 1D).
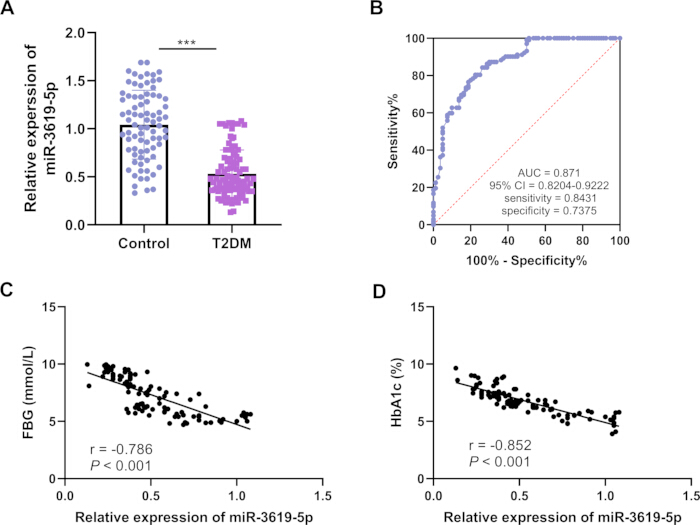
Figura 1: Espressione e significato clinico di miR-3619-5p. (A) Analisi RT-qPCR dell'espressione di miR-3619-5p nel siero di pazienti con diabete di tipo 2 (T2DM). (B) Curva ROC per la diagnosi del T2DM utilizzando miR-3619-5p. (C) Analisi di correlazione di Pearson tra l'espressione relativa di miR-3619-5p e la glicemia a digiuno (FBG). (D) Analisi di correlazione di Pearson tra l'espressione relativa di miR-3619-5p e l'HbA1c. Le barre di errore rappresentano la deviazione standard (SD); Controllo, n = 80; T2DM, n = 102. ***P < 0.001 Cliccare qui per visualizzare una versione ingrandita di questa figura.
L'effetto di miR-3619-5p sulla funzione delle cellule β pancreatiche
Abbiamo condotto saggi funzionali cellulari su cellule β pancreatiche INS-1 trattate con glucosio ad alta concentrazione (HG) per mimare la progressione del diabete di tipo 2 (T2DM). I risultati hanno rivelato che l'espressione di miR-3619-5p era significativamente ridotta dopo il trattamento con HG (P < 0,001), mentre la trasfezione con un mimico di miR-3619-5p ha marcatamente aumentato la sua espressione (P < 0,01; Figura 2A). Per quanto riguarda la proliferazione e l'apoptosi cellulare, il trattamento con HG ha marcatamente inibito la proliferazione e promosso l'apoptosi (P < 0,001), mentre il mimico di miR-3619-5p ha favorito la proliferazione e inibito l'apoptosi dopo il trattamento con HG (P < 0,01; Figura 2B,C). I risultati dell'ELISA hanno mostrato che la secrezione di insulina era significativamente ridotta dopo il trattamento con HG (P < 0,001), mentre il mimico di miR-3619-5p ha aumentato la secrezione di insulina in seguito al trattamento con HG (P < 0,01; Figura 2D).
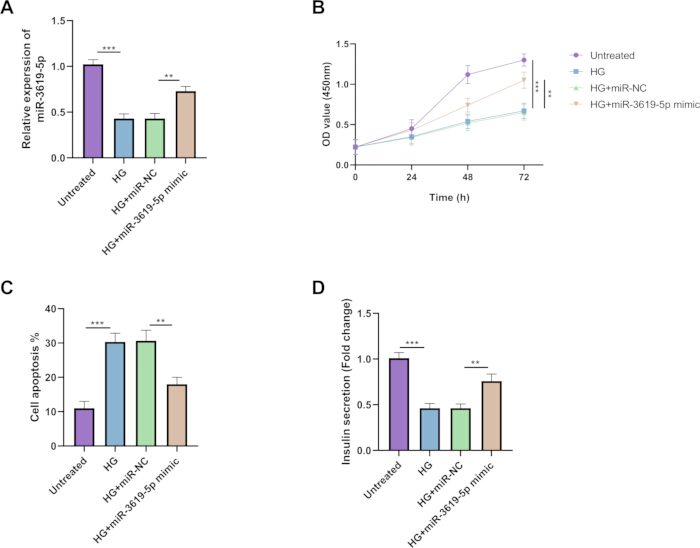
Figura 2: Effetto di miR-3619-5p sulla funzione delle cellule β pancreatiche. Le cellule β pancreatiche INS-1 sono state trattate con HG per simulare la progressione del DT2. (A) L'espressione di miR-3619-5p nelle cellule è stata rilevata mediante RT-qPCR. (B) La proliferazione cellulare è stata valutata utilizzando il saggio CCK-8. (C) L'apoptosi cellulare è stata valutata mediante citometria a flusso. (D) L'ELISA è stato utilizzato per misurare i livelli di secrezione di insulina (normalizzati rispetto al contenuto totale di insulina intracellulare). I barre di errore rappresentano la deviazione standard (SD), n = 3. ***P < 0,001; **P < 0,01 Cliccare qui per visualizzare una versione ingrandita di questa figura.
Convalida dei bersagli di miR-3619-5p
Le previsioni di bioinformatica hanno rivelato un totale di 174 geni target in quattro database (Figura 3A), e il sito di legame di MTA3 mostra un elevato grado di conservazione (punteggio Context++: -0,31; percentile del punteggio Context++: 98). È stato identificato un sito di legame complementare tra miR-3619-5p e la regione 3'-UTR di MTA3 (Figura 3B). I risultati del saggio DLR hanno mostrato che l'attività luciferasica relativa di MTA3 WT era significativamente aumentata nel gruppo con mimico di miR-3619-5p, indicando che miR-3619-5p può legarsi a MTA3 (Figura 3C).
L'espressione di MTA3 è risultata notevolmente ridotta nel siero di pazienti con diabete di tipo 2 (T2DM) (Figura 3D); la sua espressione era inoltre significativamente ridotta nelle cellule INS-1 trattate con glucosio ad alta concentrazione (HG), mentre il mimico di miR-3619-5p ha aumentato l'espressione di MTA3 (Figura 3E). I risultati ottenuti con il test immunoblotting hanno mostrato che il mimico di miR-3619-5p aumenta i livelli proteici di MTA3, mentre l'inibitore di miR-3619-5p riduce in modo significativo la sua espressione (Figura supplementare 1). Un'analisi di correlazione di Pearson ha rivelato una correlazione positiva significativa tra i livelli di miR-3619-5p e quelli di MTA3 nel siero di 102 pazienti con T2DM (Figura 3F). Questi risultati confermano ulteriormente il ruolo regolatorio positivo di miR-3619-5p su MTA3.
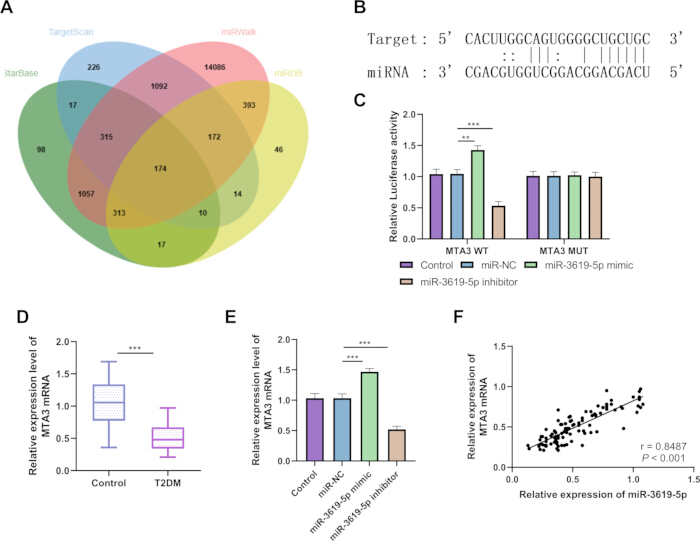
Figura 3: Convalida dei bersagli di miR-3619-5p. (A) Geni bersaglio comuni di miR-3619-5p identificati nei quattro database: TargetScan, miRWalk, StarBase e miRDB. (B) Sito di legame di miR-3619-5p nella regione 3’-UTR di MTA3. (C) Saggio DLR (n = 3). (D) Analisi RT-qPCR dell'espressione di MTA3 nel siero di pazienti con diabete di tipo 2 (Controllo, n = 80; T2DM, n = 102). (E) Analisi RT-qPCR dell'espressione di MTA3 nelle cellule (n = 3). (F) Analisi di correlazione di Pearson tra l'espressione di miR-3619-5p e quella di MTA3 nel siero di pazienti con diabete di tipo 2 (Controllo, n = 80; T2DM, n = 102). Le barre di errore rappresentano la deviazione standard (SD). ***P < 0,001; **P < 0,01 Cliccare qui per visualizzare una versione ingrandita di questa figura.
Gli effetti di MTA3 sulla funzione delle cellule β pancreatiche
I risultati hanno mostrato che si-MTA3 ha ulteriormente ridotto l'espressione di MTA3 dopo il trattamento con elevata concentrazione di glucosio (HG), mentre la co-trasfezione con il mimico di miR-3619-5p ha invertito questo effetto (Figura 4A). si-MTA3 ha ulteriormente inibito la proliferazione delle cellule trattate con HG, promosso l'apoptosi ed aggravato il danno alla secrezione di insulina; al contrario, la co-trasfezione con il mimico di miR-3619-5p ha invertito i fenotipi cellulari sopra descritti indotti da si-MTA3, ripristinando la proliferazione cellulare, riducendo l'apoptosi e attenuando l'inibizione della secrezione di insulina (Figura 4B–D).
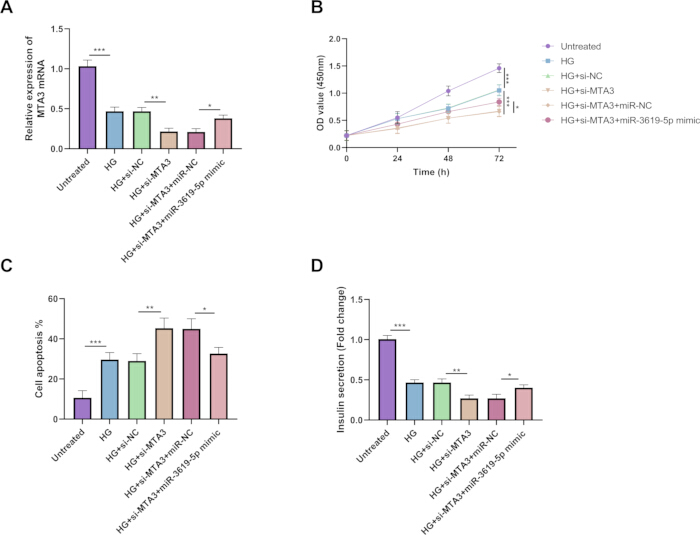
Figura 4: Effetto di MTA3 sulla funzione delle cellule β pancreatiche. Si sono trasfettati si-MTA3 e un mimico di miR-3619-5p nelle cellule per indagare ulteriormente l'effetto di MTA3 sulla funzione delle cellule β pancreatiche. (A) Analisi RT-qPCR dell'espressione di MTA3 nelle cellule. (B) La proliferazione cellulare è stata valutata mediante saggio CCK-8. (C) Il tasso di apoptosi è stato determinato mediante citometria a flusso. (D) L'ELISA ha misurato i livelli di secrezione di insulina (normalizzati rispetto al contenuto totale di insulina intracellulare). Le barre di errore rappresentano la deviazione standard (SD), n = 3. ***P < 0,001; **P < 0,01; *P < 0,05 Cliccare qui per visualizzare una versione ingrandita di questa figura.
In sintesi, i risultati ottenuti da campioni clinici mostrano che l'espressione sierica di miR-3619-5p è significativamente ridotta nei pazienti con diabete di tipo 2 (T2DM) e che miR-3619-5p è significativamente correlato con glicemia a digiuno (FBG) e HbA1c; esperimenti su cellule in coltura hanno confermato che miR-3619-5p può regolare specificamente MTA3, influenzando così la vitalità e la funzione secretoria di insulina delle cellule β pancreatiche di ratto INS-1. Nel complesso, questi risultati indicano che miR-3619-5p è coinvolto nella regolazione della funzione delle cellule β pancreatiche, soddisfacendo pertanto in via preliminare l'obiettivo della ricerca di questo studio, ossia indagare il ruolo di miR-3619-5p nel diabete di tipo 2 e i suoi potenziali meccanismi regolatori.
DISPONIBILITÀ DEI DATI:
Tutti i set di dati grezzi ed elaborati che supportano le conclusioni di questo studio sono stati caricati come File Supplementare 1.
| Indicatori | Gruppo di controllo (n = 80) | Gruppo T2DM (n = 102) | Valore P |
| Età (anni) | 51,41 ± 9,70 | 52,29 ± 7,03 | 0,478 |
| Sesso (maschi/femmine) | 43/37 | 54/48 | 0,914 |
| BMI (kg/m2) | 24,04 ± 3,10 | 24,81 ± 3,04 | 0,093 |
| TC (mmol/L) | 4,60 ± 0,64 | 4,78 ± 0,65 | 0,068 |
| TG (mmol/L) | 1,61 ± 0,18 | 1,67 ± 0,26 | 0,093 |
| HDL-C (mmol/L) | 1,43 ± 0,13 | 1,38 ± 0,18 | 0,085 |
| LDL-C (mmol/L) | 2,55 ± 0,29 | 2,63 ± 0,31 | 0,067 |
| GBF (mmol/L) | 4,96 ± 0,97 | 7,16 ± 1,64 | <0,001 |
| HbA1c (%) | 4,42 ± 0,49 | 6,77 ± 1,16 | <0,001 |
Tabella 1: Confronto dei parametri clinici tra i soggetti. DT2, diabete mellito di tipo 2; BMI, indice di massa corporea; TC, colesterolo totale; TG, trigliceridi; HDL, lipoproteine ad alta densità; LDL, lipoproteine a bassa densità; GDF, glucosio ematico a digiuno; HbA1c, emoglobina glicata.
Tabella supplementare 1: Sequenze di primer e reagenti utilizzate in questo studio.Cliccare qui per scaricare il file.
Figura supplementare 1: Espressione proteica di MTA3. Analisi mediante Western blot dei livelli proteici di MTA3. (A) Livelli proteici di MTA3. (B) Immagini grezze del Western blot di MTA3. (C) Immagini grezze del Western blot di GAPDH. Le barre di errore rappresentano la deviazione standard (DS), n = 3. ***P < 0,001; **P < 0,01Cliccare qui per scaricare il file.
File supplementare 1: Dati grezzi.Cliccare qui per scaricare il file.
Discussione
Le caratteristiche patologiche fondamentali del diabete di tipo 2 (T2DM) sono l'insulino-resistenza e la disfunzione delle cellule β pancreatiche, con ridotta capacità proliferativa e diminuzione del numero di cellule β pancreatiche come principali fattori responsabili della secrezione anomala di insulina e dei principali promotori della progressione della malattia26. L'identificazione di molecole chiave in grado di regolare la proliferazione delle cellule β pancreatiche e di migliorarne la funzione riveste una grande importanza per la diagnosi e il trattamento preciso del T2DM.
Come molecole regolatrici chiave dell'espressione genica, i miRNA svolgono una funzione critica nella proliferazione, apoptosi e secrezione di insulina delle cellule β pancreatiche. Numerosi miRNA sono strettamente associati alla patogenesi del DT227,28,29. Song et al. hanno scoperto che l'inibizione di miR-3619-5p inibisce la migrazione cellulare nel cancro del colon-retto30. Altri studi hanno evidenziato che miR-3619-5p è downregolato in pazienti diabetici sottoposti a dialisi peritoneale31. Tuttavia, il ruolo e i meccanismi di miR-3619-5p nel DT2 non sono ancora stati riportati. Questo studio ha rilevato che l'espressione sierica di miR-3619-5p nei pazienti con DT2 era significativamente inferiore rispetto al gruppo di controllo sano, in accordo con i risultati di Costa et al.31, indicando che una ridotta espressione di miR‑3619‑5p potrebbe essere strettamente legata all'insorgenza e allo sviluppo del DT2. L'analisi di correlazione ha indicato che l'espressione di miR-3619-5p era correlata negativamente con glicemia a digiuno (FBG) e HbA1c, suggerendo che un'espressione più bassa di miR-3619-5p è associata a un controllo glicemico peggiore nei pazienti. Questo conferma ulteriormente che miR-3619-5p potrebbe essere coinvolto nel processo di deregolazione metabolica del DT2 e che il suo livello di espressione potrebbe riflettere la gravità della malattia; ciò è in linea con i risultati di Chen et al., i quali hanno riportato che RNA differenzialmente espressi potrebbero essere coinvolti nel metabolismo dei lipidi, nella secrezione di insulina e nella regolazione del glucosio32. I risultati dell'analisi della curva ROC suggeriscono che potrebbe rappresentare un biomarcatore per la diagnosi del DT2, compensando la mancanza di sensibilità nella diagnosi precoce associata agli indicatori tradizionali di glicemia.
Il declino anomalo della capacità proliferativa delle cellule β pancreatiche rappresenta un componente centrale del fallimento degli isolotti pancreatici nel diabete di tipo 2 (T2DM); pertanto, promuovere la proliferazione delle cellule β pancreatiche e aumentarne il numero è fondamentale per migliorare la funzione di secrezione dell'insulina33,34. Questo studio ha dimostrato mediante esperimenti cellulari che miR-3619-5p promuove in modo significativo la proliferazione delle cellule INS-1 e inibisce l'apoptosi, aumentando così la secrezione di insulina. Questo suggerisce che miR-3619-5p potrebbe migliorare la funzione di secrezione dell'insulina promuovendo la proliferazione delle cellule β pancreatiche e inibendo l'apoptosi, partecipando quindi alla patogenesi del T2DM. Questo meccanismo è coerente con quanto descritto in studi precedenti riguardo al ruolo regolatorio degli miRNA nella proliferazione delle cellule β pancreatiche, come ad esempio miR-26a-5p e miR-765, che promuovono la proliferazione e la differenziazione delle cellule β pancreatiche regolando l'espressione di geni bersaglio35,36.
Questo studio ha utilizzato previsioni di bioinformatica e saggi DLR per confermare che MTA3 è un gene bersaglio di miR-3619-5p. In quanto proteina associata alla metastasi, MTA3 è ampiamente coinvolta in processi fisiologici chiave come la proliferazione cellulare, l'apoptosi e il metabolismo20. Studi hanno dimostrato che MTA3 partecipa alla regolazione della fibrosi epatica indotta da elevati livelli di glucosio24. La soppressione di MTA3 mediata dal T2DM è associata a un aumento dello stress ossidativo nei testicoli37. In questo studio, MTA3 è risultata downregolata nelle cellule trattate con elevati livelli di glucosio (HG). Considerando congiuntamente i risultati dei saggi di proliferazione cellulare, si ipotizza che si-MTA3 possa contribuire alla patogenesi del T2DM inibendo la proliferazione delle cellule β pancreatiche, mentre miR-3619-5p potrebbe attenuare tale inibizione regolando l'espressione di MTA3, migliorando così la funzione delle cellule β pancreatiche. La chiarificazione di questo meccanismo affina ulteriormente la rete molecolare che regola tramite miRNA la proliferazione delle cellule β pancreatiche e fornisce una nuova prospettiva per la ricerca sulla patogenesi del T2DM.
I risultati di questo studio hanno un potenziale valore clinico e traslazionale. Il miR-3619-5p sierico può essere rilevato nel sangue venoso periferico; se validato in successivi studi di coorte su larga scala, potrebbe rappresentare un marcatore biologico ausiliario utile ai clinici per identificare individui a rischio di disfunzione delle cellule β pancreatiche, consentendo così una stratificazione precoce del rischio. Il miR-3619-5p può attenuare i danni indotti dall'iperglicemia alle cellule β pancreatiche attraverso il targeting e la regolazione della via MTA3, mantenendo la sopravvivenza delle cellule β e la secrezione di insulina. Questo suggerisce che l'asse miR-3619-5p/MTA3 potrebbe rappresentare un nuovo bersaglio per la protezione delle isole pancreatiche nel diabete, fornendo basi sperimentali fondamentali per lo sviluppo successivo di farmaci a base di acidi nucleici o inibitori di piccole molecole volti a proteggere la funzione delle isole.
Diversi limiti devono essere considerati nel presente studio: in primo luogo, la nostra ricerca è stata condotta in un singolo centro; potrebbe essere presente un bias di selezione e la variabilità interindividuale tra i partecipanti è relativamente limitata. Studi futuri dovrebbero ampliare la dimensione del campione ed effettuare studi multicentrici per verificare il profilo di espressione e il valore clinico di miR‑3619‑5p. In secondo luogo, questo studio ha convalidato la funzione regolatoria di miR-3619-5p nella proliferazione delle cellule β pancreatiche solo a livello cellulare, senza ulteriore convalida tramite esperimenti su animali. Ricerche future dovrebbero sviluppare un modello animale di DT2 per approfondire i suoi meccanismi d'azione in vivo. In terzo luogo, gli miRNA generalmente mostrano caratteristiche multifunzionali e miR-3619-5p potrebbe regolare una varietà di geni correlati. Allo stesso tempo, i sistemi di trasfezione in vitro che utilizzano mimici o inibitori di miRNA sono soggetti a possibili effetti fuori bersaglio; un intervento artificiale a dosi elevate potrebbe attivare o inibire in modo non specifico molteplici vie di segnalazione, rendendo difficile replicare completamente il meccanismo d'azione osservato in condizioni fisiologiche. Ricerche future richiederanno uno screening più completo del bersaglio a livello di intero trascrittoma per distinguere tra regolazione specifica mirata ed effetti biologici non specifici derivanti da effetti fuori bersaglio. In quarto luogo, sebbene questo studio abbia utilizzato un intervento con glucosio 25 mM nel modello in vitro ad alto contenuto di glucosio, non è stato istituito un gruppo di controllo con mannitolo per l'effetto osmotico; di conseguenza, non è stato possibile distinguere pienamente tra effetti metabolici specifici del glucosio ed effetti derivanti dallo stress osmotico. Esperimenti futuri dovrebbero includere un controllo osmotico per chiarire ulteriormente il meccanismo con cui livelli elevati di glucosio influenzano le cellule INS-1. Infine, esiste una discordanza tra specie nei campioni clinici e nei modelli cellulari in vitro; sebbene le cellule INS-1 rappresentino un modello in vitro classico per lo studio della maturazione funzionale delle cellule β pancreatiche, i meccanismi regolatori osservati in cellule di ratto non possono essere direttamente equiparati ai processi biologici reali nell'uomo. Pertanto, si dovrebbe procedere con cautela nell'interpretare la relazione regolatoria miR-3619-5p/MTA3 identificata a livello cellulare in vitro in questo studio per applicazioni cliniche. Studi futuri dovranno utilizzare modelli di cellule β pancreatiche umane o isolotti primari umani per convalidare ulteriormente la conservazione della via in diverse specie.
Il miR-3619-5p è sotto-regolato nel siero e nelle cellule β pancreatiche dei pazienti con diabete di tipo 2 (T2DM); attraverso il targeting di MTA3, il miR-3619-5p può alleviare la disfunzione delle cellule β pancreatiche indotta dall'iper-glicemia, promuovere la proliferazione delle cellule β pancreatiche, inibire l'apoptosi e migliorare la secrezione di insulina. Questo studio suggerisce che il miR-3619-5p potrebbe essere utile nel supportare la stratificazione del rischio di diabete e che l'asse miR-3619-5p/MTA3 rappresenta un potenziale bersaglio per la protezione delle isole pancreatiche. In futuro, condurremo uno studio di coorte su larga scala per convalidare il suo valore clinico ed effettueremo una validazione funzionale in vivo mediante modelli animali di diabete; allo stesso tempo, analizzeremo approfonditamente le vie di segnalazione a valle di MTA3 che mediano i cambiamenti della funzione delle isole pancreatiche e valuteremo ulteriormente il potenziale traslazionale di questo bersaglio per la terapia di protezione delle isole pancreatiche.
Dichiarazioni
Gli autori non hanno interessi finanziari o non finanziari rilevanti da dichiarare.
Ringraziamenti
Questo studio è stato sostenuto da Strategie di prevenzione per pazienti con diabete e infezioni del tratto urinario (n. MSZ2025119).
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| Kit per il rilevamento dell'apoptosi Annexin V-FITC/PI | Roche, Switzerland | 11684795910 | Colorazione con Annexin V-FITC (10 µL) e PI (5 µL); incubazione di 15 min al buio |
| Cell Counting Kit-8 (CCK-8) | Dojindo, Japan | CK04 | Saggio colorimetrico per la vitalità cellulare; 10 µL per pozzetto, incubazione di 2 h, misura dell'OD450 |
| D-Glucosio | Sigma-Aldrich | G7021 | Aggiunto al mezzo di coltura alla concentrazione di 25 mM per stabilire un modello di danno cellulare indotto da alta concentrazione di glucosio (HG) |
| Systema per saggio Dual-Luciferase Reporter | Promega, USA | E1910 | Misurazione sequenziale dell'attività della luciferasi di firefly e di Renilla |
| Serum bovino fetale (FBS) | Gibco, USA | 10437028 | Integrare fino a una concentrazione finale del 10% |
| Citometro a flusso | Beckman Coulter, USA | CytoFLEX | Analisi mediante citometria a flusso per il calcolo del tasso di apoptosi |
| Anticorpo anti-GAPDH | Abcam, UK | ab181602 | Western blot |
| Primer per GAPDH | Sangon Biotech, China | Custom synthesis | Gene di controllo per la normalizzazione dell'mRNA |
| Secondario anti-coniglio IgG capra H&L (HRP) | Abcam, UK | ab6721 | Western blot |
| Linea cellulare HEK293T | ATCC, USA | CRL-3216 | Cellule renali embrionali umane; elevata efficienza di trasfezione per saggi con luciferasi |
| Linea cellulare INS-1 | Sunncell, China | SNL-332 | Linea cellulare di insulinoma di ratto; coltivata in RPMI 1640 con 10% FBS e 1% penicillina-streptomicina |
| LightCycler 480 II Real-Time PCR System | Roche, Switzerland | 5015278001 | Amplificazione PCR in tempo reale; formato piastra da 96 o 384 pozzetti |
| Lipofectamine 3000 | Invitrogen, USA | L3000001 | Reagente per trasfezione a base lipidica |
| Lettore per micropiastre | BioTek, Agilent | Synergy H1 | Misura dell'assorbanza; le concentrazioni campione sono interpolate da curve standard |
| Inibitori di miR-3619-5p | RiboBio, China | miR20017999-1-5 | RNA a singolo filamento sintetizzato chimicamente per inibire la funzione di miR-3619-5p |
| Mimetici di miR-3619-5p | RiboBio, China | miR10017999-1-5 | RNA a doppio filamento sintetizzato chimicamente per l'overespressione di miR-3619-5p |
| Primer per miR-3619-5p | Sangon Biotech, China | Custom synthesis | Primer specifici per il rilevamento di miR-3619-5p |
| miR-NC (controllo negativo per miRNA) | RiboBio, China | miR2N0000001-1-5 | Controllo negativo non bersaglio per esperimenti con mimetici/inibitori di miRNA |
| miRNeasy Mini Kit | Qiagen, Germany | 217004 | Estrazione di RNA totale da campioni cellulari |
| miScript II RT Kit | Qiagen, Germany | 218160 | Trascrizione inversa per miRNA; utilizza coda poli(A) e innesco con oligo-dT |
| miScript SYBR Green PCR Kit | Qiagen, Germany | 218073 | qPCR basato su SYBR Green per il rilevamento di miRNA |
| Anticorpo anti-MTA3 | Invitrogen, USA | PA5-100022 | Western blot |
| Primer per MTA3 | Sangon Biotech, China | Custom synthesis | Primer specifici per il rilevamento dell'mRNA di MTA3 |
| Spettrofotometro NanoDrop 2000 | Thermo Fisher Scientific, USA | ND-2000 | Valutazione della concentrazione e purezza dell'RNA |
| Penicillina-Streptomicina | Gibco, USA | 15140122 | Soluzione antibiotica al 1% per prevenire contaminazioni batteriche |
| pmirGLO Dual-Luciferase miRNA Target Expression Vector | Promega, USA | E1330 | Vettore reporter con doppia luciferasi per la validazione di bersagli di miRNA; contiene i geni della luciferasi di firefly e di Renilla |
| PrimeScript RT Reagent Kit con gDNA Eraser | TaKaRa, Japan | RR047A | Trascrizione inversa con passaggio di eliminazione del DNA genomico |
| Rat Insulin ELISA Kit | Invitrogen, USA | ERINS | Rilevamento quantitativo dell'insulina secreta dalle cellule INS-1 nel mezzo di coltura |
| Mezzo RPMI 1640 | Gibco, USA | 11875093 | Mezzo di coltura basale; integrato con 10% FBS e 1% penicillina-streptomicina |
| si-MTA3 | RiboBio, China | siB170209084646-1-5 | RNA interferente specifico per MTA3 per silenziamento genico |
| si-NC (controllo negativo per siRNA) | RiboBio, China | siB06525141922-1-5 | Controllo di siRNA non bersaglio |
| SYBR Green Master PCR Mix | TaKaRa, Japan | RR820A | Amplificazione qPCR basata su SYBR Green |
| Reagente TRIzol | Invitrogen, USA | 15596026 | Estrazione di RNA totale da campioni di siero |
| Primer per U6 | Sangon Biotech, China | Custom synthesis | Riferimento endogeno per la normalizzazione di miRNA |
Riferimenti
- Wang L, et al. Associated factors and principal pathophysiological mechanisms of type 2 diabetes mellitus. Front Endocrinol (Lausanne). 2025;16:1499565.
- Wan Z, et al. The role of systemic inflammation in the association between serum 25-hydroxyvitamin D and type 2 diabetes mellitus. Clin Nutr. 2021;40(6):3661–7.
- Okamoto A, et al. Efficacy and safety of semaglutide in glycemic control, body weight management, lipid profiles and other biomarkers among obese type 2 diabetes patients initiated or switched to semaglutide from other GLP-1 receptor agonists. J Diabetes Metab Disord. 2021;20(2):2121–8.
- Aguayo-Mazzucato C, et al. β Cell Aging Markers Have Heterogeneous Distribution and Are Induced by Insulin Resistance. Cell Metab. 2017;25(4):898–910.e5.
- Goshrani A, Lin R, O'Neal D, Ekinci EI. Time in range-A new gold standard in type 2 diabetes research Diabetes Obes Metab. 2025;27(5):2342–62.
- Niu F, et al. β-cell neogenesis: A rising star to rescue diabetes mellitus. J Adv Res. 2024;62:71–89.
- Zhang Y, et al. THADA inhibition in mice protects against type 2 diabetes mellitus by improving pancreatic β-cell function and preserving β-cell mass. Nat Commun. 2023;14(1):1020.
- Ho PTB, Clark IM, Le LTT. MicroRNA-Based Diagnosis and Therapy. Int J Mol Sci. 2022;23(13).
- Poy MN, et al. A pancreatic islet-specific microRNA regulates insulin secretion. Nature. 2004;432(7014):226–30.
- Karagiannopoulos A, Cowan E, Eliasson L. miRNAs in the Beta Cell-Friends or Foes Endocrinology. 2023;164(5).
- Hu H, et al. Plasma miR-193b-3p Is Elevated in Type 2 Diabetes and Could Impair Glucose Metabolism. Front Endocrinol (Lausanne). 2022;13:814347.
- Benko J, et al. MiR-126 and miR-146a as markers of type 2 diabetes mellitus: a pilot study. Bratisl Lek Listy. 2023;124(7):527–33.
- Liu C, Gao Y, Wu J, Zou J. Exosomal miR-23a and miR-192, Potential Diagnostic Biomarkers for Type 2 Diabetes. Clin Lab. 2021;67(2).
- Liu Y, Li J, Wang S, Song H, Yu T. STAT4-mediated down-regulation of miR-3619-5p facilitates stomach adenocarcinoma by modulating TBC1D10B. Cancer Biol Ther. 2020;21(7):656–64.
- Ma J, et al. M2 macrophage facilitated angiogenesis in cutaneous squamous cell carcinoma via circ_TNFRSF21/miR-3619-5p/ROCK axis. Kaohsiung J Med Sci. 2022;38(8):761–71.
- Zhang M, Luo H, Hui L. MiR-3619-5p hampers proliferation and cisplatin resistance in cutaneous squamous-cell carcinoma via KPNA4. Biochem Biophys Res Commun. 2019;513(2):419–25.
- Ge L, Tan W, Li G, Gong N, Zhou L. Circ_0026134 promotes NSCLC progression by the miR-3619-5p/CHAF1B axis. Thorac Cancer. 2022;13(4):582–92.
- Sun Z, Li X, Shi Y, Yao Y. LncRNA PVT1 facilitates the growth and metastasis of colorectal cancer by sponging with miR-3619-5p to regulate TRIM29 expression. Cancer Rep (Hoboken). 2024;7(6):e2085.
- Wu C, et al. Long Noncoding RNA Plasmacytoma Variant Translocation 1 Regulates Cisplatin Resistance via miR-3619-5p/TBL1XR1 Axis in Gastric Cancer. Cancer Biother Radiopharm. 2020;35(10):741–52.
- Tang Y, et al. Mechanisms of MTA3 in cancer and related diseases and its clinical applications. Front Oncol. 2025;15:1731799.
- Lau P, et al. Sphingosine kinase 1 promotes tumor immune evasion by regulating the MTA3-PD-L1 axis. Cell Mol Immunol. 2022;19(10):1153–67.
- Du L, et al. MTA3 Represses Cancer Stemness by Targeting the SOX2OT/SOX2 Axis. iScience. 2019;22:353–68.
- Liu Y, et al. Discovery of Jaspamycin from marine-derived natural product based on MTA3 to inhibit hepatocellular carcinoma progression. Sci Rep. 2024;14(1):25294.
- Li Q, et al. High glucose promotes hepatic fibrosis via miR‑32/MTA3‑mediated epithelial‑to‑mesenchymal transition. Mol Med Rep. 2019;19(4):3190–200.
- Pu M, Kong L, Li J, Su L, Chen Y. LncRNA NBR2 affects pancreatic β-cell function in type 2 diabetes mellitus by targeting miR-646. Diabetol Metab Syndr. 2025;17(1):454.
- Galicia-Garcia U, et al. Pathophysiology of Type 2 Diabetes Mellitus. Int J Mol Sci. 2020;21(17).
- Wang J, et al. Extracellular vesicles mediate the communication of adipose tissue with brain and promote cognitive impairment associated with insulin resistance. Cell Metab. 2022;34(9):1264–79.e8.
- Rosado JA, Diez-Bello R, Salido GM, Jardin I. Fine-tuning of microRNAs in Type 2 Diabetes Mellitus. Curr Med Chem. 2019;26(22):4102–18.
- Taheri M, Eghtedarian R, Ghafouri-Fard S, Omrani MD. Non-coding RNAs and type 2 diabetes mellitus. Arch Physiol Biochem. 2023;129(2):526–35.
- Song B, et al. LINC00882 Plays a Tumor-promoter Role in Colorectal Cancer by Targeting miR-3619-5p to Up-regulate CTNNB1. Arch Med Res. 2022;53(1):29–36.
- Costa NA, et al. Peritoneal dialysis influences microRNA expression and pro-inflammatory response: results from a cross-sectional study. J Bras Nefrol. 2026;48(1):e20240218.
- Chen J, et al. Identification of the LncRNA PRNCR1/miR-642a-5p/SSTR3 CeRNA network and its diagnostic value in type 2 diabetes mellitus. Diabetol Metab Syndr. 2025;18(1):39.
- Elizabeth MM, et al. Pancreatic β-Cells and Type 2 Diabetes Development. Curr Diabetes Rev. 2017;13(2):108–21.
- Kerper N, Ashe S, Hebrok M. Pancreatic β-Cell Development and Regeneration. Cold Spring Harb Perspect Biol. 2022;14(5).
- Yang F, Zhao S, Zhang X, Ding S, Xu Y. RNF6 Targeted by miR-26a-5p Protects Pancreatic β-Cell Function Against Type 2 Diabetes. Diabetes Metab Syndr Obes. 2022;15:93–102.
- Zheng L, et al. miR-765 targeting PDX1 impairs pancreatic β-cell function to induce type 2 diabetes. Arch Physiol Biochem. 2023;129(6):1279–88.
- Liu F, et al. T2DM-elicited oxidative stress represses MTA3 expression in mouse Leydig cells. Reproduction. 2022;163(5):267–80.