Questo studio combina tessuti umani appaiati, due linee cellulari di carcinoma polmonare a cellule squamose, saggi di stabilità di RNA e proteine, esperimenti di recupero genetico e un modello di xenotrapianto con silenziamento di FOXD1 per esaminare la regolazione di FOXD1 associata a METTL3 e fornire un quadro riproducibile per l'indagine dei meccanismi oncogenici post-trascrizionali.
Articolo di ricerca
La regolazione di FOXD1 associata a METTL3 promuove la progressione del carcinoma squamoso del polmone: un approccio sperimentale multimodello
* These authors contributed equally
In questo articolo
Sommario
Abstract
Il carcinoma polmonare a cellule squamose (LUSC) ha opzioni terapeutiche limitate, il che motiva l'indagine dei percorsi molecolari che sostengono la crescita delle cellule tumorali. L'espressione della proteina forkhead box D1 (FOXD1) è stata valutata mediante analisi interattiva del profilo di espressione genica (GEPIA), reazione a catena della polimerasi con trascrizione inversa quantitativa (qRT-PCR), immunoblotting e immunohistochemica in tessuti accoppiati e linee cellulari. FOXD1 o la metiltransferasi simile a 3 (METTL3) sono state ridotte in cellule LUSC, e sono stati valutati la vitalità cellulare, l'apoptosi, la migrazione, il livello globale di N6-metiladenosina (m6A), la stabilità dei trascritti e la stabilità proteica. Un modello di xenotrapianto con silenziamento di FOXD1 ha testato il ruolo di FOXD1 in vivo; METTL3 non è stata manipolata negli animali.
L'espressione di FOXD1 era più elevata nei tessuti e nelle cellule di LUSC rispetto ai corrispondenti controlli. L'abbattimento di FOXD1 ha ridotto la vitalità e la migrazione, aumentato l'apoptosi e inibito la crescita degli xenotrapianti. L'espressione di METTL3 era correlata a quella di FOXD1 nei tessuti LUSC accoppiati. In cellule in coltura, l'abbattimento di METTL3 ha ridotto l'abbondanza globale di m6A e di FOXD1, mentre la ri-espressione di FOXD1 ha parzialmente ripristinato i fenotipi associati. Gli assay con actinomicina D, cicloesimide e MG132 erano coerenti con variazioni indotte da METTL3 nella stabilità dell'RNA e della proteina FOXD1.
Questi dati supportano un'associazione funzionale tra METTL3 e FOXD1 nelle cellule di LUSC. In vivo, l'abbattimento di FOXD1 ha soppresso la crescita degli xenotrapi e ridotto la colorazione per Ki-67, identificando FOXD1 come promotore della crescita degli xenotrapi. Il legame diretto tra METTL3 e FOXD1, la modificazione specifica di sito mediante m6A, la dipendenza dal lettore e la validazione in vivo dell'intero percorso METTL3–FOXD1 restano da dimostrare.
Introduzione
Il cancro del polmone rimane una delle principali cause di mortalità per cancro a livello mondiale1,2. Il carcinoma a cellule squamose del polmone (LUSC), un importante sottotipo istologico del cancro del polmone non a piccole cellule (NSCLC), spesso si presenta in una fase in cui il trattamento locale curativo non è più fattibile3,4. I trattamenti sistemici sono migliorati, ma molti pazienti continuano a presentare esiti sfavorevoli5. La definizione di programmi molecolari che sostengono la crescita del LUSC potrebbe quindi rivelare biomarcatori testabili e ipotesi terapeutiche.
Forkhead box D1 (FOXD1) è un fattore di trascrizione implicato nei tumori del colon-retto, della testa e del collo, gastrici, del carcinoma a cellule squamose orale e mammari6,7,8,9,10. Nel carcinoma polmonare non a piccole cellule (NSCLC), l'espressione di FOXD1 è stata associata a esito sfavorevole e alla crescita cellulare e metastasi sperimentali11,12. Anche il microRNA-30a-5p sopprime la proliferazione e la migrazione delle cellule LUSC attraverso il targeting di FOXD113. Queste osservazioni identificano FOXD1 come un regolatore plausibile del LUSC, ma non chiariscono come la sua espressione venga mantenuta in questa patologia.
L'N6-metiladenosina (m6A) è una modificazione reversibile dell'RNA che viene installata, rimossa e interpretata da proteine scrittrici, cancellatrici e lettrici. Questo sistema regolatorio può influenzare l'elaborazione dell'RNA, la traduzione e il degrado, e la sua alterazione è stata associata a fenotipi maligni e alla risposta al trattamento14,15,16,17. La metiltransferasi-simile 3 (METTL3) è un componente catalitico del complesso scrittrice m6A; tuttavia, una correlazione tra METTL3 e FOXD1 da sola non può dimostrare una metilazione diretta o una regolazione mediata da proteine lettrici.
Abbiamo ipotizzato che METTL3 promuova la progressione del LUSC sostenendo l'espressione di FOXD1 attraverso una regolazione post-trascrizionale associata all'm6A. Integrando campioni clinici appaiati, due linee cellulari tumorali, saggi di perdita di funzione e di recupero, analisi della stabilità del trascritto e delle proteine e un modello di xenotrapianto con silenziamento di FOXD1, questo studio fornisce un quadro funzionale per indagare la relazione tra METTL3 e FOXD1, distinguendo l'associazione dalla metilazione diretta e specifica del sito.
Protocollo
La raccolta di tessuti umani è stata condotta in conformità con la Dichiarazione di Helsinki ed è stata approvata dal Comitato per la Revisione Istituzionale del Primo Ospedale dell'Università di Jilin (numero di approvazione 2022-339; 22 luglio 2022), e da tutti i partecipanti è stato ottenuto un consenso informato scritto. Il protocollo sugli animali è stato approvato dal Comitato per la Gestione degli Animali del Primo Ospedale dell'Università di Jilin (numero di approvazione 2022-0015; 25 gennaio 2022) ed è stato eseguito in conformità con le linee guida istituzionali per la cura e l'utilizzo degli animali.
Soggetti dello studio
I campioni archiviati comprendevano 12 coppie di tessuti primari di carcinoma polmonare a cellule squamose (LUSC) e tessuti adiacenti non tumorali raccolti da pazienti sottoposti a intervento chirurgico tra gennaio 2019 e dicembre 2020. I pazienti idonei avevano una diagnosi istopatologica di carcinoma polmonare a cellule squamose primario confermata, nessuna metastasi documentata e nessun trattamento diretto contro il LUSC nei sei mesi precedenti. I casi sono stati selezionati mediante una tabella di numeri casuali e includevano sette uomini e cinque donne di età compresa tra 30 e 65 anni. A tutti i partecipanti è stato ottenuto un consenso informato scritto.
Linee cellulari
Le cellule epiteliali bronchiali umane BEAS-2B (RRID: CVCL_0168), SK-MES-1 di carcinoma polmonare a cellule squamose (LUSC) (RRID: CVCL_0630) e le cellule NCI-H226 (RRID: CVCL_1544) sono state ottenute dalla banca cellulare dell'Accademia Cinese delle Scienze. Le cellule sono state mantenute in mezzo di coltura di Dulbecco modificato (DMEM) contenente il 10% di siero fetale bovino e l'1% di penicillina-streptomicina a 37 °C in un'atmosfera di 5% CO2. Gli identificatori commerciali sono riportati nella Tabella dei Materiali allegata.
Screening con RNA interferenti a corta sequenza e recupero fenotipico
Sono stati analizzati tre singoli RNA interferenti specifici per FOXD1 o METTL3 in cellule SK-MES-1 e NCI-H226. L'abbattimento dell'espressione genica è stato valutato 48 ore dopo la trasfezione mediante PCR quantitativa a retrotrascrizione (qRT-PCR) e immunoblotting. L'siRNA-1 per FOXD1 è stato utilizzato nei saggi funzionali successivi su FOXD1 poiché ha determinato la maggiore riduzione in entrambe le linee cellulari. Nei successivi esperimenti su METTL3 è stato impiegato il reagente si-METTL3 selezionato in seguito allo screening. Il record archiviato non identifica un SmartPool né riporta una sequenza o un identificatore del fornitore che possa essere assegnato con certezza. Per gli esperimenti di recupero fenotipico, le cellule sono state trattate con il reagente si-METTL3 selezionato, con il costrutto di sovraespressione di FOXD1 o con entrambi; l'espressione genica e i fenotipi cellulari sono stati valutati 48 ore dopo la trasfezione.
Isolamento dell'RNA e qRT-PCR
L'RNA totale è stato isolato da tessuti o cellule utilizzando un reagente a base di fenolo–guanidinio ed è stato trascritto a ritroso mediante un kit commerciale di trascrizione inversa. La qRT-PCR è stata eseguita con una miscela master TB Green su un sistema di PCR in tempo reale (RRID: SCR_018051). Le sequenze dei primer sono riportate nella Tabella 1. L'espressione relativa è stata normalizzata rispetto alla gliceraldeide 3-fosfato deidrogenasi (GAPDH). L'assemblaggio della reazione e il ciclo termico sono stati effettuati seguendo il protocollo del produttore per la miscela master indicata.
Immunoblotting
I tessuti o le cellule sono stati lisati in tampone per saggio di immunoprecipitazione radioimmunologico (RIPA) contenente inibitori delle proteasi. Quantità equivalenti di proteine sono state separate mediante elettroforesi in gel di poliacrilammide in presenza di dodecilsolfato di sodio (SDS-PAGE) e trasferite su membrane di fluoruro di polivinilidene (PVDF). Le membrane sono state incubate tutta la notte a 4 °C con anticorpi diretti contro FOXD1 (1:1.000), METTL3 (1:1.000; RRID: AB_2142033) o GAPDH (1:2.000; RRID: AB_10622025), seguiti da immunoglobulina G anti-coniglio coniugata con perossidasi di rafano per 1 h a temperatura ambiente. I segnali sono stati rivelati mediante chemiluminescenza migliorata, utilizzando GAPDH come controllo di caricamento. La Tabella dei materiali identifica gli anticorpi primari commerciali e riporta il reagente secondario come anticorpo di rivelazione immunoglobulina G anti-coniglio.
Vitalità cellulare e apoptosi
Per le misurazioni della vitalità, le cellule LUSC di controllo e transfectate sono state seminate in piastre a 96 pozzetti a 2.000 cellule per pozzetto. A intervalli di 12 ore, sono stati aggiunti 10 µL di reagente del kit per il conteggio delle cellule-8 per pozzetto, le piastre sono state incubate per 1 ora a 37 °C e l'assorbanza è stata registrata a 450 nm. Per l'analisi dell'apoptosi, sono state seminate 1 × 10⁵ cellule per pozzetto in piastre a 6 pozzetti e analizzate 48 ore dopo la transfezione. Le cellule raccolte sono state processate seguendo le istruzioni del kit Annexin V–fluoresceina isotiocianato (FITC)/ioduro di propidio (PI), sospese in 100 µL di buffer di legame, colorate con 5 µL di ciascun reagente per 30 minuti a temperatura ambiente al buio e analizzate mediante citometria a flusso entro 4 ore.
Migrazione in Transwell
Le cellule LUSC transfezionate sono state posizionate in un mezzo privo di siero nella camera superiore del transwell; la camera inferiore conteneva 500 µL di mezzo integrato con siero bovino fetale al 10%. Dopo 24 h, le cellule migrate sono state fissate con paraformaldeide al 4% e colorate con violetto cristallo per 10 minuti. Le cellule non migrate sulla superficie superiore della membrana sono state rimosse con un bastoncino di cotone. Le cellule migrate sono state acquisite al microscopio con impostazioni di acquisizione identiche e quantificate con ImageJ (RRID: SCR_003070).
Modifica della metilazione m6A
L'abbondanza globale di m6A è stata misurata mediante un saggio colorimetrico di metilazione dell'RNA. Dopo l'estrazione dell'RNA e la valutazione della qualità, sono stati applicati 200 ng di RNA in ciascun pozzetto del saggio. L'anticorpo di cattura (50 µL) è stato aggiunto per 60 minuti a temperatura ambiente. I pozzetti sono stati lavati tre volte, incubati con 50 µL di anticorpo di rilevamento per 30 minuti, lavati quattro volte e quindi incubati con soluzione di potenziamento del segnale per 30 minuti. L'assorbanza è stata misurata a 450 nm. Tutti i passaggi hanno seguito le istruzioni indicate nel kit.
Rilevamento della stabilità dell'mRNA
Le cellule LUSC sono state seminate in piastre a 6 pozzetti e trasfettate con RNA interferente negativo (si-NC) o con RNA interferente specifico per METTL3 (si-METTL3). Dopo 48 h, è stato aggiunto attinomicina D alla concentrazione di 5 µg/mL per arrestare la trascrizione. Le cellule sono state raccolte a 0 h, 2 h, 4 h e 6 h, l'RNA totale è stato isolato e l'abbondanza del trascritto di FOXD1 è stata misurata mediante qRT-PCR.
Cycloesamide (CHX) e saggi MG132
Per ogni saggio finale con inibitore, sono state confrontate cellule di controllo con vettore non trattate, cellule di controllo con vettore trattate con inibitore e cellule che sovraesprimono METTL3 trattate con inibitore. MG132 è stato utilizzato a 10 µM e CHX a 20 µM; i lisati sono stati raccolti dopo 12 h per la western blotting. Per il corso temporale con CHX, le cellule trasfettate con si-NC o si-METTL3 sono state trattate con 20 µM CHX e raccolte a 0 h, 3 h, 6 h e 9 h. L'abbondanza proteica di FOXD1 è stata misurata mediante western blotting.
In vivo esperimenti
Topi nudi BALB/c atimici di cinque settimane sono stati assegnati ai gruppi di controllo negativo e di silenziamento di FOXD1 con cellule SK-MES-1 (n = 8 topi per gruppo). A ciascun topo è stata somministrata un'iniezione sottocutanea di circa 8 × 10⁶ cellule. Il monitoraggio dei tumori è iniziato una settimana dopo l'innesto; la dimensione dei tumori è stata registrata ogni 4 giorni per 20 giorni consecutivi. I topi sono stati soppressi seguendo protocolli istituzionali approvati al giorno 27 dopo l'inoculo, immediatamente dopo l'ultima misurazione, e i tumori sono stati escissi, pesati e fotografati. Per l'innesto sono state utilizzate popolazioni cellulari stabili di SK-MES-1 con silenziamento di FOXD1 e popolazioni di controllo negative abbinata.
Immunochemica
I tumori escissi sono stati inclusi in paraffina e sezionati a 4–5 µm. I sezioni sono stati deparaffinizzati, reidratati, incubati tutta la notte a 4 °C con l'anticorpo primario e successivamente incubati con l'anticorpo secondario appropriato per 30 minuti. Le cellule positive all'antigene sono state visualizzate mediante un substrato di diaminobenzidina. FOXD1 e Ki-67 sono stati valutati negli xenotrapi, con sezioni accoppiate processate nello stesso lotto di colorazione e analizzate con impostazioni di acquisizione identiche.
Analisi statistica
Le analisi sono state eseguite con GraphPad Prism versione 8 (RRID: SCR_002798) e R (RRID: SCR_001905). I confronti tra due gruppi hanno utilizzato il test t di Student, mentre i confronti che coinvolgevano più di due gruppi hanno utilizzato l'analisi della varianza. Le analisi appaiate su tessuti umani hanno utilizzato 12 coppie di pazienti; i riassunti in vitro rappresentano tre esperimenti biologici indipendenti; le analisi sugli xenotrapianti hanno utilizzato otto topi per gruppo. Le repliche tecniche non sono state considerate osservazioni indipendenti. I dati sono presentati come media ± deviazione standard. Un valore di P bilaterale < 0,05 è stato considerato statisticamente significativo.
Risultati
L'espressione di FOXD1 è aumentata nei tessuti umani di LUSC
Un'analisi interattiva del profilo di espressione genica (GEPIA) ha mostrato un'abbondanza maggiore di trascritto FOXD1 nel LUSC rispetto ai campioni di polmone normale, mentre il confronto con l'adenocarcinoma polmonare non ha raggiunto la significatività statistica (Figura 1A). L'analisi di 12 coppie di tessuti di LUSC e tessuti adiacenti non tumorali ha prodotto lo stesso andamento di variazione mediante qRT-PCR e immunoblotting (Figura 1B,C). La colorazione immunoistochimica ha inoltre evidenziato un segnale FOXD1 più intenso nelle sezioni tumorali rispetto al tessuto adiacente abbinato (Figura 1D).
La riduzione di FOXD1 diminuisce la vitalità e la migrazione e aumenta l'apoptosi nelle cellule di LUSC
L'abbondanza del trascritto FOXD1 era maggiore nelle cellule SK-MES-1 e NCI-H226 rispetto alle cellule BEAS-2B (Figura 2A). Sono stati analizzati tre piccoli RNA interferenti mirati a FOXD1; l'siRNA-1 ha prodotto la riduzione più ampia, rilevata mediante qRT-PCR e immunoblotting, ed è stato selezionato per i saggi successivi (Figura 2B,C). Rispetto al controllo negativo, la riduzione di FOXD1 ha diminuito il segnale del Cell Counting Kit-8 (Figura 2D), aumentato le cellule positive per Annexina V (Figura 2E) e ridotto la migrazione in Transwell (Figura 2F) in entrambe le linee cellulari di LUSC. È stato utilizzato un singolo reagente selezionato, pertanto i risultati funzionali non costituiscono un'esclusione indipendente dalla sequenza degli effetti fuori bersaglio.
L'espressione di METTL3 è correlata a FOXD1 nei campioni di LUSC
La metilazione m6A è una modifica chimica dinamica e reversibile ampiamente presente negli eucarioti, regolata da metiltransferasi e demetilasi, e riconosciuta ed elaborata da proteine leganti la m6A18. Il segnale globale di m6A era più elevato nei 12 tessuti di LUSC rispetto ai tessuti adiacenti abbinati ed era inoltre più alto in entrambe le linee cellulari di LUSC rispetto alle cellule BEAS-2B (Figura 3A). I trascritti che codificano per METTL3, METTL14, WTAP e RBM15 erano aumentati nei campioni tumorali abbinati (Figura 3B). Nei dati di GEPIA e nel set di 12 tumori, FOXD1 mostrava la sua associazione positiva più chiara con METTL3; l'associazione con RBM15 era più debole (Figura 3C,D). Il saggio di immunoblotting ha ulteriormente mostrato un'abbondanza maggiore di METTL3 nei tessuti tumorali (Figura 3E). Queste analisi indicano una variazione concomitante, non una regolazione diretta.
L'abbattimento di METTL3 modifica l'abbondanza di FOXD1 e i fenotipi delle cellule di LUSC
Sono stati analizzati tre RNA interferenti specifici per METTL3 in cellule SK-MES-1 e NCI-H226 mediante qRT-PCR e immunoblotting (Figura 4A,B). L'abbattimento di METTL3 ha ridotto il segnale globale di m6A (Figura 4C). L'overespressione di FOXD1 ha aumentato i livelli di FOXD1 senza incrementare quelli di METTL3 (Figura 4D), e l'esperimento di recupero con quattro gruppi ha confermato una minore abbondanza di FOXD1 dopo l'abbattimento di METTL3 e il suo ripristino mediante il costrutto per FOXD1 (Figura 4E,F). L'abbattimento di METTL3 ha ridotto la vitalità e la migrazione cellulare e ha aumentato l'apoptosi; la ri-espressione di FOXD1 ha in parte contrastato questi effetti (Figura 4G–I). Pertanto, i dati di recupero sono coerenti con un ruolo di FOXD1 a valle di METTL3 nelle cellule in coltura.
La perturbazione di METTL3 è associata alla stabilità dell'RNA e della proteina FOXD1
Crescenti evidenze indicano che la modificazione dell'mRNA mediante m6A regola vari aspetti del ciclo dell'mRNA, inclusi lo splicing dell'pre-mRNA, la traduzione, l'esportazione nucleocitoplasmatica, il degrado e lo splicing19,20. SRAMP ha identificato motivi candidati di m6A nell'RNA di FOXD1, mentre m6A2Target ha indicato METTL3 come scrittore predetto associato a FOXD1 nelle cellule H1299 (Figura 5A,B). Questi risultati ottenuti dai database hanno valore ipotetico-generativo e non dimostrano il legame o la metilazione sito-specifica nelle cellule di LUSC. Dopo il blocco trascrizionale con attinomicina D, l'RNA di FOXD1 è diminuito più rapidamente dopo il silenziamento di METTL3 rispetto alle cellule di controllo (Figura 5C). L'abbondanza di FOXD1 era maggiore nelle cellule con sovraespressione di METTL3 trattate con MG132 rispetto ai controlli con vettore trattati con MG132, mentre questo andamento non è stato osservato dopo il trattamento con CHX (Figura 5D,E). Il corso temporale con CHX ha mostrato una perdita più rapida della proteina FOXD1 dopo il silenziamento di METTL3 (Figura 5F). Nel complesso, questi saggi sono compatibili con variazioni della stabilità dell'RNA e della proteina FOXD1 associate a METTL3, ma non identificano l'adenosina modificata, non dimostrano un legame diretto né definiscono un lettore di m6A.
La riduzione di FOXD1 inibisce la crescita dell'impianto xenotrapiantato di LUSC
Per verificare la funzione di FOXD1 in vivo, cellule SK-MES-1 di controllo e con silenziamento di FOXD1 sono state impiantate per via sottocutanea in topi nudi (n = 8 per gruppo). A partire da una settimana dopo l'impianto, i tumori sono stati misurati ogni 4 giorni per 20 giorni e sono stati prelevati al giorno 27 dopo l'inoculo. I tumori asportati erano più piccoli nel gruppo con silenziamento di FOXD1 (Figura 6A), le loro curve di crescita aumentavano più lentamente (Figura 6B) e i loro pesi finali erano inferiori (Figura 6C). La colorazione per FOXD1 e Ki-67 era inoltre ridotta nei tumori con silenziamento (Figura 6D). Questi esperimenti valutano esclusivamente il silenziamento di FOXD1; non verificano l'inibizione di METTL3 in vivo.
Nel complesso, FOXD1 era sovraespresso nei tessuti e nelle cellule del carcinoma polmonare a cellule squamose e favoriva la proliferazione, la migrazione e la crescita dell'xenotrapianto. L'abbattimento di METTL3 ha ridotto i livelli globali di m6A, diminuito l'espressione di FOXD1 e compromesso i fenotipi cellulari maligni, mentre la ri-espressione di FOXD1 ha in parte invertito questi effetti. I saggi di stabilità supportano una regolazione post-trascrizionale di FOXD1 associata a METTL3, ma non dimostrano una metilazione diretta sito-specifica o il ripristino in vivo dell'intero percorso. Il disegno dello studio è riassunto nella Figura 7.
DISPONIBILITÀ DEI DATI:
Tutti i dati analizzati in questo studio sono inclusi nell'articolo e nelle relative figure. I dati numerici anonimi alla base dei riassunti riportati sono disponibili presso l'autore corrispondente su richiesta ragionevole, previa approvazione secondo le normative istituzionali e i requisiti di protezione dei partecipanti. Non sono stati utilizzati file di simulazione né codice personalizzato per l'analisi.
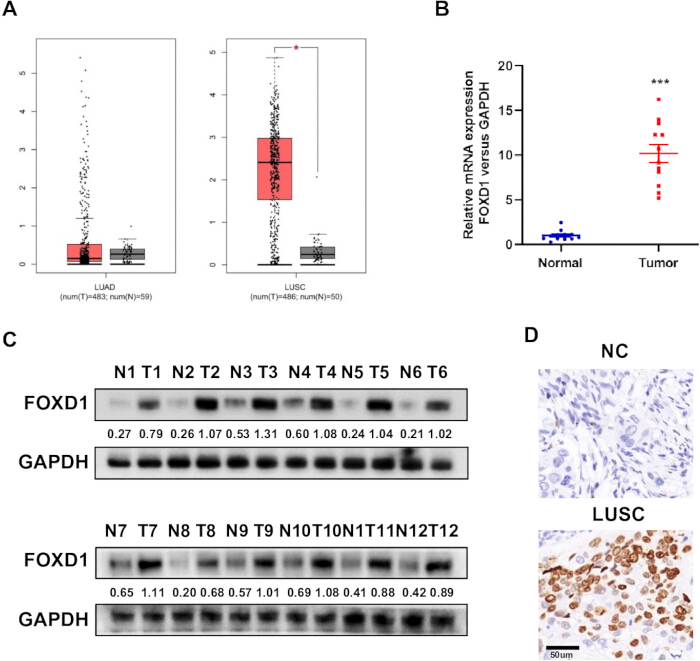
Figura 1: Espressione di FOXD1 in campioni di cancro polmonare umano. (A) Confronto tramite GEPIA dell'abbondanza dei trascritti di FOXD1 nel carcinoma polmonare a cellule adenocarcinoma (LUAD) e nel carcinoma polmonare a cellule squamose (LUSC) rispetto ai campioni normali di polmone. (B) Abbondanza dei trascritti di FOXD1 in 12 coppie di tessuti di LUSC e tessuti adiacenti non tumorali. (C) Abbondanza della proteina FOXD1 negli stessi tessuti accoppiati. (D) Esempio rappresentativo di immunohistochimica per FOXD1. Numero di coppie di tessuti umani = 12; le ripetizioni tecniche di tipo in vitro non modificano il numero a livello paziente. Barra della scala nel pannello D = 50 µm. ***P < 0,001. Cliccare qui per visualizzare una versione ingrandita di questa figura.
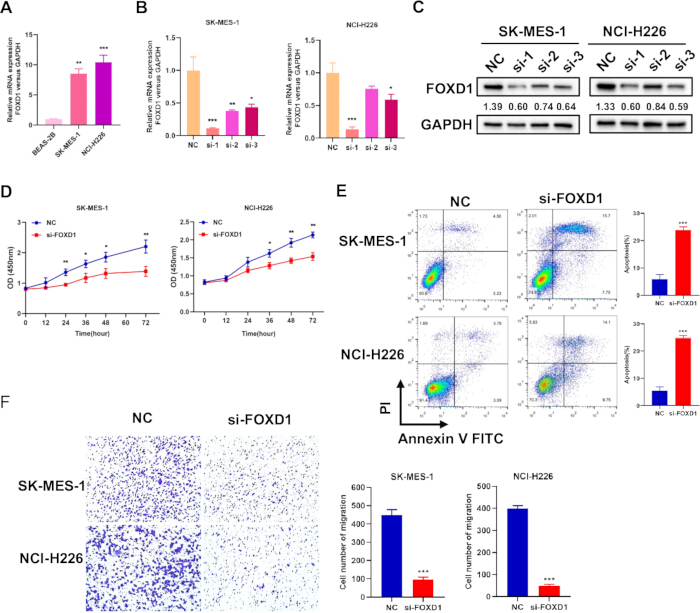
Figura 2: Effetti dell'abbattimento di FOXD1 nelle cellule SK-MES-1 e NCI-H226. (A) Abbondanza del trascritto di FOXD1 nelle cellule BEAS-2B, SK-MES-1 e NCI-H226. (B) Screening mediante qRT-PCR di tre piccoli RNA interferenti mirati a FOXD1, eseguito 48 h dopo la trasfezione. (C) Screening mediante Western blot degli stessi tre piccoli RNA interferenti mirati a FOXD1. (D) Saggio con il kit per il conteggio cellulare Cell Counting Kit-8 dopo l'abbattimento di FOXD1. (E) Analisi dell'apoptosi mediante Annexin V–fluorescein isothiocyanate/propidio ioduro a 48 h. (F) Migrazione in Transwell misurata 24 h dopo la semina delle cellule trasfettate; le immagini archiviate del campo visivo sono presentate senza barra di scala retrospettiva poiché i metadati di calibrazione non erano disponibili. Sono stati eseguiti tre esperimenti biologici indipendenti. *P < 0.05; **P < 0.01; ***P < 0.001. Cliccare qui per visualizzare una versione ingrandita di questa figura.
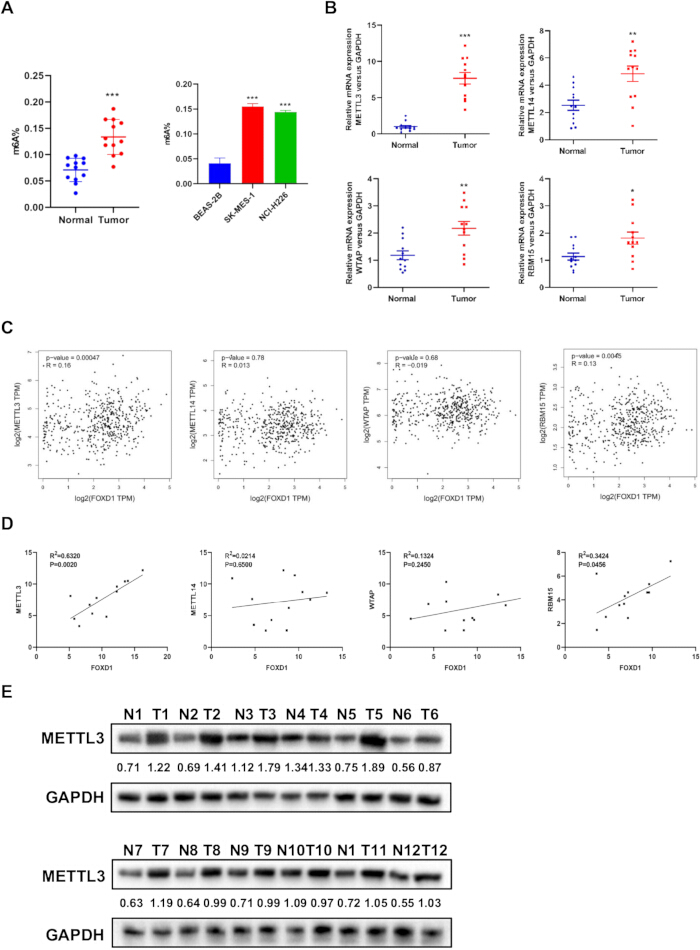
Figura 3: Metilazione globale N6-adenosina e associazione tra METTL3 e FOXD1. (A) Segnale globale di m6A in tessuti accoppiati e nelle cellule BEAS-2B, SK-MES-1 e NCI-H226. (B) Trascritti di METTL3, METTL14, WTAP e RBM15 in 12 coppie di tessuti di LUSC e tessuti adiacenti. (C) Correlazioni GEPIA tra FOXD1 e ciascun enzima metiltransferasi. (D) Correlazioni tra i trascritti di FOXD1 e quelli degli enzimi metiltransferasi in 12 tumori di LUSC. (E) Proteina METTL3 in tessuti di LUSC e tessuti adiacenti accoppiati. Numero di campioni di tessuto umano = 12 coppie; i saggi cellulari rappresentano tre esperimenti biologici indipendenti. *P < 0.05; **P < 0.01; ***P < 0.001. Cliccare qui per visualizzare una versione ingrandita di questa figura.
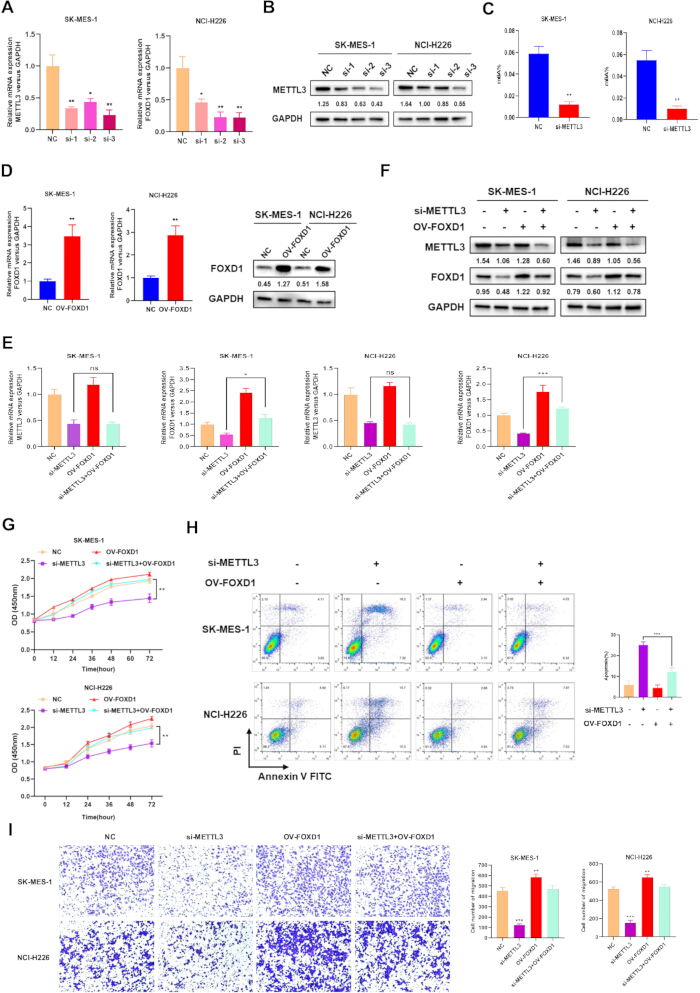
Figura 4: Silenziamento di METTL3, recupero di FOXD1 e fenotipi delle cellule LUSC. (A) Screening mediante qRT-PCR di tre piccoli RNA interferenti mirati a METTL3, eseguito 48 h dopo la trasfezione. (B) Screening mediante western blot degli stessi tre piccoli RNA interferenti mirati a METTL3. (C) Segnale globale di m6A dopo il silenziamento di METTL3. (D) Abbondanza del trascritto e della proteina FOXD1 dopo sovraespressione di FOXD1. (E) Abbondanza dei trascritti di METTL3 e FOXD1 nelle condizioni di controllo, si-METTL3, ov-FOXD1 e si-METTL3 + ov-FOXD1 combinate, misurata mediante qRT-PCR. (F) Abbondanza proteica di METTL3 e FOXD1 negli stessi gruppi di recupero, misurata mediante western blot. (G) Saggio con Cell Counting Kit-8. (H) Apoptosi mediante citometria a flusso. (I) Migrazione in Transwell. Sono stati eseguiti tre esperimenti biologici indipendenti. I numeri al di sotto delle bande del western blot indicano i rapporti normalizzati tra proteina bersaglio e GAPDH. ns, non significativo; *P < 0,05; **P < 0,01; ***P < 0,001. Cliccare qui per visualizzare una versione ingrandita di questa figura.
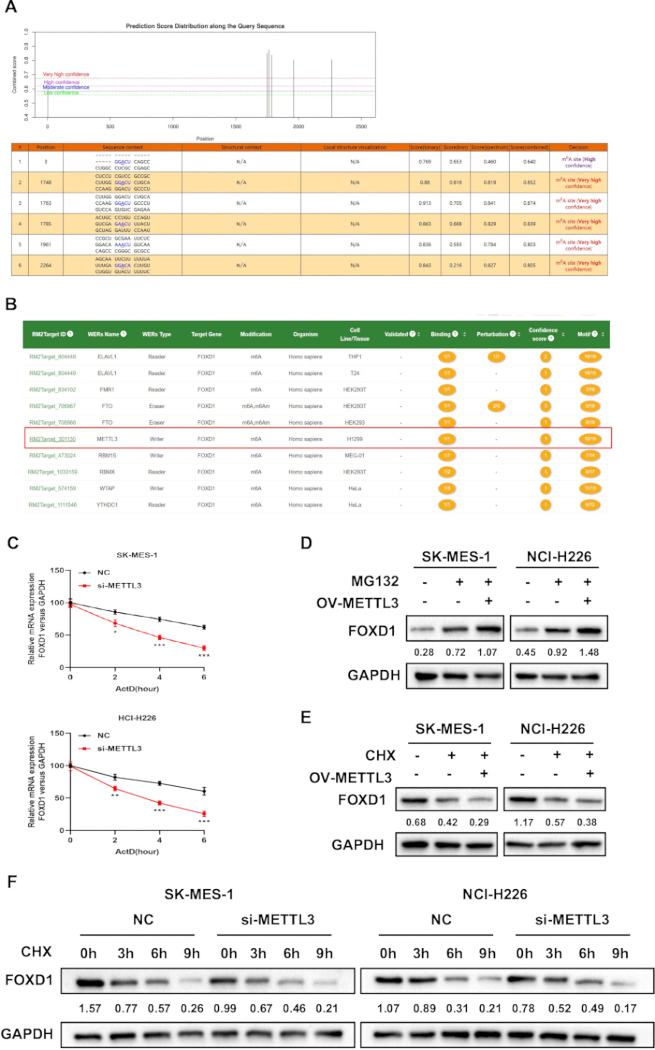
Figura 5: METTL3 è associato alla regolazione del trascritto e della proteina FOXD1. (A) Siti di N6-metiladenosina previsti da SRAMP all'interno del trascritto FOXD1. (B) Predizione tramite m6A2Target che identifica METTL3 come scrittore candidato associato a FOXD1. (C) Abbondanza relativa di mRNA di FOXD1 dopo trattamento con actinomicina D a 5 µg/mL in cellule con controllo negativo e in cellule con silenziamento di METTL3 a 0 h, 2 h, 4 h e 6 h. (D) Abbondanza della proteina FOXD1 in cellule con vettore di controllo non trattate, in cellule con vettore di controllo trattate con MG132 e in cellule che sovraesprimono METTL3 trattate con MG132 (10 µM MG132). (E) Abbondanza della proteina FOXD1 in cellule con vettore di controllo non trattate, in cellule con vettore di controllo trattate con CHX e in cellule che sovraesprimono METTL3 trattate con CHX (20 µM CHX). (F) Espressione della proteina FOXD1 dopo trattamento con CHX a 20 µM per 0 h, 3 h, 6 h e 9 h in cellule con controllo negativo e in cellule con silenziamento di METTL3. GAPDH è stata utilizzata come controllo di caricamento. Gli esperimenti cellulari sono stati eseguiti in tre replicati biologici indipendenti. I blot mostrati sono rappresentativi; i numeri sotto le bande indicano i rapporti normalizzati FOXD1/GAPDH. *P < 0,05; **P < 0,01; ***P < 0,001. Cliccare qui per visualizzare una versione ingrandita di questa figura.
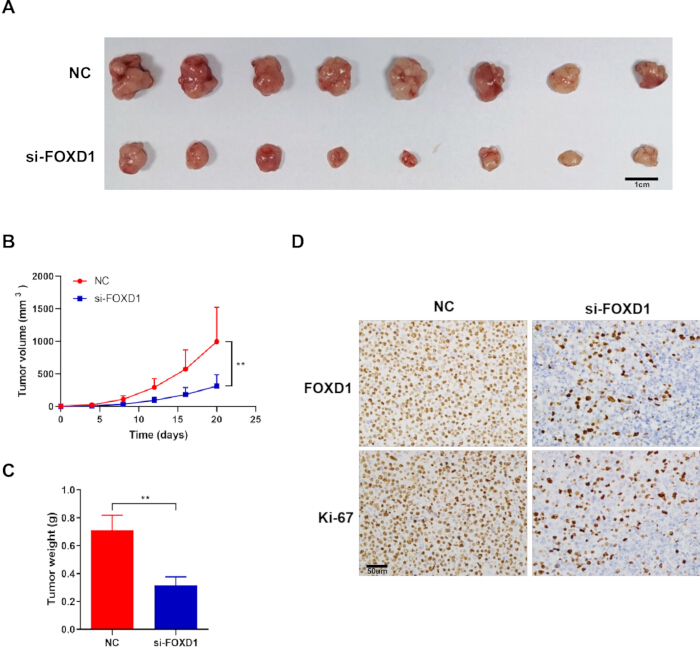
Figura 6: L'abbattimento di FOXD1 inibisce la crescita dell'impianto eterotrasplantato di SK-MES-1. (A) Tumori escissi dai gruppi di controllo negativo e con abbattimento di FOXD1; barra della scala = 1 cm. (B) Crescita tumorale misurata ogni 4 giorni per 20 giorni, a partire da una settimana dopo l'innesto, con raccolta al giorno 27 dopo l'inoculazione. (C) Peso del tumore al momento del prelievo. (D) Immunohistochimica rappresentativa per FOXD1 e Ki-67 nei tessuti dell'impianto eterotrasplantato; barra della scala = 50 µm. n = 8 topi per gruppo; **P < 0,01. Cliccare qui per visualizzare una versione ingrandita di questa figura.
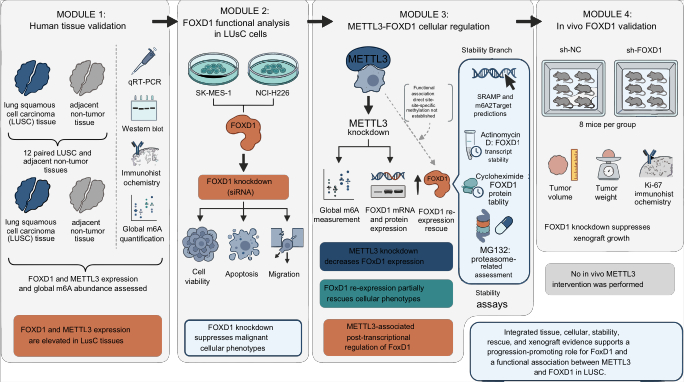
Figura 7: Progettazione complessiva dello studio e limiti delle evidenze. Tessuti di LUSC accoppiati (n = 12 coppie) e linee cellulari sono stati utilizzati per l'analisi di FOXD1, METTL3 e dell'm6A globale; dopo perturbazione genetica e recupero sono stati eseguiti saggi di vitalità, apoptosi, migrazione e stabilità. Un modello di xenotrapianto con silenziamento di FOXD1 (n = 8 topi per gruppo) è stato monitorato per 20 giorni. Il diagramma distingue le evidenze relative a METTL3 ottenute in cellule da quelle specifiche di FOXD1 ottenute in vivo e identifica il legame diretto, l'm6A sito-specifico, l'identità del lettore e l'attività di METTL3 in vivo come aspetti non testati. Cliccare qui per visualizzare una versione ingrandita di questa figura.
| Gene | Direzione | Sequenza (5′–3′) |
| FOXD1 | Forward | TCTGAGTAACGCGTTATGCTT |
| FOXD1 | Reverse | CGGAATCGGACGCAAGTCTT |
| GAPDH | Forward | GGAGCGAGATCCCTCCAAAAT |
| GAPDH | Reverse | GGCTGTTGTCATACTTCTCATGG |
| METTL14 | Forward | CTGAAAGTGCCGACAGCATTGG |
| METTL14 | Reverse | CTCTCCTTCATCCAGATACTTACG |
| METTL3 | Forward | CCAGCACAGCTTCAGCAGTTCC |
| METTL3 | Reverse | GCGTGGAGATGGCAAGACAGATG |
| RBM15 | Forward | GTTGTGGCTTATGTGGAGTTTAC |
| RBM15 | Reverse | CACTTAAAACACCGGCATTGG |
| WTAP | Forward | GCAACAACAGCAGGAGTCTGCA |
| WTAP | Reverse | CTGCTGGACTTGCTTGAGGTAC |
Tabella 1: Sequenze dei primer per la reazione a catena della polimerasi con trascrizione inversa quantitativa. Le sequenze sono riportate nella direzione 5′–3′.
Discussione
L'attuale flusso di lavoro supporta un ruolo per FOXD1 nel LUSC attraverso tessuti appaiati, due linee cellulari e un modello di xeno-trapianto. I livelli di FOXD1 erano più elevati nei campioni tumorali e nelle cellule LUSC, e la sua riduzione ha diminuito la vitalità e la migrazione, aumentando al contempo l'apoptosi. Questi risultati sono in linea con studi precedenti che associano FOXD1 alla crescita, all'invasione, alla resistenza terapeutica e a esiti sfavorevoli in diversi tipi di cancro 10,11,12,13,21,22,23,24,25,26,27,28. Tali dati ampliano inoltre osservazioni precedenti sul LUSC collegando fenotipi cellulari a un esperimento di xeno-trapianto con silenziamento di FOXD1.
Le analisi accoppiate su tessuti e cellule hanno ulteriormente associato l'abbondanza di FOXD1 a METTL3 e all'm6A globale. Quattro geni scrittori erano aumentati nelle 12 coppie tumorali, ma METTL3 mostrava la più forte associazione positiva con FOXD1. In cellule in coltura, l'esaursimento di METTL3 riduceva l'm6A globale e l'abbondanza di FOXD1, e la ri-espressione di FOXD1 ripristinava parzialmente i fenotipi associati di vitalità, apoptosi e migrazione. Questi dati supportano una relazione funzionale tra METTL3 e FOXD1 nelle cellule testate, coerente con l'ampio impatto della regolazione dell'm6A sui fenotipi maligni29,30,31,32,33,34,35,36.
Diversi punti del protocollo sono importanti per la riproducibilità. L'efficienza del knockdown deve essere confermata in ogni linea cellulare prima dei saggi funzionali, e le condizioni di recupero devono verificare il ripristino di FOXD1 senza interpretare il costrutto come un'overespressione di METTL3. I trattamenti con Actinomicina D, CHX e MG132 devono utilizzare le concentrazioni e i tempi di campionamento indicati nel protocollo. Nelle prove Transwell, devono essere controllate la densità cellulare, il gradiente di siero e un campo di imaging costante. Se un ricercatore adatta il flusso di lavoro, potrebbero essere preferibili un RNA a corta sequenza stem-loop stabile o la modifica del genoma per esperimenti in vivo di lunga durata, ma queste alternative richiedono una validazione indipendente.
Lo studio presenta diversi limiti. La coorte umana comprendeva 12 campioni appaiati e non era stata progettata per la modellizzazione degli esiti. È stato utilizzato un solo piccolo RNA interferente selezionato nei saggi funzionali, pertanto non è stata ottenuta una validazione degli effetti fuori bersaglio indipendente dalla sequenza. L'interpretazione dei risultati del western blot è limitata ai valori normalizzati mostrati nelle figure; non è stato effettuato alcun test inferenziale post hoc. Le previsioni di SRAMP e m6A2Target, le misurazioni globali di m6A e i saggi di stabilità non sostituiscono l'immunoprecipitazione dell'RNA, l'immunoprecipitazione dell'RNA metilato, la mutagenesi sito-diretta o il recupero specifico per il lettore. METTL3 non è stato alterato in vivo, quindi i dati ottenuti con i xenotrapi non possono supportare un'affermazione riguardo a METTL3 in vivo.
Studi futuri dovrebbero verificare l'inibizione farmacologica di METTL3, mappare i siti di m6A associati a FOXD1 e il suo legame diretto, identificare la proteina lettore coinvolta e ripetere la strategia di recupero in vivo. Sarebbe inoltre necessaria una coorte più ampia e annotata in modo indipendente per valutare gli esiti clinici. Entro l'attuale portata, lo studio supporta FOXD1 come regolatore funzionale del LUSC e fornisce evidenze basate su cellule che METTL3 influisce sull'abbondanza di FOXD1; tuttavia, non stabilisce un percorso completo METTL3-m6A-lettore-FOXD1.
Dichiarazioni
Gli autori dichiarano di non avere conflitti di interessi.
Autore Contributi:
D.A. e Q.D. hanno contribuito alla raccolta dei dati e all'acquisizione delle informazioni cliniche. K.W. e S.F. hanno eseguito gli esperimenti di biologia molecolare e l'analisi dei dati. L.G. ha partecipato alla progettazione dello studio e all'interpretazione dei dati. H.Z. ha effettuato l'analisi statistica e ha collaborato alla validazione dei dati. Y.S. ha condotto gli esperimenti sugli animali e l'analisi immunohistochimica. Q.P. ha contribuito ai saggi di migrazione e alle risorse sperimentali. G.L. ha ideato e supervisionato lo studio e ha redatto il manoscritto. Tutti gli autori hanno esaminato, rivisto e approvato il manoscritto.
Ringraziamenti
Gli autori ringraziano Zhe Tang e Yan Zhang per l'assistenza tecnica nella reazione a catena della polimerasi quantitativa e nel western blotting, rispettivamente, e Yang Li per l'assistenza nei saggi di vitalità cellulare e di apoptosi. Questa ricerca è stata finanziata dalla Natural Science Foundation della Regione Autonoma del Tibet (No. XZ202001ZR0040G).
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| Sistema 7500 Fast Real-Time PCR | Applied Biosystems | 7500 Fast | qRT-PCR (RRID: SCR_018051) |
| Actinomicina D | Sigma-Aldrich | SBR00013 | Saggio di stabilità dell'RNA, 5 µg/mL |
| Kit per apoptosi Annexina V-FITC/PI | BD Biosciences | 556547 | Apoptosi mediante citometria a flusso |
| Topi nudi BALB/c atimici | N/A | N/A | Xenotrapianto sottocutaneo |
| BEAS-2B | Banca cellulare dell'Accademia cinese delle scienze | https://www.cellosaurus.org/CVCL_0168 | Riferimento per epitelio bronchiale non tumorale; RRID: CVCL_0168 |
| Cell Counting Kit-8 | Beyotime | C0037 | Vitalità cellulare |
| Violetto cristallo | N/A | N/A | Colorazione Transwell, 10 min |
| Cicloesimide | MedChemExpress | HY-12320 | Saggi di stabilità proteica, 20 µM |
| Kit substrato DAB | N/A | N/A | Visualizzazione mediante immunohistochimica |
| Mezzo di Eagle modificato di Dulbecco | Gibco | 11995065 | Coltura cellulare |
| Reagente chemiluminescente potenziato | Thermo Fisher Scientific | A38556 | Rilevamento mediante Western blot |
| Siero fetale bovino | Gibco | 10091148 | Coltura cellulare, 10% |
| Citometro a flusso | N/A | N/A | Misurazione dell'apoptosi |
| Anticorpo anti-FOXD1 | Thermo Fisher Scientific | PA5-27142 | Western blot, 1:1.000; immunohistochimica |
| Costrutto di sovraespressione di FOXD1 | N/A | N/A | Recupero di FOXD1 |
| Anticorpo anti-GAPDH | Cell Signaling Technology | 5174 | Controllo di caricamento per Western blot, 1:2.000 (RRID: AB_10622025) |
| GEPIA | Università di Pechino | http://gepia.cancer-pku.cn/ | Interrogazioni di espressione e correlazione; RRID: SCR_018294 |
| GraphPad Prism | GraphPad Software | Versione 8 | Analisi statistica; RRID: SCR_002798 |
| Immunoglobulina G anti-coniglio coniugata con perossidasi di rafano | N/A | N/A | Western blot, 1 h a temperatura ambiente |
| ImageJ | Istituti Nazionali di Sanità (National Institutes of Health) | https://imagej.nih.gov/ij/ | Quantificazione delle immagini di migrazione; RRID: SCR_003070 |
| Anticorpo anti-Ki-67 | N/A | N/A | Immunohistochimica su xenotrapianto |
| m6A2Target | Risorsa web | http://m6a2target.canceromics.org/ | Associazione prevista tra regolatori e bersagli di m6A |
| Anticorpo anti-metiltransferasi-like 3 | Proteintech | 15073-1-AP | Western blot, 1:1.000; RRID: AB_2142033 |
| MG132 | MedChemExpress | HY-13259 | Saggio di inibizione del proteasoma, 10 µM |
| Saggio colorimetrico per N6-metiladenosina | Epigentek | P-9005-96 | Misurazione globale di m6A |
| NCI-H226 | Banca cellulare dell'Accademia cinese delle scienze | https://www.cellosaurus.org/CVCL_1544 | Modello cellulare di LUSC; RRID: CVCL_1544 |
| Microscopio Olympus | Olympus | Modello non registrato | Acquisizione di immagini Transwell |
| Penicillina-streptomicina | Gibco | 10378016 | Coltura cellulare, 1% |
| Membrana di fluoruro di polivinilidene | Merck | IPVH00010 | Trasferimento per Western blot |
| Kit di reagenti per trascrizione inversa PrimeScript | Takara | RR037A | Sintesi del DNA complementare |
| R Project for Statistical Computing | Fondazione R | https://www.r-project.org/ | Analisi statistica; RRID: SCR_001905 |
| Tampone di lisi per saggio di immunoprecipitazione radioattiva | Beyotime | P0013B | Estrazione proteica |
| RNAiso Plus | Takara | 9108 | Estrazione dell'RNA |
| Reagenti siRNA | N/A | N/A | Silenziamento di FOXD1 e METTL3; selezionato siRNA-1 |
| SK-MES-1 | Banca cellulare dell'Accademia cinese delle scienze | https://www.cellosaurus.org/CVCL_0630 | Modello cellulare e di xenotrapianto LUSC; RRID: CVCL_0630 |
| SRAMP | Risorsa web | http://www.cuilab.cn/sramp | Previsione di siti candidati di m6A su FOXD1 |
| Mix master PCR TB Green | Takara | RR820A | qRT-PCR |
| Reagente di trasfezione | N/A | N/A | Consegna di siRNA e plasmidi |
| Inserti Transwell | N/A | N/A | Saggio di migrazione |
Riferimenti
- Li MY, Liu LZ, Dong M. Progress on pivotal role and application of exosome in lung cancer carcinogenesis, diagnosis, therapy and prognosis. Mol Cancer. 2021;20(1):22.
- Hirsch FR, et al. Lung cancer: current therapies and new targeted treatments. Lancet. 2017;389(10066):299-311.
- Li Y, et al. Transcriptomic and functional network features of lung squamous cell carcinoma through integrative analysis of GEO and TCGA data. Sci Rep. 2018;8(1):15834.
- Fu L, et al. The value of CEP55 gene as a diagnostic biomarker and independent prognostic factor in LUAD and LUSC. PLoS One. 2020;15(5):e0233283.
- Chen TJ, et al. MicroRNA-665 facilitates cell proliferation and represses apoptosis through modulating Wnt5a/β-catenin and Caspase-3 signaling pathways by targeting TRIM8 in LUSC. Cancer Cell Int. 2021;21(1):215.
- Chen C, et al. CXCL5 induces tumor angiogenesis via enhancing the expression of FOXD1 mediated by the AKT/NF-κB pathway in colorectal cancer. Cell Death Dis. 2019;10(3):178.
- Wu Q, et al. FOXD1-AS1 regulates FOXD1 translation and promotes gastric cancer progression and chemoresistance by activating the PI3K/AKT/mTOR pathway. Mol Oncol. 2021;15(1):299-316.
- Chen Y, Liang W, Liu K, Shang Z. FOXD1 promotes EMT and cell stemness of oral squamous cell carcinoma by transcriptional activation of SNAI2. Cell Biosci. 2021;11(1):154.
- Liang H, et al. FOXD1 is a prognostic biomarker and correlated with macrophages infiltration in head and neck squamous cell carcinoma. Biosci Rep. 2021;41(7):BSR20202929.
- Zhao YF, et al. FOXD1 promotes breast cancer proliferation and chemotherapeutic drug resistance by targeting p27. Biochem Biophys Res Commun. 2015;456(1):232-7.
- Nakayama S, et al. FOXD1 expression is associated with poor prognosis in non-small cell lung cancer. Anticancer Res. 2015;35(1):261-8.
- Li D, et al. FOXD1 promotes cell growth and metastasis by activation of vimentin in NSCLC. Cell Physiol Biochem. 2018;51(6):2716-2731.
- Chen C, et al. miR-30a-5p inhibits proliferation and migration of lung squamous cell carcinoma cells by targeting FOXD1. Biomed Res Int. 2020;2020:2547902.
- Chen XY, Zhang J, Zhu JS. The role of m(6)A RNA methylation in human cancer. Mol Cancer. 2019;18(1):103.
- Jiang X, et al. The role of m6A modification in the biological functions and diseases. Signal Transduct Target Ther. 2021;6(1):74.
- Ma Z, Ji J. N6-methyladenosine (m6A) RNA modification in cancer stem cells. Stem Cells. 2020;38(12):1511-1519.
- Gao R, et al. m6A modification: a double-edged sword in tumor development. Front Oncol. 2021;11:679367.
- He L, et al. Functions of N6-methyladenosine and its role in cancer. Mol Cancer. 2019;18(1):176.
- Sun T, Wu R, Ming L. The role of m6A RNA methylation in cancer. Biomed Pharmacother. 2019;112:108613.
- An Y, Duan H. The role of m6A RNA methylation in cancer metabolism. Mol Cancer. 2022;21(1):14.
- Sack LM, et al. Profound tissue specificity in proliferation control underlies cancer drivers and aneuploidy patterns. Cell. 2018;173(2):499-514.e23.
- Vazquez A, et al. Cancer metabolism at a glance. J Cell Sci. 2016;129(18):3367-73.
- Cai K, et al. FOXD1 facilitates pancreatic cancer cell proliferation, invasion, and metastasis by regulating GLUT1-mediated aerobic glycolysis. Cell Death Dis. 2022;13(9):765.
- Zhou L, et al. Down-regulation of miR-30a-5p is associated with poor prognosis and promotes chemoresistance of gemcitabine in pancreatic ductal adenocarcinoma. J Cancer. 2019;10(21):5031-5040.
- Pan F, Li M, Chen W. FOXD1 predicts prognosis of colorectal cancer patients and promotes colorectal cancer progression via the ERK 1/2 pathway. Am J Transl Res. 2018;10(5):1522-1530.
- Qiu S, et al. Diagnostic and prognostic value of FOXD1 expression in head and neck squamous cell carcinoma. J Cancer. 2021;12(3):693-702.
- Wu T, et al. miR-30e-5p-mediated FOXD1 promotes cell proliferation by blocking cellular senescence and apoptosis through p21/CDK2/Rb signaling in head and neck carcinoma. Cell Death Discov. 2023;9(1):295.
- Sun Q, et al. FOXD1 promotes dedifferentiation and targeted therapy resistance in melanoma by regulating the expression of connective tissue growth factor. Int J Cancer. 2021;149(3):657-674.
- Wang T, Kong S, Tao M, Ju S. The potential role of RNA N6-methyladenosine in cancer progression. Mol Cancer. 2020;19(1):88.
- Zeng C, Huang W, Li Y, Weng H. Roles of METTL3 in cancer: mechanisms and therapeutic targeting. J Hematol Oncol. 2020;13(1):117.
- Haussmann IU, et al. m6A potentiates Sxl alternative pre-mRNA splicing for robust Drosophila sex determination. Nature. 2016;540(7632):301-304.
- Liu N, et al. N(6)-methyladenosine-dependent RNA structural switches regulate RNA-protein interactions. Nature. 2015;518(7540):560-4.
- Kennedy EM, et al. Posttranscriptional m6A editing of HIV-1 mRNAs enhances viral gene expression. Cell Host Microbe. 2016;19(5):675-685.
- Lin S, et al. The m(6)A methyltransferase METTL3 promotes translation in human cancer cells. Mol Cell. 2016;62(3):335-345.
- Han J, et al. METTL3 promote tumor proliferation of bladder cancer by accelerating pri-miR221/222 maturation in m6A-dependent manner. Mol Cancer. 2019;18(1):110.
- Li A, et al. Cytoplasmic m(6)A reader YTHDF3 promotes mRNA translation. Cell Res. 2017;27(3):444-447.