Presentiamo un protocollo tridimensionale di deplezione mediante emissione stimolata (3D STED) che combina saggi di uptake e perturbazione farmacologica per visualizzare il traffico delle proteine di membrana in dischi immaginali di ali di Drosophila integri con risoluzione super-ottica quasi isotropa.
Articolo metodologico
Visualizzazione del Traffico Proteico in Contesto di Tessuto Intero mediante Nanoscopia a Super-Risoluzione in Drosophila
In questo articolo
Sommario
Abstract
La mosca della frutta Drosophila melanogaster è ampiamente utilizzata per studiare vie di segnalazione cellulare e sviluppo conservate in vivo. Molte vie di segnalazione, inclusa la segnalazione Wnt, dipendono da eventi di secrezione, endocitosi e traffico intracellulare strettamente regolati. Tuttavia, la visualizzazione della dinamica delle proteine associate alla membrana all'interno di tessuti epiteliali integri, come i dischi immaginali delle ali, rimane difficoltosa a causa delle piccole dimensioni e dell'organizzazione colonnare densamente impacchettata di queste cellule. Qui presentiamo un protocollo che combina la nanoscopia tridimensionale a deplezione stimolata (3D STED) con saggi di uptake e perturbazioni farmacologiche nei dischi immaginali delle ali di Drosophila. Questo flusso di lavoro consente l'acquisizione di immagini a super-risoluzione della dinamica delle proteine associate alla membrana all'interno dell'architettura tissutale integra, con risoluzione quasi isotropica. Utilizzando le cellule secernenti Wingless come esempio, visualizziamo la localizzazione e il traffico di Wingless (Wg) alla membrana apicale. Per analizzare i processi di traffico dinamico, il flusso di lavoro di imaging viene combinato con un saggio di uptake che etichetta selettivamente le proteine coinvolte nella secrezione e nella reinternalizzazione entro una finestra temporale definita. In combinazione con inibitori chimici e visualizzazione mediante nanoscopia 3D STED, questo approccio consente l'analisi funzionale della dinamica del traffico delle membrane. Nel complesso, questo flusso di lavoro fornisce un quadro versatile per lo studio dell'organizzazione della membrana e del traffico delle proteine a risoluzione subcellulare in campioni tissutali interi di Drosophila.
Introduzione
Il moscerino della frutta Drosophila melanogaster è un organismo modello ampiamente utilizzato in biologia dello sviluppo, evoluzione, comportamento e ricerca biomedica, inclusi lo studio del cancro e altre malattie umane1,2. Molti percorsi fondamentali di segnalazione cellulare sono altamente conservati tra Drosophila e i vertebrati, rendendo questo sistema modello particolarmente prezioso per l'indagine di meccanismi biologici conservati in vivo.
In questo protocollo, il disco immaginale dell'ala di Drosophila viene utilizzato come sistema modello per studiare la dinamica associata alle membrane nel percorso di segnalazione Wingless (Wg)/Wnt. Molti percorsi di segnalazione dello sviluppo dipendono da una secrezione strettamente regolata, dal posizionamento sulla membrana, dall'endocitosi e dal traffico intracellulare delle molecole di segnalazione3. Questo è il caso anche al confine dorsoventrale (DV) del disco immaginale dell'ala, dove Wg viene secreto dalle cellule produttrici a livello della membrana apicale e trasportato verso le cellule riceventi adiacenti attraverso interazioni con le glicopicane4,5,6,7. Nelle cellule riceventi, Wg si lega ai recettori Frizzled e attiva la segnalazione Wnt a valle. Oltre al pool di Wg che viene trasportato lontano dal confine DV, una frazione di Wg viene ri-internalizzata dalle cellule produttrici e indirizzata attraverso il sistema endosomiale verso specifiche destinazioni intracellulari8,9,10. Le cellule produttrici di Wg al confine DV forniscono quindi un eccellente modello per indagare il traffico delle membrane, la dinamica della secrezione e i meccanismi cellulari che regolano l'attività di segnalazione in vivo.
Tuttavia, l'architettura altamente colonnare delle cellule epiteliali dei dischi immaginali rende difficoltosa la visualizzazione, richiedendo una risoluzione più elevata e più isotropica di quella ottenibile con la microscopia confocale convenzionale per risolvere singole vescicole. Per superare questi limiti, abbiamo ottimizzato le condizioni di preparazione del tessuto, di colorazione e di acquisizione immagini per la nanoscopia a super-risoluzione in tessuti Drosophila integri. In particolare, abbiamo stabilito un flusso di lavoro per la nanoscopia tridimensionale mediante deplezione stimolata dell'emissione (3D STED) che consente la visualizzazione ortogonale della localizzazione di proteine associate alla membrana lungo l'asse apicale-basale dell'epitelio11,12. La 3D STED è particolarmente adatta a questa applicazione poiché offre una risoluzione assiale migliore rispetto alla microscopia confocale convenzionale, permettendo la visualizzazione di fini strutture subcellulari in tessuti densamente impacchettati13,14. Utilizzando questo approccio, abbiamo analizzato la regione della membrana apicale di cellule secernenti Wg al confine DV del disco immaginale dell'ala e abbiamo rilevato Wg sulla membrana apicale insieme ad altre proteine associate alla membrana, come Discs large 1 (Dlg1) o Evenness interrupted/Wntless (Evi/Wls).
Per approfondire lo studio della dinamica del traffico proteico, questo flusso di lavoro di imaging è stato combinato con un saggio di uptake precedentemente stabilito15. Questo saggio consente la rilevazione selettiva di proteine che hanno subito secrezione e successiva re-internalizzazione entro un intervallo di tempo definito, permettendo così la visualizzazione di un pool dinamico di proteine in transito attraverso la membrana plasmatica. Per ampliarne l'utilità, il saggio di uptake è stato abbinato a perturbazioni farmacologiche, consentendo l'analisi di come specifici processi cellulari influenzino la dinamica del traffico di membrana. Nel complesso, questi approcci forniscono un quadro metodologico potente per lo studio dei meccanismi di traffico proteico, secrezione e segnalazione nel loro contesto tissutale nativo con elevata risoluzione spaziale.
Inoltre, il protocollo è compatibile con una vasta gamma di approcci di colorazione, inclusi i protocolli standard di immunofluorescenza. È inoltre possibile l'incorporazione di coloranti fluorescenti, ampliando ulteriormente l'insieme di strutture cellulari e bersagli molecolari visualizzabili. In tutti i casi, i fluorocromi devono essere scelti in base alla compatibilità con la nanoscopia STED. Sebbene il presente protocollo si concentri sull'immagine 3D STED a due colori (rosso e rosso lontano), il flusso di lavoro può essere facilmente adattato a ulteriori fluorocromi e configurazioni alternative di imaging, aumentandone così la flessibilità per diverse applicazioni sperimentali.
Nel complesso, questo protocollo stabilisce un quadro versatile per combinare la nanoscopia a super-risoluzione STED con approcci di perturbazione funzionale in tessuti di Drosophila integri. Il flusso di lavoro fornisce una base per futuri studi volti a indagare l'organizzazione della membrana, il traffico delle proteine e la dinamica dei segnali a risoluzione subcellulare all'interno di ambienti tessutali complessi.
Protocollo
1. Saggio combinato di trattamento con inibitore ex vivo e di captazione
NOTA: Fare riferimento alla Tabella dei materiali per informazioni dettagliate sui prodotti chimici e sui materiali utilizzati.
- Preparazione del mezzo e delle soluzioni
- Preparare il mezzo SchM+.
- Aggiungere il 4% di siero fetale bovino (FBS) al mezzo per insetti di Schneider e mescolare bene.
NOTA: Il mezzo SchM+ deve essere preparato fresco il giorno dell'esperimento.
- Aggiungere il 4% di siero fetale bovino (FBS) al mezzo per insetti di Schneider e mescolare bene.
- Preparare 1× PBS-T
- Aggiungere 0,1% di Triton X-100 a 1× soluzione salina tamponata al fosfato (PBS) e mescolare bene.
- Preparare le soluzioni dei composti chimici.
ATTENZIONE: Molti dei seguenti composti chimici sono considerati citotossici, pertanto è essenziale manipolarli con attenzione all'interno di una cappa aspirante, utilizzando l'equipaggiamento adeguato e smaltendo i rifiuti in modo appropriato.- Dynasor2-24: Sciogliere Dynasor2-24 (noto anche come Dyngo-4a) in dimetilsulfossido (DMSO), secondo le istruzioni del produttore, per preparare una soluzione madre da 10 mM. Per il trattamento, diluire la soluzione madre 1:1000 o 1:2000 in SchM+ per ottenere concentrazioni finali di 10 µM o 5 µM, rispettivamente.
- Controllo DMSO: diluire DMSO 1:1000 in SchM+ e utilizzare 200 µL come controllo negativo in ogni esperimento.
- Preparare il tampone acido per il saggio di uptake.
- Preparare una soluzione di 0,1 M di glicina in H₂O2O.
- Regolare il pH a 3,5 con HCl al 37%.
- Preparare il mezzo SchM+.
- Raccolta del campione
- Mantenere le mosche a 25 °C con un ciclo luce/buio di 12/12 h.
- Raccogliere le larve allo stadio L3 (larvale 3) dai vial utilizzando pinzette e posizionarle in una piastra di vetro per colorazioni a 12 pozzetti, ciascuno riempito con SchM+.
NOTA: Preparare una quantità sufficiente di tessuto da includere sempre campioni di controllo in ogni replica sperimentale. - Aprire i larve all'estremità posteriore ed evertirle.
- Rimuovere l'intestino e il corpo adiposo dal tessuto larvale capovolto nel modo più accurato possibile, mantenendo il tessuto immerso nella soluzione SchM+.
- Quindi, trasferire il tessuto in una provetta PCR da 0,2 mL contenente SchM+.
NOTA: posizioniamo solo 6-7 larve capovolte per provetta di reazione a catena della polimerasi (PCR) per garantire un'immersione completa e un movimento libero del tessuto.
NOTA: Si deve evitare di riempire eccessivamente il tubo con il tessuto per prevenire artefatti durante la colorazione. Fare riferimento al Tabella dei materiali per informazioni dettagliate sui prodotti chimici e sui materiali utilizzati in questo studio.
- Ex vivo trattamento con inibitore e saggio di assorbimento
- Rimuovere il mezzo SchM+ dal campione.
- Aggiungere la soluzione del composto chimico precedentemente preparata secondo necessità, ad esempio 200 µL di 5 µM Soluzione Dynasor2-24
ATTENZIONE: Questi composti chimici sono considerati citotossici e il loro utilizzo richiede un'accurata manipolazione sotto cappa aspirante, con l'equipaggiamento adeguato e lo smaltimento dei rifiuti in modo appropriato. - Aggiungere 200 µL di soluzione di DMSO (1:1000) al campione di controllo, rappresentando un controllo negativo.
- Per il saggio di uptake (Witte et al., 202115), aggiungere l'anticorpo primario alla soluzione del farmaco: utilizzare anti-Wg in diluizione 1:20 per la rilevazione di Wg e anti-GFP in diluizione 1:40 per la rilevazione di proteine marcate con proteina fluorescente verde (GFP).
- Incubare i campioni a temperatura ambiente (RT) per 90 min al buio.
NOTA: Il saggio di uptake è facoltativo e può essere facilmente escluso dal protocollo se non necessario. Inoltre, possono essere utilizzati altri composti chimici a seconda della domanda sperimentale. Si raccomanda di effettuare una titolazione del composto e di determinare la concentrazione ottimale per ogni singola applicazione. Consultare il Tabella dei materiali per informazioni dettagliate sui prodotti chimici e sui materiali utilizzati in questo studio.
- Fissazione del campione
- Rimuovere la soluzione di colorazione del passaggio 1.3 immediatamente dopo il tempo di incubazione.
- (Opzionale) Lavare i campioni due volte con 200 µL di SchM+
- Per una corretta rimozione dell'anticorpo primario del saggio di uptake, lavare il tessuto per 5 min con il tampone acido a temperatura ambiente (RT).
- Lavare rapidamente 3 volte× per 3 min con SchM+
- Fissare i campioni in formaldeide al 4% in SchM+ per 30 min a temperatura ambiente.
- Incubazione con anticorpo primario
NOTA: Se è richiesto un anticorpo primario aggiuntivo insieme all'anticorpo utilizzato nel saggio di uptake, esso deve essere applicato in questa fase e processato secondo le procedure standard di colorazione per immunohistochimica.- Bloccare il tessuto con siero di capra normale al 4% in 1× PBS-T per almeno 30 min a temperatura ambiente sotto agitazione delicata.
- Rimuovere la soluzione di blocco.
- Aggiungere la soluzione dell'anticorpo primario in 1× PBS alla concentrazione desiderata (esempi: anti-wg 1:200, anti-dlg1 1:50 o anti-GFP 1:200, o qualsiasi altro anticorpo richiesto)
- Incubare i campioni a 4 °C per tutta la notte sotto leggera agitazione.
- (Opzionale) Incubare con l'anticorpo primario per almeno 1,5 h a temperatura ambiente sotto agitazione delicata.
- NOTA: Fare riferimento al Tabella dei materiali per informazioni dettagliate sui prodotti chimici e sui materiali utilizzati in questo studio.
- Incubazione con l'anticorpo secondario
- Rimuovere la soluzione dell'anticorpo primario.
NOTA: Soluzione dell'anticorpo primario utilizzata in 1× PBS può essere riutilizzato più volte se conservato in un tubo da reazione fresco da 1,5 mL a 4 °C. - Lavare il tessuto 3 volte× 10 min in 1× PBS-T con agitazione delicata.
Aggiungere gli anticorpi secondari desiderati in diluizione 1:200 in 1× PBS-T con colorazione contro-nucleare Hoechst33342 1:2000. Gli anticorpi secondari per STED includono anti-topo da pollo Alexa Fluor 594, anti-coniglio da capra Alexa Fluor 594, anti-coniglio da capra STAR635P e anti-topo da capra STAR635P. Fare riferimento al Tabella dei materiali per informazioni dettagliate sui prodotti chimici e sui materiali utilizzati in questo studio. - Incubare nell'anticorpo secondario per tutta la notte a 4 °C (Opzionale: incubare per almeno 1,5 h sotto lieve agitazione a temperatura ambiente).
- Lavare il tessuto il giorno successivo, 3 volte× 10 min in 1× PBS-T con agitazione delicata. I campioni sono ora pronti per essere montati per l'immagine STED. Vedere l'intero flusso di lavoro Figura 1.
NOTA: L'ottica del microscopio è tipicamente progettata per 23 °C funzionamento, a meno che non siano richieste altre condizioni. La stabilità della temperatura è fondamentale, poiché le fluttuazioni causano deriva termica e possono influenzare la temporizzazione del laser. Una temperatura ambiente stabile compresa tra 20–23 °C (≤ ±±1 °C si consiglia di utilizzare fluttuazioni16., con 21,5–22 °C spesso compensando il calore generato dal microscopio. Tutti i componenti del microscopio devono raggiungere l'equilibrio termico prima dell'acquisizione delle immagini. Gli incubatori da piastra offrono un controllo preciso della temperatura del campione, ma gli involucri possono trattenere calore e aumentare la deriva. Il raffreddamento attivo migliora la stabilità. In questo studio, un incubatore su misura (EMBL Heidelberg) ha mantenuto una temperatura di 21,5 ±± 0.05 °C, minimizzando la deriva termica e garantendo prestazioni stabili di STED 3D.
- Rimuovere la soluzione dell'anticorpo primario.
2. Preparazione del campione per la nanoscopia 3D STED a super risoluzione e acquisizione delle immagini
- Preparazione dell'attrezzatura e dei materiali:
- Impostare il microscopio.
- Assicurarsi di utilizzare un microscopio appropriato per l'esperimento. In questo caso, è stato utilizzato il microscopio Leica Stellaris 8 STED Falcon.
- Utilizzare un obiettivo appropriato. In questo caso, è stato utilizzato l'obiettivo HC PL APO 86x/1.20 W motCORR STED white.
- Per consentire un'adeguata acquisizione delle immagini, accendere l'intero sistema del microscopio almeno 2 h prima dell'acquisizione (vedere NOTA dopo il punto 1.6.4).
- Preparare piastre rivestite con poli-L-lisina.
- Preparare una soluzione di poli-L-lisina con 0,6% di poli-L-lisina e 0,002% di Photo Flo in acqua deionizzata2O. Aliquotare la soluzione e conservarla a lungo termine a -20 °C. Dopo il scongelamento, mantenere a 4 °C e riutilizzare fino a 10 volte.
- Aggiungere 200 µL di soluzione di poli-L-lisina al fondo in vetro coprioggetto 1,5H µ-piatto (∅35 mm
- Posizionare le piastre in posizione verticale e inclinata per l'essiccazione.
- Dopo che la soluzione di poli-L-lisina si è completamente asciugata, ripetere nuovamente il rivestimento.
- Aggiungere con attenzione distanziatori di smalto per unghie su 2 lati del fondo in vetrino della piastra
- Dopo il montaggio, coprire i campioni con vetrini rotondi 1.5H (∅coprivetrini da 12 mm (vedere Figura 2).
- Impostare il microscopio.
- Impostazione per il montaggio in STED 3D
- NOTA: Per la nanoscopia 3D STED (si veda la NOTA dopo il passaggio 2.2.12), è essenziale abbinare gli indici di rifrazione tra l'obiettivo STED e il mezzo di montaggio (esempio qui: obiettivo ad acqua e 1× mezzo di montaggio PBS
- Posizionare i campioni in una piccola piastra di Petri riempita con 1× PBS
- Aggiungere 15 µL di 1× PBS in una goccia su una piastra rivestita con poli-L-lisina precedentemente preparata.
- Dissezionare i dischi immaginali delle ali dal tessuto larvale residuo e posizionarli in un 15 µL 1× Goccia di PBS
- Assicurarsi che i dischi alari siano attaccati al coverslip rivestito e non galleggino.
- Non premere i dischi con alcuna forza; lasciarli affondare delicatamente sul vetrino. Per un'orientazione corretta, assicurarsi che i dischi alari siano montati con la membrana peripodale rivolta verso il basso, in direzione del vetrino.
- Dopo il montaggio, coprire i campioni con vetrini rotondi 1.5H (∅Coverslip da 12 mm.
- Assicurarsi che i bordi del vetrino coprioggetto poggino sugli spessori di smalto per unghie applicati in precedenza, per evitare di schiacciare il campione.
- Sigillare il vetrino con smalto per unghie su tutti i lati per evitare l'evaporazione del mezzo di montaggio.
- Mantenere le piastre al buio fino all'immagine finale.
- Regolare la temperatura del campione alla temperatura della camera di incubazione del microscopio posizionando il campione nella camera di incubazione almeno 30 minuti prima dell'acquisizione delle immagini al microscopio.
- Per evitare qualsiasi movimento del campione, stabilizzare la piastra nel supporto del microscopio utilizzando un adesivo sensibile alla pressione (ad esempio, Blu Tack).
NOTA: I termini STED 2D e STED 3D descrivono il tipo di miglioramento della risoluzione, non se viene acquisita una singola immagine o uno z-stack12,17. La STED 2D migliora esclusivamente la risoluzione laterale (x,y), tipicamente fino a <50 nm, mentre la risoluzione assiale (z) rimane simile a quella della microscopia confocale (~600 nm). È relativamente robusta e in genere tollera un'imperfetta corrispondenza tra l'indice di rifrazione del campione e quello del mezzo di immersione dell'obiettivo12. La STED 3D migliora sia la risoluzione laterale che assiale, con un notevole incremento lungo l'asse z. Ottimizzando il fluoroforo e le condizioni di esaurimento STED, è possibile ottenere una risoluzione quasi isotropica di ~100-120 nm in campioni biologici17,18Tuttavia, il modello di deplezione 3D STED è altamente sensibile alle aberrazioni sferiche. Un'immagine di successo richiede quindi un accurato abbinamento dell'indice di rifrazione e una regolazione precisa del collare di correzione dell'obiettivo rispetto allo spessore effettivo del coprioggetto.
- Requisiti e configurazione della nanoscopia
- Accendere tutti i dispositivi del microscopio necessari secondo le istruzioni del produttore.
- Non accendere ancora le chiavi del laser.
- Impostare la temperatura della camera di incubazione del microscopio a 22–23 °C almeno 1,5 h prima dell'acquisizione delle immagini.
- Posizionare il campione anche nella camera del microscopio e lasciarlo acclimatare alla temperatura per almeno 30 minuti.
- Accendere il computer e aprire il software LAS X (versione 4.9.0).
- Selezionare Imaging STED nella finestra iniziale ed avviare il software
- Quando il software è caricato, attivare le chiavi di sicurezza di entrambi i laser quando le relative spie mostrano colore verde.
- Vai al Acquisire scheda e selezionare l'obiettivo STED appropriato (HC PL APO 86x/1.20 W motCORR STED).
- Vai al Configurazione scheda e fare clic sul pulsante per Configurazione del laser.
- Fare clic su tutti i cursori del laser per attivarli ACCESO.
- Vai al Configurazione scheda e fare clic sul pulsante per STED.
- Cliccare Allinea i fasci.
- Ripetere l'allineamento dei fasci dopo 30 min e 2 h di acquisizione delle immagini per garantire un allineamento ottimale; ripetere successivamente se necessario, ad esempio quando si osserva una riduzione della risoluzione o un aumento dello sfondo
- Allineare il collare di correzione (motorizzato) dell'obiettivo allo spessore del coprioggetto utilizzando il segnale di riflessione della superficie del coprioggetto:
- Vai al Acquisire scheda e iniziare a impostare il valore motCORR.
- Creare un nuovo canale per la fluorescenza GFP in confocale modalità e messa a fuoco sulle cellule del campione.
- Fare clic su Vivo pulsante e spostare il campione in una posizione in cui non è presente alcun campione.
- Interrompere l'acquisizione di immagini in tempo reale.
- Assicurarsi che per questo canale venga utilizzato esclusivamente il rivelatore HyDS.
- Impostare il Filtro notch configurazione a Riflessione.
- Fare clic su Orientamento pulsante e selezionare Orientamento xzy.
- Ridurre la velocità di acquisizione rapida in tempo reale a 100 Hz se il campione appare instabile o presenta movimenti lungo l'asse z.
- Avviare l'acquisizione in tempo reale facendo clic su Vita rapida pulsante
- Individuare il coprivetrino del campione, che apparirà come una linea
- Regolare il valore di motCORR finché il segnale di questa riga non risulta il più nitido e stretto possibile
NOTA: Con un coprioggetto da 1,5H, il valore è tipicamente compreso tra il 48% e il 56%. - Ora inizia a selezionare i canali per l'acquisizione delle immagini nel Acquisire scheda
- Fare riferimento a Tabella 1 per le impostazioni di rilevamento di Alexa Fluor 594 e STAR635P in modalità STED.
- Imaging
- Selezionare l'area di imaging attraverso gli oculari del microscopio.
- Ruotare con attenzione il campione per allineare verticalmente il confine DV (Figura 2).
- Chiudere lo shuter del microscopio e passare all'immagine confocale, utilizzando il microscopio tramite il computer.
- Cliccare Veloce in tempo reale pulsante, regolare il fuoco e verificare l'orientamento del confine DV.
- Interrompere l'imaging in tempo reale.
- (Facoltativo) Acquisire un'immagine panoramica nell'orientamento xyz in modalità confocale (impostare il laser STED al 0% in entrambi i canali) per riferimento successivo in questa fase. Accendere il laser STED dopo l'acquisizione dell'immagine panoramica.
- Selezionare l'orientamento xzy e regolare la linea visualizzata esattamente sull'area di interesse per l'imaging ortogonale.
- Fare clic su Vita rapida pulsante e regolare il fuoco se necessario.
- Regolare la posizione x del campione utilizzando la manopola z del microscopio.
- Assicurarsi che i laser STED siano accesi per entrambi i canali e che tutte le impostazioni siano corrette.
- Cliccare Avviare l'esperimento.
- L'intensità per pixel (rilevatore in modalità conteggio di fotoni) è compresa tra 50 e 300 fotoni rilevati; tale valore dipende anche dalla potenza del laser, dal tempo di permanenza per pixel e dal numero di accumuli di linea applicati. Se è disponibile il modulo per misure di tempo di vita fluorescente (FLIM, Falcon), verificare che venga rilevato meno di un fotone per impulso laser.
- Regolare i valori secondo le esigenze del singolo campione.
- Sfide per la nanoscopia STED
- Per visualizzare un'area morfologica specifica in 3D STED, ruotare e orientare il campione al microscopio in modo da allineare con precisione il tessuto all'asse richiesto prima di passare dalla vista XY a quella XZ. Ottenere questa libertà di movimento montando i campioni su piatti rotondi, che possono essere spostati secondo le esigenze sperimentali (Figura 2).
- Durante la scansione xz, il campione viene spostato fisicamente lungo l'asse z, il che inizialmente ha causato un leggero movimento del piatto lungo il piano xy a causa delle oscillazioni lungo l'asse verticale. Per evitare qualsiasi movimento dei piatti, fissare il piatto al supporto del campione del microscopio utilizzando una pasta modellabile adesiva (Blu Tack). Questo accorgimento consente una libera rotazione, impedendo al contempo movimenti verticali (lungo l'asse z).
- Per prevenire l'evaporazione del mezzo di montaggio e l'essiccazione del tessuto, i coprioggetti sono stati sigillati con smalto per unghie.
- Per evitare il movimento del campione causato da differenze di temperatura tra il campione e il microscopio, portare i campioni nella camera di incubazione del microscopio almeno 30 minuti prima dell'acquisizione delle immagini e lasciarli acclimatare alla temperatura del microscopio.16.
- Per la selezione dell'anticorpo secondario, seguire i passaggi riportati di seguito:
- Un'ampia gamma di fluorofori è adatta all'immagine STED, ma solo un sottoinsieme combina proprietà fotofisiche e spettrali favorevoli per l'immagine STED a due colori utilizzando un singolo laser di deplezione (in questo caso, 775 nm). Utilizzare una stessa lunghezza d'onda di deplezione STED per entrambi i fluorofori per garantire un allineamento cromatico intrinseco ed eliminare la necessità di correzione dello spostamento cromatico, definendo entrambi i canali con lo stesso modello di deplezione STED.
- Coppie comuni di fluorofori includono STAR RED/STAR635P, ATTO 647N/ATTO 643, combinate con Alexa Fluor 594, STAR 580 o STAR ORANGE18,19. Qui è stata utilizzata la combinazione ampiamente adottata di Alexa Fluor 594 e STAR635P. Sebbene i loro spettri di emissione si sovrappongano parzialmente, acquisire i fluorofori in modalità riga per riga utilizzando una finestra di rilevamento stretta per Alexa Fluor 594 al fine di minimizzare il crosstalk (vedere Tabella 1). Poiché ciò riduce l'efficienza di rilevamento di Alexa Fluor 594, assegnare la colorazione immunoistochimica più intensa a questo canale.
Risultati
Per stabilire condizioni di imaging adeguate per la nanoscopia 3D STED nei dischi immaginali dell'ala, abbiamo innanzitutto eseguito una colorazione standard di immunofluorescenza per Wg e per la proteina associata alla membrana apicale Dlp. Wg è stato rilevato utilizzando Alexa Fluor 594, mentre Dlp è stato marcato con STAR635P, due fluorofori compatibili con la nanoscopia STED (Figura 3). Le immagini sono state acquisite sia senza deplezione STED, al fine di ottenere immagini di qualità confocale, sia con deplezione STED per l'imaging a super-risoluzione, utilizzando le impostazioni descritte al punto 2.3 (Figura 3).
Il confronto diretto della stessa regione del tessuto acquisita in condizioni confocali e STED come sezioni xz ha dimostrato l'incremento sostanziale nella risoluzione spaziale offerto dalla nanoscopia 3D STED (Figura 3A–D′). Strutture che apparivano come segnali allungati nelle immagini confocali (Figura 3A,A′ e Figura C,C′) sono state risolte in punti distinti multipli in modalità STED (Figura 3B,B′ e Figura D,D′). Questo miglioramento è stato osservato sia nei canali Alexa Fluor 594 che STAR635P ed è stato utilizzato per ottimizzare i parametri di marcatura e acquisizione al fine di ottenere la massima qualità del segnale e una risoluzione isotropa nel tessuto integro dell'immagazzino alare.
Successivamente, abbiamo combinato il saggio di uptake di Wg15 con l'inibizione farmacologica per studiare il traffico di Wg alla membrana apicale e il suo riciclo attraverso l'endocitosi dipendente dalla clatrina. Abbiamo utilizzato una linea di moscerini con Wg etichettato endogenamente con GFP20, che consente la rilevazione di Wg::GFP extracellulare mediante anticorpo anti-GFP, mantenendo al contempo la compatibilità con ulteriori anticorpi derivati dal topo.
I dischi immaginali delle ali sono stati trattati con Dynasore 2-24, un inibitore della dinamina che agisce sull'endocitosi mediata da clatrina e dipendente dalla dinamina21,22, e successivamente sottoposti al saggio di Uptake di Wg. La Wg::GFP extracellulare è stata marcata con un anticorpo anti-GFP per monitorarne l'internalizzazione, mentre la colorazione con anti-Dlg1 è stata utilizzata per visualizzare la morfologia del tessuto. La Wg è stata rilevata con Alexa Fluor 594 e immaginata in modalità STED, mentre Dlg1 è stata marcata con STAR635P (Figura 4). Nei dischi di controllo trattati con DMSO si è osservata un'internalizzazione progressiva della Wg::GFP durante tutto il saggio di Uptake, con un segnale endocitotico rilevato fino a una profondità di circa 14 µm (Figura 4A,A′). L'esperimento è stato ripetuto in modo indipendente due volte seguendo i protocolli descritti nelle sezioni 1 e 2 (Figura 4B,C). Nel primo replicato, il trattamento con 5 µM di Dynasore2-24 ha completamente abolito l'uptake di Wg (n = 4; Figura 4B,B′). Nel secondo replicato, l'internalizzazione della Wg è risultata ridotta ma non eliminata (n = 4; Figura 4C,C′), con una profondità massima di penetrazione diminuita a circa 5 µm.
Questa variabilità è comunemente osservata negli esperimenti di inibizione farmacologica e probabilmente riflette differenze nell'efficacia o nei tempi di azione dell'inibitore. Un'inibizione incompleta, una limitata penetrazione del tessuto da parte dell'inibitore, il recupero dell'endocitosi durante il saggio o ritardi introdotti dai passaggi di lavaggio acido e di fissazione possono tutti contribuire all'internamento residuo di Wg. Tuttavia, entrambi gli esperimenti hanno mostrato in modo costante una riduzione marcata dell'assorbimento di Wg e della profondità di penetrazione rispetto ai controlli con DMSO, dimostrando un'inibizione efficace dell'endocitosi. Questi risultati sottolineano inoltre che i tempi precisi durante tutto il protocollo sono fondamentali per ottenere risultati riproducibili.
A volte si osservava un segnale residuo associato alla membrana dopo il trattamento acido, che probabilmente rappresenta molecole di Wg::GFP già entrate nelle fossette endocitiche precoci e quindi inaccessibili alla rimozione degli anticorpi23,24,25.
Nel complesso, questi esperimenti dimostrano che la combinazione del saggio di internalizzazione di Wg con perturbazioni farmacologiche e la nanoscopia 3D STED permette la visualizzazione della dinamica del traffico di membrana in dischi immaginali delle ali integri. Identificano inoltre parametri chiave per una corretta implementazione del protocollo, tra cui combinazioni adeguate di fluorofori e anticorpi, trattamento ottimizzato con inibitori, tempistiche rigorose per il saggio di internalizzazione e montaggio immediato del campione prima dell'acquisizione delle immagini.
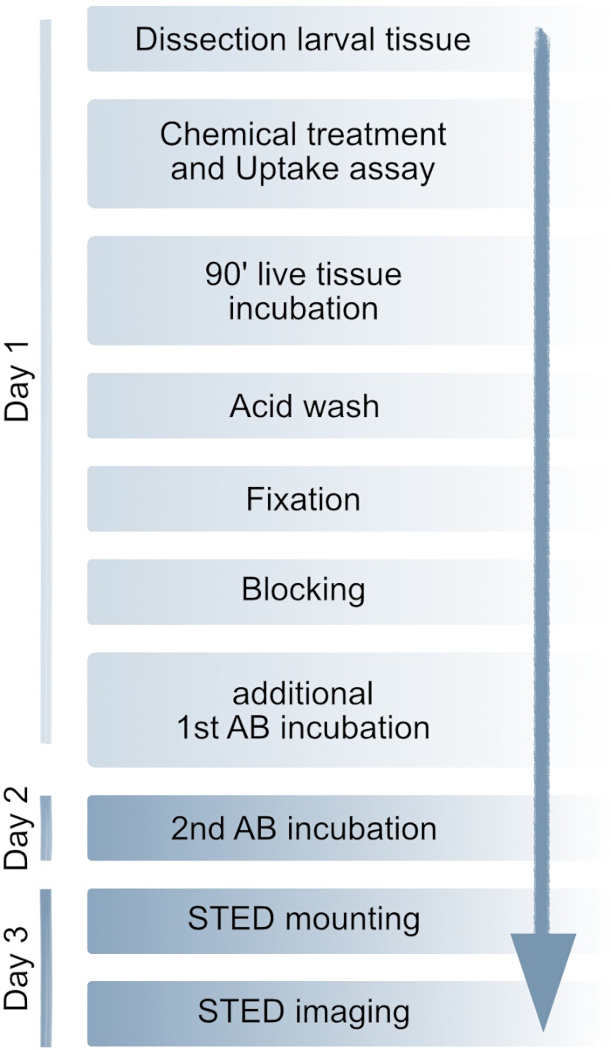
Figura 1: Flusso del metodo. Il protocollo completo può essere completato entro 3 giorni. In alternativa, l'incubazione con l'anticorpo secondario può essere eseguita nello stesso giorno. Procedure dettagliate sono fornite nella sezione Protocollo. AB: anticorpo. Cliccare qui per visualizzare una versione ingrandita di questa figura.
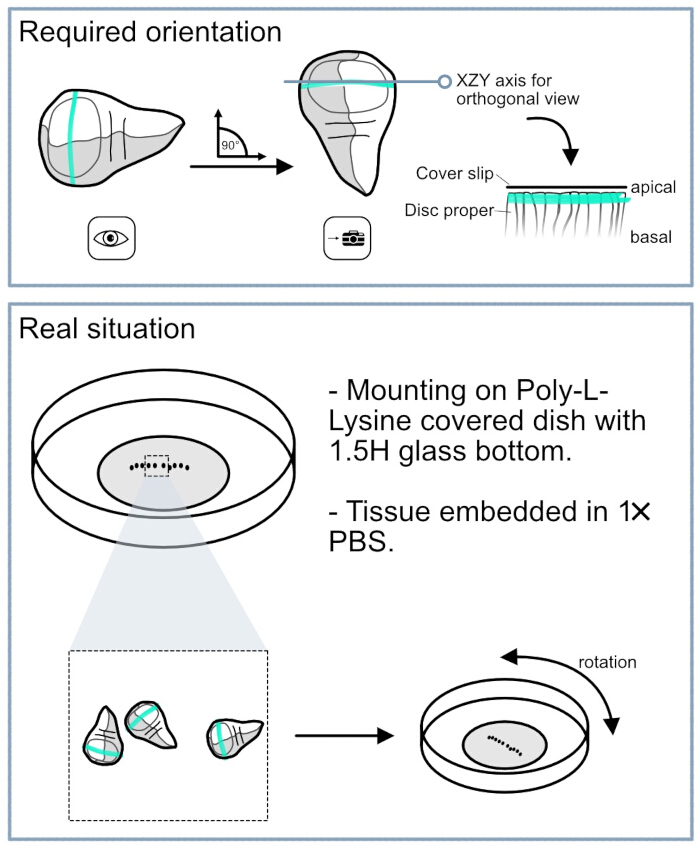
Figura 2: Difficoltà nel montare i dischi alari di Drosophila per la STED 3D. Nel pannello superiore è illustrata l'orientazione richiesta per i dischi alari. Per l'analisi delle cellule secernenti Wg, è essenziale che il confine DV sia perfettamente allineato in verticale nella vista dell'oculare. Questo allineamento permette di ruotare la vista della telecamera nel piano ortogonale, consentendo un targeting accurato della popolazione cellulare desiderata. Il pannello inferiore mostra l'allestimento pratico utilizzato per manipolare i dischi alari durante l'acquisizione delle immagini. I dischi alari sono stati montati in piastre di Petri rotonde con fondo in coprivetrino di vetro 1.5H. La superficie del coprivetrino è stata rivestita con poli-L-lisina per facilitare l'adesione del tessuto. La forma circolare della piastra consente la rotazione all'interno del supporto del microscopio, permettendo un allineamento verticale preciso del confine DV, necessario per l'acquisizione delle immagini. Cliccare qui per visualizzare una versione ingrandita di questa figura.
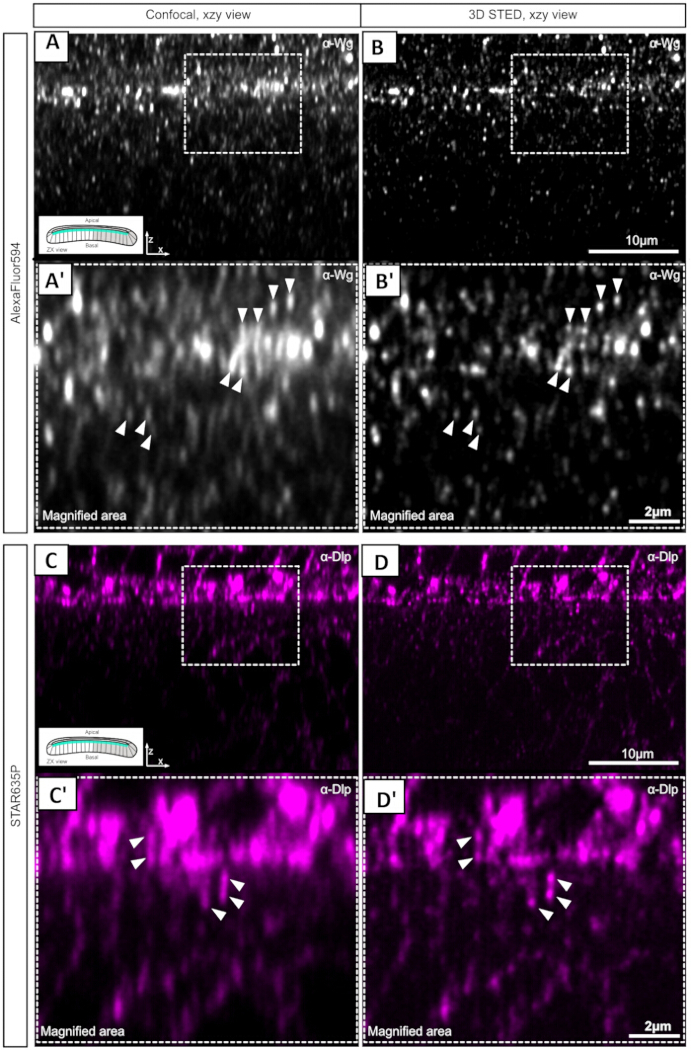
Figura 3: Confronto tra imaging confocale e imaging 3D STED al confine DV dei dischi alari di Drosophila. (A) Immagine confocale di cellule secernenti Wg al confine DV, mostrata nel piano XZ. La colorazione anti-Wg è stata rilevata utilizzando Alexa Fluor 594. (A’) Vista ingrandita della regione indicata, che mostra segnali allungati (frecce) nella regione della membrana apicale. (B,B’) La stessa regione acquisita mediante nanoscopia 3D STED. È mostrato il segnale di Alexa Fluor 594. Rispetto all’imaging confocale, il 3D STED risolve i segnali allungati in puntini distinti e rivela segnali individuali multipli (frecce). (C) Immagine confocale del canale STAR635P dallo stesso campione mostrato in A e B. A titolo esemplificativo, Dlp è stato rilevato utilizzando un anticorpo secondario coniugato a STAR635P, che evidenzia la membrana apicale. (C’) Vista ingrandita che mostra segnali allungati nell’immagine confocale. (D) Immagine 3D STED della stessa regione mostrata in C. (D’) Vista ingrandita che dimostra come i segnali ampi e allungati osservati mediante microscopia confocale siano risolti in puntini distinti mediante imaging 3D STED. Cliccare qui per visualizzare una versione ingrandita di questa figura.
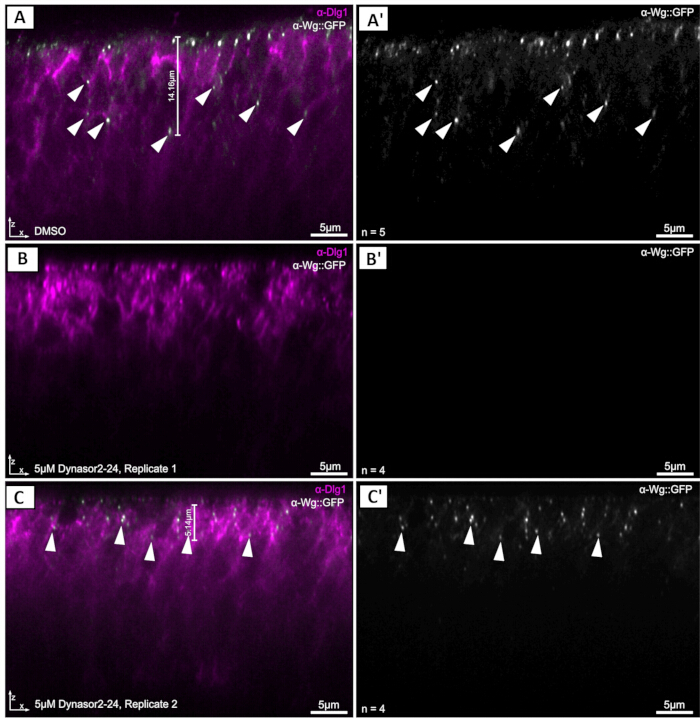
Figura 4: Combinazione dell'inibizione chimica con il saggio di Uptake di Wg in disci immaginali dell'ala di Drosophila visualizzati mediante STED 3D. (A,A’) Disco controllo rappresentativo trattato con DMSO (n = 5). La Wg::GFP extracellulare (grigia) viene etichettata in modo efficiente e la Wg::GFP internalizzata è rilevata all'interno delle cellule (frecce). Dlg1 (magenta) evidenzia la morfologia del tessuto e la regione apicale del disco propriamente detto. (B,B’) Campione rappresentativo del replicato 1 trattato con 5 µM di Dynasore2-24 per inibire l'endocitosi dipendente da clatrina e dinamina (n = 4). Il segnale di Wg::GFP scompare dopo il saggio di Uptake. (C,C’) Campione rappresentativo del replicato 2 trattato con 5 µM di Dynasore2-24 (n = 4). Un segnale residuo di Wg::GFP rimane rilevabile in prossimità della superficie apicale (frecce), ma il segnale intracellulare è limitato ai primi circa 5 µm del tessuto, rispetto ai circa 14 µm osservati nei controlli trattati con DMSO (barre di misura in A e C). Dlg1 (magenta) funge da riferimento morfologico. Cliccare qui per visualizzare una versione ingrandita di questa figura.
| Impostazioni | canale Alexa Fluor 594 | canale STAR635P |
| Obiettivo | 86x/1,2 HC PL APO CS2 (acqua) | 86x/1,2 HC PL APO CS2 (acqua) |
| Dimensione del pixel | 37 nm × 37 nm | 37 nm × 37 nm |
| Zoom | 1.2 | 1.2 |
| Finestra di rilevamento | 3072 × 1536 pixel | 3072 × 1536 pixel |
| Media lineare | 1 | 1 |
| Accumulo lineare | 16 | 16 |
| Velocità di scansione | 100–200 | 100–200 |
| Dimensione del foro stenopeico | 70 μm | 70 μm |
| Linea laser di eccitazione | 580 nm | 638 nm |
| Intensità della linea laser di eccitazione | 4%–10% (dipende dal campione) | 8%–10% (dipende dal campione) |
| Rivelatore | HyD X2, 595–625 nm | HyD X4, 650–740 nm |
| Tau gating eccitazione laser | 0,5–8 ns | 0,5–8 ns |
| Linea laser di esaurimento | 775 nm | 775 nm |
| Potenza del laser di deplezione | 65-75% (dipende dal campione) | 65-75% (dipende dal campione) |
| Post-elaborazione delle immagini basata sulla vita mediaτ-STED) | τ-Forza: 10 | τ-Forza: 10 |
| τ- Suppressione del rumore di fondo: attiva | τ-Soppressione del rumore di fondo: attiva | |
| Livellamento: 0 | Livellamento: 0 |
Tabella 1: Impostazioni dettagliate del microscopio per fluorofori su un microscopio STELLARIS SP8. Sono riportate le impostazioni utilizzate per i fluorofori Alexa Fluor 594 e Star635P.
Discussione
La visualizzazione della dinamica del traffico delle membrane e dei segnali all'interno di tessuti integri rimane una sfida tecnica, in particolare nelle cellule epiteliali altamente polarizzate come quelle presenti nel disco immaginale dell'ala di Drosophila. La morfologia stretta e colonnare di queste cellule limita le informazioni ottenibili mediante microscopia confocale convenzionale, specialmente nell'analisi della localizzazione proteica lungo l'asse apicale-basale. In questo protocollo, abbiamo superato tali limitazioni combinando la nanoscopia 3D STED11,12 con saggi di internalizzazione basati su anticorpi e perturbazioni farmacologiche. Insieme, questi approcci permettono di visualizzare eventi dinamici di traffico proteico nel loro ambiente tissutale naturale con una risoluzione spaziale non raggiungibile mediante imaging confocale standard.
Un vantaggio fondamentale del flusso di lavoro è l'utilizzo della nanoscopia 3D STED per studiare processi associati alla membrana in tessuti interi. Il confronto diretto tra imaging confocale e STED ha dimostrato che segnali allungati osservati mediante microscopia confocale possono essere risolti in punti distinti grazie all'imaging 3D STED (Figura 3), migliorando notevolmente la visualizzazione delle proteine alla membrana apicale. Questa risoluzione aumentata è particolarmente utile per analizzare la secrezione, l'endocitosi e i percorsi di traffico intracellulare, in cui la localizzazione accurata di singole vescicole e complessi proteici associati alla membrana è essenziale. Inoltre, la possibilità di acquisire viste ortogonali permette di esaminare l'organizzazione e il traffico delle proteine lungo l'asse apicale-basale delle cellule epiteliali.
L'integrazione di perturbazioni farmacologiche con il saggio di uptake amplia ulteriormente le possibilità sperimentali del metodo. Mentre il saggio di uptake etichetta selettivamente le proteine che hanno subito secrezione e successiva re-internalizzazione entro una finestra temporale definita, i trattamenti farmacologici permettono la perturbazione di specifiche vie di traffico intracellulare. La combinazione di questi approcci fornisce quindi un'informazione diretta su come i processi cellulari influenzino la dinamica del traffico proteico in vivo. Come dimostrato, la visualizzazione del Wg::GFP internalizzato in seguito all'inibizione dell'endocitosi dipendente dalla clatrina ha portato alla perdita del segnale della proteina internalizzata a livello della membrana apicale e/o a una riduzione del segnale intracellulare di uptake, illustrando come il protocollo possa essere utilizzato per indagare i meccanismi di traffico nel loro contesto tissutale fisiologico. Più in generale, questo approccio integra le classiche strategie genetiche e rafforza ulteriormente l'utilità del Drosophila come sistema modello per studi meccanicistici delle vie di segnalazione.
Diversi fattori sono fondamentali per l'attuazione corretta del protocollo. Innanzitutto, la scelta degli anticorpi primari è cruciale, poiché è necessario un marcamento robusto e specifico per una rilevazione affidabile del segnale. Tuttavia, la disponibilità limitata di anticorpi validati contro proteine endogene di Drosophila rappresenta un vincolo importante. In questo protocollo, ciò ha reso necessario l'uso di una linea con Wg etichettato endogenamente con GFP, poiché molti anticorpi comunemente utilizzati per Drosophila sono prodotti in topo, il che limita l'immunomarcatura multiplex. Sebbene i coloranti fluorescenti possano rappresentare un'alternativa per l'etichettatura di strutture cellulari come membrane, mitocondri o altri organelli, la maggior parte dei coloranti commercialmente disponibili è stata ottimizzata per cellule in coltura ed è difficile da applicare in modo efficace a tessuti di Drosophila integri.
Inoltre, gli anticorpi secondari e i fluorocromi devono essere attentamente valutati per verificarne la compatibilità con la nanoscopia STED, poiché non tutti i fluorocromi garantiscono un'intensità del segnale sufficiente, una fotostabilità adeguata o un'efficienza di svuotamento sufficiente nelle condizioni di imaging STED19,26. I risultati qui presentati sottolineano ulteriormente l'importanza della preparazione del campione e della manipolazione del tessuto. Analogamente, i trattamenti farmacologici devono essere ottimizzati con attenzione, poiché concentrazioni eccessive di farmaco possono compromettere l'integrità del tessuto e generare artefatti di imaging che oscurano i segnali biologici. Anche un'accurata orientazione del tessuto è fondamentale, poiché un allineamento preciso del confine dorsoventrale è necessario per ottenere viste ortogonali e immagini riproducibili delle popolazioni cellulari desiderate (Figura 2).
È possibile introdurre diverse modifiche per adattare il flusso di lavoro a diverse esigenze sperimentali: la durata del saggio di uptake può essere regolata per bilanciare un'etichettatura proteica sufficiente con la conservazione dell'integrità del tessuto. Analogamente, le concentrazioni degli inibitori potrebbero richiedere una titolazione in base al tipo di tessuto, allo stadio di sviluppo o al percorso di segnalazione in esame. Il protocollo è inoltre compatibile con diverse strategie di marcatura, tra cui immunofluorescenza standard, immunofluorescenza extracellulare e strategie di marcatura basate su fluorofori, a condizione che i fluorofori scelti siano adatti alla nanoscopia STED. Sebbene il presente flusso di lavoro si concentri sull'immagine a due colori, l'aggiunta di ulteriori fluorofori e configurazioni di imaging potrebbe ampliarne ulteriormente l'applicabilità.
Sebbene questo protocollo sia stato sviluppato utilizzando i dischi immaginali delle ali di Drosophila e il percorso di segnalazione Wg/Wnt come sistema modello, l'approccio non è limitato a queste applicazioni. Il flusso di lavoro può essere facilmente adattato ad altri tessuti di Drosophila ed è probabilmente trasferibile ad altri modelli di insetti con dimensioni tissutali e proprietà ottiche comparabili. Più in generale, la combinazione di saggi di uptake, perturbazioni farmacologiche e nanoscopia 3D STED fornisce un quadro versatile per lo studio dell'organizzazione della membrana, del traffico proteico, della secrezione e della dinamica di segnalazione in vivo. Questa capacità sarà probabilmente utile non solo per studi fondamentali sui percorsi di segnalazione nello sviluppo, ma anche per la ricerca biomedica volta a comprendere i difetti di traffico associati alle malattie. Permettendo la visualizzazione diretta di popolazioni proteiche dinamiche a risoluzione subcellulare all'interno di tessuti integri, il metodo offre una piattaforma potente per lo studio dei meccanismi cellulari che regolano la segnalazione in sistemi biologici complessi.
Dichiarazioni
Gli autori dichiarano di non avere interessi concorrenti.
Ringraziamenti
M.B. e M.H. sono sostenuti dal Collaborative Research Center CRC/SFB1324 (numero del progetto 331351713) della Deutsche Forschungsgemeinschaft sui meccanismi e le funzioni della segnalazione Wnt. Desideriamo ringraziare la struttura centrale di microscopia ottica del DKFZ (LMCF) per la sua competenza e il supporto fornito.
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| Tubi per reazione PCR da 0,2 mL | Biozym | 711068 | |
| Tubo da reazione da 1,5 mL | Sarstedt | 72.706.700 | |
| Vetrino in vetro 1.5H con fondo a disco μ-Dish, 35 mm | Ibidi | #81158 | |
| Coprioggetti rotondi in vetro 1.5H (12 mm) | Marienfeld | none | |
| Piastra di vetro per colorazione a 12 pozzetti | Marienfeld | CET6.20 | |
| Formaldeide al 37% | Merck | F8775 | |
| anti-dlg1 | DSHB | 4F3 | |
| anti-dlp | DSHB | 13G8 | |
| anti-GFP | Invitrogen | A11122 | |
| anti-mouse Alexa Fluor 594 | Invitrogen | A21201 | |
| anti-mouse STAR635P | Abberior | ST635P-1001 | |
| anti-rabbit Alexa Fluor 594 | Invitrogen | A11012 | |
| anti-rabbit STAR635P | Abberior | ST635P-1002 | |
| anti-Wg | DSHB | 4D4 | |
| Blu Tack | Bostik | 30811745 | Adesivo sensibile alla pressione |
| DMSO | VWR | SIAL472301 | |
| Pinzette Dumont 5 | Dumaont | No. 5 | |
| Dynasor2-24 | MCE | HY-13863 | |
| FBS | Sigma-Aldrich | F7524 | |
| Glicina | Gerbu | 10.231.000 | |
| Microscopio Leica Stellaris 8 STED Falcon | Leica Microsystems | N/A | |
| Smalto per unghie | essence | N/A | |
| Serum normale di capra | Cell Signalling | 5425S | |
| Obiettivo: HC PL APO 86x/1.20 W motCORR STED white objective | Leica Microsystems | N/A | |
| Compresse di PBS | Life technologies | 18912014 | |
| Photo Flo | Kodak | N/A | |
| Poli-L-lisina | Sigma-Aldrich | P1524 | |
| Mezzo per insetti di Schneider | Sigma | S0146 | |
| Triton-X100 | Sigma-Aldrich | T9284 |
Riferimenti
- Giansanti MG, Frappaolo A, Piergentili R. Drosophila melanogaster: How and why it became a model organism. Int J Mol Sci. 2025;26(15):7485.
- Tolwinski NS. Introduction: Drosophila—A model system for developmental biology. J Dev Biol. 2017;5(3):9.
- Perrimon N, Pitsouli C, Shilo BZ. Signaling mechanisms controlling cell fate and embryonic patterning. Cold Spring Harb Perspect Biol. 2012;4(8):a005975.
- Grobe K, Guerrero I. Dally-like is unlike Dally in assisting Wingless spread. Dev Cell. 2020;54(5):572-573.
- Han C, Yan D, Belenkaya TY, Lin X. Drosophila glypicans Dally and Dally-like shape the extracellular Wingless morphogen gradient in the wing disc. Development. 2005;132(4):667-679.
- Khare N, Baumgartner S. Dally-like protein, a new Drosophila glypican with expression overlapping with wingless. Mech Dev. 2000;99(1):199-202.
- McGough IJ, et al. Glypicans shield the Wnt lipid moiety to enable signalling at a distance. Nature. 2020;585(7823):85-90.
- Beckett K, et al. Drosophila S2 cells secrete wingless on exosome-like vesicles but the wingless gradient forms independently of exosomes. Traffic. 2013;14(1):82-96.
- Gross JC. Extracellular WNTs: Trafficking, exosomes, and ligand–receptor interaction. Handb Exp Pharmacol. 2021;269:29-43.
- Gross JC, Chaudhary V, Bartscherer K, Boutros M. Active Wnt proteins are secreted on exosomes. Nat Cell Biol. 2012;14(10):1036-1045.
- Eggeling C, Willig KI, Sahl SJ, Hell SW. Lens-based fluorescence nanoscopy. Q Rev Biophys. 2015;48(2):178-243.
- Sahl SJ, Hell SW, Jakobs S. Fluorescence nanoscopy in cell biology. Nat Rev Mol Cell Biol. 2017;18(11):685-701.
- Wu Z, Xu X, Xi P. Stimulated emission depletion microscopy for biological imaging in four dimensions: A review. Microsc Res Tech. 2021;84(9):1947-1958.
- Jiang N, et al. Superresolution imaging of Drosophila tissues using expansion microscopy. Mol Biol Cell. 2018;29(12):1413-1421.
- Witte L, Linnemannstöns K, Honemann-Capito M, Gross JC. Visualization and quantitation of Wg trafficking in the Drosophila wing imaginal epithelium. Bio Protoc. 2021;11(11):e4040.
- Zimmermann T. Setting up a light microscopy core facility: Facility design. J Microsc. 2024;294(3):255-267.
- Hell SW. Microscopy and its focal switch. Nat Methods. 2009;6(1):24-32.
- Bückers J, et al. Simultaneous multi-lifetime multi-color STED imaging for colocalization analyses. Opt Express. 2011;19(4):3130-3143.
- Jeong S, Widengren J, Lee JC. Fluorescent probes for STED optical nanoscopy. Nanomaterials (Basel). 2022;12(1):21.
- Port F, Chen HM, Lee T, Bullock SL. Optimized CRISPR/Cas tools for efficient germline and somatic genome engineering in Drosophila. Proc Natl Acad Sci U S A. 2014;111(29):E2967-E2976.
- Preta G, Cronin JG, Sheldon IM. Dynasore - not just a dynamin inhibitor. Cell Commun Signal. 2015;13(1):24.
- Yamada H, et al. Dynasore, a dynamin inhibitor, suppresses lamellipodia formation and cancer cell invasion by destabilizing actin filaments. Biochem Biophys Res Commun. 2009;390(4):1142-1148.
- Brunt L, Scholpp S. The function of endocytosis in Wnt signaling. Cell Mol Life Sci. 2018;75(5):785-795.
- Fabrowski P, et al. Tubular endocytosis drives remodelling of the apical surface during epithelial morphogenesis in Drosophila. Nat Commun. 2013;4(1):2244.
- Fischer JA, Eun SH, Doolan BT. Endocytosis, endosome trafficking, and the regulation of Drosophila development. Annu Rev Cell Dev Biol. 2006;22:181-206.
- Klar TA, et al. Fluorescence microscopy with diffraction resolution barrier broken by stimulated emission. Proc Natl Acad Sci U S A. 2000;97(15):8206-8210.