Questo studio mira a esplorare i potenziali meccanismi molecolari alla base degli effetti antiossidanti e antinfiammatori dell'amigdalina nel modello di alopecia areata nei topi C3H/HeJ e in un modello di danno primario di melanociti epidermici umani indotto da H2O2.
Articolo di ricerca
L'amiligdalina regola la segnalazione di FOXO3a per inibire lo stress ossidativo e migliorare l'alopecia areata nei topi
* These authors contributed equally
In questo articolo
Sommario
Abstract
Questo articolo si propone di esplorare il meccanismo dell'effetto terapeutico dell'amigdalina (AMG) sulla alopecia areata (AA). La colorazione ematossilina-eosina è stata utilizzata per valutare la tossicità epatorenale dell'AMG. Dopo aver stabilito il modello di AA nei topi C3H/HeJ e H2O2-melanociti epidermici primari umani (HPEMs) danneggiati, e dopo l'intervento con AMG, sono stati monitorati il contenuto di specie reattive dell'ossigeno (ROS) e i livelli della proteina e del gene della forkhead box O3A (FOXO3a). Kit biochimici o saggio immunoenzimatico sono stati utilizzati per rilevare i livelli di superossido dismutasi (SOD), catalasi (CAT), glutatione perossidasi 4 (GPX-4), malondialdeide (MDA), interleuchina-15 (IL-15), interferone-gamma (IFN-γe interleuchina-6 (IL-6). È stato eseguito un immunoblotting per valutare i livelli di MHC I, IL-15, FOXO3a, SOD, CAT, GPX-4, IFN-γ, IL-6 e IL-15. È stata eseguita una ChIP-PCR per valutare l'arricchimento di AMG nei promotori di SOD, CAT e GPX-4 in FOXO3a. Nel frattempo, sono state analizzate le ROS, l'apoptosi e i livelli proteici e genici di FOXO3a, SOD, CAT e GPX-4 in HPEMs con bassa espressione di FOXO3a. AMG non presenta potenziale tossicità epatica o renale e può ridurre l'espressione delle proteine MHC I e IL-15 nella cute, nonché i livelli sierici di IL-15. AMG può aumentare l'espressione della proteina e del gene FOXO3a nella cute, così come i livelli di SOD, CAT e GPX-4, riducendo contemporaneamente i livelli di ROS e MDA. AMG può inibire MHC I e IFN-γ, IL-6 e IL-15, MDA, apoptosi e produzione di ROS nelle HPEM, e aumentano i livelli di SOD, CAT e GPX-4. In modo particolarmente rilevante, l'AMG può upregolare l'espressione dei geni e delle proteine FOXO3a, SOD, CAT e GPX-4, e arricchire FOXO3a a livello dei promotori di SOD, CAT e GPX-4. Questi dati suggeriscono che l'AMG può promuovere l'espressione di FOXO3a e inibire lo stress ossidativo e le risposte infiammatorie, migliorando così l'AA nei topi C3H/HeJ.
Introduzione
Come disturbo autoimmune caratterizzato da una perdita di capelli improvvisa e non cicatriziale, l'alopecia areata (AA) ha una prevalenza globale di circa il 2–3% e in Cina vi sono oltre 30 milioni di pazienti1. I dati epidemiologici mostrano che la malattia può colpire individui di ogni età, ma presenta una maggiore prevalenza tra i giovani adulti, con circa il 60% dei pazienti che manifesta il primo episodio prima dei 20 anni, con un rapporto uomo-donna quasi uguale1,2. A livello globale, l'incidenza annuale dell'AA è di circa lo 0,2–0,3%, di cui il 40% è AA monolaterale, il 35% AA multi-laterale, il 5% alopecia totale e il 2% alopecia universale3,4,5. Per quanto riguarda le complicanze, circa il 30% dei pazienti presenta depressioni ungueali, righe longitudinali e altri danni alle unghie, e la frequenza di comorbilità con malattie autoimmuni come i disturbi tiroidei e il vitiligine supera quella osservata nella popolazione generale6,7. Dal punto di vista del danno, l'AA non solo compromette l'aspetto estetico, ma è anche predisponente a problemi psicologici come depressione e ansia, con circa il 70% dei pazienti con esordio recente che ha vissuto eventi stressanti significativi entro 3 mesi prima dell'insorgenza8,9. Se lasciata senza trattamento per lunghi periodi, la malattia può progredire verso l'alopecia totale o universale, compromettendo gravemente la funzione sociale e la qualità della vita10.
Attualmente, la medicina occidentale utilizza principalmente una combinazione di farmaci locali, terapie orali, fisioterapia e trapianto di capelli per il trattamento dell'AA11,12. Il trattamento locale comprende principalmente la soluzione di minoxidil e corticosteroidi (come la crema a base di propionato di fluticasone), che stimolano i follicoli piliferi e inibiscono le risposte immunitarie locali per favorire la ricrescita dei capelli, ma un uso prolungato può causare reazioni avverse come l'atrofia cutanea13,14. Nei pazienti con malattia in fase progressiva, gli immunosoppressori orali (come la prednisone e la ciclosporina) possono regolare efficacemente la risposta immunitaria sistemica, ma è necessario un monitoraggio regolare della funzionalità epatica e renale12,15. Nella fisioterapia, la radiazione ultravioletta a banda stretta a onda media e la terapia laser a bassa energia migliorano la microcircolazione per favorire la crescita dei capelli, ma richiedono più sedute e l'effetto varia da individuo a individuo16,17. Nei casi resistenti, l'intervento chirurgico di trapianto di capelli permette di trasferire follicoli sani nella zona diradata, ma comporta il rischio di fallimento del trapianto e richiede un mantenimento farmacologico18. I vantaggi del trattamento della medicina occidentale risiedono nell'effetto rapido e nell'elevata standardizzazione, soprattutto nei casi di AA localizzata in fase iniziale19. Tuttavia, gli svantaggi includono la tendenza al rebound con i farmaci ormonali, effetti collaterali significativi con gli immunosoppressori e una loro efficacia limitata nei pazienti con alopecia totale o universale20,21. Inoltre, il ciclo di trattamento è lungo (generalmente 3–6 mesi) e i costi sono elevati (ad esempio, il costo annuale degli inibitori JAK e degli agenti biologici supera i 100.000 yuan), il che ne limita l'ampia diffusione19,22. Per tutti i motivi sopra citati, gli autori necessitano urgentemente di esplorare nuovi farmaci mirati.
Lo stress ossidativo contribuisce in modo significativo al meccanismo patogenetico dell’AA. Durante il processo di sintesi del pigmento nei melanociti, viene prodotta una grande quantità di perossido di idrogeno (H2O2)23,24. In condizioni normali, questo può essere eliminato da enzimi antiossidanti (come la superossido dismutasi (SOD) e la catalasi (CAT))25. Tuttavia, nelle persone affette da AA, l’attività degli enzimi antiossidanti è spesso ridotta, con conseguente accumulo di prodotti ossidativi e danni al DNA e apoptosi cellulare26,27. Questo stato di stress ossidativo attiva ulteriormente la risposta infiammatoria, rilasciando mediatori pro-infiammatori (come TNF-α e IFN-γ), creando un circolo vizioso tra stress ossidativo e infiammazione28. La risposta infiammatoria attacca i follicoli piliferi attraverso i linfociti T, inducendo i follicoli a entrare in una fase di riposo e a cadere29. Studi clinici hanno evidenziato che i pazienti con AA spesso presentano altre malattie autoimmuni (come le malattie della tiroide)30, suggerendo che una disregolazione immunitaria sistemica rappresenti un fattore scatenante fondamentale. Inoltre, lo stress ossidativo e l’infiammazione promuovono congiuntamente l’apoptosi delle cellule del follicolo pilifero e il disordine dei segnali apoptotici compromette ulteriormente la capacità rigenerativa del follicolo, impedendo la ricrescita dei capelli31. Pertanto, il trattamento dell’AA deve tenere conto di un’azione antiossidante, antinfiammatoria e della regolazione delle vie apoptotiche per interrompere questo circolo vizioso.
L'amigdalina (AMG) è un composto glicosidico cianogenetico naturalmente presente, contenuto principalmente nei semi di piante appartenenti alla famiglia delle Rosaceae (come albicocca, mandorla, noccioli di pesca e nespola)32,33,34. Studi precedenti hanno dimostrato che l'AMG può migliorare la psoriasi potenziando la funzione barriera della pelle35. Nel contempo, gli effetti anti-apoptotici e anti-stress ossidativo dell'AMG ne permettono l'utilizzo nel trattamento dell'alopecia areata (AA)36,37. Evidenze precedenti hanno inoltre confermato che l'AMG può inibire la risposta infiammatoria alleviando i sintomi della AA nei topi C3H/HeJ38. Tuttavia, il meccanismo molecolare attraverso cui l'AMG inibisce l'infiammazione e allevia lo stress ossidativo per mitigare la AA non è stato ampiamente descritto. Questo studio ha principalmente dimostrato gli eventi di stress ossidativo mediati dalla via di segnalazione della forkhead box O3A (FOXO3a) in seguito all'intervento con AMG nel trattamento del modello di AA nei topi C3H/HeJ e nel modello di danno sui melanociti epidermici primari umani (HPEMs) indotto da H2O2.
Protocollo
Ethics approval and consent to participate
The experimental protocols involving animals were authorized by the Ethics Committee of Scientist Biotechnology Co., Ltd. (Ethical Approval Number: SYST-2024-014), following the ARRIVE 2.0, NIH Guide for the Care and Use of Laboratory Animals. And the Ethics Committee of Sichuan Provincial People’s Hospital granted approval for the ethical use of human clinical samples for in vitro experiments (Ethical Approval Number: 2024103). Informed consent was obtained from all tissue donors. All commercial details of the reagents and the equipment used in this study are provided in the Table of Materials.
Construction of the AA model in C3H/HeJ mice and AMG administration
Based on the previous literature, the AA model of C3H/HeJ mice was induced and treated with AMG38,39. In brief, thirty female C3H/HeJ mice (6–8 weeks old) underwent a one-week acclimatization period before being randomly assigned to five distinct groups: Control, AA, AMG-L, AMG-M, and AMG-H. Except for the control group, the AA model in the remaining four groups was established by applying 0.05 g imiquimod cream to the murine dorsal skin. This application was performed three times weekly, accumulating to a total of nine doses. The area of the skin that was applied was 1.5 cm × 1.5 cm. Mice in both the control and AA cohorts received 0.02 mL/g of normal saline by gavage daily. While the mice in AMG groups were given intragastric injections of 60, 90, and 120 mg/kg daily. The administration period is 21 days. For the general observation and assessment of the AA model, a well-defined circular alopecia patch ≥ 1 cm in diameter, with no scarring or severe inflammation, and with broken hair shafts, is required. If mice show diffuse whole-body depilation, severe skin ulceration, or spontaneous rapid hair regrowth, they are excluded.
HPEMs
Following the previous method40, healthy skin tissues from patients who underwent circumcision in the hospital were selected and immersed in 75% alcohol for 5 min. The skin tissues were then repeatedly washed with PBS containing ampicillin (100 U/mL) and streptomycin sulfate (100mg/mL), and incubated in dispase II solution at 4°C overnight for digestion. The separated and isolated epidermal layers were minced and filtered via a sterile membrane to yield the cell suspension. After centrifugation, the sedimentary lower-layer cells were harvested and subsequently resuspended in melanocyte 254 medium without serum and reseeded at a density of approximately 5 × 10⁵ in culture flasks and cultured in a CO2 incubator. After three passages, pure melanocytes were employed for subsequent experiments.
Establishment of H2O2-induced human melanocyte oxidative stress injury model and AMG intervention
Human melanocytes with a fusion degree of 60% to 80% were divided into a control group and groups with different concentrations of H2O2 (200, 400, 600, 800, and 1000 µM). After a 24-h incubation, cell viability was assessed by the CCK-8 method. Subsequently, the optimal concentration of H2O2 was used to establish the melanocyte oxidative stress model, and different concentrations of AMG (0.1, 0.25, 0.5, 1, 2.5, 5, and 10 mg/mL) were added for a 24-hour culture. Cell viability was then chosen to assess and screen the concentration of AMG.
HE examination
Mouse liver and kidney tissues were fixed in 4% paraformaldehyde for 24 h and embedded with paraffin, followed by a dehydration process in the following steps: 70% ethanol for 4 h, 80% ethanol for 2 h, 90% ethanol for 2 h, 95% ethanol for 2 h, anhydrous ethanol, twice, 1 h each time; xylene, twice, 30 min each time38,39,41. Then, 4-µm paraffin sections underwent H&E staining, were dehydrated, cleared, and mounted with neutral gum. A 3D HISTECH scanner was employed to digitize the tissue sections, and images at 20× and 40× magnifications were captured.
Enzyme-linked immunosorbent assay (ELISA) and biochemical detection
Skin tissues were homogenized in a buffer solution at a 1:9 (w/v) ratio, then centrifuged at 1006–1789 × g for 10 min. After protein quantification in serum, skin tissue extracts, and cell supernatants using BCA, the levels of MDA, IL-6, IL-15, and IFN-γ were assessed using the corresponding ELISA kits. And the enzyme activities of SOD, CAT, and GPX-4 were detected according to the instructions of the respective biochemical kits.
Flow cytometry for detecting reactive oxygen species (ROS)
Serum-free culture medium was used to dilute 10µM DCFH-DA at a 1:1000 ratio. And then, mouse skin tissues or human melanocytes were prepared into cell suspensions of 1–20×106 cells/mL using 10µM DCFH-DA. Cells were incubated at 37°C for 20 min. During this period, cells were shaken and mixed every 3–5 min. Following three washes with serum-free medium, intracellular ROS levels were quantified via flow cytometry, setting the excitation and emission wavelengths at 488nm and 525nm, respectively42,43.
Immunofluorescence measurement
FOXO3a (1:1000) primary antibody was incubated with 4-µm skin tissue sections or fixed HPEMs overnight at 4°C. And then, the specimens were treated with secondary antibodies labeled with Alexa Fluor fluorophores and counterstained with DAPI solution. Finally, the sections were observed and captured through fluorescence microscopy. For fluorescence imaging with ROS, a 4-µm frozen section of skin tissue or HPEMs slides were rewarmed at room temperature and dried. A circle was drawn around the tissue with a histochemical pen. The slides were treated with an autofluorescence quencher for 5 min and then rinsed under running water for 10 min. ROS staining solution was dropped and incubated in the dark at 37°C for 30 min. The sections underwent three 5-minute washes in PBS using a decolorization shaker. Then, DAPI staining solution was dropped and incubated for a duration of 10 min under dark conditions at room temperature. The slides were sealed with an anti-fluorescence quencher medium. The specimens were then observed, and images were collected via a fluorescence microscope. The excitation/emission profiles are 330–380/420 nm for DAPI and 510–560/590 nm for Cy3.
Western blot
For mouse skin tissue or human melanocytes, 50 mg of the skin tissue or 2 × 10⁵ cells and 1 mL of RIPA lysis buffer, enriched with protease inhibitors, were dispensed into a 1.5-mL microcentrifuge tube. After an ice bath for 30 min, a 5-min centrifugation was performed at 12,000 g to collect the supernatant fraction. After protein concentration was determined by the BCA method, the protein solution and 5× SDS loading buffer were mixed in a volume ratio of 4:1, and then boiled in a metal bath at 95 °C for 5 min. After the sample was subjected to 10% SDS-PAGE electrophoresis at 80 V or 120 V, proteins were electrotransferred onto a 0.22-µm PVDF membrane at a constant current of 200 mA for 1 h44,45. The membranes were then blocked at room temperature on a centrifuge shaker for 1 h using 5% skimmed milk (prepared with TBST buffer). The membranes were then exposed to primary antibodies specific to major histocompatibility complex class I (MHC I) (1:1000), IFN-γ (1:1000), IL-6 (1:1000), IL-15 (1:1000), β-Actin (1:1000), SOD (1:1000), CAT (1:1000), glutathione peroxidase 4 (GPX-4) (1:1000), and FOXO3a (1:1000) at 4 °C overnight. And the membranes were probed with the secondary antibody (1:10000) for 1 h at room temperature. ECL chemiluminescent reagent was employed to develop and capture images using ChemiScope 6100.
Quantitative reverse transcription-polymerase chain reaction (qRT-PCR)
Firstly, the sample RNA from mouse skin tissue or human melanocytes was obtained in accordance with the manufacturer’s instructions of the total RNA extraction kit. According to the operation instructions of the reverse transcription kit, the PCR instrument parameters were set as 25°C for 10 min, 42°C for 15 min, and 85°C for 5 min to obtain cDNA samples. Similarly, the parameters for setting up the PCR instrument were as follows to obtain sufficient DNA copy numbers: Pre-denaturation: 95°C for 5 min, 1 cycle; Denaturation: 95°C for 10 s, 40 cycles; Annealing and extension: 60°C for 30 s, 40 cycles. The normalized expression of the gene of interest is calculated using the following formula: 2‑ΔΔCq (ΔΔCq = Cqtarget‑Cqβ‑Actin)46,47. The information on the gene primer sequences for qRT-PCR is shown in Table 1.
ChIP-PCR analysis
ChIP-PCR analysis was carried out in accordance with the previous protocol48. First, the cells were cross-linked with 1% formaldehyde for 10 min, and glycine solution was added to terminate the cross-linking reaction. After washing with pre-cooled PBS containing PMSF, the cells were lysed with SDS lysis buffer containing PMSF. Subsequently, the chromatin DNA was sheared into fragments mainly ranging from 200 to 1,000 bp using an ultrasonic cell disruptor, and the fragment size was verified by agarose gel electrophoresis. The sheared chromatin samples were resuspended in ChIP dilution buffer containing PMSF, and 20µL of the sample was taken as the input control group. The remaining samples were pre-treated with Protein A+G Agarose/Salmon Sperm DNA. Then, 0.5µg of primary antibody was applied, followed by an overnight incubation at 4°C with slow shaking. The negative control group was treated with an equal amount of rabbit IgG. The next day, Protein A+G agarose beads were added to capture the antigen-antibody complexes, and the complexes were washed successively with low salt immune complex wash buffer, high salt immune complex wash buffer, LiCl immune complex wash buffer, and TE buffer. The immunoprecipitated complexes were eluted with elution buffer, and both the elution products and the samples in the input control group underwent a heat treatment of 65°C for 4h to break the cross-links. Subsequent to proteinase K-mediated protein digestion, DNA was isolated via phenol-chloroform extraction followed by ethanol precipitation. The purified DNA was dissolved in TE buffer and used for subsequent qRT-PCR analysis. And the gene sequence information for ChIP-PCR is shown in Table 2.
The candidate genomic sites for ChIP-PCR were selected through in silico prediction using the JASPAR database (https://jaspar.elixir.no/). Specifically, researchers retrieved the promoter sequences spanning 2000 bp upstream of the TSS of the CAT, SOD, and GPX4 genes. These sequences were scanned for FOXO3a binding motifs using the corresponding position weight matrix. To balance sensitivity and specificity, the authors set a relative profile score threshold of >80%. Among all predicted motifs meeting this criterion, the authors selected the top two highest-scoring putative sites for each gene as candidate regions for ChIP-PCR validation. For example, in the CAT gene, the selected sites were located at -733 bp and -1259 bp relative to the TSS. The anti-FOXO3a antibody used in this study is a commercially available ChIP-grade antibody. To ensure specificity, the authors applied two independent negative controls for every ChIP-PCR assay: isotype IgG and a negative genomic locus. The isotype IgG control was performed as parallel immunoprecipitations using non-immune IgG from the same species. For the negative genomic locus, the authors designed a specific primer pair targeting a non-binding region that lacks any predicted FOXO3a consensus motif. This control region allowed the authors to exclude enrichment due to random chromatin shearing or nonspecific PCR amplification. The fold enrichment was calculated using a three-step normalization strategy.
Step 1: Input normalized ΔCt, ΔCt [normalized IP] = Ct[IP]-(Ct[Input]-log₂(DF)) (1)
ΔCt [normalized IgG] = Ct[IgG] - (Ct[Input] - log₂(DF)). (2)
DF = Input Dilution Factor; in the experiment, DF = 10, as they used 10% input.
Step 2: ΔΔCt between IP and IgG:
ΔΔCt [IP/IgG] =ΔCt [normalized IP]-ΔCt [normalized IgG] (3)
Step 3: Fold enrichment = 2(-ΔΔCt [IP/IgG]). (4)
Statistical analysis
Data are expressed as mean ± standard deviation based on a minimum of three independent experiments. Statistical analyses were performed using GraphPad Prism software (version 6.0). Comparison of data among multiple groups following a normal distribution and homogeneity of variance was assessed using one-way analysis of variance (ANOVA), followed by Tukey’s post-test. Statistical significance was established at p < 0.05.
Risultati
AMG non presenta tossicità epatorenale nei topi C3H/HeJ normali
Per identificare chiaramente dal punto di vista sperimentale la potenziale tossicità epatica e renale di AMG, i ricercatori hanno somministrato le tre dosi (60, 90 e 120 mg/kg) precedentemente studiate a topi C3H/HeJ normali mediante gavaggio 38. Come mostrato in Figura 1, dopo la somministrazione intragastrica di AMG a tre dosi per 21 giorni, l'architettura dei lobuli epatici risultava distinta, con epatociti disposti in modo ordinato. I tessuti corticale e midollare del rene erano normali e non sono state osservate lesioni o danni nei glomeruli né nei tubuli renali. Durante il periodo di somministrazione di AMG, nessun topo ha mostrato manifestazioni comportamentali anomale. In effetti, in questo articolo non sono stati esaminati dati di tossicità biochimica o del peso corporeo, il che potrebbe influire sulla validità della conclusione riguardo all'assenza di tossicità epatica e renale da parte di AMG. Tuttavia, sulla base dei risultati dell'esame istopatologico del fegato e del rene, questi dati suggeriscono in parte che il trattamento con AMG per l'AA alle dosi stabilite dagli autori è ragionevole.
AMG inibisce l'insorgenza e lo sviluppo dell'AA nonché la generazione di ROS
In primo luogo, hanno misurato gli indicatori MHC I e IL-15 che sono intrinsecamente legato all'insorgenza e alla progressione di AA. Come mostrato in Figura 2A–C, nelle condizioni patologiche di simulazione dell'AA, la quantità di proteine MHC I e IL-15 nei tessuti cutanei dei topi C3H/HeJ è aumentata significativamente (p < 0,001). Al contrario, i trattamenti con AMG-M e AMG-H hanno ridotto in modo significativo i livelli di espressione di queste due proteine (p < 0,01 o p < 0.001). Allo stesso modo, le tre dosi del trattamento con AMG hanno significativamente soppresso il livello di IL-15 nel siero (p < 0.001, Figura 2D). Inoltre, i risultati di immunofluorescenza hanno indicato la presenza di una notevole quantità di ROS nella cute dei topi del gruppo AA, mentre l'intervento con AMG ha ridotto in modo significativo l'espressione di ROS rispetto al gruppo AA (p < 0.001, Figura 2E e F). In modo coerente, i risultati della citometria a flusso hanno mostrato che i livelli di ROS nei tessuti cutanei del gruppo AA erano significativamente aumentati rispetto a quelli del gruppo il gruppo di controllo. Tuttavia, rispetto al gruppo AA, l'intervento con AMG ha invertito l'aumento delle ROS (p < 0.001, Figura 2G e H).
AMG ha stimolato l'espressione proteica e genica di FOXO3a
Per studiare l'effetto dell'AMG sulla FOXO3a, gli autori ne hanno analizzato i livelli di espressione a livello proteico e genetico. I risultati dell'immunofluorescenza hanno dimostrato che il gruppo AA mostrava una marcata riduzione dell'espressione proteica della FOXO3a, mentre l'AMG stimolava il livello della proteina FOXO3a nel tessuto cutaneo dei topi C3H/HeJ (p < 0.001, Figura 3A e B). Ulteriori dati di qRT-PCR indicano che AMG ha aumentato significativamente l'espressione genica di FOXO3a (p < 0.001; Figura 3C). Analogamente, l'esperimento di Western blot ha indicato che AMG notevolmente aumentato l'espressione proteica di FOXO3a (p < 0,05 o p < 0.001, Figura 3D e E).
AMG ha inibito gli eventi di stress ossidativo nei tessuti cutanei di topi con AA
La progressione patologica della AA indotta dallo stress ossidativo porta al suo deterioramento. I risultati dei test biochimici riportati in Figura 4 mostrano che, rispetto al gruppo di controllo, gli indicatori antiossidanti SOD, CAT e GPX-4 nei tessuti cutanei dei topi del gruppo AA erano significativamente inibiti (p < 0,001, Figura 4A e B), mentre l'indicatore pro-ossidativo MDA era notevolmente aumentato (p < 0,001, Figura 4C). Come previsto, i ricercatori hanno osservato che dopo il trattamento con AMG, gli indicatori antiossidanti sono aumentati significativamente, mentre quelli pro-ossidativi sono diminuiti in modo significativo (p < 0,001; Figure 4A–C). Analogamente, i dati ottenuti mediante Western blot hanno indicato che l'intervento con AMG ha aumentato significativamente i livelli di espressione proteica degli indicatori antiossidanti SOD, CAT e GPX-4 (p < 0,001; Figure 4D e 4E).
AMG ha ridotto l'apoptosi e gli eventi infiammatori nei MPEO indotti da H2O2
I risultati mostrati nella Figura 5A indicano che concentrazioni crescenti di H2O2 (200–1000 µM) compromettono progressivamente la vitalità dei MPEO (p < 0,001). Tra queste, la concentrazione di 600 µM di H2O2 si è rivelata la più adatta per ridurre la vitalità cellulare dei MPEO (p < 0,001). Inoltre, gli autori hanno scoperto che in condizioni di stimolazione delle cellule MPEO con 600 µM di H2O2, AMG nelle concentrazioni di 0,1–10 mg/mL aumentava significativamente la vitalità cellulare (p < 0,05 o p < 0,001, Figura 5B). In linea con i risultati degli esperimenti sugli animali, gli autori hanno inoltre osservato che AMG inibiva significativamente l'apoptosi indotta da H2O2 nei MPEO, come evidenziato dall'analisi mediante citometria a flusso per il rilevamento dell'apoptosi mostrata nelle Figure 5C e 5D (p < 0,001). Per quanto riguarda l'indicatore MHC I, l'analisi mediante Western blot ha ulteriormente dimostrato che AMG sopprimeva in modo significativo l'espressione proteica nei MPEO sottoposti a danno indotto da H2O2 (p < 0,05 o p < 0,01; Figure 5E e 5F). Per il rilevamento dei fattori infiammatori, i risultati dell'ELISA hanno indicato che AMG riduceva in modo significativo l'abbondanza di citochine pro-infiammatorie, tra cui IFN-γ, IL-6 e IL-15, nei MPEO indotti da H2O2 (p < 0,001; Figura 5G). Inoltre, l'inibizione di queste tre proteine pro-infiammatorie da parte di AMG è stata ulteriormente confermata mediante analisi Western blot, come presentato nelle Figure 5H e 5I (p < 0,01 o p < 0,001).
AMG ha ridotto i livelli di ROS nei HPEM indotti da H2O2
Rispetto alle cellule HPEM non trattate con H2O2 e AMG, la stimolazione con 600 µM di H2O2 ha promosso significativamente la produzione di ROS, come dimostrato dai risultati degli esperimenti di immunofluorescenza (p < 0,001, Figura 6A e B) e di citometria a flusso (p < 0,001, Figura 6C e D), rispettivamente. In modo interessante, AMG ha ridotto in modo significativo la quantità di ROS (p < 0,001, Figura 6).
AMG ha limitato l'evento di stress ossidativo nei MEPH indotto da H2O2
Allo stesso modo, gli autori hanno valutato in che modo AMG influenza lo stress ossidativo in HPEM indotto da H2O2. Rispetto al gruppo di controllo, H2O2 la stimolazione ha portato a un calo delle funzioni di SOD, CAT e GPX-4 (p < 0.001, Figura 7A e B), aumentando significativamente i livelli di MDA (p < 0.001, Figura 7C). Sorprendentemente, l'intervento con AMG ha potenziato in modo significativo le attività di SOD, CAT e GPX-4 (p < 0.001, Figura 7A e B), riducendo contemporaneamente il livello di MDA (p < 0.001, Figura 7C). Ulteriori risultati di Western blot hanno inoltre confermato che l'intervento con AMG ha aumentato significativamente l'espressione proteica di SOD, CAT e GPX-4 (p < 0,05 o p < 0.01, Figura 7D e E).
AMG ha promosso il livello di FOXO3a e di SOD, CAT e GPX-4 regolati da FOXO3a in HPEM indotte da H2O2
Rispetto al gruppo di controllo, H2O2 la stimolazione ha determinato una marcata riduzione dell'espressione genica di FOXO3a (p < 0.001, Figura 8A), mentre l'intervento con AMG ha attenuato in modo significativo questo effetto (p < 0.05, Figura 8A). Ulteriore analisi Western blot (p < 0.05, Figura 8B e C) e immunofluorescenza (p < 0.05, Figura 8D e E) hanno inoltre confermato che l'applicazione di AMG aumenta sostanzialmente l'espressione proteica di FOXO3a. L'esperimento di ChIP-PCR ha confermato che AMG può potenziare i livelli di espressione di SOD (p < 0,001), CAT (p < 0,01) e GPX-4 (p < 0,01), come mostrato in Figura 8F–I, nonché il livello di arricchimento di FOXO3a nei promotori di SOD (p < 0,001), CAT (p < 0,001) e GPX-4 (p < 0.001) (Figura 8J–L).
AMG ha soppresso lo stress ossidativo e i fenomeni apoptotici regolati da FOXO3a nelle HPEM indotte da H2O2
Inizialmente, i ricercatori hanno stabilito una linea di HPEM con bassa espressione di FOXO3a, caratterizzata da un notevole calo nei livelli di espressione proteica (p < 0,001, Figura 9A e B) e genica (p < 0,001, Figura 9C) di FOXO3a. I risultati della citometria a flusso hanno ulteriormente indicato che, rispetto al gruppo trattato con H2O2, AMG ha ridotto in modo significativo i livelli di ROS e l'apoptosi cellulare nelle HPEM con bassa espressione di FOXO3a (p < 0,001, Figura 9D–G). Nel frattempo, AMG ha aumentato significativamente l'espressione proteica e genica di FOXO3a (p < 0,01, Figura 9H–J) e i livelli di espressione delle proteine SOD, CAT e GPX-4 regolate da FOXO3a (p < 0,05, p < 0,01 o p < 0,001, Figura 9H, K–O) e dei relativi geni nelle HPEM con bassa espressione di FOXO3a.
DISPONIBILITÀ DEI DATI:
Tutti i dati grezzi sono disponibili nel repository pubblico all'indirizzo seguente https://doi.org/10.5281/zenodo.22090466.
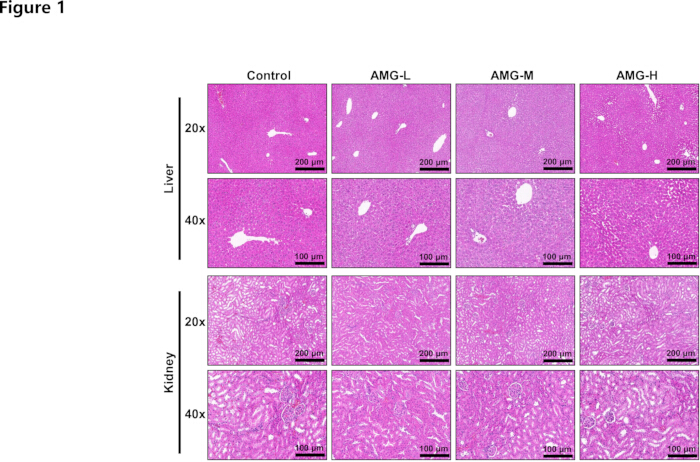
Figura 1: Colorazione HE. La colorazione HE è stata utilizzata per valutare la tossicità dose-dipendente di AMG (60, 90 e 120 mg/kg) sul fegato e sui reni di topi normali C3H/HeJ. Nessun danno patologico specifico al fegato e ai reni è stato osservato con un ingrandimento di 20× (200 µm) e 40× (100 µm). n = 6. Cliccare qui per visualizzare una versione ingrandita di questa figura.
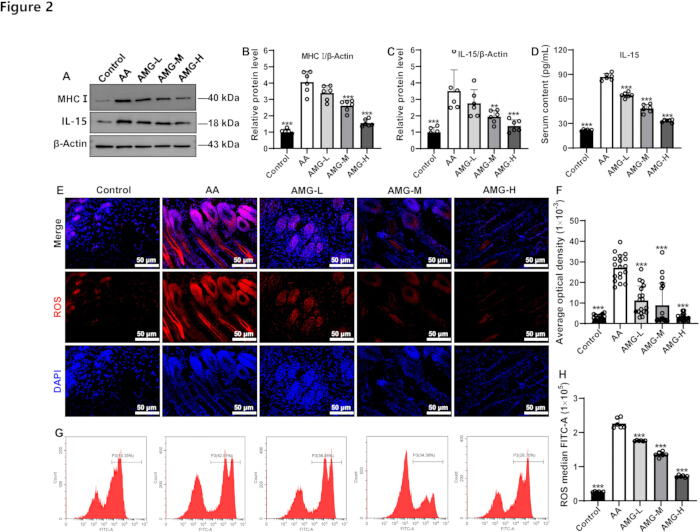
Figura 2Effetti dell'AMG su MHC I, IL-15 e ROS nei campioni di pelle di topi con alopecia areata (A–C), AMG ha ridotto i livelli di espressione proteica di MHC I e IL-15, come valutato mediante Western blot. (D), AMG ha ridotto Livelli di IL-15 nel siero dei topi. (E e F), AMG ha ridotto i livelli di ROS nei campioni di pelle di topo, come rilevato mediante saggio IF. (G e H), AMG ha ridotto i livelli di ROS in campioni di pelle di topo, come determinato mediante citometria a flusso. I risultati sperimentali sono presentati come media ± SD. **p < 0,01 e ***p < 0,001 rispetto al gruppo AA; n = 6. Cliccare qui per visualizzare una versione ingrandita di questa figura.
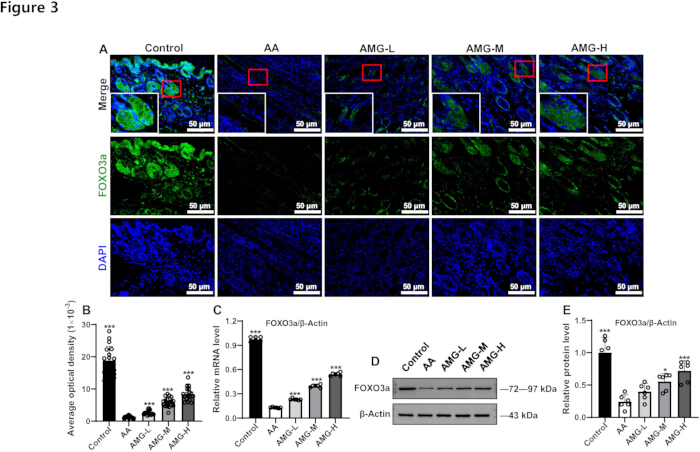
Figura 3: Effetti di AMG sui livelli proteici e genici di FOXO3a nei campioni di pelle di topi AA. (A) AMG ha aumentato i livelli proteici di FOXO3a, come valutato mediante saggio IF. (B) Risultati quantitativi del saggio IF. (C) AMG ha aumentato l'espressione genica di FOXO3a. (D) AMG ha aumentato l'espressione proteica di FOXO3a, come rilevato mediante Western blot. (E) Risultati quantitativi del Western blot. I risultati sperimentali sono presentati come media ± DS. *p < 0,05 e ***p < 0,001 rispetto al gruppo AA; n = 6. Cliccare qui per visualizzare una versione ingrandita di questa figura.
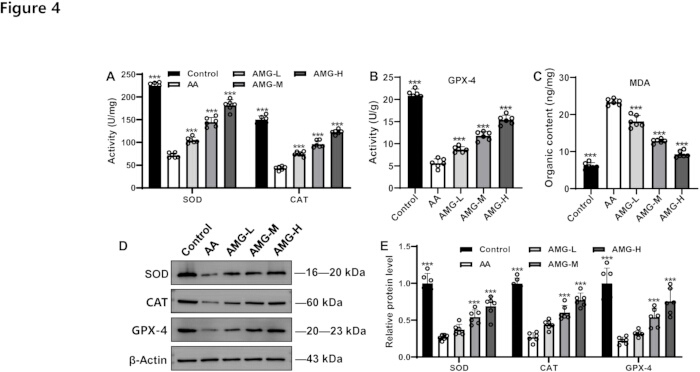
Figura 4: Effetti dell'AMG sugli indicatori dello stress ossidativo nei campioni di pelle di topi AA. (A) L'AMG ha stimolato i livelli di SOD e CAT, valutati mediante un kit di test biochimico. In (B) e (C), l'AMG ha aumentato i livelli di GPX-4 e ridotto i livelli di MDA. (D) bande proteiche rappresentative di SOD, CAT e GPX-4. (E) Risultati quantitativi dell'espressione proteica per SOD, CAT e GPX-4. I risultati sperimentali sono espressi come media ± DS. ***p < 0,001 rispetto al gruppo AA; n = 6. Cliccare qui per visualizzare una versione ingrandita di questa figura.
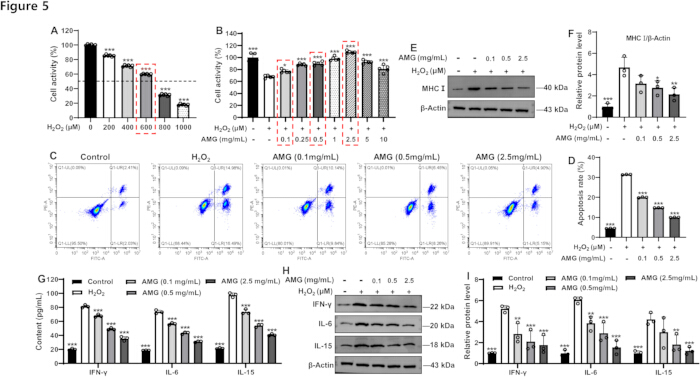
Figura 5: Effetti dell'AMG sull'apoptosi e sugli indicatori infiammatori dei MPEO indotti da H2O2. (A) conseguenze di diverse concentrazioni di H2O2 sulla vitalità dei MPEO (n = 6). (B) Effetti di diverse concentrazioni di AMG sulla sopravvivenza dei MPEO indotti da stimoli di H2O2 (n = 6). (C) È stata impiegata l'analisi citometrica in flusso per valutare l'apoptosi mediata da AMG nei MPEO indotti da stimoli di H2O2. (D) Risultati statistici dell'apoptosi cellulare. (E) Bande di Western blot per MHC I. (F) Risultato quantitativo dell'espressione relativa della proteina MHC I. (G) Effetti dell'AMG su IFN-γ, IL-6 e IL-15 nei MPEO indotti da stimoli di H2O2. (H) Bande di Western blot per IFN-γ, IL-6 e IL-15. (I) Risultato quantitativo del livello relativo delle proteine IFN-γ, IL-6 e IL-15. I risultati sperimentali sono presentati come media ± DS. *p < 0,05, **p < 0,01 e ***p < 0,001 rispetto al gruppo H2O2; n = 3. Cliccare qui per visualizzare una versione ingrandita di questa figura.
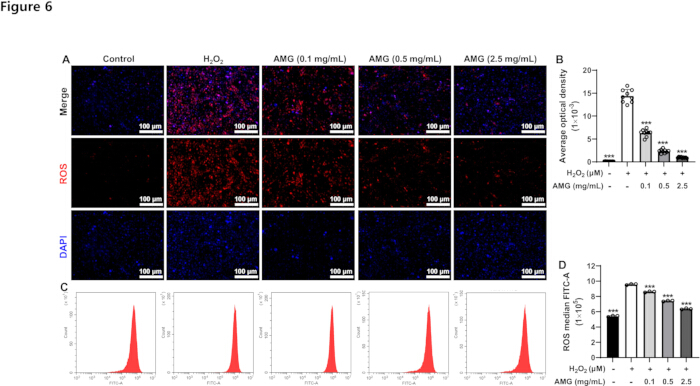
Figura 6: Effetti di AMG sulle ROS in HPEMs indotte da H2O2. (A) Immagine di fluorescenza delle ROS. (B) Risultati statistici quantitativi della fluorescenza delle ROS. (C) Immagine di citometria a flusso delle ROS. (D) Risultati statistici quantitativi della citometria a flusso delle ROS. I risultati sperimentali sono presentati come media ± DS. ***p < 0,001 rispetto al gruppo H2O2; n = 3. Cliccare qui per visualizzare una versione ingrandita di questa figura.
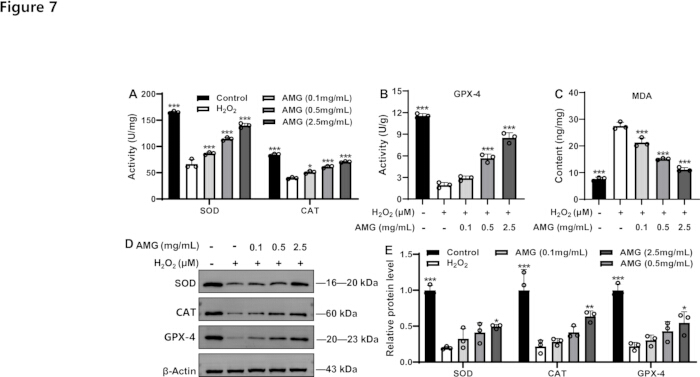
Figura 7: Effetti di AMG sugli indicatori dello stress ossidativo in HPEMs indotti da H2O2. I livelli di SOD, (A) CAT, (B) GPX-4 e (C) MDA in HPEMs sono stati misurati utilizzando kit biochimici o ELISA. Bande di Western blot di SOD, CAT e GPX-4 (D) e i relativi risultati quantitativi (E). I risultati sperimentali sono espressi come media ± DS. *p < 0,05, **p < 0,01 e ***p < 0,001 rispetto al gruppo H2O2; n = 3. Cliccare qui per visualizzare una versione ingrandita di questa figura.
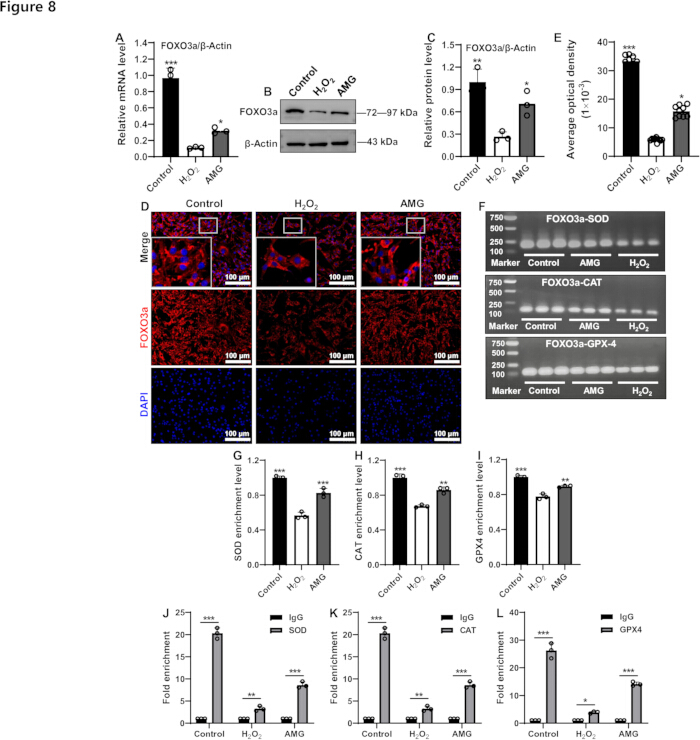
Figura 8: Effetti di AMG su FOXO3a in HPEMs indotti da H2O2. (A) livello di espressione del gene FOXO3a. Bande di Western blot di FOXO3a (B) e i relativi risultati quantitativi (C). Immagine di fluorescenza di FOXO3a (D) e risultati statistici quantitativi della fluorescenza (E). (F) schemi elettroforetici rappresentativi di ChIP-PCR per FOXO3a-SOD, FOXO3a-CAT e FOXO3a-GPX-4. Analisi quantitativa dei valori di grigio delle bande di ChIP-PCR per SOD (G), CAT (H) e GPX-4 (I). I livelli di arricchimento di FOXO3a nei promotori di SOD (J), CAT (K) e GPX-4 (L) sono stati rilevati mediante ChIP-PCR. I risultati sperimentali sono espressi come media ± DS. *p < 0,05, **p < 0,01 e ***p < 0,001 rispetto al gruppo H2O2, o rispetto ai gruppi indicati; n = 3. Cliccare qui per visualizzare una versione ingrandita di questa figura.
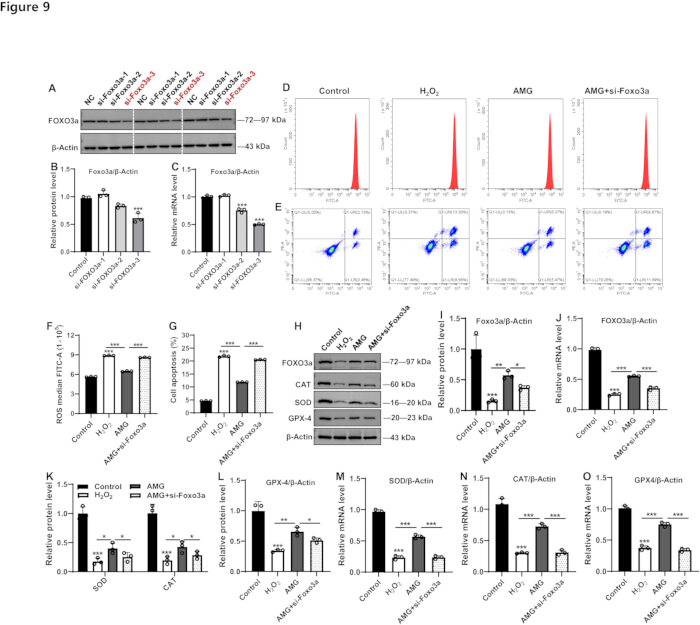
Figura 9: Effetti di AMG sullo stress ossidativo e sull'apoptosi in cellule HPEMs con bassa espressione di FOXO3a e stimoli di H2O2. (A) Bande di Western blot di FOXO3a e il relativo risultato quantitativo (B). (C) risultato quantitativo dell'espressione di mRNA di FOXO3a. (D) grafico di citometria a flusso di ROS e apoptosi cellulare (E). E i risultati statistici associati (F e G). (H) bande di Western blot di FOXO3a, SOD, CAT e GPX-4. (I) Risultato quantitativo dell'espressione proteica di FOXO3a. (J) risultato quantitativo dell'espressione di mRNA di FOXO3a. (K e L) risultati quantitativi dell'espressione proteica di SOD, CAT e GPX-4. Risultati quantitativi dell'espressione genica di SOD (M), CAT (N) e GPX-4 (O). I risultati sperimentali sono presentati come media ± DS. *p < 0,05, **p < 0,01 e ***p < 0,001 rispetto al gruppo di controllo o rispetto ai gruppi indicati; n = 3. Cliccare qui per visualizzare una versione ingrandita di questa figura.
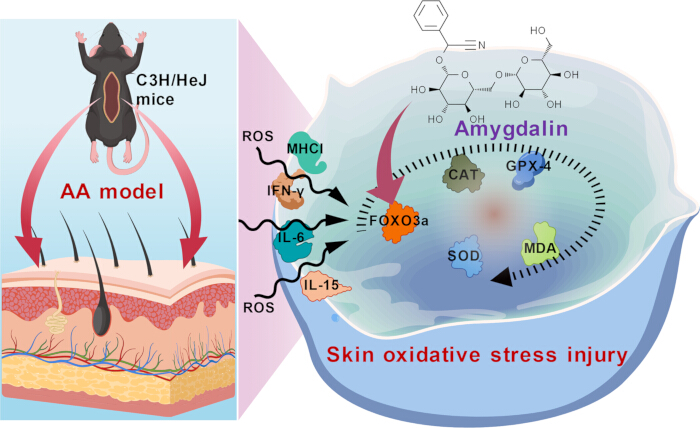
Figura 10: Schema riassuntivo. Questo schema illustra il meccanismo attraverso cui AMG stimola l'espressione di FOXO3a, inibendo così lo stress ossidativo e l'infiammazione e migliorando l'AA. È stato creato dagli autori utilizzando BioGDP.com, e non sussistono problemi di copyright. Cliccare qui per visualizzare una versione ingrandita di questa figura.
| Geni | Specie | Sequenze (5' - 3') | Lunghezza (bp) |
| FOXO3a | Topo | Forward: GCAAGCCGTGTACTGTGGA | 116 |
| Reverse: CGGGAGCGCGATGTTATCC | |||
| FOXO3a | Umano | Forward: CGGACAAACGGCTCACTCT | 150 |
| Reverse: GGACCCGCATGAATCGACTAT | |||
| SOD | Umano | Forward: AAAGATGGTGTGGCCGATGT | 167 |
| Reverse: CAAGCCAAACGACTTCCAGC | |||
| CAT | Umano | Forward: CTATCCTGACACTCACCGCC | 129 |
| Reverse: CCACCCTGATTGTCCTGCAT | |||
| GPX-4 | Umano | Forward: GCAAGGGCATCCTGGGAAAT | 84 |
| Reverse: GTTCTTGTCGATGAGGAACTGTG | |||
| β-Actin | Umano | Forward: AATCTGGCACCACACCTTCTACAA | 172 |
| Reverse: GGATAGCACAGCCTGGATAGCAA | |||
| β-Actin | Topo | Forward: GTGCTATGTTGCTCTAGACTTCG | 174 |
| Reverse: ATGCCACAGGATTCCATACC |
Tabella 1: Informazioni sulla sequenza genica per la qRT-PCR. I primer utilizzati per la qRT-PCR.
| Geni | Specie | Sequenze (5' - 3') | Lunghezza (bp) |
| SOD | Umano | Forward: TGCCAGAAGAGGGACAGAACAGG | 173 |
| Reverse: ATCCGCCCACAGACACGAGAG | |||
| CAT | Umano | Forward: GGGAAGCAGATTTCTCCAGTG | 141 |
| Reverse: GGGTGTTGATTTCCTCCTTTACC | |||
| GPX-4 | Umano | Forward: TGGCACATTTTGGGGTTGGAAC | 103 |
| Reverse: TGAACGCTCCTCCTCCTTAAACG |
Tabella 2: Informazioni sulla sequenza genica per ChIP-PCR. I primer utilizzati per ChIP-PCR.
Discussione
L'AMG in sé non ha tossicità diretta. Viene idrolizzato dagli enzimi microbici intestinali o dall'acido gastrico, generando e rilasciando acido cianidrico altamente tossico49. L'acido cianidrico viene quindi rapidamente assorbito attraverso il tratto digerente nel flusso sanguigno e si diffonde nei tessuti corporei, causando ipossia nei tessuti del sistema nervoso, del sistema cardiovascolare e del sistema respiratorio50. Dal punto di vista meccanicistico, l'acido cianidrico si combina con gli ioni ferrosi della citocromo ossidasi, bloccando la catena respiratoria cellulare, provocando ipossia tissutale e disturbi metabolici cellulari, e innescando un'intossicazione acuta51. I sintomi tossici includono mal di testa, nausea, vomito e difficoltà respiratorie49,52. Nei casi gravi, può portare a insufficienza respiratoria e morte49,52. Pertanto, garantire un intervallo di dosaggio sicuro per l'AMG è una condizione preliminare per lo studio dei suoi effetti farmacologici. In questo studio, gli autori hanno prima confermato mediante esame istopatologico che le dosi utilizzate (60, 90 e 120 mg/kg) non provocavano tossicità epatica o renale nei topi C3H/HeJ normali, costituendo così la base per ulteriori ricerche sul trattamento dell'alopecia areata con AMG.
L'IFN-γ svolge un ruolo fondamentale come mediatore dell'infiammazione durante lo sviluppo dell'AA, ed è principalmente secreto dai linfociti T CD4+/CD8+ attivati53,54,55. Esso altera il privilegio immunologico dei follicoli piliferi (ad esempio inibendo la bassa espressione di MHC I), inducendo linfociti T autoreattivi ad attaccare i melanociti dei follicoli piliferi e causando vacuolizzazione delle cellule madri del pelo e una cheratinizzazione anomala della bulbula pilifera56,57. Esperimenti su animali hanno dimostrato che topi privi del gene IFN-γ mostrano resistenza all'AA58. L'IL-6 e l'IL-15 possono potenziare le risposte immunitarie di tipo Th1 attivando la cascata di trasduzione del segnale JAK/STAT e promuovendo il rilascio di IFN-γ 59. Inoltre, l'IL-15 può stimolare la proliferazione delle cellule NK e dei linfociti T, aggravando l'infiltrato infiammatorio attorno alle strutture dei follicoli piliferi60. Le bulbule pilifere normali evadono la sorveglianza immunitaria grazie alla bassa espressione di MHC I, mentre nei pazienti con AA l'MHC I è anomalo e sovraespresso, rendendo i melanociti dei follicoli piliferi bersaglio dell'attacco da parte dei linfociti T61. In questo studio, gli autori hanno osservato che il trattamento con AMG ha significativamente ridotto i livelli delle proteine MHC I e IL-15 nella cute di topi C3H/HeJ. Precedenti esperimenti su animali avevano inoltre confermato che l'AMG è in grado di inibire i livelli di IFN-γ e IL-6 nei topi con AA38. Nell'insulto indotto da H2O2 nei melanociti epidermici del pelo (HPEMs), MHC I e citochine pro-infiammatorie come IFN-γ, IL-6 e IL-15 sono risultati notevolmente ridotti dopo il trattamento con AMG. Questi dati suggeriscono che il potenziale dell'AMG nel trattamento dell'AA potrebbe essere legato al mantenimento dell'equilibrio tra immunità e infiammazione.
Lo squilibrio tra il sistema enzimatico antiossidante (SOD, CAT e GPX-4) e i marcatori della perossidazione lipidica MDA e ROS svolge un ruolo cruciale nella patogenesi dell'AA62. La SOD riduce lo stress ossidativo catalizzando la conversione di O2·⁻ in H2O2, mentre CAT e GPX-4 degradano ulteriormente H2O2 in H2O, impedendo l'accumulo di ROS. Evidenze indicano che un eccesso di ROS può innescare la perossidazione lipidica, portando a livelli elevati di MDA e danneggiando direttamente le cellule del follicolo pilifero63. Nei pazienti con AA, la capacità di eliminazione dei ROS nei follicoli piliferi diminuisce, e l'accumulo di MDA aggrava la morte apoptotica delle cellule della papilla del follicolo, causando l'ingresso prematuro dei follicoli piliferi nella fase di riposo63. Inoltre, lo stress ossidativo potrebbe favorire il rilascio del fattore pro-infiammatorio IFN-γ, aggravando ulteriormente l'attacco immunitario e la degenerazione del follicolo pilifero64. In questo studio, i ricercatori hanno chiarito che l'intervento con AMG ha ridotto l'espressione eccessiva di ROS nella cute dei topi con AA e ha attenuato il danno nelle cellule HPEM indotto da H2O2. Allo stesso tempo, indagini sperimentali in vivo ed ex vivo hanno dimostrato entrambe che il trattamento con AMG ha aumentato significativamente gli indicatori antiossidanti (SOD, CAT e GPX-4), riducendo al contempo l'indicatore pro-ossidativo MDA. Queste evidenze indicano che il mantenimento dell'equilibrio dello stress ossidativo rappresenta il contributo di AMG all'AA. Considerando che una ridotta attività di GPX-4 potrebbe portare a una produzione incontrollata di MDA, ciò potrebbe innescare il processo di ferroptosi. Questi processi molecolari potrebbero contribuire all'aggravamento dell'AA e costituire un possibile meccanismo d'azione del trattamento con AMG. Tutti questi aspetti richiedono ulteriori verifiche sperimentali in futuro.
Come fattore di trascrizione chiave, FOXO3a potrebbe essere coinvolto nella patogenesi dell'AA attraverso vie di regolazione dello stress ossidativo e immunitarie65Può traslocare nel nucleo in condizioni di stress ossidativo, regolando positivamente enzimi antiossidanti chiave come SOD e CAT per eliminare l'eccesso di ROS e ridurre i danni ossidativi al tessuto del cuoio capelluto. Mitigando il carico ossidativo locale, FOXO3a può stabilizzare il privilegio immunitario dei follicoli piliferi e limitare l'attacco autoimmune responsabile della perdita di capelli non cicatriziale. Per quanto riguarda la regolazione dello stress ossidativo, l'attivazione di FOXO3a può aumentare l'espressione di enzimi antiossidanti come SOD e CAT e inibire l'accumulo di ROS.65Tuttavia, un'alterata funzione di FOXO3a può indurre un aumento della generazione di MDA, un prodotto chiave della perossidazione lipidica, aggravando così l'apoptosi cellulare 66. A livello di regolazione immunitaria, FOXO3a innesca attacchi autoimmuni regolando gli antigeni con restrizione MHC I67Questo studio ha riportato che l'AMG aumentava in modo significativo i livelli proteici e genici di FOXO3a nel tessuto cutaneo di topi C3H/HeJ e nelle cellule HPEM indotte da H2O2. Inoltre, l'AMG riduceva i livelli di ROS e l'apoptosi cellulare, aumentando al contempo l'espressione di FOXO3a e i livelli delle sue proteine regolate SOD, CAT e GPX-4 nelle cellule HPEM con bassa espressione di FOXO3a. Nel complesso, questi risultati indicano che l'effetto terapeutico dell'AMG sull'AA è strettamente legato all'equilibrio regolatorio mediato da FOXO3a tra stress ossidativo e apoptosi cellulare. Considerata la relazione causale tra FOXO3a mediata da AMG e il miglioramento dell'AA, sarà necessario condurre studi futuri che prevedano l'overespressione di FOXO3a o la sua inibizione farmacologica in presenza di intervento con AMG. Inoltre, rimane da chiarire se la FOXO3a mediata da AMG possa attenuare lo stress ossidativo e modulare le risposte infiammatorie per proteggere le cellule staminali del follicolo pilifero dai danni indotti da ROS e dalla distruzione immune-mediata. Un altro aspetto degno di nota è se l'AMG eserciti il suo effetto antiossidante contrastando direttamente la tossicità di H₂O₂ oppure mediante la regolazione della trasduzione del segnale intracellulare rimane una questione irrisolta in questa ricerca.
In conclusione, questo studio ha inizialmente confermato che l'AMG non era potenzialmente tossico per fegato e reni alle dosi testate. Inoltre, a livello molecolare è stato dimostrato che l'AMG potrebbe promuovere l'espressione di FOXO3a, attivando così trascrizionalmente le espressioni di SOD, CAT e GPX-4, e inibendo le risposte infiammatorie e gli eventi apoptotici per il trattamento dell'AA (Figura 10). Tuttavia, alcune limitazioni presenti in questo studio devono ancora essere esplorate e chiarite in ricerche successive. In primo luogo, la chiarificazione della tossicità a lungo termine e delle proprietà farmacocinetiche dell'AMG negli animali con AA rappresenta la base e il prerequisito per approfondire lo studio dei suoi effetti farmacologici e dei meccanismi molecolari. In secondo luogo, gli effetti farmacologici dell'AMG nel trattamento dell'AA richiedono ancora conferma attraverso studi su larga scala in diversi modelli animali e prove cliniche. Per quanto riguarda il meccanismo molecolare, è ancora necessario condurre esperimenti di recupero per confermare ulteriormente se sia FOXO3a a mediare l'effetto farmacologico dell'AMG. Resta inoltre da chiarire se si tratti dell'attività antiossidante diretta dell'AMG o dell'effetto antiossidante esercitato tramite l'attivazione di FOXO3a mediata dall'AMG.
Dichiarazioni
The authors have no conflicts of interest to declare.
AUTHORS’ CONTRIBUTION:
Xun He: Investigation, Methodology, Writing – original draft. Jingsong Liu, Jiawei Wang, and Zhe Dai: Data curation. Yugang Gong, Wei Lu, and Xiaowei Sha: Software, Visualization, and Validation. Xun He: Conceptualization, Writing – Review & Editing, Funding acquisition, and Supervision.
Ringraziamenti
Questo lavoro è stato sostenuto dal Comitato Sanitario per i Funzionari Provinciali del Sichuan (2024-221).
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| 5×MasterMix All-In-One (con kit per la rimozione del DNA genomico AccuRT) | Applied Biological Materials Inc., Jiangsu, China | G492 | |
| Anticorpo contro la β-actina | Affinity Biosciences Co., Ltd., Wuhan, China | AF7018 | |
| Amandoroside | Chengdu Herbpurify Co., Ltd., Chengdu, China | K-001-181216 | |
| Anticorpo contro la catalasi | Proteintech, Wuhan, China | 66765-1-Ig | |
| Kit per catalasi | Elabscience, Wuhan, China | E-BC-K031-M | |
| Topi C3H/HeJ | Chengdu Yaokang Biotechnology Co., Ltd., Chengdu, China | N000190 | |
| Kit per saggio ChIP | Beyotime Biotechnology, Shanghai, China | P2078 | |
| Mezzo di coltura 254 | Gibco, Thermo Fisher Scientific, America | M-254-500 | |
| Reagente colorante DAPI | Servicebio, Wuhan, China | G1012 | |
| Dispasi II | Shanghai Yuanye Bio-Technology Co., Ltd., Shanghai, China | S25046 | |
| EvaGreen Express 2×qPCR MasterMix-Senza colorante | Applied Biological Materials Inc., Jiangsu, China | MasterMix-ES | |
| Nero rapido HB | Sangon Biotech Co., Ltd., Shanghai, China | A602008-0025 | |
| Siero fetale bovino | Every Green | 13011-8611 | |
| Microscopio a fluorescenza | SOPTOP | CX40 | |
| Anticorpo contro FOXO3a | Proteintech, Wuhan, China | 10849-1-AP | |
| Microtomo criostato | Thermo | Cryotome E | |
| Anticorpo contro la glutathione perossidasi 4 | Proteintech, Wuhan, China | 67763-1-Ig | |
| Kit per glutathione perossidasi 4 | Elabscience, Wuhan, China | E-BC-K883-M | |
| Image-pro plus 6.0 | Media Cybernetics, Inc., Rockville, MD, USA | —— | |
| Crema a base di imiquimod | Sichuan Mingxin Pharmaceutical Co. Ltd., Chengdu, China | H20030129 | |
| Anticorpo contro l'interferone gamma | Proteintech, Wuhan, China | 15365-1-AP | |
| Kit per interferone gamma | Elabscience, Wuhan, China | E-EL-H0108 e E-EL-M0048 | |
| Anticorpo contro l'interleuchina 6 | Proteintech, Wuhan, China | 21865-1-AP | |
| Kit per interleuchina 6 | Elabscience, Wuhan, China | E-EL-H6156 e E-EL-M0044 | |
| Anticorpo contro l'interleuchina 15 | Affinity Biosciences Ltd., Wuhan, China | DF2521 | |
| Kit per interleuchina 15 | Elabscience, Wuhan, China | E-EL-H0222 e E-EL-M0728 | |
| Kit per malondialdeide | Elabscience, Wuhan, China | E-EL-0060 | |
| Anticorpo contro MHC | Affinity Biosciences Ltd., Wuhan, China | DF8558 | |
| Microscopio ottico | ZEISS | Primo Star | |
| Tagliatore di paraffina | Thermo scientific | HM325 | |
| Software per scansione istopatologica | 3DHISTECH (Ungheria) | Slide Viewer2.5.0 | |
| Soluzione penicillina-sintroide | Biosharp, Beijing, China | BL505A | |
| IgG da coniglio | Beyotime Biotechnology, Shanghai, China | A7016 | |
| Kit per saggio ROS | Beyotime Biotechnology, Shanghai, China | S0033M | |
| Anticorpo contro la superossido dismutasi 1 | Proteintech, Wuhan, China | 10269-1-AP | |
| Includitore di tessuti | Wuhan Junjie Electronics Co., Ltd., Wuhan China | JB-P5 | |
| Estrattore idraulico per tessuti | Thermo scientific | STP420 ES | |
| Kit per l'isolamento dell'RNA totale | Foregene, Chengdu, China | RE-03014 | |
| Kit per superossido dismutasi totale | Elabscience, Wuhan, China | E-BC-K020-M | |
| Vaselina bianca | Shanghai Aladdin Biochemical Technology Co., Ltd., Shanghai, China | P434227 |
Riferimenti
- Li XQ, et al. Burden of alopecia areata in China, 1990-2021: Global Burden of Disease Study 2021. Chin Med J (Engl). 2025;138:318-324.
- Rodríguez-Tamez G, Maskan-Bermudez N, Tosti A. Alopecia areata incognita: Current evidence. Dermatol Ther (Heidelb). 2025;15:635-645.
- Zhou J, et al. Global burden of alopecia areata and associated diseases: A trend analysis from 1990 to 2021. J Cosmet Dermatol. 2025;24:e70076.
- Jeon JJ, Lee S, Kim MS, Kim YS, Hong SH, Yon DK, et al. The burden of alopecia areata among United States, 2000-2021: A systematic analysis for the global burden of disease study 2021. J Am Acad Dermatol. 2025;S0190-9622(25)02673-8.
- Todorova L, Kluger N. Alopecia: A Google trends analysis of the past 5 years (2018-2023). Skin Appendage Disord. 2025;11:282-286.
- Pratt CH, King LEJr, Messenger AG, Christiano AM, Sundberg JP. Alopecia areata. Nat Rev Dis Primers. 2017;3:17011.
- Mistry J, Sibbald C. Clinical presentations and comorbidities of pediatric alopecia areata. Pediatr Dermatol. 2025;42 Suppl 1:5-11.
- Kuty-Pachecka M. Psychological and psychopathological factors in alopecia areata. Psychiatr Pol. 2015;49:955-964.
- Marahatta S, Agrawal S, Adhikari BR. Psychological impact of alopecia areata. Dermatol Res Pract. 2020;2020:8879343.
- Dainichi T, Iwata M, Kaku Y. Alopecia areata: What's new in the epidemiology, comorbidities, and pathogenesis J Dermatol Sci. 2023;112:120-127.
- Lintzeri DA, Constantinou A, Hillmann K, Ghoreschi K, Vogt A, Blume-Peytavi U. Alopecia areata - Current understanding and management. J Dtsch Dermatol Ges. 2022;20:59-90.
- Singh R, Kumar P, Kumar D, Aggarwal N, Chopra H, Kumar V. Alopecia areata: Review of epidemiology, pathophysiology, current treatments and nanoparticulate delivery system. Ther Deliv. 2024;15:193-210.
- Rizzetto G, De Simoni E, Gioacchini H, Molinelli E, Offidani A, Simonetti O. Fractionated CO2 laser in combination with topical tacrolimus for chronic alopecia areata: A case series study. Life (Basel). 2024;14:1128.
- Gasques L, de Brito FF, Zobiole R, Bortolini L, Assumpção VCC, Carvalho CL. Corticosteroid atrophy plaque on the scalp treated with 5-fluourouracil and bleomycin infusion in the MMP technique. Skin Appendage Disord. 2024;10:425-428.
- Lee D, et al. Serum levels of IL-18 and sIL-2R in patients with alopecia areata receiving combined therapy with oral cyclosporine and steroids. Exp Dermatol. 2010;19:145-147.
- Mlacker S, et al. A review on laser and light-based therapies for alopecia areata. J Cosmet Laser Ther. 2017;19:93-99.
- Jafari MA, Bazgir G, Hosseini-Baharanchi FS, Jafarzadeh A, Goodarzi A. Efficacy and safety of laser therapy and phototherapy in cicatricial and noncicatricial alopecia: A systematic review study. Health Sci Rep. 2024;7:e70180.
- Civaş E, Aksoy B, Aksoy HM, Eski M, Yucel K. Hair transplantation for therapy-resistant alopecia areata of the eyebrows: is it the right choice J Dermatol. 2010;37:823-826.
- King BA, Craiglow BG. Janus kinase inhibitors for alopecia areata. J Am Acad Dermatol. 2023;89:S29-S32.
- Chim I, Ghiya R, Sinclair RD, Eisman S. Novel investigational drugs for alopecia areata and future perspectives. Expert Opin Investig Drugs. 2024;33:441-449.
- Valdez-Zertuche JA, Ramírez-Marín HA, Tosti A. Efficacy, safety and tolerability of drugs for alopecia: A comprehensive review. Expert Opin Drug Metab Toxicol. 2025;21:347-371.
- Liu M, et al. Janus kinase inhibitors for alopecia areata: A systematic review and meta-analysis. JAMA Netw Open. 2023;6:e2320351.
- Sohn KC, et al. Effect of thioredoxin reductase 1 on glucocorticoid receptor activity in human outer root sheath cells. Biochem Biophys Res Commun. 2007;356:810-815.
- Sun C, Ding HH, Zhang L, Wang JL, Su MY. Co-regulatory mechanisms and potential markers of oxidative stress-related genes in vitiligo and alopecia areata. Skin Res Technol. 2024;30:e70001.
- Perlmutter J, et al. The role of reactive oxygen species in the pathogenesis of alopecia areata: A systematic review and meta-analysis. Skin Pharmacol Physiol. 2025;38:59-67.
- Xie B, Sun JY, Song XZ. Hair follicle melanocytes initiate autoimmunity in alopecia areata: A trigger point. Clin Rev Allergy Immunol. 2022;63:417-430.
- Shin JM, et al. The crosstalk between PTEN-induced kinase 1-mediated mitophagy and the inflammasome in the pathogenesis of alopecia areata. Exp Dermatol. 2024;33:e14844.
- Mustafa AI, Khashaba RA, Fawzy E, Baghdady SMA, Rezk SM. Cross talk between oxidative stress and inflammation in alopecia areata. J Cosmet Dermatol. 2021;20:2305-2310.
- Cohen JN, et al. Regulatory T cells in skin mediate immune privilege of the hair follicle stem cell niche. Sci Immunol. 2024;9:eadh0152.
- Kinoshita-Ise M, Martinez-Cabriales SA, Alhusayen R. Chronological association between alopecia areata and autoimmune thyroid diseases: A systematic review and meta-analysis. J Dermatol. 2019;46:702-709.
- Chen DY, Yang XY, Wang HX, Fan WL, He YQ. Molecular mechanism of polygonum multiflorum in the treatment of androgenic alopecia: based on bioinformatics and molecular docking method. Diagnosis and Therapy Journal of Dermato-Venereology 2022;29:101–108.
- Iwasa K, et al. Long term administration of loquat leaves and their major component, ursolic acid, attenuated endogenous amyloid-β burden and memory impairment. Sci Rep. 2023;13:16770.
- Makovi CM, Parker CH, Zhang K. Determination of amygdalin in apricot kernels and almonds Using LC-MS/MS. J AOAC Int. 2023;106:457-463.
- Li XJ, et al. Identifying the active components and mechanisms of Persicae Semen in treating androgenetic alopecia: Insights from network pharmacology and experimental evaluations. J Ethnopharmacol. 2025;347:119755.
- Wang Q, et al. Amygdalin alleviates psoriasis-like lesions by improving skin barrier function. Arch Dermatol Res. 2025;317:115.
- Li SY, et al. Effects of amygdalin on ferroptosis and oxidative stress in diabetic retinopathy progression via the NRF2/ARE signaling pathway. Exp Eye Res. 2023;234:109569.
- Kimura K, Liu YH, Hsieh CL. Amygdalin's neuroprotective effects on acute ischemic stroke in rats. J Ethnopharmacol. 2025;345:119621.
- He X, et al. Amygdalin ameliorates alopecia areata on C3H/HeJ mice by inhibiting inflammation through JAK2/STAT3 pathway. J Ethnopharmacol. 2024;331:118317.
- He X, et al. The antiinflammatory effects of Xuefu Zhuyu decoction on C3H/HeJ mice with alopecia areata. Phytomedicine. 2021;81:153423.
- Ma LP, et al. Melatonin inhibits senescence-associated melanin pigmentation through the p53-TYR pathway in human primary melanocytes and the skin of C57BL/6 J mice after UVB irradiation. J Mol Med (Berl). 2023;101:581-593.
- Hou Y, et al. Longzhibu disease and its therapeutic effects by traditional Tibetan medicine: Ershi-wei Chenxiang pills. J Ethnopharmacol. 2020;249:112426.
- Hou Y, Fan FH, Xie N, Zhang Y, Wang XB, Meng XL. Rhodiola crenulata alleviates hypobaric hypoxia-induced brain injury by maintaining BBB integrity and balancing energy metabolism dysfunction. Phytomedicine. 2024;128:155529.
- Hou Y, et al. Salidroside intensifies mitochondrial function of CoCl2-damaged HT22 cells by stimulating PI3K-AKT-MAPK signaling pathway. Phytomedicine. 2023;109:154568.
- Fan FH, et al. Association between systemic immune-inflammation indexes and Nuodikang capsule’s protection in LPS-induced acute lung injury in mice. Phytomedicine. 2025;147:157229.
- Wang XB, et al. Mechanistic insights into salidroside's mitochondrial protection via AMPK/Sirt1/HIF-1α pathway in hypoxic HT22 cells. JoVE. 2025;218:e66923.
- Wang XB, et al. Rhodiola crenulata attenuates apoptosis and mitochondrial energy metabolism disorder in rats with hypobaric hypoxia-induced brain injury by regulating the HIF-1α/microRNA 210/ISCU1/2(COX10) signaling pathway. J Ethnopharmacol. 2019;241:111801.
- Fan SJ, et al. PRMT5 encourages cell migration and metastasis of tongue squamous cell carcinoma through methylating ΔNp63α. Cell Death Differ. 2026; 33:465-479.
- Zhao Y, et al. Integrated analysis reveals that EGR1 promotes epithelial IL33 production in T2 asthma. J Transl Med. 2025;23:203.
- He XY, Wu LJ, Wang WX, Xie PJ, Chen YH, Wang F. Amygdalin - A pharmacological and toxicological review. J Ethnopharmacol. 2020;254:112717.
- Alan-Albayrak E, Simonsen U. Cyanide beyond toxicity: A systematic review of its effects on vascular function. Basic Clin Pharmacol Toxicol. 2025;137:e70124.
- Lachowicz JI, Alexander J, Aaseth JO. Cyanide and cyanogenic compounds-toxicity, molecular targets, and therapeutic agents. Biomolecules. 2024;14:1420.
- Jaszczak-Wilke E, Polkowska Ż, Koprowski M, Owsianik K, Mitchell AE, Bałczewski P. Amygdalin: Toxicity, anticancer activity and analytical procedures for its determination in plant seeds. Molecules. 2021;26:2253.
- Deeths MJ, Endrizzi BT, Irvin ML, Steiner LP, Ericson ME, Hordinsky MK. Phenotypic analysis of T-cells in extensive alopecia areata scalp suggests partial tolerance. J Invest Dermatol. 2006;126:366-373.
- Garzorz N, et al. Dissecting susceptibility from exogenous triggers: the model of alopecia areata and associated inflammatory skin diseases. J Eur Acad Dermatol Venereol. 2015;29:2429-2435.
- Belpaire A, Demeyer A, Van Caelenberg E, van Geel N, Speeckaert R. The AhR pathway is dysregulated in alopecia areata. J Transl Autoimmun. 2025;10:100282.
- Gilhar A, Schrum AG, Etzioni A, Waldmann H, Paus R. Alopecia areata: Animal models illuminate autoimmune pathogenesis and novel immunotherapeutic strategies. Autoimmun Rev. 2016;15:726-735.
- Oelert T, Gilhar A, Paus R. T-cell "induced-self" MHC class I/peptide complexes may enable "de novo" tolerance induction to neo-antigens occurring outside of the thymus: Lessons from the hair follicle. Exp Dermatol. 2017;26:529-531.
- Freyschmidt-Paul P, et al. Interferon-γ-deficient mice are resistant to the development of alopecia areata. Br J Dermatol. 2006;155:515-521.
- Lensing M, Jabbari A. An overview of JAK/STAT pathways and JAK inhibition in alopecia areata. Front Immunol. 2022;13:955035.
- Suzuki T, et al. Interleukin-15 is a hair follicle immune privilege guardian. J Autoimmun. 2024;145:103217.
- Fitzhugh MH, Hansen JG, Jabbari A, Berrebi KG. Pathophysiology of Alopecia Areata in the Pediatric Patient. Pediatr Dermatol. 2025;42:24-30.
- Ma YQ, Sun Z, Li YM, Xu H. Oxidative stress and alopecia areata. Front Med (Lausanne). 2023;10:1181572.
- Bakry OA, Elshazly RM, Shoeib MA, Gooda A. Oxidative stress in alopecia areata: A case-control study. Am J Clin Dermatol. 2014;15:57-64.
- Peterle L, Sanfilippo S, Borgia F, Cicero N, Gangemi S. Alopecia areata: A review of the role of oxidative stress, possible biomarkers, and potential novel therapeutic approaches. Antioxidants (Basel). 2023;12:135.
- Yang X, et al. Exosomes derived from platelet-rich plasma promote hair regeneration by regulating the SIRT1/FoxO3a pathway to alleviate oxidative stress. Regen Ther. 2025;30:710-718.
- Xu SC, Huang P, Yang JH, Du HX, Wan HT, He Y. Calycosin alleviates cerebral ischemia/reperfusion injury by repressing autophagy via STAT3/FOXO3a signaling pathway. Phytomedicine. 2023;115:154845.
- Tang QY, et al. Orlistat facilitates immunotherapy via AKT-FOXO3a-FOXM1-mediated PD-L1 suppression. J Immunother Cancer. 2025;13:e008923.