Forniamo un protocollo dettagliato e riproducibile per la dissezione, l'immunomarcatura e il montaggio del sistema visivo in sviluppo e adulto di Drosophila finalizzato all'acquisizione di immagini ad alta risoluzione. Questi metodi permettono la visualizzazione del patterning dei neuroblasti, della specificazione neuronale, dell'indirizzamento degli assoni dei fotorecettori e dell'organizzazione del neuropilo adulto, offrendo un quadro versatile per lo studio dello sviluppo del sistema visivo.
Articolo metodologico
Un protocollo per la dissezione, l'immunomarcatura e il montaggio del sistema visivo di Drosophila
In questo articolo
Sommario
Abstract
Il sistema visivo di Drosophila è un modello potente per esplorare come la diversità neuronale venga generata e integrata in circuiti neurali funzionali, una questione centrale nelle neuroscienze dello sviluppo. Comprende la retina e quattro neuropili distinti: la lamina, la medulla, il lobula e la placca del lobula, che insieme formano una struttura altamente organizzata che elabora l'input visivo proveniente dalla retina e lo trasmette ai centri superiori del cervello. Durante lo sviluppo, il sistema visivo subisce un rimodellamento significativo. Nella fase larvale, i neuroblasti vengono progressivamente generati dall'epitelio neuroectodermico e si dividono in modo asimmetrico per produrre diversi sottotipi neuronali integrando programmi di patterning spaziale e temporale. Questi neuroni quindi si differenziano e formano connessioni sinaptiche precise che costituiscono i circuiti funzionali del sistema visivo adulto. Questi processi dinamici possono essere studiati in modo affidabile mediante immunomarcatura negli stadi larvale, pupale e adulto. Qui forniamo un protocollo dettagliato e riproducibile per la dissezione e l'immunomarcatura del sistema visivo in sviluppo e adulto di Drosophila. Ci concentriamo principalmente sull'analisi rappresentativa dei neuroblasti larvali per evidenziare il patterning spaziotemporale e la specificazione neuronale, nonché per visualizzare la morfologia dei neuropili adulti. Questo approccio fornisce un quadro solido per l'osservazione del sistema visivo in sviluppo di Drosophila.
Introduzione
Il sistema visivo di Drosophila melanogaster rappresenta un importante modello di sviluppo per lo studio dei meccanismi cellulari e molecolari alla base dello sviluppo del sistema nervoso. Le sue strutture altamente stereotipate, l'ampio repertorio genetico disponibile e i processi di sviluppo conservati hanno contribuito ad approfondire la comprensione dello sviluppo delle cellule staminali neurali, della specificazione neuronale, dell'assemblaggio dei circuiti e dell'organizzazione cerebrale. Il sistema visivo della mosca è composto dalla retina ommatidiale e da quattro neuropili ottici – lamina, medulla, lobula e lobula plate – disposti in un circuito gerarchico complesso1. Le cellule fotoricettrici sensoriali presenti nella retina rilevano la luce e la convertono in segnali neurali2,3,4. Questi segnali vengono trasmessi attraverso interneuroni locali e neuroni di proiezione che interconnettono i quattro neuropili ottici, dove stadi successivi di elaborazione estraggono caratteristiche visive come contrasto, movimento e colore4,5. L'informazione visiva elaborata viene quindi trasmessa a centri cerebrali superiori tramite neuroni di proiezione visiva per un'ulteriore integrazione4,5,6.
Il lobo ottico in via di sviluppo attraversa una serie di eventi dello sviluppo precisamente sincronizzati che trasformano un neuroepitelio proliferativo (NE) in una rete complessa di circuiti neurali7,8. Il NE origina dalla placca ottica durante l'embriogenesi7,8. Durante gli stadi larvali, le cellule neuroepiteliali inizialmente si proliferano attraverso divisioni simmetriche per espandere il pool di progenitori. Successivamente, esse passano gradualmente a neuroblasti, che si dividono in modo asimmetrico per generare neuroni e cellule gliali del sistema visivo adulto9,10,11,12,13. Meccanismi di patterning spazio-temporale diversificano le identità neuronali, con i neuroni appena generati che formano strati concentrici all'interno della medulla in via di sviluppo e successivamente si differenziano in circuiti funzionali durante lo sviluppo pupale14,15,16,17,18,19. L'integrazione di segnali spazio-temporali attiva fattori di trascrizione neuronali specifici per tipo cellulare, la cui espressione prolungata determina i tipi cellulari neuronali14,15,20,21,22. Meccanismi simili esistono nella lamina e nel lobula per determinare le identità neuronali14,23,24,25,26.
L'imaging di immunofluorescenza del sistema visivo in via di sviluppo è diventato il metodo di elezione per visualizzare gli eventi cellulari e molecolari alla base del suo sviluppo. Una visualizzazione di successo dipende non solo dalla preparazione di campioni tissutali di alta qualità e da reagenti affidabili per l'immunomarcatura, ma anche da una dissezione accurata e da un orientamento preciso del campione durante il montaggio27,28. Diverse strutture e processi cellulari in via di sviluppo richiedono che i campioni siano orientati in modi specifici per rivelare le caratteristiche anatomiche del cervello. Diversi articoli e protocolli hanno descritto in dettaglio la dissezione e l'immunomarcatura del cervello di Drosophila28,29,30,31,32. Tuttavia, solo pochi di essi hanno affrontato questo aspetto nel contesto di un processo di sviluppo ampiamente studiato nel sistema visivo27.
Presentiamo qui un protocollo completo per la dissezione, l'immunomarcatura e il montaggio dei sistemi visivi larvali e adulti. Un semplice metodo di dissezione del cervello larvale, economico ed efficace, utilizza aghi per siringhe ampiamente disponibili, rendendo la procedura facilmente accessibile per laboratori e contesti didattici dotati di strumenti di dissezione specializzati limitati. Illustreremo il protocollo mediante esempi rappresentativi, inclusa la visualizzazione della transizione da neuroepitelio a neuroblasto (NE a NB) nelle larve, l'organizzazione neuronale concentrica all'interno della medulla in via di sviluppo e i neuropili del lobulo ottico adulto. Forniamo inoltre esempi che illustrano analisi dei modelli spaziali e temporali e dell'indirizzamento dei fotorecettori nel sistema visivo in via di sviluppo e in quello adulto. Nel complesso, queste procedure e le orientazioni definite per il montaggio forniscono un quadro pratico per ottenere immagini riproducibili e di alta qualità del sistema visivo di Drosophila in via di sviluppo e maturo, utili per studi di neurosviluppo.
Protocollo
1. Preparazione di reagenti e attrezzature
Per una corretta dissezione e immunomarcatura del sistema visivo di Drosophila è necessario preparare tutti i reagenti e l'attrezzatura prima di iniziare l'esperimento. La preparazione anticipata di tutte le soluzioni riduce al minimo il tempo di manipolazione del tessuto e contribuisce a preservarne la morfologia durante tutta la procedura. I seguenti reagenti devono essere preparati e tenuti pronti all'uso:
- Soluzione salina tamponata al fosfato (PBS 1x): preparare PBS 1x a partire da una soluzione madre 10x per la dissezione dei tessuti, i lavaggi e la preparazione dei reagenti. Il PBS fornisce un ambiente isotonico che mantiene l'integrità del tessuto durante la manipolazione. Conservare il PBS 1x a 4 °C.
- Mezzo di dissezione: per la dissezione, utilizzare il mezzo per insetti di Schneider freddo su ghiaccio. Il mezzo di Schneider è formulato per sostenere i tessuti di Drosophila, mimando da vicino la composizione ionica dell'emolinfa degli insetti, ed è raccomandato per dissezioni prolungate.
- Soluzione fissativa (formaldeide al 4% in PBS 1x con Triton X-100 (PBST)): preparare una soluzione fresca di formaldeide al 4% a partire da una soluzione madre al 16% in PBST 1x per garantire una fissazione e una conservazione ottimali del tessuto.
ATTENZIONE: la formaldeide è altamente reattiva e tossica se inalata, ingerita o assorbita attraverso la pelle. Manipolarla in una cappa chimica utilizzando idonei dispositivi di protezione individuale (DPI) e smaltirla nei contenitori dedicati ai rifiuti pericolosi contenenti formaldeide. - Buffer di lavaggio (PBST 1x): preparare PBST (PBS 1x contenente lo 0,3% di Triton X-100) da utilizzare come soluzione di lavaggio e permeabilizzazione.
- Soluzione di blocco: utilizzare come soluzione di blocco albumina sierica bovina al 5% (preparata da BSA al 30% in PBST 1x) oppure siero di capra normale al 5% (5% NGS in PBST 1x). Questo passaggio aiuta a ridurre il legame non specifico degli anticorpi. Conservare a 4 °C per un uso a lungo termine.
- Preparazione delle piastre rivestite con Sylgard: le capsule da dissezione rivestite con Sylgard offrono una superficie morbida che immobilizza i tessuti e protegge le punte delle pinzette fini. Mescolare la base Sylgard 184 e l'agente indurente in rapporto 10:1 fino a completa omogeneità. Versare in capsule di Petri per ottenere uno strato uniforme, quindi indurire a 37 °C per 2–4 giorni fino a completa essiccazione. Il tempo di lavorabilità del Sylgard 184 catalizzato a temperatura ambiente (22–25 °C) è di circa 2 h; pertanto, utilizzare la miscela entro questo periodo.
- Raffreddare preventivamente tutti i mezzi e i buffer di dissezione e mantenerli sul ghiaccio durante la preparazione del campione, la dissezione e l'immunomarcatura per preservare la morfologia del tessuto e ridurre il degrado. Prima di iniziare il protocollo, assicurarsi che tutti gli strumenti di dissezione, i vetrini, i coprioggetti, il mezzo di montaggio e le pinzette o gli aghi da dissezione siano pronti e facilmente accessibili. Raccogliere moscerini o larve allo stadio di sviluppo appropriato e tenerli pronti per la dissezione.
Non è stato richiesto alcun parere etico o autorizzazione per lavorare con Drosophila melanogaster.
2. Dissezione, immunomarcatura e montaggio del cervello larvale
- Dissezione:
- Raccogliere le larve di Drosophila di terzo stadio vagante, in numero da 8 a 10, dall'interno del flacone utilizzando un pennello umido e lavarle in una piastra di vetro con 1X PBS freddo a ghiaccio per rimuovere i residui di cibo.
- Utilizzando pinzette o un piccolo pennello, trasferire una singola larva dalla piastra di vetro alla goccia di 1X PBS o mezzo di Schneider freddo a ghiaccio al centro della piastra di Petri da 150 mm (senza Sylgard).
- Trattenere la larva nella regione centrale del corpo con un ago da siringa da 1 mL usando la mano non dominante. Con la mano dominante, effettuare un taglio trasversale con l'ago della siringa nella stessa posizione, dividendo la larva in due metà (Figura 1A–B).
ATTENZIONE: Gli aghi delle siringhe sono affilati e possono causare lesioni. Smaltire gli oggetti taglienti usati in un contenitore apposito. - Trattenere la metà anteriore della larva (identificabile dai ganci boccali neri) lungo il margine del taglio con la mano non dominante. Con l'ago della siringa nella mano dominante, spingere delicatamente i ganci boccali all'interno della cavità corporea, come se si stesse rivoltando un calzino. Questa azione everta la cuticola larvale, producendo un preparato rivoltato. Il metodo di dissezione rivoltata è più rapido e aiuta a preservare il cervello e i dischi oculari da danni (Figura 1C–D).
- Una volta evertita la cuticola, il cervello può essere visto attaccato ai dischi immaginali e ai ganci boccali. Utilizzando un ago da siringa, rimuovere i tessuti indesiderati, inclusi intestino, ghiandole salivari e corpo adiposo (Figura 1E).
- Trasferire il cervello dissezionato nella piastra di vetro contenente 300 µL di 1X PBS freddo a ghiaccio, mantenuta sul ghiaccio (Figura 1F).
- Ripetere i passaggi 2.1.2–2.1.6 fino a quando non si sono ottenuti cervelli sufficienti o fino a quando non siano trascorsi 20 minuti.
NOTA: Il tempo di dissezione non dovrebbe superare i 20 minuti per preservare un'elevata qualità del tessuto. - Utilizzare una pipetta da 200 μL per aspirare la maggior parte del tampone dai cervelli, lasciandone abbastanza da mantenerli immersi.
- Fissazione: Aggiungere 200 μL di soluzione fissativa fredda (4% formaldeide) ai cervelli nella piastra di dissezione e coprire con un vetrino da microscopio, quindi posizionare la piastra sul rocker da banco impostato a velocità di oscillazione 28 e angolo di oscillazione di 8° per 20 minuti.
NOTA: Evitare velocità elevate del rocker per prevenire la disintegrazione del tessuto.
ATTENZIONE: La formaldeide è pericolosa. Indossare dispositivi di protezione individuale adeguati, inclusi guanti, camice da laboratorio, mascherina facciale e protezione oculare, quando si maneggiano soluzioni contenenti formaldeide. - Aspirare la soluzione fissativa, quindi aggiungere 200 μL di tampone di lavaggio (1X PBS con 0,3% Triton X-100). Eseguire due risciacqui rapidi con PBST, seguiti da due lavaggi di 20 minuti ciascuno.
NOTA: Il Triton X-100 è un detergente fondamentale per permeabilizzare i campioni di tessuto e facilitare la penetrazione degli anticorpi. - Bloccaggio: Aspirare il PBST e aggiungere la soluzione di bloccaggio (5% siero di capra normale o 5% BSA in 1x PBST) ai cervelli. Incubare per 40 minuti a temperatura ambiente.
NOTA: L'incubazione nella soluzione di bloccaggio satura i siti di legame non specifici nel tessuto, riducendo così la colorazione di fondo e aumentando la specificità dell'anticorpo. Questo passaggio è raccomandato, anche se può essere saltato se la colorazione con anticorpi è specifica e mostra un fondo minimo.
- Immunomarcatura
- Preparare il cocktail di anticorpi primari alla diluizione raccomandata in circa 50 μL di PBST di lavaggio.
NOTA: Mantenere gli aliquote di anticorpi sul ghiaccio durante la preparazione per preservarne stabilità e attività. - Trasferire i cervelli dal pozzetto di vetro nei tubi microcentrifuga da 1,5 mL. Rimuovere il surplus della soluzione di bloccaggio dai cervelli, lasciandone abbastanza da mantenerli immersi.
- Preparare la soluzione del cocktail di anticorpi e aggiungerla al tubo contenente i cervelli. Mescolare delicatamente mediante pipettaggio con una punta da pipetta da 20 µL per assicurare una distribuzione uniforme dell'anticorpo.
NOTA: L'incubazione dei cervelli in una soluzione di anticorpo primario da 50 µL riduce il consumo di anticorpo senza compromettere la qualità della colorazione. - Incubare i tubi contenenti i cervelli su un supporto a 4 °C per 16 ore.
NOTA: L'incubazione con l'anticorpo primario può essere effettuata per 48–72 ore a 4 °C per potenziare la colorazione in alcuni casi. Gli anticorpi primari possono essere riutilizzati almeno 3 volte senza ridurre la qualità della colorazione. - Aggiungere 200 μL di PBST. Eseguire 2 lavaggi rapidi seguiti da 2 lavaggi lunghi di 20 minuti ciascuno.
- Preparare il cocktail di anticorpi secondari alle diluizioni raccomandate in circa 250 μL di PBST di lavaggio.
NOTA: Eseguire tutte le incubazioni successive all'aggiunta degli anticorpi secondari al buio per evitare l'esposizione alla luce, che potrebbe causare fotodegradazione. - Rimuovere il PBST in eccesso, quindi aggiungere il cocktail di anticorpi secondari ai cervelli. Incubare per 2 ore a temperatura ambiente (22–25 °C) o per 16 ore a 4°C su un rocker, coperto con una scatola di cartone per mantenere l'oscurità.
- Ripetere i passaggi di lavaggio precedenti (2 risciacqui rapidi, seguiti da 2 lavaggi lunghi di 20 minuti ciascuno) utilizzando PBST.
PUNTO DI PAUSA: I cervelli possono essere conservati in PBST a 4 °C per un massimo di 1 settimana. Tuttavia, si raccomanda di eseguire l'acquisizione delle immagini il prima possibile dopo il montaggio per minimizzare la perdita di segnale dovuta alla degradazione del tessuto o al decadimento del fluorocromo.
- Preparare il cocktail di anticorpi primari alla diluizione raccomandata in circa 50 μL di PBST di lavaggio.
- Montaggio dei lobi ottici larvali
- Preparare un vetrino da microscopio pulendolo con etanolo al 70% e lasciarlo asciugare per 5 minuti (Figura 2E).
- Applicare due strisce parallele di nastro adesivo doppio lato al centro del vetrino, lasciando un intervallo di 5–10 mm tra le strisce.
- Utilizzando una pipetta da 200 µL con punta tagliata, trasferire i cervelli su un altro vetrino pulito e rimuovere i tessuti indesiderati, come i dischi immaginali delle zampe, che potrebbero ostacolare la regione di interesse durante l'acquisizione delle immagini.
NOTA: Piccoli tessuti che non ostacolano la regione di interesse durante l'acquisizione delle immagini possono essere lasciati inalterati durante il montaggio. - Trasferire i cervelli sul vetrino contenente il nastro adesivo doppio lato.
NOTA: Assicurarsi che i cervelli non si secchino e siano sempre immersi nel tampone 1x PBST. - Identificare l'orientamento antero-posteriore di ciascun cervello larvale al microscopio stereoscopico utilizzando la morfologia caratteristica rigonfia del cervello e la posizione del cordone nervoso ventrale (VNC) come punti di riferimento anatomici (Figura 2A–D).
- Montaggio anteriore: Posizionare il cervello con il lato rigonfio rivolto verso l'alto, lontano dal vetrino, e il VNC rivolto verso il vetrino (Figura 2A, Figura 3A).
- Montaggio posteriore: Posizionare il cervello con il lato rigonfio rivolto verso il vetrino e il VNC rivolto lontano dal vetrino (Figura 2B, Figura 3F).
- Montaggio laterale: Bisecare il cervello montato anteriormente e il VNC lungo la linea mediana utilizzando un ago da siringa da 1 mL o un ago fine di tungsteno per generare due emimetà cerebrali (Figura 2C). Ruotare ciascun emisfero di 90° e posizionarlo con il lato laterale, corrispondente al tappo lobulare, rivolto verso il coprioggetto e la superficie di taglio mediale rivolta lontano dal piano di osservazione (Figura 2D, Figura 3K).
NOTA: Regolare la posizione del cervello al microscopio stereoscopico secondo necessità per ottenere l'orientamento desiderato. Mantenere il cervello immerso durante il posizionamento. - Aspirare la maggior parte del tampone, lasciandone abbastanza da mantenere i cervelli immersi.
- Aggiungere 20–40 μL di mezzo di montaggio (SlowFade Gold Antifade) nell'area contenente i cervelli e distribuirlo uniformemente con una pipetta da 20 μL.
- Posizionare con attenzione un coprioggetto in modo che poggio su entrambe le strisce di nastro e sigillarne i bordi con smalto per unghie.
NOTA: Se si formano bolle d'aria di grandi dimensioni dopo aver posizionato il coprioggetto, aggiungere altro mezzo di montaggio nello spazio tra coprioggetto e vetrino fino alla scomparsa delle bolle.
3. Dissezione, immunomarcatura e montaggio del cervello adulto
- Dissezione: La dissezione del cervello adulto è più complessa dal punto di vista tecnico e richiede una manipolazione accurata. Si raccomanda vivamente l'uso di una pinzetta affilata in acciaio inossidabile per la dissezione del cervello adulto.
- Anestetizzare un numero sufficiente di moscerini adulti dell'età richiesta su un tappetino per CO2, quindi trasferirli su un fazzoletto di carta umido posto nel contenitore di ghiaccio per mantenere l'anestesia durante la dissezione.
NOTA: Dopo l'anestesia, i moscerini possono essere mantenuti umidi con un fazzoletto di carta sul ghiaccio durante la dissezione, eliminando la necessità di tenere acceso il tappetino a CO2 e facilitando la manipolazione. - Utilizzando pinzette fini, prendere delicatamente il moscerino adulto per le zampe e posizionarlo nella piastra Petri rivestita di Sylgard.
- Fissare il moscerino alla piastra rivestita di Sylgard inserendo un perno dall'alto attraverso la parte centrale del torace, lontano dalla regione cerebrale. Immergere il moscerino in una goccia di tampone 1X PBS/Schneider's Media freddo e posizionare la testa del moscerino per la dissezione ruotando il moscerino verso di sé o spostando la piastra.
ATTENZIONE: I perni da dissezione sono affilati e possono causare lesioni. Smaltirli in un contenitore apposito per oggetti taglienti. - Utilizzando la pinzetta nella mano dominante, rimuovere con cura il proboscide e la cuticola frontale tra gli occhi per esporre parzialmente il cervello. Questo crea un'apertura al di sotto della cuticola retinica che facilita la successiva dissezione cerebrale.
- Utilizzando pinzette fini, afferrare delicatamente la retina ai suoi bordi esterni e tirarla verso l'esterno da entrambi i lati. Prestare attenzione a non perforare i lobi ottici durante il distacco della retina.
- Rimuovere con cura i tessuti residui, come la trachea o il proventricolo, attaccati al cervello.
- Trasferire il cervello pulito in una piastra di vetro con alveoli contenente 200 µL di 1X PBS, mantenuta sul ghiaccio.
- Ripetere i passaggi di dissezione 3.1.2 a 3.1.7 fino a quando non si sono raccolti abbastanza cervelli o non sono trascorsi 30 minuti.
- Utilizzare una pipetta da 200 µL per aspirare il PBS dai cervelli, lasciandone una quantità sufficiente a mantenerli immersi.
- Fissazione: Aggiungere 200 μL di soluzione fissativa fredda (4% formaldeide in 1X PBS) alla piastra di vetro con alveoli contenente i cervelli adulti dissecati, quindi posizionare la piastra, coperta con un vetrino da microscopio, sul rocker da banco impostato a velocità 28 per 30 minuti.
ATTENZIONE: La formaldeide è pericolosa. Indossare guanti adeguati, camice da laboratorio e protezione oculare quando si maneggiano soluzioni contenenti formaldeide. - Aspirare la soluzione di fissazione, lasciandone una quantità sufficiente a coprire i cervelli, e aggiungere 200 µL di PBST. Ripetere 3 lavaggi rapidi e 2 lavaggi lunghi, ciascuno di 20 minuti.
- Bloccaggio: Rimuovere il PBST e incubare i cervelli in una soluzione di bloccaggio (5% NGS o 5% BSA) per 45 minuti.
- Trasferire i cervelli in una provetta da 1,5 mL e rimuovere la maggior parte della soluzione di bloccaggio, lasciandone una quantità sufficiente a mantenerli immersi.
- Anestetizzare un numero sufficiente di moscerini adulti dell'età richiesta su un tappetino per CO2, quindi trasferirli su un fazzoletto di carta umido posto nel contenitore di ghiaccio per mantenere l'anestesia durante la dissezione.
- Immunomarcatura
- Preparare il cocktail di anticorpi primari alla diluizione appropriata in 50 µL di PBST.
- Aggiungere il cocktail di anticorpi primari alla provetta contenente i cervelli e incubare per 12–16 ore a 4 °C.
- Aspirare la soluzione anticorpale, quindi aggiungere PBST per 2 risciacqui rapidi e 2 lavaggi lunghi di 20 minuti ciascuno.
- Preparare il cocktail di anticorpi secondari alle diluizioni raccomandate in 250 µL di PBST.
- Rimuovere il PBST e quindi aggiungere il cocktail di anticorpi secondari. Incubare sul rocker da banco a temperatura ambiente (22–25 °C) per 2 ore oppure per 12–16 ore a 4 °C al buio.
- Ripetere i lavaggi (3 rapidi e 2 lunghi, ciascuno di 20 minuti).
PUNTO DI PAUSA: È possibile fermarsi a questo passaggio e mantenere i cervelli in PBST a 4 °C per una settimana.
- Montaggio dei lobi ottici adulti
- Preparare un vetrino pulendolo con etanolo al 70%.
- Preparare un ponte per coprivetrino posizionando due coprivetrini da 18 x 18 mm su una piccola goccia di colla adesiva universale per creare uno spazio (inferiore a 1 mm) tra di loro per i cervelli (Figura 2F).
- Utilizzando una punta da 200 µL tagliata, trasferire i cervelli puliti su un vetrino e rimuovere tessuti, come la trachea o la cuticola della testa, che potrebbero ostacolare la visione durante l'acquisizione delle immagini.
- Trasferire i cervelli puliti sul lato di montaggio preparato al passaggio 3.3.2.
NOTA: Mantenere i cervelli immersi in PBST 1x durante tutta la procedura di montaggio e non farli asciugare. - Sotto un microscopio stereoscopico, identificare l'orientamento antero-posteriore di ciascun cervello adulto utilizzando la sua morfologia generale. La superficie convessa corrisponde al lato anteriore, mentre la superficie concava corrisponde al lato posteriore.
- Montaggio anteriore: Posizionare il cervello con la superficie anteriore e i lobi antennali rivolti verso il coprivetrino (Figura 4A).
- Montaggio posteriore: Posizionare il cervello con la superficie posteriore rivolta verso il coprivetrino e i lobi antennali rivolti lontano dal coprivetrino (Figura 4D).
- Montaggio laterale: Posizionare il cervello in modo che i neuropili visivi siano orientati parallelamente al piano di osservazione. Posizionare il cervello in posizione anteriore, ruotarlo di 90° e appoggiarlo contro il bordo del coprivetrino distanziatore (Figura 4G).
- Aspirare la maggior parte del tampone PBST 1x, lasciandone una quantità sufficiente a mantenere i cervelli immersi.
- Aggiungere 40 μL di mezzo di montaggio (preferibilmente VECTASHIELD Antifade Mounting Media) sulla zona contenente i cervelli, quindi distribuirlo uniformemente con una pipetta da 20 μL. Aggiungere altro mezzo di montaggio se necessario.
NOTA: VECTASHIELD Antifade Mounting Media funziona bene con vetrini dotati di ponte per coprivetrino poiché la sua viscosità maggiore lo aiuta a rimanere nello spazio tra i coprivetrini. - Posizionare con cura un coprivetrino da 22 x 22 mm in modo che poggia sui due coprivetrini. Rimuovere eventuali bolle aggiungendo altro mezzo di montaggio dalla fessura.
- Sigillare i bordi con smalto per unghie (Figura 2F).
4. Acquisizione delle immagini ed elaborazione delle immagini
- Acquisire le immagini utilizzando un microscopio confocale Leica STELLARIS 8 con obiettivi da 40x (NA = 1.3) e da 63x ad immersione in olio (NA = 1.4), con una risoluzione di 1024 × 1024 pixel.
- Acquisire serie Z con un passo z di 1 µm e una velocità di scansione di 200 Hz.
- Effettuare l'acquisizione con scansione bidirezionale e un intervallo di zoom compreso tra 0,75 e 1,0x, in base al campione.
- Impostare il guadagno a 100 e utilizzare il rilevatore appropriato per ciascun fluorocromo.
NOTA: Utilizzare lunghezze d'onda di eccitazione di 405, 488, 555 e 647 nm, regolando la potenza del laser in base all'anticorpo e al fluorocromo utilizzati. - Acquisire le immagini mediante il software di acquisizione Leica ed elaborarle utilizzando Fiji/ImageJ2 versione 2.16.0/1.54p.
Risultati
Una dissezione, immunomarcatura e orientamenti corretti per il montaggio sono essenziali per preservare la struttura complessiva del lobo ottico in via di sviluppo e per catturare con precisione le sue caratteristiche anatomiche, le transizioni dello sviluppo e i tipi cellulari. Diversi orientamenti per il montaggio forniscono viste complementari dei sistemi visivi larvali e adulti di Drosophila e permettono di visualizzare diverse regioni anatomiche e caratteristiche neuronali.
Orientamenti per il Montaggio delle Larve:
Questa sezione illustra orientamenti rappresentativi di montaggio che facilitano l'acquisizione d'immagini del lobo ottico larvale in sviluppo (Figura 3). Lo schema del cervello larvale evidenzia le principali strutture del lobo ottico, inclusi l'OPC, la medulla e la lamina (Figura 3A). Un montaggio anteriore mostra l'OPC, la transizione da neuroepitelio a neuroblasti (NE-a-NB), la fascia di neuroblasti della medulla e la lamina in via di sviluppo. Un cervello montato anteriormente e colorato con Deadpan (Dpn), E-Caderina (ECad) e Dachshund (Dac) mette in risalto queste strutture (Figura 3B). Questo orientamento permette anche di risolvere la cascata dei fattori di trascrizione temporali nei neuroblasti della medulla, come mostrato dall'espressione sequenziale di Hth, Opa, Erm ed Ey (Figura 3C). Gli assoni dei fotorecettori, marcati con anticorpi anti-Chp, alternati ai neuroni della lamina, possono essere visualizzati anche nell'orientamento anteriore (Figura 3D, E). Il montaggio posteriore espone il centro di proliferazione interno (IPC) e le estremità dell'OPC, fornendo viste complementari del lobo ottico in sviluppo (Figura 3F, G-H). Gli assoni dei fotorecettori (positivi per Chp), alternati ai neuroni della lamina, possono essere visualizzati anche nell'orientamento posteriore (Figura 3I, J). Insieme al montaggio anteriore, questo orientamento consente un accesso complementare a diverse regioni del sistema visivo larvale in sviluppo. Il montaggio laterale rivela il patterning spaziale dell'OPC insieme all'organizzazione concentrica dei neuroni (Figura 3K). Il montaggio laterale fornisce contemporaneamente una visione dell'organizzazione concentrica dei neuroni della medulla (Figura 3L). Popolazioni neuronali rappresentative includono neuroni intrinseci della medulla positivi per Bsh, indipendenti dal dominio spaziale (Mi1), e neuroni transmedullari positivi per TfAP-2 (Tm1, Tm2, Tm4 e Tm6), oltre a sottotipi neuronali specifici di regione come Dm8, DRA-Dm8 e Dm11 (Figura 3L). Vsx e Optix (Optix-GAL4>GFP) sono presenti nel neuroepitelio (NE) ma non nei neuroblasti (NB), mentre Rx è presente sia nel NE che nei NB19. Inoltre, Vsx e Rx sono espressi in specifici neuroni post-mitotici corrispondenti ai loro domini spaziali19 (Figura 3M). Gli assoni dei fotorecettori diretti verso la lamina e la medulla possono essere visualizzati nell'orientamento laterale (Figura 3N, O). Questi orientamenti di montaggio permettono l'analisi di come il patterning spaziale e temporale dei neuroblasti della medulla dia origine a identità neuronali distinte14,22.
Orientamenti per il Montaggio degli Adulti: Questa sezione presenta uno schema ed un esempio rappresentativo degli orientamenti di montaggio per l'analisi dell'optico lobo di Drosophila adulta. Il montaggio anteriore fornisce una vista frontale dell'optico lobo, rivelando la lamina, la medulla e le regioni anteriori della lobula e della placca della lobula (Figura 4A). L'anticorpo anti-Bruchpilot (Brp) marca i neuropili ottici, mentre Bsh evidenzia i neuroni Mi1 nella corteccia della medulla (Figura 4B). Nello stesso orientamento, l'anticorpo anti-Chaoptin (Chp) marca gli assoni dei fotorecettori che si proiettano verso la lamina e la medulla (Figura 4C). L'orientamento di montaggio posteriore espone regioni più profonde dell'optico lobo, permettendo la visualizzazione in profondità del neuropilo della medulla (Figura 4D, E). In questo orientamento, la colorazione con Chp permette di risolvere i terminali dei fotorecettori all'interno della medulla (Figura 4F). Il montaggio laterale fornisce una vista laterale dell'optico lobo, consentendo la visualizzazione simultanea della lamina, della medulla, della lobula e della placca della lobula (Figura 4G, H). Bsh marca i neuroni della lamina (L4 e L5) insieme ai neuroni intrinseci della medulla (Mi1), mentre Brp definisce i confini dei neuropili. Le proiezioni dei fotorecettori si dirigono verso la lamina e la medulla (Figura 4I), fornendo una panoramica dell'organizzazione del sistema visivo adulto.
Nel complesso, le orientazioni di montaggio anteriore, posteriore e laterale offrono punti di vista complementari dei sistemi visivi in via di sviluppo e maturi, consentendo ai ricercatori di esaminare diverse regioni anatomiche, caratteristiche dello sviluppo e popolazioni neuronali in base ai loro obiettivi sperimentali.
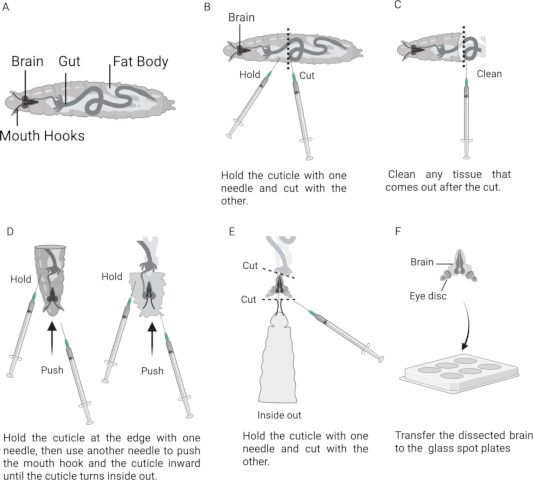
Figura 1: Dissezione del cervello di larva di Drosophila mediante il metodo dell'ago della siringa. (A) Schema di una larva di terzo stadio finale che mostra la posizione del cervello e delle strutture anatomiche associate. (B) Mostra la larva posizionata tra due aghi di siringa, con una linea tratteggiata che indica il sito approssimativo di separazione trasversale. (C) Metà anteriore della larva dopo la rimozione dei tessuti circostanti. (D) Passaggi sequenziali che mostrano l'inversione della cuticola larvale mediante aghi di siringa. (E) Preparato evertito che mostra il cervello, i dischi immaginali e gli uncini boccali. (F) Cervello larvale isolato in una piastra di vetro per gocce. Cliccare qui per visualizzare una versione ingrandita di questa figura.
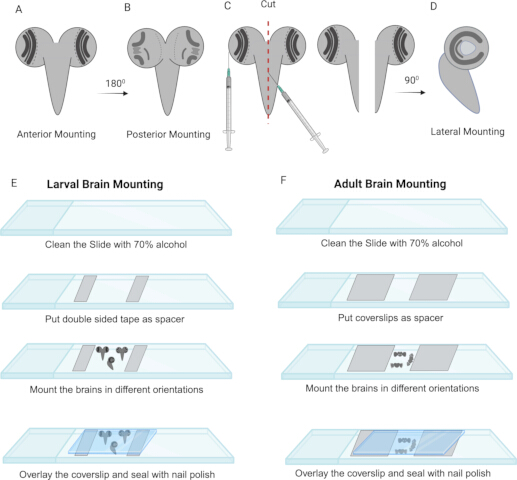
Figura 2: Passaggi per il montaggio dei lobi ottici larvali e adulti di Drosophila. (A) Orientamento anteriore per il montaggio del cervello larvale. (B) Orientamento posteriore per il montaggio del cervello larvale. (C) Sezione bilaterale del cervello montato anteriormente mediante ago di siringa. (D) Orientamento laterale per il montaggio del cervello emisecato. (E) Passaggi rappresentativi per il montaggio del cervello larvale. (F) Passaggi rappresentativi per il montaggio del cervello adulto. Cliccare qui per visualizzare una versione ingrandita di questa figura.
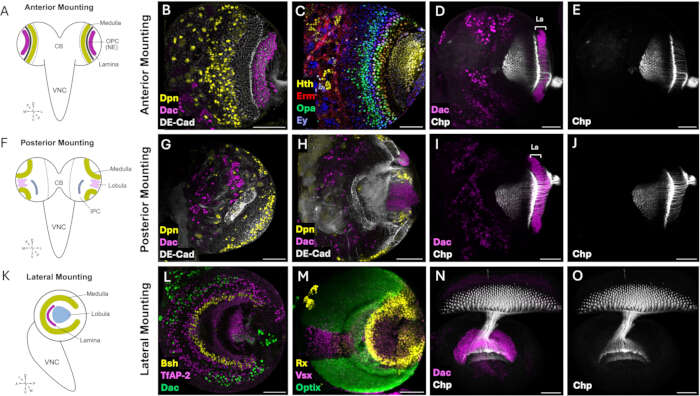
Figura 3: Orientamenti di montaggio per l’imaging del sistema visivo larvale di Drosophila. (A) Schema che illustra l'orientamento di montaggio anteriore del cervello larvale di terzo stadio, con la superficie anteriore rivolta verso il coprioggetto. (B) Immagine rappresentativa al microscopio confocale di un cervello larvale montato anteriormente, che mostra il centro di proliferazione esterno (OPC) marcato con anti-DE-Cadherin (DE-CAD, grigio), neuroblasti della medulla marcati con anti-Deadpan (Dpn, giallo) e la lamina in via di sviluppo marcata con anti-Dachshund (Dac, magenta). (C) Immagine dei neuroblasti della medulla che esprimono in successione i fattori di trascrizione temporali Homothorax (Hth), Odd-paired (Opa), Earmuff (Erm) e Eyeless (Ey) durante lo sviluppo dei neuroblasti. (D-E) Immagine rappresentativa degli assoni dei fotorecettori che si proiettano dal disco immaginale oculare nella lamina e nella medulla in via di sviluppo. (F) Schema che illustra l'orientamento di montaggio posteriore del cervello larvale, con la superficie posteriore rivolta verso il coprioggetto. (G) Immagine confocale della superficie posteriore superficiale del lobo ottico, che mostra il centro di proliferazione interno (IPC) e i neuroblasti della medulla posizionati alle estremità dell'OPC (tOPC). (H) Sezione ottica acquisita più in profondità all'interno del lobo ottico posteriore, che evidenzia l'IPC e la lobula in via di sviluppo. (I-J) Vista posteriore degli assoni dei fotorecettori che si proiettano nel lobo ottico in via di sviluppo. (K) Schema che illustra l'orientamento di montaggio laterale di un cervello larvale emisecato, con la superficie mediale tagliata rivolta verso il coprioggetto per visualizzare l'organizzazione concentrica della medulla in via di sviluppo insieme alla lamina e al tappo della lobula. (L) Immagine confocale rappresentativa che mostra l'organizzazione concentrica delle popolazioni neuronali della medulla, inclusi i neuroni Mi1 marcati da Brain-specific homeobox (Bsh), i neuroni Tm1, Tm2, Tm4 e Tm6 marcati da TfAP-2, i neuroni Dm8 positivi per Dachshund (Dac) nella medulla ventrale e i neuroni DRA-Dm8 e Dm11 nell'area del margine dorsale, che illustrano l'organizzazione spaziale dei sottotipi neuronali della medulla. (M) Proiezione di intensità massima del centro di proliferazione esterno che mostra i domini di patterning spaziale definiti dai fattori di trascrizione Vsx, Optix (Optix-GAL4>GFP) e Rx nel lobo ottico in via di sviluppo. (N-O) Immagine rappresentativa degli assoni dei fotorecettori nell'orientamento di montaggio laterale, che ne mostra le proiezioni e il targeting all'interno della lamina e della medulla in via di sviluppo. Scala = 50 µm. Abbreviazioni: La = Lamina. Cliccare qui per visualizzare una versione ingrandita di questa figura.
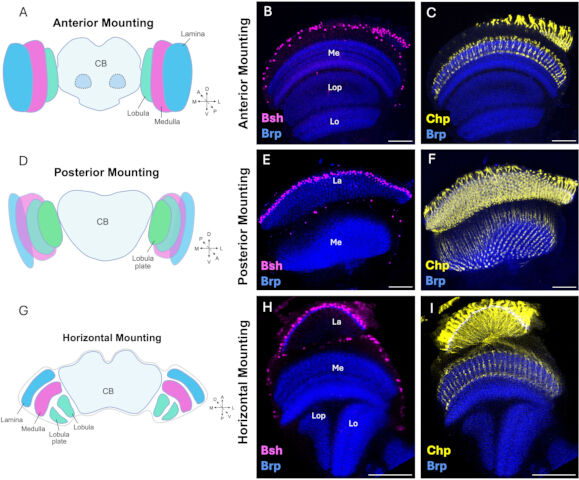
Figura 4: Orientamenti di montaggio per l'analisi del sistema visivo adulto di Drosophila. (A) Schema che illustra l'orientamento di montaggio anteriore del cervello adulto, con la superficie anteriore rivolta verso il vetrino. (B) Immagine confocale rappresentativa di un cervello adulto montato anteriormente, che mostra i neuroni Mi1 positivi per la homeobox specifica del cervello (Bsh) (magenta) all'interno della corteccia e dei neuropili del midollo, marcata con anti-Bruchpilot (Brp, blu). Questo orientamento fornisce una vista anteriore della lamina periferica, del midollo, del lobula e della placca del lobula. (C) Immagine rappresentativa di assoni dei fotorecettori marcati con anti-Chaoptin (Chp, giallo) che si proiettano nei neuropili della lamina e del midollo. (D) Schema che illustra l'orientamento di montaggio posteriore del cervello adulto, con la superficie posteriore rivolta verso il vetrino. (E) Immagine confocale rappresentativa del sistema visivo adulto montato posteriormente, che evidenzia gli strati più profondi del neuropilo del midollo marcato con anti-Brp. (F) Vista posteriore di assoni dei fotorecettori marcati con anti-Chaoptin (Chp, giallo) che mostrano il loro indirizzamento all'interno del neuropilo del midollo. (G) Schema che illustra l'orientamento di montaggio laterale del cervello adulto, con un lobo ottico posizionato parallelamente al vetrino per visualizzare l'organizzazione complessiva del sistema visivo. (H) Vista laterale rappresentativa del lobo ottico adulto che mostra i neuroni della lamina positivi per Bsh (L4 e L5) e i neuroni Mi1 del midollo (magenta), insieme ai neuropili marcati con anti-Brp (blu), che rivelano l'organizzazione spaziale della lamina, del midollo, del lobula e della placca del lobula. (I) Immagine rappresentativa di assoni dei fotorecettori marcati con anti-Chaoptin (Chp, giallo) che si proiettano nei neuropili della lamina e del midollo marcati con anti-Brp (blu). Scala = 50 µm. Abbreviazioni: Me = Midollo; La = Lamina; Lo = Lobula; Lop = Placca del lobula. Cliccare qui per visualizzare una versione ingrandita di questa figura.
Discussione
Questo protocollo fornisce un metodo affidabile per dissezionare, immunomarcare e montare i sistemi visivi di Drosophila in fase larvale e adulta, al fine di ottenere immagini confocali ad alta risoluzione. La procedura preserva l'integrità strutturale e la morfologia dei lobi ottici in via di sviluppo e maturi, fornendo orientamenti di montaggio che permettono una visualizzazione ottimale di processi chiave dello sviluppo, popolazioni neuronali e strutture del neuropilo. Tra gli esempi rappresentativi descritti vi sono la transizione da epitelio neuroectodermico a neuroblasto (NE-a-NB), il patterning spaziotemporale all'interno della medulla, il targeting degli assoni dei fotorecettori nel lobo ottico e l'organizzazione dei neuropili del sistema visivo adulto9,10,13,14,23. Questo protocollo offre quindi una struttura flessibile facilmente adattabile per visualizzare altri processi o tipi cellulari in qualsiasi stadio di sviluppo.
Rispetto ai metodi precedentemente pubblicati, questo protocollo combina procedure ottimizzate sia per il sistema visivo delle larve che degli adulti di Drosophila e offre diverse orientazioni di montaggio personalizzate per rispondere a diverse domande sperimentali. Sebbene diversi protocolli pubblicati descrivano la dissezione del cervello di Drosophila e l'immunomarcatura28,29,30,31,32, pochi si concentrano specificamente sul sistema visivo nel contesto dei processi di sviluppo27. Il protocollo descrive un metodo alternativo di dissezione larvale che utilizza siringhe da 1 mL facilmente reperibili al posto di pinzette fini specializzate. Sebbene questo approccio richieda una curva di apprendimento più ripida, offre un'alternativa pulita, economica e rapida che potrebbe risultare particolarmente utile per laboratori didattici e gruppi di ricerca con accesso limitato a strumenti di dissezione specializzati. Per quanto ne sappiamo, questo metodo di dissezione risulta meno traumatico per il cervello rispetto al metodo con pinzette, che durante la dissezione tira il cervello e spesso provoca lesioni. Inoltre, il nostro protocollo di immunomarcatura utilizza con attenzione cocktail di anticorpi in volumi ridotti senza compromettere la qualità della colorazione, consentendo così di risparmiare su anticorpi commerciali spesso costosi. Nel complesso, queste caratteristiche offrono vantaggi pratici in termini di accessibilità, dissezione e montaggio, permettendo al protocollo di essere facilmente adattato a diverse esigenze sperimentali.
L'implementazione corretta del protocollo dipende da un'attenta osservazione di diversi passaggi chiave. Le difficoltà comuni possono generalmente essere risolte modificando le procedure di dissezione, fissazione, colorazione o montaggio. Uno stress meccanico eccessivo durante la dissezione, l'agitazione o la pipettatura può causare danni o frammentazione del tessuto. Pertanto, eseguire le dissezioni rapidamente in PBS freddo, utilizzando movimenti delicati durante la rimozione dei tessuti circostanti e nelle successive fasi di agitazione e pipettatura. Una fissazione inadeguata, indicata da distorsione del tessuto, perdita della morfologia o colorazione non uniforme, può derivare da un tempo di fissazione insufficiente o da una soluzione fissante inadeguata. L'uso di una soluzione di formaldeide appena preparata e l'immersione completa del tessuto durante la fissazione aiutano a mantenere la morfologia del tessuto e la coerenza della colorazione. Una colorazione debole o irregolare può derivare da una permeabilizzazione insufficiente, da una penetrazione inadeguata degli anticorpi o da un'incubazione subottimale degli anticorpi. Aumentare il tempo di permeabilizzazione o di incubazione con gli anticorpi, e quando opportuno prolungare l'incubazione con l'anticorpo primario a 4 °C, può migliorare la penetrazione degli anticorpi e la qualità della colorazione. Un fondo elevato nella colorazione può derivare da un bloccaggio o da lavaggi insufficienti, oppure da una concentrazione eccessiva di anticorpi. Un bloccaggio e dei lavaggi adeguati, insieme a un'opportuna regolazione della concentrazione degli anticorpi, possono contribuire a ridurre la colorazione non specifica. Un orientamento errato durante il montaggio può oscurare la regione di interesse o posizionarla troppo lontano dal vetrino coprioggetto. Riorientare il cervello in base ai punti di riferimento anatomici descritti nel Protocollo e posizionare la regione di interesse vicino al vetrino coprioggetto facilita l'acquisizione di immagini della corretta struttura anatomica.
Nonostante la sua versatilità, il protocollo potrebbe necessitare di aggiustamenti per specifici tessuti, stadi di sviluppo, anticorpi e requisiti di imaging. Ad esempio, alcuni tessuti potrebbero trarre beneficio da una fissazione più breve sul ghiaccio, mentre alcuni anticorpi potrebbero richiedere un'incubazione prolungata a 4 °C fino a una settimana, oppure, al contrario, un'incubazione più breve a 22–25 °C. La qualità della fissazione può essere valutata in base al mantenimento della morfologia complessiva del cervello e dei lobi ottici, dei confini tissutali ben definiti e della minima distorsione, frammentazione o distacco. Analogamente, un'adeguata permeabilizzazione può essere valutata mediante una colorazione relativamente uniforme con l'anticorpo in tutto il tessuto, indicativa di una penetrazione sufficiente dell'anticorpo. Queste considerazioni permettono di adattare con flessibilità le condizioni di fissazione, permeabilizzazione, colorazione e montaggio all'applicazione sperimentale specifica, preservando al contempo il sistema visivo di Drosophila.
Dichiarazioni
Gli autori dichiarano di non avere conflitti di interessi. Gli autori hanno esaminato e approvato tutte le modifiche finali.
Lo strumento di correzione linguistica (Grammarly) è stato utilizzato per correggere l'ortografia e ristrutturare le frasi.
Ringraziamenti
Gli anticorpi monoclonali Brp, Dac, DE-Cad e Chp sono stati ottenuti dalla Developmental Studies Hybridoma Bank, creata dal NICHD del NIH e mantenuta presso il Dipartimento di Biologia dell'Università dell'Iowa, Iowa City, IA 52242. A.B., A.R. e C.S. sono stati sostenuti da Tamkeen attraverso il premio NYU Abu Dhabi Research Institute assegnato al NYU Abu Dhabi Center for Genomics and Systems Biology (ADHPG-CGSB) e dal finanziamento NIH RO1 EY017916 a C.D.
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| Austerlitz Pinze per Stabilizzazione di Insetti, 0,15 mm | Fine Science Tools | 26002-15 | |
| Anticorpo: Mouse anti-Brp | Banca dello sviluppo degli ibridomi | nc82 | Diluizione 1:50 |
| Anticorpo: topo anti-Chp | Banca dello sviluppo degli ibridomi | 24B10 | Diluizione 1:50 |
| Anticorpo: ratto anti-DE-CAD | Banca degli Ibridi per lo Studio dello Sviluppo | DCAD2 | Diluizione 1:20 |
| Anticorpo: Anti-Dac da topo | Banca dello sviluppo degli ibridomi | mAbdac1-1 | Diluizione 1:100 |
| Anticorpo: Anti-GFP da pecora | BioRad | 4745-1051 | Diluizione 1:200 |
| Anticorpo: Rabiit anti-Bsh | laboratorio Desplan | - | Diluizione 1:1000 |
| Anticorpo: anticorpo anti-Hth da criceto della Guinea | laboratorio Desplan | - | Diluizione 1:100 |
| Anticorpo: anticorpo anti-TfAP-2 da criceto di Guinea | laboratorio Desplan | - | Diluizione 1:500 |
| Anticorpo: coniglio anti-Ey | laboratorio Desplan | - | Diluizione 1:200 |
| Anticorpo: ratto anti-Erm | laboratorio Desplan | - | Diluizione 1:100 |
| Anticorpo: anti-Rx da criceto di Guinea | laboratorio Desplan | - | Diluizione 1:300 |
| Anticorpo: coniglio anti-Vsx | laboratorio Desplan | - | Diluizione 1:100 |
| Anticorpo: Donkey anti-mouse IgG coniugato ad Alexa Fluor 405 | Abcam | ab175658 | Diluizione 1:250 |
| Anticorpo: Donkey anti-mouse IgG coniugato ad Alexa Fluor 488 | Jackson ImmunoResearch | 715-547-003 | Diluizione 1:400 |
| Anticorpo: Donkey anti-topo IgG coniugato ad Alexa Fluor 555 | ThermoFisher Scientific | A31570 | Diluizione 1:500 |
| Anticorpo: Donkey anti-topo IgG coniugato ad Alexa Fluor 647 | Jackson ImmunoResearch | 715-605-151 | Diluizione 1:250 |
| Anticorpo: Donkey anti-IgG di criceto coniugato con Alexa Fluor 405 | Jackson ImmunoResearch | 706-475-148 | Diluizione 1:250 |
| Anticorpo: Donkey anti-IgG di criceto coniugato con Alexa Fluor 555 | Sigma-Aldrich | SAB4600297-5OUL | Diluizione 1:500 |
| Anticorpo: Donkey anti-IgG di criceto coniugato con Alexa Fluor 647 | Jackson ImmunoResearch | 706-605-148 | Diluizione 1:250 |
| Anticorpo: Donkey anti-rabbit IgG coniugato ad Alexa Fluor 405 | Abcam | ab175651 | Diluizione 1:250 |
| Anticorpo: Donkey anti-rabbit IgG coniugato ad Alexa Fluor 555 | Invitrogen | A31572 | Diluizione 1:500 |
| Anticorpo: Donkey anti-IgG di ratto coniugato ad Alexa Fluor 555 | Abcam | Ab150154 | Diluizione 1:500 |
| Anticorpo: Donkey anti-sheep IgG coniugato ad Alexa Fluor 488 | Jackson ImmunoResearch | 713-545-147 | Diluizione 1:400 |
| Siringa BD da 1 ml completa di ago da 25g x 16 mm x 120 | BD | 303175 | |
| Bovino Albumina sierica bovina (BSA), 30% | Sigma-Aldrich | A7284-50ML | |
| Vetrino coprioggetto in vetro 18 x 18 mm | VWR | 631-0120 | |
| Vetrino coprioggetto in vetro 24 x 24 mm | VWR | 631-0126 | |
| Nastro adesivo doppia faccia 19 mm x 33 m | Scotch | AMS12354 | |
| Moscerino: Canton S | BDSC | 64349 | |
| Moscerino: Optix-GAL4 | Kyoto | 104266 | |
| Moscerino: nls-GFP/CyO-YFP | BDSC/ laboratorio Desplan | 4775 | |
| Flystuff Drosophila Ultimate Flypads | Genesee Scientific Corporation | 59-172B | |
| Secchio per ghiaccio con coperchio, rotondo, 4 L, blu | Corning | 432123 | |
| Immagine (FIJI) | (Istituti Nazionali di Sanità, Bethesda, MD, USA) | Fiji/ImageJ2 versione 2.16.0/1.54p | |
| Kimtech Science Precision Wipes | Kimberly-Clark Professional | 05511 | |
| Pellicola sigillante per laboratorio | Parafilm M | PM-996 | |
| Vetrini per microscopio | VWR | 8037/1 | |
| Mini centrifuga | VWR | 521-2848 | |
| Smalto per unghie | Mumuso | 2023/11/05 | |
| Siero di capra normale | Sigma-Aldrich | G9023 | |
| Penne da pittura | Camlin | S-66 | |
| Paraformaldeide (PFA) | Sigma | P6148 | |
| Pietre di Petri 100 mm x 15 mm | Falcon | 351029 | |
| Soluzione salina tamponata al fosfato (PBS) | Sigma | P5493 | |
| PYREX® 9 piastre a depressione in vetro Spot | Corning | 7220-85 | |
| Rocker (da banco) | Fisherbrand | 8861025 | |
| Tubi Safelock da 1,5 mL | Eppendorf | O219706H | |
| Mezzo per insetti di Schneider | Sigma | S0146 | |
| Slowfade gold antifade | Invitrogen | S36936 | |
| Elastomero di silicone Sylgard 184 | Dow | 4019862 | |
| TritonX-100 | Sigma | 93426 | |
| Aghi di tungsteno 0,25 mm | Fine Science Tools | 10130-10 | |
| Aghi di tungsteno 0,5 mm | Fine Science Tools | 10130-20 | |
| UHU Adesivo Universale | UHU | 40815 | |
| Pinzette ultrafini | WPI | 500235 | |
| Vectashield antifade media di montaggio | Vettore | H-1000 | |
| Agitatore Vortex | VWR | VM-3000 |
Riferimenti
- Nériec N, Desplan C. From the Eye to the Brain: Development of the Drosophila Visual System. Curr Top Dev Biol. 2016;116:247–71.
- Montell C. Drosophila visual transduction. Trends Neurosci. 2012;35(6):356–63.
- Currier TA, Pang MM, Clandinin TR. Visual processing in the fly, from photoreceptors to behavior. Genetics. 2023;224(2),1–28.
- Fischbach KF, Dittrich APM. The optic lobe of Drosophila melanogaster. I. A Golgi analysis of wild-type structure. Cell Tissue Res. 1989;258(3):441–75.
- Dorkenwald S, et al. Neuronal wiring diagram of an adult brain. Nature. 2024;634(8032):124–38.
- Matsliah A, et al. Neuronal “parts list” and wiring diagram for a visual system. bioRxiv: The Preprint Server for Biology. Preprint posted online April 2024.
- Younossi-Hartenstein A, Nassif C, Green P, Hartenstein V. Early neurogenesis of the Drosophila brain. J Comp Neurol. 1996;370(3):313–29.
- Zhang Y, Li X. Development of the Drosophila Optic Lobe. Cold Spring Harb Protoc. 2024;2024(3):108156.
- Apitz H, Salecker I. A Challenge of Numbers and Diversity: Neurogenesis in the Drosophila Optic Lobe. J Neurogenet. 2014;28(3-4):233–49.
- Egger B, Gold KS, Brand AH. Notch regulates the switch from symmetric to asymmetric neural stem cell division in the Drosophila optic lobe. Development. 2010;137(18):2981–7.
- Sato M, Yasugi T, Minami Y, Miura T, Nagayama M. Notch-mediated lateral inhibition regulates proneural wave propagation when combined with EGF-mediated reaction diffusion. Proc Natl Acad Sci U S A. 2016;113(35):E5153–62.
- Wang W, et al. Notch signaling regulates neuroepithelial stem cell maintenance and neuroblast formation in Drosophila optic lobe development. Dev Biol. 2011;350(2):414–28.
- Yasugi T, Sugie A, Umetsu D, Tabata T. Coordinated sequential action of EGFR and Notch signaling pathways regulates proneural wave progression in the Drosophila optic lobe. Development. 2010;137(19):3193–203.
- Bakshi A, Ben El Kadhi K, Desplan C. Decoding neuronal diversity: Mechanisms governing neural cell fate in Drosophila. Curr Opin Neurobiol. 2025;93.
- Holguera I, Desplan C. Neuronal specification in space and time. Science (1979). 2018;362(6411):176–80.
- Konstantinides N, et al. A complete temporal transcription factor series in the fly visual system. Nature. 2022;604(7905):316–22.
- Li X, et al. Temporal patterning of Drosophila medulla neuroblasts controls neural fates. Nature. 2013;498(7455):456–62.
- Suzuki T, Kaido M, Takayama R, Sato M. A temporal mechanism that produces neuronal diversity in the Drosophila visual center. Dev Biol. 2013;380(1):12–24.
- Chen YC, et al. Single-locus chromatin memory enables flexible spatial fate specification in the Drosophila visual system. bioRxiv. Published online August 21, 2026:2026.08.09.743789.
- Erclik T, et al. Integration of temporal and spatial patterning generates neural diversity. Nature. 2017;541(7637):365–70.
- Simon F, et al. Spatial, temporal and Notch determination of terminal selector expression controls neuronal cell fate in the Drosophila optic lobe. Nat Neurosci. 2026;29(5):1068–78.
- Bhattacharya A, Rao H, Sen SQ. Chromatin priming and Hunchback recruitment integrate spatial and temporal cues in Drosophila neuroblasts. eLife15:RP110150.
- Bostock MP, Prasad AR, Donoghue A, Fernandes VM. Photoreceptors generate neuronal diversity in their target field through a Hedgehog morphogen gradient in Drosophila. Elife. 2022;11:e78093.
- El-Danaf RN, et al. Morphological and functional convergence of visual projection neurons from diverse neurogenic origins in Drosophila. Nat Commun. 2025;16(1):1–15.
- Pinto-Teixeira F, et al. Development of Concurrent Retinotopic Maps in the Fly Motion Detection Circuit. Cell. 2018;173(2):485–98.
- Xu C, Ramos TB, Rogers EM, Reiser MB, Doe CQ. Homeodomain proteins hierarchically specify neuronal diversity and synaptic connectivity. Elife. 2023;12:RP90133.
- Arain U, Valentino P, Islam IM, Erclik T. Dissection, Immunohistochemistry and Mounting of Larval and Adult Drosophila Brains for Optic Lobe Visualization. J Vis Exp. 2021;(170):e61273.
- Zhang Y, Li X. Immunostaining of Drosophila Brains to Study Optic Lobe Development. Cold Spring Harb Protoc. 2024;2024(3):108157.
- Daul AL, Komori H, Lee CY. Immunofluorescent staining of Drosophila larval brain tissue. Cold Spring Harb Protoc. 2010;2010(7):pdb.prot5460.
- Sweeney ST, Hidalgo A, de Belle JS, Keshishian H. Dissection of adult Drosophila brains. Cold Spring Harb Protoc. 2011;2011(12):1472–4.
- Tito AJ, Cheema S, Jiang M, Zhang S. A Simple One-step Dissection Protocol for Whole-mount Preparation of Adult Drosophila Brains. J Vis Exp. 2016;(118):55128.
- Wu JS, Luo L. A protocol for dissecting Drosophila melanogaster brains for live imaging or immunostaining. Nat Protoc. 2006;1(4):2110–5.
Ristampe e permessi
Questo articolo è stato pubblicato
Video in arrivo