L'elettroagopuntura attenua l'insufficienza cardiaca cronica e il rimodellamento cardiaco patologico ripristinando l'attività neuronale all'interno del nucleo del tratto solitario. Questa neuromodulazione terapeutica centrale è associata all'upregolazione del fattore trascrizionale YY1, un possibile bersaglio biologico.
Articolo di ricerca
Meccanismi centrali dell'elettroagopuntura nello scompenso cardiaco cronico: approfondimenti dalla proteomica quantitativa del nucleo del tratto solitario
* These authors contributed equally
In questo articolo
Sommario
Abstract
L'insufficienza cardiaca cronica (CHF) è una delle principali cause globali di mortalità cardiovascolare, determinata da una disregolazione autonoma e da un'iperattivazione del sistema simpatico. Sebbene l'elettroacupuntura (EA) eserciti effetti cardioprotettivi attraverso una neuromodulazione centrale, i suoi specifici bersagli molecolari all'interno del nucleo del tratto solitario (NTS), un centro chiave per l'integrazione autonoma, rimangono poco chiari. Per indagare questo aspetto, è stato sviluppato un modello di ratto con insufficienza cardiaca cronica mediante legatura dell'arteria coronaria discendente anteriore sinistra. I ratti sono stati sottoposti a elettroacupuntura nei punti di agopuntura HT7 bilaterali per sette giorni consecutivi. La funzione cardiaca e il danno miocardico sono stati valutati mediante ecocardiografia, saggi immunoenzimatici (ELISA) e colorazioni istologiche. L'attività neuronale del NTS è stata analizzata mediante immunofluorescenza per c-Fos ed elettrofisiologia in vivo. I meccanismi molecolari sono stati studiati utilizzando proteomica quantitativa e bioinformatica, con i bersagli principali verificati tramite PCR quantitativa e immunoblotting. L'elettroacupuntura ha migliorato la frazione di eiezione del ventricolo sinistro, ridotto la fibrosi miocardica e abbassato i marcatori sierici di scompenso cardiaco. Contestualmente, l'EA ha ripristinato le frequenze di scarica neuronale spontanea, l'energia del potenziale di campo locale e l'espressione di c-Fos nel NTS. L'analisi proteomica ha identificato 85 proteine differenzialmente espresse modulate dall'EA. La stratificazione funzionale delle 58 proteine downregolate e delle 27 upregolate ha rivelato il loro coinvolgimento rispettivamente nell'organizzazione della matrice extracellulare e nel rimodellamento della cromatina dipendente da ATP. L'approccio di screening graduale, che integra mappatura topologica delle reti, arricchimento di percorsi biologici e profilo di espressione tissutale, ha identificato il fattore di trascrizione YY1 come un probabile bersaglio altamente responsivo. La validazione in vivo ha confermato che l'EA aumenta l'espressione di YY1. Nel complesso, l'elettroacupuntura ha attenuato il rimodellamento cardiaco patologico e ripristinato l'attività neuronale del NTS. YY1 è stato identificato come un possibile bersaglio associato a questa neuromodulazione centrale, fornendo nuove informazioni molecolari sui meccanismi alla base degli effetti dell'EA nell'insufficienza cardiaca cronica.
Introduzione
L'insufficienza cardiaca cronica (CHF) è ampiamente riconosciuta come la fase terminale di diverse patologie cardiovascolari e continua a essere una delle principali cause di mortalità cardiovascolare a livello mondiale, imponendo un peso enorme sui sistemi sanitari globali1. Il decorso fisiopatologico della CHF è determinato principalmente da una disregolazione del sistema nervoso autonomo, caratterizzata da un'eccessiva attivazione simpatica sostenuta e da un ritiro parasimpatico2. Il ripristino dell'omeostasi autonomico è pertanto considerato una strategia terapeutica fondamentale per attenuare il rimodellamento cardiaco patologico e migliorare la funzione cardiaca globale3.
L'elettroagopuntura (EA) rappresenta un progresso moderno dell'agopuntura tradizionale e ha ottenuto un ampio riconoscimento per la sua efficacia clinica nella gestione delle patologie cardiovascolari4. Numerose ricerche, incluse i nostri studi precedenti, hanno evidenziato che questa terapia esercita effetti cardioprotettivi significativi principalmente modulando il sistema nervoso autonomo centrale. In particolare, abbiamo dimostrato che l'elettroagopuntura nel punto Shenmen (HT7) può efficacemente sopprimere l'eccessiva attività simpatica e ripristinare l'equilibrio simpato-vagale attraverso meccanismi neurali centrali mirati, attenuando così la progressione patologica della scompenso cardiaco cronico (CHF)5,6,7,8.
Il nucleo del tratto solitario (NTS), situato nel midollo allungato, è un centro di integrazione fondamentale per il mantenimento dell'equilibrio autonomico centrale. Funge da stazione di relè primaria per i riflessi cardiovascolari e per gli input sensoriali periferici, regolando l'equilibrio dinamico tra il tono simpatico e quello vagale9. Nonostante la sua importanza anatomica e funzionale, le specifiche alterazioni molecolari all'interno di questo centro critico del tronco encefalico durante il trattamento con elettroagopuntura (EA) per l'insufficienza cardiaca cronica (CHF) rimangono in gran parte sconosciute. La proteomica ad alto rendimento avanzata, combinata con l'analisi bioinformatica, offre uno strumento potente per mappare in modo imparziale le complesse reti proteiche e le cascate di segnalazione coinvolte in questo processo neurobiologico centrale10.
Pertanto, lo scopo di questo studio era indagare gli effetti dell'elettroacupuntura (EA) nel punto di agopuntura HT7 sulla funzione cardiaca e sull'attività neuronale del nucleo del tratto solitario (NTS) nell'insufficienza cardiaca cronica (CHF) e caratterizzare le alterazioni molecolari all'interno del NTS associate al trattamento con EA. Integrando elettrofisiologia in vivo con proteomica quantitativa, analisi bioinformatiche e validazione molecolare, questo studio ha cercato di identificare potenziali bersagli molecolari associati alla neuromodulazione centrale mediata dall'EA nell'insufficienza cardiaca cronica.
Protocollo
Tutti i metodi che coinvolgono animali vertebrati sono stati eseguiti in conformità con il Comitato per la Cura e l'Uso degli Animali dell'Università di Medicina Cinese di Anhui, con numero di approvazione AHUCM-rats-2024145. I reagenti e l'attrezzatura utilizzati sono elencati nella Tabella dei Materiali.
Preparazione e raggruppamento degli animali
Per tutti gli esperimenti sono stati utilizzati ratti maschi Sprague-Dawley di grado pulito, di 8 settimane di età e del peso compreso tra 200 e 250 g. Gli animali sono stati allevati in un ambiente controllato mantenuto a 24 ± 2 °C e con umidità relativa del 50%–60%, sotto un ciclo luce-buio standard di 12 ore. A tutti i ratti è stato concesso libero accesso a cibo e acqua ed è stato effettuato un periodo di ambientamento della durata di 1 settimana prima di qualsiasi procedura sperimentale.
Per l'Esperimento I, che ha valutato l'attività funzionale e neurale centrale, 24 ratti sono stati suddivisi casualmente in quattro gruppi di sei animali ciascuno: gruppi Sham, CHF, EA e Sham EA (Figura 1A). Per l'Esperimento II, che ha valutato i bersagli molecolari e la proteomica ad alto rendimento, 36 ratti sono stati assegnati casualmente a tre gruppi di 12 ciascuno: Sham, CHF ed EA. Le dimensioni dei campioni sono state determinate in base al Metodo dell'Equazione delle Risorse per rispettare l'etica del benessere animale e il principio di riduzione, garantendo al contempo validità statistica (E = 20 per l'Esperimento I; E = 33 per l'Esperimento II)11. Questa strategia relativa alle dimensioni del campione era coerente con i protocolli utilizzati in studi precedenti sull'EA per le malattie cardiovascolari8,12. Analisi post hoc della potenza statistica hanno indicato che una potenza superiore a 0,90 sosteneva l'adeguatezza di questa ripartizione. Il gruppo Sham EA è stato escluso dall'Esperimento II poiché valutazioni funzionali preliminari avevano indicato un'assenza di efficacia terapeutica.
Creazione del modello di scompenso cardiaco cronico
I ratti sono stati sottoposti a digiuno per 12 h prima dell'intervento chirurgico e hanno avuto libero accesso all'acqua. L'anestesia è stata indotta con isoflurano al 3% e mantenuta con isoflurano all'1,5%–2% durante l'intervento. Poiché l'isoflurano è un anestetico volatile, è stato utilizzato un adeguato sistema di aspirazione e l'intervento è stato eseguito in un'area ben ventilata per prevenire l'esposizione professionale.
Sono stati registrati continuamente elettrocardiogrammi (ECG) degli arti. È stata eseguita una toracotomia sinistra per esporre il cuore e l'arteria coronaria discendente anteriore sinistra (LAD) è stata legata in modo permanente a 2-3 mm sotto l'appendice atriale sinistro utilizzando un punto di sutura non riassorbibile 7-013. L'ischemia riuscita è stata confermata identificando un rialzo del tratto ST di almeno 0,2 mV sull'ECG (Figura 1B). Sono state somministrate iniezioni intraperitoneali di penicillina (200.000 U/mL) e iniezioni sottocutanee di carprofene (5 mg/kg) ogni giorno per tre giorni consecutivi dopo l'intervento per prevenire infezioni e alleviare il dolore.
Per il gruppo di controllo sham, è stata eseguita una procedura di toracotomia identica, seguita da un'inserzione superficiale dell'ago nella corrispondente sede anatomica senza legatura dell'arteria coronaria discendente anteriore (LAD). È stata fornita una cura e un monitoraggio postoperatori identici. La valutazione ecocardiografica è stata effettuata a 4 settimane dall'intervento chirurgico. Il modello è stato considerato correttamente stabilito quando la frazione di eiezione del ventricolo sinistro (LVEF) era ≤45%8 (Figura 1C). Gli animali che non hanno soddisfatto questi criteri, che presentavano anomalie baseline dell'ECG preoperatorie o che hanno subìto una mortalità prematura sono stati esclusi sistematicamente. Ratti supplementari sono stati sottoposti a protocolli chirurgici identici per sostituire immediatamente gli animali esclusi e mantenere una dimensione campionaria uniforme.
Intervento di elettroagopuntura
In conformità con i protocolli anatomici comparativi stabiliti14, i punti auricolari bilaterali HT7 del meridiano del Cuore del Fuoco-Shaoyin della mano sono stati individuati sulla superficie palmare della piega trasversale del polso, in prossimità del margine ulnare, esattamente nella depressione radiale del tendine del muscolo flessore ulnare del carpo. La zona locale è stata disinfettata secondo le procedure standard. Due aghi sterili monouso (0.25 x 25 mm) sono stati inseriti perpendicolarmente in ciascuna area del punto HT7 fino a una profondità target di 2-3 mm e posizionati a circa 1 mm di distanza l'uno dall'altro, in modo da rimanere rigorosamente all'interno della medesima regione del punto. Per la documentazione video, la profondità di inserzione è stata verificata visivamente pre-marcando lo stelo dell'ago alla posizione di 3 mm prima dell'inserimento.
Un ago è stato collegato al terminale catodico dell'apparecchio di EA e l'ago adiacente è stato collegato al terminale anodico per stabilire un circuito elettrico localizzato (Figura 1D). È stata erogata una forma d'onda elettrica continua a una frequenza costante di 2 Hz e a un'intensità di 1 mA, calibrata per produrre contrazioni muscolari visibili ma lievi negli arti corrispondenti, per 30 minuti al giorno per sette giorni consecutivi sotto anestesia da isoflurano.
È stato applicato un protocollo minimo di agopuntura al gruppo di intervento fittizio per tenere conto delle risposte somatosensoriali non specifiche15,16. Aghi sterili sono stati inseriti in modo superficiale fino a una profondità di 0,5–1 mm in corrispondenza delle stesse sedi HT7, senza collegare elettrodi né somministrare corrente, mantenendo una durata di 30 minuti analoga a quella dell’anestesia. I gruppi di controllo Sham e CHF sono stati sottoposti a un’identica esposizione giornaliera a isoflurano (1,5%–2% di isoflurano per 30 minuti al giorno per sette giorni consecutivi), senza inserimento di aghi né stimolazione elettrica. Questa procedura ha standardizzato la condizione basale sotto anestesia in tutti i gruppi sperimentali e ha permesso di controllare eventuali artefatti neurosoppressivi o cardioprotettivi indotti da ripetute esposizioni ad anestetici volatili.
Valutazione ecocardiografica ed eutanasia dell'animale
Dopo l'intervento, i ratti sono stati anestetizzati con isoflurano al 3% per l'induzione e all'1% per il mantenimento, quindi fissati in posizione supina sulla piattaforma per animali. I peli del torace sono stati rimossi con cura utilizzando un agente depilatorio e un mezzo di accoppiamento acustico è stato applicato uniformemente sulla cute esposta. La funzione cardiaca è stata valutata mediante un sistema ecografico digitale dotato di un trasduttore eco da 18 MHz. È stata registrata l'ecocardiografia in modo M per misurare la frazione di eiezione del ventricolo sinistro (LVEF) e l'accorciamento frazionario del ventricolo sinistro (LVFS), e il valore medio ottenuto da 3 replicati tecnici è stato calcolato per l'analisi finale.
Il sangue è stato prelevato dall'aorta addominale mentre gli animali erano ancora sotto anestesia, per prevenire successive perdite ematiche e coagulazione e per garantire la qualità del campione per il saggio immunoenzimatico (ELISA). I ratti sono stati soppressi immediatamente mediante induzione continua con isoflurano al 5% fino alla cessazione del battito cardiaco e della respirazione.
I campioni di tessuto sono stati successivamente assegnati in base al disegno sperimentale. Per l'Esperimento I, 3 ratti per gruppo sono stati utilizzati per prelevare il cuore per la colorazione con ematossilina ed eosina (HE)/Masson e il cervello per l'immunofluorescenza di c-Fos. I tre ratti rimanenti sono stati destinati all'elettrofisiologia in vivo. Per l'Esperimento II, i tessuti del NTS bilaterali sono stati estratti da sei ratti per gruppo per la proteomica. I tessuti dei sei ratti rimanenti sono stati raccolti per la verifica molecolare: tre sono stati utilizzati per il Western blotting e la qPCR, e tre sono stati utilizzati esclusivamente per la qPCR.
Saggio immunoenzimatico
Ai campioni di sangue raccolti è stato permesso di coagulare naturalmente a 4 °C per 10–20 min. I campioni sono stati centrifugati a 1.000 x g per 15 min a 4 °C per separare il siero, e i soprannatanti sono stati raccolti. Quando l'analisi non è stata eseguita immediatamente, i campioni di siero sono stati conservati a −80 °C fino al momento dell'uso. Le concentrazioni sieriche di peptide natriuretico cerebrale N-terminale (NT-proBNP) e troponina T cardiaca (cTnT) sono state quantificate utilizzando kit ELISA specifici secondo le istruzioni standard. Sono stati misurati i valori di assorbanza e i livelli dei biomarcatori sono stati calcolati in base alle curve standard.
Colorazione istologica e immunofluorescenza
I tessuti cardiaci raccolti sono stati sciacquati in soluzione pre-raffreddata di cloruro di sodio allo 0,9%, sezionati a 5 mm sopra l'apice e inclusi in paraffina. Le sezioni di tessuto sono state deparaffinate e reidratate. La colorazione con ematossilina-eosina è stata eseguita applicando ematossilina per 10 min, seguita da una controcolorazione con eosina per 2,5 min. La colorazione di Masson è stata effettuata applicando ematossilina per 60 s e la tricromia di Masson per 30–60 s. Le sezioni sono state differenziate in acido fosforico al 6%–8% e controcolorate con verde leggero per 5 min. La frazione volumetrica del collagene (CVF) è stata quantificata per valutare la fibrosi miocardica.
I tessuti cerebrali raccolti sono stati fissati in paraformaldeide al 4%, disidratati in soluzioni di saccarosio a concentrazione crescente e sezionati con uno spessore di 30 µm. Poiché la paraformaldeide è tossica e sospettata di essere cancerogena, è stata manipolata all'interno di una cappa chimica indossando idonei dispositivi di protezione individuale. Le sezioni sono state bloccate con un buffer contenente Triton X-100 allo 0,5% e albumina sierica bovina al 3%, quindi incubate tutta la notte a 4 °C con un anticorpo primario contro c-Fos. Successivamente, le sezioni sono state lavate con soluzione salina tamponata al fosfato e incubate con gli anticorpi secondari corrispondenti per 2 h a temperatura ambiente al buio. Le sezioni sono state montate con una soluzione antiossidante per la fluorescenza contenente 4',6-diamidino-2-fenilindolo (DAPI) e i neuroni positivi per c-Fos sono stati analizzati mediante imaging.
Elettrofisiologia in vivo
I ratti sono stati anestetizzati con isoflurano al 3% per l'induzione e all'1% per il mantenimento, quindi fissati su un apparato stereotassico per il cervello. Il cuoio capelluto è stato rasato e disinfettato. È stata eseguita un'incisione mediana per esporre il bregma e la dura madre è stata rimossa. Un foro cranico è stato praticato con precisione sopra la regione del NTS in base alle seguenti coordinate stereotassiche relative al bregma: anteroposteriore (AP) ±12,6 mm, mediolaterale (ML) ±0,9–2,1 mm e dorsoventrale (DV) ±7,6–8,1 mm.
Al termine delle registrazioni elettrofisiologiche, è stata verificata la localizzazione stereotassica esatta della punta dell'elettrodo. È stata applicata brevemente una corrente continua di 1 mA all'elettrodo di registrazione per 10 s al fine di creare una piccola lesione elettrolitica. Al termine dell'esperimento, il bulbo è stato sezionato e il tratto della lesione è stato confermato istologicamente essere localizzato anatomicamente all'interno del NTS.
Un array microelettrodico a otto canali (2 x 4) è stato impiantato e avanzato lentamente fino alla regione cerebrale bersaglio a una velocità di 5 µm/s utilizzando un micromanipolatore motorizzato. Una volta stabilita un'attività neurale stabile, le registrazioni sono state acquisite continuamente per 400 s. Un sistema di acquisizione multicanale è stato utilizzato per registrare i potenziali d'azione neuronali (filtrati a 150–8.000 Hz, frequenza di campionamento 40 kHz) e i potenziali di campo locali (LFP; filtrati a 0,7–400 Hz, frequenza di campionamento 1 kHz).
Un software di spike-sorting è stato utilizzato per eliminare i segnali di interferenza e gli artefatti tipici ad alta ampiezza mediante cross-correlazione delle forme d'onda. L'analisi successiva del segnale neuronale è stata eseguita utilizzando un software di analisi neurale. I neuroni sono stati classificati come attivi solo quando presentavano una frequenza media di scarica spontanea >2 Hz e mantenevano un rapporto segnale-rumore stabile >3:1. La soglia di 2 Hz è stata scelta in base alle caratteristiche fisiologiche consolidate dei neuroni del NTS correlati all'autonomia; tale soglia ha efficacemente escluso le cellule prevalentemente silenti e le scariche ritmiche respiratorie a bassa frequenza, assicurando così che l'analisi fosse focalizzata sui neuroni attivi in modo tonico e coinvolti nella regolazione cardiovascolare basale17,18,19,20. Sono state generate la frequenza media di scarica neuronale e le rappresentazioni grafiche raster delle scariche degli impulsi in base a questi criteri. Sono stati costruiti spettrogrammi energetici del LFP 2D e topografie tridimensionali della densità spettrale di potenza (PSD) per valutare le caratteristiche energetiche delle oscillazioni neurali.
Dopo la registrazione, l'incisione è stata suturata e i ratti sono stati monitorati fino al completo recupero dall'anestesia. La penicillina è stata somministrata mediante iniezione intraperitoneale e il carprofene (5 mg/kg, s.c.) è stato somministrato quotidianamente per tre giorni consecutivi.
Analisi proteomica quantitativa mediante acquisizione indipendente dai dati
Le proteine totali sono state estratte con un buffer di lisi e quantificate mediante il metodo dell'acido bicinconico. Le proteine sono state denaturate, sottoposte ad alchilazione riduttiva e digerite con tripsina a 37 °C per 2 h. I peptidi risultanti sono stati desalati utilizzando una colonna C18, concentrati a 45 °C e risospesi per l'analisi successiva mediante spettrometria di massa.
I peptidi sono stati caricati su una colonna di trappia (C18 da 5 µm, 300 µm x 5 mm) equilibrata con il 96% di tampone A (acido formico 0,1% in acqua). I peptidi sono stati separati lungo una colonna analitica ad alte prestazioni ad alta capacità utilizzando un gradiente rigorosamente ottimizzato di tampone A e tampone B (acido formico 0,1% in acetonitrile al 80%).
La spettrometria di massa è stata eseguita in modalità di acquisizione indipendente dai dati (DIA) in ioni positivi con una tensione a spruzzo elettrostatico di 1,9 kV. Scansioni complete del spettrometro di massa sono state acquisite in un intervallo di massa da 380 a 980 m/z con una risoluzione di 240.000, un obiettivo di controllo automatico del guadagno (AGC) del 500% e un tempo massimo di iniezione di 3 ms. Gli spettri MS/MS sono stati acquisiti con una risoluzione di 80.000 (obiettivo AGC: 500%; tempo massimo di iniezione: 3 ms; ampiezza della lente RF: 40%). Gli ioni precursori sono stati frammentati mediante dissociazione collisionale ad alta energia, utilizzando una finestra di isolamento di 2 Th e un'energia di collisione normalizzata del 25% in un tempo di ciclo definito di 0,6 s.
I dati grezzi di spettrometria di massa sono stati elaborati utilizzando il software DIA-NN. È stata generata una libreria spettrale mediante l'algoritmo interno di apprendimento profondo e la funzione di corrispondenza tra analisi è stata applicata per la quantificazione rispetto al database del proteoma di riferimento di Rattus norvegicus, con digestione tripsinica e fino a 2 scissioni mancate. La matrice proteica quantitativa finale è stata filtrata utilizzando una soglia rigorosa del 1% di tasso di falsa scoperta a livello di ione precursore e a livello proteico.
Analisi bioinformatica ed identificazione dei geni hub
Le analisi di bioinformatica e le visualizzazioni dei dati sono state eseguite principalmente utilizzando l'ambiente di programmazione R insieme a software specializzati per la visualizzazione di reti. Per garantire trasparenza metodologica e riproducibilità, tutti gli script R personalizzati utilizzati durante questi processi analitici sono stati forniti nel File Supplementare 1. Sono state effettuate valutazioni iniziali del controllo di qualità dei dati e della distribuzione complessiva utilizzando il pacchetto ropls. Sono state compilate statistiche riassuntive relative all'identificazione/quantificazione delle proteine; è stata eseguita un'analisi discriminante basata sui minimi quadrati parziali (PLS-DA) tra i tre gruppi; è stata effettuata un'analisi discriminante ortogonale basata sui minimi quadrati parziali (OPLS-DA) per i confronti a coppie; e sono state generate mappe termiche di correlazione tra i campioni utilizzando il pacchetto pheatmap.
Le proteine differenzialmente espresse nel nucleo sono state selezionate utilizzando soglie che comprendevano un valore di p <0,05, un fold change >1,2 e un punteggio di importanza variabile nella proiezione >1,0. I grafici a doppio vulcano sono stati generati utilizzando il pacchetto ggplot2, le intersezioni sono state identificate mediante il pacchetto ggVennDiagram e le mappe termiche di clustering gerarchico sono state tracciate utilizzando il pacchetto pheatmap per visualizzare le proteine intersecanti. Analisi di arricchimento di Gene Ontology (GO) e della Kyoto Encyclopedia of Genes and Genomes (KEGG) sono state eseguite separatamente per le proteine upregolate e downregolate utilizzando il pacchetto enrichR basato sul database Enrichr.
Tutte le proteine differenzialmente espresse sono state mappate sul database STRING con una soglia di confidenza pari a 0,4 per costruire la rete di interazione proteina-proteina. I dati sulle interazioni sono stati importati in un software di visualizzazione delle reti. Il plugin cytoHubba è stato utilizzato per calcolare i punteggi topologici, e i primi 18 geni con punteggio più alto sono stati estratti in base all'intensità del colore del nodo. I 18 candidati hub sono stati sottoposti ad analisi di arricchimento del percorso metabolico, e le 10 proteine più prominenti sono state selezionate per valutarne i livelli di espressione nei tessuti umani mediante il database Genotype-Tissue Expression (GTEx). Il gene hub più critico è stato identificato in base ai livelli di espressione nel cervello umano e ai punteggi topologici della rete. Il Cistrome Data Browser è stato utilizzato per prevedere i fattori di trascrizione a valle e le modifiche istoniche associate al gene hub specifico.
Immunoblotting e reazione a catena della polimerasi quantitativa
Le proteine totali sono state estratte da tessuti NTS utilizzando una miscela di lisi contenente tampone di lisi con fluoruro di fenilmetilsulfonile, PMSF e inibitori della fosfatasi. I campioni sono stati omogeneizzati mediante un disgregatore cellulare ad ultrasuoni e centrifugati a 13.800 x g per 20 min a 4 °C per raccogliere i soprannatanti. Le concentrazioni proteiche sono state determinate utilizzando un kit per saggio proteico con acido bicinconinico. Un totale di 20 µg di proteina da ciascun campione è stato separato mediante elettroforesi su gel di poliacrilamide in presenza di dodecilsolfato di sodio al 10% e successivamente trasferito su membrane di fluoruro di polivinilidene.
Le membrane sono state bloccate con latte scremato al 5% in soluzione salina tamponata al Tris con Tween (TBST) per 1 h a temperatura ambiente e incubate tutta la notte a 4 °C con specifici anticorpi primari diretti contro Yin Yang 1 (YY1) e β-actina, utilizzata come proteina di controllo. Le membrane sono state lavate con TBST per 5 minuti per tre volte e incubate con un anticorpo secondario coniugato con perossidasi di rafano per 1,5 h a temperatura ambiente. Le bande bersaglio sono state visualizzate mediante un kit di chemiluminescenza migliorata, acquisite utilizzando un sistema di imaging e quantificate in rapporto alla β-actina.
L'RNA totale è stato estratto da tessuti NTS utilizzando un reagente per l'estrazione dell'RNA. La concentrazione e la purezza dell'RNA sono state misurate mediante spettrofotometro e il cDNA del primo filamento è stato sintetizzato utilizzando un kit di trascrizione inversa. È stata eseguita una reazione a catena della polimerasi quantitativa in tempo reale (PCR) utilizzando un kit PCR SYBR Green su un sistema PCR in tempo reale. Le sequenze specifiche dei primer utilizzate per l'amplificazione, insieme ai rispettivi numeri di accesso delle Sequenze di Riferimento NCBI, erano le seguenti: YY1 (NM_001002271.1), senso 5'-AGCGTTCGTTGAGAGCTCAA-3' e antisenso 5'-AGCCTTCGAATGTGCACTGA-3'; DPF2 (NM_001014264.1), senso 5'-TGTGATGACTGTGACCGTGG-3' e antisenso 5'-TCCAAACACAGGTGGCAACT-3'; DMAP1 (NM_001007705.1), senso 5'-GGTGTGACATTACGGAGCCA-3' e antisenso 5'-TCCAGCAGCATCTGTTCCAG-3'; e gliceraldeide-3-fosfato deidrogenasi (GAPDH) (NM_017008.4), senso 5'-GGCACAGTCAAGGCTGAGAATG-3' e antisenso 5'-ATGGTGGTGAAGACGCCAGTA-3'. I livelli relativi di espressione dell'mRNA sono stati calcolati utilizzando il metodo 2-ΔΔCt e normalizzati rispetto al gene di riferimento interno GAPDH.
Analisi statistica
Tutti i dati sperimentali sono stati analizzati utilizzando un software statistico e sono riportati come media ± deviazione standard (SD). La normalità è stata valutata mediante il test di Shapiro-Wilk, e l'omogeneità della varianza è stata verificata con il test di Brown-Forsythe.
Per i confronti tra due gruppi indipendenti, è stato utilizzato il test t di Student o il test t per campioni appaiati per i dati che soddisfacevano i criteri di normalità. I dati che non soddisfacevano le assunzioni di normalità sono stati analizzati mediante il test U di Mann-Whitney o il test dei ranghi con segno di Wilcoxon. Per i confronti tra più gruppi, è stata utilizzata l'analisi della varianza ad un fattore, seguita dal test post hoc di Holm-Sidak, quando erano soddisfatte le assunzioni di normalità e di omogeneità. Il test H di Kruskal-Wallis, seguito dal test post hoc di Dunn, è stato utilizzato quando tali assunzioni non erano soddisfatte.
Le correlazioni sono state valutate utilizzando il coefficiente di correlazione di Pearson calcolato con il pacchetto Hmisc in R. I corrispondenti valori p sono stati aggiustati mediante il metodo di Benjamini-Hochberg per il tasso di falsa scoperta, disponibile nel pacchetto stats, al fine di controllare l'incremento dell'errore di tipo I dovuto ai test multipli. La significatività statistica generale è stata fissata a p <0,05.
Risultati
L'elettroagopuntura migliora la funzione cardiaca e attenua il danno miocardico nei ratti con insufficienza cardiaca cronica
Per valutare gli effetti dell'EA sull'insufficienza cardiaca congestizia (CHF), è stato utilizzato un modello ratto mediante legatura dell'arteria coronaria discendente anteriore (LAD), seguita da specifici interventi di EA o di EA Sham. Sono state effettuate valutazioni sistematiche, inclusi esami ecocardiografici, saggi biochimici e colorazioni istologiche (Figura 2A). Dal punto di vista funzionale, il gruppo CHF ha mostrato dilatazione ventricolare e compromissione della contrattilità. Il trattamento con EA ha migliorato le riduzioni di FEVS e di FSVS osservate nei ratti con CHF, mentre il gruppo EA Sham ha presentato livelli di funzione cardiaca paragonabili a quelli del gruppo CHF (Figura 2B e Figura 2C).
Inoltre, l'EA ha ridotto i livelli sierici di NT-proBNP e cTnT, indicando una riduzione del carico cardiaco e un'attenuazione del danno miocardico. Al contrario, il gruppo Sham EA ha mostrato parametri biochimici simili a quelli del gruppo CHF (Figura 2E,F). L'analisi istologica ha mostrato che il gruppo CHF presentava danni strutturali miocardici e fibrosi. Il trattamento con EA ha migliorato l'architettura miocardica e ridotto la CVF, mentre il gruppo Sham EA ha mantenuto alterazioni patologiche e livelli di CVF simili a quelli del gruppo CHF (Figura 2D). Nel complesso, l'EA ha esercitato effetti cardioprotettivi contro la CHF, mentre l'intervento Sham EA non ha prodotto risultati terapeutici simili.
L'elettroagopuntura attiva i neuroni nel nucleo del tratto solitario di ratti con insufficienza cardiaca cronica
Per determinare se il NST media la risposta centrale al trattamento con EA, l'attivazione neuronale è stata valutata mediante colorazione per c-Fos, un marcatore dell'eccitazione neuronale. L'analisi mediante immunofluorescenza (Figura 3A) e il conteggio quantitativo delle cellule (Figura 3B) hanno rivelato che il numero di neuroni positivi per c-Fos nel NST era inferiore nel gruppo CHF rispetto al gruppo Sham. Tuttavia, il trattamento con EA ha aumentato l'espressione di c-Fos fino a livelli paragonabili alla condizione basale del gruppo Sham. Parallelamente ai risultati funzionali periferici, il gruppo Sham EA ha mostrato livelli di espressione di c-Fos simili a quelli del gruppo CHF.
Per valutare lo stato funzionale di questi neuroni del NST, sono stati registrati segnali elettrofisiologici in vivo. I tracciati del potenziale d'azione (Figura 3C) e la frequenza media quantitativa di scarica (Figura 3D) erano in accordo con i risultati istologici. La frequenza di scarica spontanea dei neuroni del NST risultava ridotta in condizioni di scompenso cardiaco congestizio (CHF). Al contrario, l'intervento con EA aumentava la frequenza di scarica neuronale, mentre la procedura Sham EA non induceva tali modifiche elettrofisiologiche.
Questo schema di attivazione neuronale è stato confermato dall'analisi del potenziale di campo locale. Come mostrato nei spettrogrammi a colori 2D del LFP e nelle mappe tridimensionali della densità spettrale di potenza (Figura 3E), l'energia oscillatoria neuronale all'interno del NTS è risultata attenuata durante lo stato di scompenso cardiaco congestizio (CHF). Dopo il trattamento con EA, si è osservato un aumento dell'intensità di potenza lungo lo spettro di frequenza neuronale, indicativo di un'attivazione della rete, assente invece nel gruppo Sham EA.
Per esaminare la rilevanza fisiologica di questa attivazione centrale, è stata effettuata un'analisi della correlazione di Pearson, integrando parametri cardiaci periferici con l'attività neuronale centrale del NTS (Figura 3F). L'analisi ha dimostrato che la frequenza media di scarica e l'espressione di c-Fos all'interno del NTS erano positivamente correlate con la frazione di eiezione del ventricolo sinistro (LVEF). Al contrario, questi indicatori di attività neurale centrale mostravano una correlazione negativa con il marcatore sierico di scompenso cardiaco NT-proBNP. Queste correlazioni indicano che l'attivazione neurale del NTS modulata dall'EA è associata alla sua efficacia cardioprotettiva periferica.
L'elettroagopuntura modifica il profilo proteomico globale nel nucleo del tratto solitario
A causa della mancanza di efficacia terapeutica osservata nel gruppo Sham EA durante le precedenti valutazioni funzionali, la fase di proteomica ha incluso solo i gruppi Sham, CHF ed EA. Prima del prelievo dei tessuti, 12 ratti per gruppo hanno subito una valutazione ecocardiografica per valutare gli effetti terapeutici dell'EA, i cui risultati sono presentati nella Figura supplementare 1A. A seguito di questa valutazione, 6 repliche biologiche per ciascun gruppo sono state sottoposte ad analisi proteomica quantitativa basata sulla spettrometria di massa.
Sono stati eseguiti controlli di qualità e analisi multivariate per valutare l'affidabilità e la distribuzione complessiva dei dati proteomici. Il numero totale di proteine identificate è stato di 5.914 nel gruppo Sham, 5.980 nel gruppo CHF e 5.836 nel gruppo EA, indicando un rilevamento proteico comparabile tra i tre gruppi sperimentali (Figura 4A e Tabella Supplementare 1). L'analisi discriminante parziale dei minimi quadrati ha mostrato una chiara separazione tra i gruppi Sham, CHF e EA, indicando profili proteomici globali distinti associati allo stato patologico e all'intervento con EA (Figura 4B).
L'analisi discriminante basata su minimi quadrati parziali a coppie ortogonali ha ulteriormente dimostrato una separazione tra i gruppi Sham e CHF (Figura 4C) e tra i gruppi CHF ed EA (Figura 4D). I corrispondenti test di permutazione hanno confermato l'affidabilità dei rispettivi modelli. Inoltre, la mappa termica delle correlazioni di Pearson ha mostrato elevate correlazioni all'interno dei gruppi e distinti schemi tra i gruppi nei campioni proteomici, sostenendo la riproducibilità dei replicati biologici (Figura 4E). Nel complesso, questi controlli di qualità e analisi multivariate hanno indicato che il set di dati proteomico era sufficientemente robusto per l'identificazione successiva e l'analisi bioinformatica delle proteine differenzialmente espresse.
L'elettroagopuntura modula le proteine differenzialmente espresse e le vie di segnalazione nel nucleo del tratto solitario
Per esplorare i bersagli molecolari dell'EA, sono state analizzate le alterazioni proteiche. I grafici a vulcano mostravano la distribuzione delle proteine upregolate e downregolate nei confronti Sham versus CHF e CHF versus EA (Figura 5A, Tabella Supplementare 2 e Tabella Supplementare 3). Per identificare i bersagli terapeutici, è stata effettuata un'analisi dell'intersezione. Come illustrato nei diagrammi di Venn, sono state identificate 58 proteine upregolate nel gruppo CHF ma downregolate dopo il trattamento con EA, insieme a 27 proteine downregolate nel gruppo CHF e upregolate a seguito dell'intervento con EA (Figura 5B e Tabella Supplementare 4). Questo screening ha prodotto un totale di 85 proteine differenzialmente espresse chiave. La mappa termica con clustering gerarchico ha dimostrato che l'intervento con EA modulava i profili di espressione anomala di queste 85 proteine, riportandoli verso il livello di base del gruppo Sham (Figura 5C).
Per determinare le funzioni biologiche di questi bersagli principali, sono state condotte analisi di arricchimento GO e KEGG separatamente per i due sottoinsiemi proteici distinti. Per il sottoinsieme di 58 proteine downregolate da EA, il grafico a bolle GO ha mostrato un arricchimento significativo in processi biologici, tra cui l'organizzazione della matrice extracellulare e l'organizzazione della struttura extracellulare, insieme a componenti cellulari come la struttura incapsulante esterna e il trimero di collagene, e funzioni molecolari, tra cui il legame con il collagene e il legame con il recettore del glutammato (Figura 5D e Tabella Supplementare 5). L'analisi successiva dei percorsi KEGG, visualizzata mediante diagrammi a corde e diagrammi di Sankey, ha rivelato che queste 58 proteine partecipano a cascami quali la digestione e l'assorbimento delle proteine, il citoscheletro nelle cellule muscolari e il percorso di segnalazione TGF-β (Figura 5E e Tabella Supplementare 6). Queste visualizzazioni topologiche hanno evidenziato proteine specifiche, tra cui COL3A1, COL14A1, MYH11, DCN e DPF2, come nodi prominenti che collegano diversi percorsi patologici.
Al contrario, è stata eseguita un'annotazione funzionale per il sottoinsieme di 27 proteine upregolate dall'intervento EA. L'analisi di arricchimento GO ha indicato il coinvolgimento in processi biologici come la regolazione della crescita cellulare e la regolazione positiva dell'allungamento della trascrizione templata sul DNA, nonché in funzioni molecolari quali il legame proteico dipendente dal calcio e il legame della tetrapirrolo (Figura 5F e Tabella Supplementare 7). I corrispondenti diagrammi a corde KEGG e diagrammi di Sankey hanno associato queste proteine a vie fondamentali, tra cui il rimodellamento della cromatina dipendente dall'ATP e il complesso repressivo polycomb (Figura 5G e Tabella Supplementare 8). In particolare, il mappaggio della rete ha identificato proteine chiave come YY1, E2F2 ed ENTPD5, collegando queste reti di segnalazione centrali. Questa stratificazione funzionale completa ha fornito la base strutturale per la successiva validazione dei target principali.
La topologia della rete e il profilo di espressione identificano YY1 come un bersaglio candidato associato agli effetti dell'intervento di elettroacupuntura
Per determinare il gene centrale tra le 85 proteine differenzialmente espresse, è stata costruita una rete di interazione proteina-proteina. L'analisi topologica ha identificato 18 nodi con elevati punteggi di connettività (Figura 6A e Tabella Supplementare 9). Successivamente, è stata effettuata un'analisi del percorso KEGG specificamente per queste 18 proteine centrali. I corrispondenti diagrammi a corde e diagrammi di Sankey hanno rappresentato le relazioni complesse tra questi hub e le cascate di segnalazione arricchite, inclusi il rimodellamento della cromatina dipendente dall'ATP, il complesso repressivo polycomb e il percorso di segnalazione del TGF-β (Figura 6A e Tabella Supplementare 10). Sulla base di questo profilo funzionale, le 10 proteine maggiormente arricchite sono state selezionate per un ulteriore screening. Poiché il bersaglio terapeutico dell'EA si trova nel sistema nervoso centrale, questi 10 candidati sono stati valutati utilizzando il database GTEx di espressione tessutale umana (Figura 6B e Figura Supplementare 1B–J). I risultati hanno indicato che solo YY1 (Figura 6B), DMAP1 (Figura Supplementare 1C) e DPF2 (Figura Supplementare 1D) erano espressi nei tessuti cerebrali.
Per isolare il candidato bersaglio altamente responsivo dell'EA, sono stati eseguiti esperimenti molecolari in vivo utilizzando tessuti del NST. La PCR quantitativa in tempo reale è stata impiegata per valutare la risposta trascrizionale dei 3 candidati prevalentemente espressi nel cervello. L'espressione dell'mRNA di YY1 risultò ridotta in condizioni di ICC e aumentata dopo il trattamento con EA, mentre i livelli di espressione dell'mRNA di DPF2 e DMAP1 non mostrarono variazioni statisticamente significative tra i gruppi sperimentali (Figura 6C). Questo screening trascrizionale escluse DPF2 e DMAP1 da ulteriori validazioni e indicò YY1 come il principale candidato responsivo. Un'analisi successiva mediante Western blot indicò che i livelli proteici di YY1 erano ridotti nel gruppo con ICC rispetto al valore basale del gruppo Sham, mentre l'intervento con EA contrastò questa tendenza, aumentando l'espressione proteica di YY1 (Figura 6D e Figura 6E). Questi risultati sperimentali indicano che l'EA regola positivamente l'espressione di YY1 all'interno del NST.
Per studiare i meccanismi regolatori a monte che controllano l'espressione di YY1, sono state analizzate le relative modifiche istoniche e i fattori di trascrizione associati. È importante sottolineare che questi risultati si basano esclusivamente su previsioni bioinformatiche computazionali derivate dal Cistrome Data Browser e non rappresentano una validazione sperimentale diretta mediante ChIP-seq. La previsione epigenetica ha evidenziato modifiche istoniche, tra cui H3K27ac, H3K27me3 e H3K4me3, con elevati punteggi di potenziale regolatorio per il locus YY1 (Figura 6F). Contestualmente, il punteggio di potenziale regolatorio ha identificato fattori di trascrizione come CDK9, PRDM1 ed ELL2 come regolatori a monte di YY1 (Figura 6G). Queste previsioni bioinformatiche delineano le potenziali reti epigenetiche e trascrizionali che controllano l'espressione di YY1 nel NTS.
In sintesi, i dati presentati dimostrano che l'intervento di EA migliora efficacemente la funzione cardiaca sistemica e attenua il danno miocardico nei ratti con scompenso cardiaco congestizio (CHF). Questi effetti cardioprotettivi periferici sono accompagnati a livello centrale dal ripristino dell'attività di scarica neuronale e dell'energia oscillatoria neurale all'interno del nucleo del tratto solitario (NTS). Inoltre, un'analisi proteomica quantitativa ha identificato 85 proteine differenzialmente espresse chiave, evidenziando il fattore di trascrizione YY1 come un probabile bersaglio altamente responsivo. Nel complesso, questi risultati suggeriscono che l'efficacia terapeutica dell'EA contro lo scompenso cardiaco congestizio è strettamente associata al ripristino della funzione neurale del NTS e che l'upregolazione di YY1 potrebbe essere coinvolta in questo processo neurobiologico centrale.
Disponibilità dei dati
Tutti i dati generati e analizzati per supportare i risultati di questo studio sono inclusi nel manoscritto e nel suo File Supplementare 1. Per rispettare il requisito di accessibilità pubblica dei dati, tutti i dati grezzi disponibili alla base di questa ricerca sono stati depositati nel repository pubblico Zenodo e sono liberamente accessibili tramite il seguente link: https://doi.org/10.5281/zenodo.22030720. Ulteriori dati di supporto sono disponibili presso gli autori corrispondenti su richiesta ragionevole.
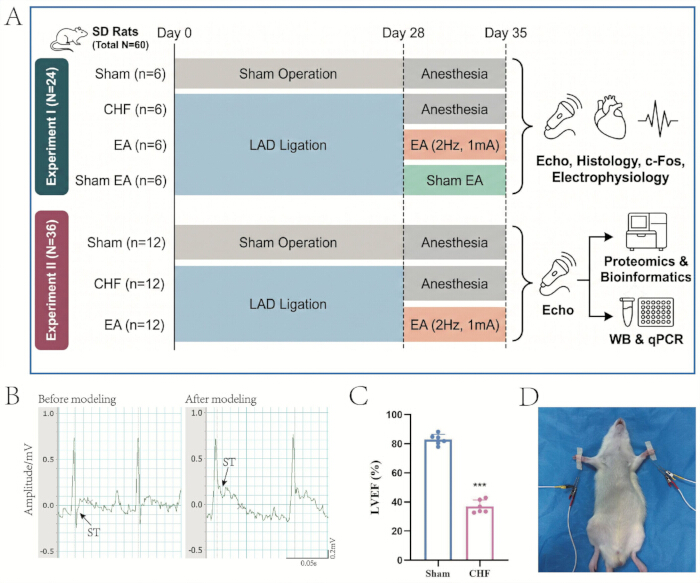
Figura 1: Progettazione sperimentale, creazione del modello di ratto con insufficienza cardiaca cronica e intervento di elettroacupuntura. (A) Diagramma di flusso sperimentale complessivo, comprensivo della linea temporale e della suddivisione in gruppi per le due serie sperimentali indipendenti. (B) Registrazioni rappresentative dell'elettrocardiogramma prima e dopo la legatura dell'arteria coronaria discendente anteriore (LAD), con frecce che indicano l'elevazione del segmento ST a conferma dell'ischemia miocardica. (C) Analisi quantitativa della frazione di eiezione del ventricolo sinistro (LVEF) a 4 settimane dall'intervento chirurgico per confermare il successo della modellizzazione (replicati biologici n = 6, media ± DS). ***p < 0,001 rispetto al gruppo Sham. (D) Intervento di elettroacupuntura nei punti di agopuntura HT7 bilaterali. Cliccare qui per visualizzare una versione ingrandita di questa figura.
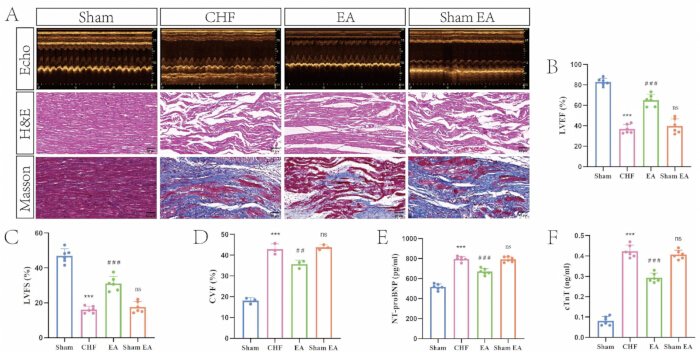
Figura 2: L’elettroacupuntura migliora la funzione cardiaca e attenua il danno miocardico nei ratti con insufficienza cardiaca cronica. (A) Esecografie M-mode rappresentative insieme a immagini di colorazione con ematossilina-eosina e tricromia di Masson dei tessuti miocardici nei 4 gruppi sperimentali (barra della scala = 50 µm). (B) Analisi quantitativa della FEVC nei diversi gruppi (replicati biologici n = 6, media ± DS). ***p < 0,001 rispetto al gruppo Sham; ###p < 0,001 rispetto al gruppo CHF; ns, non significativo rispetto al gruppo CHF. (C) Analisi quantitativa della FSVL nei diversi gruppi (replicati biologici n = 6, media ± DS). ***p < 0,001 rispetto al gruppo Sham; ###p < 0,001 rispetto al gruppo CHF; ns, non significativo rispetto al gruppo CHF. (D) Analisi quantitativa della CVF nei diversi gruppi (replicati biologici n = 3, media ± DS). ***p < 0,001 rispetto al gruppo Sham; ##p < 0,01 rispetto al gruppo CHF; ns, non significativo rispetto al gruppo CHF. (E) Analisi quantitativa dei livelli sierici di NT-proBNP nei diversi gruppi (replicati biologici n = 6, media ± DS). ***p < 0,001 rispetto al gruppo Sham; ###p < 0,001 rispetto al gruppo CHF; ns, non significativo rispetto al gruppo CHF. (F) Analisi quantitativa dei livelli sierici di cTnT nei diversi gruppi (replicati biologici n = 6, media ± DS). ***p < 0,001 rispetto al gruppo Sham; ###p < 0,001 rispetto al gruppo CHF; ns, non significativo rispetto al gruppo CHF. Cliccare qui per visualizzare una versione ingrandita di questa figura.
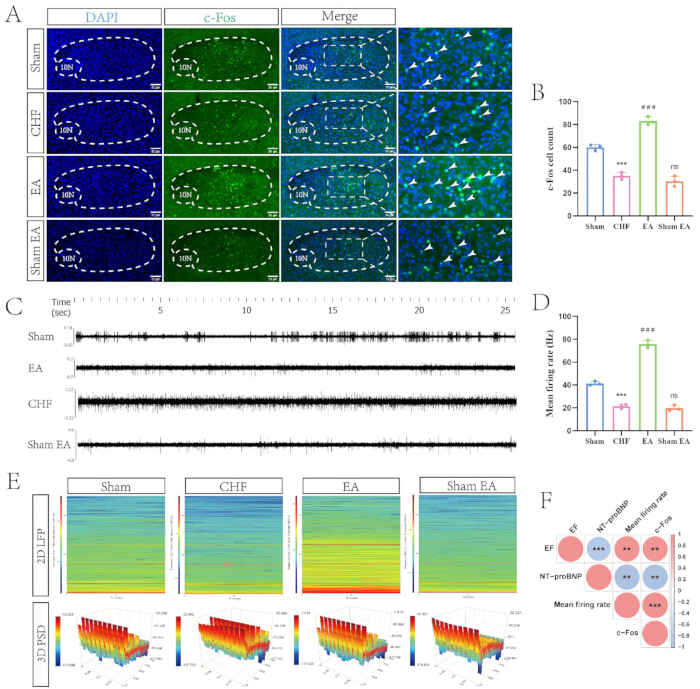
Figura 3: L’elettroacupuntura ripristina l’attività neuronale nel nucleo del tratto solitario in ratti con insufficienza cardiaca cronica. (A) Immagini rappresentative di immunofluorescenza dell’espressione di c-Fos nel NTS nei diversi gruppi. I nuclei sono colorati in controcolorazione con DAPI, e le cellule positive per c-Fos sono colorate in verde. Le linee tratteggiate delimitano la regione anatomica, e le frecce bianche indicano neuroni rappresentativi positivi per c-Fos (barra della scala = 30 µm). (B) Analisi quantitativa del numero di cellule positive per c-Fos nei diversi gruppi (replicati biologici n = 3, media ± DS). ***p < 0,001 rispetto al gruppo Sham; ###p < 0,001 rispetto al gruppo CHF; ns, non significativo rispetto al gruppo CHF. (C) Tracce rappresentative di scariche elettriche neuronali in vivo registrate nel NTS nei diversi gruppi. (D) Analisi quantitativa della frequenza media di scarica neuronale nei diversi gruppi (replicati biologici n = 3, media ± DS). ***p < 0,001 rispetto al gruppo Sham; ###p < 0,001 rispetto al gruppo CHF; ns, non significativo rispetto al gruppo CHF. (E) Spettrogrammi locali di potenziale in 2D e topografie tridimensionali della densità spettrale di potenza che illustrano l’energia oscillatoria neurale all’interno del NTS. (F) Matrice di correlazione che valuta le relazioni tra i fenotipi cardiovascolari periferici e i parametri di attività neurale centrale. I cerchi rossi e blu indicano rispettivamente correlazioni positive e negative. **p < 0,01; ***p < 0,001. Cliccare qui per visualizzare una versione ingrandita di questa figura.
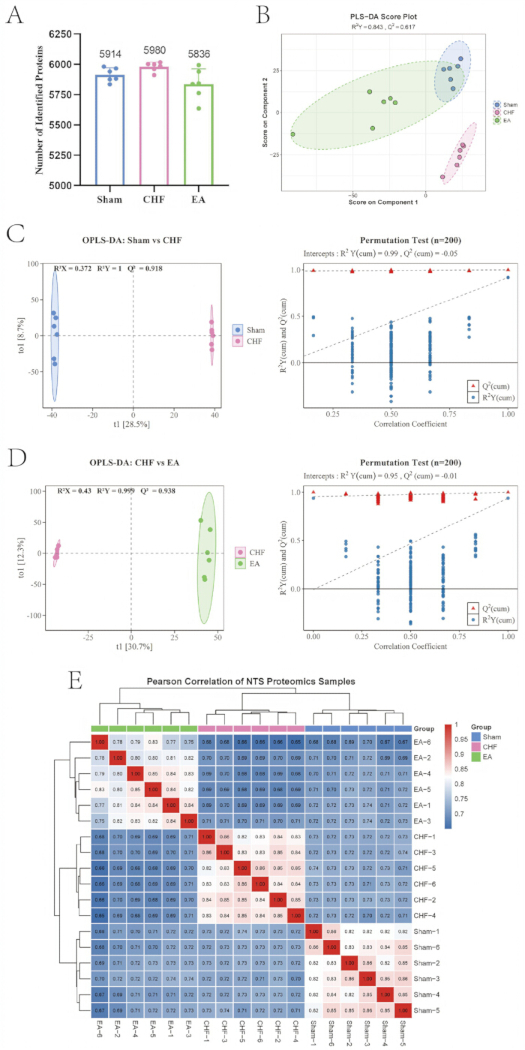
Figura 4: Controllo di qualità e valutazione statistica multivariata dei profili proteomici nel nucleo del tratto solitario. (A) Panoramica quantitativa delle proteine identificate nei 3 gruppi sperimentali (replicati biologici n = 6). (B) Grafico dei punteggi dell'analisi discriminante a minimi quadrati parziali che illustra la distribuzione spaziale complessiva e la separazione tra i gruppi. (C) Grafico dei punteggi dell'analisi discriminante a minimi quadrati parziali ortogonali e relativo test di permutazione per la validazione dell'affidabilità del modello nel confronto Sham versus CHF (200 permutazioni). (D) Grafico dei punteggi dell'analisi discriminante a minimi quadrati parziali ortogonali e relativo test di permutazione per la validazione dell'affidabilità del modello nel confronto CHF versus EA (200 permutazioni). (E) Mappa termica gerarchica dei coefficienti di correlazione di Pearson per la valutazione della riproducibilità all'interno dei gruppi e della varianza tra i gruppi in tutti i campioni proteomici. Cliccare qui per visualizzare una versione ingrandita di questa figura.
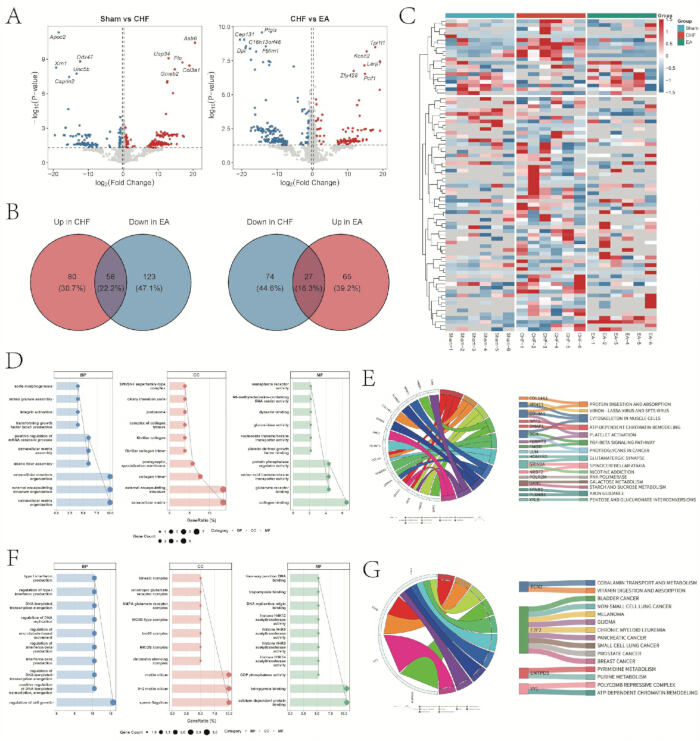
Figura 5: Identificazione e analisi dell'arricchimento funzionale delle proteine differenzialmente espresse di base modulate dall'elettroacupuntura nel nucleo del tratto solitario. (A) Diagrammi a vulcano che illustrano la distribuzione delle proteine upregolate e downregolate nei confronti Sham versus CHF e CHF versus EA. (B) Diagrammi di Venn che mostrano l'analisi dell'intersezione per identificare le proteine di base downregolate e upregolate dopo l'intervento con EA. (C) Mappa termica di clustering gerarchico dei profili di espressione delle proteine differenzialmente espresse di base. (D) Diagrammi a bolle GO che dettagliano i processi biologici, le componenti cellulari e le funzioni molecolari arricchiti nel sottoinsieme di proteine downregolate. (E) Diagrammi a corde e diagrammi di Sankey di KEGG che mostrano i percorsi di segnalazione arricchiti dalle proteine downregolate. (F) Diagrammi a bolle GO che dettagliano i processi biologici, le componenti cellulari e le funzioni molecolari arricchiti nel sottoinsieme di proteine upregolate. (G) Diagrammi a corde e diagrammi di Sankey di KEGG che mostrano i percorsi di segnalazione arricchiti dalle proteine upregolate. Cliccare qui per visualizzare una versione ingrandita di questa figura.
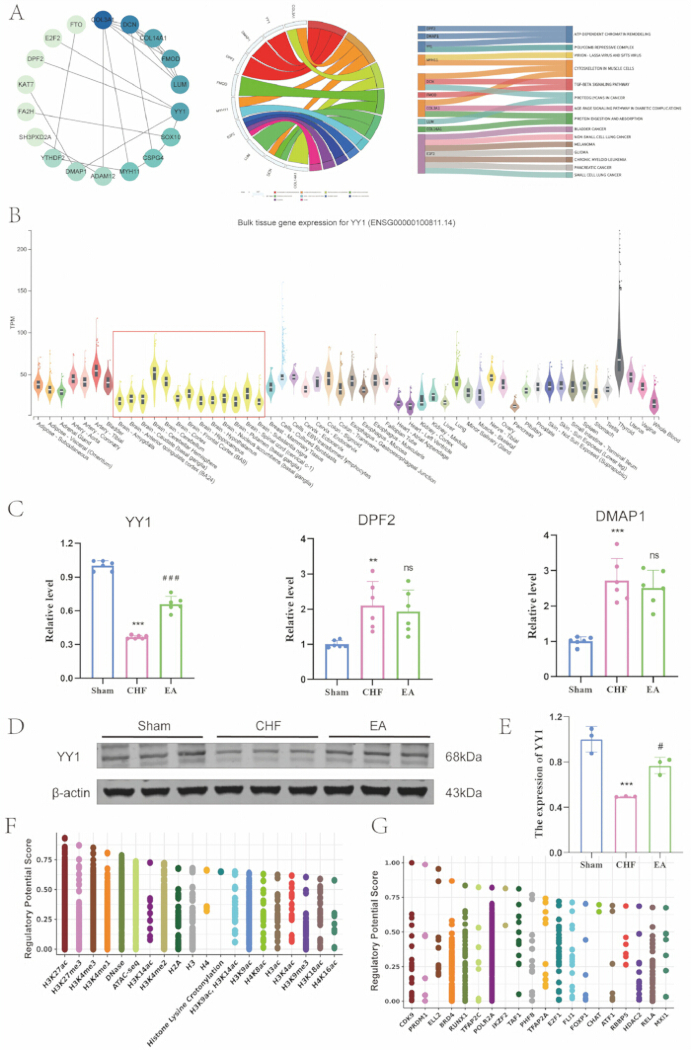
Figura 6: La topologia della rete, il profilo di espressione tissutale e la validazione molecolare identificano YY1 come un bersaglio candidato associato all'elettroacupuntura. (A) Rete di interazione proteina-proteina, diagramma a corde e diagramma di Sankey delle proteine centrali identificate. (B) Profilo di espressione tissutale umana di YY1 derivato dal database GTEx, con il riquadro rosso che evidenzia i tessuti cerebrali. (C) Analisi quantitativa dell'espressione di mRNA di YY1, DPF2 e DMAP1 nel NTS nei diversi gruppi (replicati biologici n = 6, media ± DS). **p < 0,01, ***p < 0,001 rispetto al gruppo Sham; ###p < 0,001 rispetto al gruppo CHF; ns, non significativo rispetto al gruppo CHF. (D) Esempi rappresentativi di bande di Western blot di YY1 e β-actina nel NTS nei diversi gruppi. (E) Analisi quantitativa dell'espressione proteica di YY1 nei diversi gruppi (replicati biologici n = 3, media ± DS). ***p < 0,001 rispetto al gruppo Sham; #p < 0,05 rispetto al gruppo CHF. (F) Predizione bioinformatica di modifiche epigenetiche istoniche che regolano il locus di YY1 basata sui punteggi di potenziale regolatorio. (G) Predizione bioinformatica di fattori trascrizionali upstream che regolano il locus di YY1 basata sui punteggi di potenziale regolatorio. Cliccare qui per visualizzare una versione ingrandita di questa figura.
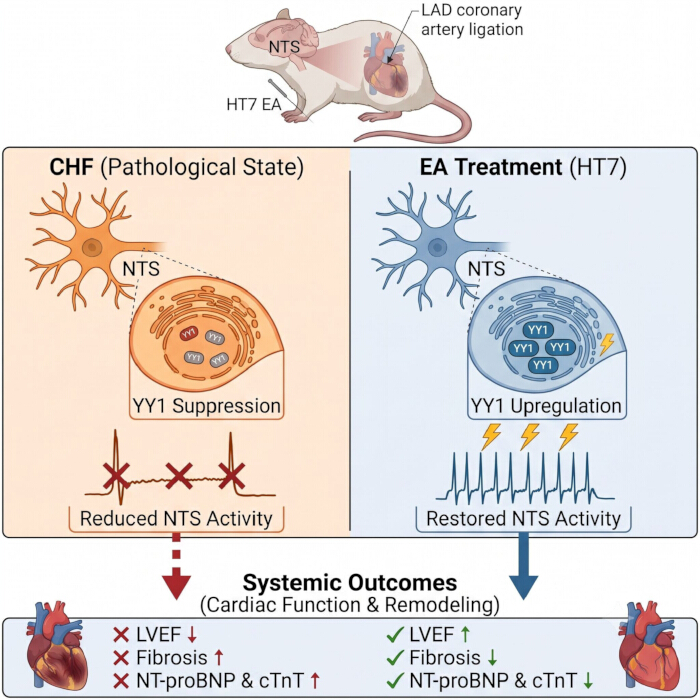
Figura 7: Modello proposto dell'associazione tra elettroacupuntura in HT7, aumento dell'espressione di YY1, ripristino dell'attività neuronale nel nucleo del tratto solitario e miglioramento dell'insufficienza cardiaca cronica. (Sinistra) Stato patologico: nel modello di scompenso cardiaco indotto dalla legatura dell'arteria coronaria discendente anteriore (LAD), l'attività neuronale all'interno del NTS è ridotta, accompagnata dalla soppressione del fattore di trascrizione YY1. Questa inibizione neurale centrale è associata a un rimodellamento cardiaco patologico, manifestato da una riduzione della frazione di eiezione del ventricolo sinistro (LVEF), aumento della fibrosi miocardica e innalzamento dei marcatori sierici dello scompenso cardiaco. (Destra) Trattamento con elettroacupuntura: l'intervento con elettroacupuntura nel punto di agopuntura HT7 aumenta l'espressione di YY1 nel NTS e ripristina la scarica neuronale. Questa neuromodulazione centrale esercita effetti cardioprotettivi, attenuando il rimodellamento patologico e migliorando la funzione cardiaca sistemica. Cliccare qui per visualizzare una versione ingrandita di questa figura.
Figura supplementare 1: Valutazione della funzione cardiaca della coorte proteomica e profili di espressione tissutale umana dei geni centrali candidati. (A) Analisi quantitativa della FEVS e della FSVS tra i gruppi (replicati biologici n = 12, media ± DS). ***p < 0,001 rispetto al gruppo Sham; ###p < 0,001 rispetto al gruppo CHF. (B-J) Profili di espressione tissutale umana dei geni centrali candidati derivati dal database GTEx, inclusi COL3A1 (B), DMAP1 (C), DPF2 (D), FMOD (E), MYH11 (F), E2F2 (G), LUM (H), DCN (I) e COL14A1 (J).Cliccare qui per scaricare il file.
Tabella supplementare 1: Matrice completa di identificazione e quantificazione del proteoma globale nel nucleo del tratto solitario. Questa tabella presenta il set completo di dati di proteomica quantitativa ottenuto da tutti i gruppi sperimentali. Le colonne importanti includono ID della proteina (numero di accesso UniProt), Gene (simbolo del gene), First.Protein.Description (annotazione funzionale) e i valori di intensità proteica normalizzati per ogni replica biologica nei gruppi Sham, CHF ed EA (n = 6 per gruppo).Cliccare qui per scaricare il file.
Tabella supplementare 2: Punteggi di importanza delle variabili in proiezione (OPLS-DA) per le proteine nel confronto tra Sham e CHF. Questa tabella elenca le caratteristiche che distinguono i gruppi Sham e CHF secondo il modello OPLS-DA. Le colonne principali includono caratteristica (rappresentante l'identificatore della proteina/gen specifica) e il valore VIP (Importanza della Variabile in Proiezione), che indica il contributo di ciascuna caratteristica alla separazione dei gruppi (soglia VIP > 1,0).Cliccare qui per scaricare il file.
Tabella supplementare 3: Punteggi di importanza delle variabili in proiezione (VIP) dell'OPLS-DA per le proteine nel confronto CHF vs EA. Questa tabella elenca le caratteristiche che distinguono i gruppi CHF ed EA in base al modello OPLS-DA. Analogamente alla Tabella S2, include la colonna delle caratteristiche e i corrispondenti valori VIP, evidenziando le caratteristiche più sensibili all'intervento EA.Cliccare qui per scaricare il file.
Tabella supplementare 4: Elenco dettagliato delle 85 proteine differenzialmente espresse, modulate dall'elettroacupuntura. Questa tabella riporta l'intersezione delle proteine significativamente alterate dalla CHF e successivamente ripristinate dall'intervento di EA. Le colonne importanti includono Protein_ID, Gene, log2FC (variazione del fold change in log2, che indica la variazione di espressione), P_value per la significatività statistica (soglia p < 0,05) e VIP_value, che valuta il contributo al modello.Cliccare qui per scaricare il file.
Tabella supplementare 5: Analisi dell'arricchimento dell'ontologia genica del sottoinsieme di proteine core downregolate. Questa tabella mostra l'annotazione funzionale dell'ontologia genica (GO) per le 58 proteine downregolate da EA. Le colonne importanti includono ONTOLOGY (categorizzata in Processo Biologico [BP], Componente Cellulare [CC] e Funzione Molecolare [MF]), Descrizione funzionale, p.adjust (valore p corretto per test multipli) e geneID, che corrisponde ai geni specifici arricchiti in ciascun termine.Cliccare qui per scaricare il file.
Tabella supplementare 6: Analisi di arricchimento dei percorsi della Kyoto Encyclopedia of Genes and Genomes per il sottoinsieme di proteine core downregolate. Questa tabella illustra i cascami di segnalazione arricchiti per le 58 proteine downregolate. Le colonne principali includono il Termine del percorso, il valore di p aggiustato che indica la significatività statistica dell'arricchimento e i Geni specifici coinvolti in ciascun percorso.Cliccare qui per scaricare il file.
Tabella supplementare 7: Analisi dell'arricchimento dell'ontologia genica del sottoinsieme di proteine core sovraespresso. Questa tabella mostra l'annotazione funzionale dell'ontologia genica (GO) per le 27 proteine sovraespresse da EA. Il formato e le definizioni delle colonne (ONTOLOGY [BP, CC, MF], Description, p.adjust, geneID) sono identici a quelli descritti nella Tabella S5.Cliccare qui per scaricare il file.
Tabella supplementare 8: Analisi di arricchimento dei percorsi della Kyoto Encyclopedia of Genes and Genomes per il sottoinsieme di proteine core sovraespresso. Questa tabella illustra i cascami di segnalazione arricchiti per le 27 proteine sovraespresso. Il formato e le definizioni delle colonne (Termine, valore p aggiustato, Geni) sono identici a quelli descritti nella Tabella S6.Cliccare qui per scaricare il file.
Tabella Supplettiva 9: Punteggi di connettività topologica delle 18 proteine hub ottenute dalla rete di interazione proteina-proteina. Questa tabella riassume i parametri topologici della rete utilizzati per identificare i geni hub principali. Le colonne principali includono il nome del gene e metriche centrali della rete come Grado, Centralità di Intermediarietà e Centralità di Vicinanza, che quantificano l'importanza relativa e la connettività di ciascun nodo all'interno della rete biologica.Cliccare qui per scaricare il file.
Tabella supplementare 10: Analisi di arricchimento dei percorsi metabolici della Kyoto Encyclopedia of Genes and Genomes per le 18 proteine centrali della rete. Questa tabella presenta i percorsi di segnalazione specifici arricchiti esclusivamente dalle 18 proteine centrali identificate. Le colonne principali includono il Termine del percorso, il valore p aggiustato per la significatività e i rispettivi Geni responsabili dell'arricchimento funzionale.Cliccare qui per scaricare il file.
File supplementare 1: Script R utilizzati per l'analisi e la visualizzazione dei dati e immagini non ritagliate di Western blot. Il file supplementare contiene gli script R utilizzati per l'analisi della correlazione di Pearson, la generazione di grafici a doppio vulcano e l'identificazione di proteine invertite dall'EA, l'analisi di arricchimento dell'ontologia genica (GO), la generazione di mappe termiche con clustering gerarchico, la visualizzazione dell'arricchimento nell'Enciclopedia di Kyoto dei Geni e dei Genomi (KEGG), l'analisi discriminante ortogonale delle minime differenze parziali (OPLS-DA) e i test di permutazione, l'analisi discriminante delle minime differenze parziali (PLS-DA), la generazione di mappe termiche di correlazione tra campioni proteomici e l'analisi con diagramma di Venn.Cliccare qui per scaricare questo file.
Discussione
The present study investigated the central mechanisms of EA at the HT7 acupoint in the rat model of CHF. Physiological and histological data indicated that EA improved LVEF and attenuated myocardial fibrosis. In parallel with these peripheral changes, in vivo electrophysiological recordings and neural mapping supported that EA restored neuronal firing rates within the NTS. Through mass spectrometry-based proteomics, the molecular landscape of the NTS was mapped, and 85 differentially expressed proteins whose abnormal expression patterns were modulated by the intervention were identified. Subsequent topological analysis and tissue expression profiling isolated the transcription factor YY1 as a candidate biological target. Molecular validation indicated that EA upregulates YY1 expression. These findings construct a central molecular network for EA and suggest YY1 as a potential neurobiological target linking central autonomic regulation with the amelioration of CHF. The comprehensive central mechanisms are summarized in Figure 7.
The NTS serves as the integration center for central cardiovascular reflexes and autonomic regulation21,22. In the context of cardiovascular diseases, CHF involves sustained autonomic imbalance characterized by sympathetic overactivation and vagal withdrawal23. During the pathophysiological progression of this condition, the sensitivity of peripheral baroreceptors decreases, which reduces excitatory afferent inputs to the NTS24. Consequently, this neural blunting leads to a diminished activation of the caudal ventrolateral medulla and a subsequent disinhibition of the rostral ventrolateral medulla, culminating in excessive central sympathetic outflow25. In parallel with these mechanisms, the electrophysiological and histological data indicated that the spontaneous firing frequency and c-Fos expression of NTS neurons were reduced in the CHF state. As a targeted neuromodulation approach, EA-generated somatosensory afferent signals are theoretically proposed to be transmitted through peripheral nerves to the dorsal horn of the spinal cord and to ascend to brainstem structures, including the NTS26. The results indicated that EA intervention at the HT7 acupoint increased neural oscillatory energy and restored neuronal firing rate in this brain region. Physiologically, the restored NTS neuronal activity facilitates activation of inhibitory interneurons in the medulla, thereby suppressing hyperactive sympathetic premotor neurons while concurrently enhancing parasympathetic efferent signals27. Linking these central neural mechanisms to peripheral cardiovascular phenotypes, the correlation analysis supported that this central neural activation was positively associated with LVEF and negatively associated with the peripheral heart failure marker NT-proBNP. These findings indicate that EA may exert its peripheral cardioprotective effects by alleviating the pathological inhibition of NTS neurons and promoting central autonomic homeostasis.
To elucidate the molecular pathways underlying this central neuromodulation, the proteomic landscape of the NTS was analyzed. Mass spectrometry-based proteomics identified 85 proteins whose expression patterns were modulated by the intervention. Functional stratification revealed that a subset of 58 proteins downregulated by EA is prominently involved in extracellular matrix organization and the transforming growth factor β-signaling pathway. The extracellular matrix in the central nervous system forms an organized lattice, including perineuronal nets that physically enwrap synaptic terminals and regulate local ion homeostasis28. Under chronic pathological stress, such as heart failure, aberrant extracellular matrix deposition creates a restrictive microenvironment within the brainstem29. This structural remodeling physically impedes synaptic structural plasticity and maintains neural circuits in a state of sympathetic hyperactivity30. By modulating the expression of structural proteins, such as COL3A1 and COL14A1 alongside DCN, EA remodels this pathological extracellular barrier. Concurrently, the enrichment of related signaling cascades—categorized under the "cytoskeleton in muscle cells" KEGG pathway, which indicates general structural and integrin-mediated alterations rather than implying the actual presence of myocytes within the NTS—suggests that extracellular changes are transmitted into the intracellular compartment31. This mechanotransduction signaling restores the dynamic turnover of dendritic spines and regulates synaptic transmission and efficacy in the autonomic reflex arc32.
Beyond extracellular structural reorganization, functional annotation of the 27 proteins upregulated by the intervention indicated the involvement of ATP-dependent chromatin remodeling. Sustained cardiovascular autonomic imbalance is maintained by epigenetic restrictions, where condensed chromatin limits the accessibility of promoter regions for genes regulating neural inhibition33. ATP-dependent chromatin remodeling complexes use energy from ATP hydrolysis to slide or evict nucleosomes, thereby opening genomic loci for active transcription34. The enrichment of this pathway, alongside the positive regulation of DNA-templated transcription elongation, indicates that EA acts at the epigenetic level to remodel disease-associated transcriptional memory35. The structural relaxation of the extracellular microenvironment translates into nuclear epigenetic modifications, facilitating the coordinated transcription of neuroprotective gene networks bridged by key proteins such as YY1 and E2F236,37. To systematically isolate the biological target mediating the therapeutic efficacy of EA, a stepwise screening strategy was applied. The 85 differentially expressed proteins were filtered through topological network mapping and pathway enrichment analysis to identify 10 prominent hub candidates. Subsequent tissue expression profiling verified that only YY1 and DPF2, alongside DMAP1, are expressed in human brain tissues. In vivo molecular validation further excluded DPF2 and DMAP1 due to a lack of transcriptional responsiveness, confirming YY1 as a highly responsive candidate target. YY1 is a zinc-finger transcription factor that exerts control over central nervous system development and neuronal plasticity38. In mature neural circuits, YY1 functions as a neuroprotective regulator by maintaining mitochondrial homeostasis and mitigating oxidative stress39. During the pathological progression of CHF, sustained hemodynamic stress and peripheral inflammation induce metabolic dysfunction and structural damage in brainstem neurons40. The experimental data indicated that YY1 expression is suppressed in the NTS under CHF conditions, whereas EA intervention counteracted this pathological suppression. Based strictly on computational bioinformatics predictions rather than empirical validation, YY1 is hypothesized to interact with active histone modifications, such as H3K27ac and H3K4me3, to orchestrate the transcription of downstream neuroprotective gene networks 41. The restoration of YY1 activity may facilitate repair of neuronal metabolic pathways and promote the structural integrity of synaptic connections. Consequently, the modulated NTS neurons improve their capacity to process peripheral baroreflex inputs and exert inhibitory control over descending sympathetic premotor pathways, which ameliorates the cardiovascular deterioration associated with CHF42.
Despite these discoveries, several methodological limitations warrant rigorous consideration. First, the current experimental design relied on correlational omics and expression profiling without direct functional evidence. Future investigations must incorporate targeted genetic manipulations, such as viral vector-mediated knockdown or overexpression within the NTS, alongside empirical ChIP-seq or CUT&Tag assays, to definitively establish the causal role of YY1 and validate its downstream epigenetic networks. Second, excluding the Sham EA cohort from the proteomics phase limits our ability to definitively rule out molecular signatures induced by nonspecific somatosensory stimulation. However, comparing the CHF and EA groups relative to the Sham baseline is considered sufficient to isolate EA-specific molecular changes in the current design. This is because all non-intervention cohorts, specifically the Sham and CHF groups, underwent strict baseline standardization of daily isoflurane anesthesia exposure, which effectively minimized the most profound non-specific neurological stress confounders. Furthermore, our initial functional data showed that Sham EA did not elicit significant cardiovascular or neural activation relative to the CHF group, suggesting that superficial somatosensory stimulation without electrical current does not reach the threshold required to drive substantial central molecular reprogramming. Third, the study lacks standard non-acupoint control groups, which prevents the definitive confirmation of HT7 acupoint specificity. Furthermore, the proposed HT7-to-NTS afferent neural pathways remain speculative without direct neural tracing or nerve-blockade validation. Finally, the in vivo electrophysiology evaluated global NTS activity at a single time point without distinguishing between specific excitatory and inhibitory neuronal subpopulations, nor did it assess long-term neural plasticity. Subsequent research must address these critical gaps to refine the central neurobiological mechanisms.
Ultimately, by integrating these findings while acknowledging their correlational nature, this research provides a valuable molecular framework indicating that EA mitigates pathological cardiac remodeling by restoring NTS neuronal function. These data highlight YY1 as a highly responsive candidate target for central cardiovascular neuromodulation, offering novel neurobiological insights for the clinical application of acupuncture therapy in heart failure management.
Dichiarazioni
Tutti gli autori dichiarano di non avere conflitti di interessi. Gli autori dichiarano inoltre che nessuno strumento di intelligenza artificiale è stato utilizzato in alcuna fase del processo di preparazione del manoscritto.
Ringraziamenti
Desideriamo esprimere la nostra sincera gratitudine a tutti i ricercatori che hanno contribuito a questo studio e riconosciamo con rispetto il sacrificio degli animali sperimentali. Questo lavoro è stato sostenuto dal National Key Research and Development Program of China (grant no. 2022YFC3500500 e 2022YFC3500502) e dal programma di supporto per talenti a livello universitario Xu Nenggui (grant no. DT2400000222). I finanziatori non hanno avuto alcun ruolo nella progettazione dello studio, nella raccolta e analisi dei dati, nella decisione di pubblicare o nella preparazione del manoscritto.
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| Ratti maschi adulti Sprague-Dawley | Liaoning Changsheng Biotechnology Co., Ltd. | No. SCXK (LIAO) 2025-0001 | RGD_70508 |
| Aghi per agopuntura | Suzhou Tianxie Acupuncture Instrument Co., Ltd. | — | — |
| Mezzo di montaggio antifade con DAPI | Aibixin Biotechnology Co., Ltd. | abs9235-25ml | — |
| Anticorpo primario anti-YY1 | Proteintech Group, Inc | 66281-1-Ig | AB_2881664 |
| Anticorpo primario anti-Beta Actin | 66009-1-Ig | AB_2687938 | |
| Albumina sierica bovina (BSA) | Sigma Odellie Trading Co., Ltd. | V900933 | — |
| Kit per saggio proteico BCA | Shanghai Biyuntian Biotechnology Co., Ltd. | P0012S | — |
| c-Fos (9F6) mAb coniglio | Sai Xin Tong Biological Reagents Co., Ltd. | 2250S | AB_2247211 |
| Cytoscape | The Cytoscape Consortium | versione 3.2.1 | SCR_003032 |
| ChamQ Universal SYBR qPCR Master Mix | Vazyme Biotech Co., Ltd. | Q711-02 | — |
| Apparecchio di elettroagopuntura | Nanjing Jisheng Medical Technology Co., Ltd. | HANS-200A | — |
| Matrice microelettrodica a otto canali (2 × 4) | Kewa Suzhou Medical Technology Co., Ltd. | - | — |
| Kit ELISA (NT-proBNP) | Wuhan Enzyme Immuno-Biotechnology Co., Ltd. | MM-0329R1 | — |
| Kit ELISA (cTnT) | MM-0795R2 | — | |
| Kit di chemiluminescenza potenziata | Proteintech Group, Inc | PK10001 | — |
| Capra anti-coniglio IgG | Aimee Technology Co., Ltd. | 111-545-003 | AB_2338046 |
| Anticorpo secondario capra anti-topo IgG coniugato con HRP | BeiJing Cowin Biotech Co.,Ltd. | CW0102 | N/A |
| HiScript III RT SuperMix | Vazyme Biotech Co., Ltd. | R323-01 | — |
| Software ImageJ | National Institutes of Health | versione 4.0 | SCR_003070 |
| Sistema di imaging | Bio-Rad Laboratories, Inc | ChemiDoc MP | |
| Macchina per anestesia per piccoli animali a canali multipli | RWD Life Science Co., Ltd | R510-22-10 | — |
| Microscopio | Olympus Optical Co., Ltd. | DP72 | — |
| Software NeuroExplorer | Beijing Plexon Technology Co., Ltd. | versione 5.0 | SCR_001818 |
| Software Offline Sorter | Beijing Plexon Technology Co., Ltd. | versione 4.7.2 | SCR_000012 |
| Orbitrap Astral | Thermo Fisher Scientific | — | — |
| Sistema standard Powerlab derivazione arti II | AD Instruments International Trading Co., Ltd. | ML118 | — |
| Colonna PepMap Neo Trap | Thermo Fisher Scientific | — | — |
| Inibitori della fosfatasi | Shanghai Biyuntian Biotechnology Co., Ltd. | P1081 | — |
| Software R | — | versione 4.5.2 | SCR_001905 |
| Tampone di lisi RIPA | Yeasen Biotechnology Co., Ltd. | 20115ES60 | — |
| RNAiso Plus | TaKaRa Biotechnology Co., Ltd. | 9108 | — |
| Sistema ad ultrasuoni digitale per piccoli animali | Feiyino Technology Co., Ltd. | VINNO6 Lab | — |
| Software statistico | GraphPad Software | Versione 8.0 | SCR_002798 |
| Sistema di acquisizione multicanale OmniPlex | Beijing Plexon Technology Co., Ltd. | versione 1.20.0 | — |
| Triton X-100 | Beijing Solab Technology Co., Ltd. | 22298142 | — |
| Sistema Vanquish Neo UHPLC | Thermo Fisher Scientific | — | — |
| Colonna µPAC Neo ad alta produttività | Thermo Fisher Scientific | — | — |
Riferimenti
- Valente V, et al. The global epidemiology of heart failure: a comprehensive and contemporary review. Eur J Heart Fail. 2026.
- Triposkiadis F, et al. The sympathetic nervous system in heart failure physiology, pathophysiology, and clinical implications. J Am Coll Cardiol. 2009;54(19):1747-62.
- Arshad MS, et al. Sympathetic nervous system in heart failure: targets for treatments. Curr Hypertens Rep. 2025;27(1):20.
- Fan H, et al. The hypotensive role of acupuncture in hypertension: clinical study and mechanistic study. Front Aging Neurosci. 2020;12:138.
- Zuo H, et al. Electroacupuncture alleviates acute myocardial ischemic injury in mice by regulating the β1 adrenergic receptor and post-receptor protein kinase A signaling pathway. Acupunct Med. 2024;42(6):342-55.
- Wu HS, et al. Neural mechanism of HT7 electroacupuncture in myocardial ischemia: critical role of the paraventricular nucleus oxytocin system. Front Neurosci. 2025;19:1678938.
- Kun W, et al. Electroacupuncture ameliorates cardiac dysfunction in myocardial ischemia model rats: a potential role of the hypothalamic-pituitary-adrenal axis. J Tradit Chin Med. 2023;43(5):944-54.
- Xu W, et al. Electroacupuncture ameliorates chronic heart failure: the role of CRH neurons in the paraventricular nucleus of the hypothalamus. Front Neurosci. 2026;20:1741523.
- Andresen MC, Kunze DL. Nucleus tractus solitarius--gateway to neural circulatory control. Annu Rev Physiol. 1994;56:93-116.
- Craft GE, et al. Recent advances in quantitative neuroproteomics. Methods. 2013;61(3):186-218.
- Charan J, Kantharia ND. How to calculate sample size in animal studies? J Pharmacol Pharmacother. 2013;4(4):303-6.
- Zhou J, et al. Electroacupuncture pretreatment mediates sympathetic nerves to alleviate myocardial ischemia-reperfusion injury via CRH neurons in the paraventricular nucleus of the hypothalamus. Chin Med. 2024;19(1):43.
- Litwin SE, et al. Serial echocardiographic assessment of left ventricular geometry and function after large myocardial infarction in the rat. Circulation. 1994;89(1):345-54.
- Shu Q, et al. Electroacupuncture alleviates myocardial ischemia-reperfusion injury by inhibiting hypothalamic paraventricular nucleus neurons projecting to the rostral ventrolateral medulla. Eur J Neurosci. 2024;60(5):4861-76.
- Wan F, et al. Electroacupuncture improves cerebral blood flow in vascular cognitive impairment mice by activating the locus coeruleus-prefrontal cortex circuit. Neuroscience. 2025;583:33-42.
- Xu R, et al. Electroacupuncture ameliorates incisional pain via suppressing IL-33 signaling-related macrophage infiltration and ROS overproduction in incised skin. Chin Med. 2026;21(1):26.
- Quiroga RQ, et al. Unsupervised spike detection and sorting with wavelets and superparamagnetic clustering. Neural Comput. 2004;16(8):1661-87.
- Goldwyn JH, et al. Gain control with A-type potassium current: IA as a switch between divisive and subtractive inhibition. PLoS Comput Biol. 2018;14(7):e1006292.
- Buzsáki G. Large-scale recording of neuronal ensembles. Nat Neurosci. 2004;7(5):446-51.
- Zhang J, Mifflin SW. Responses of aortic depressor nerve-evoked neurones in rat nucleus of the solitary tract to changes in blood pressure. J Physiol. 2000;529(Pt 2):431-43.
- Benarroch EE. The central autonomic network: functional organization, dysfunction, and perspective. Mayo Clin Proc. 1993;68(10):988-1001.
- Scheitz JF, et al. Bidirectional brain-heart interactions in health and disease. Nat Rev Neurol. 2026;22(4):209-25.
- Floras JS. Sympathetic nervous system activation in human heart failure: clinical implications of an updated model. J Am Coll Cardiol. 2009;54(5):375-85.
- Iannetta D, et al. Dissecting the exercise pressor reflex in heart failure: a multi-step failure. Auton Neurosci. 2025;259:103269.
- Sved AF, et al. Baroreflex dependent and independent roles of the caudal ventrolateral medulla in cardiovascular regulation. Brain Res Bull. 2000;51(2):129-33.
- Liu Y, et al. Neurophysiological basis of electroacupuncture stimulation in the treatment of cardiovascular-related diseases: vagal interoceptive loops. Brain Behav. 2024;14(10):e70076.
- Zhou W, Benharash P. Effects and mechanisms of acupuncture based on the principle of meridians. J Acupunct Meridian Stud. 2014;7(4):190-3.
- Fawcett JW, et al. The roles of perineuronal nets and the perinodal extracellular matrix in neuronal function. Nat Rev Neurosci. 2019;20(8):451-65.
- Moon S, Ito Y. Vasculature cells control neuroglial co-localization and synaptic connection in a central nervous system tissue mimic system. Hum Cell. 2023;36(6):1938-47.
- Ferrer-Ferrer M, Dityatev A. Shaping synapses by the neural extracellular matrix. Front Neuroanat. 2018;12:40.
- Rabinowitch I, et al. Understanding neural circuit function through synaptic engineering. Nat Rev Neurosci. 2024;25(2):131-9.
- McGeachie AB, et al. Stabilising influence: integrins in regulation of synaptic plasticity. Neurosci Res. 2011;70(1):24-9.
- Qiu L, et al. RNA modification: mechanisms and therapeutic targets. Mol Biomed. 2023;4(1):25.
- Clapier CR, et al. Mechanisms of action and regulation of ATP-dependent chromatin-remodelling complexes. Nat Rev Mol Cell Biol. 2017;18(7):407-22.
- Du W, et al. Mechanisms of chromatin-based epigenetic inheritance. Sci China Life Sci. 2022;65(11):2162-90.
- Rashid F, et al. Mechanomemory of nucleoplasm and RNA polymerase II after chromatin stretching by a microinjected magnetic nanoparticle force. Cell Rep. 2024;43(7):114462.
- Weintraub AS, et al. YY1 is a structural regulator of enhancer-promoter loops. Cell. 2017;171(7):1573-88.e28.
- Zurkirchen L, et al. Yin Yang 1 sustains biosynthetic demands during brain development in a stage-specific manner. Nat Commun. 2019;10(1):2192.
- Cunningham JT, et al. mTOR controls mitochondrial oxidative function through a YY1-PGC-1alpha transcriptional complex. Nature. 2007;450(7170):736-40.
- van Weperen VYH, Vaseghi M. The brain-heart axis: effects of cardiovascular disease on the CNS and opportunities for central neuromodulation. Nat Rev Neurosci. 2026;27(3):159-77.
- Lam JC, et al. YY1-controlled regulatory connectivity and transcription are influenced by the cell cycle. Nat Genet. 2024;56(9):1938-52.
- Montuoro S, et al. Neuroimmune cross-talk in heart failure. Cardiovasc Res. 2025;121(4):550-67.