Otto settimane di esercizio su tapis roulant sono state associate a modifiche trascrizionali a livello cardiaco, della barriera intestinale e relative a Nlrp3, nonché a alterazioni della microbiota intestinale, in particolare un aumento di Akkermansia muciniphila, nei topi diabetici.
Articolo di ricerca
L'esercizio su tapis roulant è associato a modifiche dell'espressione genica della barriera intestinale e cardiaca di Nlrp3 nei topi diabetici
In questo articolo
Sommario
Abstract
Questo studio ha indagato le associazioni tra esercizio fisico, espressione genica correlata alla barriera intestinale e funzione cardiaca Nlrp3 espressione genica legata all'inflammasoma in un modello murino di diabete. La disregolazione metabolica è stata indotta in topi maschi C57BL/6J mediante una dieta ricca di grassi combinata con streptozotocina a basso dosaggio, seguita da 8 settimane di esercizio su tapis roulant5° pendenza, 12 m/min, 20–50 min/giorno, 5 giorni/settimana). Rispetto ai topi diabetici sedentari, i topi sottoposti a esercizio hanno mostrato livelli più bassi di glucosio a digiuno, resistenza all'insulina e livelli sierici di lipidi, insieme a un aumento dei livelli colonic Ocludina espressione di mRNA (espressione relativa: 0,38 ± 0,04 nei topi diabetici vs. 0,79 ± 0,05 nei topi esercitati, P < 0,001), minore attività cardiaca Nlrp3, IL-1β, TNF-α, Col1a1, e Tgfb1 espressione di mRNA e un rapporto Bax/Bcl-2 minore a livello di mRNA (3,06 ± 0,19 contro 1,48 ± 0.10, P < 0,001). L'analisi qPCR su feci di sei taxa selezionati ha mostrato che l'esercizio era associato a un aumento delle abbondanze relative di Akkermansia muciniphila (0.31 ± 0,04 a 0,84 ± 0,07) e Lactobacillus (0.48 ± 0,05 a 1,01 ± 0,07) e diminuito Escherichia coli (3.84 ± 0,33 a 1,68 ± 0.13, P < 0,01). Nei topi sottoposti a esercizio, A. muciniphila l'abbondanza era negativamente correlata con il cuore Nlrp3 espressione dell'mRNA (R = −0,81, P = 0,0046). Questi risultati correlazionali indicano associazioni tra esercizio fisico, modifiche trascrizionali cardiache e intestinali e alcuni taxa microbici intestinali selezionati nei topi diabetici, ma non stabiliscono relazioni causali. Tutti i risultati molecolari si limitano a variazioni a livello di mRNA e non dimostrano la funzione della barriera intestinale, l'attivazione dell'inflammasoma, la fibrosi miocardica, l'apoptosi o altri effetti funzionali o a livello proteico.
Introduzione
Il diabete mellito rappresenta una minaccia sanitaria globale in crescita, e le complicanze cardiache associate al diabete rimangono condizioni gravi per le quali esistono terapie specifiche limitate1,2,3,4. L'allenamento fisico può migliorare la funzione cardiaca nei modelli animali di diabete5,6, ma i meccanismi sottostanti, in particolare quelli che coinvolgono la microbiota intestinale e la barriera intestinale, non sono ancora completamente compresi.
La microflora intestinale regola il metabolismo e l'immunità dell'ospite7. Nel diabete, la disbiosi intestinale e il deterioramento dell'integrità della barriera possono aumentare la traslocazione del lipopolisaccaride (LPS), promuovere l'infiammazione mediata da TLR4 ed aggravare il danno miocardico8,9. Questo carico infiammatorio di origine intestinale potrebbe contribuire alla progressione delle complicanze diabetiche, inclusa la disfunzione cardiaca. Batteri benefici come Akkermansia e Faecalibacterium possono risultare ridotti, mentre batteri come E. coli possono aumentare10,11. Tali alterazioni microbiche potrebbero contribuire all'infiammazione intestinale locale e all'endotossiemia sistemica, influenzando potenzialmente organi distanti, come il cuore. L'inflammasoma NLRP3 è un mediatore importante dell'infiammazione cardiaca nella patologia cardiaca diabetica, e la sua attivazione può essere modulata dai metaboliti microbici intestinali12,13. Alcuni prodotti microbici, in particolare gli acidi grassi a catena corta e il LPS, esercitano effetti opposti sulla priming e sull'assemblaggio di NLRP3, suggerendo un'associazione potenziale tra l'ambiente microbico intestinale e lo stato infiammatorio miocardico.
L'esercizio fisico può modificare la microbiota intestinale e migliorare la funzione della barriera intestinale14,15, ma le associazioni tra esercizio fisico, espressione genica legata alla barriera intestinale ed espressione genica cardiaca legata all'inflammasoma NLRP3 nei modelli di diabete non sono ancora completamente comprese. L'epitelio intestinale funge da interfaccia tra i microrganismi della cavità intestinale e la circolazione sistemica e potrebbe quindi contribuire alle associazioni tra le variazioni della microbiota intestinale e le risposte infiammatorie cardiache. Tuttavia, mancano ancora evidenze sperimentali dirette che stabiliscano una relazione causale tra le modifiche indotte dall'esercizio fisico sulla barriera intestinale, l'attivazione dell'inflammasoma NLRP3 e la protezione cardiaca nei modelli di diabete.
Pertanto, l'ipotesi era che l'esercizio su tapis roulant fosse associato a modifiche nella trascrizione cardiaca, a un cambiamento di specifici taxa microbici intestinali, al mantenimento dell'espressione genica legata alla barriera intestinale e a una riduzione dell'espressione genica cardiaca correlata all'inflammasoma NLRP3 nei topi diabetici. Un modello murino di diabete è stato indotto mediante una dieta ricca di grassi combinata con streptozotocina a basso dosaggio, seguita da un intervento di esercizio su tapis roulant della durata di 8 settimane. Le valutazioni hanno incluso parametri metabolici, l'espressione di mRNA di Occludina nel colon, l'espressione genica cardiaca correlata all'inflammasoma NLRP3 e marcatori dell'espressione genica infiammatori, fibrotici e apoptotici. Sono stati inoltre quantificati specifici taxa microbici intestinali al fine di valutare le variazioni associate all'esercizio nella microbiota intestinale. Sono state effettuate analisi di correlazione per esaminare le associazioni tra determinati taxa microbici intestinali, l'espressione genica legata alla barriera intestinale e i marcatori trascrizionali cardiaci. Tali analisi sono state progettate per identificare associazioni, piuttosto che stabilire un meccanismo causale legato alla barriera intestinale e all'NLRP3.
Protocollo
Tutte le procedure sugli animali sono state eseguite in un impianto per animali autorizzato da un'organizzazione internazionale di accreditamento per la cura degli animali da laboratorio. Il protocollo è stato esaminato e approvato dal Comitato istituzionale per la cura e l'uso degli animali (IACUC; numero di approvazione: VS212500103). Gli esperimenti sono stati condotti in un impianto esterno autorizzato poiché l'istituzione di origine non disponeva di un impianto per animali autorizzato per questo modello specifico.
Creazione del modello murino di diabete
Topi maschi C57BL/6J (8 settimane di età, grado liberi da agenti patogeni specifici, peso corporeo 20–22 g) sono stati adattati per 1 settimana in condizioni controllate (22 ± 2 °C, 50 ± 10% di umidità relativa, ciclo luce/buio di 12 h) con accesso libero a cibo standard e acqua.
Dopo l'acclimatazione, i topi sono stati assegnati casualmente, mediante una tabella di numeri casuali, a un gruppo di controllo normale (Controllo, n = 10) o a un gruppo sottoposto all'induzione del diabete. Le procedure sperimentali e le misurazioni degli esiti sono state effettuate da ricercatori ignari dell'assegnazione ai gruppi. Gli animali sono stati allevati in gruppi di quattro per gabbia, in gabbie standard in policarbonato con lettiera arricchita, in condizioni libere da patogeni specifici. Sono stati utilizzati esclusivamente topi maschi per ridurre al minimo la variabilità potenziale associata ai cicli estrali e perché il modello dieta ricca di grassi/streptozotocina produce fenotipi metabolici più coerenti nei maschi.
Ai topi sottoposti all'induzione del diabete è stata somministrata una dieta ricca di grassi (60% kcal da grassi) per 4 settimane, seguita da iniezioni intraperitoneali di streptozotocina (STZ; 30 mg/kg di peso corporeo) per 5 giorni consecutivi. L'STZ è stato disciolto fresco in tampone citrato 0,1 mol/L (pH 4,5), protetto dalla luce ed somministrato entro 15 minuti dalla preparazione. Ai topi di controllo è stato somministrato un volume equivalente di tampone citrato. Una settimana dopo l'ultima iniezione, la glicemia a digiuno (FBG) è stata misurata dal sangue della punta della coda dopo un digiuno di 6 ore. I topi con FBG ≥ 11,1 mmol/L sono stati considerati diabetici. Questi topi sono stati mantenuti sulla dieta ricca di grassi per ulteriori 4 settimane per permettere lo sviluppo di alterazioni nell'espressione genica correlate al diabete.
Un totale di 35 topi ha subito l'induzione del modello, dei quali 28 hanno soddisfatto il criterio di diabete. Il peso corporeo e l'assunzione di cibo sono stati monitorati settimanalmente, ma non sono stati utilizzati come criteri di esclusione. Nessun animale è morto né è stato escluso durante le fasi di modellizzazione o di intervento. I topi modellizzati con successo sono stati suddivisi casualmente in un gruppo di diabete (DM, n = 10) e un gruppo con intervento di esercizio (DM+Ex, n = 10). La dimensione finale del campione è stata di n = 10 per gruppo in tutti gli analisi, con ciascun topo considerato come unità sperimentale.
Intervento di esercizio su tapis roulant
I topi del gruppo DM+Ex hanno effettuato esercizio su tapis roulant con un'inclinazione del 5° e una velocità di 12 m/min, per 5 giorni alla settimana per 8 settimane. Tutte le sessioni di esercizio sono state condotte tra le 9:00 e le 11:00. Prima dell'intervento, i topi sono stati abituati alla corsa su tapis roulant per 3 giorni a 6 m/min per 5 min/giorno con un'inclinazione dello 0°. Ogni sessione di esercizio includeva un riscaldamento di 5 min a 6 m/min e un defaticamento di 5 min a 6 m/min. È stato utilizzato un leggero stimolo meccanico per incoraggiare la corsa, mentre non è stata applicata alcuna stimolazione elettrica.
La durata della corsa giornaliera è stata di 20 min nella settimana 1, 25 min nella settimana 2, 30 min nella settimana 3, 35 min nella settimana 4, 40 min nella settimana 5, 45 min nella settimana 6 e 50 min nelle settimane 7–8. I topi del gruppo di controllo e quelli con DM sono stati posizionati su tapis roulant fermi per durate equivalenti, al fine di controllare l'effetto del manipolamento e dell'esposizione ambientale. Un criterio predefinito di esclusione era rappresentato dal mancato completamento di oltre l'80% delle sessioni di esercizio prescritte. Nessun animale ha soddisfatto tale criterio; tutti gli animali hanno completato le sessioni di esercizio previste e non sono stati osservati eventi avversi.
Raccolta del campione
Dodici ore dopo l'ultima sessione di esercizio, i topi sono stati sottoposti a digiuno per 6 h e anestetizzati mediante inalazione di isoflurano (3% per l'induzione e 1,5–2% per il mantenimento in O₂ al 100% a 1 L/min). Sono stati prelevati circa 500 µL di sangue dal plesso venoso retro-orbitale, lasciati coagulare a temperatura ambiente per 30 min e centrifugati a 3.000 × g per 15 min a 4 °C. Il siero ottenuto è stato conservato a −80 °C.
I topi sono stati successivamente sottoposti a eutanasia mediante dislocazione cervicale sotto anestesia profonda. I cuori sono stati rapidamente escissi e lavati con soluzione salina tamponata al fosfato (PBS) fredda con ghiaccio. È stato isolato il tessuto del ventricolo sinistro; una porzione è stata congelata rapidamente in azoto liquido e conservata a −80 °C per l'estrazione dell'RNA, mentre il tessuto rimanente è stato fissato in paraformaldeide al 4%. È stato raccolto circa 1 cm di tessuto colico distale, lavato con PBS, congelato rapidamente e conservato a −80 °C. Campioni freschi di feci sono stati raccolti direttamente dal retto tra le 9:00 e le 10:00 per minimizzare la contaminazione della gabbia, trasferiti in provette sterili e conservati a −80 °C entro 15 minuti dalla raccolta.
Misurazioni biochimiche del siero
Il livello di glucosio nel sangue a digiuno (FBG) è stato misurato mediante un sistema di misurazione della glicemia. L'insulina sierica è stata determinata mediante saggio immunoenzimatico (ELISA), mentre colesterolo totale e trigliceridi sono stati misurati utilizzando un analizzatore biochimico automatico. La resistenza all'insulina è stata calcolata mediante il modello valutativo dell'omeostasi: HOMA-IR = FBG (mmol/L) × insulina (mIU/L)/22,5.
Estrazione dell'RNA e PCR quantitativa in tempo reale da tessuto miocardico
Circa 30 mg di tessuto del ventricolo sinistro sono stati omogeneizzati in un reagente per l'estrazione dell'RNA a base di fenolo-guanidinio, ed è stato estratto l'RNA totale seguendo il protocollo del reagente. La concentrazione e la purezza dell'RNA sono state valutate mediante spettrofotometria, considerando accettabile un rapporto A260/A280 compreso tra 1,8 e 2,0. L'RNA totale (1 µg) è stato retrotrascritto in DNA complementare (cDNA).
La PCR quantitativa (qPCR) è stata eseguita in un volume di reazione di 20 µL contenente una miscela master qPCR con colorante fluorescente per il DNA, 0,4 µmol/L di primer diretto e inverso ciascuno e 2 µL di cDNA come stampo. Le condizioni di amplificazione prevedevano un'attivazione iniziale a 95 °C per 30 s, seguita da 40 cicli di 95 °C per 5 s e 60 °C per 34 s. L'analisi della curva di denaturazione è stata effettuata nell'intervallo di temperatura compreso tra 65 e 95 °C per verificare la specificità dell'amplificazione. Tutte le reazioni sono state eseguite in duplicato e sono stati inclusi controlli senza stampo e senza trascrittasi inversa. Le efficienze di amplificazione per tutte le coppie di primer variavano tra il 90% e il 105%. I primer per Tnfa, Il1b, Tgfb1, Col1a1, Nlrp3 e Gapdh sono elencati nella Tabella 1. L'espressione genica relativa è stata calcolata utilizzando il metodo 2−ΔΔCt ed espressa come variazione di fold rispetto al gruppo Controllo.
Estrazione del DNA del microbiota fecale e quantificazione mediante qPCR
Il DNA microbico totale è stato estratto da campioni fecali utilizzando un protocollo di estrazione del DNA da feci. Le abbondanze relative di sei taxa batterici selezionati — Faecalibacterium prausnitzii, Akkermansia muciniphila, genere Lactobacillus, genere Bifidobacterium, Escherichia coli e genere Desulfovibrio — sono state determinate mediante qPCR utilizzando primer specifici per ciascun taxon elencati nella Tabella 1. I primer universali per l'RNA ribosomiale 16S batterico sono stati utilizzati come riferimento per l'abbondanza batterica totale.
L'abbondanza relativa è stata calcolata utilizzando il metodo 2−ΔΔCt con l'RNA ribosomiale 16S batterico totale come riferimento ed è stata normalizzata rispetto al gruppo Controllo. Sono state generate curve standard per ogni bersaglio mediante diluizioni seriali di DNA plasmidico a concentrazioni note per verificare l'efficienza dell'amplificazione. Tutte le reazioni sono state eseguite in duplicato con analisi della curva di denaturazione. Poiché i taxa batterici differiscono nel numero di copie del gene dell'RNA 16S, i risultati sono stati riportati come abbondanza relativa 2−ΔΔCt piuttosto che come numero assoluto di copie.
Valutazione dell'espressione di Occludina nel colon
Circa 30 mg di tessuto colonico sono stati processati per l'estrazione totale di RNA e la sintesi di cDNA come descritto in precedenza. L'espressione di mRNA di Occludin è stata misurata mediante qPCR utilizzando i seguenti primer: forward, 5′-GTCGAATGTCTTTGCTGGTGGT-3′; reverse, 5′-GCAGCAGCCATGTACTCTTCAC-3′. Gapdh è stato utilizzato come riferimento interno e l'espressione relativa è stata calcolata con il metodo 2−ΔΔCt.
Analisi statistica
I dati sono stati presentati come media ± deviazione standard (SD). La normalità è stata valutata mediante il test di Shapiro-Wilk e l'omogeneità della varianza mediante il test di Levene. I dati tra gruppi che soddisfacevano le assunzioni parametriche sono stati analizzati mediante analisi della varianza unidirezionale (ANOVA), seguita dal test di Tukey per la differenza significativa onesta (HSD) per confronti a coppie post hoc. I confronti tra due gruppi sono stati effettuati utilizzando un test t di Student non appaiato a due code.
È stato utilizzato il coefficiente di correlazione dei ranghi di Spearman per valutare le associazioni tra le variabili. Per la mappa termica di correlazione, sono state calcolate le correlazioni parziali di Spearman, controllando per il gruppo sperimentale. I valori P sono stati corretti per confronti multipli mediante la procedura di Benjamini-Hochberg per il tasso di scoperta di falsi positivi (FDR), e un valore di P corretto per FDR < 0,05 è stato considerato statisticamente significativo. Le dimensioni dell'effetto (Cohen's f per l'ANOVA e r per le correlazioni) e gli intervalli di confidenza al 95% per le differenze medie principali sono stati riportati laddove applicabili. Tutte le analisi statistiche sono state eseguite utilizzando un software di analisi statistica (versione 4.2.0).
Risultati
L'esercizio su tapis roulant è stato associato al miglioramento di anomalie metaboliche nei topi diabetici
Rispetto al gruppo di controllo, i topi diabetici hanno mostrato valori significativamente più elevati di glicemia a digiuno (18,23 ± 0,61 contro 6,03 ± 0,21 mmol/L, P < 0,001), insulina sierica (16,30 ± 1,04 contro 8,23 ± 0,38 mIU/L, P < 0,001), HOMA-IR (13,19 ± 1,18 contro 2,21 ± 0,17, P < 0,001), colesterolo totale (4,62 ± 0,23 contro 2,01 ± 0,09 mmol/L, P < 0,001) e trigliceridi (2,12 ± 0,15 contro 0,80 ± 0,08 mmol/L, P < 0,001). Dopo l'intervento di esercizio su tapis roulant della durata di 8 settimane, questi parametri si sono ridotti rispettivamente a 12,03 ± 0,63 mmol/L, 10,61 ± 0,71 mIU/L, 5,69 ± 0,67, 3,09 ± 0,24 mmol/L e 1,20 ± 0,14 mmol/L, rispetto ai topi diabetici (P < 0,01 o P < 0,001); tuttavia, la maggior parte dei valori è rimasta più alta rispetto a quelli del gruppo di controllo (Figura 1A–E). L'analisi della varianza ad un criterio di classificazione ha evidenziato effetti significativi del gruppo per tutti i parametri (tutti F(2,27) > 25,0, P < 0,001).
L'allenamento fisico è stato associato a un'espressione più elevata di mRNA di Occludina nel colon e a un'espressione genica più bassa correlata all'inflammasoma cardiaco
Nei topi diabetici, l'espressione dell'mRNA di Occludin nel colon era circa il 62% inferiore rispetto al gruppo di controllo (0,38 ± 0,04 vs. 1,00 ± 0,06, P < 0,001). Contestualmente, l'espressione cardiaca degli mRNA di Nlrp3, Il1b e Tnfa è aumentata rispettivamente di 5,6, 6,5 e 5,1 volte rispetto ai valori del controllo (tutti P < 0,001). Dopo l'intervento di esercizio fisico, l'espressione dell'mRNA di Occludin è aumentata a 0,79 ± 0,05 (P < 0,001 rispetto ai topi diabetici), mentre l'espressione degli mRNA di Nlrp3, Il1b e Tnfa è diminuita rispettivamente a 2,30 ± 0,21, 2,66 ± 0,25 e 2,14 ± 0,17 (tutti P < 0,001 rispetto ai topi diabetici; Figura 2A–D).
L'esercizio fisico è stato associato a una minore espressione genica legata alla fibrosi e all'apoptosi miocardica
Il gruppo diabetico ha mostrato un'espressione cardiaca aumentata dei geni associati alla fibrosi Col1a1 (4,46 ± 0,29 volte, P < 0,001) e Tgfb1 (4,17 ± 0,24 volte, P < 0,001), insieme a un rapporto mRNA Bax/Bcl2 più elevato (3,06 ± 0,19, P < 0,001) rispetto al gruppo di controllo. Dopo l'allenamento fisico, l'espressione mRNA di Col1a1 e Tgfb1 è diminuita rispettivamente a 2,02 ± 0,16 e 1,92 ± 0,16 (entrambi P < 0,001 rispetto ai topi diabetici), e il rapporto mRNA Bax/Bcl2 si è ridotto a 1,48 ± 0,10 (P < 0,001 rispetto ai topi diabetici; Figura 3A–C).
L'esercizio fisico è stato associato a cambiamenti in alcuni taxa microbici intestinali selezionati nei topi diabetici
Rispetto al gruppo di controllo, i topi diabetici hanno mostrato abbondanze relative significativamente più basse di quattro taxa batterici selezionati: F. prausnitzii (0,25 ± 0,03 vs. 1,01 ± 0,07), A. muciniphila (0,31 ± 0,04 vs. 1,00 ± 0,06), Lactobacillus (0,48 ± 0,05 vs. 0,99 ± 0,04) e Bifidobacterium (0,56 ± 0,06 vs. 1,00 ± 0,06; tutti P < 0,001). Al contrario, le abbondanze relative di E. coli (3,84 ± 0,33 vs. 0,99 ± 0,08) e Desulfovibrio (3,07 ± 0,26 vs. 0,99 ± 0,07) erano significativamente più elevate (entrambe P < 0,001). L'intervento con esercizio fisico è stato associato a un aumento significativo delle abbondanze relative di F. prausnitzii, A. muciniphila, Lactobacillus e Bifidobacterium (P < 0,01 o P < 0,001), con A. muciniphila che ha raggiunto un valore di 0,84 ± 0,07. Contestualmente, le abbondanze relative di E. coli e Desulfovibrio sono diminuite rispettivamente a 1,68 ± 0,13 e 1,52 ± 0,08 (entrambe P < 0,001 rispetto ai topi diabetici; Figura 4A–F).
Alterazioni microbiche selezionate sono state correlate all'espressione genica cardiaca e colonica
È stata eseguita un'analisi della correlazione di Spearman per valutare le associazioni tra le abbondanze relative di determinati taxa microbici e i marcatori di espressione genica nei tessuti cardiaci e colici (Figura 5A). L'abbondanza relativa di A. muciniphila è risultata negativamente correlata all'mRNA cardiaco di Nlrp3 (R = −0,81, P = 0,0046) e di Tnfa (R = −0,80, P = 0,0054). L'abbondanza relativa di E. coli è risultata positivamente correlata all'espressione di mRNA di Occludin nel colon (R = 0,66, P = 0,036; Figura 5B–D). Questi risultati hanno evidenziato associazioni tra determinati taxa microbici intestinali e marcatori trascrizionali cardiaci e colici, ma non hanno stabilito relazioni causali.
DISPONIBILITÀ DEI DATI:
I set di dati generati e/o analizzati durante lo studio attuale sono disponibili presso l'autore corrispondente su richiesta ragionevole.
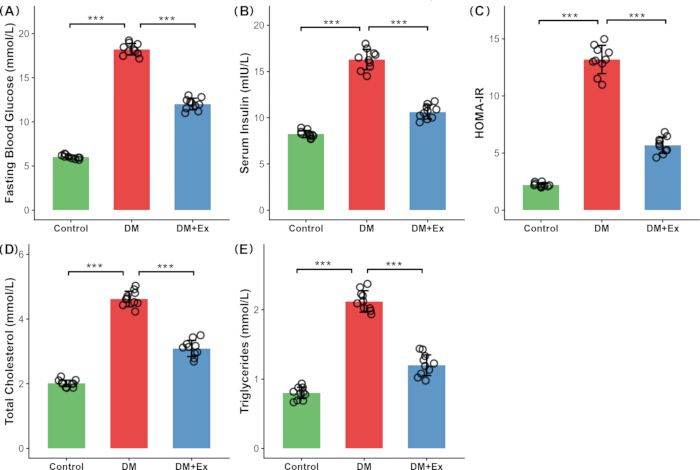
Figura 1: Effetti dell'esercizio su tapis roulant sui parametri metabolici nei topi diabetici. (A) Glicemia a digiuno. (B) Insulina sierica. (C) HOMA-IR. (D) Colesterolo totale. (E) Trigliceridi nei gruppi Controllo, DM e DM+Ex. I dati sono espressi come media ± DS (n = 10 per gruppo), con i singoli punti dati sovrapposti a ciascuna barra. Il confronto tra i gruppi è stato effettuato mediante ANOVA a un fattore seguita dal test post hoc di Tukey. *P < 0,05, **P < 0,01, ***P < 0,001; ns = non significativo. Abbreviazioni: DM = modello di diabete; Ex = esercizio; HOMA-IR = valutazione del modello omeostatico della resistenza all'insulina; DS = deviazione standard. Cliccare qui per visualizzare una versione ingrandita di questa figura.
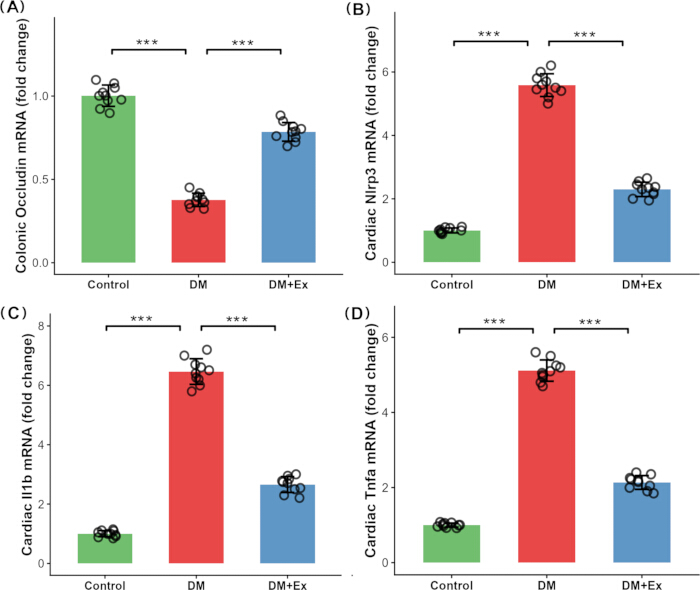
Figura 2: Effetti dell'esercizio su tapis roulant sull'espressione genica legata alla barriera intestinale e all'inflammasoma cardiaco nei topi diabetici. (A) Espressione relativa dell'mRNA di Occludin nel colon. (B) Espressione relativa dell'mRNA di Nlrp3 nel cuore. (C) Espressione relativa dell'mRNA di Il1b nel cuore. (D) Espressione relativa dell'mRNA di Tnfa nel cuore. L'espressione genica è stata normalizzata rispetto a Gapdh ed espressa come variazione di fold rispetto al gruppo Controllo. I dati sono presentati come media ± DS (n = 10 per gruppo). *P < 0,05, **P < 0,01, ***P < 0,001. Abbreviazioni: IL-1β = interleuchina-1β; TNF-α = fattore di necrosi tumorale-α; DS = deviazione standard. Cliccare qui per visualizzare una versione ingrandita di questa figura.
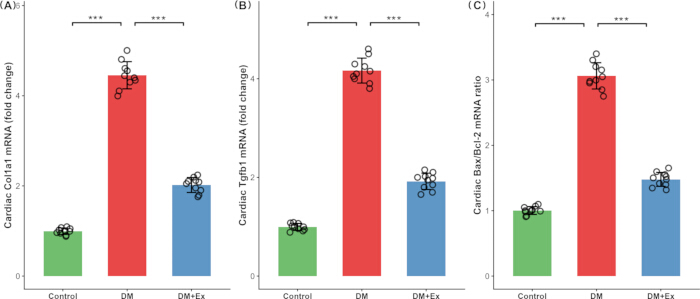
Figura 3Effetti dell'esercizio su tapis roulant sull'espressione genica legata alla fibrosi miocardica e all'apoptosi in topi diabetici. (A) Cardiaco relativo Col1a1 espressione dell'mRNA.B) Cardiaco relativo Tgfb1 espressione di mRNA.C) Bax/Bcl2 rapporto di mRNA. L'espressione genica è stata normalizzata a Gapdh e espressi come variazione di fold rispetto al gruppo di controllo. Il Bax/Bcl2 il rapporto è stato calcolato a partire dai valori di espressione relativa dell'mRNA. I dati sono presentati come media ± SD (n = 10 per gruppo), con i singoli punti dati sovrapposti a ciascuna barra. *P < 0.05, **P < 0.01, ***P < 0,001. Abbreviazioni: Col1a1 = collagene di tipo I alfa 1; Tgfb1 = fattore di crescita trasformante-betaβ1; Bax = proteina associata a BCL2 di tipo X; Bcl2 = linfoma delle cellule B 2; DS = deviazione standard. Cliccare qui per visualizzare una versione ingrandita di questa figura.
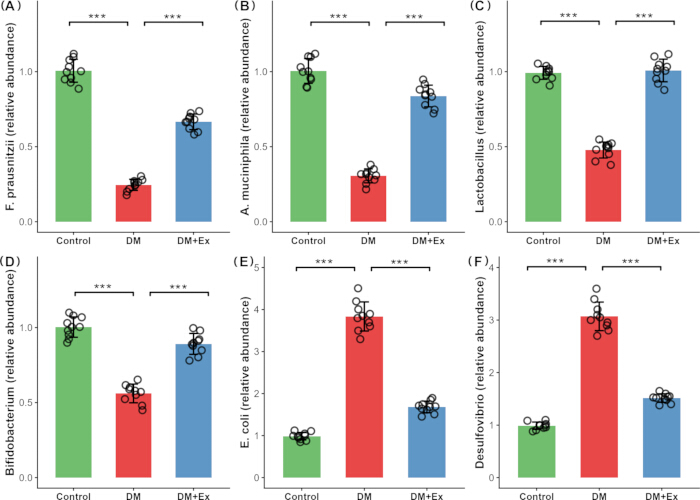
Figura 4: Effetti dell'esercizio su tapis roulant sulle abbondanze relative di alcuni taxa microbici intestinali selezionati nei topi diabetici. (A) Faecalibacterium prausnitzii. (B) Akkermansia muciniphila. (C) Lactobacillus. (D) Bifidobacterium. (E) Escherichia coli. (F) Desulfovibrio. Le abbondanze relative sono state determinate mediante qPCR utilizzando bersagli specifici per il taxon nell'rRNA 16S rispetto all'rRNA 16S batterico totale e normalizzate rispetto al gruppo Controllo. I dati sono espressi come media ± DS (n = 10 per gruppo). *P < 0,05, **P < 0,01, ***P < 0,001. Abbreviazione: DS = deviazione standard. Cliccare qui per visualizzare una versione ingrandita di questa figura.
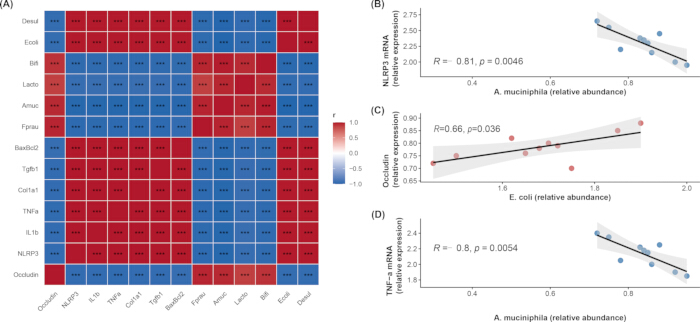
Figura 5: Analisi di correlazione tra i taxa microbici intestinali selezionati e i parametri di espressione genica cardiaca e colonica. (A) Mappa termica che mostra i coefficienti di correlazione di Spearman tra i taxa batterici selezionati e l'mRNA colonic di Occludin, gli mRNA cardiaci di Nlrp3, Il1b e Tnfa, gli mRNA di Col1a1 e Tgfb1 e il rapporto tra mRNA Bax/Bcl2. Le correlazioni sono state calcolate utilizzando i dati dei tre gruppi (n = 30) come correlazioni parziali di Spearman, correggendo per il gruppo sperimentale. La scala cromatica varia dal blu, che indica correlazioni negative, al rosso, che indica correlazioni positive. Gli asterischi all'interno della mappa termica indicano la significatività dopo la correzione FDR (*P < 0,05, **P < 0,01, ***P < 0,001). (B) Correlazione tra l'abbondanza relativa di A. muciniphila e l'espressione di mRNA di Nlrp3 cardiaco nel gruppo DM+Ex. (C) Correlazione tra l'abbondanza relativa di E. coli e l'espressione di mRNA di Occludin colonic nel gruppo DM+Ex. (D) Correlazione tra l'abbondanza relativa di A. muciniphila e l'espressione di mRNA di Tnfa cardiaco nel gruppo DM+Ex. Ogni punto rappresenta un singolo topo. Sono mostrate linee di regressione lineare e intervalli di confidenza al 95% per facilitare la visualizzazione. Abbreviazioni: DM = modello di diabete; Ex = esercizio; FDR = false discovery rate. Cliccare qui per visualizzare una versione ingrandita di questa figura.
| Gene/Microbo | Primer Diretto | Primer Inverso |
| Tnfa | CCCTCACACTCAGATCATCTTCT | GCTACGACGTGGGCTACAG |
| Il1b | GCAACTGTTCCTGAACTCAACT | ATCTTTTGGGGTCCGTCAACT |
| Tgfb1 | CTCCCGTGGCTTCTAGTGC | GCCTTAGTTTGGACAGGATCTG |
| Col1a1 | GCTCCTCTTAGGGGCCACT | CCACGTCTCACCATTGGGG |
| Bax | AGACAGGGGCCTTTTTGCTAC | AATTCGCCGGAGACACTCG |
| Bcl2 | GCTACCGTCGTGACTTCGC | CCCCACCGAACTCAAAGAAGG |
| Nlrp3 | GTGAGCCCACACCACAGTTC | GACGTTCACCTCGCAGATGA |
| Gapdh | AGGTCGGTGTGAACGGATTTG | TGTAGACCATGTAGTTGAGGTCA |
| Batteri totali (16S rRNA) | ACTCCTACGGGAGGCAGCAG | ATTACCGCGGCTGCTGG |
| F. prausnitzii | GGAGGAAGAAGGTCTTCGG | AATTCCGCCTACCTCTGCACT |
| A. muciniphila | CAGCACGTGAAGGTGGGGAC | CCTTGCGGTTGGCTTCAGAT |
| Lactobacillus | AGCAGTAGGGAATCTTCCA | ATTYCACCGCTACACATG |
| Bifidobacterium | TCGCGTCCGGTGTGAAAG | CCACATCCAGCATCCAC |
| E. coli | AGGCCTTCGGGTTGTAAAGT | GTTAGCCGGTGCTTCTTCTG |
| Desulfovibrio | CCGTAGATATCTGGAGGAACATCAG | ACATCTAGCATCCATCGTTTACAGC |
Tabella 1: Sequenze dei primer utilizzate per la PCR quantitativa in tempo reale.
Discussione
Nel presente studio, è stato utilizzato un modello murino di diabete indotto da una dieta ricca di grassi combinata con una bassa dose di STZ per valutare le alterazioni metaboliche, intestinali, cardiache e microbiche associate all'esercizio fisico. Otto settimane di esercizio su tapis roulant sono state associate a un miglioramento dei parametri metabolici, a un'espressione più elevata di mRNA di Occludina nel colon, a una minore espressione genica cardiaca correlata all'inflammasoma Nlrp3 e a una riduzione dell'espressione genica legata all'infiammazione miocardica, alla fibrosi e all'apoptosi. L'esercizio è stato inoltre associato a modifiche nelle abbondanze relative di alcuni taxa microbici intestinali selezionati. Nel complesso, questi risultati suggeriscono che le alterazioni trascrizionali cardiache associate all'esercizio potrebbero essere correlate a modifiche nell'espressione genica legata alla barriera intestinale e a specifici taxa microbici intestinali, sebbene non sia stata stabilita una relazione di causalità.
Come previsto per il modello di diabete, i topi hanno sviluppato gravi alterazioni metaboliche, tra cui iperglicemia, iperinsulinemia, resistenza all'insulina e dislipidemia, in accordo con il paradigma patologico ben consolidato16,17. Il regime di esercizio della durata di 8 settimane è stato associato a una riduzione di circa il 34% della glicemia a digiuno e del 57% dell'HOMA-IR, indicando un miglioramento parziale della resistenza all'insulina. A livello miocardico, l'esercizio è stato associato a una riduzione del 40%–60% dell'espressione di marcatori mRNA proinfiammatori (Tnfa, Il1b), profibrotici (Tgfb1, Col1a1) e legati all'apoptosi (Bax/Bcl2), risultati coerenti con studi precedenti che associano l'esercizio aerobico all'attivazione della AMPK e all'inibizione della NF-κB18,19. Tuttavia, nessuno di questi parametri è tornato ai livelli del gruppo di controllo, indicando che l'intervento di 8 settimane non è stato sufficiente a normalizzare il fenotipo trascrizionale associato al diabete ormai consolidato, fenomeno che potrebbe essere legato a persistenti effetti di memoria glicemica20.
Colonica Ocludina L'espressione dell'mRNA era circa il 62% più bassa nei topi diabetici, suggerendo una ridotta espressione genica associata alla barriera intestinale. Contestualmente, cardiaco Nlrp3, Il1b, e Tnfa L'espressione dell'mRNA è aumentata rispettivamente di 5,6 volte, 6,5 volte e 5,1 volte. L'inflammasoma NLRP3 è un sensore importante del sistema immunitario innato ed è implicato nella patologia cardiaca diabetica. L'iperglicemia può aumentare il miocardio Nlrp3 espressione genica attraverso le vie delle specie reattive dell'ossigeno (ROS) e della proteina interagente con la tioredoxina (TXNIP), con effetti successivi su IL-1β- e segnalazione infiammatoria correlata a IL-1821,22. È stato inoltre descritto un aumento della traslocazione sistemica del lipopolisaccaride (LPS), secondaria alla compromissione della barriera intestinale, come stimolo iniziale per il priming del NLRP323. LPS può aumentare Nlrp3 e pro-Il1b espressione attraverso la via TLR4/MyD88/NF-κasse di segnalazione B, fornendo il primo segnale necessario per il priming dell'inflammasoma24. Nel presente modello diabetico, è stata osservata una maggiore abbondanza relativa di E. coli, insieme a una ridotta abbondanza colica Ocludina espressione di mRNA e aumento dell'espressione genica legata all'inflammasoma cardiaco. Questi cambiamenti paralleli sono compatibili con un possibile percorso infiammatorio associato all'intestino, ma non dimostrano un'aumentata traslocazione di LPS o un meccanismo causale tra intestino e cuore.
L'intervento di esercizio è stato associato a un aumento dell'espressione di mRNA di Occludin nel colon fino a circa il 79% del valore del Controllo, mentre l'espressione di mRNA di Nlrp3, Il1b e Tnfa nel cuore è diminuita rispettivamente a circa 2,3-, 2,7- e 2,1-volte i valori del Controllo. Questi risultati indicano un'associazione tra un'espressione più elevata di geni legati alla barriera intestinale e una minore espressione di geni infiammatori cardiaci dopo l'esercizio. Studi precedenti hanno ipotizzato che l'esercizio possa sostenere la funzione della barriera intestinale attraverso un aumento della produzione di muco, la regolazione delle proteine delle giunzioni strette e un miglioramento della perfusione intestinale25,26,27,28. Tuttavia, i dati attuali si sono limitati alle misurazioni dell'mRNA e pertanto non hanno confermato questi meccanismi funzionali.
L'analisi mirata della microbiota intestinale ha mostrato che l'esercizio fisico era associato a un'inversione parziale dei cambiamenti legati al diabete nelle abbondanze relative di alcuni taxa selezionati, in particolare un aumento di A. muciniphila e una diminuzione di E. coli. Questi cambiamenti reciproci sono coerenti con le associazioni precedentemente descritte tra questi taxa e i processi di mantenimento della barriera e legati all'endotossina29,30,31. Tuttavia, poiché sono stati quantificati solo alcuni taxa selezionati, i risultati devono essere interpretati come cambiamenti associati all'esercizio nelle abbondanze relative di batteri specifici, piuttosto che come una rimodellazione completa della microbiota intestinale.
L'analisi di correlazione ha inoltre identificato associazioni tra determinati taxa microbici e marcatori trascrizionali. Nel gruppo sottoposto all'intervento di esercizio fisico, l'abbondanza di A. muciniphila era negativamente correlata all'espressione cardiaca di Nlrp3 (R = −0.81, P = 0.0046) e di Tnfa (R = −0.80, P = 0.0054) a livello di mRNA. Al contrario, l'abbondanza di E. coli era positivamente correlata all'espressione di mRNA di Occludin nel colon (R = 0.66, P = 0.036; Figura 5C). L'associazione positiva tra E. coli e l'mRNA di Occludin contrasta con l'ipotesi iniziale e indica che la relazione tra determinati taxa microbici intestinali e l'espressione genica legata alla barriera intestinale non è spiegata da un semplice modello lineare. Queste correlazioni sono coerenti con le associazioni osservate tra esercizio fisico, taxa microbici selezionati e marcatori trascrizionali dell'ospite, ma non dimostrano un rapporto di causalità. Evidenze precedenti hanno mostrato che la riduzione di A. muciniphila può aumentare la permeabilità intestinale e l'endotossiemia metabolica32, insieme ad altre evidenze che implicano NLRP3 nella patologia cardiaca diabetica33, fornendo un contesto biologico a queste associazioni. Tuttavia, lo studio attuale non ha dimostrato direttamente che l'aumento di A. muciniphila potenzi la funzione della barriera muccosa, riduca la traslocazione di LPS o attenui l'infiammazione cardiaca mediata da TLR4/NLRP3.
Lo studio presentava diversi limiti. In primo luogo, per quantificare sei taxa batterici rappresentativi è stato utilizzato un qPCR mirato sul rRNA 16S anziché il sequenziamento degli ampliconi 16S o il sequenziamento metagenomico. Di conseguenza, non è stata ottenuta una valutazione completa della struttura della comunità microbica intestinale e della sua capacità funzionale, e non è stato possibile valutare modifiche più ampie della comunità o percorsi funzionali. I risultati sono stati quindi descritti come variazioni nelle abbondanze relative di taxa selezionati piuttosto che come rimodellamento della microbiota intestinale. In secondo luogo, i livelli circolanti di LPS, le concentrazioni plasmatiche di SCFA e la permeabilità intestinale non sono stati misurati direttamente, limitando così l'interpretazione meccanicistica. In terzo luogo, lo studio si è basato principalmente sui dati di espressione dell'mRNA. Non sono state eseguite validazioni a livello proteico e funzionale per quanto riguarda l'integrità della barriera, l'attivazione dell'inflammasoma, la fibrosi e l'apoptosi. Di conseguenza, le conclusioni si sono limitate a modifiche trascrizionali e non hanno stabilito effetti funzionali o a livello proteico. In quarto luogo, è stato esaminato un solo regime di intensità e durata dell'esercizio, limitando le conclusioni riguardo a una prescrizione ottimale di esercizio per le modifiche trascrizionali cardiache associate al diabete. In quinto luogo, sono stati studiati solo topi maschi, e i risultati potrebbero non essere generalizzabili alle femmine. In sesto luogo, l'assenza di un gruppo di controllo sano sottoposto a esercizio ha limitato la capacità di distinguere le risposte specifiche del diabete dagli effetti fisiologici dell'esercizio. In settimo luogo, non sono state eseguite ecocardiografia e istopatologia cardiaca; pertanto, il modello è stato descritto come un modello di topo diabetico piuttosto che come un modello confermato di cardiomiopatia diabetica, e tutti i risultati cardiaci si sono limitati a modifiche trascrizionali. Infine, alcune correlazioni osservate potrebbero riflettere una separazione tra gruppi piuttosto che relazioni biologiche all'interno dei gruppi, anche se è stata utilizzata un'analisi di correlazione parziale corretta per gruppo al fine di ridurre questa preoccupazione.
In sintesi, 8 settimane di esercizio su tapis roulant si sono associate a un miglioramento metabolico e a cambiamenti trascrizionali cardiaci e colici nei topi diabetici. Questi cambiamenti si sono verificati insieme a variazioni nelle abbondanze relative di determinati taxa microbici intestinali, in particolare aumenti di A. muciniphila e diminuzioni di E. coli. Le associazioni osservate sostengono ulteriori indagini sulle relazioni tra esercizio fisico, specifici taxa microbici intestinali, espressione genica legata alla barriera intestinale e trascrizione legata all'inflammasoma cardiaco. Studi futuri che includano un profilo più ampio del microbioma, la quantificazione degli SCFA, saggi sulla permeabilità intestinale e validazioni a livello proteico o istologico saranno necessari per verificare i meccanismi proposti e stabilire la causalità. Ulteriori studi d'intervento che utilizzino il trapianto di microbiota fecale, l'integrazione con A. muciniphila o l'inibizione di NLRP3 saranno necessari per determinare se le associazioni osservate riflettono percorsi causali.
Dichiarazioni
Gli autori dichiarano di non avere interessi finanziari in conflitto o relazioni personali che potrebbero aver influenzato il lavoro descritto in questo articolo. Nessun strumento di intelligenza artificiale è stato utilizzato nella preparazione di questo manoscritto o delle figure.
CONTRIBUTI DEGLI AUTORI:
H.H. e G.Z. hanno ideato e progettato lo studio. H.H., G.Z. e Y.X. hanno eseguito gli esperimenti sugli animali e il prelievo dei campioni. H.H. e G.Z. hanno condotto gli esperimenti di biologia molecolare e acquisito i dati. H.H. e Y.X. hanno effettuato l'analisi statistica. H.H. ha redatto il manoscritto. H.W. ha revisionato criticamente il manoscritto per importanti contenuti intellettuali. Tutti gli autori hanno letto e approvato il manoscritto finale
Ringraziamenti
Questa ricerca non ha ricevuto alcun contributo specifico da agenzie di finanziamento nei settori pubblico, commerciale o senza scopo di lucro.
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| Glucometro Accu-Chek e strisce reattive | Roche | Accu-Chek Active | Utilizzato per la misurazione della glicemia a digiuno |
| Analizzatore biochimico automatico | Hitachi | 7180 | Utilizzato per le misurazioni biochimiche del siero |
| Topi C57BL/6J (maschi, 8 settimane) | Beijing Vital River Laboratory Animal Technology Co., Ltd. | SCXK (Beijing) 2021-0006 | Animali sperimentali utilizzati per stabilire il modello murino di diabete |
| Tampone citrato (0,1 mol/L, pH 4,5) | Sigma-Aldrich | C8532 | Utilizzato per la preparazione della soluzione di streptozotocina |
| Kit per saggio immunoenzimatico (ELISA) per insulina murina | Wuhan HuaMei Biotech | CSB-E05070m | Utilizzato per la misurazione dell'insulina sierica |
| Dieta iperlipidica (60% kcal da grassi) | Research Diets | D12492 | Utilizzata per l'induzione e il mantenimento del modello di diabete |
| Isoflurano | RWD Life Science | R510-22-10 | Utilizzato per l'anestesia per inalazione |
| Microcentrifuga | Eppendorf | 5424 R | Utilizzata per la centrifugazione dei campioni |
| Spettrofotometro NanoDrop 2000 | Thermo Fisher Scientific | ND-2000 | Utilizzato per valutare concentrazione e purezza dell'RNA |
| Paraformaldeide (4%, in PBS) | Servicebio | G1101 | Utilizzata per la fissazione dei campioni tissutali |
| Soluzione salina tamponata al fosfato (PBS) | Servicebio | G0002 | Utilizzata per il lavaggio e il risciacquo dei campioni tissutali |
| Power SYBR Green PCR Master Mix | Applied Biosystems (Thermo Fisher) | 4367659 | Utilizzato per la PCR quantitativa in tempo reale |
| PrimeScript RT Reagent Kit (per qPCR) | TaKaRa (Takara Bio) | RR037A | Utilizzato per la trascrizione inversa dell'RNA in cDNA |
| QIAamp Fast DNA Stool Mini Kit | Qiagen | 51604 | Utilizzato per l'estrazione del DNA microbico da campioni fecali |
| Software R | R Foundation | 4.2.0 | Utilizzato per l'analisi statistica |
| Sistema di PCR in tempo reale (StepOnePlus) | Applied Biosystems (Thermo Fisher) | StepOnePlus | Utilizzato per l'amplificazione e il rilevamento PCR quantitativo in tempo reale |
| Streptozotocina (STZ) | Sigma-Aldrich | S0130 | Utilizzata insieme a una dieta iperlipidica per indurre il modello murino di diabete |
| Kit per saggio del Colesterolo Totale (TC) | Nanjing Jiancheng Bioengineering Institute | A111-1 | Utilizzato per la misurazione del colesterolo totale sierico |
| Tapis roulant (motorizzato, con controllo dell'inclinazione) | Zhongshi Dichuang (Beijing) | ZS-PT-1 | Utilizzato per l'intervento di esercizio sul tapis roulant |
| Kit per saggio dei Trigliceridi (TG) | Nanjing Jiancheng Bioengineering Institute | A110-1 | Utilizzato per la misurazione dei trigliceridi sierici |
| Reagente TRIzol | Invitrogen (Thermo Fisher) | 15596018 | Utilizzato per l'estrazione totale di RNA da campioni tissutali |
Riferimenti
- Lu Y, et al. Vascular complications of diabetes: A narrative review. Medicine. 2023;102(40):e35285.
- Nakamura K, et al. Pathophysiology and treatment of diabetic cardiomyopathy and heart failure in patients with diabetes mellitus. International Journal of Molecular Sciences. 2022;23(7):3587.
- Abdullah AR, et al. A comprehensive review on diabetic cardiomyopathy (DCM): histological spectrum, diagnosis, pathogenesis, and management with conventional treatments and natural compounds. Naunyn-Schmiedeberg's Archives of Pharmacology. 2025;398(8):9929-9969.
- Hassooni FRH, et al. Advances in diabetic cardiomyopathy: current and potential management strategies and emerging biomarkers. Annals of Medicine and Surgery. 2025;87(1):224-233.
- Zhong L, et al. Exercise and dietary interventions in the management of diabetic cardiomyopathy: mechanisms and implications. Cardiovascular Diabetology. 2025;24(1):159.
- Ma X, et al. Beneficial effects of different types of exercise on diabetic cardiomyopathy. Biomolecules. 2025;15(9):1223.
- Liu Y, et al. Decoding the gut microbiota-immune dialogue: from bidirectional axis to therapeutic applications. Journal of Nanobiotechnology. 2026;24(1):469.
- Du L, et al. Lipopolysaccharides derived from gram-negative bacterial pool of human gut microbiota promote inflammation and obesity development. International Reviews of Immunology. 2022;41(1):45-56.
- Alhamar G, et al. Toll like receptor 4: A potential link between obesity and metabolic diseases. Obesity Reviews. 2026;16:e70107.
- Wu R, et al. Desulfovibrio vulgaris exacerbates sepsis by inducing inflammation and oxidative stress in multiple organs. Frontiers in Microbiology. 2025;16:1574998.
- Mohammadi K, Zhang D, Saris EJ. Strain-specific effects of Desulfovibrio on neurodegeneration and oxidative stress in a Caenorhabditis elegans PD model. npj Parkinson's Disease. 2025;11(1):236.
- Abbate A, et al. Interleukin-1 and the inflammasome as therapeutic targets in cardiovascular disease. Circulation Research. 2020;126(9):1260-1280.
- Chauhan R, et al. Decoding the gut microbiota-mitochondrial-inflammasome axis in cardiovascular disease. Molecular and Cellular Biochemistry. 2026;481(3):1081-1101.
- Yu C, et al. Exercise remodels Akkermansia-associated eicosanoid metabolism to alleviate intestinal senescence: Multi-omics insights. Microorganisms. 2025;13(6):1379.
- Zhang Y, et al. Enhancing intestinal barrier efficiency: A novel metabolic diseases therapy. Frontiers in Nutrition. 2023;10:1120168.
- Evangelista I, et al. Molecular dysfunction and phenotypic derangement in diabetic cardiomyopathy. International Journal of Molecular Sciences. 2019;20(13):3264.
- Parim B, et al. Diabetic cardiomyopathy: molecular mechanisms, detrimental effects of conventional treatment, and beneficial effects of natural therapy. Heart Failure Reviews. 2019;24(2):279-299.
- Liu J, et al. The combination of exercise and metformin inhibits TGF-β1/Smad pathway to attenuate myocardial fibrosis in db/db mice by reducing NF-κB-mediated inflammatory response. Biomedicine & Pharmacotherapy. 2023;157:114080.
- Zhang X, et al. Exercise improves heart function after myocardial infarction: the merits of AMPK. Cardiovascular Drugs and Therapy. 2025;39(5):1153-1161.
- Berezin A. Metabolic memory phenomenon in diabetes mellitus: achieving and perspectives. Diabetes & Metabolic Syndrome: Clinical Research & Reviews. 2016;10(2):S176-S183.
- Date S, Bhatt LK. Exploring thioredoxin-interacting protein (TXNIP) as a therapeutic target for cardiovascular diseases. Archiv der Pharmazie. 2025;358(8):e70082.
- Zhang L, et al. NLRP3 inflammasome/pyroptosis: a key driving force in diabetic cardiomyopathy. International Journal of Molecular Sciences. 2022;23(18):10632.
- Tilg H, et al. The intestinal microbiota fuelling metabolic inflammation. Nature Reviews Immunology. 2020;20(1):40-54.
- Huang P, et al. TREM2 deficiency aggravates NLRP3 inflammasome activation and pyroptosis in MPTP-induced Parkinson's disease mice and LPS-induced BV2 cells. Molecular Neurobiology. 2024;61(5):2590-2605.
- Li T, et al. Six weeks of moderate-intensity treadmill exercise improves intestinal barrier and intestinal inflammation in Parkinson's disease mice. Molecular Neurobiology. 2025;62(8):10779-10791.
- He XQ, et al. Prevention of ulcerative colitis in mice by sweet tea (Lithocarpus litseifolius) via the regulation of gut microbiota and butyric-acid-mediated anti-inflammatory signaling. Nutrients. 2022;14(11):2208.
- Wang J, et al. Microbial short chain fatty acids: Effective histone deacetylase inhibitors in immune regulation. International Journal of Molecular Medicine. 2025;57(1):16.
- Deng F, et al. Intestinal ischemia/reperfusion injury: mechanisms, diagnosis, and therapeutic advances. International Journal of Biological Sciences. 2026;22(8):4059.
- Mo C, et al. The influence of Akkermansia muciniphila on intestinal barrier function. Gut Pathogens. 2024;16(1):41.
- Di Vincenzo F, et al. Gut microbiota, intestinal permeability, and systemic inflammation: a narrative review. Internal and Emergency Medicine. 2024;19(2):275-293.
- Birg A, Lin HC. The role of bacteria-derived hydrogen sulfide in multiple axes of disease. International Journal of Molecular Sciences. 2025;26(7):3340.
- Macchione IG, et al. Akkermansia muciniphila: key player in metabolic and gastrointestinal disorders. European Review for Medical and Pharmacological Sciences. 2019;23(18):8075-8083.
- Song S, et al. Sirtuin 3 deficiency exacerbates diabetic cardiomyopathy via necroptosis enhancement and NLRP3 activation. Acta Pharmacologica Sinica. 2021;42(2):230-241.