Questo studio descrive un protocollo per la quantificazione delle amine biogeniche nei cervelli di Drosophila mediante cromatografia liquida ad alte prestazioni abbinata a rilevamento elettrochimico (HPLC-ECD). Sfruttando la modificabilità genetica di Drosophila e l'HPLC-ECD, questo approccio può aiutare i ricercatori a chiarire i meccanismi molecolari e genetici alla base delle variazioni delle amine biogeniche nei disturbi cerebrali.
Articolo metodologico
Utilizzo della cromatografia liquida ad alte prestazioni per lo studio delle alterazioni nelle amine biogeniche in modelli di Drosophila di disturbi cerebrali
* These authors contributed equally
In questo articolo
Sommario
Abstract
Molte patologie neuropsichiatriche e neurodegenerative sono caratterizzate da alterazioni nei neurotrasmettitori cerebrali, inclusi cambiamenti nei livelli delle ammine biogeniche (AB) come la dopamina (DA) e la serotonina (5-idrossitriptamina; 5-HT), nonché nei loro rilascio o riassorbimento. Questi cambiamenti neurochimici si correlano con specifici fenotipi comportamentali chiave, come deficit locomotori, frammentazione del sonno e risposte allo stress alterate, tra gli altri. Poiché i principali sistemi di AB interagiscono tra loro, i modelli di malattia mostrano spesso spostamenti coordinati in più ammine piuttosto che variazioni isolate di un singolo neurotrasmettitore. Pertanto, una quantificazione accurata e simultanea di diverse AB è essenziale per interpretare i risultati comportamentali e genetici. Drosophila melanogaster offre un sistema facilmente manipolabile dal punto di vista genetico per modellare tali disturbi e le relative alterazioni dei neurotrasmettitori, ma le AB sono presenti nel tessuto cerebrale delle mosche a concentrazioni estremamente basse, nell'ordine dei nanomoli ai femtomoli, e le ridotte dimensioni del sistema nervoso centrale di Drosophila rendono la loro rilevazione tecnicamente complessa. Questo studio descrive un protocollo per rilevare e quantificare DA, 5-HT e octopamina nei cervelli di mosca mediante cromatografia liquida ad alte prestazioni abbinata a rilevazione elettrochimica (HPLC-ECD). L'HPLC-ECD è stata applicata per rilevare variazioni nei livelli cerebrali di DA e 5-HT in un modello di mosca della malattia di Parkinson basato sulla sovraespressione dopaminergica della alfa-sinucleina umana. L'applicazione di questo protocollo al modello di malattia di Parkinson con alfa-sinucleina rivela un aumento significativo della dopamina, ma livelli invariati di serotonina rispetto ai controlli, in accordo con meccanismi dopaminergici compensatori precoci. Questo approccio fornisce un metodo sensibile, a basso costo e facilmente accessibile per la quantificazione multiplex di AB a partire da quantità limitate di tessuto di Drosophila. Consente inoltre lo screening sistematico di modificatori genetici e di potenziali terapie mirate ai percorsi monoaminergici rilevanti per le patologie cerebrali umane.
Introduzione
I neurotrasmettitori monoamminici, noti anche come ammine biogeniche (AB), regolano diverse caratteristiche neurologiche e comportamentali fondamentali in vari taxa animali, tra cui gli stati motivazionali, il sonno, l'apprendimento, la memoria e la regolazione dell'umore1,2,3,4. La disregolazione delle AB, come la dopamina (DA) e la serotonina (5-idrossitriptamina; 5-HT), rappresenta un aspetto fondamentale dei disturbi neurodegenerativi come il morbo di Parkinson, nonché di disturbi psichiatrici come la schizofrenia3,5. Tuttavia, la relazione tra il decorso della malattia e specifici cambiamenti neurochimici nelle diverse regioni cerebrali e sottotipi neuronali non è ancora stata completamente mappata. La risposta a tali domande richiede un sistema modello che non solo sia geneticamente manipolabile, ma sia anche in grado di riprodurre fenotipi fisiologici e comportamentali rilevanti per la malattia. Drosophila melanogaster si è affermata come un sistema modello potente a tale scopo6,7. La mosca della frutta possiede popolazioni distinte e ben caratterizzate di neuroni dopaminergici e sierotoninergici7,8, nonché vie biosintetiche, trasportatori e famiglie di recettori che regolano questi sistemi ed è funzionalmente conservata rispetto ai corrispettivi mammiferi9. Tale conservazione fornisce una base meccanicistica per tradurre i risultati neurochimici ottenuti nella mosca al contesto più ampio delle malattie umane.
L'utilità dei drosofili per modellare disturbi neurologici e psichiatrici va ben oltre l'omologia genetica. In quanto sistema geneticamente manipolabile, gli strumenti disponibili nei drosofili permettono lo screening cellulare specifico di geni e vie di segnalazione, rivelando fattori che possono aggravare o invertire sintomi rilevanti per la malattia, facilitando così la scoperta di nuovi bersagli terapeutici10. Inoltre, i sistemi di espressione binaria possono indirizzare non solo specifici sottotipi neuronali monoaminergici, ma anche particolari finestre temporali di sviluppo11, offrendo così una notevole precisione spaziale e temporale. Il sistema modello del moscerino della frutta fornisce inoltre un repertorio di comportamenti quantificabili che possono essere utilizzati per valutare la riproduzione di sintomi rilevanti per la malattia e per testare strategie di intervento volte al loro recupero7. Ad esempio, modelli genetici ben consolidati della malattia di Parkinson nei drosofili includono animali portatori di mutazioni loss-of-function nei geni Pink1 e parkin, nonché drosofili che sovraesprimono versioni wild-type o con mutazioni puntiformi dell’α-sinucleina umana (α-sin), SNCA12,13,14. Tutti questi modelli mostrano alcuni dei tratti più importanti della malattia, tra cui deficit motori, degenerazione dei neuroni dopaminergici, disfunzione mitocondriale e aggregazione dell’α-sin nei drosofili che esprimono la sequenza umana15,16,17,18,19. D'altro canto, si ritiene che alterazioni dello sviluppo neurologico e un’alterata segnalazione dopaminergica siano tra le cause sottostanti di disturbi come la schizofrenia20. In linea con ciò, Drosophila è stata utilizzata per modellare sintomi simili alla schizofrenia, tra cui iperattività, modificata risposta sensoriale e ridotta eccitazione nei drosofili adulti21,22,23,24,25. Nel complesso, questi modelli dimostrano che Drosophila è in grado di riprodurre sia il decorso dei disturbi neurodegenerativi sia le origini dello sviluppo dei disturbi psichiatrici.
Associare i cambiamenti comportamentali nei modelli genetici ai cambiamenti neurochimici richiede misurazioni quantitative accurate e riproducibili delle amine biogene (BAs). Inoltre, in diverse patologie, la disregolazione delle monoammine non è limitata a un singolo sistema di neurotrasmettitori. Nei moscerini mutanti Pink1B9, il contenuto di serotonina è ridotto e l'attività del trasportatore della serotonina è compromessa ancor prima dell'insorgenza della disfunzione motoria26. Un intervento farmacologico precoce sul segnale serotoninergico impedisce la successiva perdita dei neuroni dopaminergici colpiti nei moscerini mutanti Pink1B9. I cambiamenti serotoninergici possono quindi precedere e contribuire causalmente alla patologia dopaminergica, un rapporto che rimarrebbe invisibile utilizzando soltanto test comportamentali o misurazioni di un singolo analita. Analogamente, alterazioni del sistema serotoninergico sono osservate in modelli di schizofrenia22,27,28. Inoltre, le principali amine biogene in Drosophila interagiscono in modo in parte ridondante e in parte antagonista, tale per cui lo stato di un sistema non è un indicatore affidabile degli altri29. Pertanto, la quantificazione delle singole amine biogene in questi modelli è fondamentale.
Le amine biogeniche sono monoammine elettrochimicamente attive (ad esempio, catecolammine, indolammine) presenti in concentrazioni che vanno dal nanomolare al femtomolare nei tessuti biologici, rendendo la loro rilevazione simultanea tecnicamente complessa30,31. Pertanto, affrontare domande riguardo alla base genetica e molecolare delle variazioni delle amine biogeniche in condizioni patologiche richiede un metodo analitico in grado di risolvere molteplici ammine strutturalmente simili. Tale metodo deve inoltre essere in grado di rilevare concentrazioni biologicamente rilevanti in piccoli volumi di tessuto ottenibili da preparazioni del sistema nervoso centrale di Drosophila. La cromatografia liquida ad alte prestazioni (HPLC) abbinata a rilevamento elettrochimico (ECD) soddisfa questi requisiti. L'HPLC è una tecnica analitica che consente la separazione di diverse molecole all'interno di un campione in base alle loro caratteristiche fisico-chimiche. L'accoppiamento del sistema cromatografico a un rivelatore elettrochimico permette un'analisi rapida e ad alta sensibilità di analiti elettrochimicamente attivi, come le amine biogeniche. I rivelatori elettrochimici funzionano inducendo l'ossidazione degli analiti man mano che questi emergono dalla colonna, convertendo le interazioni sulla superficie dell'elettrodo in un segnale elettrico quantificabile. Altre tecniche, come la spettrometria di massa, possono offrire selettività e sensibilità comparabili32,33. Tuttavia, il basso costo per campione e l'affidabilità dell'HPLC-ECD lo rendono ideale per la rilevazione routinaria e accessibile delle amine biogeniche nei laboratori di ricerca biologica. L'integrazione di questa tecnica con il potere della genetica di Drosophila consente un'analisi rapida e diretta della base genetica e molecolare delle alterazioni nei sistemi aminergici.
Questo studio utilizza un modello genetico del morbo di Parkinson basato sulla sovraespressione di α-sinucleina per presentare un protocollo finalizzato a determinare le differenze nel contenuto di BA nei campioni cerebrali di Drosophila. L'articolo descrive inoltre come questo approccio possa essere impiegato per studiare la base molecolare delle malattie cerebrali.
Protocollo
I dati grezzi presentati in questo lavoro sono disponibili all'indirizzo https://doi.org/10.6084/m9.figshare.33868519.
I reagenti e l'equipaggiamento utilizzati sono elencati nella Tabella dei Materiali.
1. Sincronizzazione e raccolta delle mosche
- Far acclimatare le mosche di interesse a cicli costanti di 12 ore di luce e 12 ore di buio, a una temperatura costante di 25 °C, per 3 giorni prima del prelievo. Per assicurare un numero sufficiente di mosche preparate per ogni genotipo/condizione, acclimatare 3–9 repliche biologiche di 5 mosche ciascuna.
- Nel giorno del prelievo, posizionare delle provette da 1,5 mL sul ghiaccio secco. Utilizzare una provetta per ogni genotipo/condizione di mosca. Mediante un imbuto, versare direttamente le mosche nelle provette per congelarle rapidamente.
NOTA: Il prelievo diretto sul ghiaccio secco consente di raccogliere le mosche in diversi momenti della giornata senza gli effetti potenzialmente nocivi dell’anestesia. A questo punto, i campioni possono essere conservati a -80 °C indefinitamente o processati immediatamente. Raccogliere i gruppi sperimentali e di controllo contemporaneamente per evitare effetti confondenti dovuti alle variazioni legate all’ora del giorno. Nei risultati rappresentativi presentati, le mosche sono state raccolte 3 h dopo l’accensione della luce.
2. Dissezione del cervello e preparazione del campione
- Per preparare la dissezione del tessuto, utilizzare un contenitore basso, come il coperchio di una scatola per punte di pipetta, e riempirlo di ghiaccio. Posizionare sopra una piastra di Petri da 30 mm per usarla come piattaforma di dissezione. Eseguire la dissezione del tessuto sul ghiaccio, specialmente quando si utilizza un stereomicroscopio con illuminazione calda, per prevenire il degrado del tessuto.
- Depositare una goccia da 200 µL di soluzione salina tamponata al fosfato (PBS) 1x fredda sul ghiaccio nella piastra e, sotto uno stereomicroscopio, dissezionare ogni moscerino con pinzette fini e affilate.
- Per dissezionare il cervello, afferrare un moscerino per l'addome con un paio di pinzette ed immergerlo nella goccia di PBS. Senza rilasciare il moscerino, rimuovere la testa afferrando il punto di collegamento tra testa e corpo.
- Sia il corpo che la testa galleggeranno sul PBS. Rimuovere il corpo dalla goccia e scartarlo. Con un paio di pinzette, afferrare la testa dal rostro e spingerla nuovamente nella goccia di PBS.
- Utilizzando l'altro paio di pinzette, afferrare il bordo dell'occhio per tenere ferma la testa e rimuovere il rostro.
- Agganciare il tessuto intorno all'apertura creata rimuovendo il rostro e tirare. Il cervello dovrebbe risultare esposto.
- Pulire delicatamente il cervello per rimuovere eventuali detriti della testa, poiché qualsiasi tessuto residuo potrebbe influenzare la quantificazione. Inoltre, prelevare un moscerino alla volta dal tubo posto su ghiaccio secco per evitare il degrado del campione.
- Utilizzando una punta di pipetta, trasferire un piccolo volume contenente il cervello dissezionato direttamente in un tubo contenente PBS 1x freddo. Ripetere questo passaggio fino a ottenere un totale di cinque cervelli per replicato biologico. Per evitare che il cervello aderisca alla punta della pipetta, condizionarla prelevando e rilasciando più volte la soluzione dalla piastra di dissezione.
- Una volta completata la dissezione, effettuare una breve centrifugazione di 10 s a 2.000 x g per raccogliere i cervelli sul fondo del tubo.
- Sostituire con attenzione il PBS 1x con 50 µL di acido perclorico (PCA) 0,2 N sul ghiaccio.
ATTENZIONE: il PCA è altamente corrosivo. Preparare le aliquote in anticipo sotto cappa aspirante e utilizzare idonei dispositivi di protezione individuale durante la manipolazione. Questi includono occhiali resistenti ai prodotti chimici, guanti in neoprene pesanti e grembiule di gomma.
NOTA: in alternativa, i cervelli possono essere raccolti immediatamente in 50 µL di PCA 0,2 N. In tal caso, utilizzare un ago per trasferire i cervelli, evitando il trasferimento indesiderato di PBS. - Utilizzare un omogeneizzatore a ultrasuoni per omogeneizzare il tessuto. Regolare l'ampiezza per evitare la generazione di calore. In questo caso, si utilizza una frequenza di 10 kHz con cicli di impulsi brevi di 3 s seguiti da 3 s sul ghiaccio.
- Centrifugare il campione per 15 min a 15.000 x g e a 4 °C. Raccogliere 40 µL del soprannatante in un nuovo tubo mantenuto sul ghiaccio. Mantenere i campioni in PCA previene l'ossidazione delle amine biogeniche (BA). Evitare di raccogliere tessuto in questo passaggio poiché potrebbe ostruire il sistema. Se del tessuto viene comunque raccolto, si possono utilizzare filtri a siringa, ma il recupero del campione sarà negativamente influenzato.
- Subito prima dell'analisi dei campioni, aggiungere 8 µL di acetato di sodio 1 M. Questo porta il pH del campione più vicino al pH della fase mobile (3,5), preservando la forma dei picchi mentre il campione attraversa il rivelatore. I campioni sono pronti per essere iniettati.
3. Preparazione della fase mobile
- Preparare 1 L di fase mobile citrato-acetato aggiungendo 870 mL di acqua ultrapura in un recipiente di vetro.
- Aggiungere 5,61 g di acetato di sodio triidrato e 8,79 g di acido citrico anidro al contenitore di vetro e mescolare fino a completa dissoluzione. Verificare che il pH sia 3,5; in caso contrario, regolare opportunamente.
- In una cappa da laboratorio, aggiungere 130 mL di metanolo di grado HPLC.
- Aggiungere 130 mg di ottanosolfonato di sodio monoidrato e mescolare accuratamente.
- Filtrare sotto vuoto la soluzione utilizzando un filtro da 0,2 µm, mescolando contemporaneamente per 1 h. Il mescolamento permette al gas intrappolato di fuoriuscire dalla soluzione, mentre il vuoto favorisce questo processo e agevola la filtrazione.
- Sottoporre la soluzione a sonificazione in un bagno ad ultrasuoni (42 kHz) per 30 minuti per rimuovere le bolle d'aria.
- Avvolgere il contenitore con carta d'alluminio ed etichettarlo in modo appropriato.
NOTA: La qualità dei reagenti influenza notevolmente i tempi di ritenzione. L'uso di reagenti di grado HPLC contribuisce a mantenere la coerenza tra le diverse analisi. Utilizzare gli stessi reagenti anche quando si prepara nuovamente la fase mobile garantisce una maggiore riproducibilità dei risultati.
4. Preparazione degli standard
- Per preparare gli standard, pesare singolarmente 10 mg di OA, DA e 5-HT su carta da filtro.
- Collocare le quantità pesate in bottiglie di vetro separate da 125 mL per preparare soluzioni stock singole. Ripesare la carta da filtro vuota per calcolare la quantità esatta di OA, DA o 5-HT trasferita nelle bottiglie.
- Calcolare il volume di solvente da aggiungere per ottenere una concentrazione di 100 ng/µL dell'analita. Se si aggiungono esattamente 10 mg, utilizzare 100 mL di solvente. Per OA e DA, usare acido cloridrico 0,1 M come solvente. Per il 5-HT, utilizzare invece acido acetico 0,1 M.
- Aggiungere ai composti standard 2Na-EDTA fino a raggiungere una concentrazione finale di 1 mg/mL. Mescolare accuratamente fino a completo scioglimento. Avvolgere la bottiglia in carta d'alluminio per proteggerla dalla luce e conservare a 4 °C.
NOTA: Gli standard possono essere conservati fino a 3 mesi in queste condizioni.
5. Preparazione delle soluzioni di calibrazione
NOTA: Per creare una curva di calibrazione, preparare tre standard con BAs misti a diverse concentrazioni. In questo esempio, si utilizzano soluzioni operative a 0,03 ng/µL, 0,01 ng/µL e 0,001 ng/µL. L'iniezione di 10 µL produrrà rispettivamente quantità standard di 0,3 ng, 0,1 ng e 0,01 ng.
- Iniziare preparando una soluzione di 1 ng/µL miscela stock aggiungendo 1 µL di ciascuna 100 ng/µL BA stock a 97 µL di acido acetico 0,02 M e 2Na-EDTA 1 mg/mL. Mescolare accuratamente.
- Prelevare 2 µL di 1 ng/µL soluzione madre e aggiungerla a 64.6 µL di acido acetico 0,02 M e di EDTA 2Na 1 mg/mL. Mescolare accuratamente. Questa è la 0,03 ng/µL soluzione di lavoro
- Prelevare 2 µL di 1 ng/µL stock e aggiungerlo a 18 µL di acido acetico 0,02 M e 1 mg/mL di 2Na-EDTA. Mescolare accuratamente. Questa è la soluzione di 0,1 ng/µL soluzione di lavoro Questa soluzione non viene iniettata in questo protocollo. Viene invece utilizzata soltanto per diluizioni seriali.
- Prelevare 4 µL di 0,1 ng/µL stock e aggiungerlo a 36 µL di acido acetico 0,02 M e 1 mg/mL di 2Na-EDTA. Mescolare accuratamente. Questa è la soluzione di 0,01 ng/µL soluzione di lavoro
- Infine, prendere 4 µL di 0,01 ng/µL soluzione madre e aggiungerla a 36 µL di acido acetico 0,02 M e 1 mg/mL di 2Na-EDTA. Mescolare accuratamente. Questa è la soluzione di 0,001 ng/µL soluzione di lavoro
NOTA: Posizionare questi standard in una scatola protetta dalla luce. Tutte le soluzioni standard di lavoro devono essere preparate fresche.
6. Configurazione e svolgimento dell'iniezione
NOTA: tutti i sistemi HPLC funzionano secondo gli stessi principi. Tuttavia, le differenze nell'hardware possono influire notevolmente sui tempi di ritenzione e sulla durata dell'analisi. Inoltre, la sensibilità del rivelatore a elettrodi (ECD) determinerà limiti di rilevamento diversi. Questi parametri dovranno essere definiti empiricamente. Lo studio ha utilizzato un sistema di cromatografia liquida ad alte prestazioni (HPLC) dotato di una colonna a fase inversa C18.
- Accendere l'apparecchiatura HPLC, inclusi la pompa e il rilevatore elettrochimico. Impostare la portata a 100 µL/min e attendere che il rilevatore elettrochimico raggiunga una linea di base stabile. Questo processo dovrebbe richiedere da 10 a 30 minuti.
- Quando i campioni sono pronti per essere iniettati, impostare la portata a 500 µL/min. Attendere 5 minuti affinché il sistema si stabilizzi. Nel frattempo, risciacquare per tre volte una siringa Hamilton da 20 µL con acqua ultrapura.
- Aspirare 10–20 µL di campione nella siringa. Il volume dipenderà dalla capacità del loop di campionamento. Consultare il manuale del loop di campionamento per ulteriori informazioni.
- Verificare che non siano presenti bolle d'aria nella siringa durante l'iniezione. Eventuali gas intrappolati interferirebbero con il corretto pompaggio della fase mobile o con le misurazioni del rilevatore ECD. Se sono presenti bolle, restituire il campione e tentare nuovamente di caricare la siringa.
- Inserire completamente l'ago nel porto di iniezione. Posizionare la leva sulla posizione di caricamento e iniettare il campione spingendo lo stantuffo della siringa fino a quando tutto il liquido non è uscito dalla siringa. Portare la leva dell'iniettore sulla posizione “inietta”. L'analisi è iniziata e, nelle condizioni descritte, dovrebbe terminare in 30–35 minuti.
- Se si devono analizzare altri campioni, lasciare il sistema in funzione per 10–15 minuti a 500 µL/min prima di iniettare il campione successivo.
NOTA: Se si osservano fluttuazioni continue del segnale ECD, verificare eventuali variazioni della pressione del sistema. La presenza di gas intrappolato può causare un flusso irregolare e un rumore di fondo superiore al normale. Risolvere il problema purgando il sistema con una soluzione fresca ad alta velocità, bypassando il rilevatore ECD.
7. Recupero ed analisi dei dati
NOTA: Esistono diversi convertitori analogico-digitali e software disponibili per raccogliere e analizzare questo tipo di dati. Tali strumenti possono differire per il modo in cui elaborano i dati; tuttavia, condividono principi generali. Questo studio ha utilizzato rispettivamente un software di conversione dati e un software di acquisizione ed analisi dati cromatografici.
- Le variazioni di corrente/tensione derivanti dall'ossidazione delle BA, rilevate dall'ECD, verranno convertite dal convertitore analogico-digitale. La concentrazione delle BA è proporzionale alla variazione di corrente/tensione.
- Utilizzare l'area sotto la curva ottenuta dai grafici di corrente in funzione del tempo relativi alle prove con standard di BA per stimare una curva di taratura. I valori saranno rappresentati da una regressione lineare in un grafico Corrente/Tensione (nA o mV) in funzione della Quantità (ng).
- Utilizzando l'equazione lineare, calcolare la concentrazione di BA nel campione.
Risultati
I composti biologici vengono ossidati a diverse tensioni. In una matrice complessa, come i tessuti cerebrali, la scelta del potenziale ECD appropriato permetterà una quantificazione più pulita e accurata. Qui, abbiamo scelto due tensioni diverse per mostrare l’impatto di questo fattore sull’identificazione e la quantificazione di OA, DA e 5-HT in campioni cerebrali di Drosophila. Utilizzando 950 mV, è possibile rilevare facilmente queste tre ammine in un’unica miscela (Figura 1A), mentre a 650 mV si osservano soltanto dopamina e serotonina (Figura 1B). Questo risultato è in accordo con i valori di tensione di ossidazione di questi composti: 900–1000 mV per OA, 600–700 mV per DA e per 5-HT. I tempi di ritenzione per OA, DA e 5-HT sono rispettivamente di 6 min, 11 min e 29 min. La quantificazione di tre quantità diverse, 0,01 ng, 0,1 ng e 0,3 ng, produce curve di calibrazione comparabili a 950 mV o a 650 mV (Figura 1C,D, rispettivamente). Queste curve dimostrano la linearità e la sensibilità del saggio per ciascun analita nell’intervallo di concentrazioni testato a ciascun potenziale di rilevamento.
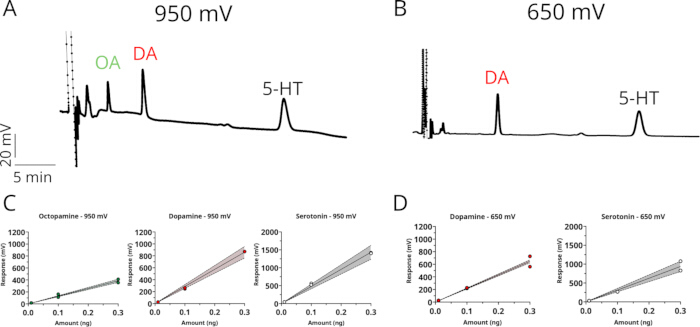
Figura 1: Rilevamento e quantificazione di ammine biogeniche mediante HPLC-ECD a due potenziali di ossidazione. (A,B) Cromatogrammi rappresentativi che mostrano la separazione degli standard di octopamina (OA), dopamina (DA) e serotonina (5-HT) rilevati a un potenziale applicato di (A) 950 mV o (B) 650 mV. Asse verticale: risposta (mV); asse orizzontale: tempo di ritenzione (5 min per tacca, indicato dalla barra della scala). (C,D) Curve di calibrazione per ciascun analita a (C) 950 mV e (D) 650 mV, con rappresentazione grafica della risposta del picco (mV) in funzione delle quantità standard (ng; 0,01–0,3 ng). Le linee continue rappresentano gli adattamenti lineari mediante regressione, le fasce ombreggiate indicano gli intervalli di confidenza al 95%, e i cerchi pieni/vuoti rappresentano 2 iniezioni singole di standard per ogni concentrazione. Cliccare qui per visualizzare una versione ingrandita di questa figura.
Campioni complessi come quelli derivati da estratti cerebrali sono solitamente responsabili di un notevole rumore di fondo biologico. Seguendo il protocollo qui descritto, abbiamo inteso determinare l'effetto della tensione dell'elettrodo sulla rilevazione e quantificazione delle BA in campioni cerebrali. Sono stati raccolti insetti adulti maschi all'accensione delle luci, dopo 2 giorni completi di adattamento, e i cervelli sono stati dissezionati in PBS freddo e successivamente posti in PCA 0,2 N sul ghiaccio. Dopo la dissociazione del tessuto e la centrifugazione, il soprannatante è stato equilibrato con acetato di sodio 1 M e ne sono stati iniettati 10 µL. Impostando il potenziale dell'elettrodo a 950 mV si ottengono picchi per octopamina, dopamina e serotonina ai rispettivi tempi di ritenzione (Figura 2A, traccia nera). Le loro identità sono state ulteriormente confermate analizzando un campione arricchito con quantità note (0,01 ng ciascuna) di ciascuna BA (Figura 2A, traccia rossa). Tuttavia, si osservano diversi picchi aggiuntivi vicino agli analiti di interesse, il che può complicare la quantificazione. Impostando il potenziale dell'elettrodo a 650 mV tale problema viene risolto, a scapito però della rilevazione dell'octopamina (Figura 2B). Come mostrato in Figura 1, l'OA non viene risolta a 650 mV, coerentemente con il suo potenziale di ossidazione più elevato.
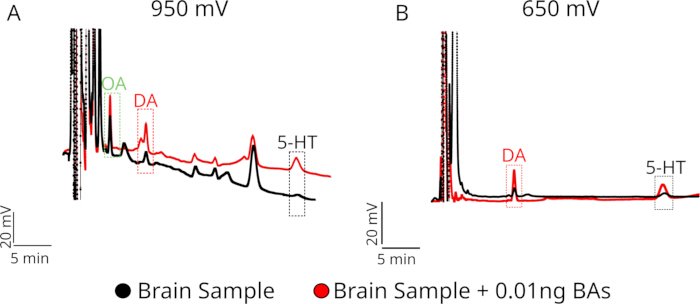
Figura 2: Identificazione di ammine biogeniche endogene in campioni cerebrali mediante potenziamento dei picchi (aggiunta di standard) a due potenziali di ossidazione. (A,B) Cromatogrammi rappresentativi di un estratto di tessuto cerebrale analizzato mediante HPLC-ECD a un potenziale applicato di (A) 950 mV o (B) 650 mV, mostrati prima (traccia nera, "Campione cerebrale") e dopo (traccia rossa, "Campione cerebrale + 0,01 ng BAs") l’aggiunta di una quantità nota (0,01 ng) di standard di octopamina (OA), dopamina (DA) e serotonina (5-HT). Le aree tratteggiate indicano le finestre di tempo di ritenzione per ciascun analita. Asse verticale: risposta (20 mV, indicata dalla scala); asse orizzontale: tempo di ritenzione (5 min, indicato dalla barra della scala). Cliccare qui per visualizzare una versione ingrandita di questa figura.
Seguendo lo stesso protocollo, abbiamo utilizzato la HPLC-ECD per rilevare differenze nel contenuto di amine biogeniche nei cervelli di moscerini che esprimono l'α-sinucleina nei neuroni dopaminergici (TH-T2A-GAL4 > UAS-SNCA.J34), un modello murino della malattia di Parkinson. Studi precedenti, condotti su un modello di MP basato su mutazioni nel gene Pink1, hanno evidenziato differenze nei livelli di dopamina già in moscerini di 0-3 giorni di vita35. In questo caso, sono stati utilizzati moscerini di età compresa tra 3 e 6 giorni per confrontare i livelli di dopamina e serotonina. I livelli di dopamina erano significativamente aumentati nei moscerini con malattia di Parkinson rispetto ai moscerini di controllo (Figura 3A), mentre i livelli di serotonina non mostravano variazioni (Figura 3B). L'aumento dei livelli di dopamina nelle fasi iniziali potrebbe riflettere meccanismi compensatori precedenti l'insorgenza dei sintomi della malattia di Parkinson in questo modello (revisione in Blesa J et al.36).
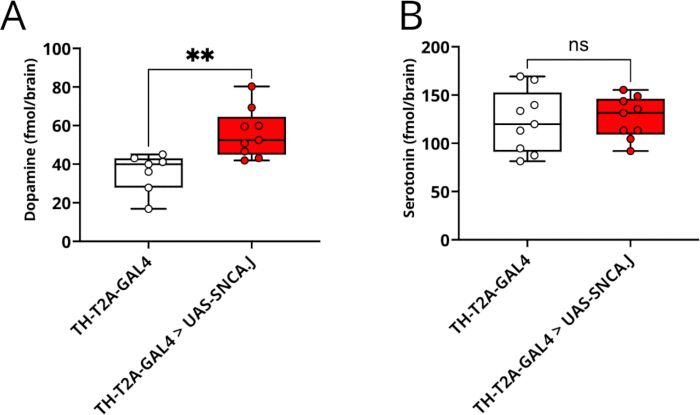
Figura 3: Quantificazione dei livelli di dopamina e serotonina in un modello di Drosophila della malattia di Parkinson mediante HPLC-ECD. Livelli tissutali di dopamina (A) e serotonina (B) nell'intero cervello, espressi come fmol/cervello, in moscerini di controllo (TH-T2A-GAL4, n = 7 in A e n = 9 in B) e in moscerini modello della malattia di Parkinson (TH-T2A-GAL4 > UAS-SNCA.J, n = 9). In questo modello, la sequenza umana di α-sinucleina ottimizzata per i codoni (SNCA.J) viene sovraespressa selettivamente nei neuroni dopaminergici sotto il controllo del driver TH-T2A-GAL4. I dati sono rappresentati come diagrammi a scatola con baffi (mediana, intervallo interquartile e min–max), sovrapposti ai singoli punti dati, ognuno rappresentante un replicato biologico (n) composto da 5 cervelli raggruppati. La significatività statistica è stata determinata mediante il test t non appaiato (**p < 0,01, ns, non significativo). Cliccare qui per visualizzare una versione ingrandita di questa figura.
Discussione
L'HPLC è una tecnica di separazione altamente personalizzabile. Per questo motivo, molti passaggi di questo protocollo possono essere modificati. Risultati affidabili dipendono da un'accurata attenzione e coerenza nelle modifiche apportate. La polarità relativa delle fasi stazionaria e mobile definisce la modalità di separazione: nella fase normale si accoppia una fase stazionaria polare con una fase mobile apolare, mentre nella fase inversa si utilizza una fase stazionaria apolare con una fase mobile polare. L'analisi delle ammine biogeniche nei tessuti biologici utilizza tipicamente condizioni a fase inversa. Questo studio ha impiegato una fase mobile a base di citrato-acetato con metanolo come solvente principale; tuttavia, misurazioni simili sono state eseguite con successo utilizzando un tampone fosfato con acetonitrile come solvente22,26,35. Pertanto, la composizione del tampone può variare in base alla risoluzione e alla forma desiderata dei picchi. La modifica della composizione della fase mobile potrebbe alterare i tempi di eluizione37. Ciò potrebbe causare sovrapposizione dei picchi, rendendo difficile o impossibile la quantificazione. Per risolvere tali problemi, le variazioni di pH rappresentano la soluzione più efficace, poiché l'interazione dell'analita con la colonna dipende fortemente dal suo pKa38.
Le ammine possono subire degradazione ossidativa, quindi il prelievo e il trattamento dei tessuti sono punti importanti del protocollo. Raccogliere i campioni su ghiaccio secco e mantenerli a -80 °C fino all'elaborazione è un passaggio fondamentale. Una volta dissecati, i campioni devono essere omogeneizzati rapidamente in condizioni acide. Questo previene la decomposizione delle BA30,39,40. In questo contesto, altre acidi possono risultare utili se l'accesso all'PCA è limitato. Una combinazione di acido formico, un ossidante non esplosivo alternativo all'PCA, e metanolo potrebbe essere utilizzata anche per l'estrazione; tuttavia, non abbiamo testato questa procedura su campioni cerebrali di Drosophila41.
La scelta del rivelatore determina cosa può essere misurato e con quale sensibilità; le opzioni più comuni includono rivelatori a UV/visibile, fluorescenza e spettrometria di massa, ciascuno adatto a diverse proprietà degli analiti e requisiti di sensibilità. La rivelazione elettrochimica è particolarmente adatta alle catecolammine e indolammine come la dopamina (DA) e la serotonina (5-HT), che vengono ossidate direttamente all'elettrodo di lavoro generando una corrente proporzionale alla loro concentrazione. Si è affermato che la rivelazione elettrochimica (ECD) è una tecnica più semplice e accurata rispetto ad altri metodi di rivelazione, come la rivelazione fluorimetrica e quella a ultravioletti, entrambe spesso soggette a un numero maggiore di passaggi preliminari prima dell'analisi, rendendole più complesse o più lunghe42,43. La HPLC-ECD offre un'elevata sensibilità, essendo in grado di rilevare analiti in campioni biologici a concentrazioni nell'ordine dei femtomoli44. Poiché un singolo cervello di Drosophila fornisce soltanto una quantità molto ridotta di tessuto, questo livello di sensibilità è essenziale. In modo critico, la HPLC-ECD consente anche la quantificazione simultanea di diversi amine biogeniche da un singolo campione, permettendo così di ottenere in un'unica corsa analitica il profilo completo delle monoammine di un preparato del sistema nervoso centrale di Drosophila.
Il metodo presenta limitazioni intrinseche che ne definiscono l'ambito di applicazione. Sebbene questo metodo sia altamente sensibile, la quantificazione delle ammine biogene (BAs) da campioni di Drosophila richiede l’unione di più cervelli. Di conseguenza, non è stato finora riportato alcun rilevamento da singolo cervello, come accade anche con altri approcci45. Un altro svantaggio è l’insudiciamento dell’elettrodo. L’insudiciamento può verificarsi nel tempo quando i sottoprodotti ossidativi formano uno strato isolante sottile sulla superficie, riducendo la sensibilità e causando una deriva del segnale46. Questo fenomeno è particolarmente evidente nei nostri risultati quando si utilizza una tensione di ossidazione più elevata (Figura 2). Per tenere conto di tali variazioni, può essere utile ripetere iniezioni di standard dopo alcune analisi. Le iniezioni di standard dovrebbero essere ripetute ogni volta che si modifica la fase mobile o il potenziale di rilevamento, al fine di compensare eventuali spostamenti nei picchi osservati. La pulizia periodica dell’elettrodo può aiutare a mitigare questo problema. Un ulteriore svantaggio è che la HPLC-ECD fornisce una misurazione statica e complessiva del contenuto di ammine, integrata su tutto il tessuto sottoposto ad analisi. Tale tecnica non fornisce informazioni sulla localizzazione cerebrale di queste ammine né sui contributi relativi di specifiche popolazioni neuronali. Composti non elettroattivi come il GABA e il glutammato non sono rilevabili nelle condizioni standard di ECD e richiedono saggi separati. Forse il limite più importante è che la HPLC-ECD è un metodo mirato. Non può essere utilizzata per identificare molecole sconosciute che potrebbero essere correlate a un fenotipo comportamentale, poiché si basa interamente sul confronto dei tempi di ritenzione con standard noti e ben caratterizzati. Per la scoperta non mirata di correlati neurochimici del comportamento, tecniche come la LC-MS/MS sarebbero più adatte, anche se a un costo maggiore.
Entro questi limiti, la HPLC-ECD affronta un insieme ben definito e biologicamente significativo di domande in Drosophila modelli di disturbo. Può determinare se un genotipo o un trattamento alterano i livelli stazionari di amine e se tali modifiche sono selettive per un particolare sistema di neurotrasmettitori o influenzano il profilo più ampio delle monoammine. Può monitorare i cambiamenti neurochimici durante le diverse fasi dello sviluppo o nel corso della progressione della malattia, fornendo evidenze di stati biochimici presintomatici che precedono fenotipi comportamentali rilevabili47È inoltre particolarmente adatto per valutare se un intervento farmacologico o genetico normalizza, supera o non riesce a correggere i deficit di amine in un determinato modello.26. Affrontare domande come a quale stadio ciascuna ammina cambia, se la stabilizzazione di un sistema perturba un altro sistema e se una perturbazione nello sviluppo lascia una traccia neurochimica duratura è esattamente ciò per cui è stato concepito un metodo sensibile, multiparametrico e quantitativo per le ammine. Utilizzato insieme ai saggi comportamentali e agli strumenti genetici disponibili in DrosophilaL'HPLC-ECD fornisce un livello biochimico quantitativo che amplia notevolmente la portata interpretativa di questi modelli di disturbo.
Dichiarazioni
Gli autori dichiarano di non avere conflitti di interessi.
Ringraziamenti
Questo lavoro è stato sostenuto da una sovvenzione del National Institutes of Health, R00NS133470 (S.H.). Il contenuto è esclusiva responsabilità degli autori e non rappresenta necessariamente le opinioni ufficiali del National Institutes of Health. R.V.Z. è sostenuto dalla Subvención a la Instalación en la Academia (SIA) n°85250142, e J.M.C. è sostenuto da FONDECYT 1231556, Agencia Nacional de Investigación y Desarrollo, Cile.
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| (±) Octopamina Cloridrato | Sigma Aldrich | 770-05-8 | |
| Unità filtro da 500 mL | Thermo Scientific | FB12566504 | Membrana aPES da 0,2 µm, diametro 75 mm |
| Acido acetico glaciale | Fisher Scientific | 64-19-7 | |
| Acido citrico anidro | USB | 77-92-9 | |
| Software per cromatografia Clarity | Data Apex | Versione 10.1 | |
| Convertitore dati Colibrick | Data Apex | Convertitore A/D | |
| Dopamina cloridrato | Sigma Aldrich | 62-31-7 | |
| Pinze Dumont n. 5 (Dumoxel Biology) | Fine Science Tools | 11252-30 | Pinze da dissezione |
| EDTA, sale sodico disodico, diidrato, cristallo (2Na-EDTA) | J.T Baker | 6381-92-6 | |
| EICOMPAK-5ODS | Eicom | 680.060.00 | Colonna di separazione a fase inversa |
| Acqua ultrapura (tipo 1) EMD Milipore Synergy UV-R | Milipore | ||
| Siringa Hamilton da 25 µL (22s/2"/3) | Hamilton | 80465 | |
| HTEC-600 | Eicom | Macchina HPLC | |
| Acido cloridrico | Sigma Aldrich | 7647-01-0 | |
| Salviette per tessuti leggere | VWR | 82003-820 | |
| Metanolo grado HPLC | Fisher Scientific | 67-56-1 | Filtrato da 0,2 micron |
| Acido perclorico, 70% in acqua | Fisher Scientific | AC424032500 | Da usare per PCA 0,2 N |
| Serotonina cloridrato al 98% | Fisher Scientific | 153-98-0 | |
| Octanosolfonato sodico idrato, grado HPLC, 99+% | Thermo Scientific | 5324-84-5 | |
| Acetato di sodio, triidrato, cristallo | J.T Baker | 6131-90-4 | |
| Sonicator 1510 Bransonic Ultrasonic Cleaner | Branson | Modello #: 1510R-MT | Sonicator |
| Sonicator processore ultrasonico | Fisherbrand | Modello FB50 | Con sonda CL18 |
Riferimenti
- Barron AB, Søvik E, Cornish JL. The roles of dopamine and related compounds in reward-seeking behavior across animal phyla. Front Behav Neurosci. 2010;4:163.
- Cardozo Pinto DF, et al. Opponent control of reinforcement by striatal dopamine and serotonin. Nature. 2025;639(8053):143-152.
- Jiang Y, et al. Monoamine neurotransmitters control basic emotions and affect major depressive disorders. Pharmaceuticals (Basel). 2022;15(10):1203.
- Swallow JG, Bubak AN, Grace JL. The role of monoamines in modulating behavior. Curr Zool. 2016;62(3):253-255.
- Ramesh S, Arachchige ASPM. Depletion of dopamine in Parkinson's disease and relevant therapeutic options: A review of the literature. AIMS Neurosci. 2023;10(3):200-231.
- Elgueta-Reyes M, Hidalgo S, Campusano JM. Beyond vertebrates: Drosophila melanogaster as a model to study negative symptoms of schizophrenia. Front Psychiatry. 2025;16:1622281.
- Kasture AS, Hummel T, Sucic S, Freissmuth M. Big lessons from tiny flies: Drosophila melanogaster as a model to explore dysfunction of dopaminergic and serotonergic neurotransmitter systems. Int J Mol Sci. 2018;19(6):1788.
- Owald D, Lin S, Waddell S. Light, heat, action: Neural control of fruit fly behaviour. Philos Trans R Soc Lond B Biol Sci. 2015;370(1677):20140211.
- Rosikon KD, Bone MC, Lawal HO. Regulation and modulation of biogenic amine neurotransmission in Drosophila and Caenorhabditis elegans. Front Physiol. 2023;14:970405.
- Pandey UB, Nichols CD. Human disease models in Drosophila melanogaster and the role of the fly in therapeutic drug discovery. Pharmacol Rev. 2011;63(2):411-436.
- Duffy JB. GAL4 system in Drosophila: A fly geneticist's Swiss army knife. Genesis. 2002;34(1-2):1-15.
- Feany MB, Bender WW. A Drosophila model of Parkinson's disease. Nature. 2000;404(6776):394-398.
- Narwal S, Singh A, Tare M. Analysis of α-syn and parkin interaction in mediating neuronal death in Drosophila model of Parkinson's disease. Front Cell Neurosci. 2024;17:1295805.
- Park J, et al. Mitochondrial dysfunction in Drosophila PINK1 mutants is complemented by parkin. Nature. 2006;441(7097):1157-1161.
- Aryal B, Lee Y. Disease model organism for Parkinson disease: Drosophila melanogaster. BMB Rep. 2019;52(4):250-258.
- Clark IE, et al. Drosophila pink1 is required for mitochondrial function and interacts genetically with parkin. Nature. 2006;441(7097):1162-1166.
- Park S, Kozhushko N, Wight TH, Whitworth AJ. Insights into PINK1/Parkin function and dysfunction from Drosophila models. Biochem J. 2025;483(1):BCJ20253459.
- Mohite GM, et al. Parkinson's disease associated α-synuclein familial mutants promote dopaminergic neuronal death in Drosophila melanogaster. ACS Chem Neurosci. 2018;9(11):2628-2638.
- Ordonez DG, Lee MK, Feany MB. α-Synuclein induces mitochondrial dysfunction through spectrin and the actin cytoskeleton. Neuron. 2018;97(1):108-124.e6.
- Eyles D, Feldon J, Meyer U. Schizophrenia: Do all roads lead to dopamine or is this where they start? Evidence from two epidemiologically informed developmental rodent models. Transl Psychiatry. 2012;2(2):e81.
- Calcagno B, Eyles D, van Alphen B, van Swinderen B. Transient activation of dopaminergic neurons during development modulates visual responsiveness, locomotion and brain activity in a dopamine ontogeny model of schizophrenia. Transl Psychiatry. 2013;3(1):e206.
- Hidalgo S, et al. The behavioral and neurochemical characterization of a Drosophila dysbindin mutant supports the contribution of serotonin to schizophrenia negative symptoms. Neurochem Int. 2020;138:104753.
- Hidalgo S, Campusano JM, Hodge JJL. Assessing olfactory, memory, social and circadian phenotypes associated with schizophrenia in a genetic model based on Rim. Transl Psychiatry. 2021;11(1):292.
- Hidalgo S, Campusano JM, Hodge JJL. The Drosophila orthologs of the schizophrenia-associated CACNA1A and CACNA1B voltage-gated calcium channels regulate memory, sleep and circadian rhythms. Neurobiol Dis. 2021;155:105394.
- Shao L, et al. Schizophrenia susceptibility gene dysbindin regulates glutamatergic and dopaminergic functions via distinctive mechanisms in Drosophila. Proc Natl Acad Sci U S A. 2011;108(46):18831-18836.
- Zárate RV, et al. An early disturbance in serotonergic neurotransmission contributes to the onset of Parkinsonian phenotypes in Drosophila melanogaster. Cells. 2022;11(9):1544.
- Nakao K, et al. 5-HT2A receptor dysregulation in a schizophrenia relevant mouse model of NMDA receptor hypofunction. Transl Psychiatry. 2022;12(1):168.
- Zhou W, et al. DISC1 mutant macaques capture behavioral and neural hallmarks of psychiatric disease. Natl Sci Rev. 2026;13(8):nwag200.
- Chen A, et al. Dispensable, redundant, complementary, and cooperative roles of dopamine, octopamine, and serotonin in Drosophila melanogaster. Genetics. 2013;193(1):159-176.
- Plenis A, Olędzka I, Kowalski P, Miękus N, Bączek T. Recent trends in the quantification of biogenic amines in biofluids as biomarkers of various disorders: a review. J Clin Med. 2019;8(5):640.
- Fredj Z, Sawan M. Advanced nanomaterials-based electrochemical biosensors for catecholamines detection: challenges and trends. Biosensors (Basel). 2023;13(2):211.
- Hori A, Nitta T, Inamori Kichiro, Kanoh H, Kuraishi T. High-throughput single-fly LC-MS/MS for quantitative profiling of biogenic amines in Drosophila. PLoS One. 2026;21(1):e0341188.
- Davla S, et al. An LC-MS/MS method for simultaneous analysis of up to six monoamines from brain tissues. J Chromatogr B. 2023;1216:123604.
- Chouhan AK, et al. Uncoupling neuronal death and dysfunction in Drosophila models of neurodegenerative disease. Acta Neuropathol Commun. 2016;4(1):62.
- Molina-Mateo D, et al. Characterization of a presymptomatic stage in a Drosophila Parkinson's disease model: unveiling dopaminergic compensatory mechanisms. Biochim Biophys Acta Mol Basis Dis. 2017;1863(11):2882-2890.
- Blesa J, et al. Compensatory mechanisms in Parkinson's disease: circuits adaptations and role in disease modification. Exp Neurol. 2017;298(Pt B):148-161.
- Snyder LR, Quarry MA, Glajch JL. Solvent-strength selectivity in reversed-phase HPLC. Chromatographia. 1987;24(1):33-44.
- Lewis JA, et al. Computer simulation for the prediction of separation as a function of pH for reversed-phase high-performance liquid chromatography: I. Accuracy of a theory-based model. J Chromatogr A. 1992;592(1):183-195.
- Chan EC, Wee PY, Ho PC. Evaluation of degradation of urinary catecholamines and metanephrines and deconjugation of their sulfoconjugates using stability-indicating reversed-phase ion-pair HPLC with electrochemical detection. J Pharm Biomed Anal. 2000;22(3):515-526.
- Bicker J, Fortuna A, Alves G, Falcão A. Liquid chromatographic methods for the quantification of catecholamines and their metabolites in several biological samples: a review. Anal Chim Acta. 2013;768:12-34.
- Miękus N, et al. Comparison of three extraction approaches for the isolation of neurotransmitters from rat brain samples. Int J Mol Sci. 2018;19(6):1560.
- Van Dam D, Vermeiren Y, Aerts T, De Deyn PP. Novel and sensitive reversed-phase high-pressure liquid chromatography method with electrochemical detection for the simultaneous and fast determination of eight biogenic amines and metabolites in human brain tissue. J Chromatogr A. 2014;1353:28-39.
- Han S, et al. A sensitive HPLC-ECD method for detecting serotonin released by RBL-2H3 cells stimulated by potential allergens. Anal Methods. 2015;7(20):8918-8924.
- Guiard BP, Gotti G. The high-precision liquid chromatography with electrochemical detection (HPLC-ECD) for monoamines neurotransmitters and their metabolites: a review. Molecules. 2024;29(2):496.
- Fang H, Vickrey TL, Venton BJ. Analysis of biogenic amines in a single Drosophila larva brain by capillary electrophoresis with fast-scan cyclic voltammetry detection. Anal Chem. 2011;83(6):2258-2264.
- Hanssen BL, Siraj S, Wong DKY. Recent strategies to minimise fouling in electrochemical detection systems. Rev Anal Chem. 2016;35(1):1-28.
- Meissner WG. When does Parkinson's disease begin? From prodromal disease to motor signs. Rev Neurol (Paris). 2012;168(11):809-814.
Ristampe e permessi
Questo articolo è stato pubblicato
Video in arrivo