Questo protocollo fornisce una guida per l'immagine confocale in tempo reale della dinamica dei microtubuli mediante marcatori fluorescenti dei microtubuli nei neuroni sensoriali larvali di Drosophila.
Articolo metodologico
Immaginare la Dinamica dei Microtubuli In Vivo nei Dendriti Sensoriali di Drosophila
* These authors contributed equally
In questo articolo
Sommario
Abstract
I neuroni sensoriali della classe IV delle larve di Drosophila si trovano appena al di sotto del tegumento ed sono caratterizzati da alberi dendritici altamente ramificati che si espandono in modo isotropico in due dimensioni durante lo sviluppo delle larve. La crescita di questi alberi è guidata da processi stocastici che coinvolgono crescita, riduzione e pause delle estremità terminali dei dendriti. Per verificare l'ipotesi che la dinamica delle estremità sia guidata dalla dinamica dei microtubuli, sono stati sviluppati protocolli per l'acquisizione di immagini di microtubuli marcati fluorescentemente all'interno dei dendriti. Questo metodo consente la visualizzazione della dinamica dei microtubuli nei fini dendriti terminali dei neuroni sensoriali della classe IV mediante microscopia confocale. È stato progettato per preservare la morfologia dell'albero dendritico durante l'acquisizione delle immagini, consentendo al contempo la visualizzazione dei microtubuli insieme a un marcatore della membrana. Questo manoscritto descrive le procedure utilizzate per preparare le larve di Drosophila per l'acquisizione di immagini in tempo reale e per visualizzare i microtubuli marcati fluorescentemente nei dendriti. Il protocollo fornisce quindi un approccio per esaminare il comportamento dei microtubuli nei fini dendriti terminali, mantenendosi compatibile con l'etichettatura contemporanea della membrana.
Introduzione
I neuroni sono cellule altamente polarizzate il cui citoscheletro definisce l'architettura. I microtubuli, una componente del citoscheletro neuronale, forniscono sostegno strutturale e fungono da tracce per il trasporto di carichi su lunghe distanze1,2. Il citoscheletro dei microtubuli è fondamentale per lo sviluppo dei dendriti3. I dendriti crescono in modo stocastico attraverso un processo di ramificazione, allungamento e contrazione4. I neuroni sensoriali dendritici (da) delle larve di Drosophila rappresentano un potente sistema modello in vivo per lo studio della morfogenesi dendritica. Questi neuroni sensoriali sono raggruppati in quattro classi (I–IV) in base al crescente grado di complessità dendritica3,5. I neuroni da di classe IV possiedono dendriti complessi e altamente ramificati e svolgono la funzione di nocicettori multimodali6,7,8. I dendriti di questi neuroni formano campi recettivi stereotipati lungo i segmenti addominali e si trovano appena al di sotto della cuticola trasparente9,10. Questa anatomia, unita alla facilità genetica di Drosophila, rende i neuroni da di classe IV un sistema adatto per visualizzare lo sviluppo dendritico in vivo con elevata risoluzione spaziale e temporale. Durante lo sviluppo, mentre i dendriti crescono, le loro estremità transitano stocasticamente tra stati di crescita, riduzione e pausa11. La crescita e la riduzione delle estremità condividono numerose somiglianze cinetiche con la crescita e la riduzione dei microtubuli12. Pertanto, visualizzare la dinamica dei microtubuli in queste cellule è di notevole interesse.
Un approccio comune per visualizzare la dinamica dei microtubuli in cellule vive, inclusi quelle nei larve di Drosophila, consiste nell'acquisire immagini di proteine leganti le estremità marcate con fluorescenza, come EB1 ed EB313,14,15,16,17,18. Tuttavia, l'interpretazione dei segnali di EB-GFP può essere ambigua. Ad esempio, un punto luminoso di EB-GFP che si muove in direzione distale, allontanandosi dal corpo cellulare, potrebbe rappresentare l'estremità positiva di un microtubulo in crescita verso l'esterno oppure l'estremità positiva in crescita di un microtubulo che scorre in direzione distale. Sebbene EB-GFP etichetti prevalentemente le estremità positive dei microtubuli in crescita, può anche marcare le estremità negative in crescita19, generando ulteriore ambiguità. La visualizzazione diretta dei microtubuli può ridurre tali ambiguità.
Un approccio alternativo rispetto all'EB-GFP è l'etichettatura diretta dei microtubuli mediante GFP-tubulina20,21. Tuttavia, la tubulina fluorescente etichetta in modo robusto i dendriti prossimali22, ma non riesce a etichettare i dendriti distali23. Un'altra difficoltà legata alla tubulina fluorescente è che l'elevata concentrazione di tubulina solubile rende difficile distinguere singoli microtubuli in processi sottili come i dendriti terminali. Pertanto, l'analisi della dinamica dei microtubuli in neuroni integri in condizioni fisiologiche normali rimane una sfida.
La proteina associata ai microtubuli (MAP) Drosophila Jupiter, un omologo strutturale delle proteine mammifere Tau, MAP2 e MAP4, è stata utilizzata per marcare i microtubuli nei tessuti di Drosophila, inclusi l'ovaio e gli embrioni24. Nei dendriti di classe IV, mCherry-Jupiter e sfGFP-Jupiter sono stati utilizzati per quantificare i microtubuli nei rami prossimali22,25,26. Questo protocollo descrive un metodo di imaging in tempo reale che permette l'osservazione ad alta risoluzione, con acquisizioni ripetute nel tempo, del comportamento dei microtubuli neuronali nei dendriti distali dei neuroni di classe IV di Drosophila, utilizzando linee di moscerini che esprimono il dominio legante la tubulina fluorescentemente marcato di Jupiter.
Protocollo
Questo studio ha utilizzato Drosophila melanogaster, un modello invertebrato per il quale non era richiesta l'approvazione etica istituzionale sugli animali. Gli strumenti utilizzati per il protocollo sono elencati nella Tabella dei materiali.
1. Generazione di linee sperimentali di moscerini
- Imposta un incrocio per ottenere la linea parentale desiderata. Utilizza il sistema binario GAL4/UAS per esprimere mNeonGreen (mNG)-Jupiter nei neuroni di tipo IV dell'arborizzazione dendritica (da) che esprimono GAL4 sotto il promotore ppk.
- Incrocio femmine vergini provenienti da una linea omozigote UAS-mNG-Jupiter con maschi provenienti da una linea omozigote ppk-GAL4; CD4tdTomato. Ottieni prole F1 portatrice sia di ppk-GAL4; CD4tdTomato che di UAS-mNG-Jupiter.
NOTA: La prole F1 portatrice di entrambi ppk-GAL4; CD4tdTomato e UAS-mNG-Jupiter esprime fortemente mNG e CD4tdTomato nei neuroni da di classe IV. Esegui l'analisi mediante imaging su larve derivate da almeno tre incroci genetici indipendenti, con un minimo di sei larve analizzate per ogni incrocio. - Mantieni l'incrocio in un contenitore per allevamento, applicando una piccola quantità di pasta di lievito sulla parete. Incuba a 25 °C per 2–3 giorni.
NOTA: L'alimentazione con lievito stimola la deposizione delle uova e l'ovodeposizione. - Prepara la pasta di lievito ponendo un cucchiaino di lievito in un piccolo becher e aggiungendo alcune gocce di acqua. Mescola accuratamente con una spatola finché la pasta non raggiunge una consistenza semisolida, aggiungendo acqua goccia a goccia se necessario.
- Trasferisci le mosche ogni giorno in un nuovo contenitore per allevamento contenente pasta di lievito fresca.
NOTA: Assicurati che la pasta di lievito non sia troppo morbida né troppo acquosa. Se diventa troppo morbida, le mosche potrebbero rimanere intrappolate. Per ulteriori dettagli metodologici, vedere Hales et al.27 e Roote e Prokop28.
2. Deposito delle uova su piastre di agar-uva, raccolta delle uova e determinazione dello stadio larvale
- Preparare circa 0,5 L di mezzo agar-uva unendo 376 mL di acqua distillata, 126 mL di succo d'uva, 15 g di agar e 6 g di saccarosio in un becher da 1 L adatto al microonde.
- Scaldare al microonde per 3–5 minuti, agitando ogni minuto fino a completa dissoluzione dell'agar. Far raffreddare leggermente la miscela, quindi aggiungere 10 mL di etanolo e 5 mL di acido acetico.
- Mescolare accuratamente e versare il mezzo in piastre di Petri da 60 mm per preparare le piastre agar-uva. Preparare le piastre in anticipo, conservarle a 4 °C capovolte e avvolte nelle apposite custodie per piastre di Petri, e utilizzarle entro 2 settimane. Riscaldare le piastre a temperatura ambiente prima dell'uso.
- Trasferire circa 150 moscerini, composti da 50 maschi e 100 femmine, dal contenitore di mantenimento alla gabbia per la deposizione delle uova.
- Coprire la gabbia per la deposizione con una piastra agar-uva da 60 mm contenente una piccola quantità di pasta di lievito.
- Lasciare che i moscerini depongano le uova a 25 °C per 2 ore sulla piastra agar-uva contenente la pasta di lievito. Sostituire la piastra con una nuova piastra agar-uva contenente pasta di lievito e permettere la deposizione per altre 2 ore.
- Fornire una terza piastra agar-uva da 60 mm contenente pasta di lievito e permettere ai moscerini di deporre le uova per ulteriori 2 ore.
- Utilizzare la terza piastra come piastra sperimentale e scartare le prime due piastre per ridurre al minimo l'eterogeneità nell'età degli embrioni.
NOTA: La raccolta iniziale di uova contiene spesso embrioni in stadi di sviluppo diversi, poiché le femmine di Drosophila possono trattenere uova fecondate nel tratto riproduttivo per diverse ore prima di deporle. Scartare le piastre iniziali consente di ottenere uova più sincronizzate. - Per l'analisi temporizzata dopo la deposizione delle uova (AEL), lasciare maturare gli embrioni sulle piastre sperimentali a 25 °C fino a raggiungere lo stadio desiderato: Stadio 1, 24 h; Stadio 2, 48 h; Stadio 3, 72 h; e Stadio 4, 96–120 h.
3. Pulizia delle larve
- Lavare le larve con 5 mL di soluzione di saccarosio al 5%, seguiti da 5 mL di H₂O dionizzata, per rimuovere i detriti di lievito dalla superficie e prevenire la disidratazione.
- Trasferire le larve, tipicamente tre o quattro, sul coperchio di una piastra per colture cellulari da 35 mm utilizzando un pennello da verniciatura 3/0. Asciugare le larve con un fazzoletto da laboratorio per rimuovere l'acqua in eccesso.
4. Anestesia
- Pulire e asciugare le larve prima dell'anestesia.
- Preparare in anticipo il sistema per l'anestesia (Figura 1). Posizionare la piastra per colture cellulari all'interno dell'involucro di cartone per ridurre il movimento d'aria sulla piastra e minimizzare le interferenze con l'anestesia da isoflurano.
ATTENZIONE: L'isoflurano è un anestetico volatile. Manipolare e utilizzare l'isoflurano con adeguata ventilazione del laboratorio e in conformità con le procedure istituzionali di sicurezza chimica. Immobilizzare le larve aggiungendo il volume misurato di isoflurano al bastoncino anestetico fissato con nastro adesivo all'interno di una piastra per colture cellulari da 35 mm, che funge da serbatoio di evaporazione. - Posizionare il coperchio della piastra per colture cellulari contenente le larve pulite e asciutte sopra la piastra per colture cellulari.
- Anestetizzare le larve per 2–3 min.
NOTA: Il volume di isoflurano e la durata dell'anestesia dipendono dallo stadio larvale e dal numero di larve. Determinare empiricamente la quantità necessaria. Ad esempio, utilizzare 10–20 µL di isoflurano per 2 minuti per anestetizzare tre larve di 72 h per circa 30 minuti. Utilizzare 5 µL di isoflurano per larva al minuto come dose iniziale per l'immobilizzazione, indipendentemente dallo stadio larvale.
5. Montaggio
- Creare un'incubazione rettangolare o circolare con vaselina su un vetrino da microscopio pulito, lasciando un piccolo spazio in un angolo (Figura 1C). Utilizzare un applicatore per henné per disegnare l'incubazione sul vetrino.
- Trasferire le larve anestetizzate nell'incubazione utilizzando un pennello. Montare le larve con il dorso rivolto verso l'alto in una goccia di olio di alogenuri 700.
- Posizionare un coprioggetto n. 1,5 sopra la larva. Applicare una pressione leggera finché la vaselina non sigilla lo spazio tra il coprioggetto e il vetrino e la larva risulta leggermente appiattita contro il vetrino.
- Acquisire immediatamente le immagini del campione per un periodo fino a 30–45 minuti a partire dal passaggio descritto nel punto 5.2. Interrompere l'acquisizione se si osservano blebbing o danni neuronali, inclusa la rottura delle dendriti, nel canale della membrana; utilizzare una dose inferiore di anestetico.
NOTA: Assicurarsi che non siano presenti bolle nell'olio di alogenuri dopo aver posizionato il coprioggetto. L'assenza di bolle è necessaria per ottenere video dinamici di alta qualità e per ridurre al minimo le deriva. Per ridurre al minimo la formazione di bolle d'aria, lasciare un piccolo spazio in un angolo dell'incubazione di vaselina in modo da permettere all'aria di fuoriuscire durante il posizionamento del coprioggetto. Sigillare lo spazio se necessario utilizzando un pennello fine.
6. Microscopia e acquisizione delle immagini
- Eseguire l'acquisizione in tempo reale dei campioni larvali mediante un microscopio confocale a disco rotante dotato di un pinhole da 50 µm e di un sistema di messa a fuoco perfetta.
- Impostare le linee laser a 488 nm e 561 nm al 30% della potenza massima, considerando laser da 100 mW, per visualizzare il marcatore dei microtubuli, come mNG-Jupiter, e il marcatore della membrana, CD4tdTomato.
- Impostare il tempo di esposizione a 200 ms. Acquisire le immagini utilizzando una camera sCMOS con sensori da 6,5 µm e il relativo software di acquisizione delle immagini.
- Acquisire tutte le immagini mediante un obiettivo ad immersione in acqua da 40× con un'apertura numerica di 1,25 e una dimensione del pixel di 0,1614 µm.
- Mettere manualmente a fuoco il campione per individuare il secondo, terzo e quarto emisegmento addominale della superficie dorsale, dove i neuroni di classe IV sono facilmente accessibili attraverso la cuticola trasparente.
- Per ogni acquisizione, registrare una serie di z-stack che coprano fino a 10 µm di profondità con passi di 1 µm. Acquisire gli stack a intervalli di 10 s per 10 o 15 min.
NOTA: A meno che non sia specificato diversamente, utilizzare larve a 72 h AEL per l'acquisizione delle immagini.
7. Elaborazione e analisi delle immagini
- Importare i filmati in time-lapse acquisiti in formato .ND2 in FIJI (Fiji Is Just ImageJ) utilizzando l'importatore Bio-Formats. Convertire i filmati in formato TIFF per l'analisi successiva.
- Stabilizzare i filmati per correggere la deriva del campione utilizzando il plugin di stabilizzazione dell'immagine con impostazioni di trasformazione affine in FIJI.
- Escludere i filmati dall'analisi se il movimento è eccessivo. Considerare eccessivo un movimento superiore a 1 µm/min e escludere tali filmati dall'analisi. Escludere inoltre i filmati in cui si osservano blebs nel canale del marcatore di membrana (CD4tdTomato).
- Comprimere gli stack z in serie temporali bidimensionali generando proiezioni di intensità massima lungo l'asse z in FIJI.
- Tracciare regioni di interesse (ROI) lineari in FIJI lungo la struttura di interesse per quantificare le proprietà dinamiche delle estremità e dei microtubuli. Utilizzare il plugin Multi Kymograph in FIJI per generare i kymografi. Generare il kymografo utilizzando una scansione lineare larga 3 pixel lungo l'ROI ed elaborarlo mediante il plugin Multi Kymograph in FIJI.
- Estrarre i profili di intensità utilizzando lo strumento Plot Profile con una larghezza di linea di 3 pixel. Generare un file CSV a più colonne in cui colonne alternate codificano posizione e intensità lungo ciascuna scansione lineare.
- Stimare l'intensità di fondo da un'ROI corrispondente in una regione vuota del campo. Sottrarre l'intensità di fondo da ogni fotogramma.
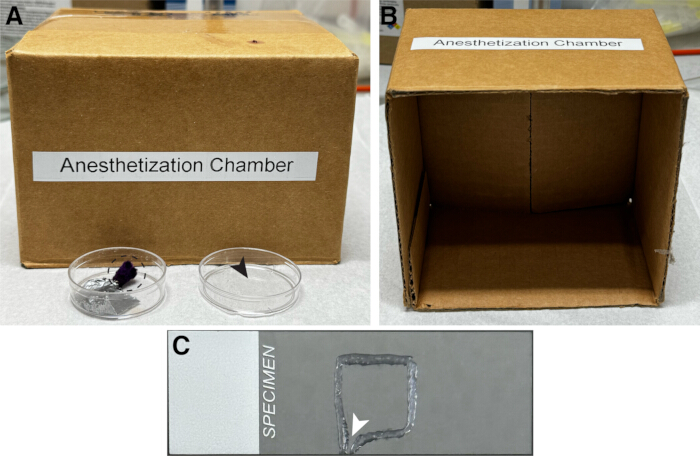
Figura 1: Componenti dell'apparato per l'anestesia. (A) Una piccola scatola di cartone che copre una piastra per colture cellulari da 35 mm contenente un applicatore per anestetico per evaporazione fissato con nastro adesivo (cerchio tratteggiato nero). Il coperchio della piastra per colture cellulari è stato utilizzato per contenere larve pulite e asciutte prima e durante l'anestesia (punta di freccia nera). (B) Vista interna della scatola. (C) Un vetrino portaoggetti con un'area delimitata da vaselina a forma di quadrato, preparata utilizzando un applicatore per henné, per contenere il campione di larve durante l'acquisizione delle immagini. Un piccolo spazio (punta di freccia bianca) facilita la rimozione dell'aria durante il posizionamento del coprioggetto. Cliccare qui per visualizzare una versione ingrandita di questa figura.
Risultati
Seguendo il protocollo descritto in precedenza, i microtubuli sono stati visualizzati con successo nei neuroni dell'arborizzazione dendritica di classe IV (da) utilizzando mNG-Jupiter in combinazione con il marcatore di membrana CD4tdTomato (Figura 2A–C). Il marcatore di membrana ha delimitato la morfologia complessiva dell’arborizzazione dendritica, mentre mNG-Jupiter ha etichettato le regioni contenenti microtubuli all’interno dei dendriti. Alle estremità distali dei dendriti terminali, la fluorescenza di mNG-Jupiter era debole o assente nelle vicinanze delle punte dendritiche, mentre la fluorescenza di CD4tdTomato rimaneva intensa nei terminali corrispondenti (Figura 2D–F).
Gli alberi dendritici non hanno mostrato differenze morfologiche evidenti rispetto alle larve analizzate con il marcatore di membrana da solo in studi precedenti11Per valutare quantitativamente se l'espressione di mNG-Jupiter causasse anomalie morfologiche, è stato contato il numero di estremità dendritiche negli alberi che esprimevano mNG-Jupiter e negli alberi di controllo a 72 h AEL. In otto cellule provenienti da otto larve mNG-Jupiter, il numero di estremità in un quarto dell'albero era di 153 ± 25 (media ± SD), rispetto a 144 ± 27 (media ± SD) nei larve di controllo (Figura 2G). Nessuna differenza significativa è stata rilevata utilizzando il test t di Welch t-test (vedere legenda della Figura 2). Pertanto, l'espressione di mNG-Jupiter non ha modificato in modo rilevabile il numero di rami dendritici.
L'immagine in time-lapse ha dimostrato il comportamento dinamico del segnale mNG-Jupiter all'interno delle dendriti terminali. Nella sequenza rappresentativa mostrata in Figura 3A, la posizione dell'estremità del microtubulo marcata con mNG-Jupiter luminoso è cambiata nel tempo. Scansioni successive del segnale mNG-Jupiter sono state disposte nel tempo per visualizzare i cambiamenti nella posizione e nella lunghezza del microtubulo. Il chilogramma risultante in Figura 3B mostra fasi alternate di estensione e ritrazione del segnale fluorescente, coerenti con la crescita e la riduzione osservate del microtubulo marcato nelle dendriti terminali (Video 1 e 2). In dendriti più spessi, più vicini al soma, il numero maggiore di microtubuli ha impedito la visualizzazione della dinamica dei singoli microtubuli.
Le immagini rappresentative e le registrazioni in time-lapse mostrano congiuntamente che il protocollo consente la visualizzazione sia della morfologia dendritica sia dei cambiamenti dinamici della fluorescenza associata ai microtubuli in neuroni sensoriali di larve di Drosophila integri. Il marcatore della membrana fornisce un riferimento per la struttura dendritica, mentre mNG-Jupiter permette di seguire nel tempo il comportamento dei microtubuli all'interno del dendrite (Figure 2 e 3).
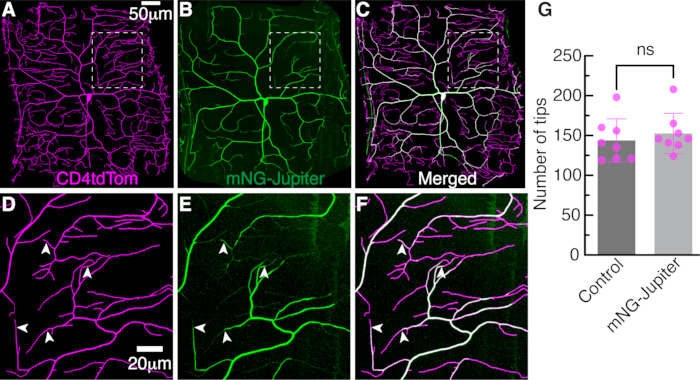
Figura 2: Dendriti nei neuroni di classe IV. L'arborizzazione dendritica di un neurone di classe IV dell'arborizzazione dendritica (da) ripresa mediante microscopia confocale a disco rotante a 72 h dalla deposizione delle uova (AEL). I microtubuli sono visualizzati utilizzando il sistema binario di espressione GAL4/UAS. Il promotore specifico per le cellule di classe IV ppk-GAL4 (pickpocket) facilita l'espressione di Jupiter marcato con mNG (UAS-mNG-Jupiter). Le membrane dendritiche sono marcate direttamente da ppk espressione mediata dal promotore di tdTomato fuso al marcatore di membrana CD4 (ppk-CD4tdTomato) (A) Marcatore di membrana, CD4tdTomato. (B) Marcatore dei microtubuli, mNG-Jupiter. (C) Immagine fusa. (D–F) Ingrandimenti delle regioni delimitate dai riquadri tratteggiati bianchi in A–C, rispettivamente, illustrano la distribuzione dei marcatori dei microtubuli e della membrana. Le frecce bianche indicano la distribuzione di mNG-Jupiter nei dendriti terminali. (G) Quantificazione del numero di estremità dendritiche in neuroni di controllo e in neuroni esprimenti mNG-Jupiter a 72 h AEL. Ogni punto rappresenta il numero di estremità contate in un quarto di un singolo neurone proveniente da una larva distinta. Sono stati analizzati otto neuroni provenienti da otto larve indipendenti per ogni gruppo. Le barre di errore rappresentano la media ± SD. I gruppi sono stati confrontati utilizzando un test t di Welch non appaiato a due code t-test; ns, non significativoP > 0.05). Fare clic qui per visualizzare una versione ingrandita di questa figura.
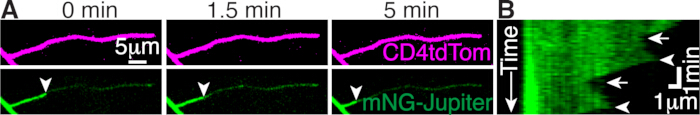
Figura 3: Dinamica dei microtubuli in una dendrite terminale. (A) Tre immagini di una dendrite terminale che esprime CD4tdTomato (in alto) e mNG-Jupiter (in basso) ai punti temporali indicati. Le frecce indicano l'estremità del microtubulo. Un segnale debole di mNG è visibile al di là del segnale intenso del microtubulo. (B) Cromosoma mostrante la crescita e il restringimento dei microtubuli. Le frecce indicano le fasi di crescita, mentre le frecce piene indicano le fasi di restringimento. Scansioni successive di linee larghe 3 pixel del segnale mNG sono disposte una sotto l'altra, con il tempo che aumenta nella direzione verso il basso. Cliccare qui per visualizzare una versione ingrandita di questa figura.
Video 1: Imaging in time-lapse di mNG-Jupiter in neuroni di classe IV di arborizzazione dendritica. Sequenza in time-lapse che mostra la fluorescenza di mNG-Jupiter nei dendriti larvali di Drosophila di classe IV. La sequenza illustra i cambiamenti nel tempo della fluorescenza associata ai microtubuli all'interno dell'arborizzazione dendritica. Le immagini sono state acquisite utilizzando le condizioni di imaging in tempo reale descritte nel Protocollo. Barra della scala, 20 µm. Cliccare qui per scaricare il file.
Video 2: Imaging in time-lapse del marcatore di membrana CD4tdTomato nei neuroni dell'arborizzazione dendritica di classe IV. Sequenza in time-lapse che mostra la fluorescenza di CD4tdTomato nell'arborizzazione dendritica di classe IV del larva di Drosophila. Il marcatore di membrana fornisce un riferimento per la morfologia dendritica durante il periodo di acquisizione delle immagini. Le immagini sono state acquisite utilizzando le condizioni di imaging in tempo reale descritte nel Protocollo. Barra della scala, 20 µm. Cliccare qui per scaricare il file.
Discussione
Questo protocollo illustra l'utilizzo di linee transgeniche di moscerini Jupiter per l'analisi in tempo reale della dinamica dei microtubuli nei neuroni sensoriali di Drosophila mediante microscopia confocale. Il metodo consente la visualizzazione della fluorescenza associata ai microtubuli in larve integre, preservando al contempo la morfologia dendritica, come valutato tramite un marcatore di membrana11,29. Un approccio simile è stato impiegato anche per l'analisi della dinamica dell'actina utilizzando GFP-actina e LifeAct-GFP nei neuroni di classe IV22,30,31,32. In linea di principio, lo stesso approccio generale potrebbe essere applicato anche all'analisi di altre proteine leganti i microtubuli nelle cellule di classe IV e in altre classi di neuroni con arborizzazione dendritica (classi I, II e III). In particolare, l'associazione dell'etichettatura fluorescente dei microtubuli con quella di EB potrebbe ridurre l'ambiguità nell'interpretazione della crescita dei microtubuli. Ad esempio, l'assenza di un "cometa" EB potrebbe indicare sia l'assenza di microtubuli sia la presenza di microtubuli non in fase di crescita attiva; la visualizzazione diretta dei microtubuli può aiutare a distinguere tra queste due possibilità. Pertanto, l'etichettatura contemporanea di mNG-Jupiter con EB1 fluorescente potrebbe permettere di interpretare la dinamica di crescita dei microtubuli nel contesto locale della loro organizzazione, abbondanza e orientamento presunto.
Diversi passaggi sono fondamentali per ottenere dati di imaging in tempo reale adeguati. Il protocollo utilizza l’anestetico volatile isoflurano per un regime di immobilizzazione definito e breve. La dose di isoflurano deve essere attentamente controllata durante l’immobilizzazione poiché un’anestesia insufficiente permette movimenti larvali, mentre un’anestesia eccessiva può portare a un degrado neuronale. È inoltre necessario evitare bolle d’aria durante il montaggio, poiché possono interferire con la qualità dell’immagine e contribuire alla deriva del campione. Inoltre, va evitata una pressione eccessiva esercitata dal coprioggetto, in quanto potrebbe causare blebbing dendritico e successivi danni neuronali. Questi passaggi sono importanti per mantenere la stabilità del campione e la morfologia dendritica durante l’acquisizione delle immagini.
Una limitazione importante di questo protocollo è che il metodo di immobilizzazione e visualizzazione, che prevede la combinazione di esposizione ad anestetici e vincolo fisico mediante il coprioggetto, potrebbe influenzare la dinamica dei microtubuli. Per determinare se i microtubuli vengono alterati in queste condizioni, possono essere utilizzati metodi alternativi di immobilizzazione, da soli o in combinazione con questo protocollo. Tali approcci includono l'acquisizione di immagini di embrioni e l'uso di mutanti sensibili alla temperatura, come Shibirets 33, seguiti dal confronto di parametri cinetici come le velocità di crescita e la frequenza di catastrofi.
Con questa limitazione, il protocollo attuale consente di acquisire immagini delle larve per circa 30 minuti dopo il montaggio, senza rigonfiamenti dendritici, deterioramento della morfologia o perdita della dinamica microtubulare e dei movimenti delle estremità rilevabili. Il metodo permette di ottenere dati ad alta risoluzione con acquisizione temporale da larve integre e di visualizzare il comportamento dinamico dei microtubuli nei dendriti terminali.
Dichiarazioni
Gli autori non hanno conflitti di interessi da dichiarare.
Ringraziamenti
Gli autori ringraziano tutti i membri del laboratorio Howard, in particolare l'ex membro del laboratorio Dott.ssa Maijia Liao, per aver avviato il progetto di marcatura dei microtubuli, e il Dott. Sonal Shree per aver sviluppato il protocollo per la visualizzazione della dinamica dendritica in Drosophila all'interno del laboratorio Howard. La ricerca descritta in questa pubblicazione è stata sostenuta dagli Istituti Nazionali di Sanità (National Institutes of Health) tramite il Premio numero R35 GM161634 (Istituto Nazionale di Scienze Mediche Generali - National Institute of General Medical Sciences) e il Premio numero R01 NS118884 (Istituto Nazionale dei Disturbi Neurologici e dell'Accidente Cerebrovascolare - National Institute of Neurological Disorders and Stroke) assegnati a J.H. I contenuti sono esclusiva responsabilità degli autori e non rappresentano necessariamente le opinioni ufficiali degli Istituti Nazionali di Sanità. Questo lavoro è stato inoltre sostenuto dal finanziamento NSF Grant PHY-2210464 e dal premio della fondazione PEW Charitable Trusts numero 38044 assegnati a J.H.
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| Acido acetico (glaciale, reagente ACS, ≥99,7%) | Sigma-Aldrich | 695092 | Utilizzato per preparare il mezzo agar-uva; 5 mL per ogni preparazione di circa 0,5 L |
| Agar (bactoagar) | Becton Dickinson | 214010 | Utilizzato per preparare il mezzo agar-uva; 15 g per ogni preparazione di circa 0,5 L |
| Applicatore anestetico | Carolina Biological Supply Co. | 173010 | Utilizzato per contenere l'isoflurano all'interno del serbatoio di evaporazione durante l'anestetizzazione delle larve |
| Beccherino, 1 L, adatto al forno a microonde | Corning Inc. | 1000-1L | Utilizzato per preparare circa 0,5 L di mezzo agar-uva |
| Beccherino, 100 mL | Corning Inc. | 1000-100 | Utilizzato per preparare la pasta di lievito |
| Plugin Bio-Formats importer | Open Microscopy Environment Project | Non applicabile | Plugin FIJI utilizzato per importare file time-lapse in formato .ND2 |
| Telecamera (sCMOS, Zyla 4.2 Plus) | Andor Technology | ZYLA-4.2P-USB3 | Sensore da 6,5 µm; utilizzato per l'acquisizione delle immagini |
| Scatola di cartone (5 × 5 × 3 pollici) | Uline | S-4579 | Utilizzata per coprire l'allestimento di anestetizzazione e ridurre il movimento dell'aria sulla piastra per colture cellulari |
| Piastra per colture cellulari | Corning Incorporated | 430165 | 35 × 10 mm; utilizzata per la manipolazione delle larve e come serbatoio di evaporazione per l'isoflurano |
| Coprioggetto | Globe Scientific Inc. | 1404-15 | 22 × 22 mm, No. 1,5; posizionato sopra la larva montata |
| Camera Darwin | Darwin Chambers | IN030-AA-LT-DA-MP | Utilizzata per mantenere gli incroci di moscerini, la deposizione delle uova e lo stadio larvale a 25 °C |
| Acqua distillata, grado reagente di laboratorio | Research Products International (RPI) | Non applicabile | Utilizzata per la preparazione dell'agar-uva, della pasta di lievito e per il lavaggio delle larve |
| Nastro adesivo in tessuto | Uline | S-6519 | Utilizzato per fissare l'applicatore anestetico all'interno della piastra per colture cellulari |
| Gabbia per deposizione delle uova/collezione di embrioni | Genesee Scientific | 59-100 | Dimensione piccola; adatta a una piastra Petri da 60 × 15 mm; utilizzata per la raccolta controllata delle uova |
| Etilene (anidro, 200 proof) | Decon Labs Inc. | V1001G | Utilizzato per preparare il mezzo agar-uva; 10 mL per ogni preparazione di circa 0,5 L |
| FIJI (Fiji Is Just ImageJ) | NIH | Versione 2.16.0/1.54p | Utilizzato per l'importazione delle immagini, la stabilizzazione, la proiezione di massima intensità, l'analisi delle ROI, la generazione di cimografie e l'estrazione dei profili di intensità |
| Linee di moscerini: (1) w; ppk-Gal4; ppk-cd4-tdTom; (2) w; w+, UASt-mNeonGreen-Jupiter-RD/CyO | Bloomington Drosophila Stock Center(1); Howard Lab (2) | BDSC# 32078, BDSC# 35845 | Utilizzate per esprimere CD4tdTomato e mNG-Jupiter nei neuroni dell'arborizzazione dendritica di classe IV |
| Succo d'uva, 100% uva Concord | Welch's | Non applicabile | Utilizzato per preparare il mezzo agar-uva; 126 mL per ogni preparazione di circa 0,5 L |
| Olio Halocarbon 700 | Sigma-Aldrich | H8898 | Utilizzato per montare le larve per l'acquisizione in vivo |
| Applicatore per henné | ZEYER | ZEYER-1005 | Utilizzato per formare l'incapsulamento in vaselina sul vetrino del microscopio |
| Stabilizzatore d'immagine | Sviluppato da Kang Li | Non applicabile | Plugin FIJI utilizzato con impostazioni di trasformazione affine per correggere la deriva del campione |
| Isoflurano | Santa Cruz Biotechnology, Inc. | sc-470926 | Utilizzato per immobilizzare le larve prima del montaggio e dell'acquisizione |
| Tessuto da laboratorio (Kimwipes) | Kimberly-Clark Professional | 34120 | Utilizzato per rimuovere l'acqua in eccesso dalle larve lavate prima dell'anestetizzazione |
| Flacone per mantenimento | Lab Express Inc. | 7001-PBT | Flacone in polipropilene con fondo quadrato, 6 oz; contiene Fly Food B (ricetta Bloomington) ed è utilizzato per mantenere le linee e gli incroci di moscerini |
| Forno a microonde | Panasonic | NN-SN686S | Utilizzato per sciogliere l'agar durante la preparazione del mezzo agar-uva |
| Microscopio invertito | Nikon Instruments Inc. | 736228 | Microscopio invertito modello Ti Eclipse dotato di sistema di messa a fuoco perfetta per l'acquisizione in vivo |
| Vetrino per microscopio | Fisherbrand | 12550143 | Vetrino Superfrost; utilizzato per montare le larve per l'acquisizione |
| Multi Kymograph | Sviluppato da Jens Rietdorf, Arne Seitz e Johannes Schindelin | Non applicabile | Plugin FIJI utilizzato per generare cimografie della dinamica dei microtubuli |
| Software Nikon Elements | Nikon Instruments Inc. | Versione 5.21.03 | Utilizzato per l'acquisizione di immagini microscopiche time-lapse e la generazione di file .ND2 |
| Obiettivo, immersione in acqua | Nikon Instruments Inc. | MRD77400 | 40×, 1,25 NA; utilizzato per l'acquisizione in vivo |
| Pennello | Dynasty | 2157r | Dimensioni 0 e 3/0; utilizzato per trasferire le larve e sigillare l'incapsulamento in vaselina |
| Piastra Petri | Falcon | 351007 | 60 × 15 mm; utilizzata per le piastre di agar-uva |
| Spátola | VWR | 82027-532 | 22,9 cm (9 pollici); utilizzata per mescolare lievito e acqua durante la preparazione della pasta di lievito |
| Unità confocale a disco rotante | Yokogawa CSU-W1 | SBW001 | Foro da 50 µm; utilizzata per l'acquisizione confocale in vivo |
| Saccarosio | Sigma-Aldrich | 57-50-1 | Utilizzato nel mezzo agar-uva e come soluzione al 5% per il lavaggio delle larve |
| Vaselina | Unilever | Non applicabile | Utilizzata per formare l'incapsulamento tra vetrino e coprioggetto |
| Lievito (Red Star Active Dry Yeast) | Lesaffre Corporation | Non applicabile | Utilizzato per preparare la pasta di lievito e sostenere la deposizione delle uova |
Riferimenti
- Kapitein LC, Hoogenraad CC. Building the neuronal microtubule cytoskeleton. Neuron. 2015;87(3):492–506.
- Howard J, Hyman AA. Dynamics and mechanics of the microtubule plus end. Nature. 2003;422(6933):753–758.
- Jan YN, Jan LY. Branching out: mechanisms of dendritic arborization. Nature Reviews Neuroscience. 2010;11(5):316–328.
- Fujishima K, Horie R, Mochizuki A, Kengaku M. Principles of branch dynamics governing shape characteristics of cerebellar Purkinje cell dendrites. Development. 2012;139(18):3442–3455.
- Grueber WB, Jan LY, Jan YN. Tiling of the Drosophila. epidermis by multidendritic sensory neurons. Development. 2002;129(12):2867–2878.
- Hwang RY, et al. Nociceptive neurons protect Drosophila. larvae from parasitoid wasps. Current Biology. 2007;17(24):2105–2116.
- Grueber WB, et al. Dendrites of distinct classes of Drosophila. sensory neurons show different capacities for homotypic repulsion. Current Biology. 2003;13(8):618–626.
- Guo Y, et al. Identification of the peptide Vulnusin, a wound signal that mediates mechanical-injury-induced nociception in Drosophila. Neuron. 2025;113(20):3352–3362.e5.
- Han C, et al. Integrins regulate repulsion-mediated dendritic patterning of Drosophila. sensory neurons by restricting dendrites in a 2D space. Neuron. 2012;73(1):64–78.
- Grueber WB, et al. Projections of Drosophila. multidendritic neurons in the central nervous system: links with peripheral dendrite morphology. Development. 2007;134(1):55–64.
- Shree S, et al. Dynamic instability of dendrite tips generates the highly branched morphologies of sensory neurons. Science Advances. 2022;8(26):eabn0080. doi: 10.1126/sciadv.abn0080.
- Ouyang X, et al. Neurons exploit stochastic growth to rapidly and economically build dense dendritic arbors. Nature Communications. 2025;16(1):5903. doi: 10.1038/s41467-025-60800-7.
- Mimori-Kiyosue Y, Shiina N, Tsukita S. The dynamic behavior of the APC-binding protein EB1 on the distal ends of microtubules. Current Biology. 2000;10(14):865–868.
- Stepanova T, et al. Visualization of microtubule growth in cultured neurons via .the use of EB3-GFP (end-binding protein 3-green fluorescent protein). Journal of Neuroscience. 2003;23(7):2655–2664.
- Piehl M, Cassimeris L. Organization and dynamics of growing microtubule plus ends during early mitosis. Molecular Biology of the Cell. 2003;14(3):916–925.
- Ori-McKenney KM, Jan LY, Jan YN. Golgi outposts shape dendrite morphology by functioning as sites of acentrosomal microtubule nucleation in neurons. Neuron. 2012;76(5):921–930.
- Stone MC, Roegiers F, Rolls MM. Microtubules have opposite orientation in axons and dendrites of Drosophila. neurons. Molecular Biology of the Cell. 2008;19(10):4122–4129.
- Zheng Y, et al. Dynein is required for polarized dendritic transport and uniform microtubule orientation in axons. Nature Cell Biology. 2008;10(10):1172–1181.
- Zanic M, Stear JH, Hyman AA, Howard J. EB1 recognizes the nucleotide state of tubulin in the microtubule lattice. PLoS One. 2009;4(10):e7585. doi: 10.1371/journal.pone.0007585.
- Carminati JL, Stearns T. Microtubules orient the mitotic spindle in yeast through dynein-dependent interactions with the cell cortex. Journal of Cell Biology. 1997;138(3):629–641.
- Straight AF, Marshall WF, Sedat JW, Murray AW. Mitosis in living budding yeast: anaphase A but no metaphase plate. Science. 1997;277(5325):574–578.
- Nanda S, Bhattacharjee S, Cox DN, Ascoli GA. Distinct relations of microtubules and actin filaments with dendritic architecture. iScience. 2020;23(12):101865. doi: 10.1016/j.isci.2020.101865.
- Lee HH, Jan LY, Jan YN. Drosophila. IKK-related kinase Ik2 and Katanin p60-like 1 regulate dendrite pruning of sensory neuron during metamorphosis. Proceedings of the National Academy of Sciences of the United States of America. 2009;106(15):6363–6368.
- Karpova N, et al. Jupiter, a new Drosophila. protein associated with microtubules. Cell Motility and the Cytoskeleton. 2006;63(5):301–312.
- Poe AR, et al. Dendritic space-filling requires a neuronal type-specific extracellular permissive signal in Drosophila. Proceedings of the National Academy of Sciences of the United States of America. 2017;114(38):E8062–E8071.
- Nanda S, Bhattacharjee S, Cox DN, Ascoli GA. Local microtubule and F-actin distributions fully constrain the spatial geometry of Drosophila. sensory dendritic arbors. International Journal of Molecular Sciences. 2023;24(7):6741. doi: 10.3390/ijms24076741.
- Hales KG, Korey CA, Larracuente AM, Roberts DM. Genetics on the fly: a primer on the Drosophila. model system. Genetics. 2015;201(3):815–842.
- Roote J, Prokop A. How to design a genetic mating scheme: a basic training package for Drosophila. genetics. G3: Genes|Genomes|Genetics. 2013;3(2):353–358.
- Shree S, Howard J. Protocol for imaging the same class IV neurons at different stages of development. Bio-protocol. 2024;14(16):e5052. doi: 10.21769/BioProtoc.5052.
- Stürner T, et al. The branching code: a model of actin-driven dendrite arborization. Cell Reports. 2022;39(4):110746. doi: 10.1016/j.celrep.2022.110746.
- Nithianandam V, Chien CT. Actin blobs prefigure dendrite branching sites. Journal of Cell Biology. 2018;217(10):3731–3746.
- Kilo L, Stürner T, Tavosanis G, Ziegler AB. Drosophila. dendritic arborisation neurons: fantastic actin dynamics and where to find them. Cells. 2021;10(10):2777. doi: 10.3390/cells10102777.
- Liao M, Liang X, Howard J. The narrowing of dendrite branches across nodes follows a well-defined scaling law. Proceedings of the National Academy of Sciences. 2021;118(27):e2022395118. doi: 10.1073/pnas.2022395118.
Ristampe e permessi
Questo articolo è stato pubblicato
Video in arrivo