Questo protocollo permette l'isolamento affidabile di cardiomiociti ventricolari vitali dal pesce killifish annuale a vita breve, Nothobranchius furzeri, in diversi gruppi d'età, ottenendo cellule adatte a studi con tecnica del whole-cell patch-clamp sul rimodellamento cardiaco associato all'età.
Articolo metodologico
Isolamento di cardiomiociti ventricolari dal pesce annual Killifish Nothobranchius furzeri per registrazioni con tecnica del patch clamp in configurazione whole-cell
In questo articolo
Sommario
Abstract
I cardiomiociti isolati e funzionanti rimangono l'approccio standard per lo studio dell'elettrofisiologia cardiaca. Le preparazioni monocellulari permettono un'indagine diretta e una misurazione precisa delle correnti ioniche e dei potenziali d'azione, senza la complessità strutturale del tessuto cardiaco integro. Nothobranchius furzeri (killifish turchese africano) si è rapidamente affermato come organismo modello di rilievo nella ricerca gerontologica grazie alla sua eccezionalmente breve durata di vita e alle somiglianze nei meccanismi dell'invecchiamento con i mammiferi, inclusi gli esseri umani. Questa specie combina vantaggi pratici come piccole dimensioni, allevamento economico e un ciclo vitale rapido con un'elevata rilevanza traslazionale. N. furzeri mostra un declino dipendente dall'età dell'attività locomotoria, delle funzioni cognitive e dell'attività organica, l'accumulo di marcatori molecolari dell'invecchiamento e una sensibilità ai trattamenti farmacologici che modulano la durata di vita e il periodo di buona salute. Tuttavia, lo studio del declino funzionale del cuore invecchiato richiede un metodo affidabile per ottenere cellule di alta qualità e vitali, adatte a tecniche monocellulari impegnative. Questo studio ha ottimizzato un protocollo precedentemente descritto per l'isolamento di cardiomiociti da Danio rerio, al fine di garantire un recupero costante di miociti sani sia da esemplari giovani che senescenti di N. furzeri. Il presente protocollo descrive l'isolamento di cardiomiociti ventricolari da N. furzeri, specificamente ottimizzato per la tecnica del patch clamp in configurazione whole-cell. L'articolo illustra come escindere in modo efficiente il cuore, eseguire la dissociazione enzimatica del miocardio mediante perfusione retrograda e conservare i cardiomiociti isolati. Discutiamo la scelta degli enzimi necessari per digerire la matrice extracellulare e le giunzioni intercellulari senza compromettere la struttura dei canali ionici. I cardiomiociti appena isolati sono adatti a saggistica elettrofisiologica ad alta risoluzione, inclusa la registrazione dei potenziali d'azione e la misurazione delle principali correnti ioniche entranti ed uscenti in diversi gruppi d'età. L'articolo affronta inoltre le peculiarità dell'isolamento di cardiomiociti nei pesci, che differiscono dalle procedure standard di isolamento nei mammiferi.
Introduzione
Il declino funzionale del cuore dipendente dall'età è determinato da rimodellamenti strutturali, molecolari ed elettrofisiologici, che collettivamente compromettono la riserva cardiaca e aumentano la suscettibilità all'aritmogenesi1. Per comprendere i meccanismi alla base dell'invecchiamento cardiaco a livello cellulare, la tecnica del patch clamp su cellula intera rappresenta uno strumento sperimentale indispensabile. Essa consente una valutazione diretta e quantitativa delle singole correnti ioniche transmembranarie e della loro cinetica, nonché dei potenziali d'azione (AP), fornendo informazioni sulle specifiche alterazioni delle correnti ioniche sottostanti alla disfunzione miocardica associata all'età. Lo studio di questi meccanismi richiede modelli vertebrati affidabili di senescenza cardiaca. Negli ultimi anni, il killifish africano turchese (Nothobranchius furzeri) si è affermato come un modello promettente per lo studio dell'invecchiamento cardiaco grazie alla sua vita naturalmente breve2,3. Studi molecolari e istologici preliminari hanno evidenziato somiglianze nei processi di invecchiamento tra Nothobranchius e i mammiferi. Indagini condotte da altri gruppi hanno dimostrato che N. furzeri presenta caratteristiche essenziali dell'invecchiamento cardiaco mammifero, tra cui l'attrizione dei telomeri, la riduzione del contenuto di DNA mitocondriale e dell'espressione degli enzimi antiossidanti, alterazioni strutturali ed elettrofisiologiche del miocardio e l'accumulo di marcatori dell'invecchiamento come la lipofuscina e un'attività aumentata della β-galattosidasi4,5,6.
Tuttavia, nonostante il crescente rilievo di N. furzeri nella ricerca cardiovascolare, la caratterizzazione elettrofisiologica dettagliata a livello di singola cellula è limitata da sfide tecniche persistenti. L'ottenimento di registrazioni di patch clamp di alta qualità dipende strettamente dall'isolamento di cardiomiociti funzionali che mantengano integrità strutturale, canali ionici intatti e una morfologia non ipercontratta. Sebbene i protocolli di dissociazione enzimatica per cardiomiociti mammiferi siano ben consolidati, l'isolamento di miociti cardiaci vitali da cuori di pesci rimane difficoltoso a causa dell'architettura tissutale non mammaliana, della resa cellulare relativamente bassa e delle piccole dimensioni del cuore7,8. I principali limiti di questa procedura sono la difficoltà tecnica di cannulare correttamente il cuore e la sensibilità del preparato a piccole variazioni nel trattamento enzimatico. Ogni interruzione del flusso di perfusione provoca un marcato deterioramento sia nella qualità che nella resa cellulare. Inoltre, anche lievi deviazioni nella concentrazione dell'enzima o nel tempo di digestione possono influenzare in modo sostanziale la vitalità cellulare e la qualità delle successive registrazioni elettrofisiologiche. Va inoltre considerata l'età dell'animale. Sebbene i cuori di pesci più anziani richiedano concentrazioni leggermente più elevate di enzima e tempi di digestione prolungati a causa del maggiore contenuto di fibre di collagene e fibroblasti2, i principi generali dell'isolamento rimangono costanti, con concentrazioni enzimatiche e tempi di esposizione che variano entro il 10% per ottenere risultati ottimali.
Di conseguenza, un protocollo dettagliato e altamente riproducibile di isolamento enzimatico è un prerequisito per far progredire la ricerca elettrofisiologica sull'invecchiamento cardiaco nei modelli ittici. Nonostante alcune somiglianze morfologiche nelle dimensioni lineari, l'isolamento dei cardiomiociti da N. furzeri richiede diverse modifiche sostanziali rispetto al protocollo utilizzato per Danio rerio. La procedura classica per l'isolamento delle cellule dal cuore del pesce zebra prevede l'immersione dell'intero cuore in una soluzione enzimatica per un periodo relativamente prolungato7,8,9. Sebbene questo approccio produca cellule vitali, può risultare eccessivamente aggressivo per il cuore di Nothobranchius e portare a una digestione enzimatica eccessiva. Questo metodo garantisce un flusso stabile di soluzioni direttamente all'interno delle camere cardiache, consentendo così un'eliminazione più efficiente del sangue dal cuore e permettendo un trattamento enzimatico più preciso e delicato. Questo articolo descrive una metodologia migliorata per l'isolamento di miociti cardiaci vitali, adatti alla tecnica del patch clamp, da N. furzeri, affrontando le principali modifiche necessarie per garantire registrazioni elettrofisiologiche di alta qualità.
Protocollo
Lo studio è stato condotto su N. furzeri della linea GRZ. Sono stati utilizzati pesci giovani sessualmente maturi di entrambi i sessi di età compresa tra 1,5 e 2 mesi (N = 19, massa corporea = 0,71 g ± 0,36 g) per registrare i potenziali d'azione e le correnti ioniche in cardiomiociti ventricolari isolati. I pesci sono stati allevati e forniti dall'Istituto di Ecologia ed Evoluzione A.N. Severtsov dell'Accademia delle Scienze della Russia. Gli animali sono stati mantenuti in acquari a 24 °C ± 1 °C con un ciclo luce/buio di 12 ore in vasche da 60–100 L. La densità animale era di 10–20 individui per vasca, in accordo con raccomandazioni precedentemente pubblicate10.
Il principio dell'isolamento dei cardiomiociti da N. furzeri si basa sul metodo classico di isolamento dei pesci descritto in precedenza e adattato ai pesci di piccole dimensioni11,12. Tutti gli esperimenti sono stati eseguiti in conformità con la Guida per la Cura e l'Uso degli Animali da Laboratorio (Istituti Nazionali di Sanità degli Stati Uniti) e con la Direttiva UE 2010/63/UE. Il protocollo sperimentale è stato approvato dal Comitato di Bioetica dell'Università Statale di Mosca Lomonosov (Domanda №202-a, approvato durante la riunione della Commissione di Bioetica №169-d tenuto il 27.02.2025). I reagenti e l'equipaggiamento utilizzati sono elencati nel Tabella dei materiali.
1. Preparazione delle soluzioni
- Preparare la soluzione di isolamento senza Ca2+ contenente (in mmol L-1): 100 NaCl, 10 KCl, 1.2 KH2PO4, 4 MgSO4, 50 taurina, 20 glucosio e 10 HEPES. Regolare il pH a 6,9 con NaOH a temperatura ambiente (24 °C). Eseguire l'isolamento utilizzando una soluzione salina a temperatura ambiente. Non è richiesta l'ossigenazione della soluzione durante l'isolamento.
NOTA: La soluzione di isolamento può essere conservata a 4 °C per 3–4 giorni in un contenitore di vetro. - Preparare 3 mL di soluzione enzimatica sulla base della soluzione priva di Ca2+, contenente 0,8 mg mL-1 di collagenasi tipo 1A, 0,5 mg mL-1 di tripsina e 0,8 mg mL-1 di albumina sierica bovina (BSA). Aggiungere gli enzimi immediatamente prima della procedura di isolamento per preservare l'attività enzimatica.
NOTA: Le concentrazioni degli enzimi potrebbero richiedere un'adeguata regolazione, poiché l'attività enzimatica può variare tra diversi lotti. - Pre-raffreddare 50–100 mL di acqua di rubinetto in frigorifero a +4 °C. L'acqua fredda è necessaria per l'analgesia del pesce.
2. Preparazione del sistema di isolamento
- Fissare due barili di siringa da 10 mL a un supporto a un'altezza di circa 35 cm.
- Collegare tubi di silicone (d = 8 mm) ai barili e unire le loro estremità libere mediante un rubinetto a tre vie per infusione.
- Riempire un tubo con la soluzione di isolamento priva di Ca2+ e l'altro con la soluzione enzimatica. Assicurarsi che non rimangano bolle d'aria nei tubi, poiché ostacolano il flusso e riducono la qualità dell'isolamento. Interrompere il flusso.
- Riempire un ago dispensatore da 32 G con soluzione priva di Ca2+ utilizzando una siringa per insulina da 1 mL, per evitare bolle d'aria alla punta dell'ago.
- Collegare l'ago riempito all'estremità libera del rubinetto a tre vie.
- Utilizzando pasta adesiva, fissare l'ago a una piastra di Petri da 100 mm in posizione parallela al piano di fondo.
- Posizionare la piastra di Petri collegata al sistema di perfusione sotto il microscopio stereoscopico e fissarla con le clip del palco e la pasta adesiva (Figura 1A).
3. Dissezione e isolamento del cuore
- Preparare gli strumenti chirurgici: due paia di forbici e pinze microchirurgiche oftalmiche e un vassoio da dissezione con quattro aghi medici.
- Prelevare l'acqua del rubinetto pre-raffreddata dal frigorifero e immergere rapidamente il pesce. Attendere finché le coperture delle branchie non smettono di muoversi.
ATTENZIONE: Verificare l'arresto del movimento opercolare per assicurare un'adeguata analgesia prima di procedere. - Rimuovere il pesce dall'acqua, posizionarlo sul vassoio da dissezione con il dorso rivolto verso l'alto e recidere il midollo spinale con le forbici oftalmiche.
- Ruotare il pesce in posizione dorsale e fissarlo al vassoio con gli aghi. Puntare la testa, la coda e gli opercoli, mantenendo gli opercoli fissati all'indietro in posizione completamente aperta per ottenere maggiore spazio.
- Eseguire un'incisione trasversale del peritoneo. Estendere l'incisione longitudinalmente lungo l'asse principale del corpo, sollevando delicatamente la pelle dagli organi viscerali con le pinze. Proseguire fino al margine della mascella inferiore e fissare i bordi della pelle a sinistra e a destra (Figura 1B).
- Individuare il ventricolo e il bulbo arterioso. Afferrare il bulbo arterioso con le pinze il più lontano possibile dal ventricolo e sollevarlo delicatamente fuori dal corpo. Senza rilasciare le pinze, recidere caudalmente rispetto al ventricolo per mantenerlo integro.
- Trasferire il cuore isolato nella capsula di Petri sotto il microscopio stereoscopico. Fissare la punta della cannula nel ventricolo inserendola prima nel bulbo arterioso, quindi facendola passare con attenzione attraverso la valvola aortica senza danneggiare i tessuti circostanti. Una cannulazione di successo può essere ottenuta nel > 90% dei cuori.
- Fissare il bulbo arterioso alla cannula con un legaccio emostatico (Figura 1C).
NOTA: Un capello umano (d = 50–70 µm) si presta bene come legaccio, poiché il filo chirurgico standard è troppo spesso per un cuore di piccole dimensioni.
4. Isolamento dei cardiomiociti
- Aprire il rubinetto a tre vie per consentire il flusso dalla siringa contenente la soluzione priva di Ca2+. Se eseguito correttamente, il ventricolo si riempie di soluzione e si espande. La portata è stata impostata a 43 µL min-1.
- Tagliare i residui dell'atrio e del seno venoso con forbici microchirurgiche senza danneggiare le pareti ventricolari.
- Perfondere il cuore per 10–12 minuti monitorando un flusso uniforme. Comprimere delicatamente il tubo di silicone per erogare un impulso transitorio di soluzione che espanda le trabecole ventricolari e rimuova il sangue residuo. Un lavaggio efficace è indicato dall'arresto cardiaco e dalla cessazione del flusso di eritrociti osservato al microscopio stereoscopico.
- Commutare il rubinetto in modo da indirizzare la soluzione enzimatica verso il ventricolo. Perfondere per 4–6 minuti. Verificare visivamente il trattamento enzimatico attraverso la perdita di integrità della parete ventricolare e il distacco di piccoli frammenti miocardici.
CAUTELA: Evitare il prelievo o il trasferimento del perfusato su un microscopio invertito per l'esame, poiché ciò potrebbe causare perdita o danno meccanico del materiale cellulare e interrompere il monitoraggio continuo della qualità della perfusione. È preferibile fare affidamento sui segni di isolamento riuscito descritti sopra, chiaramente visibili al microscopio binoculare. - Aggiungere un piccolo aliquota (300–400 µL) di soluzione priva di Ca2+ in una piastra per colture cellulari da 35 mm. Separare il ventricolo dal bulbo arterioso e trasferirlo nella piastra.
- Minuzionare il ventricolo con forbici fini, quindi triturare delicatamente il tessuto aspirando e rilasciando ripetutamente con una micropipetta da 100 µL dotata di punta tagliata.
- Trasferire la sospensione cellulare in una provetta da 1500 µL. Esaminare un aliquota al microscopio invertito a basso ingrandimento (10×). Stimare visivamente la densità di cardiomiociti a forma di bastoncello striati nel campo visivo. Se il campo è affollato, con molti bastoncelli sovrapposti (>50 per campo a 10×), aggiungere soluzione priva di Ca2⁺ per ridurre la densità cellulare ed evitare un eccessivo affollamento nella camera di registrazione. Lasciare sedimentare le cellule a 4 °C per 40–50 minuti prima della registrazione.
NOTA: Le cellule possono essere mantenute a 4 °C durante il periodo di sedimentazione; utilizzarle per le registrazioni entro 8 ore dall'isolamento.
5. Registrazioni con tecnica del patch clamp su cellula intera
- Preparare le soluzioni extracellulari e intracellulari per le diverse registrazioni delle correnti ioniche e dei potenziali d'azione elencate nella Tabella 1.
- Prelevare le pipette per il patch da capillari di vetro borosilicato a parete sottile (senza filamento) utilizzando un estrattore verticale e riempirle con la soluzione intracellulare. La resistenza della pipetta riempita deve essere compresa tra 2,0 e 3,0 MΩ per tutte le configurazioni di registrazione.
- Riempire il serbatoio di perfusione con la soluzione da bagno extracellulare e preparare i tubi eliminando tutte le bolle d'aria prima di posizionare le cellule nella camera di registrazione.
- Aggiungere un piccolo volume (30–40 µL) della sospensione di cardiomiociti isolati nella camera di registrazione con fondo in vetro e lasciare sedimentare le cellule per 5–10 min.
- Collegare la pipetta allo stadio della testa dell'amplificatore. Guidati al microscopio, abbassare la pipetta verso il cardiomiocita bersaglio utilizzando il micromanipolatore finché la punta non entra in contatto con la membrana, visibile come una lieve fossetta e un aumento della resistenza della pipetta.
- Applicare una leggera aspirazione negativa per stabilire un sigillo ad alta resistenza (GΩ), che si forma tipicamente entro pochi secondi.
- Impostare il potenziale di mantenimento a -80 mV. Rotturare la membrana mediante una serie di brevi impulsi di aspirazione. Dopo aver stabilito la configurazione whole-cell, minimizzare i transitori capacitivi e compensare la capacità cellulare e la resistenza in serie (di accesso) utilizzando i circuiti di compensazione dell'amplificatore.
- Compensare queste correnti capacitive mediante i controlli di Capacità cellulare e Resistenza in serie presenti sull'amplificatore. Regolare il controllo di Capacità cellulare per minimizzare il transitorio capacitivo principale, quindi regolare il controllo di Resistenza in serie per ridurre l'overshoot residuo fino a quando non è quasi annullato e la corrente di base è piatta.
- Accettare solo cellule con una resistenza di accesso stimata dopo compensazione ≤10–12 MΩ per la registrazione dei potenziali d'azione e delle correnti ioniche. Procedere quindi con la registrazione dei potenziali d'azione o delle correnti ioniche, aggiungendo i blocanti specifici elencati nella Tabella 2 prima della registrazione, quando richiesto.
- Registrare utilizzando un software di acquisizione per patch clamp che consenta la configurazione di protocolli di stimolazione personalizzati per ciascuna corrente bersaglio. I protocolli di voltage-clamp utilizzati in questo studio sono mostrati nella Figura 2.
Risultati
Questo protocollo permette di ottenere cardiomiociti ventricolari singoli, di forma allungata, da N. furzeri, adatti a registrazioni con tecnica del patch clamp su cellula intera ad alta risoluzione. Un isolamento di successo viene valutato innanzitutto in base alla morfologia cellulare e alla qualità del sigillo, quindi confermato funzionalmente dalla capacità di registrare potenziali d'azione stabili e ciascuna delle principali correnti ioniche con la dipendenza dal voltaggio e l'ampiezza previste. Le registrazioni rappresentative riportate di seguito sono state ottenute da esemplari giovani di N. furzeri e definiscono i valori di riferimento che indicano una cellula sana e adeguatamente clamped. Le deviazioni rispetto a questi parametri indicano generalmente un isolamento subottimale e sono descritte accanto a ciascun criterio.
Morfologia cellulare e formazione del sigillo
I cardiomiociti ventricolari di N. furzeri vitali appaiono allungati e a forma di bastoncino, con un sarcolemma liscio e morfologicamente integro (Figura 3). In alcune cellule, al microscopio ottico era possibile distinguere una debole striatura trasversale, sebbene non fosse risolta in modo costante in tutte le cellule; pertanto, il criterio principale per la selezione delle cellule da registrare è stato rappresentato dal membro liscio e integro e dalla morfologia allungata e a bastoncino. Tali cellule formano facilmente un sigillo ad alta resistenza (>1 GΩ) e tollerano la rottura della membrana. Al contrario, le cellule arrotondate, contratte, granulari o gonfie sono segni di sovradigestione o di danni meccanici: sigillano male, si deteriorano rapidamente e devono essere scartate. Una cellula sana mantiene un potenziale di membrana a riposo stabile e presenta una perdita minima al potenziale di clamping di -80 mV.
Caratteristiche della registrazione con tecnica del patch clamp
Le registrazioni con tecnica del whole-cell patch-clamp sono state effettuate a 22–24 °C utilizzando un amplificatore per patch-clamp. I segnali sono stati campionati a 10 kHz e filtrati passa-basso a 1–2 kHz. Il guadagno in uscita (α) è stato impostato a ×0,5 per ottimizzare la risoluzione del segnale sul convertitore analogico-digitale. La resistenza in serie è stata compensata del 70%–80%; ritardo di 10 µs. Le registrazioni sono state scartate se la resistenza di accesso stimata superava i 10–12 MΩ o variava di oltre circa il 10% durante la registrazione. Per le registrazioni dei potenziali d'azione e delle correnti ioniche, non è stata applicata la sottrazione lineare della corrente di perdita.
Le cellule sono state escluse dall'analisi se soddisfacevano uno dei seguenti criteri: potenziale di membrana a riposo meno negativo di −70 mV in modalità di clampaggio della corrente; incapacità di formare un gigaseal stabile (>1 GΩ); resistenza di accesso >10–12 MΩ dopo la compensazione; rapido esaurimento delle correnti ioniche durante la registrazione; danno morfologico (aspetto arrotondato, granulare o ipercontratto).
Potenziali d'azione (controllo positivo della vitalità)
I potenziali d'azione registrati in modalità clamp di corrente forniscono la valutazione più diretta della vitalità elettrica di un cardiomiocita isolato. Indurre i potenziali d'azione mediante impulsi di corrente depolarizzanti di 1 ms (0,4–1 nA, circa il 30% al di sopra della soglia). Impostare la frequenza di stimolazione a 0,3 Hz. Registrare i potenziali d'azione dopo circa 5 minuti, una volta che l'onda ha raggiunto uno stato stazionario stabile. In un cardiomiocita ben isolato da N. furzeri giovane, il potenziale di membrana a riposo (RMP) è stabile e prossimo a -85 mV (Figura 4B). Il potenziale d'azione supera di poco i +30 mV, mostrando una salita chiara di tipo tutto-o-nulla (Figura 4A). Le caratteristiche tipiche del potenziale d'azione includono un APD90 di circa 530 ms, un APD50 di circa 460 ms e una velocità massima di salita (dV/dtmax) di circa 50 V s-1. Un RMP depolarizzato (meno negativo di circa -70 mV), un superamento ridotto o assente, una velocità di salita rallentata o l'incapacità di sostenere scariche ripetitive con ampiezza e durata stabili nella maggior parte dei casi indicano una cellula danneggiata o mal clampata, che non può essere utilizzata per valutare le caratteristiche del potenziale d'azione.
Corrente rapida del sodio (INa)
La corrente sodica rapida è alla base della fase iniziale del potenziale d'azione ed è un marcatore sensibile dell'integrità della membrana e della qualità del clamp. Utilizzando le soluzioni a base di Cs+ riportate nella Tabella 1, INa viene registrata come una corrente entrante di grande ampiezza, con attivazione e inattivazione rapide (Figura 5A). In miociti giovani e sani, INa diventa rilevabile intorno a -60 mV, raggiunge una densità di picco di circa -13 pA pF−1 a circa -30 mV e si inverte intorno a +20 mV (Figura 5B). La costante di tempo di inattivazione diminuisce da ~8 ms a -50 mV a ~2 ms a -10 mV, e il voltaggio di mezza inattivazione si trova intorno a -70 mV13 (Figura 5C,D). Un'ampiezza ridotta in modo significativo della corrente di picco, un potenziale di inversione spostato o mal definito, oppure cinetiche di attivazione/inattivazione rallentate e alterate indicano un controllo inadeguato del voltaggio (errore di resistenza in serie) o un'integrità della membrana compromessa, piuttosto che il processo di isolamento in sé.
Correnti di calcio (ICaL e ICaT)
Registrati con soluzioni per la corrente del calcio (Tabella 1), i cardiomiociti di N. furzeri mostrano una corrente netta entrante di calcio con due componenti. La corrente inizia ad attivarsi a circa -60 mV, indicando una componente di tipo T (ICaT) in aggiunta alla corrente dominante di tipo L (ICaL), e raggiunge una densità massima di circa -7 pA pF−1 tra -10 mV e 0 mV (Figura 6B). L'identità delle componenti è confermata farmacologicamente: 10 µM di nifedipina bloccano parzialmente la corrente, mentre 100 µM provocano un'inibizione quasi completa (Figura 6A). È importante notare che una concentrazione di nifedipina di 100 µM è stata utilizzata solo in specifici esperimenti di controllo per verificare che la corrente residua dopo 10 µM di nifedipina sia completamente sensibile a concentrazioni più elevate e quindi possa essere identificata come ICaT. Per le registrazioni di routine standard, 50 µM sono sufficienti per bloccare completamente la corrente netta ICa. La componente ICaL è definita come la corrente evocata da un potenziale di mantenimento di -50 mV, mentre ICaT è ottenuta come differenza tra la corrente registrata a -90 mV e la ICaL isolata (Figura 6C,D). Una corrente entrante ben risolta, sensibile alla nifedipina, con le descritte tensioni di attivazione e di corrente massima, indica canali del calcio ben preservati.
Correnti del potassio rettificatore ritardato (IKr e IKs)
La presenza di correnti di potassio uscenti conferma che il meccanismo di ripolarizzazione rimane funzionalmente integro dopo l'isolamento. Nelle condizioni farmacologiche indicate (Tabella 2), una depolarizzazione a -40 mV e valori superiori induce una corrente uscente in tutte le cellule sane. Due componenti sono distinguibili mediante l'uso di bloccanti selettivi: il rettificatore ritardato lento (IKs), sensibile allo chromanol 293B (20 µM), e il rettificatore ritardato rapido (IKr), sensibile all'E4031 (1 µM) (Figura 7A,B). Nei miociti di pesci giovani, sia IKs che IKr raggiungono una densità di circa 1 pA pF−1 a potenziali fortemente depolarizzati (Figura 7C,D). La presenza di entrambi i componenti del rettificatore ritardato, che svolgono un ruolo fondamentale nella ripolarizzazione ventricolare umana ma contribuiscono in misura minore nei modelli standard di roditori14, rappresenta una conferma chiave che la cellula registrata è un miocita ventricolare di N. furzeri con correnti di ripolarizzazione integre.
Corrente rettificatrice interna di fondo (IK1)
La corrente di rettificazione entrante di fondo determina il potenziale di membrana a riposo ed è convenientemente valutata mediante un protocollo di rampa di tensione da +60 a -120 mV (Figura 7E). In una cellula sana, IK1 si inverte intorno a -80 mV, coerentemente con il potenziale di membrana a riposo misurato in modalità di blocco della corrente. A potenziali positivi rispetto al potenziale di inversione, IK1 mostra un caratteristico rigonfiamento all'uscita, con un picco di alcune pA pF−1 (Figura 7F). Un potenziale di inversione molto distante da -80 mV o una notevole perdita costante indica una scarsa sigillatura o una membrana danneggiata.
Nel complesso, una preparazione è considerata riuscita quando produce cellule allungate, di forma bastoncellare, con membrane lisce e integre che formano sigilli del valore di gigaohm e mostrano il profilo del potenziale d'azione di riferimento e le caratteristiche correnti descritte in precedenza. L'ottenimento di diverse cellule di questo tipo da un singolo cuore conferma che la dissociazione enzimatica ha preservato sia l'integrità della membrana sia il completo repertorio di canali ionici cardiaci necessari per successivi studi elettrofisiologici.
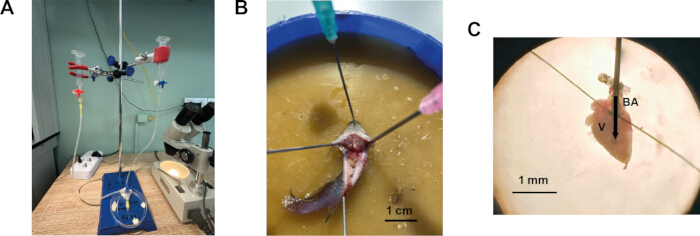
Figura 1: Procedura per l'isolamento di cardiomiociti ventricolari dal cuore di N. furzeri. (A) Sistema modificato per l'isolamento di cardiomiociti adatto a pesci di piccole dimensioni. (B) Pesce fissato su un vassoio per dissezione, con il lato ventrale rivolto verso l'alto, e peritoneo inciso in senso trasversale e longitudinale. (C) Cuore di N. furzeri cannullato e fissato per la perfusione. BA – bulbo arterioso, V – ventricolo. La freccia indica la direzione del flusso della soluzione verso il ventricolo. Cliccare qui per visualizzare una versione ingrandita di questa figura.
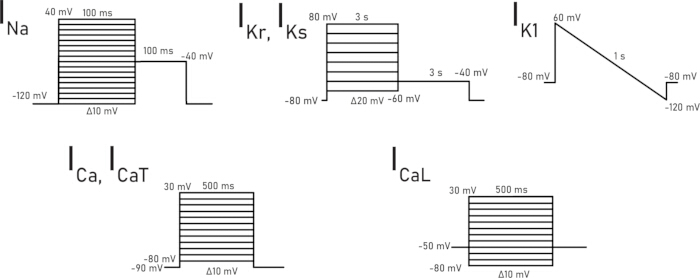
Figura 2: Protocolli di voltage-clamp utilizzati per registrare ciascuna corrente ionica specifica. Cliccare qui per visualizzare una versione ingrandita di questa figura.
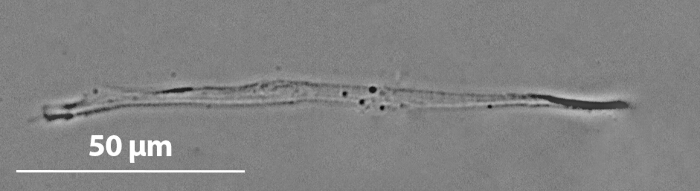
Figura 3: Microfotografia rappresentativa di un cardiomiocita ventricolare da N. furzeri giovane. Cliccare qui per visualizzare una versione ingrandita di questa figura.
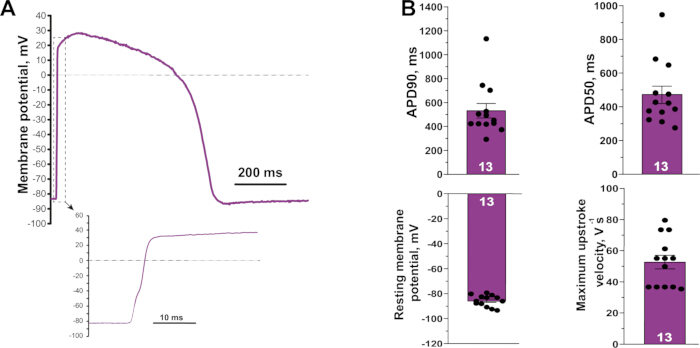
Figura 4: Potenziale d'azione rappresentativo registrato da un cardiomiocita ventricolare di un esemplare giovane di N. furzeri. (A) Forma d'onda del potenziale d'azione. L'insetto mostra la rapida fase ascendente su una scala temporale espansa. (B) Caratteristiche del potenziale d'azione misurate da miociti giovani isolati (potenziale di membrana a riposo, APD50, APD90 e velocità massima della fase ascendente). (N = 7, n = 13). I valori sono espressi come media ± S.E.M. Cliccare qui per visualizzare una versione ingrandita di questa figura.
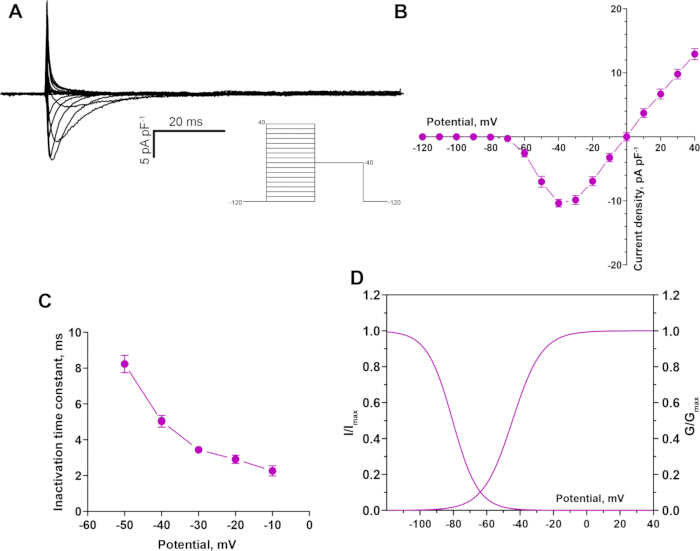
Figura 5: Corrente sodica rapida (INa) registrata da un cardiomiocita ventricolare di N. furzeri giovane. (A) Registrazione rappresentativa della INa. (B) Relazione corrente-tensione per la INa, che si attiva intorno a -60 mV con un picco vicino a -30 mV. (C) Dipendenza dalla tensione della costante di tempo di inattivazione. (D) Curve di attivazione e inattivazione allo stato stazionario. (N = 5, n = 11). I valori sono espressi come media ± S.E.M. Cliccare qui per visualizzare una versione ingrandita di questa figura.
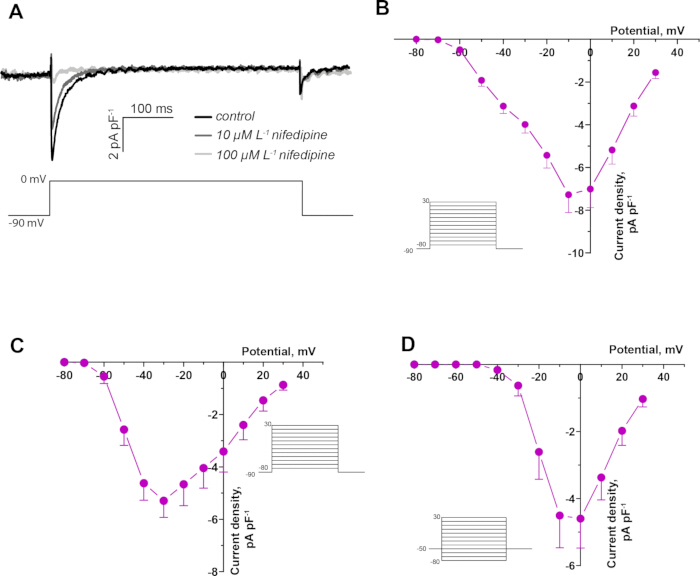
Figura 6: Correnti del calcio in un cardiomiocita ventricolare giovane di N. furzeri. (A) Registrazione rappresentativa della corrente netta del calcio in condizioni di controllo e in presenza di 10 µM e 100 µM di nifedipina in un cardiomiocita ventricolare giovane di N. furzeri. (B) Relazione corrente-voltaggio per la corrente netta del calcio, che si attiva intorno a -60 mV con un picco vicino a -10 mV (N = 5, n = 11). (C) Relazione corrente-voltaggio per il componente di tipo T (ICaT) (N = 3, n = 6). (D) Relazione corrente-voltaggio per il componente di tipo L (ICaL) (N = 5, n = 7). I valori sono espressi come media ± S.E.M. Cliccare qui per visualizzare una versione ingrandita di questa figura.
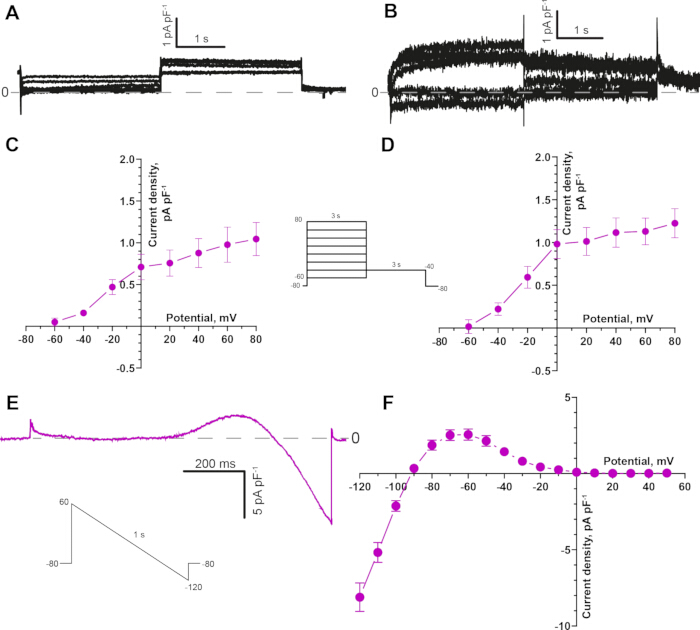
Figura 7: Correnti del potassio nei giovani N. furzeri cardiomiociti ventricolari. (A) Registrazione rappresentativa della corrente rettificatrice ritardata lenta (IKs), isolati in presenza di E4031 (1 µM) per bloccare IKr. (BRegistrazione rappresentativa della corrente rettificatrice ritardata rapida (IKr), isolata in presenza di cromanol 293B (20 µM) per bloccare IKs. (CRelazione corrente-tensione per IKs attuale (N = 5, n = 9). (DRelazione corrente-tensione per IKr attuale (N = 5, n = 10). (E) I rappresentativoK1 registrato con un protocollo a rampa di tensione decrescente da +60 mV a -120 mV. (F) Relazione corrente-tensione per IK1, invertendosi a circa -80 mV (N = 5, n = 18). I valori sono espressi come media ± M.E.D. Cliccare qui per visualizzare una versione ingrandita di questa figura.
| Nome della soluzione | Reagente e concentrazione (mM) |
| Soluzione extracellulare per potenziale d'azione e correnti del potassio | 150 NaCl, 3 KCl, 1,2 MgCl2, 1,8 CaCl2, 10 glucosio, 10 HEPES; pH 7,4 aggiustato con NaOH |
| Soluzione intracellulare per potenziale d'azione e correnti del potassio | 140 KCl, 1 MgCl2, 5 EGTA, 4 MgATP, 0,03 Na2GTP e 10 HEPES; pH 7,2 aggiustato con KOH |
| Soluzione extracellulare per corrente del sodio | 20 NaCl, 123 CsCl, 1 MgCl2, 1,8 CaCl2, 10 glucosio e 10 HEPES; pH 7,2 aggiustato con CsOH |
| Soluzione intracellulare per corrente del sodio | 5 NaCl, 130 CsCl, 1 MgCl2, 5 EGTA, 10 HEPES, 4 MgATP, 0,03 Na2GTP e 15 TEA; pH 7,2 aggiustato con CsOH |
| Soluzione extracellulare per corrente del calcio | 150 NaCl, 3 CsCl, 1 MgCl2, 1,8 CaCl2, 10 glucosio e 10 HEPES; pH aggiustato a 7,2 con NaOH |
| Soluzione intracellulare per corrente del calcio | 130 CsCl, 1 MgCl2, 5 EGTA, 10 HEPES, 4 MgATP, 0,03 Na2GTP e 15 TEA; pH 7,2 aggiustato con CsOH. |
Tabella 1: Composizione delle soluzioni extracellulari e intracellulari per la registrazione con patch-clamp di potenziali d'azione e correnti ioniche.
| Corrente registrata | Concentrazione del bloccante (μM) | |
| 1. | Potenziale d'azione | Nessun bloccante richiesto |
| 2. | IKr | 50 Nifedipina, 20 Cromanol 293B |
| 3. | IKs | 50 Nifedipina, 1 E4031 |
| 4. | IK1 | 50 Nifedipina, 20 Cromanol 293B, 1 E4031 |
| 5. | INa | 50 Nifedipina |
| 6. | ICaT | 1 Tetrodotossina |
| 7. | ICaL | 1 Tetrodotossina |
Tabella 2: Blocanti farmacologici aggiunti alle soluzioni extracellulari per la registrazione selettiva di una determinata corrente ionica.
Discussione
Un'isolazione riuscita di cardiomiociti ventricolari vitali da N. furzeri rappresenta un avanzamento metodologico che consente la caratterizzazione elettrofisiologica diretta del rimodellamento cardiaco legato all'età a livello cellulare. Questa risoluzione è essenziale per identificare i meccanismi ionici specifici alla base della disfunzione cardiaca legata all'età, che non possono essere distinti mediante preparazioni di organo o cuore intero. Lo studio di cardiomiociti nativi fornisce un'analisi diretta di come l'invecchiamento modifichi le proprietà elettrofisiologiche fondamentali, inclusi i correnti ionici e le caratteristiche del potenziale d'azione.
Diversi passaggi del presente protocollo sono fondamentali per ottenere cardiomiociti di alta qualità, adatti alla tecnica del patch-clamp, da N. furzeri. In primo luogo, l'attività enzimatica varia tra i diversi lotti, pertanto le concentrazioni di collagenasi e tripsina devono essere ottimizzate per ogni preparazione. Una digestione eccessiva provoca danni alla membrana e perdita della funzionalità dei canali ionici, mentre una digestione insufficiente produce poche cellule e impedisce un contatto stabile tra pipetta e membrana. Le cellule isolate mantengono una morfologia allungata, di forma bastoncellare, con un sarcolemma liscio e integro, indicativo della preservazione dell'integrità cellulare durante l'isolamento; in alcune cellule, è possibile osservare anche una debole striatura sarcomerica al microscopio ottico. Questa integrità è fondamentale per ottenere dati elettrofisiologici affidabili, poiché le cellule danneggiate spesso mostrano alterazioni della funzionalità dei canali ionici e compromissione delle proprietà della membrana. In secondo luogo, le piccole dimensioni del cuore di N. furzeri rappresentano una sfida tecnica che richiede un'attenta ottimizzazione dell'isolamento enzimatico e una dissezione manuale precisa, e il numero di cellule ottenute per cuore è inferiore rispetto alle preparazioni mammaliane. Inoltre, una perfusione non uniforme o una fuoriuscita di liquido dal cuore cannulato costituiscono tra le difficoltà più comuni che possono verificarsi durante la procedura. Esercitarsi nella cannulazione su diversi cuori per sviluppare un angolo e una profondità di inserimento costanti. Assicurarsi che la punta dell'ago sia priva di bolle d'aria e che il bulbo arterioso sia legato saldamente senza recidere il tessuto. Prima di procedere alla registrazione, verificare che le cellule abbiano forma bastoncellare, con una membrana liscia e integra (in alcune cellule potrebbe essere visibile una leggera striatura). Le cellule arrotondate o granulari devono essere scartate. Controllare che tutte le soluzioni siano state preparate fresche e correttamente tamponate al pH appropriato. Assicurarsi che la resistenza della pipetta rientri nel range raccomandato (2,0–3,0 MΩ). Durante la registrazione, verificare i parametri dell'amplificatore descritti in precedenza; la resistenza di accesso dopo compensazione non deve superare i 10–12 MΩ; il potenziale di membrana a riposo deve essere meno negativo di −70 mV in modalità current-clamp, e la cellula deve formare un gigaseal stabile.
Tuttavia, il protocollo consente di ottenere in modo affidabile cellule di alta qualità adatte a registrazioni mediante patch clamp e potenzialmente ad altre applicazioni, stabilendo N. furzeri come un modello pratico per lo studio dell'invecchiamento cardiaco cellulare. N. furzeri presenta evidenti vantaggi rispetto ai tradizionali modelli mammiferi negli studi sull'invecchiamento cardiaco. Essendo il vertebrato con la vita più breve che possa essere allevato in cattività, permette studi longitudinali sull'invecchiamento cardiaco entro tempi praticabili, a differenza dei modelli murini che richiedono 18–24 mesi per raggiungere età biologiche comparabili15. Nonostante la breve durata della vita, mostra caratteristiche chiave dell'invecchiamento cardiaco nei vertebrati, tra cui un rimodellamento elettrofisiologico, una durata del potenziale d'azione preservata con ridotta velocità di fase ascendente e una downregolazione di importanti correnti ioniche6.
Confronto con gli approcci esistenti per l'isolamento dei cardiomiociti.
L'isolamento enzimatico di cardiomiociti ventricolari vitali è un prerequisito ben consolidato per l'elettrofisiologia a livello di singola cellula in un'ampia gamma di specie. Nei mammiferi, l'approccio considerato standard aureo si basa sulla perfusione retrograda dell'aorta con un buffer privo di calcio, seguita da una soluzione contenente enzimi, tipicamente collaghenasi e proteasi, applicata al cuore integro sotto pressione e temperatura controllate. Questa strategia consente una distribuzione uniforme degli enzimi attraverso la vascolarizzazione coronarica, un efficiente lavaggio del sangue e una dissociazione relativamente delicata del miocardio, producendo un elevato numero di miociti a forma di bastoncino adatti a registrazioni di patch-clamp ad alta risoluzione16,17.
Nei pesci teleostei, tuttavia, l'organizzazione anatomica del cuore e l'assenza di un sistema arterioso coronarico paragonabile a quello dei mammiferi richiedono importanti modifiche. Nel pesce zebra, uno dei modelli di piccoli pesci più utilizzati nella ricerca cardiovascolare, l'isolamento con successo dei cardiomiociti ventricolari si basa sulla digestione del cuore integro in una soluzione enzimatica per un periodo relativamente prolungato8,9. In questi protocolli, il cuore asportato viene trasferito direttamente in una goccia o in un piccolo volume di soluzione enzimatica, dove viene incubato a temperatura ambiente o a una temperatura appropriata per la specie, seguito da triturazione meccanica per rilasciare cellule singole. È stato dimostrato che questo approccio consente di ottenere cardiomiociti vitali e striati, idonei alla registrazione delle principali correnti ioniche11.
Nonostante la sua utilità, la strategia di digestione in batch presenta diversi limiti quando viene applicata a cuori molto piccoli o particolarmente fragili. In primo luogo, l'esposizione agli enzimi è meno controllata: gli strati esterni del ventricolo sono esposti a una concentrazione enzimatica effettiva più elevata per un periodo di tempo più lungo rispetto agli strati interni, il che può portare a una digestione eterogenea e a una miscela di cellule sottodigerite e sovradigerite. In secondo luogo, l'immersione prolungata in soluzione enzimatica aumenta il rischio di sovradigestione, specialmente quando l'attività degli enzimi varia tra diversi lotti o quando il cuore è eccezionalmente piccolo. In terzo luogo, la rimozione del sangue si basa principalmente sulla diffusione passiva e su risciacqui manuali delicati, che potrebbero non essere sufficienti per rimuovere completamente il sangue dagli stretti spazi luminari di un ventricolo di teleosteo di piccole dimensioni.
Sono stati mantenuti i principi generali del trattamento senza calcio, della digestione enzimatica e della triturazione delicata. Tuttavia, lo studio ha modificato l'erogazione delle soluzioni cannullando il bulbo arterioso e perfondendo direttamente la cavità ventricolare. Questo approccio consente al ricercatore di lavare il sangue dagli spazi ventricolari prima della digestione, di passare da una soluzione all'altra senza dover spostare il cuore e di interrompere il trattamento enzimatico quando la parete ventricolare inizia a distaccarsi. Queste modifiche sono particolarmente importanti per il cuore piccolo e delicato di N. furzeri, in cui un'immersione prolungata nella soluzione enzimatica potrebbe causare una digestione eccessiva e una riduzione della qualità cellulare.
Applicazioni future
Il presente metodo di isolamento apre diverse prospettive per la ricerca futura. In primo luogo, consente la caratterizzazione sistematica dei cambiamenti dipendenti dall'età nella morfologia del potenziale d'azione e nella densità, cinetica e dipendenza dal voltaggio delle correnti ioniche nei cardiomiociti di N. furzeri, integrando le recenti descrizioni molecolari e istologiche dell'invecchiamento cardiaco in questa specie2,3,4,5. In secondo luogo, il protocollo può essere combinato con strumenti farmacologici per verificare come interventi che modulano la durata della vita o il periodo di buona salute influenzino l'elettrofisiologia cardiaca a livello cellulare singolo. In terzo luogo, i cardiomiociti isolati di N. furzeri possono essere utilizzati per applicazioni oltre le registrazioni mediante patch-clamp, inclusi analisi molecolari (qPCR, RNA-seq, proteomica) dei cambiamenti legati all'età nell'espressione dei canali ionici e nelle modifiche post-traduzionali, immunocitochimica e imaging ad alta risoluzione dell'organizzazione sarcomerica. Infine, il quadro metodologico qui descritto può essere adattato ad altri modelli teleostei di piccole dimensioni con anatomia e dimensioni cardiache simili, ampliando così l'utilità di N. furzeri come modello traslazionale per la ricerca sull'invecchiamento cardiaco.
Dichiarazioni
Gli autori dichiarano di non avere interessi finanziari in conflitto.
Ringraziamenti
Questo lavoro è stato sostenuto dal Russian Science Foundation (Grant No. 22-14-00075). Gli autori ringraziano Andrei Nikiforov per l'assistenza nella riproduzione e nel mantenimento della popolazione di Nothobranchius furzeri utilizzata in questo studio.
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| Siringa da 1 mL per insulina | Med Aim | 939863 | |
| Siringhe da 10 mL | Changzhou Jinlong Medical Plastic Appliancy Co | - | |
| Piastra di Petri da 100 mm | SARSTEDT | 83.3902 | |
| Pipetta microlitrica da 100 μL | Thermo Scientific | 4640040 | |
| Piastra per colture cellulari da 35 mm | SPL LIFE SCIENCES | 11035 | |
| Rubinetto a tre vie per infusione | iLife Medical Devices Pvt. Ltd | 902.07.10 | |
| Provetta da 500 μL | Eppendorf | EP0030124537-500EA | |
| Puntale da 5-200 μL | Deltalab | 200009 | |
| Amplificatore | Molecular devices | Axopatch 200B | |
| Blu Tack | BOSTIK | 202401906 | |
| Capillari in vetro borosilicato | Sutter Instrument | B150-110-10 | |
| Albumina sierica bovina | Dia-M | 9048-46-8 BSA.0100 | |
| CaCl2*2H20 | Sigma-Aldrich | C5080 | |
| Chromanol 293B | Sigma-Aldrich | C2615 | |
| Collagenasi di tipo 1A | Sigma-Aldrich | C9891 | |
| CsCl | Acros Organics | 422855000 | |
| CsOH | Sigma-Aldrich | 232068 | |
| Ago dispensatore (32G) | BSTEAN | 744370739503 | |
| E4031 | MedChemExpress | HY-15551 | |
| EGTA | Sigma-Aldrich | E-4378 | |
| Glucosio | helicon | Solarbio G8150-500G | |
| HEPES | Sigma-Aldrich | H3375 | |
| Microscopio invertito | Nikon | - | Eclipse Ti-S |
| KCl | Chimmed | 00000000089 | |
| KH2PO4 | helicon | SRL-90654-500G | |
| KOH | helicon | SRL-38630-1KG | |
| MgATP | MACKLIN | A922363 | |
| MgCl2*6H2O | helicon | Solarbio M8161 | |
| MgSO4*7H2O | helicon | SRL-74440-500G | |
| Micromanipolatore | RWD | MM-500 | |
| Pinzette microchirurgiche oftalmiche | CILITA | F-111T | |
| Forbici microchirurgiche oftalmiche | CILITA | S-056S | |
| Na2GTP | Sigma-Aldrich | 51120 | |
| NaCl | helicon | H-1418-1.0 | |
| NaOH | helicon | SRL-13913-500G | |
| Nifedipina | Sigma-Aldrich | N7634 | |
| Sistema di perfusione | Biotechnologies | Bio_4_p | |
| Tirafili per pipette | Narishige Group | PC-10 | |
| Tubi in silicone (d = 8 mm) | MEDSIL | TY 9398-004-18037666-94 | |
| Stativo | NV-lab | 00000034085 | |
| Microscopio stereoscopico | Labkompleks LCC | 10557 | |
| Taurina | Acros Organics | 166545000 | |
| Cloruro di tetraetilammonio (TEA) | Merck | 822148 | |
| Tetrodotossina | Tocris Bioscience | 1078 | |
| Tripsina | Sigma-Aldrich | T0303 | |
| Software WinWCP | University of Strathclyde | - | V5.7.5 |
Riferimenti
- Nakou E et al. Healthy aging and myocardium: a complicated process with various effects in cardiac structure and physiology. Int J Cardiol. 2016;209:167-175.
- Ma X et al. Nothobranchius furzeri: a vertebrate model for studying cardiac aging and cellular senescence. NPJ Aging. 2025;11(1):63.
- Valdesalici S, Cellerino A. Extremely short lifespan in the annual fish Nothobranchius furzeri. Proc R Soc Lond B Biol Sci. 2003;270(Suppl 2):S189-191.
- Platzer M, Englert C. Nothobranchius furzeri: a model for aging research and more. Trends Genet. 2016;32(9):543-552.
- Otsuka T, Matsui H. The African turquoise killifish (Nothobranchius furzeri): a model of age-related diseases and declining regenerative capability across multiple organs. Mech Ageing Dev. 2025;226:112087.
- Filatova TS, Dzhumaniiazova IH, Shamshura AV, Abramochkin DV. Aging-associated remodeling of ionic currents in ventricular myocytes of seasonal fish Nothobranchius furzeri. Comp Biochem Physiol A Mol Integr Physiol. 2026;317:112013.
- Sander V et al. Isolation and in vitro culture of primary cardiomyocytes from adult zebrafish hearts. Nat Protoc. 2013;8(4):800-809.
- Singareddy SS, McClenaghan C, Roessler HI, Tryon R, Nichols CG. Isolation of cardiac and vascular smooth muscle cells from adult, juvenile, larval and embryonic zebrafish for electrophysiological studies. J Vis Exp. 2022;(180):63225.
- Vornanen M. Sarcolemmal Ca influx through L-type Ca channels in ventricular myocytes of a teleost fish. Am J Physiol Regul Integr Comp Physiol. 1997;272(5):R1432-R1440.
- Polačik M, Blažek R, Reichard M. Laboratory breeding of the short-lived annual killifish Nothobranchius furzeri. Nat Protoc. 2016;11(8):1396-1413.
- Dzhumaniiazova I, Vornanen M, Pustovit OB, Voronkov YI, Abramochkin DV. Effects of tetrodotoxin and ranolazine on the late INa of zebrafish ventricular myocytes. J Evol Biochem Phys. 2022;58(Suppl 1):S22-S30.
- Brette F et al. Characterization of isolated ventricular myocytes from adult zebrafish (Danio rerio). Biochem Biophys Res Commun. 2008;374(1):143-146.
- Filatova TS, Dzhumaniiazova IH, Shamshura AV, Pustovit OB, Abramochkin DV. Reduction of fast sodium current in the myocardium of fish (N. furzeri) during aging. Bull Exp Biol Med. 2026;181(1):109-116.
- Joukar S. A comparative review on heart ion channels, action potentials and electrocardiogram in rodents and human: extrapolation of experimental insights to clinic. Lab Anim Res. 2021;37(1):25.
- Holtze S et al. Alternative animal models of aging research. Front Mol Biosci. 2021;8.
- Wolska BM, Solaro RJ. Method for isolation of adult mouse cardiac myocytes for studies of contraction and microfluorimetry. Am J Physiol Heart Circ Physiol. 1996;271:H1250-H1255.
- Louch WE, Sheehan KA, Wolska BM. Methods in cardiomyocyte isolation, culture, and gene transfer. J Mol Cell Cardiol. 2011;51(3):288-298.
Ristampe e permessi
Questo articolo è stato pubblicato
Video in arrivo