動物モデルを含むすべての手順は、地元の施設動物管理委員会とJoVE獣医審査委員会によって審査されています。
1. メディアの準備
- 表1に記載されているように、すべての成分を添加して、基本的な卵子収集培地と卵子成熟培地を作ります。基本的な収集培地の場合、pHを7.4に設定します。収集培地と熟成培地の両方で、使用日に3 mg/mLのウシ血清アルブミン(BSA)と1 μMのシロスタミドを添加します。
2. Ypet-3' UTRとmCherryのためのmRNAコードの準備
- 目的のmRNAの3′ UTR配列を取得します.
手記: この研究では、マウス卵子cDNAから以前に配列を取得しました。
- 卵子cDNAおよびYpetコード配列、V5エピトープタグ、およびT7プロモーターを含むpcDNA 3.1ベクターの一部から、標的3' UTRを増幅するプライマーを設計します。
- ハイフィデリティDNAポリメラーゼキットを使用して増幅します。ポリメラーゼ連鎖反応(PCR)産物をゲル上で実行して、フラグメントのサイズが正しいかどうかを確認し、バンドを切り取り、製造元の指示に従ってゲル抽出キットを使用してゲルからDNAを抽出します。
- PCRクローニングキットを使用してPCRフラグメントをベクターに融合します.
手記:PCRフラグメントを氷上で4時間インキュベートして、より効率的な組換えプロセスを促進しました。これは、わずか45分のインキュベーション時間を推奨する製造元の指示に反しています。
- PCRフラグメントをコンピテントな5-α大腸菌にトランスフェクションします。
- 混合物とプラスミドをバクテリアに加え、氷上で30分間インキュベートします。
- 混合物を42°Cの水浴に45秒間入れて、混合物とプラスミドにヒートショックを与え、すぐに氷上で3分間冷却します。
- 500 μLのSuper OptimalブロスをCatabolite repression(SOC)培地と共に加え、37°Cで1時間インキュベー
トします。
- 7000 × gで2分間スピンダウンし、上清の大部分を取り除きます。再懸濁し、適切な選択抗生物質を含むLuria Broth(LB)寒天プレートにプレートします.
手記:この研究ではカルベニシリンを使用しました。
- 37°Cで一晩インキュベートし、コロニーの1つにピペットチップを軽く押し付け、100 μg/mLのカルベニシリンを含む3 mLのLB培地に入れて、コロニーを分離します。37°Cで12-24時間インキュベートします。
- 製造元の指示に従ってプラスミドDNA単離キットを使用してプラスミドのDNAを抽出し、DNAシーケンシングで配列を確認します。
- Ypet/3' UTR の場合:
- in vitro転写用の線状PCRテンプレートを作製します。Ypet配列の上流にフォワードプライマーを使用し、20個のチミン残基を追加したリバースプライマーを使用します。Ypet/IL-7 3' UTRの配列、およびフォワードプライマーとリバースプライマーの配列については、表2を参照してください。
手記:これらの追加のチミン残基は、in vitro転写後に直鎖状mRNAにオリゴ(A)を付加します。
- In vitroでは、製造元の指示に従ってT7転写キットを使用してPCR産物を転写します。
- 得られた相補的RNA(cRNA)を、メーカーの指示に従って転写クリーンアップキットを使用して精製します。
- 精製したcRNAをRNAseフリー水で溶出し、濃度を測定し、アガロース電気泳動により完全性を評価します。-80°Cで保存してください。
- mCherryの場合:
- in vitro 転写用の線状 PCR テンプレートを作製するには、ハイフィデリティ制限酵素を使用します。この例を再現する場合は、制限酵素 mfEI-HF を使用します。消化バッファーで37°Cで一晩分解します。
- ゲルを走らせてサンプルを精製し、製造元の指示に従ってゲル抽出キットを使用して線状DNAを抽出します。
- In vitroでは、製造元の指示に従ってT7転写キットを使用してPCR産物を転写します。
- 製造元の指示に従って、ポリ(A)テーリングキットを使用してcRNA(150-200ヌクレオチド)をポリアデニル化します。
- 得られたcRNAを、メーカーの指示に従って転写クリーンアップキットを使用して精製します。
- 精製したcRNAをRNAseフリー水で溶出し、mRNA濃度を測定し、ゲル電気泳動によりメッセージの完全性を評価します。-80°Cで保存してください。
3. 実験手順
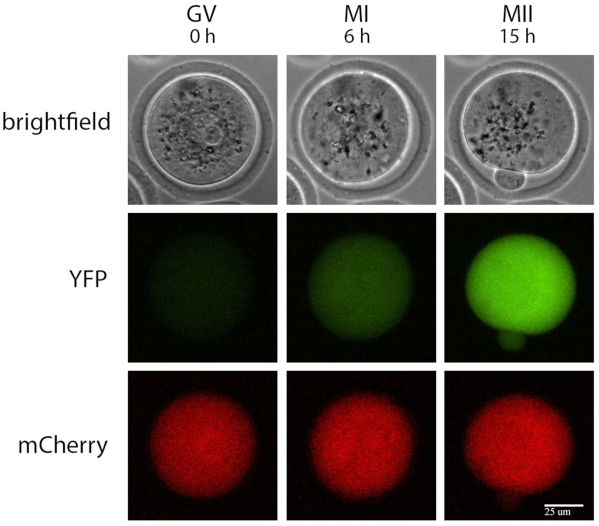
>注:卵子マイクロインジェクションとその後のタイムラプス顕微鏡法の概略図を図1に示します。
- 1日目
- 21日齢のマウスに5IUの妊娠中の牝馬の血清ゴナドトロピンを腹腔内に注射して、卵胞の成長を洞状段階まで促進します。.
- 3日目
- 卵子コレクション
- 26Gの針で卵胞壁に小さな切り込みを入れて、胞状卵胞を慎重に開きます。口操作式ガラスピペットを使用して、無傷の卵丘閉鎖卵母細胞(COC)を数層の卵丘細胞で単離します。
- 小さいピペット(卵母細胞の直径よりわずかに大きい)を使用し、ピペッティングを繰り返してCOCを機械的に除去します。
手記:あるいは、無傷のCOCに対してマイクロインジェクションを行います。
- より大きなピペットを使用して、剥離した卵子を吸引し、1μMのホスホジエステラーゼ阻害剤であるシロスタミドを補充した成熟培地を入れたペトリ皿に入れて、減数分裂成熟の再開を防ぎます。卵胞からの卵子の分離によって引き起こされるストレスから卵母細胞が回復するのを待つために、皿をインキュベーターに2時間置きます。
- 卵子マイクロインジェクション
- 長さ10cmのホウケイ酸ガラスキャピラリーチューブを機械式プーラーに入れて、注射針を準備します。最適な注入を得るには、加熱されたフィラメントを使用して針先を45°の角度で曲げます。
- 20 μLの塩基性卵子採取培地の液滴でポリスチレン皿を調製し、液滴を軽質鉱物油で覆います。
- 12.5 μg/μL Ypet-3' UTRと12.5 μg/μL mCherryを添加してレポーターミックスを調製します。より多くの量を準備し、将来の実験のためのアリコートを作成して、同様のレポーター濃度を確保します。これらのアリコートは-80°Cで保存してください。解凍後、まずアリコートを20,000 x gで2分間遠心分離し、新しい微量遠心チューブに移します
手記:この遠心分離により、レポーターミックス中の潜在的な凝集体によって注入針が詰まるのを防ぐことができます。
- 毛細管現象により注射針に約0.5μLのレポーターミックスをロードします。
- 保持ピペットと装填した注射針をホルダーに入れ、卵子採取培地の液滴に配置します。培地の一部を保持ピペットに吸引します。
- 注射針を保持ピペットにそっと軽くたたいて開きます。
- 卵子を塩基性収集培地の液滴に入れ、レポーターミックスを5〜10pL注入します。
- 成熟培地で卵子を1 μMのシロスタミドと16時間インキュベートし、mCherryシグナルがプラトーになるようにします。
- タイムラプス顕微鏡検査に使用するシャーレを、注入されたレポーターごとに少なくとも 2 つの 20 μL 液滴の成熟培地で準備します: 制御前期 I 停止卵母細胞用の 1 μM シロスタミドを含む液滴 1 つと、成熟卵母細胞用のシロスタミドを含まない液滴 1 つ。液滴を軽い鉱物油で覆い、インキュベーターに入れます。
- タイムラプス顕微鏡
- プレインキュベーション後、注入した卵子をインキュベーターから取り出し、シロスタミドを含まない成熟培地で4回洗浄します。一部の卵子を、前期I停止卵子コントロールグループとして1 μMシロスタミドを含む成熟培地に保持します。
- 注入した卵子を、事前に準備したタイムラプス顕微鏡皿上のそれぞれの液滴に移します。閉じたガラスピペットを使用して卵子をクラスター化します(閉じたピペットは、先端を数秒間炎に保持することで準備できます).
手記:卵子をクラスター化することで、記録中の卵子の動きを防ぐことができます。
- 発光ダイオード照明システムと、37°Cおよび5%CO2に維持された環境チャンバーを備えた電動ステージを備えた顕微鏡下にディッシュを置きます。この研究を再現するには、次のパラメータを使用します:フィルターセット:ダイクロイックミラーYFP / CFP / mCherry 69008BS;YFPチャネル(励起(例):S500 / 20 × 49057;エミッション(EM):D535/30 m 47281)、mCherryチャネル(例:580/25 × 49829;Em:632/60 m)。
- タイムラプス実験の適切な設定を入力します(この研究で使用したソフトウェアの資料の表を参照):[アプリ]をクリックします|多次元アクイジション。最初のタブ「メイン」を選択し、タイムラプス、複数のステージ位置、および複数の波長を選択します。
- [保存] タブを選択して、実験を保存する場所を入力します。
- [タイムラプス]タブを選択して、タイムポイントの数、期間、および時間間隔を入力します。
手記:タイムラプス実験の期間は、卵子の減数分裂成熟のタイミングが種によって異なるため、研究対象の動物種によって異なります。マウス卵子を用いたこの実験では、卵子を15分ごとに16時間記録しました。
- 「ステージ」タブを選択します。明視野をオンにし、新しいウィンドウを開いて卵子の位置を特定するには、[取得] |アクイジット |ライブを表示します。卵子が見つかったら、[Multi-Dimensional Acquisition] ウィンドウに戻り、[+] を押して卵子の位置を設定します。
- [波長]タブを選択し、明視野(露光15 ms)、YFP(Ypet / IL7 3 'UTRの露光150 ms)、およびmCherry(Ypet / IL7 3 'UTRの露光75 ms)の3つの異なる波長を設定します< / br / >
手記:各Ypet/3' UTRレポーターの露出は、レポーターの蓄積レベルと注入量に基づいて調整します。実験開始時には、YFP信号が検出範囲の中心にあることを確認し、トランスレーションの活性化による過小評価や飽和を防ぎます。mCherryの場合、シグナルはポリアデニル化手順で追加されたアデニンヌクレオチドの数に依存するため、mCherryの各バッチの曝露を調整します。ポリアデニル化効率にはばらつきがあるため、実験間の比較を改善するために、異なる実験で同じバッチのmCherryを使用してください。
- タイムラプス実験を開始するには、[取得] をクリックします。図1は、1つの卵子でのタイムラプス記録の例です。
- Ypet-3' UTR翻訳の解析
- この分析(この研究で使用したソフトウェアの「材料の表」を参照)では、各卵子について2つの領域測定を行います。卵子自体は楕円領域をクリックして卵子を囲みます。また、背景の減算に使用する卵子に近い小さな領域は長方形の領域をクリックします
手記: タイムラプス録画中に卵子が選択した領域から移動しないことを確認してください。極性体の押し出しの周りの領域測定の配置には、卵子に動きを引き起こし、記録を歪める可能性があるため、特に注意してください。
- 領域測定データをスプレッドシートにエクスポートするには、最初に[ログを開く]をクリックし、次に[ログデータ]をクリックしてデータ分析ソフトウェアをエクスポートします。
- 個々の卵子および測定されたすべての時点について、卵子領域の測定値からバックグラウンド領域の測定値を差し引きます。これは、YFPとmCherryの波長に対して別々に行います。
>表1:メディアの準備。基本的な卵子採取培地と卵子成熟培地を調製するために追加する必要がある成分のリスト。
| 基本的な卵子収集培地 | |
| コンポーネント | 500mLの場合 |
| HEPES改変ミニマムエッセンシャルミディアムイーグル | 7.1 グラム |
| 炭酸水素ナトリウム | 252ミリグラム |
| ピルビン酸ナトリウム | 1.15ミリリットル |
| ペニシリン/ストレプトマイシン100x | 5ミリリットル |
| 超高純度蒸留水 (Invitrogen, 10977-015) | 500mLまで |
| 熟成培地 | |
| コンポーネント | 500mLの場合 |
| MEMα 1倍 | 500mLまで |
| ピルビン酸ナトリウム | 1.15ミリリットル |
| ペニシリン/ストレプトマイシン100x | 5ミリリットル |
表2:レポーターおよびプライマー配列の例 YFP/IL7 3'UTRレポーターの配列、およびin vitro転写用の線状PCRテンプレートを作製するために使用されたフォワードプライマーおよびリバースプライマーの配列。
| 順序 |
| Ypet/インターロイキン-7 3' UTR | GAGAACCCACTGCTTACTGGCTTATCGAAATTAATACGACTCACTATAGGGAACCCAAGCTGGCTAGTTAAGCTTGGTACCGAGCTCGGATCCACCGGTCGCCACCATGGTGAAAGGCGAGCTGTTCACC
GGCGTGGTGCCCATCCTGGTGGAGCTGGGGCGGTGAACGGCCACGTGAACGGCCACAAGTTCAGCGTGAGCGGCGAGGGCGAGGGCGACGCCACCTACGGCAAGCTGTCGCGCACCGGCAAGCTG
CCCGTGCCCTGGCCCACCCTGGTGACCCTGGGCTACGGCGTGCAGTGCTTCGCCCGGTACCACCACACCACATGAAGCAGCACGACTTCTTCAAGGCGCCATGCGCGCGCTCTCTCTCAGGAGGGCTACGTGCAGGAGCGGACCA
TCTTCTTCAAGGACGACGGCAACTACAAGACCCGGGCCGAGGTGAAGTTCGAGGGCGACACCCTGGTGAACCGGTGAACCGGATCGAGCTGAAGGGCATCGACTTCAAGGACGGCAACATCCTGGGCCACAAGCTGGAG
TACAACTACAACACCCACACACGTACATCACCGCCGACAAGCAGAACGGCATCAAGGCCAACTTCAAGATCCGGCACACACAACCATCAGGACGGCGTGCAGCTGGGGGACCACCACCACCACCAACACCCA
TCGGCGACGGCCCCGTGCTGCTGCCCGACAACCACCTGAGCTACCACCAGAGCGCCCTGTTCAAGGACCAACGGAGAAGCGGGACCACATGGTGCTGCTGGAGTTCCTGACCGCCGCCGGCATCACCGAGGGC
ATGAACGAGCTCTATAAGAGATCTTTCGAAGGTAAGCCTATCTCTCTCTCACCCTCTCCTCTCTCGATTCTCTCTCGCGTACCGGTCATCATCCATCCATCACCATTGAACAGGACATGTAGTAACACACACCTCCAAGAATCTACTGGTT
CATATACTTGGAGAGGTTGAAACCCTTCCAGAAGTTCTCTCGGATGCCTCTCTCTCTCCAAATAAGCCAAGCAGCTGGAAATCTACAGTGAGTGAGATGATGGACACAGAAATGCAGCTGACTGCCGTCAGCATAT
CATATAAAGATATATCAACTATACAGATTTTTGTAATGCAATCATGTCAACTGCAATGCTTTTAAAACCGTTCTCCAAATGTTTCTAACACTACAAGTCTACAAAAGCAAGGCTATGAAGATTCACCATTCACCACTGTTTTCTT
AGCAAAATGATGGTATGGTTAAACATTCATTGGTGAACCACTGGGAGTGGAACTGTCCTGTTTTAGACTGGAGATACTGGAGGGCTCACGTGATGGTGATGGATAATGCTCTTGAAACAAGAGTCTATCTTAAAGCAGCAG
CAAAAAGAAGCTTAAGGCACTTAAGGCATCAACAAATGTTAAATTAAATGAATGTATAATAACACATAACTTCAGTAAAGAGCATAGCAGATATTTTTAAATAAAAGTATTTAAAGATAGAAATGCACTTATTCCAAAGATACTGA
ACCTTAGTATTCAGTCGCTTGACACTTGTGTGTATAATAAAGCTTATATAACTGAATTTTCAATTTGAAAAGTATATTTTTAAAGAATAATATGCTAGACTTAATTAATGTATATATGTTTTTTGGCATTCTGTGTCTCTCT
CTGTCTCTCTCTCTCTCTCTCTCTATATATATAATTTTCATATACTACCAATTGCGTACTTTGGATAGTGTCTCTTTTTAACCTAAATGAGGTTTTATTAACACTGTCAGGTTCCTCTCGAGAG
TGTTCATTGCTGCACTGTCATTTGATCCCAGTTTTTGAACACATATCCTTTAACACACACACACACGTCCAGATTTAGCAGGAGACTAGGACCCTATAACTTTGTTAAGAAAACACTAATTTCTTGTTTTATAGTAGGGTC
TTATTCGTATCTAAGGCAGGCTAGGATTGCAGACATGACATGAGCCAATGCTTAATTAGAAACATTCTTTTTTTATGTTATATAACTCATGTTTTACAAGATGCCTACATATATCATATATATGCCTGTTTAAATCCTTTTGTAAGGT
CTGCTGTCTTCCTTCAGTTGTAATGGAAAGAAACACTATGTTGTGTAGAGGCCAAATTTCTGAAAGTGATAAGGTTGCTTGTACTGAATTCTCTCTCCTTTTTTCCAGCCACGTGAGCATCTAGCTATCTATACGCT
GGATGTATTTGACCGATGCCTGCTCCACCGGCACATTGCATGTGTGGTAGCCATGCCTTCTTGCTTCTCCTTTTCCCCCCACACCCCTAATGCTCTACTCAGTGGTACAGATAGCTGGGATTATCACACAATTTTGAGAGAAAC
ACCAATTGTTTAAAGTTTTTTTGTCATAATCCATTTGCCCAGAAAACAGTTCTCTCAACTTGTTTGCACACATGTAATAATTTAAGAAACTCAATTTTGTTAATGGACTTTCGATAACTTCTAGATATCCCACATCTCCTACGT
GTCAGTCCTTTGTCCTGAGGAACTGGTAAAATGGGTAAGCCCTTAGCTAGCGAACTGAACTGAAGGCATTCGCATTCGCATGTAAGATAATCTCCTCTATACCTGCAAGGCTGTCTGGATGGCTCCCTACCAATATTGAACAATATTCTGATT
TTGGCAAAATAAAGGATAATATTTT |
| フォワードプライマー | ガガックカクトgcttac |
| リバースプライマー | TTTTTTTTTTTTTTTTTTTTTTTTTAAATATTATCTTTTTTTTGCCAAAATC |