このコンテンツを表示するには、JoVEへの購読が必要です。 または、無料トライアルをお申し込みください。

方法論記事

誤って局在化したTAタンパク質の除去を研究するためのMsp1抽出アッセイ

717 回視聴

⸱

2025年7月8日

この記事について

要約

出典: Fresenius, H. L., Wohlever, M. L. Recomposition of Msp1 Extraction Activity with Fully Purified Components. J. Vis. Exp.(2021年)。

このビデオは、リポソームの脂質二重層に組み込まれた誤って局在化したTAタンパク質のMsp1媒介除去を研究するためのin vitroプロトコルを示しています。Msp1タンパク質とTAタンパク質はリポソームに共再構成され、アフィニティー精製によりTAタンパク質のATP依存性転座が確認されます。
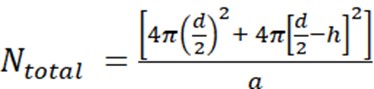
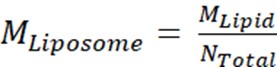
プロトコル

1. リポソームの調製

  1. 脂質のクロロホルムストックを適切な比率で組み合わせて、外側のミトコンドリア膜を模倣します。
    1. 脂質混合物25mgを調製します。私たちは、鶏卵ホスファチジルコリン(PC)、鶏卵ホスファチジルエタノールアミン(PE)、牛肝臓ホスファチジルイノシトール(PI)、合成1,2-ジオレオイル-sn-グリセロ-3-ホスホ-L-セリン(DOPS)、および合成1',3'-ビス[1,2-ジオレオイル-sn-グリセロ-3-ホスホ]-グリセロール(TOCL)の48:28:10:10:4モル比からなる、ミトコンドリア膜を模倣する以前に確立された脂質の混合物を使用します。計算例を表 1 に示します。
    2. 開封する前にすべての脂質ストックを室温に戻しておくと、結露が制限されます。ほとんどのラボでは脂質の濃度を正確に測定する方法がないため、クロロホルムストックに吸収された水は脂質ストックの濃度を変化させ、アッセイで使用される脂質の比率を変化させます。
    3. 脂質ストックはガラスアンプルに入っているため、1mLシリンジを使用して必要量の脂質をガラスバイアルに移します。脂質の酸化を防ぐために、バイアルに2 mgのジチオスレイトール(DTT)を追加します。.クロロホルムの蒸発により脂質の濃度が変化するため、迅速に作業できます。
    4. 残っている脂質を別のガラスバイアルに移し、PFTEセプタムに取り付けます。.バイアルに2 mgのDTTを加え、パラフィルムで包み、脂質の酸化を防ぐために-20°Cで保存します。バイアルに移してから3か月以内に脂質を使用してみてください。マーカーの流出によるクロロホルムストックの潜在的な汚染を防ぐために、マーカーでラベルを付けるのではなく、元のアンプルからガラスバイアルにステッカーを転写します。
  2. 非常に穏やかな窒素の流れの下でクロロホルムを蒸発させながら、ガラスバイアルをヒュームフード内で手で連続的に回転させ、基本的に手動のロトバップとして機能します。バイアルを一定の速度(20〜40 rpm)で手で回転させ、脂質を動かし続けます。目標は、すべてのクロロホルムを蒸発させ、ガラスバイアル全体に脂質を均一にコーティングすることです。
    注意:クロロホルムは神経毒性があり、このステップはドラフト内で実行する必要があります。
    1. 新しいパスツールピペットを窒素チューブに取り付けます。脂質がバイアルから飛び散ったり、パスツールピペットに飛び散ったりしないようにしてください。バイアルの底に先端を向けて、空気が底から跳ね返り、脂質をバイアルの中心に向かって押し上げます。バイアル全体に均一なコーティングを施し、コーナーやキャップに蓄積しないようにします。このプロセス全体の所要時間は約5分です。
    2. 混合物が濃くなって脂質の「ビーズ」になったら、バイアルの角度を変えてバイアルの中心に導きます。ビーズが小さくなり始めたら、窒素の流れを少し上げてビーズを分散させ、バイアルから脂質が吹き出さないようにします。
  3. 真空下で残っているクロロホルムをすべて取り除きます。
    1. ガラスバイアルを家庭用真空ポンプまたはダイヤフラム真空ポンプに1時間置き、残留クロロホルムの大部分を取り除きます。これらの真空は、一般に、すべてのクロロホルムを除去するのに十分な強度はありませんが、回転式無駄な真空よりも少量の溶剤に耐えることができます。
    2. バイアルを強真空(<1 mTorr)に12〜16時間置き、残留クロロホルムをすべて除去します。このプロセス中にバイアルがぶつからないように注意してください。
  4. 脂質を1.25 mLのリポソーム緩衝液(50 mM HEPES KOH pH 7.5、15%グリセロール、1 mM DTT)に再懸濁します。25 mgの脂質から始めたため、20 mg/mLの濃度になります。目に見える塊がないように脂質を完全に再懸濁します。脂質がバイアルの隅に溜まっている場合、これは長いプロセスになる可能性があります。
    1. サンプルが乳白色で滑らかになるまで、バイアルを激しくボルテックスします。クロロホルムの蒸発が前夜に適切に行われた場合、このプロセスには約5〜10分かかることがわかりました。
    2. 脂質を完全に再懸濁させるために、ホイール上で室温で~80rpmで3時間回転させます。バイアルをホイールから1時間に1回取り外し、1分間のボルテックスを行い、均一に混合します。
  5. 脂質を清潔な1.5 mLの微量遠心チューブに慎重に移します。液体窒素を使用して凍結し、30°Cのヒートブロックで解凍する5回の凍結融解サイクルを実行します。このステップは、マルチラメラ小胞を単層小胞に変換するのに役立ちます。
  6. 脂質を押し出します。
    1. 凍結融解サイクル中に、ミニ押出機を準備します。ミニ押出機を10mmのフィルターサポートと目的の細孔サイズのポリカーボネートメンブレン(200nmを使用)で組み立てます。フィルターのサイズはリポソームのサイズに影響し、リポソームは再構成に必要なタンパク質の濃度に影響を与えます(ステップ2.3)。
    2. ミニエクストルーダーをホットプレートに置き、エクストルーダーの温度を60°Cまで上げます。
    3. 脂質を1 mLの気密ガラスシリンジに引き込み、ミニエクストルーダーの一方の端に慎重に入れます。空の気密シリンジをミニ押出機の反対側に置きます。脂質を押出機のスタンド温度まで5〜10分間平衡化させます。
    4. 充填されたシリンジのプランジャーを静かに押して、脂質を代替シリンジに移します。代替シリンジから溶液を元のシリンジに押し込みます。この前後のプロセスを15回繰り返して、15回目のパスで脂質が代替シリンジで終わるようにします。各パスのボリュームを監視して、漏れがないことを確認します。
  7. 脂質のシングルユースアリコートを調製し、液体窒素で急速凍結し、-80°Cで保存します。リポソームは-80°Cで数ヶ月間安定です。再構成には一度に10μLのリポソームが必要なため(ステップ2.3.4)、10μLまたは20μLのアリコートを調製すると便利です。

2. Msp1とモデルTAタンパク質の再構成

  1. 再構成バッファーを調製します:50 mM HEPES pH 7.5、200 mM酢酸カリウム、7 mM酢酸マグネシウム、2 mM DTT、10%スクロース、0.01%アジ化ナトリウム、0.2-0.8%デオキシビッグチャップス(DBC)。
    1. リポソームの新しいバッチの再構成条件を最適化します。最適な再構成に必要なDBCおよびバイオビーズの濃度は、使用するリポソームのバッチによって異なります。調製間のばらつきを制限するには、すべての実験で同じロットのDBCを使用します。DBCのロットを変更する場合は、最適化プロセスを繰り返します。
    2. リポソームの新しいバッチが調製されるたびに、異なる濃度のDBC(0.2%〜0.8%)およびバイオビーズ(25mg〜100mg)で一連の再構成を設定します。DBC を臨界ミセル濃度 (CMC) の ~0.12% 未満に落とさないことが重要です。条件が最適化されたら、同じリポソーム調製および再構成条件を使用してすべてのデータを収集することをお勧めします。
    3. ステップ3で説明した抽出アッセイを使用して、さまざまな再構成条件の有効性をアッセイします。
  2. バイオビーズを最終濃度250 mg/mLで調製します。
    1. 乾燥バイオビーズ2.7gを秤量し、100%メタノール(約45mL)の50mL遠心チューブに再懸濁してビーズを濡らします。最初にバイオビーズをメタノールで濡らして、ビーズの細孔に空気が閉じ込められるのを防ぎます。メタノールに入ったら、バイオビーズに閉じ込められた空気が洗剤を吸収する能力を変化させるため、バイオビーズを濡らしておきます。
    2. ビーズを約45mLの超純水(以下、ddH2Oと呼ぶ)で8倍洗浄してメタノールを除去し、3,200×gで1分間遠心してビーズをペレット化する。液体をデカントし、ddH2Oに再懸濁します。
    3. 洗浄後、0.02%アジ化ナトリウムを含むddH2O10 mLに再懸濁し、4°Cで保存します。このストックは250 mg/mLで、洗浄ステップ中に~0.2 gが失われると想定されています。
  3. リポソームのサイズと、リポソームあたりのTAタンパク質およびMsp1の分子の所望の数を計算します。これにより、再構成に必要なMsp1およびTAタンパク質の濃度が決定されます。
    1. まず、ユニラメラリポソームあたりの脂質分子の数(合計N個)を、式
      を使用して計算します figure-protocol-1
      ここで、dはリポソームの直径、hは二重層の厚さ、aは脂質ヘッドグループ領域です。
      1. DLSでリポソーム径を測定します。この例では、リポソーム直径(d)に対して70nmの値が得られました。
      2. hには5 nm、aには0.71 nm2の値を使用します。これはホスファチジルコリンのヘッドグループサイズです。この特定の状況では、Nの合計は 37,610 です。
    2. 次に、混合物中の脂質の平均分子量を使用して、脂質M脂質のモル濃度を計算します。この例では、脂質の濃度は20 mg/mL(ステップ1.4)、脂質の平均分子量は810 g/mol(表1)です。この結果、MLipid の値は 0.0247 M になります。
    3. 次に、リポソームのモル濃度 Mリポソームを、式
      を使用して計算します。 figure-protocol-2
      ここで、M Lipidはステップ2.3.2の脂質のモル濃度であり、Ntotalはステップ2.3.1で計算されたリポソームあたりの脂質の総数です。この例では、20 mg/mL のリポソームストック濃度は約 660 nM です。
    4. 100 μLの再構成反応に必要なMsp1およびTAタンパク質の量を計算します
      手記:再構成中の脂質の最終濃度は 2 mg/mL で、これはリポソームストックの 10 倍希釈です。これにより、最終的なリポソーム濃度は66 nMになります。Msp1の最終濃度は792 nMで、リポソームあたり平均12コピー(2つの機能的六量体)が得られます。TAタンパク質の最終濃度は660 nMで、リポソームあたり平均10コピーが得られます。
  4. PCRチューブ内で、精製したMsp1、TAタンパク質、およびリポソームを再構成バッファーに混ぜ合わせます。添加の順序は、バッファー、タンパク質、およびリポソームが最後です。総容量は100 μLで、混合物を氷の上に10分間置いておきます。Msp1およびTAタンパク質を精製します。
    1. アッセイを最初に確立する際には、十分に特性評価されたモデルTAタンパク質His-Flag-Sumo-Sec22をポジティブコントロール基質として使用してください。このコンストラクトには、精製を容易にするHisタグ、ウェスタンブロットで検出するための3x-Flagタグ、溶解度を高めるためのSumoドメイン、およびMsp1による再構成と認識のためのER-TAタンパク質Sec22のTMDがあります。


アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。

開示事項

利益相反は宣言されていません。

材料

この記事で使用された材料の一覧
名前会社カタログ番号コメント
バイオビーズバイオ・ラッド 1523920
ウシ肝臓ホスファチジルイノシトールアヴァンティ 840042C 円周率
鶏卵ホスファチジルコリンアヴァンティ 840051C パソコン
鶏卵ホスファチジルエタノールアミンアヴァンティ 840021C PE
フィルターサポートアヴァンティ 610014
ガラスバイアルVWRの 60910L-1
グルタチオンスピンカラムサーモフィッシャー PI16103
ミニ押出機アヴァンティ 610020
合成1,2-ジオレオイル-sn-グリセロ-3-ホスホ-L-セリンアヴァンティ 840035C DOPSの
合成1'、3'-ビス[12-ジオレオイル-スグリセロ-3-ホスホ]-グリセロールアヴァンティ 710335C 目次
シリンジ 1 mLノルムジェクト53548-001
シリンジ 1 mL ガスタイト アバンティ610017
の

さらに記事を探す

TAタンパク質の除去リポソーム再構成ATP依存性転位アフィニティー精製GSTタグ付けSDS-PAGE解析グルタチオン・スピンカラムミトコンドリアATPaseタンパク質転位アッセイ