炎症性細胞シグナル伝達分子である一酸化窒素(NO)のレベルは、一般的にGriess試薬を使用してアッセイされます。このプロトコルでは、生きたショウジョウバエの脳組織を利用した修正Griessアッセイを作成し、シンプルで定量化可能で再現性の高い方法でNOの分泌を検出しました。
この記事について
サマリー
要約
神経炎症は、中枢神経系(CNS)の健康な機能に不可欠な複雑な自然免疫応答です。通常の条件下では、誘導体、検出器、および活性化因子の複雑なネットワークは、ニューロンの損傷、感染、またはその他の免疫侵害に迅速に反応します。この免疫細胞の炎症は、パーキンソン病(PD)、アルツハイマー病、ALSなどの神経変性疾患の病理と密接に関連しています。病状が悪化すると、ニューロンの損傷を最小限に抑えることを目的とした慢性炎症が免疫細胞の過剰興奮を引き起こし、最終的には疾患の進行を悪化させる可能性があります。例えば、PDの特徴である中脳のドーパミン作動性ニューロンの喪失は、炎症反応の過剰な活性化によって加速されます。パーキンソン病の原因はほとんどわかっていませんが、環境毒素への曝露が散発的な症例の発症に関与しています。例えば、除草剤パラコートは、ショウジョウバエ・メラノガスターを含むいくつかの動物モデルでパーキンソン病様の病状を誘発することが示されています。ここでは、ショウジョウバエの保存された自然免疫応答を使用して、炎症応答カスケードの活性化と標的ニューロン死に重要な細胞シグナル伝達分子であるさまざまなレベルの一酸化窒素を検出できるアッセイを開発しました。パラコート誘発性ニューロン損傷を使用して、これらの免疫障害が神経炎症刺激に与える影響を、新しい定量的アッセイを使用して評価します。脳全体は、神経毒に曝露されたハエ、または神経変性に対する感受性を高める遺伝子型のハエから完全に抽出され、その後、細胞培養培地でインキュベートされます。次に、Griess試薬反応の原理を使用して、細胞培養培地への一酸化窒素の分泌のわずかな変化を検出することができ、基本的に簡単な手順で一次生組織モデルを作成することができます。このモデルの有用性は、Drosophila melanogasterの堅牢な遺伝的および分子的複雑さによって増幅され、このアッセイは、他のショウジョウバエ組織や他の小さな全生物の炎症モデルにも適用できるように変更することができます。
概要
神経炎症は、神経変性疾患の大部分を占める広範囲の疾患の病理と密接に関連していることが示されている複雑な免疫反応です。基礎条件下では、この周縁免疫細胞の多面的なネットワークは、感染、プラーク、または損傷に対する迅速な応答を通じて組織の健康を維持します1,2。哺乳類の中枢神経系による神経炎症反応は、正常な老化に伴う細胞の酸化ストレスなどの軽度の侮辱や、化学毒素への急性曝露によるニューロンの損傷などの大きな発作によって引き起こされることがあります。この誘導が起こると、ミクログリアとして知られる食作用監視細胞が活性化され、ニューロン細胞の損傷部位に移動します。これらのスカベンジャー様免疫細胞は、末梢に存在するマクロファージ細胞に類似しており、損傷したニューロンや星状細胞と高度なシグナル伝達カスケードを開始し、ミクログリアと一緒に作用するグリア細胞をサポートし、通常は堅牢なミクログリア応答を実現します3-7。活性化されると、ミクログリアは炎症のプロセスを開始し、免疫系を刺激し、組織の修復を促進します1,8。
パーキンソン病(PD)、アルツハイマー病、筋萎縮性側索硬化症などの神経変性疾患のような持続的な侮辱条件下では、慢性炎症は健康な組織にも重大な損傷を引き起こします。最近の研究では、免疫系によるこの持続的で攻撃的な反応が、実際には、9-11の状態を改善するのではなく、病状を悪化させる過剰な興奮性反応を引き起こしている可能性があることが示されています。
Drosophila melanogasterでは、自然免疫応答は遺伝的によく保存されています。真の適応免疫ネットワークはありませんが、ショウジョウバエは、血球として知られる食細胞のクラスを含む洗練された自然免疫システムを維持しています。これらの免疫細胞は、損傷部位12,13に移動し、敗血症性ショック14、寄生虫15の導入、またはウイルス感染16の間に食作用を受けるマクロファージ様細胞として以前に同定されている。
重要なことに、哺乳類のマクロファージと同様に、食性血球は一酸化窒素合成酵素(NOS)を発現し、ショウジョウバエの免疫の重要なシグナル伝達成分である一酸化窒素(NO)を産生します15,16。しかし、これらの研究はすべて、胚発生中および幼虫における血球応答を実証することしかできませんでした。
私たちの研究室では、ショウジョウバエの成体脳における血球を介した強力な神経炎症を観察しました。これはこれまで知られていなかった現象です17。この反応は、毒物パラコートへの曝露によって誘発されました。国立衛生研究所(NIH)による疫学研究により、広く使用されている除草剤がヒトのPD発症の潜在的な危険因子であることが確認されている18。哺乳類モデルでのパラコート治療を調査する研究では、すでにその神経毒性が検証されており、除草剤が運動異常や選択的ニューロン喪失などのパーキンソン病の症状を引き起こすことが示されていました19-21。ショウジョウバエでは、パラコートの治療は、パーキンソン病の病理と一致するドーパミン作動性ニューロン死だけでなく、幅広いパーキンソン病態の表現型につながります22。この神経炎症反応に関連するメカニズムと遺伝的要因は、ショウジョウバエではまだ完全には解明されていませんが、神経変性中のNOSの保存された誘導が観察されています。
この方法を使用して、神経毒性感受性が知られている変異型遺伝子型を使用して、劇的ではないものの、同様の神経炎症反応を追加で検出しました。遺伝子パンチによってコードされるGTPシクロヒドロラーゼは、BH4の生合成における最初の律速タンパク質であり、その後、NOS23,24の必要な補因子として機能します。機能喪失型変異PuZ22は、炎症反応の低下を引き起こし、パラコート25に対する感受性を高めます。このプロトコルにより、この遺伝的変異によって誘発される一酸化窒素レベルの比較的微妙な変化を定量化することができました。
サンプル中のNOを検出するために、NOレベルを測定するための広く受け入れられている比色法であるGriess試薬を使用しています。この試薬は、一酸化窒素生産の2つの最終生成物のうちの1つである亜硝酸塩の存在を検出することにより、相対的なNO存在量を間接的に測定します。Griess試薬を使用した既存の亜硝酸塩検出プロトコルは、主にin vitro分析や、NOが培地に拡散する細胞培養に適用されています。私たちは当初、粗ショウジョウバエの頭部ホモジネート25中のNOSを検出するためのGriess試薬ベースの方法を開発しました。しかし、その方法は、おそらく全頭部組織におけるNOの不安定性、高い反応性、および低い相対濃度のために、条件の変化によって多少変動することがわかりました。そのため、NOS活性の定量においてより高い感度と信頼性を可能にする細胞培養プロトコルに基づく方法の開発を目指しました。ここでは、ショウジョウバエの幼虫であるマルピーギ尿細管26のNOSを検出するために以前に採用された方法と概念的に類似した方法について説明します。この手順では、毒素治療の直後に解剖された全脳を利用して、炎症反応を誘発します。次に、これらのサンプルを昆虫培養培地でインキュベートして、組織の完全性を維持し、Griess試薬ベースのアッセイの感度と信頼性を向上させました。
私たちは、利用可能な洗練された遺伝ツールを使用することで、このモデルが動的な炎症/神経変性ネットワークを調査するための有望なユーティリティとして機能する能力を持つと期待しています。神経炎症反応の活性化と相対強度を正確に定量化する能力を備えたこの新しいアッセイは、分泌された神経炎症マーカーを検出できる一次組織培養を作成します。この方法は、炎症の小さな生物モデルに、以前は欠けていた全生物または生組織サンプルを迅速にアッセイするための安価で高感度の技術を提供します。
プロトコル
1. パラコート露出
- 標準的なショウジョウバエ培地で、約35人の女性と15人の男性からなる同等の培養密度で25°Cでテストフライの培養を維持します。
- 給餌チャンバーを準備するには、空のバイアルの底に少量の吸収性綿を置き、綿の真上に濾紙を置きます。
- 麻酔薬を発する成体男性は、冷冷昏睡またはCO 2を使用して、隠術後3〜5日でハエを飛ばします。 ここで説明する実験には、遺伝子型y w1118の雄を使用します。
- コールドコマ分離の場合は、ハエの入ったフィーディングバイアルを軽くたたいてから、ストッパーをすばやく取り外して、ハエを直接清潔な空のバイアルに移し、適切にラベルを貼ることを確認します。
- ハエが空の食品バイアルに正常に移動したら、バイアルを軽くたたいてすぐに氷のバケツに5分間、またはハエがノックアウトされるまで置きます
手記: バイアルを氷に完全に浸さないでください。これにより、水や湿気がバイアルに入り込み、ハエを溺れさせる可能性があります。別の予防措置として、氷のバケツで溶けた氷ではなく、新鮮な氷を使用してください。
手記:各アッセイに必要なハエの数に細心の注意を払い、可能であれば、人為的ミス(摂食中や移動中にハエが逃げるなど)が発生した場合の予防策として、各グループにハエを追加します。例えば、一酸化窒素検出アッセイでは、サンプルセットあたり20匹のハエの脳が必要なため、給餌時には解剖のスキルレベルと効率を考慮してください(つまり、初心者は転送エラーや解剖エラーが発生した場合に備えて、20匹以上のハエを設置する必要があります)。
- ハエに麻酔をかけたら、上記で準備したように、各グループを対応する給餌バイアルに移します。
- ハエが給餌バイアルで完全に目覚めた後、1.5時間飢餓状態にし、その間に以下に説明する溶液を準備します。
- 5 gのスクロースを100 mlの二重蒸留水に加えて、5%スクロースの原液(対照溶液)を調製します。完全に溶解するまで撹拌し、4°C.
で保存します 手記:5%ショ糖原液を、その後のすべての供給溶液の溶媒として使用します。 - 5%ショ糖を希釈剤として使用してストック10 mMパラコートストック溶液を調製し、4°Cで保存します。他のすべての濃度は、必要に応じて段階希釈液を使用して調製します。
注意:パラコートは非常に有毒です。 安全ガイドラインと適切な取り扱い/廃棄については、MSDSを参照してください。 - N-ニトロ-L-アルギニンメチルエステル塩酸塩(L-NAME)、N-ニトロ-D-アルギニンメチルエステル塩酸塩(D-NAME)の10 mMストック溶液を調製し、5%ショ糖を希釈剤として使用して4°Cで保存します。L-NAMEまたはD-NAMEとパラコートの共インキュベーションでは、各化合物をパラコート濃度で1:1の比率で投与します。必要に応じて段階希釈液を使用して他のすべての濃度を調製します。
手記: 調製後すぐにすべての溶液をろ過します。パラコート、D-NAME、L-NAMEストックは、実験の一貫性を確保するために、調製後1週間以内に使用する必要があります。 - 1日あたり150μl(または給餌時間によってはそれ以下)の給餌溶液を濾紙にピペットで固定し、ハエを溺れさせたり、逃がしたりしないように注意してください。
- 5 gのスクロースを100 mlの二重蒸留水に加えて、5%スクロースの原液(対照溶液)を調製します。完全に溶解するまで撹拌し、4°C.
2. 生存/死亡率アッセイ
- 前述のように給餌チャンバーを設置します.
手記:乾燥を防ぐために、バイアルごとに少なくとも3層の濾紙を使用してください。 - 各バイアルに10匹のオスのハエを3〜5日後置き、上記の指示どおりに給餌し、濾紙が一晩乾燥しないように注意します
手記:バイアルは直射日光を避けて室温に保ち、溶液の蒸発を促進しないようにします。 - 翌日(「1日目」と指定)から、10日間連続で1日2回、バイアルあたりのハエの死者数が記録されます
手記:スコアリングと給餌の両方を毎日特定の時間に調整して、ばらつきを減らし、一貫性を高めます。 - すべてのグループの少なくとも3つの独立した複製を使用して平均生存率を計算します。
3. 成虫のハエの脳の解剖と孵化
- 解剖に先立ち、50 μlのGrace's Insect Mediumを適切な数のウェル (各サンプルセットに1つのウェル + 「ブランク」/コントロール用に1つのウェル) にピペットで入れ、96ウェルマイクロタイタープレートに適切にラベル付けします。使用するまでプレート蓋で覆います.
手記: あるいは、好ましい場合には、滅菌遠心分離管も使用してもよい。 - 麻酔は、ステップ1.3.1-1.3.2で説明されているように、コールドコマを使用して1つのサンプルセットのハエを飛ばします。
- ハエが完全に麻酔されたら、顕微鏡のスライドに数匹のハエを置きます
手記:解剖の経験がない場合は、ハエの小さなサブセットから始めます。 - 鉗子と外科用刃または2つの鉗子を使用して解剖顕微鏡でハエの頭を斬首し、完了したらハエの体を捨てます。
- 解剖バッファーとして少量のPBSを使用し、乾燥は避ける必要があります。
- Williamson & Hiesinger (2010)27の方法に従って、キューティクル微粒子と脳以外の組織(例えば、眼の色素組織)を慎重に除去し、全脳を抽出します(図1を参照)。
- 解剖した脳を適切なラベルの付いたウェルに移し、ウェルごとに最低20個の脳が得られるまで繰り返します。
- 解剖期間中はプレートを氷上に保ち、解剖開始からアッセイ開始までの合計時間が20〜30分を超えないようにしてください><。 手記:各グループのウェルに同じ番号がある限り、20個以上の脳を使用できます。正確な読み取りを達成するための最小脳数は異なる場合があります(詳細については、ディスカッションセクションを参照してください)。
- ワーキングセットが完成したら、脳を25°Cで6時間インキュベートし、軽く振とうします。
- 残りのすべてのグループについて、手順 1.2 から 1.6 に従います。
手記:インキュベーションの終了時間を記録し、各サンプルセットが完了したときの差に応じて調整します。
4. インキュベーション期間中の準備
- メーカーの指示に従ってModified Griess試薬を調製し(表を参照)、使用するまで暗所に保管してください。必要な試薬の量は、サンプルの量によって異なります。例えば、Griess試薬はGrace's Mediumに対して1:1の比率で添加されます(ステップ5.5)。したがって、サンプルセットあたり50μl+ブランクコントロール用に50μlを調製する必要があります。
- 亜硝酸ナトリウムを 0.78125 〜 100 mM の亜硝酸塩の段階希釈液で合計 8 濃度の亜硝酸ナトリウムを使用して、亜硝酸塩標準曲線を作成します。
手記:これは、サンプル濃度とGriess試薬活性の一貫性と精度を確保するために、各実験で行う必要があります。 - さらに、滅菌済みの0.5 mL遠心チューブ(各治療群に2本、コントロール用に2本)を調製し、標識します。
5. 亜硝酸塩レベルの検出
- インキュベーション期間が終了したら、マイクロタイターウェルからGrace's Medium(少なくとも45 μl)を各グループに対応する最初の遠心分離チューブセットに移します
手記:前述のように、各解剖セットの間にかかる時間による潜伏期間の違いを必ず考慮してください。 - オプションのステップ:このステップで硝酸レダクターゼとNADPHを追加して、硝酸塩を亜硝酸塩に変換します。(示されている結果ではこの手順は実行されませんでした)
手記: 硝酸塩/亜硝酸塩アッセイは、必要に応じて、アッセイキットに記載されているようにサンプル上清のアリコートを用いて実施することができます。 - 2分間、穏やかに遠心分離機(約8,175 x g)を行い、ウェルから吸引された可能性のある脳または組織の微粒子をペレット化します。
- 上清30 μlを最初の遠心分離チューブのセットから対応する2番目のチューブのセットにピペットで移し、サンプルをスピンダウンした後にペレットを乱さないようにします。
- Griess試薬を1:1の比率で添加し、5〜10分間インキュベートし、NanoDrop分光光度計を使用して548 nmの吸光度で30分以内にアッセイします><。 注:サンプルは、吸光度波長540 nm、参照波長620 nmのマイクロプレートリーダーを使用してアッセイすることもできます。
- 各読み取りを最低3回繰り返し、読み取り値を平均化します。
手記: 6〜10回の読み取りごとにマシンを「ブランク」にし、完了する前に、ブランクコントロール(GraceのMediumと脳のないGriess試薬)をサンプルとして実行し、標準偏差として使用してください。 - ステップ4.2で生成した亜硝酸塩標準曲線を使用して、各サンプルの相対的な亜硝酸塩レベルを計算します。
- 未知の濃度を計算するには、まず、y軸に吸光度(光学濃度)、x軸に濃度を使用して、標準曲線から既知の濃度の値をプロットします。
- すべての標準曲線値をグラフ化したら、最適フィット線の傾きを見つけ、x.
の方程式を解きます 手記: 段階希釈が適切に行われる場合、最適なラインは直線的またはそれに非常に近いはずです。そうでない場合は、標準曲線を再構築します。問題が解決しない場合は、すべての溶液、メディア、試薬の有効期限を確認し、機器が検出範囲内で正常に動作していることを確認してください。 - 次に、単に y を吸光度値に代入し、濃度を表す x を解きます。
NanoDrop装置の使用に関する追加情報については、Desjardins et al. 2009およびDesjardins & Conklin, 201028,29を参照してください。
6. ウェスタンブロット
- 上記のように、条件ごとに30匹のハエを餌にし、できれば液体窒素とボルテックスを使用して頭を斬首します。
- 使用直前に2 mMジチオスレイトール(DTT)と1xプロテアーゼ阻害剤カクテルを添加した60 μl RIPAバッファーで、氷上で全頭をホモジナイズします。
- サンプルを8,175 x g、4°Cで5分間スピンダウンします。
- 上清を新しい遠心分離管に移します。
- サンプルを穏やかに混合し、上清17 μlを6.5 μl 4x LDSサンプルバッファーと2.5 μl 500 mM DTT.
を入れた遠心分離チューブにピペットで移します。 手記:残りのサンプルを液体窒素で瞬間凍結し、使用するまで-20°Cで保存します。 - サンプルをよく混合し、70°Cで10分間加熱し、インキュベーションの途中で1回混合します。
- 加熱しながら、プレキャスト4-12% NuPage Bis-Trisミニゲル、500μlの抗酸化剤を含むMOPS SDSランニングバッファーをチャンバー内に使用して、ポリアクリルアミドゲル電気泳動(PAGE)ランニング装置を組み立てます。
- クイックスピンサンプルと冷却を許可します。
- 各レーンに25μlをロードします。
- ゲル電気泳動を氷上または4°Cで200Vで45分間、またはゲルが完成するまで実行します。
- 電気泳動が完了したら、iBlot Transfer Stacksを使用してゲルから分離したタンパク質をニトロセルロースメンブレンに移し、ウェスタンブロット検出キットを使用してシグナルを検出します><。 手記:使用される抗体は次のとおりです:一次抗体マウスα-nNOS(1:250)、マウスα-シンタキシン(1:200);二次抗体(1:250)は、ウェスタンブロット検出キット(マウス)で提供されます。
- ウェスタンブロットイメージングシステムまたはX線フィルムを使用して化学発光シグナルを検出します。
注:ブロット分析には、標準的なイムノブロット検出および定量法であれば、どのような方法でも使用できます。
結果
マウス19、ラット20 、ショウジョウバエ22などの多くの動物モデルにおいて、パラコートがパーキンソン病様病理と一致する神経変性を誘導することが示されています。私たちは以前、抗炎症作用を持つ抗生物質であるミノサイクリンをパラコートと同時に投与すると、生存期間が延長し、活性酸素種の産生が抑制され、ドーパミン作動性ニューロンの死が救済されることを報告しました25。したがって、ミノサイクリンは炎症を抑制するように作用することから、私たちは炎症反応の活性化における主要なタンパク質であるNOSと、パラコート毒性を調節するその役割について調査を開始しました。
1.25から10 mMのパラコート濃度を用いて、有効な致死量および毒性処理範囲を確定するためのパラコート毒性曲線を作成しました(図 2A)。また、20 mMおよび40 mMのパラコート濃度の影響も検討しましたが、これらの高濃度では毒性が強すぎて、この酸化ストレス因子に対する細胞応答を正確に評価することが困難であったため、本報告にこれらの濃度の結果は含めていません。競争的NOS阻害剤であるL-NAMEと、NAMEの不活性異性体であるD-NAMEを用いて、成体雄 flyにパラコートとNAME異性体のいずれかを併用投与しました。パラコートとL-NAMEを併用投与した flyでは、パラコート摂取による寿命短縮が有意に改善されましたが、パラコートとD-NAMEを併用投与した flyでは生存率の改善は見られませんでした(図 2B)。この結果は、NOSの阻害を通じて炎症を抑制することが、パラコート処理した flyの生存率を高めるという仮説を支持しています。
NOSを介したパラコート応答のさらなる検証として、パラコート曝露直後のNOSタンパク質レベルの変化を検出しました。NOSタンパク質レベルは、パラコート濃度に依存して増加しました(図3A)。10 mMのパラコートを用いて6〜30時間の曝露期間でショウジョウバエを処理したところ、曝露時間の増加に伴い、当初は増加し、その後減少することが観察されました(図3B)。これは、我々の改良型Griessアッセイで観察された亜硝酸塩レベルのパターンと一致しています(図5B)。これらの結果は、パラコート処理がNOSの誘導を引き起こすこと、およびNOSの阻害やL-NAMEまたはミノサイクリンによる処理が部分的な保護効果をもたらすという我々の報告と一致しています17,25。
図 4Aは、パラコート濃度の増加と、NOの分泌および検出によって定義される炎症反応の大きさとの間に線形関係があることを示しています。基底レベルでは、ヘテロ接合型Punch変異体はわずかに低いレベルのNOを分泌していましたが、この変動は従来の検出方法では判別できないほど微小なものでした。パラコートを投与すると、Punch変異体においてNOレベルの顕著な上昇が観察されましたが、野生型の処理群に比べると有意に低い値でした(図 4B)。未処理レベルでの変動は極めてわずかであるものの、野生型とPunch変異体の相対値は、正確かつ再現性高く定量することが可能です。
毒素や化学物質を扱う際は、曝露時間曲線と濃度ベースの毒性曲線の両方を設定することが極めて重要です。なぜなら、これらの条件によってアッセイの感度が劇的に変化する可能性があるためです。例えば、5 mMのパラコートで処理した場合、24時間の曝露後にNO検出量が最大となります(図 5A)。一方で、10 mMのパラコートに曝露させると、より迅速な誘導(12時間で最大レベルに到達)が見られましたが、同時に長時間曝露による活性の減衰もより速くなりました(図 5B)。迅速な誘導を伴う高濃度条件の方が好ましいように思われるかもしれませんが、反応を最大化させすぎると、ニューロンおよびおそらく血球の両方の死滅が加速し、再現性の確保が困難になる可能性があります。
NO分子は不安定で反応性が非常に高い。したがって、成功させるためには、NOSの持続的な誘導とNOの迅速な代謝の間で最適なバランスを維持するインキュベーション条件をアッセイに組み込まなければならない。最適なインキュベーション条件を定義するため、Griess試薬を添加する前に、摘出した脳を培養液中でインキュベートする時間の効果を評価した。その結果、室温で6 hrインキュベートすることで、その後のGriess反応において亜硝酸塩レベルが最大になることがわかった(Figure 5C)。炎症のさまざまなモデルで検出を最適化するには、インキュベーション期間の調整が必要になると考えられる。このプロセスは非常にダイナミックであるため、信頼性と正確性の高い結果を得るには、アッセイ対象となる特定の生物、遺伝子型、および組織に対するすべての最適パラメータを慎重に確立することが不可欠である。特に、遺伝的変異体やトランスジーン発現モデルでは、特に発生段階や成体の年齢に関して、大幅な最適化が必要になると予想される。
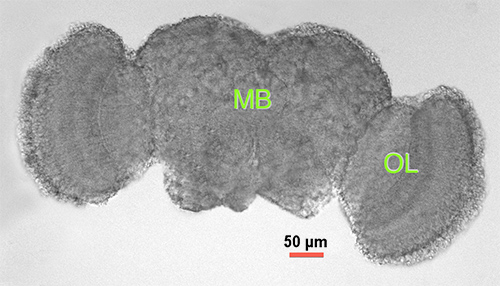
図 1. Drosophila の成虫脳。羽化後2〜3日の成虫雄脳を解剖し、光学顕微鏡で観察した画像。MB = 中脳(中央皮質)、OL = 視葉。
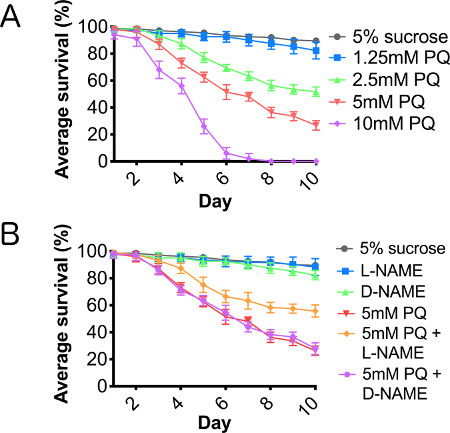
図 2. パラコートは、一酸化窒素合成酵素を介して寿命を用量依存的に短縮させる。 野生型雄ハエに(A)5% スクロース(対照群)、および5% スクロース中で1.25-10 mMの濃度範囲で連続希釈したパラコートを、また(B)パラコートとL-NAMEまたはD-NAMEを併用して10日間連続で投与した。N = 10匹×3群。エラーバー = SEM。
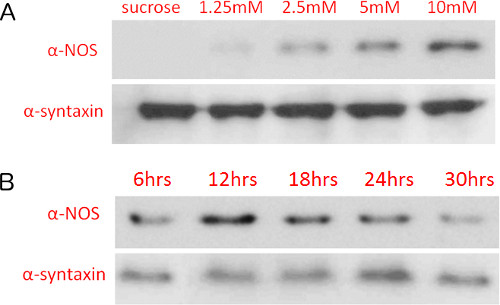
図 3. パラコート濃度および曝露時間の増加に伴う一酸化窒素シンターゼタンパク質レベルの上昇。異なる(A)パラコート濃度(12時間曝露)および(B)10 mMパラコートでの異なる曝露時間で処理したショウジョウバエの一酸化窒素シンターゼレベルの免疫ブロット検出。タンパク質レベルは、化学発光およびX線フィルム曝露を用いてニトロセルロース膜上で検出した。
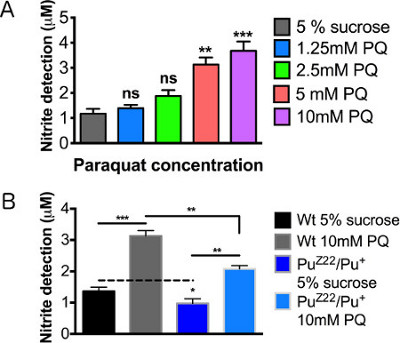
図 4. パラコート曝露後の一酸化窒素検出レベル。羽化後2〜3日の野生型(WT)オスショウジョウバエを用い、12時間の摂餌後にアッセイを行った。(A)パラコート濃度の濃度曲線。(B)スクロース対照群および10mMパラコートを摂餌させたオスPunchヘテロ接合体変異体。N = 各群 20 脳。結果は1群あたり3回の繰り返し実験の結果を示す。エラーバー = SEM。統計解析は、Dunnettの多重比較事後検定を用いた一元配置分散分析(one-way ANOVA)により行った(*, p < 0.05, **, p < 0.01, ***, p < 0.001)。

図 5. パラコートの曝露期間および組織のインキュベーション時間を変更することによる、一酸化窒素産生検出の最適化。(A) 5 mM パラコートおよび (B) 10 mM パラコートで12時間処置した後の、羽化後2~3日の雄の脳における一酸化窒素相対レベル。 (C) 10 mM パラコートを12時間投与した後の、組織インキュベーション期間を変化させた際の一酸化窒素(NO)曲線。有意差の値は以下を基準に算出した: (A, B) 各曝露時間における 5% ショ糖コントロール(グラフには未表示)、 (C) 各インキュベーション時間における 5% ショ糖コントロール(グラフには未表示)。N = 20 brains/group。結果は1群あたり3回の反復実験を表す。エラーバー = SEM。統計解析は、Dunnett's Multiple Comparison ポストテストを用いた一元配置分散分析(one-way ANOVA)により行った(*, p<0.05, **, p<0.01, ***, p<0.001)。
ディスカッション
この方法は、アプローチは簡単ですが、NOS を介した神経炎症のレベルを定量化するためのコスト効率が高く、再現性が高く、非常に感度の高い方法を提供します。結果のセクションに示されているように、さまざまな誘導モデルや生物の応答を強化または最適化するために調整できる変数が数多くあります。ただし、これは非常に感度の高いシステムであるため、プロトコルのすべての側面が慎重に処理されないと、これらの変数によって非常に変動する結果が生じる可能性もあります。モデルを使用して最初にテストする場合は、化学物質濃度(図4A)、曝露時間(図5A および5B)、インキュベーション期間(図5C)などの変数をテストしてパラメーターを設定することをお勧めします。この方法を同様の ショウジョウバエ モデルに適用する場合でも、検出閾値と一貫性を達成するために必要な脳/組織サンプルの数など、他の変数に注意してください。さらに、炎症の年齢依存性遺伝モデルでは、延長された時点の最適化が必要になります。
前述のように、アッセイの機密性のため、プロトコルに不一致があると、信頼性の低い結果が得られる可能性があります。これを念頭に置いて、すべての機器と材料は使用前に滅菌されました。インキュベーション時間が短いため、これらの実験では培地に抗生物質は添加されませんでした。ただし、プロトコルがより長いインキュベーション時間に適応されている場合、または培養物または培地で細菌の増殖が観察される場合は、ペニシリン-ストレプトマイシンなどの典型的な培養抗生物質を追加し、機器を再滅菌する必要があります。他の化学処理実験と同様に、すべてのグループが適切に管理された条件下で飼育され、性別と年齢が一致し、すべてのグループがまったく同じ給餌条件を受けられるように注意する必要があります。考慮すべき給餌条件の例としては、濃度の変化、供給源の利用可能性とアクセス、給餌の期間、給餌が投与される時間帯などがあります。すべての実験条件を詳細に記録し、モデルの自然な供給パターンに細心の注意を払うことで、ばらつきを最小限に抑えることができます。神経回路または行動パターンに影響を与える変異株またはトランスジェニック株が採用される場合、重要な制御には摂食行動のモニタリングが含まれます。
繰り返しになりますが、細胞培養および溶解物でも同様のプロトコルが利用可能ですが、この方法の主な利点の1つは、組織の完全性が維持されるため、脳内の事実上すべての細胞関係が損なわれないことです。このシステムは、神経炎症シグナル伝達と細胞分泌の比較的自然な in vivo 状態を表します。ショ ウジョウバエで確立されたこの技術は、腎機能のためのマルピーギ尿細管モデルにおけるNOシグナル伝達の同様のアプリケーションによって実証されているように、他の小さなモデル生物に容易に調整することができ、中枢神経系に限定されません26。このプロトコルの最も重要な利点は、研究者またはモデルシステムのニーズと関心に合わせてこのアッセイを操作および適応できることです。
このアッセイは、化学遺伝学的アプローチの組み合わせを使用することにより、炎症のメカニズム、遺伝的成分、および化学的調節因子を調査する小規模モデルシステムの能力を大幅に向上させる可能性があります。
開示事項
著者らは、競合する金銭的利益はないと宣言している。
謝辞
このアッセイの開発中にNanoDrop分光光度計を使用していただいたガイ博士とキム・コールドウェル博士、そして批判的なコメントと提案をいただいたJ.ギャビン・デイグル博士に感謝します。この方法の開発は、国立衛生研究所(NS-078728)からJ.M.O.への助成金によって資金提供されました。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| Feeding Chambers | |||
| >Empty Drosophila vial | Genesee Scientific | #32-116 | |
| 吸収性綿 | 標準的な製品であれば何でも使用できます。 | ||
| 濾紙 | Fisher | #09-802-1B | |
| Paraquat exposure | |||
| スクロース | Sigma-Aldrich | #S0389 | |
| Paraquat (メチルビオロゲン二塩化物水和物) | Sigma-Aldrich | #856177 | 有毒。取り扱いには注意が必要で、MSDSガイドラインの範囲内で |
| L-NAME (N-Nitro-L-arginine メチルエステル塩酸塩) | Sigma-Aldrich | #N5751 | |
| D-NAME (N-Nitro-D-arginine メチルエステル塩酸塩) | Sigma-Aldrich | #N4770 | |
| Dissecting Adult Fly Brains and Incubation | |||
| Grace's Insect Medium | Invitrogen | #11605-094 | Grace's Mediumは、Sf-900 II SFMまたはSf-900 III SFM Mediumの代わりに使用することもでき、ロット間の一貫性を高めることができます。 |
| 96ウェルプレート | Corning | #3596 | 標準品であれば何でも使用可能です。 |
| 顕微鏡スライド | 標準品であれば何でも使用できます。 | ||
| サージカルブレード | フェザー | #0197 | 標準品なら何でも使用可能です。 |
| 医療用ピンセット5 | Dumont | EMS #72877-D | 標準品なら何でも使用できます。 |
| 10x PBS buffer | OmniPur | #6508 | |
| Detection of Nitrite Levels | |||
| Modified Griess reagent | Sigma-Aldrich | #4410 | |
| 亜硝酸ナトリウム | Sigma-Aldrich | #S2252 または #237213 | |
| Protein Assay Kit | Bio-Rad | 500-0001 | |
| Cuvettes | 標準品であれば何でも使用できます。 | ||
| 硝酸レダクターゼ | オプション | ||
| NADPH | オプション | ||
| ウェスタンブロット分析 | |||
| RIPA 溶解バッファー | Amresco | 97063-270 | |
| ジチオスレイトール (DTT)- 還元剤 | Novex | B0009 | |
| プロテアーゼ阻害剤カクテル | Amresco | 97063-082 | |
| 4x LDS サンプルバッファー | Novex | B0007 | |
| プレキャスト 4-12% Bis-Tris minigel | Novex | BG04125BOX | |
| MOPS SDS ランニングバッファー | Novex | B0001 | |
| 抗酸化 | 剤 | NuPage NP0005 | |
| iBlot Transfer Stacks (Nitrocellulose) | Invitrogen | IB301002 | |
| Western blot検出キット | Invitrogen | IB711002 | |
| Mouse α-nNOS | BD Biosciences | 611853 | |
| Mouse α-syntaxin | DSHB | 8C3 |
参考文献
- Gehrmann, J., Matsumoto, Y., Kreutzberg, G. W. Microglia: Intrinsic immuneffector cell of the brain. Brain Res. Rev. 20, 269-287 (1995).
- Dissing-Olesen, L., et al. Axonal lesion-induced microglial proliferation and microglial cluster formation in the mouse. Neuroscience. 149, 112-122 (2007).
- Aloisi, F., Penna, G., Cerase, J., Menendez Iglesias, B., Adorini, L. IL-12 production by central nervous system microglia is inhibited by astrocytes. J. Immunol. 159, 1604-1612 (1997).
- Vincent, V. A., Tilders, F. J., Van Dam, A. M. Inhibition of endotoxin-induced nitric oxide synthase production in microglial cells by the presence of astroglial cells: a role for transforming growth factor beta. Glia. 19, 190-198 (1997).
- Rohrenbeck, A. M., et al. Upregulation of COX-2 and CGRP expression in resident cells of the Borna disease virus-infected brain is dependent upon inflammation. Neurobiol. Dis. 6, 15-34 (1999).
- Walsh, D. T., Perry, V. H., Minghetti, L. Cyclooxygenase-2 is highly expressed in microglial-like cells in a murine model of prion disease. Glia. 29, 392-396 (2000).
- Aloisi, F., Serafini, B., Adorini, L. Glia-T cell dialogue. J. Neuroimmunol. 107, 111-117 (2000).
- Minghetti, L., Levi, G. Microglia as effector cells in brain damage and repair: focus on prostanoids and nitric oxide. Prog. Neurobiol. 54, 99-125 (1998).
- Mrak, R. E., Griffin, W. S. T. Glia and their cytokines in progression of neurodegeneration. Neurobiol. Aging. 26, 349-354 (2005).
- Zhang, W., et al. Aggregated alpha-synuclein activates microglia: a process leading to disease progression in Parkinson's disease. FASEB J. 19, 533-542 (2005).
- Beers, D. R., et al. Neuroinflammation modulates distinct regional and temporal clinical responses in ALS mice. Brain Behav. Immun. 25, 1025-1035 (2011).
- Wood, W., Faria, C., Jacinto, A. Distinct mechanisms regulate hemocyte chemotaxis during development and wound healing in Drosophila melanogaster. J. Cell Biol. 173, 405-416 (2006).
- Babcock, D. T., et al. Circulating blood cells function as a surveillance system for damaged tissue in Drosophila larvae. Proc. Natl. Acad. Sci. U.S.A. 105, 10017-10022 (2008).
- Vlisidou, I., et al. Drosophila embryos as model systems for monitoring bacterial infection in real time. PLoS Pathog. 5, e1000518(2009).
- Foley, E., O'Farrell, P. H. Nitric oxide contributes to induction of innate immune responses to gram-negative bacteria in Drosophila. Genes Dev. 17, 115-125 (2003).
- Costa, A., Jan, E., Sarnow, P., Schneider, D. The Imd pathway is involved in antiviral immune responses in Drosophila. PloS One. 4, e7436(2009).
- Daigle, J. G. Integrated microglial-like neuroinflammatory and hypoxia responses in a Drosophila model for Parkinson's disease. , in preparation Forthcoming.
- Tanner, C. M., Kamel, F., Ross, G. W., Hoppin, J. A., Goldman, S. M., Korell, M., Marras, C., Bhudhikanok, G. S., Kasten, M., et al. Rotenone, Paraquat and Parkinson's Disease. Environ. Health Perspect. 119 (6), 866-8672 (2011).
- Manning-Bog, A. B., McCormack, A. L., Li, J., Uversky, V. N., Fink, A. L., Di Monte, D. A. The herbicide paraquat causes up-regulation and aggregation of alpha- synuclein in mice: paraquat and alpha-synuclein. J. Biol. Chem. 277, 1641-1644 (2002).
- Ossowska, K., Wardas, J., Smialowska, M., Kuter, K., Lenda, T., Wieronska, J. M., Zieba, B., Nowak, P., Dabrowska, J., Bortel, A., et al. A slowly developing dysfunction of dopaminergic nigrostriatal neurons induced by long-term paraquat administration in rats: An animal model of preclinical stages of Parkinson's disease. Eur. J. Neurosci. 22, 1294-1304 (2005).
- McCormack, A. L., et al. Role of oxidative stress in paraquat-induced dopaminergic cell degeneration. J. Neurochem. 93, 1030-1037 (2005).
- Chaudhuri, A., et al. Interaction of genetic and environmental factors in a Drosophila parkinsonism model. J. Neurosci. 27, 2457-2467 (2007).
- Krishnakumar, S., Burton, D., Rasco, J., Chen, X., O'Donnell, J. Functional interactions between GTP cyclohy- drolase I and tyrosine hydroxylase in Drosophila. J. Neurogenet. 14 (1), 1-23 (2000).
- Foxton, R. H., Land, J. M., Heales, S. J. R. Tetrahydro- biopterin availability in Parkinson's and Alzheimer's disease; potential pathogenic mechanisms. Neurochem. Res. 32 (4-5), 751-756 (2007).
- Inamdar, A. A., Chaudhuri, A., O'Donnell, J. The Protective Effect of Minocycline in a Paraquat-Induced Parkinson's Disease Model in Drosophila is Modified in Altered Genetic Backgrounds. Parkinson's Disease. 2012, 938528(2012).
- Kean, L., Cazenave, W., Costes, L., Broderick, K. E., Graham, S., Pollock, V. P., Davies, S. A., Veenstra, J. A., Dow, J. A. Two nitridergic peptides are encoded by the gene capability in Drosophila melanogaster. Am. J. Phys. Reg. Integr. Comp. Phys. 282, R1297-R1307 (2002).
- Williamson, W. R., Hiesinger, P. R. Preparation of Developing and Adult Drosophila Brains and Retinae for Live Imaging. J. Vis. Exp. (37), (2010).
- Desjardins, P., Hansen, J. B., Allen, M. Microvolume Protein Concentration Determination using the NanoDrop 2000c Spectrophotometer. J. Vis. Exp. (33), (2009).
- Desjardins, P., Conklin, D. NanoDrop Microvolume Quantitation of Nucleic Acids. J. Vis. Exp. (45), (2010).
再版と許可
