骨格筋は歩行のために不可欠であり、団体「メインタンパク質店です。 C.エレガンス内の筋肉の健康の測定について説明する。筋肉の構造と機能の将来の変更は、ローカライズされたGFPおよびカチオン染料を使用して評価される。
この記事について
サマリー
要約
筋肉は栄養、運動、および疾患状態の変化に応答する動的な組織である。病気や加齢に伴う筋肉量および機能の喪失は、重大な公衆衛生上の負担です。我々は現在、病気や加齢に伴う筋肉の健康の遺伝的調節についてはほとんど理解しています。線虫C.エレガンスは、関心のある生物学的プロセスのゲノム調節を理解するための確立されたモデルである。このワームの体壁の筋肉は、より高い後生動物種の筋肉との相同性の程度が大きい表示。 C.エレガンスは 、透明有機体であるため、ミトコンドリアおよびサルコメアのGFPの局在は、in vivoでのこれらの構造の可視化を可能にする。同様に、動物のミトコンドリア膜電位の有無に基づいて、蓄積するカチオン染料を送り、in vivoでのミトコンドリア機能の評価を可能にする。筋肉タンパク質homeostaこれらの方法、ならびに評価sisの、筋肉の性能の機能的尺度を持つ細胞内の欠陥の相関を可能にするために、移動アッセイの形式で、全動物の筋肉機能の評価と組み合わされる。したがって、C.エレガンスは、筋肉の構造と機能に、変異の影響を評価するための強力なプラットフォームを提供し、遺伝子ノックダウン、および/ または化学的化合物である。最後に、GFP、カチオン染料、および移動アッセイとして評価されている非侵襲的に、筋肉の構造および機能の前向き研究は、全ライフコース全体で行うことができ、現在では、これは容易に他の生物においてインビボで調査することができない。
概要
筋肉はよく歩行、姿勢サポートや代謝におけるその役割のために認め多機能組織である。健全な筋肉の開発と保守には、複数の細胞プロセスとコンポーネントの調整を必要とします。どちら損傷または疾患を通じて、調節不全は、変更された筋肉構造および/または機能で、その結果、発生する可能性があります。筋機能における加齢に伴う筋肉量の減少1,2、特に筋力と持久3-5は負の死亡率と相関していることから、西側世界におけるヘルスケア予算に大きな負担を提示します。そのような改変されたミトコンドリア機能またはサルコメア混乱などの筋機能の悪化に関連した側面の測定は、全体的な筋肉の発達と健康を支えるメカニズムのより深い理解を可能にすることができる。
C aenorhabditis虫(C.エレガンス )微視的線虫BESですそれは、その全ゲノムを持つ最初の多細胞生物は、6の配列を決定したRNAi 7を使用して沈黙する遺伝子を持って最初の、そしてその全体の細胞系譜8および神経解剖学9に決定。 線虫を持っている唯一の後生動物が最初として提案されただったので知らトンシドニー·ブレナー10と、このことの重要性とそれに続く作品による1974年の行動の遺伝的制御の研究のためのモデルは、 線虫の研究者に授与さ3ノーベル賞の最初に認識された。 C.の約35%が、遺伝子がC.エレガンスは、筋肉の発達11の遺伝子制御を理解するために使用されるキーである生物を、ヒトにおいてオルソログを同定したエレガンス 。ほとんどのC. elegansのゲノムにおける全ての遺伝子は、RNAi 7,12を通じてノックダウンすることができます。このように、完全に開発筋肉中の遺伝子をノックダウンすることにより、遺伝的コンポーネントは再に貢献筋肉の健康のgulationは相対的なシンプルさ13を用いて調査することができます。
組み合わせたRNAiを使用する能力、変異体、および化学化合物がCで 16歳と疾患モデルにおける17の筋肉の構造と機能の遺伝的調節7,14,15を探索するのに最高のシステムを虫になります。遺伝子ノックダウン、突然変異、および/または筋肉の構造および/または機能に対する化学物質への暴露の影響は、複数の側面を介して測定することができる。ここでは、簡単に筋肉の健康の前向き研究において使用され得る多くはC. elegansの筋肉の構造および機能を評価するための簡単な技術を記載している。
緑色蛍光タンパク質(GFP)18の開発は、特定のタンパク質の局所性およびC.エレガンスにおける細胞小器官の一般的な構造の両方の可視化を可能にした。ここでは、GFPがspeciを表明方法について説明しますこれらのサブ細胞構造のジストロフィーが存在する場合fically体壁筋のミトコンドリア、核、またはサルコメア内で決定することができる。構造が常に機能するための信頼できるサロゲートはないので、我々はまた、in vivoでのカチオン染料の使用は、筋肉内の障害のあるミトコンドリア膜電位の評価を可能にする方法を説明します。染料がGFPと組み合わせて使用される場合、それらは、寿命全体を通じて、時間的な方法でアーキテクチャおよび機能の研究を可能にする。最後に、我々はまた、これらの手段の全ての移動アッセイの使用を介して、全動物の筋肉の健康の変化を相関させるために使用することができるか、筋肉内のタンパク質恒常性を評価することができると方法について説明します。遺伝子ノックダウン、突然変異、および/ または化学的化合物と組み合わせたこれらの技術は、特定の遺伝子または化合物がインビボでの筋肉の健康にどのように影響するかを研究するための強力な武器を提供する。 C. elegansのと間の構造、代謝と筋肉の総機能の類似点哺乳類は、線虫を意味するヒトを含む高等生物、筋肉の調節を理解するための、優れたモデル生物である。
プロトコル
1.株、文化、および顕微鏡
- ハンドルと以前に19を説明したように、線虫株を維持する。株は線虫遺伝学センター(CGC)から入手できます。
NOTE:ミトコンドリアおよび核に局在化GFP融合タンパク質をこれらの実験で使用した菌株は、CB5600( 彼-8(e1489)IV; Pmyo-3 :: Mtgfp)I ccIs4251(Pmyo-3 :: Ngfp-lacZをする )であった。 PJ727(jls01(ミオ-3 :: GFP、ROL-6(su1006));のunc-54 :: lacZを V)収縮装置とPD55(ccIs55(SUP-7(ST5)に局在化GFP融合タンパク質と、unc- 54 :: lacZの細胞質ゾルに局在化βガラクトシダーゼ融合タンパク質を含む)V)。 - 以前に多世代RNAi実験13について記載したシーケンスからのRNAi細菌を得るように、完全なRNAi実験は、マルク·ビダルら 12により構築ORF-のRNAiライブラリを検証した。
- 含有する株を構築するのCCIS 4251、jls01またはCCIS 55は、標準的な技術を使用して20。それぞれ、ミトコンドリアのネットワーク構造、ミオシン組織やタンパク質恒常の状態を評価するために歪みを作成するには、これらの導入遺伝子を使用してください。すべての動物におけるこれらのサブ細胞区画の一つを見てを所望する突然変異体に菌株を渡ります。
- 以前に21を説明したようにのPtdIns-3-キナーゼ阻害剤、LY-294002(LY)を使用します。簡単に言うと、ドライOP50シードNGMプレートの上に160μMの最終濃度でLY-294002を追加します。
- 一般的に、GFPベースの実験のためのGFPフィルターおよびC 32 H 32 Cl 2を N 2 Oとの生体内膜電位に評価するために、同時に、赤、緑及び青のチャネルの画像化を可能にするトリプル·パス·フィルタを有する顕微鏡を使用して、すべての画像をキャプチャのMitoTrackerレッドCMXRosとして販売。画像処理ソフトで画像解析し、図の準備を行う。
- 前に必要とされる最低1日、M9バッファーを作る- 22.04 mMのKH 2 PO 4、42.27ミリモルのNa 2 HPO 4、85.56のNaCl(最終濃度)、およびオートクレーブで滅菌する。一旦45℃まで冷却し、析出22を防止するために、オートクレーブ処理後、1 mMのMgSO 4を滅菌加える。 M9は50ミリリットルチューブに4℃と一定分量で冷却することができます。
- 実験の日に、L1の幼虫数の多いシングル9センチメートルプレートに3ミリリットルM9バッファーを追加します。角度で保持プレートと寒天の表面に対してM9液とピペッティングを吸引することにより、繰り返しプレートを洗ってください。
- プレートから、L1のを洗い、次にピペットを用いて10ミリリットルの試験管にM9を移す。
- 大きな大人と後で幼虫期の動物は試験管の底に落下することを可能にするために2.5分間のままにして、小さい方のL1動物はトン近く残るM9バッファーのオペアンプ。
- ピペットを用いて試験管内でM9のトップ500μlのを削除します。次に、新しいNGMプレートにM9を含む、L1幼虫をピペット解剖スコープの下で500μlのOP50を播種。
- 一般的に、プレートあたり〜200-300のL1幼虫を転送することを目指しています。毎日の成人期からプレートを監視し、必要に応じて、消費されているOP50の食料源を防止するために、新鮮なOP50 NGMプレート上に動物を選ぶ。
注:これは主に、原版上のL1の数に応じて異なるが、これは、通常、P1000ピペットを用いてM9 1-3滴である。 - 個々の動物での前向き研究が必要な場合は、動物が成人期に達すると、シードされたNGMプレートを分離するために個々の動物を選ぶ。転送動物ごとに24〜48時間は幼虫の動物から分離する。
3.運動アッセイ19
- 実験を開始する前に、2時間の最小値、M9 50mlのアリコートを除去し、室温に平衡化させるerature。
- 顕微鏡スライド上に50μLのM9緩衝液中に、単一の成体動物を選ぶ。
- 1左方向及び右方向に曲がり1つのストロークに等しい10秒の左及び右方向の本体屈曲部の数を数える。
- 平均値をとることが可能な少なくとも5つの測定値の合計を与えるために、本体のストロークのカウントを繰り返す。分あたりの移動速度を与えるために6によってこれらの数字を掛けます。
- ピペットを用いて、ペトリ皿に戻って動物を移す。この方法は、C.エレガン s内の全体の寿命を通して運動の時間的な測定を可能にします。
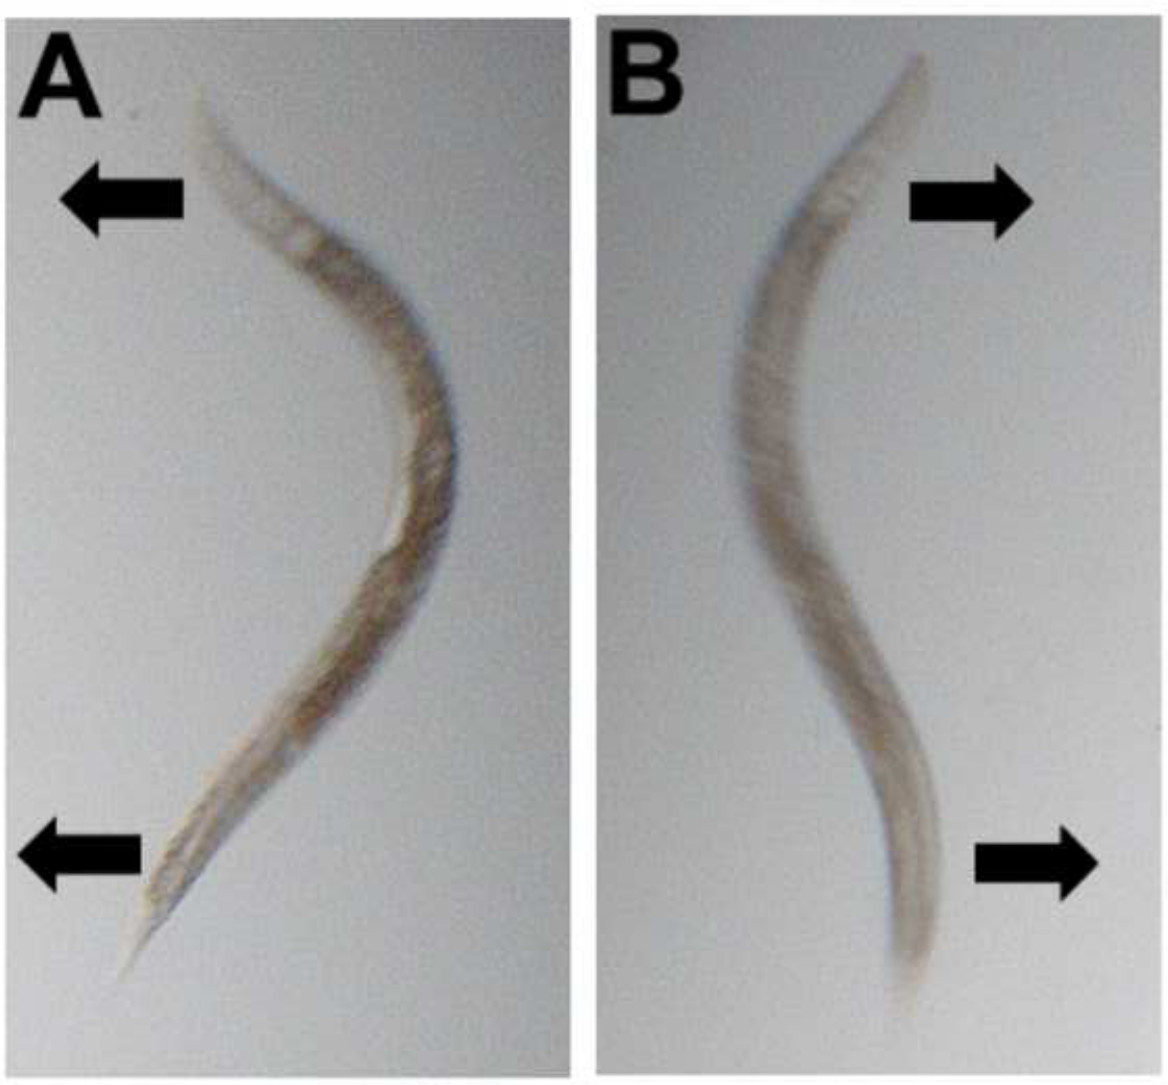
図1:運動アッセイ。ワームは、バッファに取得されたら、次に、左方向(A)と一つ右方向(B)の曲げは一つの完全な動きを与えるように加算される(ストローク)。
ボディ壁筋におけるミトコンドリアネットワークとサルコメア4.イメージング
- 注:同じプロトコルは、ミトコンドリアとサルコメアの両方のイメージングのために適用されます。
- 前述した(第1節)のようなワームを同期させ、彼らが青年期に達する時20℃で48-60時間、成長する。
- 顕微鏡スライド上に20μLのM9にプレートから20ワーム(プレートの代表)を選ぶ。
- カバースリップを適用し、40Xの倍率でGFPフィルター(460から500 nmの青色光励起)の下に、蛍光顕微鏡を用いて画像に進みます。
5.のMitoTrackerレッドCMXRos(C 32 H 32 Cl 2の N 2 O) を用いたin vivo蓄積アッセイを使用して膜電位の評価
- CB5600(第1節)、筋肉のミトコンドリアにおけるGFPで標識されたすべてを同期させると、20℃で48-60時間、NGM含むOP50上の成人早期に成長する。
- 940.692μMのストック溶液を作るために、C 32 H 32 Cl 2の N 2 Oの50μgのアリコートに100μlのDMSOを追加します。
- 940.692μMストック溶液1μlを取り、4.70μM(4.70346μM)の作業溶液を作成するために199μlのM9に懸濁します。 C 32 H 32 Cl 2の N 2 Oが感光性であるので、茶色の1.5ミリリットルチューブ内でこれを準備します。
- ワーキング溶液4.70μM20μlのアリコート(20μlのアリコート当たり20成虫)を準備します。
- ブラウン1.5ミリリットルチューブ内のC 32 H 32 Cl 2の N 2 O 4.70μM20μlのに20成体動物を選ぶ。 1時間20℃でインキュベートする。
- 1時間のインキュベーション後、10秒間2000×gでワーム、遠心分離機を含む茶色の1.5ミリリットルチューブに1ミリリットルM9を追加し、上清を除去。ワームペレットを再懸濁し、残りの20μを転送する前に、この洗浄ステップを繰り返しますlはイメージングのためのスライドに(虫を含む)。
- 同時に、赤、青、緑のチャネルの可視化を可能にするトリプル·パス·フィルタを使用して40倍の倍率でミトコンドリアの画像を撮る。トリプルパスフィルタを用いた撮像がオレンジ色として現れるミトコンドリアに局在するGFPを有するC 32 H 32 Cl 2を N 2 Oの共局在を示す。
- オレンジ色のミトコンドリアの画像を撮影除去すべてのフィルタと最大設定に以下を25分の540の波長の光を用いて10秒間動物フォトブリーチした。これは、ミトコンドリア内の赤を漂白し、筋肉のミトコンドリア内共局在を確認するために、一人でミトコンドリアGFPを明らかにする。
線虫の筋肉タンパク質分解の6評価
- NGMプレート上にPD55s( 又は LacZ導入遺伝子を含む任意の株)を同期させるには、OP50(第1)を播種。 2で48-60時間、青年期に成長0°C。
- 顕微鏡スライド上に20μlのddH 2 O中に20成虫を選ぶ。試してみて、唯一のワームやピックを持つていない任意の細菌を選択するように注意してください。鉛筆での顕微鏡スライドにラベルを付けます。
- 動物のキューティクルを乾燥し、クラックする30分間デシケーター中に置きます。シールの周りにグリスを使用してデシケーターに気密シールを確認してください。
- 乾燥は解剖スコープ( 図2)の下で有効であった確認してください。
- スライド上のアセトンを蒸発させるために15分間室温でペーパータオル上で顕微鏡スライドを残して、次に3.5分間氷冷アセトン中で顕微鏡スライドを沈める。この時点で、X-galおよび酸化緩衝液を解凍し、室温に平衡化を可能にする。
- 優しくこれが均質であることを確認するために、酸化バッファーとボルテックスμlの100に2μlのX-galを追加します。これは、X-galを/酸化バッファマスターミックスです。
- OそれぞれにX-galを/酸化バッファマスターミックス20μlのを追加します。20ワームのriginalエリア。マスターミックスを完全に完全にすべての動物を網羅確実にするために解剖スコープの下で点検します。穏やか動物はカバーされない領域の上にマスターミックスを移動するために顕微鏡スライドを傾ける。
- 20℃で1〜2.5時間、湿度室で顕微鏡スライドを置きます。画像動物濃い青色は、対照動物の体壁の筋肉中に存在する。動物が画像化されるべきであるかを決定するために15分ごとに解剖スコープの下に対照動物を評価する。
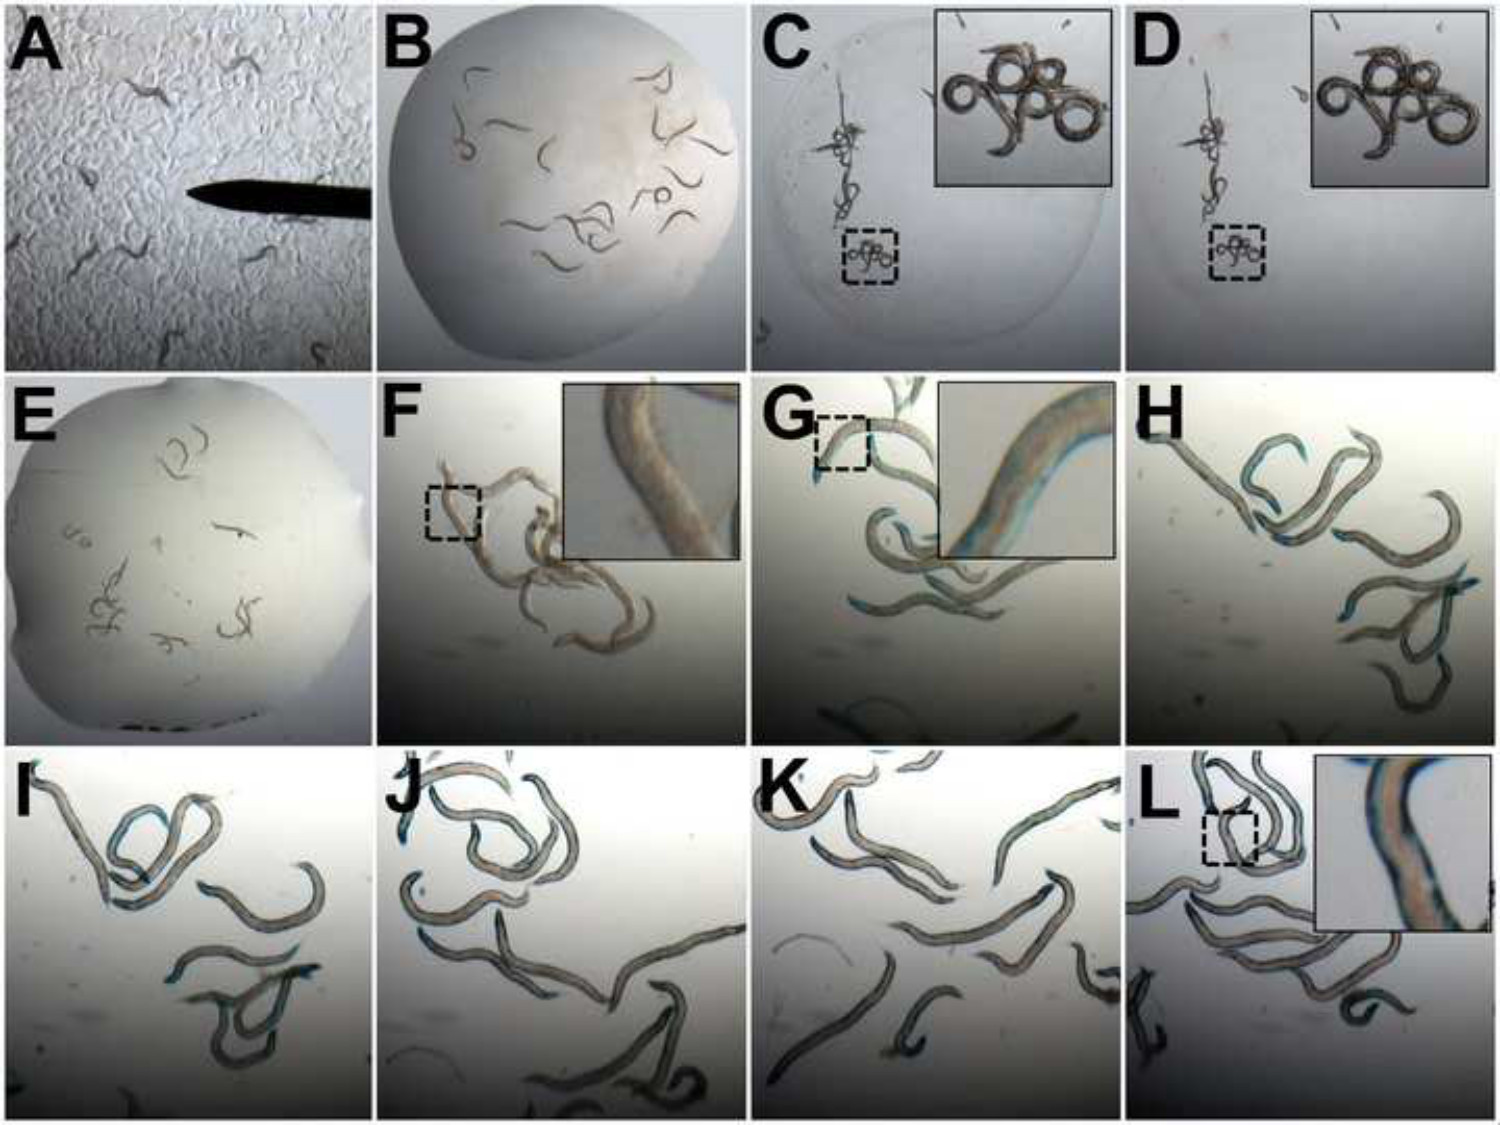
図2:βガラクトシダーゼアッセイを用いて、筋肉タンパク質分解の評価。 のlacZ導入遺伝子を含む(A)動物は、顕微鏡スライド(B)上に20μlのddH 2 Oにペトリ皿から取得されます。動物は、乾燥され、骨折になる(D)で洗浄する。アセトンは、X-galを/酸化緩衝マスターミックスを蒸発させると(E)を添加する。濃い青色が動物(L)の長さにわたって得られるまで、対照動物における青色の発色をt = 0分(F)から15分間隔(FL)で評価される。ワームの画像は、 フロリダ州にAEと8Xに2.5Xの倍率で撮影されている。 C、D、F、G、およびLにズームし、元の倍率4Xである。
結果
ムーブメント欠陥を定量化するために運動アッセイ
運動の減少はCで死亡率の良い予測因子であるelegansの 16、と、神経筋システムの問題を示す率を減少させた。動きの変化は、運動アッセイにより評価されるように、特定の遺伝子または薬物治療( 図3-5)に対して、又は13変異体動物においてRNAi 23から生じ得る。運動の減少は複合体I、III、IVまたはV 24をコードする電子輸送遺伝子のダウン発達ノック以下、例えば、変更された開発から生じ得る。さらに、特定の介入後の発達生理学上の効果を調べるためにのみ成体C.エレガンスで試験することができる。例えば、動物はエンコードUNC-112、に対するRNAiで処理されたC.は含むインテグリンに局在しているKindlin-1のオルソログエレガンス筋肉付着複合体( 図3および4)、またはガス1、電子伝達鎖( 図4)との複合体Iの成分をコードし、48〜72時間後に成人の対照に対する動きの漸進的減少を示す。これは、筋生理学の問題を示すことができる。同様に、24からの移動の損失- 72時間のPI3K阻害剤LY-294002( 図5)を用いた処理による正常に発生し、成人の処置に応答して観察される。これは、初期の介入に応答して減少する動きを示す動物の動きを復元する第二のRNAi処理、突然変異、または薬物の効果を試験することも可能である。たとえば、unc- 112変異体は薄暗い-1 13における第二の突然変異の存在下で減衰され、野生型動物と比較して動きの定量化の減少が表示されます。したがって、運動アッセイはneuromuscuを変えるの両方の介入を識別することができますLARの開発および/または機能ならびに改善、および/または神経筋の機能を回復させるもの。
サルコメア破壊の評価
運動欠損を同定したが、それは運動欠陥の原因は、神経、筋肉、またはその両方内の問題によって説明することができるかどうかを決定することが望ましいことが多い。サルコメアの収縮を可能にし、従って、生成および移動を強制的に筋肉内の多タンパク質複合体である。収縮装置に局在ミオシンGFP融合タンパク質を発現する動物を利用することにより、ミオシンフィラメントとサルコメアの混乱の程度は、発生および/または成人期を通して個々の動物において、比較的非侵襲的かつ前向きに観察することができる。野生型動物は各ボディ-壁筋内などの複数の緑色平行な直線( 図3)が表示され、アレイ筋節を表示します。これらの正常な配列への破壊は、比較的マイナーかもしれ並行して残っているのではなく、マージする登場並ぶサルコメア。 tでのunc-112 RNAiを可視この表現型は、= 24時間または48時間( 図3)は 、哺乳動物の筋肉内のアクチン結合部位のZラインストリーミングと同等である。同様に、配列の小さな部分は折りたたむことができ、またはそれらは、完全にそのようなT = 48時間またはT = 72時間でUNC-112のRNAiを用いた治療( 図3)のように消えることができます。運動欠陥を表示する動物の筋肉内サルコメア欠陥の存在( 図3)は、運動欠損を説明するのに十分であるが、必ずしも介入に応答して、筋肉、神経、および/ または他の組織との他の問題を除外するものではない。
ミトコンドリアネットワーク構造の評価
運動欠損の存在下ではそれが発生したり、移動デに寄与することができる他の欠陥のために筋肉を調べることが望ましい場合があるfect。ミトコンドリアは、細胞エネルギーの大部分を提供し、筋収縮のために利用可能なエネルギーを減少させる、減少ATP提供の結果である可能性運動低下する。したがって、ミトコンドリアの構造異常を調べることができる。それは迅速なミトコンドリアの断片化を誘導するようにアジ化ナトリウムで動物を麻酔しないことが重要である。これらの実験動物は、カバースリップによって加えられる圧力によって固定化した。野生型C.エレガンスの中 体壁筋のミトコンドリアの構成はネットワーク( 図4)内に収容され、ミトコンドリアは胞体25として存在し、機能する。ミトコンドリアのネットワークの破壊は、ネットワーク( ガス-1のRNAi、 図4B)26の断片として提示します。断片化は、組織化ネットワークのないうわべだけがUNC-112のRNAi( 図4BおよびC)13を用いた治療など残っていないことを十分に厳しくなることがあります。のWiとしてサルコメア構造における番目の混乱が、運動欠陥を表示する動物の筋肉ミトコンドリア構造の欠陥は、運動欠陥を考慮するのに十分であり得るが、これは必ずしも、筋肉、神経、および/または他の組織との他の問題を除外するものではない。たとえば、UNC-112変異体13と治療UNC-112のRNAi( 図3および図4)ディスプレイの両方破砕サルコメア持つとは、ミトコンドリアの構造を破壊した。
インビボでのミトコンドリア機能の評価
ミトコンドリア膜電位は、したがって、インビボでミトコンドリア膜電位を評価する能力は、ATPを生成するためにその動物の能力を示し、プロトン駆動力を作成し、ATP 27を生成するミトコンドリアの能力を決定する。ミトコンドリアの構造的混乱がまたはミトコンドリア機能的能力を変化させてもしなくてもよいように、それは指名打者かもしれrableは、変化したミトコンドリアの構造を示す動物におけるミトコンドリア機能を評価した。 C 32 H 32 Cl 2を N 2 Oは、膜電位が存在し、ミトコンドリア28( 図4C)を染色するすべての細胞型のミトコンドリアに蓄積する。具体的には、筋肉内のミトコンドリア機能を評価するためには、C 32 H 32 Cl 2を N 2 Oを使用することができ、GFPは、具体的には、筋肉ミトコンドリア( 図4C)に基づい介入の効果を実証するために、筋肉のミトコンドリアを標識した。たとえば、UNC-112のRNAiで処理した後のミトコンドリア膜電位の損失はマトリックスに入るから、C 32 H 32 Cl 2の N 2 Oを防ぎます。ミトコンドリアのGFP標識( 図4C)に加えて、ミトコンドリアのいずれレッド染色した場合、ミトコンドリアは、したがって、少しを示している。光退色は観察されていることを確認するためにも使用することができミトコンドリアは、特に筋肉( 図4C)のものである。 ATPを産生する能力の減少の同定は、観察された運動欠陥を考慮するのに十分であるが、筋肉、神経、および/または他の組織内の他の問題を除外するものではない。縮小ATPの生産能力は、ヒト29,30老化疾患状態と関連しているにかかわらず、介入に応答したそのような欠陥の識別はATP生産能力を向上させ、これらはその後もよい化合物および/ またはRNAi治療のためのスクリーニングのためのプラットフォームを提供さらなる治療の可能性について検討される。
タンパク質分解の評価
運動欠陥と正常サルコメアとミトコンドリアの存在下でそれが発生したり、運動欠陥に寄与し得る他の欠陥のために筋肉を検査することが望ましい場合がある。タンパク質恒常性を維持する能力は、署名されずタンパク質合成および/ またはタンパク質分解の増加の減少に対し、発作の健康は、31と、複数の疾患状態32,33老化の結果である。従って、変化したタンパク質ホメオスタシスの移動欠陥を有する動物の筋肉を検査することが望ましい場合がある。これは、細胞質、筋肉タンパク質のレベルの評価を介して達成することができる。トランスジェニックコードされたタンパク質の使用は、筋特異的タンパク質恒常性の評価を可能にします。例えば、βガラクトシダーゼを含む動物の使用は、ミオシンのN末端 部分に融合され、それは、ミオシンプロモーターの制御下で合成され、エンハンサーはサイトゾル筋タンパク質含量19の評価を可能にする。野生型成人におけるブルー染色の存在は、活性なβガラクトシダーゼおよび病理学的細胞質タンパク質の分解の有無を示している。治療に応答した染色の喪失は、病的なタンパク質分解( 図5を発生している示唆している13,14,19 96時間後成人期。 LY-249002で処置した動物は、汚れの欠如を示すのに対し、例えば、未処置の野生型動物では、成人期の後に( 図5)強烈なブルー染色72時間を表示する。サルコメア構造およびミトコンドリア機能の欠陥と同様に、病理学的な筋肉タンパク質分解の存在が観察された運動欠陥を考慮するのに十分であるが、必ずしも、筋肉、神経、および/または他の組織との他の問題を除外するものではない。
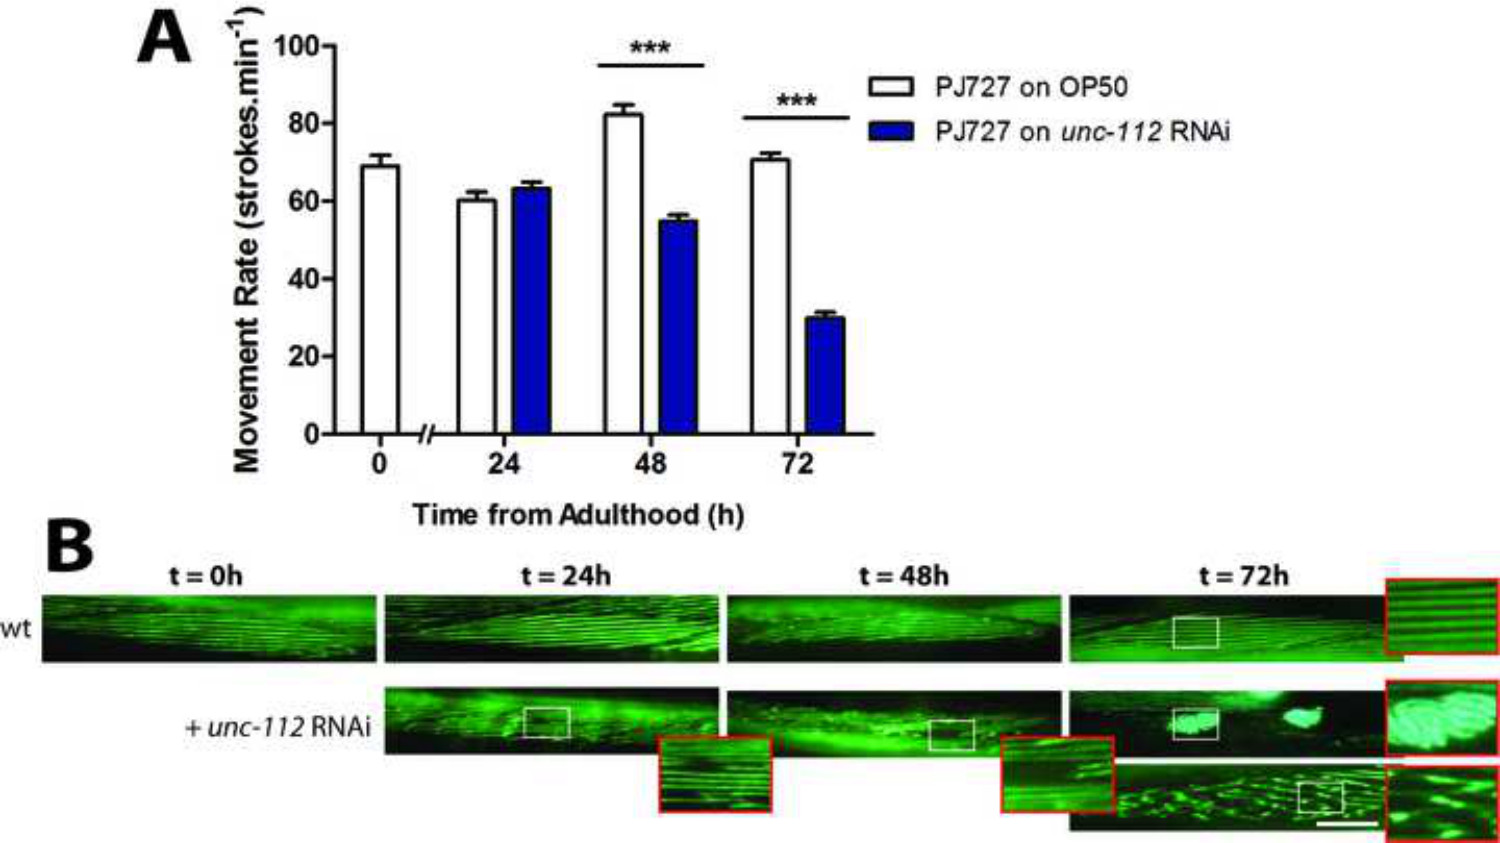
図3は:(A) のunc-112のRNAiは、t = 72時間で有意運動欠陥を引き起こす体壁筋肉内に配列されたバンド構造の(B)の評価。 wの中トン、筋肉中のバンドは青年期(T = 0時間)で直線として表示され、(重量ズームを参照)成人期の72時間を越えてまで、大部分が均一なままです。UNC-112 RNAiはサルコメアはの小さな領域でアーキテクチャを失う原因となる筋肉(T = 24時間)は、崩壊し、行方不明の筋節(T = 48時間)、アグリゲーション(T = 72時間、トップパネルとズーム)とサルコメアの直線性(T = 72時間のボトムパネルとズーム)の損失。スケールバーは2.5倍である25μMおよびズームを表します。
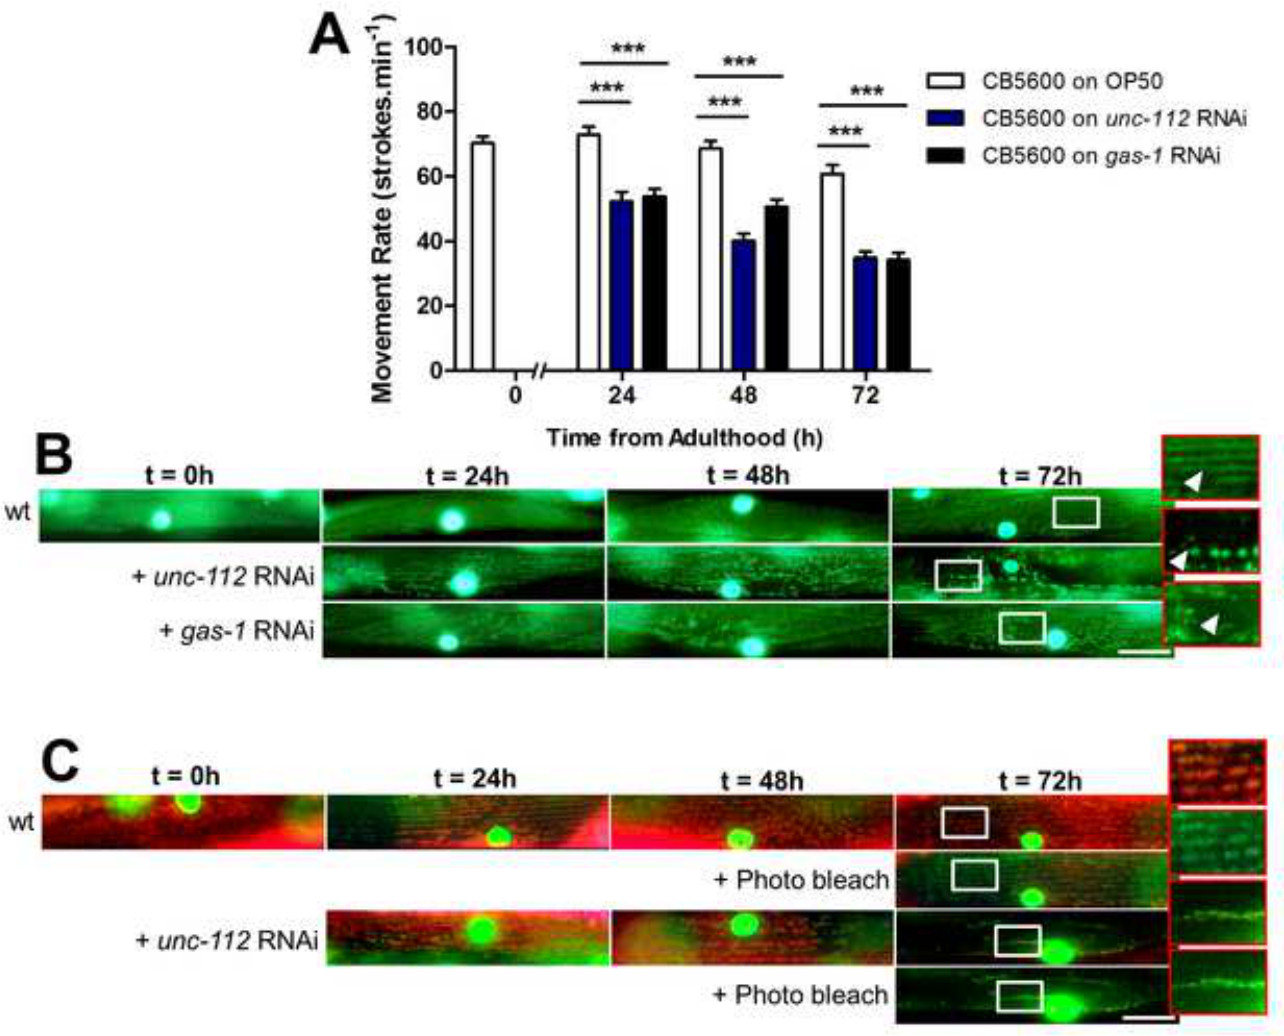
図4(A) のunc-112またはガス-1 RNAiは、運動欠損を引き起こす、体壁筋内のミトコンドリアの構造(B)の評価。筋肉内のミトコンドリアは、青年期(重量)でのようなネットワーク上の直線で表示されます。 mitochondrにおけるUNC-112のRNAi結果と動物の処置以前に24時間と成人期(ズームや矢印)13の72時間の間で観察されるように、IALフラグメンテーション。同様に、ミトコンドリアのネットワークの断片化ガスに対するRNAi -1の結果は、以前に26を観察されたように。これらには、72時間(ズームや矢印を参照)。in vivoでのミトコンドリア膜電位の(C)のアセスメントで広まっ解体にはt = 24時間と進捗状況でミトコンドリアのネットワーク内に小さなギャップとして存在している。また、ミトコンドリアに局在するGFPを含む動物では、C 32 H 32 Cl 2を N 2 Oは、体壁筋のミトコンドリアに蓄積し、72時間後に成人期まで、青年期(t = 0の時間)から、トリプルパスフィルターの下にオレンジ色になります。残りのミトコンドリアはC 32 H 32 Cl 2を N 2 O重量対の少ない蓄積を示し、72時間で示されるように、UNC-112 RNAiを用いた処置は、膜電位の進行性の喪失を引き起こす。 10 SEの退色C 25分の540 nmの光漂白剤をのMitoTrackerから赤を使用し、筋肉のミトコンドリア(+写真漂白剤)に局在GFPを明らかにする。スケールバーは2.5倍であるには25μmやズームを表します。
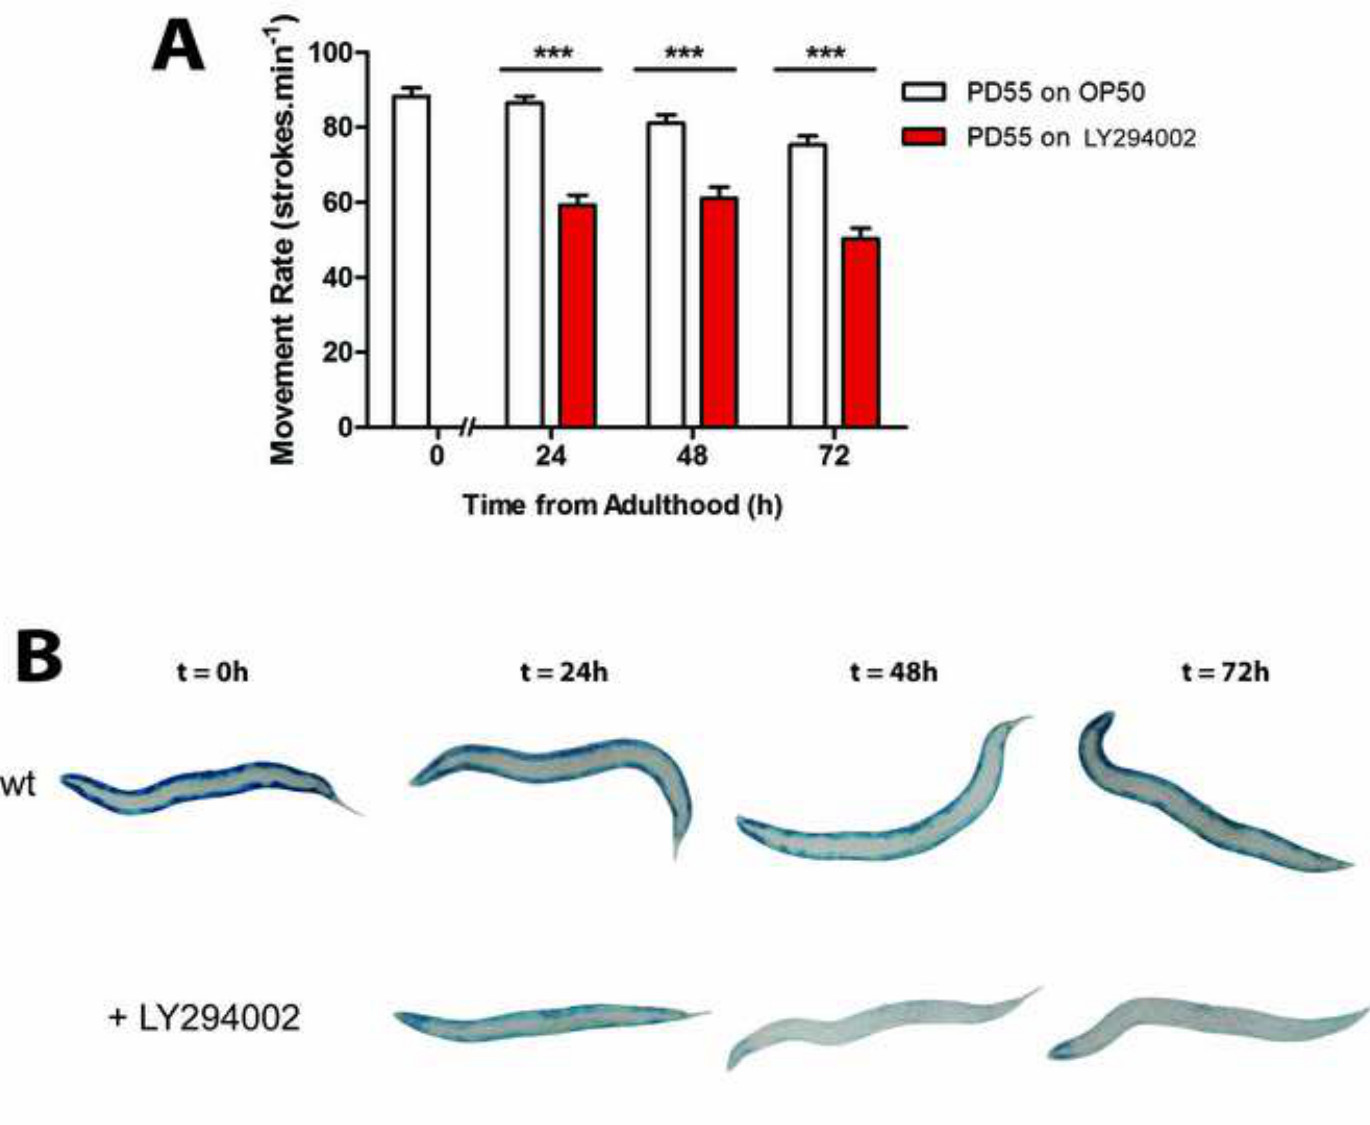
図5:LY-294002動物と(A)治療は、運動欠陥を誘発するβガラクトシダーゼアッセイを用いてタンパク質分解の(B)の評価。 L1幼虫wtの同期された年齢は、OP50(重量対照)またはNGMを播種NGMに移す前に20°C(t = 0の時)で青年期まで増殖させ、20℃で24時間LY-294002(PI3Kインヒビター処置)を播種する。 Aでは、約20〜30匹の動物をt = 0時間目および24時間、48時間および72時間後に、βガラクトシダーゼ活性(青色)について染色されている。
ディスカッション
これらの方法は、運動欠陥を生じさせるのに十分である細胞内の欠陥を特定する移動macrophysiologyから筋肉の探査を可能にする。組み合わせると、これらの方法は、筋肉の詳細な分析を可能にする。洞察力は、一般的な生理学、病態生理学、老化に関係する筋肉指向の仮説の更なるテストを行うことができました。
運動アッセイ
運動欠陥が正常な神経筋機能の破壊を示している。これは、神経または筋肉に特異的であってもよいし、いくつかの組織との間で共通であってもよい。完成運動アッセイの最も困難な段階は、人口および/または治療の代表的なものであるワームを選択し、また、実験者はM9への転送の際に動物を傷つけるていないことを保証されている。それは、運動の代表的かつ正確な評価を得るために大きなサンプルサイズを有することが重要である。高度にペンを検定するときetrant効果は、頻繁に見られる変異体で、例えば、移動のための10回評価した10匹のサンプルサイズは、野生型に対して統計的に有意な違いを見つけるのに十分である。しかし、移動アッセイおよびC.エレガンスの培養の容易さの単純ワーム数百迅速定量ロバストな結果を保証するために評価することができることを意味する。人口の一部のみに存在現れる効果を検定するとき、それは最も影響を受けた動物での欠陥の重症度だけでなく、影響を受けたように思われる人口の割合はどのように決定することが重要である。そのような状況では、動物のより多くの影響を受ける人口の割合のための最小限のデータを提供するために評価されるべきである。しばしば、薬物およびRNAi治療の両方が、人口の少ない割合で深刻な運動欠陥を生成する。場合によっては、治療の用量を増加させ、または送達の方法は、AFFの割合を増加させる精製カートリッジ動物および用量反応曲線を実行して、薬物またはRNAiの最適濃度を決定するのに有用であり得る。この移動アッセイの第二の制限は、ワームが運動を評価するために操作されることである。したがって、ワームの両方で刺激し、液体中に取り上げたとき、浸透圧ストレス、ある程度のに供される。水とは対照的に、浸透圧ストレスの度合いは、M9またはBUバッファ19を使用することによって制限することができる。これらの制限のいくつかは、ImageJの35のために、市販の追跡システム34またはフリーのプラグインを使用して、プレート上に習慣的な運動を測定することによって緩和される。動物の移動速度を測定することは、寿命全体にわたって測定することができる機能の変化及びこの方法の非侵襲性の筋機能の将来の生涯の研究のための鍵であるなど、全体的な筋肉の健康状態に関する重要な情報を提供することができる。
収縮装置のイメージング
画像収縮装置の構造に、ここで使用されるワームの株は体壁の筋肉内サルコメアに局在しているミオシンGFP融合タンパク質を発現するPJ727 36だった。この株の使用は、生きた動物でサルコメア構造の可視化を可能にします。上述の移動アッセイと同様に、サルコメア構造を評価するために、GFP標識した筋節を使用することの主な利点は、この方法は、比較的非侵襲性であり、したがって、前向きに生涯を通じて個々の動物における筋節構造に従うために使用することができることである。この方法の最大の困難は、それが困難な、よく焦点画像を取得することができ、これ撮像されているワームはまだ生きているので、移動しているということです。いくつかの方法が動きを低減し、より簡単な画像化するために使用することができる。これらは、圧力、吸引、または高粘度溶液を使用することにより、ワームや固定麻酔または麻痺が含まれる。 immobilizのこれらの方法の各々ationが、それ自体が神経筋機能を変えることができるという欠点を有する。したがって、分析に適切な未処理の対照を含むことが必須である。また、結果は広く選択された固定化方法は、調査中の問題のためである使用方法に依存して、固定化方法の問題によるものではない確認するために、固定化のうちの少なくとも2つの独立した方法を利用することが賢明であろう。ここでは、減少した運動を誘導するためにワームにカバースリップから簡単な圧力を使用している。カバーガラスを配置した後、カバースリップの下に液体が蒸発すると、カバースリップは、結果的に一般的に、これは容易なイメージングを可能にするために十分な縮小の動きを生成するために2-5分かかり、ワームの際に多くの圧力を生成し始めます。なお、共後10〜15分、典型的には、圧力が最終的にワームが過度の圧力から破裂させるのに十分に増加させるようにカバースリップを導入した後に密接にワームを監視することが不可欠であるさらにverslip。追加バッファは、ワームに挫滅損傷を避けるために、カバースリップのエッジの周りピペットチップを用いて導入することができる。所望であれば、これは、カバースリップの下からの動物の取得を防止するが、マニキュアは、カバースリップの端をシールして蒸発を防ぐために使用することができる。同様に、溶液中のシリコーンビーズの使用は、ワームにカバースリップの場所圧力の量を減らすことができます。
ちょうど運動欠陥を評価と同様に、効果の浸透度を考慮することが重要である。人口ディスプレイの≤20%が影響を与える場合に80〜100%の動物が、百分の21から79までであれば、低部分、NGMプレート上の表現型を示す場合には浸透度が高いと考えることができる。浸透率の高い効果のために、小さなサンプルサイズは、サルコメア欠陥に重大な定量的データを生成するために使用され得る。効果が低い浸透度を有する場合、薬剤に反応して明確な運動欠陥を表示する動物の選択においてまたはRNAi治療は、ほとんどの治療の影響を受けた動物において筋節の欠陥をアッセイするのに有用であり得る。しかし、移動および細胞内構造に対する治療効果の程度が同じであることは必ずしも当てはまらない。従って、例えば、100動物大集団に存在する欠陥の程度を調べることが望ましい場合がある。これは、人口全体に欠陥の分布の理解を可能にします。また、最も深刻な影響を受けた動物では欠陥の程度を調べるため、および/またはサルコメア欠陥の程度および運動欠陥の程度との相関を調べることが望ましい場合がある。脇には困難、この方法は、サルコメア構造を評価する他の方法よりも迅速かつ容易である。この速度と使いやすさは、しかし、重要な制限が適用され、破壊されたサルコメアのGFP融合タンパク質を含有する筋節は完全に正常ではないので、37の評価は、追加の、より労働集約的な方法を用いて確認されるべきである。これらのメソッドは、39を染色ファロイジン偏光38の使用、および間接免疫蛍光40が含まれています。これらの方法のうち、偏光のみでは比較的非侵襲的である。他の方法は、固定を必要とし、したがって、個々の動物の前向き研究で使用することはできず、むしろ、それらは、そのような研究の結果を確認する断面と交差するために使用することができる。
ミトコンドリアネットワークスのイメージング
ミトコンドリアのイメージング実験のために使用ウォーム株は、体壁の筋肉の両方において、ミトコンドリアおよび核に局在化GFPβガラクトシダーゼ融合タンパク質に局在GFP融合タンパク質を発現するCB5600 7であった。イメージングサルコメアためPJ727の使用と同様に、この株の使用は、生きている動物におけるミトコンドリアのネットワーク構造の視覚化を可能にする。したがって、この菌株は、例えば減少mitochoために、発生する動的な変化を評価するために使用することができndrial融合および/ または増加したミトコンドリアの分裂41。また、撮像サルコメアに関しては、この方法の最大の難点は、それが困難なだけでなく、合焦画像を取得すること、画像化されるワームがまだ生きて動いているということである。いくつかの方法は、上記でより詳細に論じるように、運動を減少させるために用いることができるが、ミトコンドリアは、縮小の動きを誘導介入に特に敏感で現れる。例えば、最も一般的には、ミトコンドリア呼吸鎖の麻酔薬の標的成分を使用し、したがって、正常なミトコンドリアの構造および機能の研究において、慎重に使用しなければならないれている。ほとんど麻痺エージェントが神経筋接合部や筋肉の機能的除神経を通過するより少ない信号がミトコンドリアの断片化を誘導するのに十分である原因と同様に、ほとんど麻痺剤には、正常なミトコンドリアの構造と機能の研究に注意して使用する必要があります。本研究における実験は、動物を固定する圧力を採用それはすぐに画像の動物に不可欠ですが、Sが、他は正常に、レバミゾール42を使用している。
最後に、培養物中の種々の細菌の汚染物質は、例えば、 枯草菌(B. subtilis)のため、ミトコンドリアの断片化を誘導することができる。従って、分析に適切な未処理の対照を含むことが必須である。浸透率の高い効果のために、小さなサンプルサイズは、ミトコンドリアのネットワークの欠陥に大きな定量的データを生成するために使用され得る。しかし、ミトコンドリアのネットワークの軽微な欠陥の有病率に起因して、動物のこの少数のサルコメア構造の評価のために必要とされる数が2倍になる可能性が高い。効果は低い浸透度を有する場合には、明らかに、薬剤またはRNAi治療に応答して運動欠損を示した動物の選択は、ほとんどの治療の影響を受けた動物におけるミトコンドリアの欠陥をアッセイするのに有用であり得る。しかしながら、上述したように、必ずしもそうではない運動および細胞内構造に対する治療効果の程度は同じである。したがって、例えば、150~200動物、ならびに最も深刻な影響を受けた動物での混乱の程度および程度と破壊の程度の有無を大集団に存在する欠陥の程度を調べることが望ましい場合がある運動欠陥。蛍光標識されたミトコンドリアを有する他の株はCB5600で得られた結果を確認するために使用することができるが、異なる蛍光タンパク質の使用は、ミトコンドリアのベースラインネットワークに影響を与えることができる。例えば、ミトコンドリアを可視化するTOMM-20 RFP融合タンパク質の使用は、ミトコンドリアに局在し、GFP 17の使用に対する増加ベースラインミトコンドリアの断片化を引き起こす原因であると思われる。そのような免疫蛍光および電子顕微鏡などの他の方法は、ミトコンドリアの構造を評価するために使用することができるが、固定工程が必要とされているので、それらは、ミトコンドリア動力学のin vivo評価を許可しないD。このようなミトコンドリア局在する色素の使用などの他の方法は、固定せずに使用することができ、従って、ミトコンドリア局在するGFPの使用の代わりに使用することができる。次のセクションで説明したように、このような色素の使用はまた、インビボでミトコンドリア機能の粗評価を可能にする。
線虫の生体内でミトコンドリア膜電位を評価する
染料の様々なミトコンドリア28を標識するための利用可能です。これらの色素は、生きた線虫ミトコンドリアネットワーク構造を視覚化する別の方法を提供する。これらは、ミトコンドリア膜電位に基づいて、ミトコンドリアに蓄積するので、これらの色素の多くは、in vivoでのミトコンドリア機能の粗評価を可能にする。ここでは、通って摂取されるC 32 H 32 Cl 2の N 2 Oを使用していたいくつかの追加的理由0.5%DMSOに溶解して得た透過性のクチクラを介してワームに入ると消化管。セルC 32に次のエントリH 32 Cl 2の N 2 Oは、それがアミノ酸( 例えば 、メチオニンおよびシステイン)を含む硫黄と結合するミトコンドリアによって酸化され、隔離される。これらの色素-ペプチド複合体の形成は、C 32 H 32 Cl 2の N 2 Oは、一度28をラベルミトコンドリア内に残っていることを意味します。ミトコンドリア染料の使用でキー難点は、それらが動物のすべてのミトコンドリアを標識することである。そこで我々はCB5600、筋肉ミトコンドリアネットワーク構造を評価するために、上記と同じ株で、標識を行った。赤ミトコンドリア染料、筋肉ミトコンドリアでGFPを発現しているワームの株、トリプルパスフィルターを用いることにより、Oであり、ミトコンドリアを見つけることによって、筋肉内の画像のみミトコンドリアに比較的簡単である赤色染料とGFPラベルミトコンドリアの共局在によって範囲。色素は光退色高輝度蛍光灯の下で数秒以内であるため、この共局在のアプローチを実行する際に最も困難なステップがイメージングである。この効果は、実験者は、画像の準備ができるまで低電力での蛍光を保持し、それに応じて蛍光強度を調整することによって制限することができる。一つは色素の使用経験されると、別のアプローチは、右組織の画像のみミトコンドリアへのZ-スタックとの共焦点顕微鏡法を利用することである。筋肉中のミトコンドリアのネットワークは、他の組織に比べてかなり異なっている。残念ながら、ミトコンドリア28を残すC 32 H 32 Cl 2を N 2 Oのできないことはない限り、C 32 H 32上述サルコメアとミトコンドリアのイメージング技術とは異なり、それは、将来に向かって時間とともにミトコンドリア機能の喪失を追跡するために使用することができないことを意味Cl 2をN 2 O動物集団を分離するために、離散時間点で加えられる。この制限は、膜電位43の崩壊の際にミトコンドリアを残すないようJC-10などの染料を使用することによって克服することができる。ミトコンドリアはまた、C.から単離することができるその後の生化学的解析のためのエレガンス 30。このような抽出は、フローサイトメトリーまたは蛍光プレートリーダー44を使用して、親油性カチオン性色素の取り込みの割合を定量することにより、ミトコンドリア膜電位の定量化を可能にする。損なわれたミトコンドリア膜電位を確立し、それがプロトン勾配の損失が敏感な生物発光ルシフェラーゼベースの方法45を用いて、ATP産生の喪失につながるかどうかを判断することも可能である。
Cでタンパク質分解を評価するエレガンス
筋肉タンパク質分解を評価するためにここで使用されるウォーム株は、筋特異的βが含まPD55であった成人期に達すると、次の72〜96時間19用サイトゾル中に安定したままであるまで、そのガラクトシダーゼ連続発生を通して合成される。成人期のβガラクトシダーゼの損失は介入が増加し、細胞質ゾルのタンパク質分解19をトリガしたことを示し、一方、このように、開発中のβガラクトシダーゼレベルの測定は、主にミオシンプロモーターからの合成に及ぼす介入の影響を示している。 βガラクトシダーゼ活性を評価する上で重要なステップは、効果的な乾燥を確実にすることである。効果的に動物の体壁筋におけるX-gal基質ので、貧しい青色の貧弱な提供に動物の結果を乾燥させるに失敗しました。デシケーター上のシールがチェックする必要があり、サンプルが進捗状況を評価するために乾燥を通して5〜10分間隔でチェックする必要があり、良好な乾燥を確実にするために( すなわち 、20μlのサンプルを10分、残りの20分以内に乾燥している必要があります)総合的な乾燥を確保することである。 βガラクトシダーゼアッセイは、活性アッセイは、したがって、適切な制御が不可欠である。また、劣化が生じていることを証明しない対照と処理条件の相対的な成人の染色を減少した。むしろそれは、治療に応答して減少した酵素活性を示す。分解を確認するために、より労働集約的ウェスタンブロット分析は、βガラクトシダーゼ13に完了する必要があり、これはカウントワームの小集団において定量タンパク質分解を可能にする。ウエスタンブロットのバンド密度をImageJの46を使用して定量することができる。この方法の別の制限は、トランスジェニックタンパク質の使用は、劣化の生理的ターゲットへとしておよびプロテオミクスおよび/ または標的仮説駆動型ウェスタンブロットは、13を使用しなければならないような答えを通知しないということです。最後に、これらの研究で用いたトランスジェニックタンパク質の合成のような成人早期19で遮断するC. elegansの筋肉の筋肉タンパク質合成の変化を調べることを希望する場合はP>は、他の方法を利用しなければならない。例えば、安定したまたは放射性同位方法。
開示事項
著者らは開示するものは何もない。
謝辞
この作業は、米国国立衛生研究所(National Institutes of Health)の関節炎・筋骨格・皮膚疾患研究所(AR-054342)からNJSへの助成金によって支援されました。CJGは、ノッティンガム大学が資金提供した博士課程の学生によって資金提供されました。JJBは、MRC博士課程研修賞(J500495)から資金提供を受けました。資金提供者は、研究デザイン、データ収集と分析、出版の決定、または原稿の準備に関与していませんでした。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| MitoTracker Red CMXRos (C32H32Cl2N2O) | Invitrogen | M-7512 | 負の膜電位に基づいて蓄積する赤色ミトコンドリア色素 |
| DMSO | Thermo Scientific | 67-63-5 | |
| KH2PO4 | Sigma | 7778-77-0 | |
| Na2HPO4 | BDH | 301584L | |
| NaCl | Sigma-Aldrich | 7647-14-5 | |
| MgSO4 | Sigma | M-7506 | |
| 顕微鏡スライド | Starfrost | K220 | |
| 顕微鏡カバー Slips | VW2 International | 631-0124 | |
| 1.5 mlエッペンドルフチューブ | フィッシャーサイエンティフィック | FB74031 | |
| デシケーター | ナルゲン | D2672 | |
| ニコン顕微鏡 | ニコン | H600L | ニコンH600L顕微鏡(独自ソフトウェア |
| 付き) ニコンカメラ | ニコン | DS-Fi1 | ニコンデジタルサイト DS-Fi1 デジタルカメラ |
| ツァイス顕微鏡 | ツァイス | Ax10 | ツァイスAX10顕微鏡、Axiocam MRCデジタルカメラ、Axiovision LEソフトウェア、トリプルパスフィルター搭載 |
| プレート 9cm | スターシュテット | 82-1473 | |
| プレート 6cm | ゴセリン | BP53-01 | |
| フェロシアン化カリウム | Sigma-Aldrich | 14459-95-1 | |
| MgCl<サブ>2 | シグマ・アルドリッチ | 7786-30-3 | |
| Na<サブ>3PO<サブ>4 | シグマ・アルドリッチ | 7601-54-9 | |
| 5-ブロモ-4-クロロ-3-インドリル &β;-D-ガラクトピラノシド | グマ・アルドリッチ | 7240-90-6 | |
| N,N-ジメチルホルムアミド | Sigma-Aldrich | 68-12-2 |
参考文献
- Wannamethee, S. G., Shaper, A. G., Lennon, L., Whincup, P. H. Decreased muscle mass and increased central adiposity are independently related to mortality in older men. The American Journal of Clinical Nutrition. 86, 1339-1346 (2007).
- Marquis, K., et al. Midthigh Muscle Cross-Sectional Area Is a Better Predictor of Mortality than Body Mass Index in Patients with Chronic Obstructive Pulmonary Disease. American Journal of Respiratory and Critical Care Medicine. 166, 809-813 (2002).
- Metter, E. J., Talbot, L. auraA., Schrager, M., Conwit, R. Skeletal Muscle Strength as a Predictor of All-Cause Mortality in Healthy Men. Journal of Gerontology: Biological Sciences. 57, 359-365 (2002).
- Hairi, N. N., et al. Loss of Muscle Strength, Mass (Sarcopenia), and Quality (Specific Force) and Its Relationship with Functional Limitation and Physical Disability: The Concord Health and Ageing in Men Project. JAGS. 58, 2055-2062 (2010).
- FitzGerald, S. J., et al. Muscular Fitness and All-Cause Mortality: Prospective Observations. Journal of Physical Activity and Health. 1, 7-18 (2004).
- Consortium, C. eS. Genome sequence of the nematode C. elegans: a platform for investigating biology. Science. 282, 2012-2018 (1998).
- Timmons, L., Fire, A. Specific interference by ingested dsRNA. Nature. 395, 854-854 (1998).
- Sulston, J. E., Horvitz, H. R. Post-embryonic cell lineages of the nematode. Caenorhabditis elegans Dev Biol. 56, 110-156 (1977).
- White, J. The Anatomy. In The nematode C. elegans. Wood, W. B. , Cold Spring Harbor Laboratory. New York. (1988).
- Brenner, S. The genetics of Caenorhabditis elegans. Genetics. 77, 71-94 (1974).
- Moerman, D. G., Williams, B. D. Sarcomere assembly in C. elegans muscle. The C. elegans Research Community, WormBook. , (2006).
- Rual, J. F., et al. Toward improving Caenorhabditis elegans phenome mapping with an ORFeome-based RNAi library. Genome Res. 14, 2162-2168 (2004).
- Etheridge, T., et al. Calpains Mediate Integrin Attachment Complex Maintenance of Adult Muscle in Caenorhabditis elegans. PLoS Genet. 8, 1002471(2012).
- Shephard, F., Adenle, A. A., Jacobson, L. A., Szewczyk, N. J. Identification and Functional Clustering of Genes Regulating Muscle Protein Degradation from amongst the Known C. elegans Muscle Mutants. PLoS ONE. 6, e24686(2011).
- Lehmann, S., Bass, J. J., Szewczyk, N. J. Knockdown of the C. elegans Kinome identifies Kinases required for normal protein Homeostasis, Mitochondrial network structure, and Sarcomere structure in muscle. Cell Communication & Signaling. 11, (2013).
- Herndon, L. A., et al. Stochastic and genetic factors influence tissue-specific decline in ageing. C. elegans. Nature. 419, 808-814 (2002).
- Munoz-Lobato, F., et al. Protective role of DNJ-27/ERdj5 in Caenorhabditis elegans models of human neurodegenerative diseases. Antioxid Redox Signal. 5, 5(2013).
- Chalfie, M., Tu, Y., Euskirchen, G., Ward, W., Prasher, D. Green fluorescent protein as a marker for gene expression. Science. 263, 802-805 (1994).
- Zdinak, L. A., et al. Transgene-coded chimeric proteins as reporters of intracellular proteolysis: starvation-induced catabolism of a lacZ fusion protein in muscle cells of Caenorhabditis elegans. J Cell Biochem. 67, 143-153 (1997).
- Berkowitz, L. A., Knight, A. L., Caldwell, G. A., Caldwell, K. A. Generation of Stable Transgenic C. elegans Using Microinjection. J Vis Exp. 18, e833(2008).
- Szewczyk, N. J., Peterson, B. K., Barmada, S. J., Parkinson, L. P., Jacobson, L. A. Opposed growth factor signals control protein degradation in muscles of Caenorhabditis elegans. The EMBO Journal. 26, 935-943 (2007).
- Stiernagle, T. The C. elegans Research Community, WormBook. , 1551-8507 (2006).
- Gaud, A., et al. Prednisone reduces muscle degeneration in dystrophin-deficient Caenorhabditis elegans. Neuromuscular Disorders. 14, 365-370 (2004).
- Dillin, A., et al. Rates of Behavior and Aging Specified by Mitochondrial Function During Development. Science. 298, 2398-2401 (2002).
- Bakeeva, L., Chentsov, Y., Skulachev, V. Mitochondrial framework (reticulum mitochondriale) in rat diaphragm muscle. Biochimica et Biophysica Acta. 501, 349-369 (1978).
- Ichishita, R., et al. An RNAi screen for mitochondrial proteins required to maintain the morphology of the organelle in Caenorhabditis elegans. J Biochem. 143, 449-454 (2008).
- Mitchell, P. Coupling of phosphorylation to electron and hydrogen transfer by a chemi-osmotic type of mechanism. Nature. 191, 144-148 (1961).
- Chazotte, B. Labeling mitochondria with MitoTracker dyes. Cold Spring Harb Protoc. 1, 990-992 (2011).
- Seo, A. Y., et al. New insights into the role of mitochondria in aging: mitochondrial dynamics and more. J Cell Sci. 123, 2533-2542 (2010).
- Brys, K., Castelein, N., Matthijssens, F., Vanfleteren, J. R., Braeckman, B. P. Disruption of insulin signalling preserves bioenergetic competence of mitochondria in ageing Caenorhabditis elegans. BMC Biol. 8, 1741-7007 (2010).
- Dorrens, J., Rennie, M. J. Effects of ageing and human whole body and muscle protein turnover. Scandinavian Journal of Medicine & Science in Sports. 13, 26-33 (2003).
- Rennie, M. J., et al. Depressed protein synthesis is the dominant characteristic of muscle wasting and cachexia. Clinical Physiology. 3, 387-398 (1983).
- Mitch, W. E., Goldberg, A. L. Mechanisms of muscle wasting. The role of the ubiquitin-proteasome pathway. N Engl J Med. 335, 1897-1905 (1996).
- Husson, S. J., Costa, W. S., Schmitt, C. The C. elegans Research Community, WormBook. , 1551-8507 (2012).
- Kawano, T., et al. An imbalancing act: gap junctions reduce the backward motor circuit activity to bias C. elegans for forward locomotion. Neuron. 72, 572-586 (2011).
- Fostel, J. L., Benner Coste, L., Jacobson, L. A. Degradation of transgene-coded and endogenous proteins in the muscles of Caenorhabditis elegans. Biochemical and Biophysical Research Communications. 312, 173-177 (2003).
- Meissner, B., et al. An integrated strategy to study muscle development and myofilament structure in Caenorhabditis elegans. PLoS Genet. 5, (2009).
- Rogalski, T. M., Gilbert, M. M., Devenport, D., Norman, K. R., Moerman, D. G. DIM-1, a novel immunoglobulin superfamily protein in Caenorhabditis elegans, is necessary for maintaining bodywall muscle integrity. Genetics. 163, 905-915 (2003).
- Gieseler, K., Grisoni, K., Segalat, L. Genetic suppression of phenotypes arising from mutations in dystrophin-related genes in Caenorhabditis elegans. Curr Biol. 10, 1092-1097 (2000).
- Wilson, K. J., Qadota, H., Benian, G. M. Immunofluorescent localization of proteins in Caenorhabditis elegans muscle. Methods Mol Biol. 798, 171-181 (2012).
- Chan, D. C. Mitochondrial Fusion and Fission in Mammals. Annual Review of Cell and Developmental Biology. 22, 79-99 (2006).
- Ray, A., Martinez, B. A., Berkowitz, L. A., Caldwell, G. A., Caldwell, K. A. Mitochondrial dysfunction, oxidative stress, and neurodegeneration elicited by a bacterial metabolite in a C. elegans Parkinson's model. Cell Death Dis. 9, 513(2014).
- Perry, S. W., Norman, J. P., Barbieri, J., Brown, E. B., Gelbard, H. A. Mitochondrial membrane potential probes and the proton gradient: a practical usage guide. Biotechniques. 50, 98-115 (2011).
- Scaduto, R. C., Grotyohann, L. W. Measurement of mitochondrial membrane potential using fluorescent rhodamine derivatives. Biophys J. 76, 469-477 (1999).
- Wibom, R., Hagenfeldt, L., von Döbeln, U. Measurement of ATP production and respiratory chain enzyme activities in mitochondria isolated from small muscle biopsy samples. Analytical Biochemistry. 311, 139-151 (2002).
- Gassmann, M., Grenacher, B., Rohde, B., Vogel, J. Quantifying Western blots: Pitfalls of densitometry. Electrophoresis. 30, 1845-1855 (2009).
再版と許可
