マウスのクラススイッチ組換えのin vitro分析は、B細胞の表面のFc受容体に結合した細胞球性IgE分子のために困難です。 細胞質蛍光染色のための固定および透過化の前に、表面結合IgEのトリプシン媒介切断を使用したIgE検出の方法について説明します。
このコンテンツを表示するには、JoVEへの購読が必要です。 または、無料トライアルをお申し込みください。
この記事について
サマリー
要約
Bリンパ球の免疫グロブリン重鎖(IgH遺伝子)クラススイッチ組換え(CSR)は、最初のIgMなどのIgA、IgE及びIgGのような他ののIgHアイソタイプ、に切り替わり表現方法である。 in vitroでのIgH CSRの測定は、分子および細胞免疫学の観点にDNA組換えおよび修復の範囲の生物学的プロセスの数を研究するための重要な方法である。 インビトロ CSRアッセイは、活性化B細胞のフローサイトメトリー測定表面Igの発現を含む。 IgAおよびIgGサブクラスの測定は簡単であるが、この方法によるIgEの測定はFcεRIIはへの結合により、可溶性IgEへの問題がある/ CD23は、活性化B細胞の表面に発現。ここでは、培養液中でCSRを受けたIgE産生マウスB細胞の正確な測定のためのユニークな手順を説明します。方法は、cyのによるIgE産生B系統細胞の検出を可能にする、細胞表面上のIgE-CD23複合体のトリプシン媒介開裂に基づくtoplasmic染色。この手順は、IgEに対するCSRのフローサイトメトリー分析のための便利なソリューションを提供しています。
概要
マウスおよびヒトの免疫グロブリン重鎖(IgH遺伝子)クラススイッチ組換え(CSR)の間に、IgH遺伝子は 、定常領域エクソン(Cμ)が削除され、下流の定常領域エクソンのいくつかのセットの一つ(CのH秒 )( 例えば、Cγで置換されているμ他のIgクラス( 例えば IgGを、IgEの、またはIgA)の産生に対するIgMの生産からスイッチになりCε、およびCα)、。 CSRは、C H 1のそれぞれの組の5 '側に位置する1〜10キロバイト配列であるスイッチ(S)領域内で起こる。活性化誘導シチジンデアミナーゼ(AID)酵素は、シチジン脱アミノ化の活動を通じてCSRを開始します。
IgEはアレルギー疾患2の重要なメディエーターおよびIgEが産生され、アトピー性疾患への新しい治療的アプローチへの扉を開くことが規制されている方法の理解である。マウスとヒトでは、IgEが最も厳密に調節Igアイソタイプである。 IgEのは、通常、ティムのレベル数千で検出されるエス他のIgH未満は3アイソタイプが、高度に疾患状態4に上昇させることができる。しかし、IgEに対するCSRが完全には理解される。B細胞のインビトロ活性化を抗CD40またはLPSのいずれかと組み合わせてIL-4を使用して、IgG1およびIgEの5の両方にCSRを誘導する。活性化されたB細胞は、可溶性IgEがCSR後の培養中に分泌結合し、低親和性IgE受容体FcεRIIは/ CD23 2,6を 、表現する。フローサイトメトリーで分析する場合、したがって、受容体結合IgEとB細胞は、内因的なIgE 7を発現するB細胞にも同様に染色する。それは、マウスB細胞は、低親和性のIgG受容体FcγRIIB1(CD32)8を発現することが知られているが、我々の経験では、IgG1へのクラススイッチの測定を妨害しないようである。培養物中のB細胞活性化後のIgE切り替えを測定する場合しかし、非特異的表面結合IgE分析を不明瞭にすることができる。一般的な染色方法では、非IgEの発現細胞は、IgEのために積極的に染色する。
11 -ここで概説はCSRアッセイを実施し、マウス9から真のIgEを発現するB細胞を検出するために利用されている戦略である。トリプシンで活性化されたB細胞の治療は、一般的なラボの試薬は、タンパク質を消化するために、cytophylicおよび膜の両方に結合した表面IgEは削除されます。細胞質のIgEに対するその後の透過処理と染色は、このように真のIgE産生細胞を明らかにする。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
プロトコル
注:ここで説明するすべての実験は、施設内動物管理使用委員会(IACUC)のガイドラインに従ったと動物研究小児病院(ARCH)、ボストン、マサチューセッツによって承認。
試薬の調製
- 1,000倍IL-4ストック:H 2 O、0.1%ウシ血清アルブミン(BSA)中に20μg/ mlにまで希釈IL-4サイトカイン。 -20℃で1.5 mlマイクロチューブやストアに200μlのアリコートで分注する。
- 1,000倍の抗CD40:4℃で1.0 mg / mlの、店でメーカーから入手します。
- B細胞刺激培地:ストレプトマイシンストック、5:RPMI-1640培地425mlの、新たに解凍したウシ胎児血清(FCS)を75mlを追加し、10ミリリットルの1.0 M HEPES緩衝液5mlのL-グルタミンストック5mlのペニシリンへ2-メルカプトエタノールの溶液最小必須培地非必須アミノ酸(MEM-NEAA)、及び3.5μlの。週間まで4℃でメディアを保管してください。 IL-4(20ng / ml)および抗CD40(1.0μg/ ml)を使用直前に加える唯一必要なメディアの容量に。
- 2%FCS-FACSバッファ:1X PBSの490ミリリットルにFCSの10ミリリットルを追加します。 4℃で保管してください。
- 2×トリプシン-EDTA溶液:1×PBS 20mlに5ミリリットル10xのトリプシンEDTAストック溶液(5.0グラムトリプシン、リットル当たり2.0グラムのEDTA)で希釈する。 4℃で一定分量の作業2倍に保管してトリプシン-EDTA。使用前に室温に温める。
- ウシ胎児血清:2週間まで4で解凍FCSしてください。細胞質の染色手順の前に氷の15分に置きます。
- 中性緩衝ホルマリン:10%ホルマリン溶液(3.7%パラホルムアルデヒド)を準備します。ホルマリンは毒性があり、適切なPPEを装着したまま、したがって実験室ヒュームフードの下でそれを処理する。化学収納キャビネット内に室温で保存ホルマリン。
- メタノール:細胞は透過化される準備が整うまで-20℃で無水メタノール(100%)を保管してください。メタノールは可燃性で、適切な冷凍庫で保存する必要があることに注意してください。
2。精製およびB細胞の活性化
- 収穫したてのマウスの脾臓から、静かに3ミリリットルの注射器のプランジャーで70μmのセルストレーナーを通して臓器を押すことにより、単一細胞懸濁液を準備します。 15ミリリットルコニカル遠心管では、4℃で5分間300×gで1×PBSと遠心機の10ミリリットルで細胞を集める。
- 5分間の赤血球細胞溶解緩衝液1mlに上清と再懸濁ペレットをデカント。 5分間300×gで13.5 1X PBS mlの遠心で中和。
- (オプション)磁気(B220)抗CD45Rを用いB細胞を分離、製造業者の説明書に従ってMACS精製プロトコルに続いて、ビーズを標識。
- 37℃で5日間、IL-4(20ng / ml)および抗CD40(1.0μgの個/ ml)を含有する加温し、B細胞刺激培地中1.0×10 6細胞/ mlの精製されたB細胞を刺激する。 6ウェル培養プレートの2ウェル(各4ml)に分割し、培養を8mlで始まる。
- cultuチェック1.0×10 6細胞/ mlで維持するために毎日再。他のウェルに分割し、新鮮なIL-4および抗CD40を含有するB細胞刺激培地で培養を希釈して濃度を調整します。
3.トリプシン処理、固定、および透過
- トリプシン処理
- 、15ミリリットルコニカルチューブで培養した細胞の1.0×10 7まで収集5分間300×gで遠心分離し、上清をデカント。
- 細胞回収メディアから残留タンパク質を除去するために10mlのPBSで洗ってください。遠心分離工程を繰り返し、上清をデカント。
- (約100μl)をデカントした後の残存量の細胞ペレットを再懸濁します。
- 慎重に細胞に室温800μlの0.1%(2倍)、トリプシンEDTAを追加します。円錐管の側を下に45°の角度でゆっくりと分注する。
- チューブを閉じ、液体がチューブ5-6時間の長さに沿って走るようにチューブを傾けることによって穏やかに混合S。糸、白色沈殿物が溶液中に形成することができる。分の下にトリプシン処理時間を制限する。
- 冷たいFCSの1ミリリットルとのトリプシン処理反応を停止。冷PBSを10mlを加えることによって直ちにFCSを希釈する。
- 4℃で5分間300×gで遠心分離し、その後上清を除去し、氷にチューブを返す。
- 固定
- デカンテーション後の残留量の細胞を再懸濁。必要であれば、冷PBSで100μlにボリュームを起動します。
- ドラフト内で、細胞を10%中性緩衝ホルマリン溶液800μlを添加し、上下にピペッティング。チューブは、ホルマリンを添加すると暖めます。 10分間37℃でインキュベートする。
- 透過化
- 緩やかに振盪速度でベンチトップボルテックスミキサーを設定します。
- 10ミリリットルの血清学的ピペットに冷たい(-20℃)メタノールの9ミリリットルを描画します。
- ボルテックスミキサーを介して細胞を含有するチューブを握り、ゆっくりとシャキーンを開始gの細胞。
- メタノールを連続的に混合されるように、管がまだ揺れている間に、それが細胞上に滴下して落下ようにチューブに冷メタノールを追加します。メタノールの最初の2ミリリットルの後に分注速度が遅いストリームに増加させることができる。
- チューブは透過処理を完了するために、30分間氷上で座ってみましょう。あるいは、細胞は、月まで-20℃で保存することができる。
IgG1およびIgEのクラススイッチ4.蛍光染色
- 5分間300×gで遠心サンプルおよびメタノール溶液をデカント。白色沈殿物を細胞ペレットを得る。
- 細胞を洗浄するために5分間300×gで10 PBS 1X室温mlの遠心分離器を追加します。一回繰り返します。注:室温PBSでペレットの洗浄は、ステップ4.1の後に形成することができる余分な沈殿物を溶解する。
- 2%FCS-FACS緩衝液10mlの追加の洗浄を行います。
- 96ウェル丸底プレートにサンプルを分配する5分間300×gで遠心する。上清を除去し、氷上にプレートを置く。
- 以下の抗体希釈でウェルあたり2%FCS-FACS緩衝液60μlの中でステイン:抗IgM RPE / Cy7は、1:200、アンチIgG1のPE、1:600、抗IgE FITC、1:100、抗CD45R(B220)PerCPを-のCy5.5、1:200
- 染色の5分後、300×gで5分間、2%FCS-FACSバッファーと遠心150μlでプレートを洗浄する。
- 5ミリリットルのFACSチューブに40μmのナイロン細胞ストレーナーを通して2%FCS-FACS緩衝液とピペット400μlの中で再懸濁します。
5.次のゲーティング戦略を使用してください:
- FSC / SSCプロット( 図1)上にあるブラストリンパ球集団からCD45R(B220)陽性細胞を分離します。
- B220陽性細胞からは、対応する集団を明らかにしたIgEおよびIgG1プロットを使用しています。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
結果
この手順が正常マウスB細胞におけるIgEへのCSRを研究するために実施されている。先に説明したように11 CSRの測定効率を実証するために、我々は、抗CD40及びIL-4、マウス脾臓B細胞を刺激した。刺激の5日後、細胞を回収し、プロトコル蛍光標識されたIgM、IgG1を、IgEの、およびB220(CD45R)抗体を用いて上記の染色を用いて処理した。ブラストリンパ球( 図1)にゲート、明確なIgEの人口+細胞がきれいにトリプシン処理( 図2a)なしで識別することができません。しかし、固定および透過前の細胞のトリプシン処理は、表面結合IgEの除去にIgE産生細胞( 図2b)の分離を可能にします。
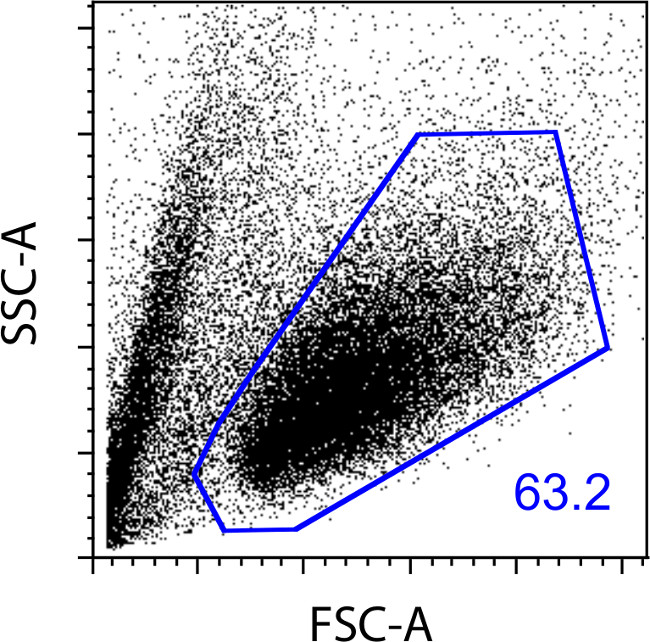
図1:FORW...
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
ディスカッション
抗CD40およびIL-4とともに培養中のマウス脾臓B細胞の刺激は、IgG1およびIgE 5へのクラススイッチを促進し、Tヘルパー2型(T H 2)の相互作用をシミュレートする。 B細胞は、総脾臓細胞12または精製された脾臓B細胞11の文脈においてCSRのために活性化することができる。プロトコル(段階2.3)で述べたように、B細胞の濃縮は、任意であり、それは有益だろうかどうかを決定するために、実験者の判断である。 CD45R(B220)を使用して、B細胞の正の磁気分離は、ビーズが、ここで利用される標識。分離した後、それはB細胞濃度が適切なサイトカインおよび抗体刺激のための1.0×10 6細胞/ mlに調整することができるようにFACSにより細胞の純度を確認することが推奨される。また、それは、凍結/解凍サイクルを経たIL-4タンパク質は活性が低下したかもしれないことに留意すべきである。
事前の固定および透過に対する細胞のトリプシン処理をaccurが可能にフローサイトメトリー...
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
開示事項
著者は開示していません。
謝辞
DRWは、NIHの助成金AI089972とAI113217によってサポート、および粘膜免疫研究チームによると、バローズウェルカム基金からの医学者のためのキャリア賞を保持している。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 抗マウスIgE FITC | BD Pharmingen | 553415 | クローン R35-72 |
| ラット 抗マウスIgG1 PE | BD Pharmingen | 550083 | クローン A85-1 |
| メタノール | BDH | BDH1135-4LP | -20 °C;C |
| Falcon Cell Strainer 40 & マイクロ;m ナイロン | コーニング | 352340 | |
| ファルコン セル ストレーナー 70 & マイクロ;m ナイロン | コーニング | 352350 | |
| アンチ Hu/Mo CD45R(B220) PerCP-Cy5.5 | eBioscience | 45-4052-82 | クローン RA3-6B2 |
| アンチマウス/ラット CD40 | eBioscience | 16-0402-85 | クローン HM40-3 |
| RPMI ミディアム 1640 | Gibco | 11875-093 | |
| HEPES (1M) | Gibco | 15630-080 | |
| MEM-NEAA (100x) | ギブコ | 11140-050 | |
| リン酸緩衝生理食塩水 (10x) | Lifetechnologies (Corning) | 46-013-CM | |
| MACS CD45R (B220) マイクロビーズ | Miltenyi Biotec | 130-049-501 | |
| MACS精製カラム | Miltenyi Biotec | 130-042-401 | |
| IL-4 | PeproTech | 214-14 | 水または0.1% BSA |
| ホルマリン溶液、中性緩衝液、10% | Sigma Aldrich | HT501128-4L | |
| トリプシン-EDTA溶液(10x) | Sigma Aldrich | T4174-100 ml | 5.0 gトリプシン、2.0 g EDTA•0.9% NaCl |
| ペニシリン-ストレプトマイシン | Sigma Aldrich | P0781-100 ml | 10,000 U ペニシリン; 10 mg/ml ストレプトマイシン (100x) |
| L-グルタミン 200 mM | Sigma Aldrich | G7513 | |
| 2-メルカプトエタノール (99%) | Sigma Aldrich | M6250-100 ml | |
| 赤血球溶解バッファー | Sigma Aldrich | R7757 | |
| ラット抗マウス IgM RPE/Cy7 | SouthernBiotech | 1140-17 | クローン1B4B1 |
| HyCloneウシ胎児 | サーモ | SH30910.03 | |
| B細胞刺激培地 | 地は、ウシ胎児血清(15%)、20 mM HEPES、1x MEM-NEAA、2.0 mM L-グルタミン、 1x ペニシリン-ストレプトマイシン(ペニシリン:100 U / ml、ストレプトマイシン:100 &g/ml)、β-メルカプトエタノール(7 µL/L)、IL-4 (20 ng/ml)、抗 CD40 (1 µg/ml) |
参考文献
- Chaudhuri, J., et al. Evolution of the immunoglobulin heavy chain class switch recombination mechanism. Advances in immunology. 94, 157-214 (2007).
- Gould, H. J., Sutton, B. J. IgE in allergy and asthma today. Nature reviews. Immunology. 8, 205-217 (2008).
- Winter, W. E., Hardt, N. S., Fuhrman, S. Immunoglobulin E. Archives of Pathology & Laboratory Medicine. 124 (9), 1382-1385 (2000).
- Ozcan, E., Notarangelo, L. D., Geha, R. S. Primary immune deficiencies with aberrant IgE production. Journal of Allergy and Clinical Immunology. 122, 1054-1062 (2008).
- Bacharier, L. B., Geha, R. S. Molecular mechanisms of IgE regulation. The Journal of allergy and clinical immunology. 105, 547-558 (2000).
- Yokota, A., et al. Two species of human Fc epsilon receptor II (Fc epsilon RII/CD23): tissue-specific and IL-4-specific regulation of gene expression. Cell. 55 (4), 611-618 (1988).
- Boboila, C., et al. Alternative end-joining catalyzes class switch recombination in the absence of both Ku70 and DNA ligase 4. The Journal of experimental medicine. 207, 417-427 (2010).
- Nimmerjahn, F., Ravetch, J. Fcgamma receptors as regulators of immune responses. Nature reviews. Immunology. 8 (1), 34-47 (2008).
- Callen, E., et al. 53BP1 mediates productive and mutagenic DNA repair through distinct phosphoprotein interactions. Cell. 153 (6), 153-1280 (2013).
- Wesemann, D. R., et al. Reprogramming IgH isotype-switched B cells to functional-grade induced pluripotent stem cells. Proceedings of the National Academy of Sciences of the United States of America. 109 (34), 13745-13750 (2012).
- Wesemann, D., et al. Immature B cells preferentially switch to IgE with increased direct Sµ to Sε recombination. The Journal of experimental medicine. 208 (13), 2733-2746 (2011).
- Zarrin, A. A., et al. An evolutionarily conserved target motif for immunoglobulin class-switch recombination. Nature immunology. 5, 1275-1281 (2004).
- Fan, G., et al. Development of a class-specific polyclonal antibody-based indirect competitive ELISA for detecting fluoroquinolone residues in milk. Journal of Zhejiang University. Science. B. 13 (7), 545-554 (2012).
- Perez, O., Krutzik, P., Nolan, G. Flow cytometric analysis of kinase signaling cascades. Methods in molecular biology (Clifton, N.J.). 263, Clifton, NJ. 67-94 (2004).
- Jamur, M., Oliver, C. Cell fixatives for immunostaining. Methods in molecular biology (Clifton, N.J.). 588, 55-61 (2010).
- Ishizaka, T., Ishizaka, K. Mechanisms of passive sensitization. IV. Dissociation of IgE molecules from basophil receptors at acid pH. Journal of immunology (Baltimore, MD. : 1950). 112 (3), 1078-1084 (1950).
- Erazo, A., et al. Unique Maturation Program of the IgE Response In Vivo. Immunity. 26, 191-203 (2007).
- Xiong, H., Dolpady, J., Wabl, M., Curotto de Lafaille, M. A., Lafaille, J. J. Sequential class switching is required for the generation of high affinity IgE antibodies. Journal of Experimental Medicine. 209, 353-364 (2012).
- Yang, Z., Sullivan, B., Allen, C. Fluorescent in vivo detection reveals that IgE(+) B cells are restrained by an intrinsic cell fate predisposition. Immunity. 36 (5), 857-872 (2012).
- Berkowska, M. A., et al. Human IgE(+) B cells are derived from T cell-dependent and T cell-independent pathways. The Journal of allergy and clinical immunology. , (2014).
- He, J. -S., et al. The distinctive germinal center phase of IgE+ B lymphocytes limits their contribution to the classical memory response. The Journal of experimental medicine. 210 (12), 2755-2771 (2013).
- Keegan, A., Fratazzi, C., Shopes, B., Baird, B., Conrad, D. Characterization of new rat anti-mouse IgE monoclonals and their use along with chimeric IgE to further define the site that interacts with Fc epsilon RII and Fc epsilon RI. Molecular immunology. 28 (10), 1149-1154 (1991).
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
再版と許可
