このプロトコルは、Rac1を含むRhoファミリーGTPaseの結合パートナーの相対的な親和性を比較します。In vivoでは、Rac1結合タンパク質は単一の結合界面をめぐって競合し、そのコンフォメーションは結合したヌクレオチドによって決定されます。ヌクレオチドは重要であり、加水分解速度が高いため、実験的に制御することは困難です。
この記事について
サマリー
要約
このプロトコルでは、GTPase結合タンパク質間の競合を比較する方法を示します。このようなアプローチは、GTPアーゼの結合能を決定するために重要ですが、その理由は2つあるからです:すべての相互作用がGTPアーゼの同じ面に関与するという事実は、結合イベントを競合他社の文脈で考慮する必要があることを意味し、結合したヌクレオチドも制御しなければならないという事実は、免疫沈降などの従来のアプローチがGTPアーゼの生化学に適していないことを意味します。このアッセイは、精製されたタンパク質の使用に依存しています。ビーズに固定化された精製Rac1をベイトタンパク質として使用し、GDP、GTPの非加水分解バージョン、またはヌクレオチドフリーのままにしてロードできるため、調査対象のシグナル伝達段階を制御できます。調査対象の結合タンパク質は、GFPタグを使用して、正しいフォールディングを可能にするために哺乳動物細胞から精製されます。両方のタンパク質に同じタグを使用することは、迅速な精製と溶出を可能にするだけでなく、溶出中に同じ抗体を持つ両方の競合製品を検出できるため、重要です。これは、結合した2つのタンパク質の相対量を正確に決定できることを意味します。
概要
哺乳類細胞の形状、極性、遊走特性を決定するアクチン細胞骨格は、小さなGTPアーゼのRhoファミリーによって調節されています。RhoファミリーGTPaseには、細胞骨格の収縮を刺激するRhoA、アクチンの分岐や膜突出を刺激するRac1、Rac1と同様のアクチン重合作用を持ち、糸状仮足を形成するCdc42などがあります1,2。GTPアーゼシグナル伝達活性は、ヌクレオチドの結合によって決定され、ヌクレオチドは、タンパク質間相互作用を媒介するスイッチIループとスイッチIIループの収縮と緩和を制御します。グアノシン5'-三リン酸(GTP)結合型GTPアーゼは下流のエフェクターを活性化しますが、グアノシン5'-二リン酸(GDP)結合型は不活性です。細胞内では、GTP加水分解とヌクレオチド交換のサイクルにより、細胞骨格ダイナミクスに必要なGTPaseシグナルの迅速な代謝回転が可能になります。ヌクレオチドの代謝回転は、3つのメカニズムによって制御されます。グアニンヌクレオチド交換因子(GEF)は、ヌクレオチドを含まないGTPアーゼを安定化させ、GDPとGTPの交換を触媒し、それによってGTPアーゼシグナル伝達活性を刺激する3,4。GTPアーゼ活性化タンパク質(GAP)は、GTPのGDPへの加水分解を触媒し、それによってGTPアーゼシグナル伝達活性を阻害します5。クロマチン縮合調節因子2(RCC2)やグアニンヌクレオチド解離阻害剤(GDI)などの隔離分子はスイッチループを覆い隠し、GDIの場合はプレニルテールとの相互作用によりGTPaseを膜から除去します6,7。調節分子の3つのクラスのそれぞれがスイッチループと相互作用し、下流のエフェクターやcoronin-1C 7などの一部の輸送調節因子も相互作用します。このプロトコルの目的は、推定調節因子と下流のシグナル伝達分子との間のスイッチI/II結合部位の競合を測定することです。競合アッセイは、共有結合部位への結合をテストするため、このプロトコルは、プレニルテールへのGDIの結合など、他の部位との相互作用の試験には適していないことに留意すべきである。
活性型と不活性型の間の構造の違いの微妙さと、結合したヌクレオチドの不安定な性質が組み合わさって、GTPase結合事象の研究を困難にしています。結合したヌクレオチドの役割は、ヌクレオチドを制御できないため、免疫沈降や表面プラズモン共鳴などの従来の結合アッセイは研究にあまり適していないことを意味します。この障害は、GEF、GAP、エフェクター、隔離分子、および輸送分子の結合部位の重複によって悪化し、単一の相互作用の結合データを細胞内で発生する競争の文脈で解釈することが困難になります。特に免疫沈降は、特定の細胞条件下では、ある結合パートナーが他のすべてのパートナーを犠牲にして特定される可能性があり、他の条件下では別のパートナーが優勢になる可能性があるため、結合パートナー間の競争によって損なわれます。GTPaseシグナル伝達の動的性質は、GTPaseの機能に不可欠であり、異なる調節因子の結合相互作用間の関係を解析する際には考慮する必要があります。実際、私たちは最近、競争的拘束力に大きく依存する経路について説明しました。私たちは、コロニン-1CをGDP-Rac1 7のスイッチループに結合する輸送分子として同定しました。GEFの活動が少ない地域では、密輸が支配的であり、それらの地域からRac1が排除されます。しかし、Rac1がGEF活性が高い細胞の領域に送達されると、GEFはコロニン-1Cを凌駕し、それによってRac1を活性化し、その領域からのコロニン-1Cを介したRac1の除去を防ぎます。GEFの作用は、バインドされたGDPをGTPと交換し、平衡をコロニン-1Cからさらにシフトさせるため、モデルはさらに進んでいます。したがって、Rac1の活動は、競争と相対的な親和性の観点から完全に説明できます。
このプロトコルでは、Rac1を例に、小さなGTPaseに対する異なる結合パートナーの相対的な親和性を比較する方法を記述します。精製タンパク質アプローチを用いることで、結合したヌクレオチドを厳密に制御できる実験において、ペアワイズ比較によってシグナル伝達イベントの連鎖をつなぎ合わせることができます。
プロトコル
GST標識GTPアーゼの1精製
- 文化E.そのような220rpmで振盪しながら37℃でのpGEX-Rac1のO / Nで形質転換されたBL21として大腸菌株 、自己誘導培地500ml中(中の25mMのNa 2 HPO 4、25mMのKH 2 PO 4、50mMのNH 4 Clを 、 5ミリモルの Na 2 SO 4、2mMのMgSO 4を、2ミリモルのCaCl 2、0.5%グリセロール、0.05%グルコース、0.2%のラクトース、5 gでトリプトン、2.5グラムの酵母エキス、100μg/ mlのアンピシリン)。
- 万XG、4℃で10分間の遠心分離によって収穫細菌。
- 20 mlのタンパク質抽出試薬中に細菌ペレットを再懸濁し、1×プロテアーゼ阻害剤および逆に室温で20分間インキュベートします。
- 30分間40,000×gで遠心分離することによって、溶解物を明確にします。
- リン酸緩衝生理食塩水で洗浄し、2 mlのグルタチオン磁気ビーズ、追加(PBS:10mMののNa 2 HPO 4、1.8mMのKH 2 PO 4、137mMの塩化ナトリウム、2.7mMの塩化カリウム)。
- 4℃での反転により混合、2時間インキュベートします。
- 各ステップで、ビーズを沈殿させ、磁性粒子ソーターを使用して、10 mlのPBSでタンパク質を負荷したビーズを4回洗浄します。
- 必要になるまで再懸濁し、100μlのアリコートで-80℃で2mlのPBS中のビーズと店をタンパク質ロードされています。
GTPアーゼ結合タンパク質の2発現
- 次のように一日の実験の前に、緑色蛍光タンパク質(GFP)をコードするプラスミドをトランスフェクションHEK293Tの別個の75-cm 2のフラスコにそれぞれのGTPアーゼ結合タンパク質のバージョン-タグ。ヌクレオチド負荷の検証のために、HEK293Tの第75-cm 2のフラスコにGFPタグTrioD1をトランスフェクション。
- 100μl中の1mg / mlの滅菌150mMのNaClにポリエチルアミンを希釈します。
- 223μlの減少血清培地に27μlの希釈したポリエチルアミンを追加します。
- 250μlの減少血清培地に12μgのプラスミドDNAを追加します。
- 室温で2分間、各チューブをインキュベートします。
- ポリエチルアミンを結合し、DNAが2分間の単一の管、ボルテックスで混合します。
- 室温で15〜20分間インキュベートします。
- 5ミリリットルの新鮮な増殖培地と90%のコンフルエントHEK293Tに増殖培地(ダルベッコ改変イーグル培地、10%ウシ胎児血清、2mM L-グルタミン、抗生物質なし)を交換してください。
- フラスコに合わせたポリエチルアミン/ DNA混合物を追加し、37℃、5%CO 2でO / Nインキュベートします。
GTPアーゼ結合タンパク質の精製3.
- PBS中でトランスフェクトされた細胞のフラスコをすすぎ、5分間フラスコをドレイン、自由な液体を吸引します。
- マイクロチューブに500μlの溶解バッファー(50 mMトリス - 塩酸(pH7.8)、1%のNonidet P-40、1×プロテアーゼ阻害剤)で細胞を削り取ります。
- 4℃で30分間転倒混和することによって溶解細胞。
- 溶解中に、洗浄の間に2分間2700×gで40μlのGFP-トラップビーズの2つのロットの新鮮な溶解緩衝液で3回、沈降ビーズを洗います。
- 10分間21,000×gでの遠心分離によって溶解物を明確にします。
- 転送は、4℃で転倒混和し、洗浄し、GFP-トラップビーズを分離し、GFP融合タンパク質は2時間結合させるための競合タンパク質のそれぞれの溶解液を明らかにしました。氷上でGFP-TrioD1細胞からの溶解物を保管してください。
- 50mMトリス-塩酸(pHは7.8)、50mMのNaClで二回ロードされたGFP-トラップビーズを洗浄し、0.7%(W / v)のノニデットP-40及び倍の50mMのTris-HCl(pHは7.6)で、20mMのMgCl 2を、洗浄の間に2分間2700×gでビーズを沈降。
- 40μlの0.2 Mグリシン(pHは2.5)を追加し、30秒間上下にピペッティングにより、GFP融合タンパク質を溶出させます。 4μlの1 Mトリス塩酸(pH値10.4)を含む新しいマイクロチューブに60秒と転送液の21,000×gですぐに土砂ビーズ。精製タンパク質への損傷を制限するために迅速にこれを行います。
- 定量blottを使用して相対収率を確立するために、抗GFP抗体を用いたウェスタンブロットおよびプローブによる各精製タンパク質の1μLを分析製造業者のプロトコルに従ってシステムをる。別の方法として、ビシンコニン酸(BCA)アッセイによりタンパク質濃度を決定するが、タンパク質は同じ方法でアッセイと反応しないか、夾雑タンパク質が存在する場合、これはエラーを紹介します。
- 50mMトリス-塩酸(pHは7.6)、20mMのMgCl 2を添加することによってタンパク質のモル濃度を均一。
GTPアーゼの4ヌクレオチドの読み込み
- ステップ1で調製したGST-Rac1の磁気ビーズの1つのアリコートを解凍します。
- GST-Rac1のビーズの90μLを取り、20mMのトリス-HCl(pHは7.6)で3回洗浄し、各ステップでビーズを沈殿させ、磁性粒子ソーターを使用して、25mMの塩化ナトリウム、0.1mMのDTT、4mMのEDTA、。
- 吸引除去ビーズからのバッファおよび25mMのNaCl、0.1mMのDTT、4 mMのEDTA、100μlの20 mMトリス - 塩酸(pHは7.6)を追加します。
- GDP、GTP又は全くヌクレオチド負荷が競合実験のために必要とされているかどうかによると、12μlの100 mMのGDP、12μlの10 mMのGUを追加anosine 5 ' - [γ-チオ]三リン酸(GTPγS)または60μlのGST-Rac1のビーズに無ヌクレオチド。
- ヌクレオチドローディングコントロールの場合、3 10-μlのアリコートに、残りのビーズを分割し、各チューブに2μlの100 mMのGDP、2μlの10 mMのGTPγSまたは全くヌクレオチドを追加します。
- ビーズを攪拌しながら30℃で30分間混合しインキュベートします。
- 制御ミックス(ステップ4.5)のそれぞれに実験ミックス(ステップ4.4)に3μL、0.5μlの1 MのMgCl 2を添加することにより塩基結合するRac1を安定させます。
5.競争が結合します。
- 6マイクロチューブを設定し、それぞれ含みます:
200μlの50mMトリス-塩酸(pHは7.6)、20mMのMgCl 2を
(ステップ4.7)10μlの実験ヌクレオチドロードRac1のビーズ
5μlのRac1の結合タンパク質A(定数結合タンパク質) - 各チューブに、0、1、2.5、5、10または20μlのRac1の結合タンパク質B(可変結合タンパク質)を追加します。これらのボリュームは前提としていpproximately同等の株式定数と変数の結合タンパク質の濃度と調整する必要があります。
- そこに2つのタンパク質の結合親和性に大きな差があり、これは実験の繰り返しを通じて、経験的に決定する必要がある場合は結合タンパク質AとBのボリュームを調整します。 50mMトリス-塩酸(pHは7.6)の添加によって235μlに結合混合物の全量を、20mMのMgCl 2を。
- 含むマイクロチューブを設定します。
200μlの50mMトリス-塩酸(pHは7.6)、20mMのMgCl 2を
(ステップ4.7)10μlの実験ヌクレオチドロードRac1のビーズ
10μlのRac1の結合タンパク質A(定数結合タンパク質) - GDP、GTPγSなしヌクレオチド対照チューブを設定します。
200μlの50mMトリス-塩酸(pHは7.6)、20mMのMgCl 2を
10μlの制御Rac1のビーズは、GDP、GTPγSまたは無ヌクレオチドでステップ4.5でロードされ、ステップ4.7で安定しました。
180μlのHステップ3.6のように調製しEK293T GFP-TrioD1溶解物を、
4μlの1 MのMgCl 2 - 4℃での反転により混合、2時間混合物をインキュベートします。
- 50mMトリス-塩酸(pHは7.6)でビーズを3回洗浄し、20mMのMgCl 2を。
- 溶出サンプルバッファーを減らす20μlのタンパク質を結合した(50mMのトリス-HCl(pHが7)、5%SDS、20%グリセロール、0.02 mg / mlのブロモフェノールブルー、5%βメルカプトエタノール)。
競争の6分析
- ドデシル硫酸ナトリウムポリアクリルアミドゲル電気泳動(SDS-PAGE)およびウェスタンブロットによって、結合したタンパク質(ステップ5.6)の10μLを解決します。
- ブロッキング緩衝液中で1/1000に希釈した抗GFP抗体で4°CO / Nで膜をインキュベートすると、タグ付けされたGTPアーゼ結合タンパク質の両方を検出するために、PBS中0.1%のTween-20を1倍に希釈しました。
- PBS、0.1%のTween-20で10分間、膜を3回洗浄します。
- DyLight 800結合抗ウサギ秒で室温で30分間、膜をインキュベートブロッキング緩衝液中で1 /万希釈次側抗体は、PBS中の0.1%のTween-20を1倍に希釈しました。
- PBS、0.1%のTween-20で10分間、膜を3回洗浄します。
- 製造業者のプロトコルに従ってバンド強度を測定するためのソフトウェアを使用して、赤外線イメージングシステムを用いて膜をスキャンします。
- 変数競争相手(タンパク質B)の体積に対する各タンパク質のバンド強度をプロットします。
- 線は平衡が達成された競技者の割合を決定するために、一定の競争相手(プロテインA、5μL)の体積交差する点で可変競技者の容積を分割します。
- ステップ6.1から6.6に記載されているように、ヌクレオチドローディング状態の検証については、p21活性化キナーゼ1(PAK1)(エフェクター)およびGFP-TrioD1(GEF)のための膜を探査。
結果
このプロトコルは、競合物質の正確な濃度を知ることなく、Rac1に対する結合パートナーの相対的な親和性を算出するように設計されています(Figure 1)。タンパク質濃度の決定は誤差を導入することになり、シグナル伝達経路における分子間の競合を検討する場合には必要ありません。ただし、アッセイに異なる量を追加した際に単純な比率で計算できるように、ストック溶液において2つの競合物質が同じモル濃度であることを確認しておくことが重要です。40 µlのGFP-Trapビーズの結合容量は約300 pmolであるため、高発現細胞を充填した75 cm2フラスコを用いればビーズを飽和させることができ、その結果、調整前の2種類の結合タンパク質の調製量は同程度になります(Figure 2A)。タンパク質のいずれかの発現量が低い場合は、複数の細胞フラスコからそのタンパク質を精製することでこの問題を解決できます。
ほとんどのGTPaseエフェクターおよびレギュレーターの結合は、ベイトとなるGTPaseのヌクレオチド充填状態に依存するため、充填が成功したかを確認することが重要です。充填は、細胞溶解液から既知の結合タンパク質を沈殿させることで検証できます。PAK1などのエフェクタータンパク質はGTP-Rac1に結合し、溶解液から容易に沈殿させ、ウェスタンブロッティングによって検出することが可能です8 (Figure 2B)。GEFは遷移状態を安定化させるため、優先的にヌクレオチドフリーのGTPaseに結合します。GEFは発現量が少なく、通常は不活性であり、ブロットでの検出効率が低いことが多いため、ヌクレオチドフリーのGTPaseをテストするには、GEFまたはGEFフラグメントを過剰発現させるのが適切です。我々は頻繁に、GFP融合タンパク質として発現させたTrioの第1 Dblホモロジー領域(GFP-TrioD1 9)を使用していますが (Figure 2B)、どのようなGEFでも機能します。GDP充填されたGTPaseに結合するタンパク質は稀です。我々は最近、そのようなタンパク質の一つとしてRCC2を報告しましたが7、GDP充填は、GEFおよびエフェクターのいずれにも結合しないことで単純に検証することも可能です。
実験の結果として、GTPaseに結合した2つのGFPタグ付き結合パートナーを示すウェスタンブロットが得られます。単一の抗体を用いて両方のタンパク質を検出することで、両方の競合因子が同量結合する濃度を決定でき、したがって相対的な親和性を推論することが可能です。この例では、Rac1輸送タンパク質であるcoronin-1C(Rac1結合タンパク質A)のプロペラドメインと、Rac1隔離タンパク質であるRCC2(Rac1結合タンパク質B)との間の競合を示しています(図3A)。一定量のcoronin-1Cプロペラ(5 µl)を用い、RCC2の量を段階的に増やして添加すると、GFPブロットからRCC2が1.25-2.5 µl(アスタリスク)の時に平衡に達することが分かり、これはRCC2がcoronin-1CよりもRac1に対して強い親和性を持つことを示しています。定量的なウェスタンブロッティングを用いてバンドの強度を測定し、各競合因子の平均値をプロットすることで、曲線が交差する容量を特定し、平衡点を正確に算出できます(図3B)。
競合アッセイを成功させる上での障害の一つとして、結合パートナー同士が互いに結合し、かつRac1にも結合する場合が考えられます。図 3A+Bでは、フルレングスのcoronin-1Cではなく、RCC2とcoronin-1Cのプロペラドメインとの間の競合を実証しています。切断型coroninを使用する理由は、coronin-1Cがテールドメインを介してもRCC2に結合するためです。フルレングスのcoronin-1CをRCC2に対して滴定すると、競合ではなく三元複合体の形成により、両方のタンパク質の結合が検出されます(図 3C)。競合が起こっている場合、一方のタンパク質の結合が増加すると同時にもう一方が減少し、結合したGFP融合タンパク質の総量は一定に保たれます。三元複合体が形成される場合は、競合物質同士が相互作用しなくなるよう、GTPase結合タンパク質の一方を切断する必要があります。
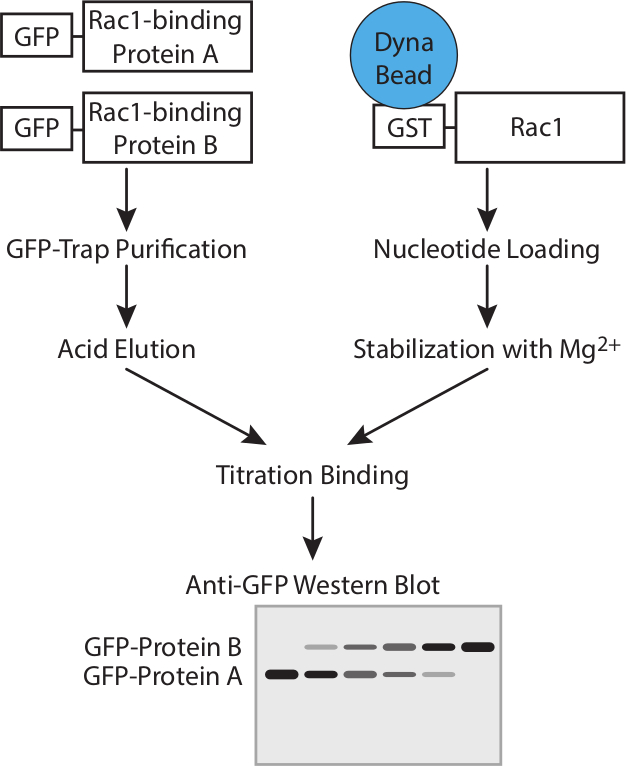
図1. ワークフロー。競合アッセイを用いてGTPase結合タンパク質の親和性を決定するためのワークフローの概略図。ここをクリックして、この図の拡大版を表示してください。

図 2. 精製タンパク質のバリデーション。(A) 精製したGFPタグ付きRac1結合タンパク質をウェスタンブロットで分析し、抗GFP抗体を用いて2つのタンパク質の相対的な収量を決定した。実験中にこのような等量化を行うことで、結合実験において2つのタンパク質の濃度を一致するように調整することが可能となる。(B) GDP、GTPγS、およびヌクレオチド未負荷のGST-Rac1を、GFP-TrioD1を発現させたHEK293T細胞のライセートとインキュベートし、内因性PAK1または過剰発現させたGFP-TrioD1をプロッティングして結合タンパク質を検出した。こちらのリンクから、この図の拡大版を表示できます。
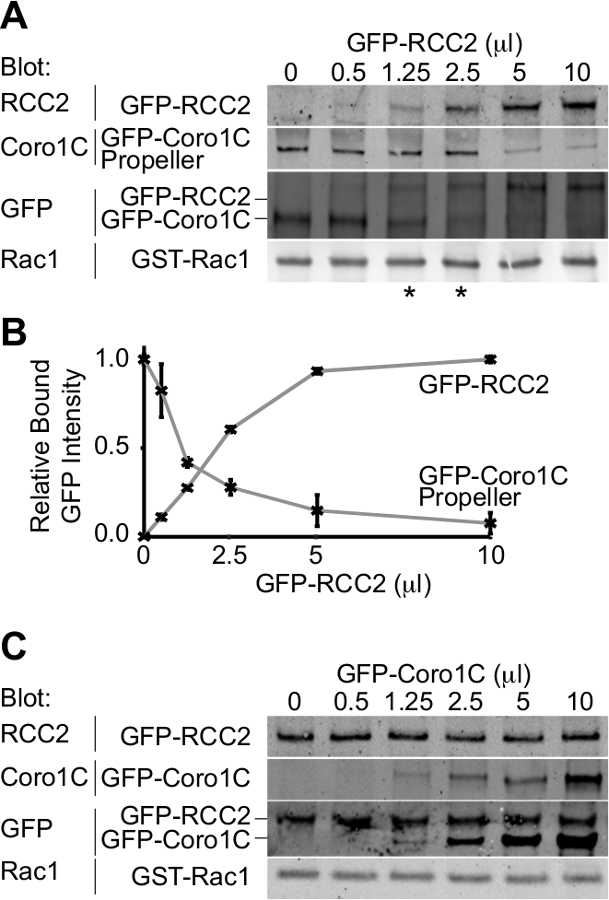
図 3. 相対的タンパク質結合のウェスタンブロット解析。競合結合アッセイの結果例。(A) GDP負荷Rac1に 5 µl のGFP-coronin-1Cプロペラドメインを混合し、GFP-RCC2を段階的に添加した。GFPに対する結合タンパク質をウェスタンブロッティングで検出することで、2つのタンパク質間での検出感度の差による問題を回避し、GFPシグナルによって2つの融合タンパク質のモル比を報告している。アスタリスクは平衡点前後の競合比を示す。(B) 3回の独立した実験から得られた結合GFP融合タンパク質のバンド強度を、蛍光標識二次抗を用いた定量ウェスタンブロッティングにより測定し、その平均をプロットして平衡に達するために必要なRCC2量を算出した。(C) Rac1結合タンパク質同士が互いに結合して三元複合体を形成し、競合しない場合の実験結果例。GDP負荷Rac1に 5 µl のGFP-RCC2を混合し、GFP-coronin-1Cフルレングスを段階的に添加した。結合したGFP-RCC2量が減少することなく、結合したGFP-coronin-1C量が増加していることは、三元複合体の形成を示している。この図の拡大版を表示するには、ここをクリックしてください。
ディスカッション
このプロトコルは、小さなGTPアーゼ結合タンパク質のペアの相対的な親和性を比較する方法を記述しています。重要なステップは、精製されたGTPアーゼ結合タンパク質の調製とGTPアーゼのヌクレオチドローディングです。同じGFPタグを持つGTPアーゼ結合タンパク質を使用すると、各競合他社の同様の量が結合する濃度を正確に決定できます。組換えヌクレオチド負荷GTPアーゼを使用すると、特定の活性条件下でのGTPアーゼの結合特性の調査が可能になります。また、マグネシウムの状態が正確に維持されていない場合、ヌクレオチドは加水分解してGTPアーゼから分離するため、このステップは最も感度が高いです。
細胞内では、多数のGTPアーゼ結合タンパク質と急速なヌクレオチド代謝回転が組み合わさっているため、そのような経路の解釈が困難になります。結合タンパク質のペアのみを比較し、慎重に制御されたヌクレオチドローディング条件を使用するというこの方法は、シグナル伝達経路を解明することができます。しかし、プロトコルの最大の長所は、 in vivo 状況の単純化であるため、最大の短所でもあります。競合アッセイを使用して堅牢な仮説を構築できますが、これはノックダウン実験によって細胞内でテストする必要があります。
実験で使用するGFPタグ付きGTPアーゼ結合タンパク質を選択する際に考慮しなければならない3つの特徴があります。まず、競合アッセイには適度な量のタンパク質が必要なため、融合タンパク質はHEK293Tなどの哺乳類細胞でよく発現する必要があります。第二に、組換えタンパク質を有意な分解なしに精製できなければならず、これが不可能な場合は、GTPアーゼ結合フラグメントのクローニングを検討する必要があります。第三に、2つのGTPase結合タンパク質は、セクション6での分析を可能にするために、SDS-PAGE上で互いに分解する必要があります。
実験には、考慮する必要がある、および対処する必要がある可能性のあるいくつかの潜在的な注意事項があります。
酸溶出ステップ中の精製されたGTPアーゼ結合タンパク質の変性またはGFPタグによる立体障害の可能性。私たちの手にかかれば、これらは問題ではありませんが、テストする必要があります。精製されたタンパク質は、機能アッセイ 10で試験することができる。現在、同位体標識ヌクレオチドを必要とせずにGEFまたはGAPの活性をテストするための市販キットが存在します。隔離タンパク質は、その性質上、GTPアーゼをGEFまたはGAP活性から保護するため、最近の出版物 7で行ったように、市販のGEFまたはGAPアッセイで競合阻害剤として使用できます。GTPアーゼを輸送するタンパク質の関連する特徴は、GTPaseに結合する能力であり、これはプルダウンアッセイで簡単にテストできます。すべての結合タンパク質に適用できるタンパク質の完全性をテストするための別のアプローチは、GFPトラップビーズから溶出したタンパク質をグリシンで滴定し、酵素的切断によってGFPトラップビーズから除去したのと同じタンパク質を使用することです。実験は、GFPタグ付きタンパク質と切断されたタンパク質の両方をタンパク質自体に対する抗体でプローブすることによって分析されます。タンパク質が溶出によって損傷を受けていない場合、平衡は1:1の比率で達成されるべきです。このアプローチは、GFPタグ自体の存在が候補タンパク質の結合特性を損なうかどうかも示しますが、これにはタグと結合タンパク質の間に酵素的切断部位を持つコンストラクトの生成が必要です。タンパク質がタグまたは溶出ステップによって損なわれるかどうかにかかわらず、代替の精製方法を使用するようにプロトコルを変更することで問題に対処できます。GFPではなく、結合タンパク質をHisタグ付けし、Ni-NTAを使用して精製し、Hisタグに対する抗体を使用して分析することができます。重要な特徴は、両方の結合タンパク質が共通のタグを共有する必要があることですが、必要に応じて、精製用と検出用の2つのタグをタンパク質に追加できます。
このプロトコルは、スイッチI/IIドメインとの相互作用間の競合を調査するように設計されています。GTPアーゼ相互作用の大部分はこのモチーフによって媒介されますが、いくつかの例外があり、最も顕著なのは、プレニルテールに結合し、スイッチドメインを不明瞭にするGDIの相互作用です。原則として、プロトコルは哺乳類細胞から精製されたGTPアーゼを使用するように適合させることができ、GTPアーゼはプレニル化されますが、複数の結合部位またはアロステリック効果の存在は、競合結合データの解釈を複雑にします。このような修飾に関連するさらなる問題は、GDIが哺乳類細胞由来のGTPアーゼと共精製し、単離されたタンパク質の純度を損なうことと、プレニル基の疎水性がプレニル化GTPアーゼがGDIまたは脂質膜のいずれかに関連していることを意味することであり、そのような要因は実験で考慮する必要があります。
アッセイで使用されている GST-Rac1 の量。一定のGTPアーゼ結合タンパク質は、Rac1よりも高い濃度でなければならず、競合他社が添加されると、遊離Rac1に結合するだけです。図 3Bに示すように、定数タンパク質を失うことなく、競合するタンパク質の結合が検出されるため、これが起こったかどうかはすぐに明らかです。追加のコントロール(ステップ5.3)として、2倍の量の一定結合タンパク質を含む結合反応と可変結合タンパク質を含まない結合反応を含める必要があります(ステップ5.3)。滴定実験のRac1が飽和している場合、一定結合タンパク質の量を2倍にしても出力には影響しません。プロトコルで提案されている量は適切である必要がありますが、Rac1の量は簡単に減らすことができます。定数結合パートナーを失うことなく競合他社の結合が観察される場合は、三元複合体の形成を避けるために結合部位をマッピングする前に、Rac1の量を減らすことを試みる必要があります。
GTPase結合タンパク質とGSTまたはビーズ、および特異的にRac1との非特異的相互作用。この問題は、可変GTPアーゼ結合タンパク質が高濃度でプラトーに達した場合でも、一定のGTPアーゼ結合タンパク質の残留結合によって現れます。この問題の特定は、一定および可変のGTPアーゼ結合タンパク質が交換される相互実験を実施することによって支援されます。相互実験は平衡点の推定の精度も大幅に向上するため、常に含める必要があります。非特異的結合の場合、平衡が達成される相対濃度は、各タンパク質の最大値と最小値の間のバンド強度を比較するか、GST-Rac1ではなくGSTビーズを餌として使用して非特異的結合の程度を測定することによって計算できます。
異なるヌクレオチドローディング条件を使用したプルダウンアッセイを使用して、このプロトコルに記載されている競合アッセイを補完する必要があります。パートナーのヌクレオチドの好みを決定することは、競合イベントの理解と、GTPase結合タンパク質が関与するシグナル伝達経路の理解の両方にとって重要です。 図2B では、ヌクレオチドローディングを検証する手段として、GTPロードまたはヌクレオチドフリーのGTPアーゼの優先性が確立されたタンパク質の結合を分析します。ただし、各競合他社に対するヌクレオチド負荷の影響も調査することは賢明です。仮想の競合他社が異なる好みを示した場合、競争はシグナル伝達経路への寄与を少なくし、実際、ヌクレオチドの代謝回転は結合タンパク質の交換を指示するメカニズムである可能性があります。
開示事項
著者らは開示するものは何もない。
謝辞
この作業は、MDBへのウェルカムトラスト助成金088419によって支援されました。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| バグバスター | ノヴァゲン | 70584-3 | |
| コンプリートプロテアーゼ阻害剤 | ロシュ | 05 056 489 001 | |
| グルタチオン磁気ビーズ | ピアス | 88821 | |
| ポリエチレン、分岐、平均 Mw ~25,000 | シグマ アルドリッチ | 408727-100ML | |
| OPIMEM | ライフ テクノロジー | ズ 31985-047 | |
| ダルベッコの修正イーグルメディア | シグマ アルドリッチ | D5796 | |
| ウシ胎児血清 | ライフ テクノロジー | ズ 10270-1-6 | |
| L-グルタミン | ライフ テクノロジー | ズ 25030-024 | |
| GFP-Trap_A | クロモテック | gta-20 | |
| GDP | シグマ アルドリッチ | G7127 | 非常に不安定です。アリコートして、GTP&gamma 再構成後すぐに -80 で保存 |
| 。S | Sigma Aldrich | G8634 | 非常に不安定です。アリコートして再構築後すぐに-80で保存 |
| ブロッキングバッファー | Sigma Aldrich | B6429 | |
| Tween-20 | Sigma Aldrich | P9416 | |
| 抗GFP抗体 | リビングカラー | 632592 1/1000希釈で使用 | |
| DyLight 800 標識ヤギ 抗ウサギ二次抗体 | フィッシャーサイエンティフィック | 10733944 | |
| 抗PAK1抗体 | Cell Signaling | 2602S | 1/1000希釈で使用 |
| Odyssey SA Infrared Imaging System | Li-cor | 9260-11PC |
参考文献
- Burridge, K., Rho Wennerberg, K. and Rac take center stage. Cell. 116 (2), 167-179 (2004).
- Raftopoulou, M., Hall, A. Cell migration: Rho GTPases lead the way. Dev Biol. 265 (1), 23-32 (2004).
- Rossman, K. L., Der, C. J., Sondek, J. GEF means go: turning on RHO GTPases with guanine nucleotide-exchange factors. Nat Rev Mol Cell Biol. 6 (2), 167-180 (2005).
- Worthylake, D. K., Rossman, K. L., Crystal Sondek, J. structure of Rac1 in complex with the guanine nucleotide exchange region of Tiam1. Nature. 408 (6813), 682-688 (2000).
- Scheffzek, K., Ahmadian, M. R. GTPase activating proteins: structural and functional insights 18 years after discovery. Cell Mol Life Sci. 62 (24), 3014-3038 (2005).
- Del Pozo,, A, M., et al. Integrins regulate GTP-Rac localized effector interactions through dissociation of Rho-GDI. Nat Cell Biol. 4 (3), 232-239 (2002).
- Williamson, R. C., et al. Coronin-1C and RCC2 guide mesenchymal migration by trafficking Rac1 and controlling GEF exposure. J Cell Sci. 127 (Pt 19), 4292-4307 (2014).
- Del Pozo, M. A., Price, L. S., Alderson, N. B., Ren, X. D., Schwartz, M. A. Adhesion to the extracellular matrix regulates the coupling of the small GTPase Rac to its effector PAK. Embo J. 19 (9), 2008-2014 (2000).
- Van Rijssel, J., Hoogenboezem, M., Wester, L., Hordijk, P. L., Van Buul, J. D. The N-terminal DH-PH domain of Trio induces cell spreading and migration by regulating lamellipodia dynamics in a Rac1-dependent fashion. PLoS. 7 (1), e29912(2012).
- Self, A. J., Hall, A. Measurement of intrinsic nucleotide exchange and GTP hydrolysis rates. Methods Enzymol. 256, 67-76 (1995).
再版と許可
