私たちは、単一のT細胞受容体(TCR)レトロウイルスベースのin vivo発現システムのための迅速で柔軟なプロトコールを提示します。 レトロウイルスベクターは、骨髄前駆細胞を形質導入するために使用され、TCRトランスジェニックマウスの代替として、in vivoでの単一のTCRのT細胞の発生と機能を研究します。
このコンテンツを表示するには、JoVEへの購読が必要です。 または、無料トライアルをお申し込みください。
この記事について
サマリー
要約
T細胞受容体(TCR)シグナル伝達は、胸腺と末梢のT細胞の発生と分化に不可欠です。 膨大な数のTCRは、特定の抗原応答を研究することが難しいことを証明しています。 したがって、TCRトランスジェニックマウスは、胸腺の正選択と陰選択、および末梢T細胞の活性化、増殖、および耐性を研究するために作られました。 しかし、任意の抗原に特異的に生成されたTCRトランスジェニックマウスは比較的少ない。 そのため、同じ抗原ペプチドに対して異なる親和性のTCRを対象とした研究は行われていませんでした。新しいTCRトランスジェニックラインの作製には、6ヶ月以上かかる場合があります。 さらに、特定のバッククロスにはさらに6か月かかる場合があります。複数のTCRの迅速な作製とスクリーニングを可能にするために、TCRα鎖とTCRβ鎖の化学量論的発現とレトロジェニックマウスの作製により、骨髄のレトロウイルス形質導入のプロトコールが確立されました。 各レトロジェニックマウスは本質的にファウンダーであり、ファウンダー効果を事実上打ち消しますが、TCRレトロジェニックを生成するための時間の長さは6か月から約6週間に短縮されます。 ここでは、特定のTCRを用いて任意のバックグラウンドで発現できるTCRトランスジェニックマウスに代わる迅速で柔軟な方法を紹介します。
概要
ヒトおよびマウスのT細胞受容体(TCR)のレパートリーは、1×10 8および2×10 6個のユニークなTCRをそれぞれ1,2と推定されています。この大きな多様性は、T細胞が自己ペプチドから、ならびに抗原提示細胞(APC)上の主要組織適合遺伝子複合体(MHC)により提示される病原体由来の抗原エピトープの広大な配列を認識することができます。ユニークなペプチド - MHC複合体とTCRの相互作用の微妙な違いは、T細胞がアポトーシス、アネルギー、活性化、分化、サイトカイン産生や細胞毒性を受けるかどうかを決定します。しかし、大規模なTCRレパートリーに、特定のTCRは、特定の抗原に反応するかの分析は、単一のTCRのシステムを使用する必要があります。
様々なTCRトランスジェニックマウスは、in vivoモデル3-9で単一のTCRの機能を研究するために生成されています。しかし、を含むトランスジェニックマウスをTCRする注意点がありますコスト、単一のトランスジェニックマウスおよび生殖細胞系列DNA 10にランダムな導入遺伝子挿入のいわゆる創始者効果を生成するための時間の長さ。そのため、比較的少数のTCRトランスジェニックマウスは、任意の所与の抗原に対して生成されており、同じエピトープのための高および低TCRの親和性の機能的な意味はほとんど対処されていません。画面への迅速なアプローチの必要性に対処し、個別にまたは組み合わせて、複数のTCRを研究するために、retrogenic(レトロウイルスから「レトロ」およびトランスジェニックから「ジェニック」)マウスは、トランスジェニックマウス11-13を TCRするための代替として利用されてきました。
いくつかのウイルスの中に見つかった2Aペプチドのコンセンサスモチーフは、切断は2Aのグリシンおよび2Bのプロリンとの間で発生する、2A-ASP-ヴァル/イルGLUT-X-ASN-プロのGly-2B-プロで構成されシス -acting加水分解酵素活性から、翻訳10,14-16間にリボソームスキップが生じます。 Cを描いた詳細図については様々な2Aペプチド(F2A、E2A、T2AとP2A)のleavage参照10を参照してください - このように12、2シストロン(TCRαおよびTCRベータ)は、単一のベクター中の化学量論的な翻訳結果としてリンクすることができます。このアプローチを利用して、我々が発現し、in vivoで直接複数の抗原特異的TCRを比較することができます。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
プロトコル
倫理文:あらゆる努力を照射し、尾静脈注射時に最小限に動物の不快感やストレスを維持するために行われます。マウスをこれらの実験における細胞の供給源として使用されます。以下のような何の手順や操作が安楽死から離れてはありません。マウスは死を確認するために、頸椎脱臼に続いてCO 2吸入によって安楽死させます。この手順では、アメリカ獣医師会の安楽死に関するパネルの勧告と一致しています。
1.レトロウイルス構築物を準備します
- サブクローンT細胞受容体(TCR)αおよびβ鎖は、MSCVベースのレトロウイルス11ベクター(例えば、pMIAIIまたはpMIGII)11内に、図2(a)のリンカーによって分離されます。
注:図2(a)リンカーは単一のオープンリーディングフレームからのαおよびβTCR鎖の化学量論と一致発現を可能にします。ベクターがするために使用されるIRES蛍光タンパク質カセット(アメトリンまたはGFP)が含まれ形質導入した細胞と形質導入効率を追跡します。詳細なプロトコルの場合ホルストらを参照してください。11 - 商業的に得られた血漿プレップキットまたは類似の製品を使用してプラスミドDNAを単離します。 μlの2μgの-1 - 1の作業濃度を使用してください。
レトロウイルスプロデューサー細胞株の2世代
- レトロウイルスプロデューサー細胞株を生成するために二段階のプロセスを利用します。
注:詳細なプロトコルでは、ホルストら 11を参照してください。- 3つのプラスミド(pVSVG、PEQ-Pam3(-E)および利息11のベクトル)と293T細胞の一過性トランスフェクションによって、レトロウイルスを生成し、GP + E86エコトロピックレトロウイルスプロデューサー細胞株を形質導入した293T細胞からのレトロウイルス上清を取ります。
- FACSによってGP + E86プロデューサーを発現する細胞の蛍光の上部40%を隔離し、ウイルスのソースとしてtransdcuced-GP + E86プロデューサー細胞を増殖させます。
注:世代高力価生産の骨髄細胞の効率的な形質導入のために重要です。完全なプロトコルについてはホルストらをご覧ください。11
3.レトロウイルス媒介性の幹細胞の遺伝子導入(日-5)
- このプロトコルの0日によって2コンフルエント150 mmプレートのための十分な成長を可能にするために、完全DMEM中の各GP + E86のプロデューサー細胞株10%(体積/体積)のFBS 0.5 -1.0×10 6を解凍し、文化。
注:解凍0.5 -また、GP + E86を拡大するために5日間の培養を可能にします。この5日目で50%の密集度- 10cmプレート内の各GP + E86プロデューサー細胞株の1.0×10 6、30を可能にします0日目で2コンフルエント150 mmプレートにプロデューサー細胞株。- 5%フェタチーズウシ血清、及びマイコプラズマ汚染を避けるために、シプロフロキサシン(10μg/ ml)を含む完全組織培養培地中で培養レトロウイルスプロデューサー細胞株。
注:シプロフロキサシンの使用を中止するときgeneratinグラム骨髄形質導入のためのウイルス上清。これは負の骨髄形質導入効率に影響を与えるように、プロデューサー細胞株の過剰成長は避けてください。
- 5%フェタチーズウシ血清、及びマイコプラズマ汚染を避けるために、シプロフロキサシン(10μg/ ml)を含む完全組織培養培地中で培養レトロウイルスプロデューサー細胞株。
5-フルオロウラシル(5-FU)(3日目)4.注入するドナーマウス
- 必要な5-FUの量を決定するために - (12週齢5)ドナーマウスを秤量します。低骨髄収率の年齢結果の5週間よりも若いマウスを用いました。単一のTCRの発現を確実にするために、このようなSCID、RAGまたは骨髄ドナーとしてTCRアルファ欠損マウスなどのT細胞欠損マウス系統を使用します。
- 組織培養フード内で作業し、10ミリグラムmlのに十分な量-1体重のグラムあたり0.15 mgの5-FUを送達するための5-FUのワーキング溶液を作製するために、無菌PBSで5-FUのストックを希釈します。
- 37 G針で1mlシリンジを用いて、腹腔内に、ドナーマウスあたり体重のグラムあたり0.15 mgの5-FUを注入します。
注:起動し、調整するために、1つの受信者ごとに1ドナーマウスを使用しています細胞収量に応じてドナーマウスの数。骨髄前駆細胞の濃縮および単離のための5-FUの治療の代替方法は、ビレらに記載のように系統陽性細胞の負の選択です。
5.骨髄抽出手順(0日目)
- 骨の単離のために解剖ハサミとピンセットを取得します。メディアを準備50mlコニカルチューブ内の骨を収集するために(HBSSは5%FCS(体積/体積)を補いました)。氷上に培地を含有する50ミリリットルの円錐形をしてください。死を確認するために頸椎脱臼に続いてCO 2吸入によりマウスを安楽死させます。全く反射が検出されない保証するために、足をピンチ。
- エタノールまたはメタノールで手術部位や手術器具を滅菌します。最初に切断することにより骨盤ガードルの下に慎重に大腿骨、脛骨、上腕骨、および骨盤ガードルを削除します。バックダウン脛骨大腿骨に沿ってカットします。きれいな骨を得るために、ハサミやピンセットを使用して、すべての周囲の組織を削除します。キープHBSS + 5%(体積/体積)FBS中で水和骨。
- 両者がそれぞれの骨をオフに終了カットすることを確認して、関節で切断することにより骨を区切ります。 HBSS + 5%(体積/体積)FBSを含む10 mlの注射器に取り付けた25ゲージの針を挿入します。圧力を適用し、50ミリリットルの円錐で70μmのストレーナ休憩を介してすべての骨髄をフラッシュします。
- 定期的に、1ミリリットルまたは3ミリリットルシリンジからプランジャーを使用して、70ミクロンのフィルターを通して骨髄を押してください。 HBSS + 5%(体積/体積)FBSでストレーナーを洗浄します。これは、骨片と組織のない単一細胞懸濁液を確実にします。無菌フードの手順を実行することにより、無菌細胞を保管してください。
- 4℃で10分間、300×gで遠心分離した骨髄細胞。
6.骨髄文化(0日目)
- デカントまたは培地を吸引し、50mlコニカルチューブ当たり1ミリリットル塩化アンモニウムベースの赤血球溶解バッファー(またはRBC溶解バッファー相当)で再懸濁細胞ペレット。室温で1分間インキュベートした後温度は、完全DMEM 10mlの20%(容量/容量)FBSを添加することにより、赤血球溶解緩衝液をクエンチしました。
- 4℃で10分間、300×gで遠心分離細胞。
- デカントまたは5ミリリットル完全DMEM 20%(体積/体積)FBSで吸引上清および再懸濁骨髄。ノイバウアー計数チャンバーを用いて細胞を数えます。
注:一般的な収率は約5であるべきである-マウスあたり10×10 6細胞;しかし、収量は、マウスの異なる系統間で異なることができます。 - IL-3(20gのミリリットル-1)を補充した完全DMEM 30ml中の150 mmのプレートあたり4×10 7細胞を、20%(体積/体積)の濃度でプレート骨髄細胞FBS、IL-6(50 Gミリリットル-1)およびSCF(50gのミリリットル-1)。
注:解凍したての-等分しサイトカインを使用してください。 2週間以上4℃で凍結させ、複数回解凍または保たれてきたサイトカインを使用しないでください。 - 5%CO 2で37℃で一晩骨髄(約24時間)インキュベートします。
7。レトロウイルスプロデューサー細胞培養(0日目)
- 18ミリリットルで150 mmのプレートあたりプレート3×10 6レトロウイルス産生細胞を完全DMEM 20%(体積/体積)FBS。
- 37℃で一晩レトロウイルスプロデューサー細胞をインキュベートします。 ( - 3ドナーマウスの約2)1500万骨髄細胞のための1つの150 mmのプレートを見込んでいます。
8.レトロウイルス上清(1日目)
- 翌日(約24時間後)、10-mlの注射器およびフィルタは0.45を使用して150 mmのプレートのから直接レトロウイルス上清を描画することにより(ステップ7で設定)プロデューサープレートからのレトロウイルス上清を収穫-μmシリンジフィルター。
- 慎重に新鮮な完全DMEM 20%(体積/体積)FBSの18ミリリットルで削除されたレトロウイルス上清を交換してください。
- 、(G ml -1の20)IL-6(50グラムミリリットル-1)、MSCF(50グラムミリリットル-1)、ヘキサジメトリンブロミド(ポリブレン)(6&をIL-3で濾過レトロウイルス上清を補完#956; Gミリリットル-1)。
注:臭化ヘキサジメトリンは、レトロウイルス形質導入の有効性の低下を回避するために、2ヶ月ごとに新鮮されるべきです。
9.骨髄収穫(1日目)
- ステップ8.3が完了した後、ステップ6.4から骨髄細胞を採取し、無菌の50ml試験管に、非付着細胞を含有する培地を移します。
- 勢いよく10ミリリットルのPBSでプレートを洗浄し、ステップ9.1から50ミリリットルの円錐に集めます。必要に応じて、洗浄ステップを繰り返します。
- 遠心し、4℃で10分間、300×gで細胞、上清をデカント、小容量で再懸濁細胞(1〜3ミリリットル)完全DMEM 20%(体積/体積)FBS、およびカウントされます。サイトカインおよびヘキサジメトリンブロマイドを含むレトロウイルス上清の1ミリリットル当たり1×10 6個の細胞で、0日目に再懸濁し、骨髄から75%回復- 50を期待しています。
10.骨髄形質導入(1日目)
- レトロウイルス上清/骨ミリアンペアのプレート6ウェル組織培養プレート中にウェルあたり3 mlの容量でrrow混合物。ステップ10.2での遠心分離中のガス交換を最小限にするためにラップでプレートを包みます。
- 60分、37℃、1000×gで包まれた6ウェルプレートスピン。
- スピンが完了した後、ラップを除去し、24時間、37℃のCO 2インキュベーターでプレートを置きます。
11.レトロウイルス上清および形質導入(2日目)
- 24時間後、ウイルスプロデューサー細胞株からの新鮮なウイルス上清を収集します。 10-mlシリンジおよび0.45μmのシリンジフィルターを使用してレトロウイルス上清をフィルタリングします。 IL-3(20 gでミリリットル-1)、IL-6(50 gでミリリットル-1)およびSCF(50 gでミリリットル-1)および臭化ヘキサジメトリン(6グラムミリリットル-1)でろ過レトロウイルス上清を補います。
- 次に、注意深くピペットで除去または骨髄細胞を含む6ウェルプレートの各ウェルからのメディアのトップ2ミリリットル吸引。
注:作業は慎重に、通常、ウェルの中央に集中している骨髄を、吸引しません。あるいは、上清を除去したが、任意の失われた骨髄細胞を回収するためにスピンダウンすることができます。 - 骨髄6ウェルプレートの各に十分にはサイトカインおよびヘキサジメトリンブロマイドを含む新鮮なウイルス上清の3ミリリットルを追加します。プラスチックでプレートを包み、60分、37℃、1000×gでスピン伝達を繰り返します。プレートをアンラップし、37℃、5%CO 2で一晩(約24時間)で細胞をインキュベートします。
フレッシュ補充したDMEM(3日目)の12追加
- 24時間後、工程11.2と同様に、骨髄細胞を含む6ウェルプレートの各ウェルからのメディアのトップ2ミリリットル取り除きます。 (グラムml -1の50)、IL-3の最終濃度で補充し、新鮮なDMEM 20%(体積/体積)FBSを(20グラムミリリットル-1)を削除したメディアを交換して、IL-6(50グラムミリリットル-1)とSCF 。
- 骨髄をインキュベートさらに24時間、37℃のCO 2インキュベーターでプレート。
13.収穫形質導入骨髄(4日目)
- 24時間後、6ウェルプレートからの骨髄細胞を収集します。すべての非接着細胞を除去するためにPBSと激しくプレートを洗ってください。
- 4℃で10分間、300×gで細胞を遠心分離し、上清をデカントします。
- PBS + 0.5%(体積/体積)の少量(1ml)中の骨髄熱不活性化FBSを再懸濁します。細胞を氷上に保管してください。
- 各骨髄条件の10μlのサンプルを取り、ノイバウアー計数チャンバーを用いて細胞数を計測します。 1と仮定すると-受信者ごとに2ドナーを、収率がレシピエントマウスあたり少なくとも4×10 6個の細胞を転送するのに十分であろう。マウスあたり300μlの - 200を注入するために、PBS + 0.5%(容量/容量)熱不活性化FBSのに十分な量で骨髄を再懸濁します。
- 形質導入効率で、少なくとも2×10 6個の細胞を注入し25%の静脈内投与マウスあたり(8×10 6個の細胞まで注入することができます)。
注:私たちは日常的に骨髄細胞の2つの6ウェルプレートあたり5レシピエントマウスを注入します。収率は実質的に低い場合には、十分な骨髄数が得られるまで、より多くのドナーマウスを使用すべきです。最適な再構成を達成するために、少なくとも5×10 5の形質導入(蛍光陽性)各受信者に注入されるべきです。
- 形質導入効率で、少なくとも2×10 6個の細胞を注入し25%の静脈内投与マウスあたり(8×10 6個の細胞まで注入することができます)。
- マイクロピペットを用いて、各骨髄条件の10μlのサンプルを採取し、蛍光マーカー( 図1A)11の発現に基づいて、フローサイトメトリーにより形質導入効率を分析します。
注意:一般的に、蛍光陽性細胞のパーセンテージは、構築物およびレトロウイルスの力価に応じて、25%と70%の間です。サブ致死的照射マウスは形質導入効率に応じて変えることができる再構成するために必要な形質導入骨髄細胞の数。 TRAN下逆にsduction効率、必要以上の骨髄細胞と、骨髄形質導入効率が高い、再構成のために必要な細胞数が少ないです。 25%以下の導入効率は準最適であり、不十分な再構成および生存をもたらすことができます。最適な骨髄の回復及び形質導入効率を確保するために、新たに調製した組織培養培地およびサイトカインを使用します。 retrogenicシステムを活用した新たなTCRを発現させる場合、 生体内でのそのTCRの選択は不明です。各個々のTCRの親和性に依存して、胸腺および末梢T細胞発現におけるTCRの選択17を変化します。
14.マウスの照射、骨髄注入とケア
- 骨髄注入(ステップ13と同じ日)の前日、マウスを照射します。 scidマウス、300ラド); - / -マウス、500ラドRAG1 C57BL / 6マウス(および他の野生型株)、900ラド:以下の用量を使用してください。
- アモキシシリンに置きレシピエントマウス(50mg / kg /日)または照射前の別の抗生物質、水処理、および骨髄注射の後の最初の2週間は抗生物質を続けます。
注:最適な照射量は、経験的に決定されなければなりません。
- アモキシシリンに置きレシピエントマウス(50mg / kg /日)または照射前の別の抗生物質、水処理、および骨髄注射の後の最初の2週間は抗生物質を続けます。
- 注射のために、すぐに注射する前に、ブラント針を使用して、1-mlの注射器にステップ13.1から細胞をロードし、その後、空気塞栓症を避けるために、任意の空気を追い出す、注射のために27ゲージに針を変更します。熱マウス加熱ランプ下で静脈内にマウス当たり骨髄の0.2ミリリットルを注入。
注:細胞は、時間の任意の長さのために、注射器に座ってさせてはいけないか、細胞が沈降します。 - 彼らは健康を維持することを確実にするために、毎週マウスを監視します。
- 5の後- 6週間、GFP + /アメトリン+とTCRの共発現( 図1B)11に基づいて再構成をチェックするために、マウスを出血。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
結果
骨髄代表骨髄伝達図( 図1A)で尾静脈を静脈内に注入される前に、骨髄の形質導入効率を収穫骨髄の約10μLの100-μlに添加し、プロトコルのステップ13.3において確認されますPBSおよびアメトリン発現について分析しました。一般に、蛍光陽性細胞のパーセンテージは、構築物およびレトロウイルスの力価に応じて、25%と70%の間です。 6週間後、骨髄注射後、マウスを骨髄再構成( 図1B)を決定するために採血します。約末梢血25μlのは、赤血球を溶解し、抗TCRβで染色しました。 図2Bにおいて、全てのTCR陽性細胞が調和しアメトリン蛍光タンパク質を発現します。
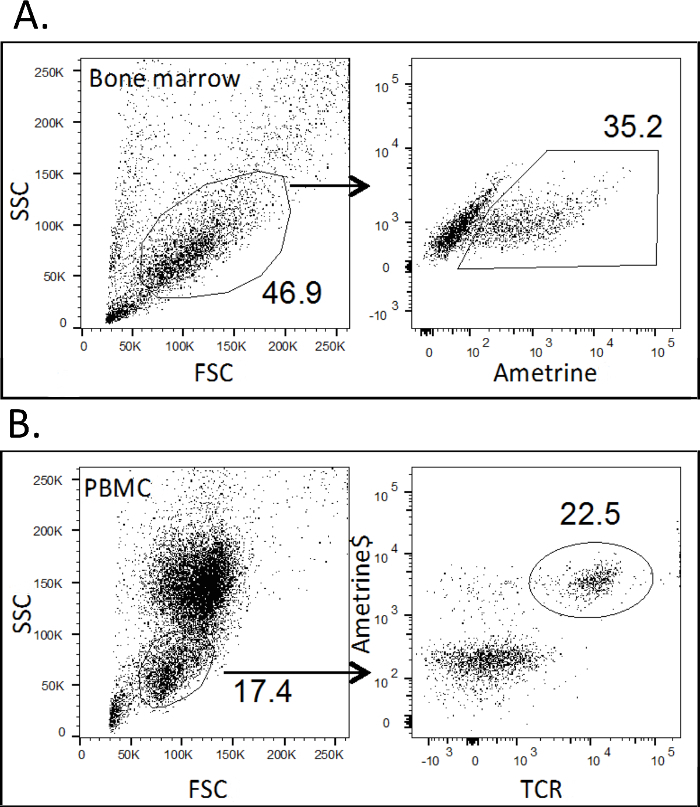
Figu骨髄細胞の1
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
ディスカッション
最適な骨髄健康、導入効率および再構成を確保するためのプロトコルでは、我々の詳細のいくつかの重要なステップ。最初の重要なステップが発生し、GP + E86ウイルス産生細胞の適切なメンテナンスです。使用初期継代のプロデューサー細胞株、使用前に80%の密集度以下に維持します。 48時間 - 新鮮GP + E86ウイルスプロデューサー細胞を作製すると、293T細胞は、継代早期および24のために文化の中で成長していることを確認します。形質導入ステップの間にあまりにも多くのGP + E86細胞をプレーティングすることはウイルス力価が低下します。 GP + E86は、堅牢なウイルス生産者であることを確認するためにホルストら 11に記載されているようにウイルス力価を決定します。さらに、収穫骨髄からの赤血球の除去は、形質導入効率を向上させます。骨髄前駆細胞の健康を確保することは、プロトコルの成功に不可欠です。この目的を達成するために、常に新鮮な培地(後のFCSを補充し、4℃で4週間未満)、新鮮なサイトカインを(あまり使用)4℃で保存し2週間以上。ヘキサジメトリンブロミドも分解に敏感であり、それは2ヶ月毎、解決策にな...
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
開示事項
利害の衝突が宣言されていません。
謝辞
この作品は、JDRF 1-FAC-2014から243-AN APF、ADA、BCMにおける糖尿病研究センター(P30-DK079638)のパイロット/フィージビリティプログラム、MLBにNIH(5K22A1119151-01と1R56DK104903-01)からの助成金によってサポートされていました1-15-JF-07、MBに免疫フェローシップ、およびロバートとジャニス・マクネア財団でAAI採用。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| DMEM、高グルコース+グルタミン | Corning Cellgro | 10-013-CV | 4.5 g/Lグルコース、L-グルタミン、ピルビン酸ナトリウム |
| FBS | アトランタバイオロジカル | S11550 | |
| プシン-バーセン | ロンザ | 17-161F | |
| 0.45 µm シリンジフィルター | Thermo Scientific | 194-2545 | |
| polybrene | Sigma | H9268-10G | 滅菌済み dH2O |
| シプロフロキサシン | VWR | AAJ61970-06 | |
| 5-フルオロウラシル (5-FU) | VWR | AAA13456-06 | |
| ピルビン酸ナトリウム | Corning Cellgro | 25-000-CI | |
| 非必須アミノ酸 | Corning Cellgro | 25-025-CI | |
| HEPES 1 M solution | Corning Cellgro | 25-060-CI | |
| 2-Mercaptoethanol | Gibco by Life Technologies | 21985-023 | |
| Pen/Strept | Corning Cellgro | 30-002-CI | |
| L-グルタミン | Corning Cellgro | 25-005-CI | |
| 150 mm 組織培養皿 | Greiner Bio-one | 639160 | |
| Tisue 培養処理 6 ウェル平板 | Greiner Bio-one | 657160 | |
| 70 µm ナイロン細胞ストレーナー | Falcon | 352350 | |
| マウス IL-3 | Invitrogen | PMC0033 | |
| ヒト IL-6 | Invitrogen | ||
| Mouse Stem Cell Factor | Invitrogen | PMC2113L | |
| 10x PBS | Corning Cellgro | 46-D13-CM | |
| HANKS バッファー | Corning Cellgro | 21020147 | |
| BD 10 ml シリンジ | BD | 300912 | |
| BD 1 ml シリンジ | BD | 309659 | |
| 27 G x 1/2 BD Precision Glide Needle | BD | ||
| 30G x 1/2 BD 精密グライドニードル | BD | 305106 |
参考文献
- Qi, Q., et al. Diversity and clonal selection in the human T-cell repertoire. Proceedings of the National Academy of Sciences of the United States of America. 111, 13139-13144 (2014).
- Zarnitsyna, V. I., Evavold, B. D., Schoettle, L. N., Blattman, J. N., Antia, R. Estimating the diversity, completeness, and cross-reactivity of the T cell repertoire. Frontiers in immunology. 4, 485(2013).
- Kisielow, P., Bluthmann, H., Staerz, U. D., Steinmetz, M., von Boehmer, H. Tolerance in T-cell-receptor transgenic mice involves deletion of nonmature CD4+8+ thymocytes. Nature. 333, 742-746 (1988).
- Hogquist, K. A., et al. T cell receptor antagonist peptides induce positive selection. Cell. 76, 17-27 (1994).
- Verdaguer, J., et al. Spontaneous autoimmune diabetes in monoclonal T cell nonobese diabetic mice. J Exp Med. 186, 1663-1676 (1997).
- Katz, J. D., Wang, B., Haskins, K., Benoist, C., Mathis, D. Following a diabetogenic T cell from genesis through pathogenesis. Cell. 74, 1089-1100 (1993).
- Pauza, M. E., et al. T-cell receptor transgenic response to an endogenous polymorphic autoantigen determines susceptibility to diabetes. Diabetes. 53, 978-988 (2004).
- Jasinski, J. M., et al. Transgenic insulin (B:9-23) T-cell receptor mice develop autoimmune diabetes dependent upon RAG genotype, H-2g7 homozygosity, and insulin 2 gene knockout. Diabetes. 55, 1978-1984 (2006).
- Kersh, G. J., et al. TCR transgenic mice in which usage of transgenic alpha- and beta-chains is highly dependent on the level of selecting ligand. Journal of immunology. 161, 585-593 (1998).
- Bettini, M. L., Bettini, M., Vignali, D. A. TCR retrogenic mice: A rapid, flexible alternative to TCR transgenic mice. Immunology. 136 (3), 265-272 (2012).
- Holst, J., et al. Generation of T-cell receptor retrogenic mice. Nat Protoc. 1, 406-417 (2006).
- Holst, J., Vignali, K. M., Burton, A. R., Vignali, D. A. Rapid analysis of T-cell selection in vivo using T cell-receptor retrogenic mice. Nat Methods. 3, 191-197 (2006).
- Bettini, M. L., Bettini, M., Nakayama, M., Guy, C. S., Vignali, D. A. Generation of T cell receptor-retrogenic mice: improved retroviral-mediated stem cell gene transfer. Nat Protoc. 8, 1837-1840 (2013).
- Donnelly, M. L., et al. Analysis of the aphthovirus 2A/2B polyprotein 'cleavage' mechanism indicates not a proteolytic reaction, but a novel translational effect: a putative ribosomal 'skip'. J Gen Virol. 82, 1013-1025 (2001).
- Atkins, J. F., et al. A case for "StopGo": reprogramming translation to augment codon meaning of GGN by promoting unconventional termination (Stop) after addition of glycine and then allowing continued translation (Go). RNA. 13, 803-810 (2007).
- Doronina, V. A., et al. Site-specific release of nascent chains from ribosomes at a sense codon. Mol Cell Biol. 28, 4227-4239 (2008).
- Bettini, M., et al. TCR affinity and tolerance mechanisms converge to shape T cell diabetogenic potential. Journal of immunology. 193, 571-579 (2014).
- Brehm, M. A., Wiles, M. V., Greiner, D. L., Shultz, L. D. Generation of improved humanized mouse models for human infectious diseases. J Immunol Methods. 410, 3-17 (2014).
- Brehm, M. A., Shultz, L. D., Greiner, D. L. Humanized mouse models to study human diseases. Curr Opin Endocrinol Diabetes Obes. 17, 120-125 (2010).
- Chaplin, P. J., et al. Production of interleukin-12 as a self-processing 2A polypeptide. J Interferon Cytokine Res. 19, 235-241 (1999).
- Collison, L. W., et al. The inhibitory cytokine IL-35 contributes to regulatory T-cell function. Nature. 450, 566-569 (2007).
- Holst, J., et al. Scalable signaling mediated by T cell antigen receptor-CD3 ITAMs ensures effective negative selection and prevents autoimmunity. Nature immunology. 9, 658-666 (2008).
- Kalos, M., et al. T cells with chimeric antigen receptors have potent antitumor effects and can establish memory in patients with advanced leukemia. Sci Transl Med. 3, 95ra73(2011).
- VanSeggelen, H., et al. T Cells Engineered With Chimeric Antigen Receptors Targeting NKG2D Ligands Display Lethal Toxicity in Mice. Mol Ther. 23, 1600-1610 (2015).
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
再版と許可
