Toxoplasma gondiiの薬剤耐性遺伝子を同定するために全ゲノム配列ベースの遺伝地図を用いたQTLマッピングをどのように使用することができるか、そしてこれがどのようにしてゲノム標的を効率的に編集するCRISPR / Cas9システム薬剤耐性遺伝子。
この記事について
サマリー
要約
科学的知識は、利用可能な技術と方法に本質的に関連している。この記事では、全ゲノム配列(WGS)ベースの遺伝地図を用いた定量的形質遺伝子座(QTL)マッピング法である Apicomplexan寄生虫Toxoplasma gondiiの薬剤耐性遺伝子の同定と検証を可能にする2つの方法と、 (CRISPR)/ Cas9ベースの遺伝子編集を行うことができる。 QTLマッピングのアプローチは、ゲノム領域と表現型との間に相関があるかどうかを試験することを可能にする。 QTLスキャンを実行するには、2つのデータセットが必要です。遺伝子地図は、その交配の子孫のそれぞれで評価された組換え交配子孫と定量可能な表現型の子孫に基づいています。これらのデータセットは、表現型と相関する有意な遺伝子座を同定するためにQTLスキャンを生成するR / qtlソフトウェアと互換性があるようにフォーマットされる。これは検索の幅を大幅に狭めることができますがQTLsは、原因遺伝子が同定される必要があるいくつかの遺伝子を含む領域に及ぶ。子孫のWGSを有することは、遺伝子レベルで原因となる薬物耐性突然変異を同定するために重要であった。同定されたら、候補突然変異は、薬物感受性寄生虫の遺伝子操作によって確認することができる。 T.ゴンジを遺伝的に改変する最も簡単で効率的な方法は、CRISPR / Cas9系である。このシステムは、単一のプラスミド上にコードされたわずか2つの成分、ゲノム標的に相補的な20bp配列を含む単一のガイドRNA(gRNA)および標的で二本鎖DNA切断(DSB)を生成するCas9エンドヌクレアーゼを含み、その修復は、破壊部位周辺の配列の挿入または欠失を可能にする。この記事では、シネフンギン耐性の原因遺伝子を確認し、トランスジェニック寄生虫を構築するために、CRISPR / Cas9ベースのゲノム編集ツールを使用するための詳細なプロトコルを提供します。
概要
宿主範囲は、寄生虫の蔓延の程度を決定する。いくつかの寄生虫は、それらが見つかった領域を限定する非常に特定のホスト要件を有し、他のものはジェネラリストである。そのような一般論者の 1人はToxoplasma gondii( T. gondii)である 。この寄生虫は、すべての哺乳類や多くの鳥に感染する可能性があるため、世界中で発見されています。人間も感受性があり、世界人口の約1/3が感染していると推定されています。幸いにも、頑強な免疫応答は通常、寄生虫の成長を制御するが、免疫系が損なわれた状況では、寄生虫は未検査で増殖して、しばしば脳炎を引き起こすことがある。以前に感染していない女性が妊娠中に感染した場合、寄生虫の広がりをすぐに制限するために免疫記憶がないため、この寄生虫は先天性疾患を引き起こす可能性があります。さらに、眼のトキソプラズマ症の負担があり、視力喪失の原因となります1 。これらのreasons T. gondiiは研究の焦点となり、その研究のために開発された多くの分子的方法のために、Apicomplexan寄生虫のモデルとなった。ここで議論される2つの方法は、定量的形質遺伝子座(QTL)マッピングおよびクラスター化された規則的にインターリーブされた短いパリンドローム反復(CRISPR)/ Cas9遺伝子編集である。 QTLマッピングおよびCRISPR / Cas9編集は、 T.ゴンディイ病原性遺伝子を同定および/または特徴付けするために以前の研究で用いられてきた順方向および逆方向遺伝子アプローチである。ここでは、これらの方法を組み合わせて、正弦波耐性(SNF r )遺伝子、TgME49_290860、およびそのオルソログ( SNR1として注釈付けられている) 2の機能を同定および確認する。
T.ゴンディイ(T. gondii)は多種多様な中間宿主に感染することができるが、生涯を完了するためには、腹腔内の上皮細胞を通過して感染する必要がある。猫は寄生虫の決定的な宿主で、予期せぬ段階が生じ、減数分裂による遺伝子組換えが起こる。 QTL試験を行うためには、遺伝的交雑を作成しなければならず、 トキソプラズマの場合、これは表現型特性が異なる2つの異なる寄生虫株(親染色剤)をネコに通して組換え子孫3を産生することを意味する。ネコに与えられる前に、親株は、子孫の二重薬剤選択による組換え体のより効率的な同定を可能にするために、別個の薬剤に対して耐性にされる。この目的のためにT.ゴンディイでは3つの薬物が使用されている。ウラシルホスホリボシルトランスフェラーゼ( UPRT )が耐性遺伝子5であるフルオロデオキシリボース(FUDR)、アデノシンキナーゼ( AK )が耐性遺伝子6であるアデノシンアラビノシド(ARA)、および耐性遺伝子が未知であるシネフンギン(SNF)いくつかの遺伝的交配がT. gondiiについて作成されたが、ME49-FUDR r X VAND-SNF r crossの24の子孫のみが全ゲノム配列決定(WGS) 8を用いて遺伝子型決定された。これは、VAND親が薬物感受性VAND(VAND-SNF s )株の化学的突然変異誘発によってシネフンギン耐性にされ、このVAND参照ゲノムはVAND- SNF s株は、子孫のシネフンギン耐性の一部をレンダリングした遺伝的な親VAND-SNF r突然変異を含む、子孫WGSとVAND-SNF の参照ゲノムとの間のすべての多型の同定を可能にする。
SNF r子孫における因果的一塩基多型(SNP)を同定するために、いくつかのコンピュータベースのオープンソースリソースを用いてデータを分析することができる。 ME49の遺伝地図を作成するには、FUDR r X VAND-SNF r交差REDHORSEソフトウェアスイート9は、遺伝的交叉のゲノム位置を正確に検出するために両親と子孫のWGSアライメントを使用するように開発されました。次いで、このマッピング情報を表現型データ(子孫におけるSNF r )と組み合わせて、R統計的プログラミングソフトウェアの「qtl」パッケージ10と互換性のあるデータセットをフォーマットすることができ、QTLスキャンを実行して、表現型。 QTL遺伝子座内に位置する因果的SNPを同定するために、VarScan mpileup2snp変種発病者プログラム12を用いてSNPを呼び出すことができるBowtie 2アライメントプログラム11を用いて、子孫のWGS読み取りをSinefungin感受性VANDゲノムに個々に整列させることができる。これらのSNPを用いて、QTL遺伝子座は、SNF rに存在する多型をスキャンすることができるが、SNF の子孫である。遺伝子のコード領域で同定された因果的SNPを用いて、候補SNF r遺伝子の遺伝子改変をSNF s株で行い、薬剤耐性機能を検証することができる。
Toxoplasma 13には 、最近CRISPR / Cas9ゲノム編集システムが確立されました。このシステムは、この寄生生物の複雑な生物学の探索のために、特に実験室ではない系統の遺伝学的研究のために重要なツールを追加しました。 WT Toxoplasma細胞における高度に活性な非相同末端結合(NHEJ)活性のために、外因的に導入されたDNAが非常に高い頻度でゲノムにランダムに組み込まれるため、標的化されたゲノム改変を達成することは困難である14 。遺伝子座特異的修飾の成功率を増加させるために、相同組換えの効率を増加させるために、および/または相同組換えの効率を増加させるために、e NHEJ活動15,16 。これらのアプローチの1つは、CRISPR / Cas9システムです。他の方法と比較して、CRISPR / Cas9システムは、サイト固有の改変を導入するのに効率的であり、設計が容易である13,17,18。さらに、それは寄生虫13,19に特別な変更を加えることなく、任意のトキソプラズマ株で使用することができる。
CRISPR / Cas9系は、 ストレプトコッカス・ピオゲネス ( Streptococcus pyogenes )の適応免疫系に由来し、それを用いてファージ20,21,22などの移動性遺伝子エレメントの侵入を防御する。このシステムは、RNA誘導DNAエンドヌクレアーゼ酵素Cas9を利用して二本鎖DNA切断(DSB)を標的に導入し、その後にrepa短い間違った突然変異を介して標的遺伝子を不活性化するためにエラーが起こりやすいNHEJによって、または設計された通り正確に標的遺伝子座を改変する相同性指向性組換えによって誘発される23,24 。標的特異性は、標的DNA22と100%相同性を有する個別に設計された20nt配列を含む単一ガイドRNA(gRNA)と名付けられた小型RNA分子によって決定される。 gRNA分子はまた、特別なProtospacer Adjacent Motif(PAM、配列は「NGG」) 25,26を含む標的部位にヌクレアーゼを誘導するCas9によって認識されるサインを含む。したがって、gRNA分子とPAM配列は共同してゲノム中のCas9切断部位を決定する。切断のために異なる部位を標的とするためにgRNA配列を容易に変更することができる。
CRISPR / Cas9システムがToxopで初めて開発されたときCasasヌクレアーゼを発現する単一のプラスミドおよびgRNA分子を用いて、標的部位13,17にDSBを導入した。 CRISPR / Cas9システムは、相同組換えだけでなく、外因性DNAの非相同性組み込みによって、部位特異的ゲノム修飾の効率を大幅に高めることが示されている13 。これは、NHEJ活性を含む野生型株においてこれを行う。したがって、このシステムは、効率的なゲノム編集のために本質的に任意のトキソプラズマ株で使用することができる。典型的な実験では、標的特異的CRISPRプラスミドおよび標的を改変するために使用されるDNA断片を寄生虫に同時トランスフェクトする。標的を改変するために使用されるDNA断片が標的座に対する相同配列を含む場合、CRISPR / Cas9によって導入されたDSBを修復するために相同組換えを用いて標的の正確な改変を可能にすることができる。一方、int生成されたDNA断片は相同配列を含まないので、依然としてCRISPR / Cas9標的部位に組み込むことができる。後者は、選択マーカーの挿入またはネガティブ選択を可能にする座位での突然変異体の補完によって遺伝子を破壊するためにしばしば用いられる13 。ここで、 SNR1遺伝子座は、CRISPR / Cas9が遺伝子破壊およびトランスジェニック寄生虫の作製にどのように使用され得るかを示す一例として役立つ。
プロトコル
1.ME49-FUDR r x VAND-SNF r Crossの子孫におけるSNF rを評価する
注: T.ゴンディイは偏性細胞内寄生虫であり、タキゾイト期は組織培養で容易に生育する。
- T. gondii寄生虫を成長させるために、37℃で10%ウシ胎仔血清(FBS)(D10培地)を添加したダルベッコ改変イーグル培地(DMEM)培地でT25フラスコに播種したコンフルエントなヒト包皮線維芽細胞(HFF) Cおよび5%CO 2を含む 。
注記: 補足ファイル1のプロトコル1.1注を参照してください。 - シネフンギン耐性のために個々の子孫クローンを試験するために、寄生虫の大部分が宿主細胞を溶解し始めるまで、T25 HFF培養フラスコ中で各クローンを高寄生虫密度まで2〜3日間増殖させる。
- 単層を細胞スクレーパーでかき集め、寄生虫溶液を10mLシリンジ/ 22Gの鈍い針に2〜3回通す。寄生虫を放出する宿主細胞を溶解する。溶液は、複数の針通路のために注射器に引き戻すことができる。
- HFF細胞および細胞破片を除去するために、3μmの孔サイズを有する膜を通して、新しい円錐管に寄生虫溶液を濾過する。
- 血球計数器で寄生虫を数え、1mLあたりの寄生虫の数を決定する。
- ピペッターを用いて、0.3μMの作用濃度のsinefungin薬物を含むD10培地を含む新しいT25 HFF培養フラスコに2.5×10 5個の寄生虫を通す。
- 寄生虫を7〜10日間37℃、5%CO 2で生育させます。
- シネフンギン薬の成長表現型の子孫をスコアリングする。単層を倒立位相差顕微鏡下で観察し、無成長(sinefungin感受性)についてスコア0、単層(sinefungin耐性)の成長および溶解についてスコア1。
注: 補足ファイル1のプロトコル1.8の注を参照してください。
2. RR / qtlにおけるSNF r表現型のQTLスキャン
注記: 補足ファイル1のプロトコル2の注を参照してください。
- Rプログラミング言語ソフトウェアをローカルコンピューターにインストールします。 27を参照してください。
- Rを実行し、パッケージ 'qtl'をインストールします。これは、R GUIインターフェースのオプション 'Packages-> Install package'から実行するか、またはRコマンド行から次のコマンドを実行してください(各例の最初の「>」記号は、コピー):
> install.packages( "qtl")
注:Rとqtlパッケージがインストールされたら、Rコマンドラインから、またはJ / qtl 28というグラフィカルユーザーインターフェイス(GUI)プログラムを使用して、R / qtlを実行する2つの方法があります。 / qtl。このプロトコルは、R / qtlコマンドライン構文を提供し、J / qtlの同等の機能を時折参照します。 - 'qtl'パッケージを読み込みます:
>ライブラリー(qtl)
注記:データセット形式とダウンロードについては、 補足ファイル1のプロトコル2.3を参照してください。 - R / qtlにデータセットファイルをロードします。
- "csv"形式(データファイル1を参照):
( "0"、 "1")、na.strings = c( " - ")> SNFR < - read.cross(format = "csv"、file = "$ PATH / Rqtl-SNFR.csv"、genotypes = c 、convertXdata = FALSE) - または "ゲーリー"形式(参照:データファイル2):
> SNFR < - read.cross(format = "gary"、dir = "$ PATH"、chridfile = "chrid.txt"、mnamesfile = "mname.txt"、mapfile = "markerpos.txt"、genfile = "genotype。 txt "、phefile =" phenos.txt "、pnamesfile =" phenonames.txt "、convertXdata = FALSE)
$ PATHは、qtlデータセットを含むファイルへのディレクトリパスです。例:/ Users / HotDiggityDog / QTLfiles
注:ファイルを読み込むこともできます'Insert Comment or Command'オプションを使用して以前のコマンドでJ / qtlに編集したり、GUIの 'File-> Load Cross Data'オプションでデータをロードします。
- "csv"形式(データファイル1を参照):
- マップの確率を計算する:
> SNFR < - calc.genoprob(SNFR、ステップ= 2.0、off.end = 0.0、error.prob = 1.0E-4、map.function = "haldane"、stepwidth = "fixed") - すべての染色体にわたってsinefungin耐性表現型のバイナリ分布を使用して1回のスキャンを実行する:
> SNFR.scan < - scanone(cross = SNFR、chr = c( "Ia"、 "Ib"、 "II"、 "III"、 "IV"、 "V"、 "VIIa"、 "VIIb" "、" XI "、" XII ")、pheno.col = c(1)、model =" binary "、method =" em ")
注:VIR表現型を実行する場合、 'model = "normal"'配布オプションを使用してください。 - 有意差の閾値を計算するために1000の順列を実行し、次にattr順列をSNFR.scan変数にibuteします。
> SNFR.scan.permutations < - scanone(cross = SNFR、chr = c( "Ia"、 "Ib"、 "II"、 "III"、 "IV"、 "V"、 "VI"、 "VIIa" 、 "model" = "binary"、method = "em"、n.perm = "1"、 " 1000、perm.Xsp = FALSE、詳細= FALSE)
> attr(SNFR.scan、 "pheno.col")< - c(1)
注:手順2.5から2.7は、「分析 - >メインスキャン - > 1つのQTLゲノムスキャンを実行する」オプションを使用してJ / qtlで実行できます。 - スキャン結果をプロットする:
>プロット(SNFR.scan、gap = 0、bandcol = "gray")
注記:J / qtlで作成されたプロットはインタラクティブです。- 最高のピークを有する染色体IXのスキャン結果をプロットする:
> plot(SNFR.scan、chr = c( "IX")、gap = 0、bandcol = "gray"、show.marker.names = TRUE)
- 最高のピークを有する染色体IXのスキャン結果をプロットする:
- 1回のスキャンでマーカーの位置とLODのスコアをすべて表示:
> SNFR.scan - 順列テストのしきい値結果を表示する:
>要約(SNFR.scan.permutations) - アルファ= .05のしきい値(以前の出力から取得)よりも大きいマーカのみを表示する:
> SNFR.scan [SNFR.scan $ lod> 2.68、] - 各染色体上で最高のLODスコアを持つマーカーを表示する:
>要約(SNFR.scan) - LODスコアの最大値を持つマーカーを表示する(前の出力から取得):
> SNFR.scan [SNFR.scan $ lod> = 6.57、]
注記: 補足ファイル1のプロトコル2.13注を参照。
3.子孫からのWGS読取りを用いた原因SNF r突然変異の同定
注記: 補足ファイル1のプロトコル3の注を参照してください。
- 個々の子孫のWGS読み取りをsinefunginに敏感なVANDに合わせる(VAND-SNF s )の親ゲノム。
注:NCBI Assembly AEYJ00000000.2からVANDリファレンスゲノム(SNF s )をダウンロードし、NCBI SRA PRJNA258152から24子孫のWGS読み込み(.sraファイル)。また、Bowtie2 11 、NCBI SRA Toolkit、SAMtools 30 、VarScan 12 、MUMmer 31のプログラムをダウンロードしてください。- bowtie2-buildプログラムを使用して、VANDリファレンスゲノムFASTAファイルからBowtie 2互換インデックスを作成します。ここでは、 "VAND"というインデックスが付けられています。
> bowtie2-build GCA_000224845.2_TGVAND_v2_genomic.fna VAND - fasts-dumpを使用してSRA形式のWGS読み込みファイルをFASTQファイルに変換します。ペアリングされた読み込みには--split-filesオプションを使用します(例:P1J4VBのSRR1555372.sraファイルが例として使用されます)。
> fastq-dump --split-files SRR1555372.sra
注:これを実行し、すべての24のプロトコル3.1の次のすべてのコマンド子孫。 - bowtie2を使用してWGS読み取りを参照ゲノムに整列させ、SAM(.sam)ファイルと--end-to-endオプションへの出力を行います。
> bowtie2 -x VAND-1 SRR155372_1.fastq -2 SRR1555372_2.fastq -S SRR155372.sam --end-to-end - .samファイルをBAM(.bam)ファイルに変換します。
> samtoolsの表示-bS SRR155372.sam> SRR155372.bam - .bamファイルをソートする:
> samtools sort SRR155372.bam SRR155372.sort - ソートされた.bamファイルのインデックスを作成する:
> samtoolsインデックスSRR155372.sort.bam
- bowtie2-buildプログラムを使用して、VANDリファレンスゲノムFASTAファイルからBowtie 2互換インデックスを作成します。ここでは、 "VAND"というインデックスが付けられています。
- VarScanを使用して子孫のSNPを呼び出す
注記: 補足ファイル1のプロトコル3.2注を参照してください。- VANDゲノム参照ファイル、すべての子孫.sort.bamファイルを含むsamtools mpileupを使用して、すべての索引付きBAM(.sort.bam)ファイルを1つのファイル形式のファイルに変換し、AllProgeny-mpileup.txtという名前のファイルに出力します。
> samtools mpileup -f GCA_000224845.2_TGVAND_v2_genomic.fna SRR1555599。ソート.bam SRR1555372.sort.bam SRR1555660.sort.bam SRR1555672.sort.bam SRR1556052.sort.bam SRR1556122.sort.bam SRR1556192.sort.bam SRR1556194.sort.bam SRR1556195.sort.bam SRR1556199.sort.bam SRR1556200。ソート.bam SRR1556202.sort.bam SRR1556203.sort.bam SRR1556274.sort.bam SRR1556276.sort.bam SRR1556278.sort.bam SRR1556395.sort.bam SRR1556396.sort.bam SRR1556397.sort.bam SRR1556398.sort.bam SRR1556399。 sort.bam SRR1556400.sort.bam SRR1556401.sort.bam SRR1556402.sort.bam> AllProgeny-mpileup.txt - AllProgeny-mpileup.txtファイルを使用してVarScan mpileup2snpプログラムを使用してすべてのSNPを呼び出す。最小読み取りカバレッジは5、最小読み取り頻度は.8、最小P値は.01、ファイル名AllProgeny-SNPに出力する。 TXT:
> java -jar VarScan.jar mpileup2snp AllProgeny-mpileup.txt --min-coverage 5 - min-var-freq .8 --p値.01> AllProgeny-SNPs.txt
注:AllProgeny-SNPs.txtファイルは、プロトコル3.4で使用されるタブで区切られたテキストファイルです原因のSNP。
- VANDゲノム参照ファイル、すべての子孫.sort.bamファイルを含むsamtools mpileupを使用して、すべての索引付きBAM(.sort.bam)ファイルを1つのファイル形式のファイルに変換し、AllProgeny-mpileup.txtという名前のファイルに出力します。
- ME49に基づくQTL遺伝子座の座標に対応するVANDゲノム座標を見つける
注記: 補足ファイル1のプロトコル3.3の注を参照してください。- MUMmer nucmerプログラムを使用してME49ゲノム(ToxoDB.org 32からダウンロード可能)とVAND参照ゲノムファイルを整列させます(出力はout.deltaファイルに送られます)。
> nucmer ToxoDB-28_TgondiiME49_Genome.fasta GCA_000224845.2_TGVAND_v2_genomic.fna - MUMmer show-coordsプログラムを使用して、ME49vsVAND-coords.txtという名前のファイルに出力された2つのゲノムアライメントの座標を取得します。
> show-coords out.delta> ME49vsVAND-coords.txt
注:ME49vsVAND-coords.txtファイルを使用して、QTL遺伝子座に対応するVANDコンティグおよび位置を見つけることができます。 ME49染色体IX上に位置するMV359〜MV366のマーカーは、3,187,537〜4,202,258bpである。 correspondingpにまたがる2つのVANDコンティグがありますQTL遺伝子座上に存在する。 KN044604.1:657,441-1 bpおよびKN042501.1:430,910-41,870 bp(両方のコンティグはME49染色体と逆に整列する)。
- MUMmer nucmerプログラムを使用してME49ゲノム(ToxoDB.org 32からダウンロード可能)とVAND参照ゲノムファイルを整列させます(出力はout.deltaファイルに送られます)。
- SNF r子孫でのみ継承されたSNPについてQTL遺伝子座内に位置する子孫SNPを評価する
注記: 補足ファイル1のプロトコル3.4の注を参照。- データファイル3をレビューして、QTL遺伝子座内に位置する因果的突然変異を同定する。 SNF r子孫がSNPを有し、SNF が存在しないパターン(子孫SNPがVAND-SNF の参照ゲノムとの比較によって得られたものであるため)がデータをスキャンする。これは、VAND contig KN042501.1上の348130位のこのパターンで1つの位置にのみ生じるはずです。
- データファイル3の行6604を参照してください( 図3 )。
注記: 補足ファイル1のプロトコル3.4.2を参照してください。
4. CRISPR / Cas9による同定されたヒットの検証 -遺伝子仲介による遺伝子不活性化。
注:QTLマッピングおよびWGS SNP分析によって同定された因果的SNPを確認するためには、対応する遺伝的変化をWT SNF のバックグラウンドで行い、結果として生じる表現型を調べる必要があります。シネファンギン耐性の場合、責任ある突然変異は、早期終了2によりSNR1遺伝子の不活性化をもたらす。したがって、確認のためにSNR1を中断することができます 。ここでは、CRISP / Cas9誘導indel変異を用いてSNR1を破壊し、sinefungin耐性に関与することを証明するための詳細なプロトコールを提供する( 図4 )。
- SNR1特異的CRISPRプラスミド構築
注:プラスミドおよび地図を得るためには、 補遺ファイル1のプロトコル4.1の注を参照のこと。- ToxoDB 32から標的遺伝子( SNR1 、TGME49_290860)のゲノム配列を取得する。
- E-CRISP 33などのオンラインツールを使用して、標的特異的gRNAを設計する。 gRNAにPAM配列(NGG)を含めないでください。
注記: 補足ファイル1のプロトコル4.1.2を参照してください。 - 標的特異的CRISPRプラスミドを構築するためにプライマーを合成する。
- ステップ4.1.2の設計によれば、2つのプライマーを合成して、元のCRISPRプラスミドのUPRTターゲティングgRNAを、部位特異的突然変異誘発によって選択されたgRNA配列に変化させる。
注:これらの2つのプライマーの配列は、gRNA-Fw:NNNNNNNNNNNNNNNNNNNNGTTTAGAGCTAGAAATAGC(N20は標的特異的gRNA配列)およびgRNA-Rv:AACTTGACATCCCCATTTAC2である。
- ステップ4.1.2の設計によれば、2つのプライマーを合成して、元のCRISPRプラスミドのUPRTターゲティングgRNAを、部位特異的突然変異誘発によって選択されたgRNA配列に変化させる。
- 部位特異的突然変異誘発反応を行う。
- テンプレートとしてCRISPRを標的とするUPRTプラスミド(pSAG1 :: CAS9-U6 :: sgUPRT)および上記の2つのプライマーを使用して、部位特異的突然変異誘発反応製造元の説明書に従って。
注:PCRには以下のサイクリング条件を使用してください:98℃で1分間、次に98℃で10秒間、55℃で30秒間および72℃で5分間のサイクルを25サイクル、その後2分間の最終伸長72℃で保存した。
- テンプレートとしてCRISPRを標的とするUPRTプラスミド(pSAG1 :: CAS9-U6 :: sgUPRT)および上記の2つのプライマーを使用して、部位特異的突然変異誘発反応製造元の説明書に従って。
- GOI特異的CRISPRプラスミドを含む突然変異誘発産物を、供給者のプロトコル( 表の表を参照)に従って化学的形質転換により大腸菌コンピテント細胞に形質転換する。 37℃でアンピシリン(100μg/ mL)を含む溶菌液(LB)プレート上で形質転換体を増殖させる。続いて、2-4クローンを選択し、100μg/ mLアンピシリンを補充した5mL LB培地中で12〜16時間、それらを個々に増殖させる。
- DNA単離キットを使用して培養物からプラスミドを抽出し、DNAゲル電気泳動によりそれらを分析してプラスミドのサイズを確認する(予想されるプラスミドサイズは9674bpであり、オリジナルのCRISPRプラスミドをcオン)。 M13-Revプライマー(5'-CAGGAAACAGCTATGACC)を用いてプラスミドを配列決定し、標的特異的gRNA配列を確認する。
- 陽性クローンが同定されたら、プラスミドDNAを-20℃で保存し、対応する細菌培養物を-80℃で保存してください。
注:トランスフェクションに使用するCRISPRプラスミドは、脱イオン水に溶解し、濃度は分光光度法または別の方法で測定する必要があります。
- 陽性クローンが同定されたら、プラスミドDNAを-20℃で保存し、対応する細菌培養物を-80℃で保存してください。
- DNA単離キットを使用して培養物からプラスミドを抽出し、DNAゲル電気泳動によりそれらを分析してプラスミドのサイズを確認する(予想されるプラスミドサイズは9674bpであり、オリジナルのCRISPRプラスミドをcオン)。 M13-Revプライマー(5'-CAGGAAACAGCTATGACC)を用いてプラスミドを配列決定し、標的特異的gRNA配列を確認する。
- 寄生虫トランスフェクション。
注:D10培地中のHFF細胞においてT.ゴンディイを培養する一般的な方法は、以前に記載されている34 。- トランスフェクションの2〜3日前に、70〜80%のHFF細胞を達成するために、コンフルエントHFF細胞単層(1型株については0.5〜1×10 6 、他の株については1〜2×10 6 )を含むT25フラスコに十分な寄生虫を加える2〜3日以内に溶解する。
- ExamiHFF単層が寄生虫によって70〜80%溶解されるとき、逆位相差顕微鏡下で培養物を培養する。ピペットで培地を静かに除去し、細胞を5mLのcytomix緩衝液(120mM KCl、0.15mM CaCl 2、10mM K 2 HPO 4 / KH 2 PO 4 pH = 7.6,25mM HEPES、2 mM EDTA、5mM MgCl 2 、pH = 7.6)で洗浄した。続いて、寄生虫溶液を15mLコニカルチューブに移す。
注記: 補足ファイル1のプロトコル4.2.2を参照してください。 - 寄生虫溶液を10mLシリンジ/ 22G鈍い針に2〜3回通す。
- HFF細胞および細胞破片を除去するために、3μmの孔サイズを有する膜を通して、新しい円錐管に寄生虫溶液を濾過する。
- 濾過した寄生虫を400xgで10分間遠心分離してペレット化する。
- 上清を取り除き、10mLのcytomix緩衝液で沈殿した寄生虫を再懸濁し、10μLのアリコートをdetヘモサイトメーターで寄生虫の濃度を決定し、400×gで10分間遠心分離して残りのペレットをペレット化する。
- 上清を除去し、4×10 7寄生虫/ mLの密度を得るために、細胞ミックス緩衝液中でペレットを再懸濁する。
- 4 mmギャップのキュベットに、7.5μgのCRISPRプラスミド、6μLのATP(100 mM)、6μLのグルタチオン(GSH)(250 mM)を含む250-300μLの寄生虫溶液(1-1.3×10⁷個の寄生虫)を混合する。
- 寄生虫を電気穿孔する35 。 CRISPプラスミドを標的とするUPRTなどの他の場所をCRISPRプラスミドが標的とする陰性対照として、別のエレクトロポレーションを含める。
注:エレクトロポレーションの設定はデバイスによって異なります。材料に記載されているエレクトロポレーターについては、4 mmギャップキュベットを使用します。次のプロトコルを推奨します:1,700 V、パルス長176μs、100 ms間隔で2パルス。
- 正弦波抵抗の周波数を決定するCRISPRターゲティング後にnce。
- HFF細胞をエレクトロポレーションの前に24ウェルプレートに3〜4日間置いたカバーガラスに接種し、4.2でトランスフェクションを行う時間までにコンフルエントになるようにする。
- 1つのコンフルエントなT25フラスコからHFF細胞をトリプシン処理し、続いて12mLのD10培地を添加し、よく混合する。
- 24ウェルプレートの各ウェルにカバースリップを加え、各ウェルに500μLのHFF細胞溶液を分注する。細胞をコンフルエントになるまで増殖させるために、プレートを37℃で3〜4日間インキュベートする。
注:1つのT25フラスコからの細胞は、1つの24ウェルプレートを播種するのに十分です。 - コンフルエントHFF細胞を播種したカバースリップを含む24ウェルプレートの1つのウェルに、ステップ4.2.9からエレクトロポレーションした寄生虫溶液50μLを添加する。コンフルエントHFF細胞を播種したT25フラスコにエレクトロポレーションした寄生虫溶液の残りを移す。
- トランスフェクションの効率を評価する。
- 24ウェルプレート中で24時間培養する。その後、細胞(宿主細胞および寄生虫)を500μlの4%ホルムアルデヒドで固定して、免疫蛍光アッセイ(IFA)によるCas9-GFPの発現を調べた。
- 細胞を、抗GFP抗体およびトキソプラズマ特異的抗体(例えば、抗TgALD)でプローブして、全寄生虫を標識する。推奨希釈液については、抗体製品シートを参照してください(通常、IFAの場合は1:1,000で十分です)。抗体がコンジュゲートしていない場合は、一次抗体を標識するために蛍光色素と結合した2つの異なる二次抗体を使用する。
- 二次蛍光色素に適したフィルターを用いて蛍光顕微鏡で標識細胞を観察する。 GFP陽性寄生虫の数を全寄生虫の数で割ることにより、トランスフェクション効率を得る。
注:IFAに使用される2つの抗体は、例えば、マウス抗GFPとウサギ抗TgALDとの組み合わせを用いて、2つの異なる宿主種に由来するはずである。
- fを決定するトランスフェクトされた寄生虫におけるシネフンギン耐性の必要性。
- T25フラスコで培養されたトランスフェクトされた寄生虫については、天然の出芽まで2〜3日間成長させる。その後、寄生虫を収集し、鈍いニシン溶菌宿主細胞を細胞内寄生虫を放出させ、そしてそれらを3μmの孔サイズを有する膜を通す濾過によって精製する。密度を推定するために、血球計数器で寄生虫を数える。
- コンフルエントなHFF細胞を播種した6穴プレートに精製寄生虫を加える:最初の列(3ウェル)に200の寄生虫/ウェルを加え、それらを通常のD10培地(2mL /ウェル)で増殖させる。 2列目には5000個の寄生虫を加え、0.3μMのシネフンギンを含むD10培地で増殖させます。
- プレートを5%CO 2インキュベーターに入れ、37℃で8〜10日間、寄生虫を成長させ、プラークを形成させる。サンプルを70%エタノール(2mL /ウェル)で固定し、0.1%クリスタルバイオレット(2mL /ウェル)で単層を染色する。水で井戸を洗って可視化する寄生虫の成長によって形成されたプラーク(透明帯)。
注:ネガティブコントロールは、同じ方法で並べて処理する必要があります。
- CRISPR誘導シネフンギン耐性の割合を計算する。
- 薬物を含まないウェルからのプラークの平均数(X)を求め、寄生虫の生存率をX / 200として計算する。シネファンギンを含むウェルからのプラークの平均数(Y)を得て、以下のようにCRISPR誘導シネフンギン耐性の割合を計算する:
CRISPR誘導抵抗率= 200×Y /(5000×X×トランスフェクション効率)
注:トランスフェクション効率は4.3.2から得られます。
- 薬物を含まないウェルからのプラークの平均数(X)を求め、寄生虫の生存率をX / 200として計算する。シネファンギンを含むウェルからのプラークの平均数(Y)を得て、以下のようにCRISPR誘導シネフンギン耐性の割合を計算する:
- HFF細胞をエレクトロポレーションの前に24ウェルプレートに3〜4日間置いたカバーガラスに接種し、4.2でトランスフェクションを行う時間までにコンフルエントになるようにする。
- CRISPR / Cas9によって誘発されたindel突然変異を調べる
- 37℃で2日間、HFF細胞を播種したT25フラスコ中で、セクション4.2.9からエレクトロポレーションされた寄生虫を増殖させる。次に、培地を、0.3μMのシネフンギン(選択培地)。
- 耐性プールが安定するまで(ネガティブコントロール群では寄生虫の増殖がないが、実験群では強力な寄生虫の増殖によって示される)、少なくとも3継代の間、寄生虫を選択培地に保つ。
- クローン株を得るために、シネフンギン耐性プールをサブクローン化する。
- 新しく寄生した寄生虫を集め、3μm膜濾過で精製し、D10培地150μL中のコンフルエントなHFF細胞を播種した96ウェルプレートにサブクローニングする。プレートを乱すことなく37℃で7-10日間CO 2インキュベーター内でサブクローニング培養物を増殖させる。
注記: 補足ファイル1のプロトコル4.4.2.1を参照してください。
- 新しく寄生した寄生虫を集め、3μm膜濾過で精製し、D10培地150μL中のコンフルエントなHFF細胞を播種した96ウェルプレートにサブクローニングする。プレートを乱すことなく37℃で7-10日間CO 2インキュベーター内でサブクローニング培養物を増殖させる。
- 倒立位相差顕微鏡下で96ウェルプレートをチェックして、1つのプラークのみを含むウェルを探す。そのような井戸に印を付け、その後、ピペットを用いてHFF細胞を播種した24ウェルプレートに各ウェルから細胞を移す。 <ウェルのHFF細胞の80〜90%が溶解されると、寄生虫(約500μL)を回収し、50μLの寄生虫溶液を新しいウェルに移して株を維持する。 PCR増幅のためにゲノムDNAを抽出するために、残り(約450μL)を使用する。
- SNF rクローンからのゲノムDNA単離のために、1000xgで10分間、寄生虫をペレット化する(少量のHFF細胞汚染が許容される)。沈殿した寄生虫をリン酸緩衝生理食塩水(PBS)で1回洗浄し、再びペレットにします。市販のキットを使用して、または沸騰させることにより、ペレット化細胞からゲノムDNAを単離する。寄生虫を50〜100μLのPBSで再懸濁する。
注:シーケンシングのためにSNR1遺伝子の断片を得るためにPCRを行う。以下のプライマーを使用して、SNR1遺伝子座2を増幅する:SNR1-Amp-Fw:5'CCGACCACAACAATTTTCおよびSNR1-Amp-Rv:5'GACGTGATTCACTTTTTACACACACAC。高忠実度のDNAポリメラーゼを使用してください。制御目的のためにWT遺伝子座を増幅する。 - tを実行する20μLの反応容量でPCRを行い、98℃で1分間、次に98℃で10秒間、55℃で30秒間および72℃で2.5分間の30サイクル、続いて72℃で2分間の最終伸長。
注:以下のプライマーを使用してPCR産物を配列決定します。SNR1-Seq1: 、SNR1-Seq4:5 'CTC TCC CGC GGT CGA G、SNR1-Seq5:5' GCA CCG TCC GCA AGC、およびSNR1-Seq6:5 'CCG GAA GGT GAA TCG TTC TTC。 - 配列アライメントツールを用いて、シネフンギン耐性突然変異体からのSNR1遺伝子の配列とWT株のSNR1遺伝子の配列とを比較する。
注: SNR1遺伝子座での遺伝子相補またはトランスジェニック株構築のためのネガティブ選択の利用の詳細については、 補足ファイル2プロトコール5を参照のこと。
- 37℃で2日間、HFF細胞を播種したT25フラスコ中で、セクション4.2.9からエレクトロポレーションされた寄生虫を増殖させる。次に、培地を、0.3μMのシネフンギン(選択培地)。
結果
この記事では、薬剤耐性の原因となる遺伝子を同定するために連続して使用できるいくつかの方法について詳しく説明します( 図1 )。 ME49-FUDR r X VAND-SNF r crossの24子孫を、プロトコール1に記載されているように、薬剤sinefunginに対する耐性について評価した。遺伝地図および子孫のSNF r表現型を用いて、QTLスキャンをR / qtl - プロトコル2( 図2 )。これにより、約1Mbpにわたる第IX染色体上に1つの有意なピークが得られた。因果的変異が存在するのはこの領域にある。
因果的突然変異を同定するために、子孫からのWGS読み取りを、Bowtie2-Protocol 3.1を用いてVAND-SNF の参照ゲノムに整列させ、VarScan mpileup2snp-Protocol 3.2を用いてSNPを呼び出し、VANDゲノムのQTL遺伝子座をMUMmer- Protoc3.3。 QTL遺伝子座内の子孫SNPを抽出し、SNF r子孫がSNPを有しSNF が存在しないパターンについてスキャンした。これは子孫SNPがVAND-SNF の参照ゲノムと比較して得られたためである( 図3 ) 。 SNR1と名付けられた推定上のアミノ酸トランスポーター遺伝子に早期終止コドンをもたらすこのパターンと一致するSNPは1つだけであった。
SNR1がSNF r耐性遺伝子であることの確認は、CRISPR / Cas9系を用いて行った。 T. gondii遺伝子編集のために設計された新しいCRISPR / Cas9プラスミドを、子孫プロトコール4( 図4A )で同定されたSNF r突然変異付近のSNR1遺伝子を標的とするgRNAを含むように作製した。 SNR1標的CRISPR / Cas9プラスミドをSNF s WT寄生虫株に電気穿孔し、耐性変異体を得た0.3μMのシネフンギン中に固定した。 CRISP / Cas9プラスミドを標的とするUPRTで電気穿孔した場合、SNF r寄生虫は得られなかった。いくつかのSNF r CRISPR突然変異体をクローニングし、 SNR1 gRNA標的周辺の領域を配列決定した。各変異体は、 SNR1遺伝子のコード配列を破壊するindelを有していた( 図4B )。この方法は、NHEJ( 図5)またはHR( 図6 ) - 補足ファイル2を介してSNR1遺伝子座に標的化構築物を挿入するためにも使用することができる。
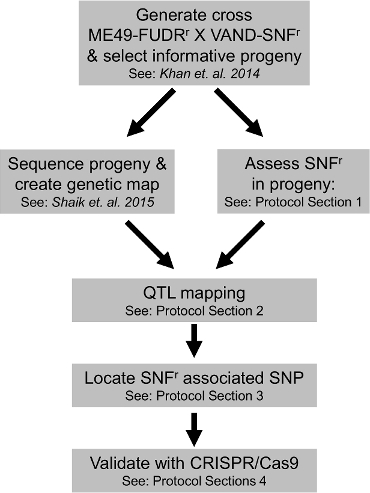
図1:プロトコルで概説された実験のための回路図ワークフロー ME49-FUDR r X VAND-SNF rクロスを用いてSNF r遺伝子を同定し、確認するための主なステップは、tに概説された適切なプロトコールを参照して示される彼の記事この図の拡大版を見るには、ここをクリックしてください。
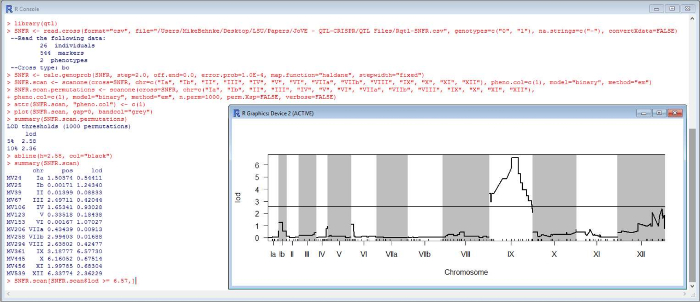
図2:SNR r表現型でQTLスキャンを実行するためのR / qtlコマンドプロトコル2で概説されたコマンドは、qtlパッケージを使用してRで実行されました。代表的なコマンドとプロットが表示されます。 この図の拡大版を見るには、ここをクリックしてください。
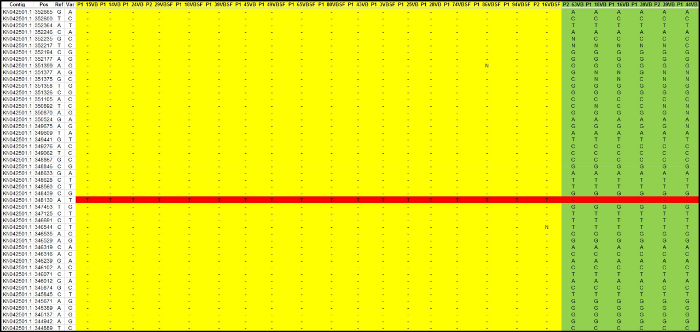
図3:原因SNPの位置。子孫のWGS読み取りは、Bowtie 2を用いたVAND-SNF の参照ゲノムに整列され、SNPはVarScanと共に呼び出され、対応 MUMmerで同定されたVAND QTL遺伝子座。 QTL遺伝子座内に位置するSNPをスプレッドシートにインポートし、原因のSNPを同定した。 SNF r子孫(黄色)、SNF s子孫(緑色)、SNF r SNP(赤色)( データファイル3参照)。 この図の拡大版を見るには、ここをクリックしてください。
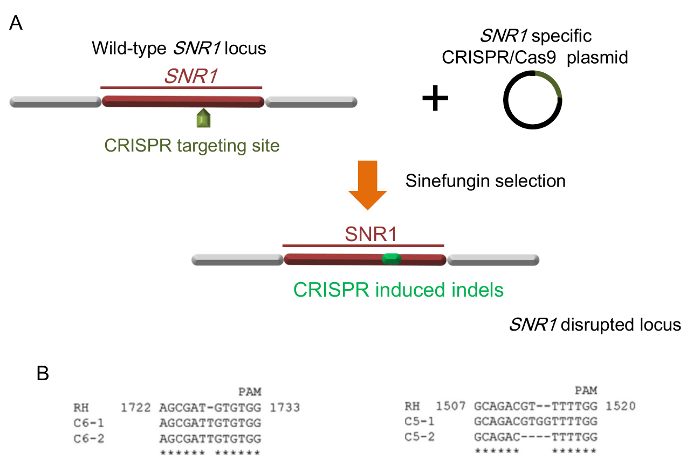
図4:CRISPR / Cas9を用いたSNF r遺伝子としてのSNR1の確認。 ( A )CRISPR / Cas9は、 SNR1遺伝子座におけるindel突然変異(緑色)を誘導した。 ( B )2つの異なるSNR1特異的CRISPRプラスミド(それぞれC5およびC6)に起因するSNR1の代表的なindels。 RHはWT株であり、C5およびC6はSNF r変異体である。 (Bは参考文献s = "xref"> 2)。 この図の拡大版を見るには、ここをクリックしてください。
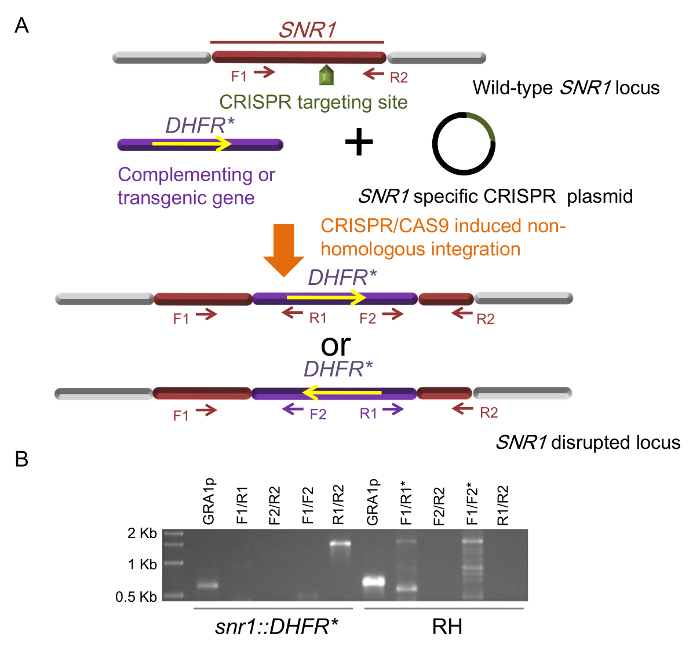
図5. CRISPR / Cas9を用いた挿入突然変異誘発。 ( A )CRISPR / Cas9媒介性部位特異的組込みによって、 SNR1遺伝子座に相補的またはトランスジェニック遺伝子を挿入する。挿入されたDHFR * mini遺伝子の2つの可能な向き、および同定のために使用されるプライマー、F1 / 2およびR1 / 2は、診断PCRにおいて使用されるオリゴのプライミング部位を表す。 ( B )1つのsnr1 :: DHFR *クローンRHの診断PCRをWT対照として使用する。 GRA1pのPCRは、鋳型としてのゲノムDNAの品質をチェックする対照として含まれる。アスタリスクは、非特異的なバンドを有するレーンを示す(図5Bは参照番号ce 2 )。 この図の拡大版を見るには、ここをクリックしてください。
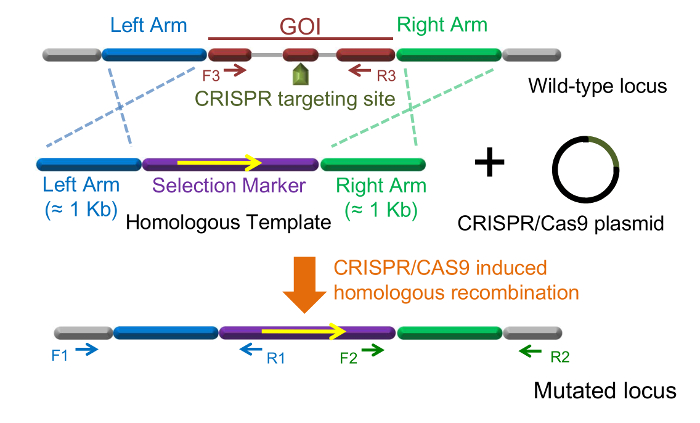
図6: CRISPR / Cas9を用いた遺伝子ノックアウト。 T. gondiiにおけるCRISPR / Cas9媒介相同遺伝子置換の古典的なデザイン。この場合、挿入された導入遺伝子の向きは固定されている。 F1 / R1、F2 / R2およびF3 / R3は、診断用PCRで使用されるオリゴのプライミング部位を表す。 この図の拡大版を見るには、ここをクリックしてください。
データファイル1:ME49-FUDR r X VAND-SNF r クロスファイルfR / qtl、 "csv"形式で使用してください。 format = "csv"オプションを指定してR / qtlにロードできる.csvファイル。 このファイルをダウンロードするにはここをクリックしてください。
データファイル2:(chrid txt、genotype txt、markerpos.txt、mname.txt、phenonames.txt、およびphenos.txt)。 ME49-FUDR r X VAND-SNF r R / qtlの "gary"形式で使用するクロスファイル。 6つの.txtファイルで、R / Qtlにformat = "gary"オプションでロードすることができます。 このファイルをダウンロードするにはここをクリックしてください。
データファイル3. SNF全体にわたる子孫SNPを含むスプレッドシート r QTL遺伝子座。子孫SNPを含むワークシート1枚と、親の表現型データと十字架の子孫を含む第2のワークシートが含まれています。 このファイルをダウンロードするにはここをクリックしてください。
補足ファイル1:追加のプロトコルの詳細。 このファイルをダウンロードするにはここをクリックしてください。
補足ファイル2:プロトコール5 - 遺伝的相補またはトランスジェニック株構築のため の SNR1 遺伝子座 における負の選択の利用 。 このファイルをダウンロードするにはここをクリックしてください。
ディスカッション
これらのプロトコールは、組み合わされたときに、 T.ゴンディイにおける薬剤耐性遺伝子の同定を可能にするいくつかの方法を提示する。とりわけ2つは、QTLマッピングの比較的味付けされた方法と、最近開発されたCRISPR / Cas9遺伝子編集方法と、プロジェクトにとって不可欠であった。 LanderとBotsteinは1989年に影響を受けた論文を発表し、遺伝子座と表現型を関連付けるQTLマッピングを示した36 。最近では、DoundaとCharpentierはStreptococcus pyogenes 22のCRISPR / Cas9編集システムを、 T. gondii 13,17を含む多くの異なるモデルの遺伝子ツールとして迅速に適合させたと説明しました。どちらの方法も有用であり、QTLマッピングは、WGSベースのSNP検出を用いて最終的に同定された薬物耐性突然変異を含む遺伝子座を定義し、CRISPR / Cas9編集は、 SNR1がシネフンギン耐性遺伝子であることを確認するためのものである。
ME49-FUDR r X VAND-SNF r cross 8はもともとビルレンス表現型19を調べるために開発されたものであるが、親株にはVAND親のSinefungin耐性の原因遺伝子が知られていない追加の表現型の相違も起こった。これは、親のさらなる表現型の相違が観察されたときに再利用できるという点で、十字架の1つの利点を強調する。これは毒性に関与するいくつかの遺伝子が複数の表現型37,38,39,40をマッピングすることによって見出された別のToxoplasma cross、type 2 x type 3の場合であった。今日までに、4つの異なるT.ゴンジイ十字が記述され、表現型の原因となる遺伝子遺伝的根拠が未知である新しい表現型をマッピングするために再利用される可能性のある8,37,41,42を含む。これらの系統に沿って、既知の全体的な遺伝的多様性を表す62のT.ゴンディイ株のゲノムが配列決定された( 43) 。興味深い表現型が異なる系統について、このプールから新たな十字架を作ることができた。 QTLマッピングの利点を賞賛したので、クロスを生成することは軽微なものではないと言わざるを得ない。因果遺伝子を同定するために使用できる他の方法がある。 1つの強力な技術は、化学的突然変異誘発を用いて表現型についてスクリーニングされ得る突然変異体を作製する。因果遺伝子を見つけるために、突然変異体をコスミドライブラリ44で補完するか、またはゲノム再配列決定法を用いて原因突然変異45を見つけることができる。モーこのことについては、Coleman らによる2つのJoVEの記事を参照してください。およびWalwyn らこれらのアプローチの概要46,47 。
因果的SNF r突然変異(プロトコル2および3)の同定につながる多くのステップは、学術的に自由に利用できるソフトウェアで実施される計算方法に依存している。各ステップの詳細なコマンドが提供され、適切なファイルで実行すると、原因SNF r SNPを見つけるために必要なデータセットをユーザーが再作成できるようになります。コマンドの構文の中には、ユーザーの設定に変更できるファイル名またはディレクトリ構造($ PATH)を参照するものがあることに注意してください。ここで与えられたコマンドは、QTL分析とWGSベースのSNP同定との交差を分析する方法を確実に排除するものではありませんが、この記事で説明した実験を繰り返すのに十分な包括的であり、これらのアプローチがどのようにステップバイステップで利用されているかに精通しています。
QTLマッピングおよびWGS配列に基づくSNP検出は候補SNF r遺伝子を同定するのに十分であったが、薬剤耐性におけるその役割を確認するためにさらなる実験が必要である。これは、CRISPR / Cas9遺伝子編集を用いて達成することができる遺伝子破壊またはノックアウト技術によって説得的に示され得る。 CRISP / Cas9を用いて、インディル突然変異を生成するか、またはトランスジェニック構築物をT.ゴンジの標的遺伝子に挿入するための詳細な方法が示される。 CRISPR / Cas9が提供する標的特異性は、従来の方法よりも遺伝子編集の効率を高める。またこれは効率的に増加しており、これまで困難であった遺伝子研究のための非実験室適応株を使用することが可能となった13 。初期段階では、CRISPR / Cas9は既に遺伝子破壊を行うために使用されているT. gondiiの遺伝子ノックアウト16,19,50,51,52,53,54を有用なツールとして期待している将来の多くの研究のために。
SNR1不活性化がsinefungin抵抗性をもたらすという発見は、 SNR1遺伝子座を導入遺伝子の挿入または遺伝的相補性の有望な部位にする。導入遺伝子のSNR1遺伝子座への組み込みを指示するためのCRISPR / Cas9媒介遺伝子ターゲティングの使用の成功を最大限にするためには、以下の側面が考慮されるべきである実験設計中は赤色になります。第1に、選択マーカーは、トランスジェニック構築物に含まれることが推奨され、ストレイン構築の効率を高める。選択マーカーが含まれる場合、陽性および陰性選択の両方を使用することができ、その結果、二重に選択された寄生虫のほぼ100%がSNR1遺伝子座に組み込まれたGOIを有するトランスジェニックである。対照的に、トランスジェニック構築物が追加の選択可能な形質を含まず、 SNR1遺伝子座におけるネガティブ選択に依存する場合、成功した遺伝子導入の効率は、CRISPRプラスミドおよびトランスジェニック構築物の共トランスフェクション効率に大きく依存する。
第2に、非相同DNA断片のCRISP / Cas9媒介性部位特異的組込みは、補完および遺伝子導入にしばしば使用されるが、どちらの方向も可能である場合には、挿入の方向性を保証することはできない。これはプローブを引き起こす可能性がありますいくつかのアプリケーションにms。例えば、異なる遺伝子対立遺伝子を有する変異体を補完するためには、全ての対立遺伝子が同じ方向に挿入されることを確実にすることは困難であり、方向の不一致が発現の相違を引き起こす可能性がある。このタイプのアプリケーションでは、 SNR1遺伝子座と相同な配列を持つDNA構築物が推奨されており、これは適切な組み込み方向を導きます ( 図6 )。
第3に、トランスフェクションの間、CRISPRプラスミドとトランスジェニックDNA分子との間の比は、成功したトランスジェニック株構築のために重要である。この比率は、選択戦略に従って調整する必要があります。以下のガイドラインが推奨される:1)トランスジェニック構築物が薬物耐性マーカーを含み、対応する薬物がトランスジェニック寄生虫を生成するために使用される唯一の選択肢である場合、 すなわちシネフンギンは使用されない場合、トランスジェニック構築物とCRISPRプラスミドidは1:5です。この場合、より多くのCRISPRプラスミドを使用することにより、トランスジェニック構築物を受ける寄生虫もCRISPRプラスミドを受ける可能性が高くなるため、薬剤耐性寄生虫は、CRISPR標的部位にマーカーを挿入する可能性が高くなる。この比が逆転した場合、トランスジェニック構築物を受けるほとんどの寄生虫はCRISPRプラスミドを得ることができない。結果として、薬剤耐性寄生虫の大多数は、CRISPR / CAS9媒介性部位特異的挿入に関連しないランダム組込みを介してトランスジェニック構築物を得る。 2)トランスジェニック構築物が薬物耐性マーカーを含み、対応する薬物がトランスジェニック寄生虫を選択するためにシネフンギンと共に使用される場合、トランスジェニック構築物とCRISPRプラスミドとの間の示唆されたモル比は1:1である。この戦略は、トランスジェニック株構築の最高効率を提供する。 3)トランスジェニック構築物が選択マーカーを含まない場合、ネガティブ選択に頼るトランスジェニック構築物とCRISPRプラスミドとの間の示唆されたモル比は5:1である。このデザインの理論的根拠は、上記の最初のガイドラインと同じです。プロトコル5でピリメタミンとシネファンギンの両方を選択に使用したので、 DHFR * mini遺伝子とSNR1を標的とするCRISPRプラスミドとの比は1:1に設定した。
まとめると、ここで概説されている方法は、 SNR1 2を特定した元の刊行物には伝えられなかった詳細レベルを持っています。これらのプロトコル。具体的には、コマンドライン構文、利用されるプログラムの順次レイアウト、およびCRISPR / Cas9の使用は、表現型の原因となる新しい遺伝子を同定するための将来の努力を助けるべきである。
開示事項
著者らは、競合する金銭的利益はないと宣言している。
謝辞
これらのプロトコルの基礎となる元の出版物への貢献についてL. David SibleyとAsis Khanに感謝したいと思います。この研究は、国立衛生研究所の助成金AI108721によって資金提供されました。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| T25フラスコ | コーニング | 430639 | |
| ヒト包皮線維芽細胞(HFF) | ATCC | SCRC-1041 | |
| T. gondii ME49株 | ATCC | 50840 | |
| T. gondiiVAND 株 | ATCC PRA-344 | ||
| DMEM (重炭酸ナトリウムなし) | ライフサイエンス | 12800017 | |
| 重炭酸ナトリウム | Sigma Aldrich | S5761 | |
| HEPES | Sigma Aldrich | H3375 | |
| 牛胎児血清 (FBS) プレミアムグレード | VWR International | 97068-085 | |
| L-Glutamine 200 mM | Sigma Aldrich | G7513 | |
| ゲンタマイシン (10 mg/mL) | Life Technologies | ||
| フラスコ用15710064セルスクレーパー | VWR International | 10062-904 | |
| シリンジ 10 mL | BD | 309604 | |
| 鈍い針 22 G x 1" | BRICO 製品 | BN2210 | |
| 核孔フィルター 3.0 & マイクロ;m, 25 mm | GE Healthcare | 110612 | |
| Swin-Lok フィルターホルダー 25 mm | GE Healthcare | 420200 | |
| 血球計算盤 | Propper MFG | 90001 | |
| Sinefungin | Enzo Life Sciences | 380-070-M001 | |
| R | The R Foundation | https://www.r-project.org/ | |
| J/qtl | The Churchill Group | http://churchill.jax.org/software/jqtl.shtml | |
| Bowtie2 | ジョンズ・ホプキンス大学 | http://bowtie-bio.sourceforge.net/bowtie2/index.shtml | |
| NCBI SRA Toolkit | NCBI | http://www.ncbi.nlm.nih.gov/Traces/sra/?view=toolkit_doc | |
| SAMtools | ウェルカムトラストサンガーインスティテュート | http://www.htslib.org/ | |
| VarScan | ワシントン大学、セントルイス | http://varscan.sourceforge.net/ | |
| MUMmer | JCVI&Univ Hamburg | http://mummer.sourceforge.net/ | |
| pSAG1::CAS9-U6::sgUPRT | Addgene | Plasmid #54467 | T. gondii UPRT遺伝子を切断するCRISPRプラスミド |
| pSAG1::CAS9-U6::sg290860-6 | Addgene | Plasmid #59855 | T. gondii TG*_290860 SNR1遺伝子を切断するCRISPRプラスミド |
| pUPRT::D HFR-D | Addgene | Plasmid #58528 | DHFR* mini gene |
| Q5 Site-Directed Mutagenesis Kitのテンプレート | ニューイングランドバイオラボ | E0552S | |
| QIAprepスピンミニプレップキット | QIAGEN | 27106 | |
| NanoDrop 2000 | Thermo Scientific | ND-2000 | |
| LBブロス | フィッシャーサイエンティフィック | DF0446-07-5 | |
| カリウム | Sigma Aldrich | P9541 | |
| 塩化カルシウム | Sigma Aldrich | 746495 | |
| リン酸カリウム一塩基性 | Sigma Aldrich | P9791 | |
| リン酸カリウム二塩基性 | Sigma Aldrich | P5504 | |
| EDTA Sigma | Aldrich | E5134 | |
| 塩化マグネシウム | Sigma | Aldrich M1028 | |
| アデノシントリポシュペート(ATP) | Sigma Aldrich | A6419 | |
| L-グルタチオン(GSH) | SigmaAldrich | G4251 | |
| ECM 830 エレクトロポレーション システム | BTX | 45-0002 | |
| エレクトロポレーション キュベット 4 mm | ハーバード 装置 | 45-0126 | |
| Crytal Violet | Alfa Aesar | B21932-14 | |
| 6 ウェル TC プレート | Corning | 353046 | |
| 24 ウェル TC プレート | Corning | 353935 | |
| カバーガラス 12 mm 丸型 | VWR International | 89015-724 | |
| 96 ウェル TC プレート | Corning | 353075 | |
| Gibson Assembly Cloning Kit (Multi-fragment) | New England Biolabs | E5510S | |
| Q5 High-Fidelity Polymerase | ニューイングランドBiolabs | M0491S | |
| ピリメタミン | TCIアメリカ | P2037-1G | ピリメタミン耐性寄生虫を使用するときにキュレーションを使用してください - プロトコルを参照してください |
参考文献
- Dubey, J. P. The history of Toxoplasma gondii--the first 100 years. J Eukaryot Microbiol. 55 (6), 467-475 (2008).
- Behnke, M. S., Khan, A., Sibley, L. D. Genetic Mapping Reveals that Sinefungin Resistance in Toxoplasma gondii Is Controlled by a Putative Amino Acid Transporter Locus That Can Be Used as a Negative Selectable Marker. Eukaryot Cell. 14 (2), 140-148 (2015).
- Dubey, J. P. History of the discovery of the life cycle of Toxoplasma gondii. Int J Parasitol. 39 (8), 877-882 (2009).
- Pfefferkorn, L. C., Pfefferkorn, E. R. Toxoplasma gondii: genetic recombination between drug resistant mutants. Exp Parasitol. 50 (3), 305-316 (1980).
- Donald, R. G., Roos, D. S. Insertional mutagenesis and marker rescue in a protozoan parasite: cloning of the uracil phosphoribosyltransferase locus from Toxoplasma gondii. Proc Natl Acad Sci U S A. 92 (12), 5749-5753 (1995).
- Sullivan, W. J. Jr Insertional tagging of at least two loci associated with resistance to adenine arabinoside in Toxoplasma gondii, and cloning of the adenosine kinase locus. Mol Biochem Parasitol. 103 (1), 1-14 (1999).
- Khan, A. Composite genome map and recombination parameters derived from three archetypal lineages of Toxoplasma gondii. Nucleic Acids Res. 33 (9), 2980-2992 (2005).
- Khan, A. NextGen sequencing reveals short double crossovers contribute disproportionately to genetic diversity in Toxoplasma gondii. BMC Genomics. 15 (1), 1168(2014).
- Shaik, J. S., Khan, A., Beverley, S. M., Sibley, L. REDHORSE-REcombination and Double crossover detection in Haploid Organisms using next-geneRation SEquencing data. BMC Genomics. 16 (1), 133(2015).
- Arends, D., Prins, P., Jansen, R. C., Broman, K. W. R/qtl: high-throughput multiple QTL mapping. Bioinformatics. 26 (23), 2990-2992 (2010).
- Langmead, B., Salzberg, S. L. Fast gapped-read alignment with Bowtie 2. Nat Methods. 9 (4), 357-359 (2012).
- Koboldt, D. C. VarScan 2: somatic mutation and copy number alteration discovery in cancer by exome sequencing. Genome Res. 22 (3), 568-576 (2012).
- Shen, B., Brown, K. M., Lee, T. D., Sibley, L. D. Efficient gene disruption in diverse strains of Toxoplasma gondii using CRISPR/CAS9. MBio. 5 (3), e01114(2014).
- Fox, B. A., Ristuccia, J. G., Gigley, J. P., Bzik, D. J. Efficient gene replacements in Toxoplasma gondii strains deficient for nonhomologous end joining. Eukaryot Cell. 8 (4), 520-529 (2009).
- Huynh, M. H., Carruthers, V. B. Tagging of endogenous genes in a Toxoplasma gondii strain lacking Ku80. Eukaryot Cell. 8 (4), 530-539 (2009).
- Wang, J. L. The Past, Present, and Future of Genetic Manipulation in Toxoplasma gondii. Trends Parasitol. , (2016).
- Sidik, S. M., Hackett, C. G., Tran, F., Westwood, N. J., Lourido, S. Efficient genome engineering of Toxoplasma gondii using CRISPR/Cas9. PLoS One. 9 (6), e100450(2014).
- Sugi, T., Kato, K., Weiss, L. M. An improved method for introducing site-directed point mutation into the Toxoplasma gondii genome using CRISPR/Cas9. Parasitol Int. , (2016).
- Behnke, M. S. Rhoptry Proteins ROP5 and ROP18 Are Major Murine Virulence Factors in Genetically Divergent South American Strains of Toxoplasma gondii. PLoS Genet. 11 (8), e1005434(2015).
- Barrangou, R. CRISPR provides acquired resistance against viruses in prokaryotes. Science. 315 (5819), 1709-1712 (2007).
- Garneau, J. E. The CRISPR/Cas bacterial immune system cleaves bacteriophage and plasmid DNA. Nature. 468, 67-71 (2010).
- Jinek, M. A programmable dual-RNA-guided DNA endonuclease in adaptive bacterial immunity. Science. 337 (6096), 816-821 (2012).
- Cong, L. Multiplex genome engineering using CRISPR/Cas systems. Science. 339 (6121), 819-823 (2013).
- Mali, P. RNA-guided human genome engineering via Cas9. Science. 339 (6121), 823-826 (2013).
- Jiang, F., Zhou, K., Ma, L., Gressel, S., Doudna, J. A. STRUCTURAL BIOLOGY. A Cas9-guide RNA complex preorganized for target DNA recognition. Science. 348 (6242), 1477-1481 (2015).
- Nishimasu, H. Crystal Structure of Staphylococcus aureus Cas9. Cell. 162 (5), 1113-1126 (2015).
- The R Project for Statistical Computing. , Available from: https://www.r-project.org (2016).
- Smith, R., Sheppard, K., DiPetrillo, K., Churchill, G. Quantitative trait locus analysis using J/qtl. Methods Mol Biol. 573, 175-188 (2009).
- The Churchill Group. , J/qtl. http://churchill.jax.org/software/jqtl.shtml (2013).
- Li, H. The Sequence Alignment/Map format and SAMtools. Bioinformatics. 25 (16), 2078-2079 (2009).
- Kurtz, S. Versatile and open software for comparing large genomes. Genome Biol. 5 (2), (2004).
- Gajria, B. ToxoDB: an integrated Toxoplasma gondii database resource. Nucleic Acids Res. 36 (Database issue), D553-D556 (2008).
- Heigwer, F., Kerr, G., Boutros, M. E-CRISP: fast CRISPR target site identification. Nat Methods. 11 (2), 122-123 (2014).
- Roos, D. S. Molecular genetic tools for the identification and analysis of drug targets in Toxoplasma gondii. Curr Top Microbiol Immunol. 219, 247-259 (1996).
- Soldati, D., Boothroyd, J. C. Transient transfection and expression in the obligate intracellular parasite Toxoplasma gondii. Science. 260 (5106), 349-352 (1993).
- Lander, E. S., Botstein, D. Mapping mendelian factors underlying quantitative traits using RFLP linkage maps. Genetics. 121 (1), 185-199 (1989).
- Saeij, J. P. Polymorphic secreted kinases are key virulence factors in toxoplasmosis. Science. 314 (5806), 1780-1783 (2006).
- Saeij, J. P. Toxoplasma co-opts host gene expression by injection of a polymorphic kinase homologue. Nature. 445 (7125), 324-327 (2007).
- Rosowski, E. E. Strain-specific activation of the NF-kappaB pathway by GRA15, a novel Toxoplasma gondii dense granule protein. J Exp Med. 208 (1), 195-212 (2011).
- Reese, M. L., Zeiner, G. M., Saeij, J. P., Boothroyd, J. C., Boyle, J. P. Polymorphic family of injected pseudokinases is paramount in Toxoplasma virulence. Proc Natl Acad Sci U S A. 108 (23), 9625-9630 (2011).
- Taylor, S. A secreted serine-threonine kinase determines virulence in the eukaryotic pathogen Toxoplasma gondii. Science. 314 (5806), 1776-1780 (2006).
- Behnke, M. S. Virulence differences in Toxoplasma mediated by amplification of a family of polymorphic pseudokinases. Proc Natl Acad Sci U S A. 108 (23), 9631-9636 (2011).
- Lorenzi, H. Local admixture of amplified and diversified secreted pathogenesis determinants shapes mosaic Toxoplasma gondii genomes. Nat Commun. 7, 10147(2016).
- Gubbels, M. J. Forward genetic analysis of the apicomplexan cell division cycle in Toxoplasma gondii. PLoS Pathog. 4 (2), e36(2008).
- Farrell, A. A DOC2 protein identified by mutational profiling is essential for apicomplexan parasite exocytosis. Science. 335 (6065), 218-221 (2012).
- Coleman, B. I., Gubbels, M. J. A genetic screen to isolate Toxoplasma gondii host-cell egress mutants. J Vis Exp. (60), (2012).
- Walwyn, O. Forward genetics screens using macrophages to identify Toxoplasma gondii genes important for resistance to IFN-gamma-dependent cell autonomous immunity. J Vis Exp. (97), (2015).
- Rugarabamu, G., Marq, J. B., Guerin, A., Lebrun, M., Soldati-Favre, D. Distinct contribution of Toxoplasma gondii rhomboid proteases 4 and 5 to micronemal protein protease 1 activity during invasion. Mol Microbiol. 97 (2), 244-262 (2015).
- Varberg, J. M., Padgett, L. R., Arrizabalaga, G., Sullivan, W. J. Jr TgATAT-Mediated alpha-Tubulin Acetylation Is Required for Division of the Protozoan Parasite Toxoplasma gondii. mSphere. 1 (1), (2016).
- Zheng, J., Jia, H., Zheng, Y. Knockout of leucine aminopeptidase in Toxoplasma gondii using CRISPR/Cas9. Int J Parasitol. 45 (2-3), 141-148 (2015).
- Long, S., Wang, Q., Sibley, L. D. Analysis of Noncanonical Calcium-Dependent Protein Kinases in Toxoplasma gondii by Targeted Gene Deletion Using CRISPR/Cas9. Infect Immun. 84 (5), 1262-1273 (2016).
- Wang, K. Identification of Novel O-Linked Glycosylated Toxoplasma Proteins by Vicia villosa Lectin Chromatography. PLoS One. 11 (3), e0150561(2016).
- Yang, M., Zheng, J., Jia, H., Song, M. Functional characterization of X-prolyl aminopeptidase from Toxoplasma gondii. Parasitology. , 1-7 (2016).
- Zhang, W. Analysis of the virulence determination mechanisms in a local Toxoplasma strain (T.gHB1) isolated from central China. Parasitol Res. , (2016).
再版と許可
