このプロトコルは、 求愛条件付けと呼ばれるショウジョウバエ学習および記憶アッセイを記載する。この古典的なアッセイは、非受容性の前処理された女性による性的拒絶反応後の男性の求愛行動の減少に基づく。この自然な形の行動可塑性は、学習、短期記憶、および長期記憶を試験するために使用することができる。
この記事について
サマリー
要約
ショウジョウバエ(Drosophila melanogaster)などのモデル生物における単純な行動アッセイの使用によって、学習および記憶の基礎となる分子メカニズムに対する多くの洞察が解明されている。 ショウジョウバエは、知的障害(ID)および自閉症のようなヒトの認知障害に関連する遺伝子の変異に起因する認知障害の根底にある基礎的な神経生物学を理解するのに有用である。この研究は、 求愛条件付けとして知られるショウジョウバエの古典的なパラダイムを用いて、学習と記憶を試験するための方法論を記述している。男性は容易に認識できる行動の明確なパターンを使用して裁判所の女性を飛ばす。前期雌は交配を受け入れず、交尾の試みを拒否する。この拒絶反応に対応して、オスのハエは彼らの求愛行動を減らす。この求愛行動の減少分は時間とともに測定され、学習と記憶の指標となる。基本的な数字このアッセイの現実的な出力は、求愛指数(CI)であり、男性が10分の間隔で求心する時間のパーセンテージとして定義される。学習指数(LI)は、以前の社会的出会いのないナイーブなハエと比較して、前もって女性に曝露されたハエにおけるCIの相対的減少である。遺伝子型間のLIの統計的比較のために、ブートストラッピングによるランダム化試験が用いられる。このアッセイを用いて、学習および記憶に関連する遺伝子の役割をどのように扱うことができるかを説明するために、 ジヒドロキシアセトンリン酸アシルトランスフェラーゼ ( Dhap-at )の汎ニューロンノックダウンをここで特徴付けた。 グリセロホスフェートO-アシルトランスフェラーゼ ( GNPT )のDhap-atのヒトオルソログは、厳しいIDを特徴とする常染色体劣性症候群であるrhizomelic軟骨異形成症穿刺2型に関与している。求心性条件アッセイを用いて、Dhap-atは長期記憶に必要であるが、短期記憶。この結果は、基礎となる分子メカニズムのさらなる研究の基礎となる。
概要
学習と記憶の基礎となる分子メカニズムは多くの種にわたって保存されている。嗅覚学習と記憶の欠陥のためのショウジョウバエmelanogaster変異株の先駆的なスクリーニング作業により、学習と記憶の基礎となるプロセスに重要な分子洞察がもたらされました1 。これらの研究では、 rutabaga 2 、amnesiac 3 、 dunce 4などの学習と記憶に関与する最初の遺伝子のいくつかが同定され、環状アデノシン一リン酸(cAMP)シグナル伝達5にとって重要な役割を明らかにしました5 。
記憶突然変異体の初期の遺伝子スクリーニングは、主に嗅覚調節を用いて行われた。しかしながら、他の形態の学習および記憶を測定するためのいくつかの方法が、時間とともに出てきている。最も広く使用されている学習および記憶のパラダイムの1つ、およびここに記載されているアッセイは、cSiegel and Hall 6によって最初に記述され、後に他のいくつかの研究グループ7,8,9によって洗練されたourtship conditioningが含まれる。求心性条件付けは、交尾中に雄によって寄託された雌の腹部に特定のフェロモン、 cis-バクテニルアセテート(cVA)が存在するかどうかに依存する。女性の腹部のcVAを感知することは、当然、求愛行動を減少させ、女性の拒絶反応と相まって、男性の求愛に対するCVAの効果が劇的に増強される。このアッセイにおける雄性ハエの反応は、雌雄方、雌雄、叩き、羽を伸ばし、振動させ、舐め、交配10 ( 図1A )を試みることによって特徴づけられるそれらの別個の求愛行動を観察することによって容易に定量化することができる。オスのハエは識別するために学ぶ hであり、性的拒絶反応の後、9日までの非受容性雌への減少した求愛行動を示す 。この自然な挙動は、学習、短期記憶(STM)、および長期記憶(LTM)の基礎となるメカニズムを解明するために使用することができる8,9,12。学習は、訓練期間中に起こる求愛行動の即時減少と定義され、仲間の女性に曝露してから0〜30分後に即時再発記憶と呼ばれることが多い6,8。 STMは訓練後30分から1時間の間に測定されるが、LTMは訓練8時間後24時間で最も頻繁に測定される( 図1B )。 STMは1時間の訓練期間を使用して誘導することができるが、それは2〜3時間しか持続しないs = "xref"> 6,8。ほとんどの学習パラダイムでは、LTMは、反復訓練の間隔をあけた発作によってのみ誘導され得る。 Mcbride et al 。 (1999) 8は、単一の1時間の訓練セッションによって誘発される2-3時間とは対照的に、間隔をあけた3時間の訓練セッションが最大9日間持続する求愛記憶を誘発するのに十分であることを示した。 McBride et al 。 8はまた、1回の5時間のトレーニングセッションが9日間まで同様のLTM応答を生じたことを示した。ハエは、この5時間の間は常に裁判所に出席せず、1回の訓練期間中にLTMを誘発するための独自の間隔を空けた訓練を実際に行っている。これは実用的な観点から非常に重要であり、LTMを調べるためにこのアッセイを使用することが容易になります。現在のプロトコルでは、主にLTM 11,12に対して7時間の単一トレーニングセッションを使用しています。いくつかの研究では、求愛学習のさまざまな側面において特異的な欠陥を有する突然変異状態。例えば、キノコの体のアブレーションはSTMとLTMに影響を及ぼしますが、学習はしません8 。嗅覚調節3を用いた記憶の特異的レギュレーターとして最初に定義された記憶喪失遺伝子の突然変異はSTMに影響を及ぼすが、学習はしない6 。翻訳レギュレーターorb2(oo18 RNA結合(orb)CPEB2サブファミリー)およびエクジソンシグナル伝達の破壊は、もっぱらLTM9,13に影響を及ぼす。このように、求愛条件付けは学習と記憶のさまざまな段階の根底にあるメカニズムを解明するための有用なパラダイムである。
この研究は、求心性条件付けの比較的高スループットの試験を可能にする最適化された実験装置を実証している。さらに、統計分析スクリプトを記述し、アッセイの重要な要素について議論する。それはshですショウジョウバエ遺伝子ジヒドロキシアセトンリン酸アシルトランスフェラーゼ ( Dhap-at )が、 LTMではニューロンでは必要であるが、STMでは必要ではない。この遺伝子のヒトオルソログであるグリセロホスフェートO-アシルトランスフェラーゼ ( GNPAT )は、深刻な知的障害、発作、および他のいくつかの臨床的特徴を特徴とする常染色体軟骨異形成症のタイプII 14 、常染色体劣性疾患において突然変異する15 。この文脈では、求愛条件付けを使用して、学習および記憶におけるヒト疾患遺伝子の役割を機能的に検証し、機構研究の基礎を提供することができる。
プロトコル
注記:以下に概説するプロトコルでは、収集、訓練、およびテストの1つの複製が説明されています。結果の再現性を試験するために、これらのステップを平行して、複数の日に、および別々のハエのグループ( 表1)で繰り返さなければならない。プロトコールは、卵から成虫までの10日間のライフサイクルに基づいており、25℃、70%湿度、および12時間明/暗サイクルの一定条件下でハエを飼育するときには正常である。このプロトコールの全ての局面は、条件がアッセイ全体を通して一定に保たれると仮定する。インキュベータ内のライトが点灯する前(BLO)またはライトが点灯(ALO)するまでの時間は、研究者が希望する時間帯に応じて便利に設定できるため、時間は時間単位で表示されます。純粋でないオスのハエの最初の収集と前提の女性の収集のためにのみCO 2ガスを使用してください。求愛条件付けのためのこのプロトコルは、以下のステップからなる。
- E前置きされた女性収集文化の確立
- 雄性試験対象の収集のための文化の確立
- 住宅ブロックの準備
- 標準化された前処理されたメスの生産のための交配バイアルの確立
- 男性のテスト対象のコレクション
- トレーニング
- テスト
- ビデオデータの分析と統計
1.前向きの女性収集文化の確立
- パワーフードの準備16 。寒天0.8%(w / v)、酵母8%(w / v)、酵母エキス2%(w / v)、ペプトン2%(w / v)、ショ糖3%(w / v) (w / v)グルコース、0.05%(w / v)MgSO 4 、および0.05%(w / v)CaCl 2を含有する水中に15分間浸漬した。 0.05%(w / v)メチルパラベン(注意:毒性)および0.5%(v / v)プロピオン酸(注意:毒性)を添加する前に、溶液を70℃に冷却させる。 50℃までさらに冷却しながらよく混合し、均質な溶液を得る。
- 食べる前に室温で蓋をし、各175mLプラスチックバイアルに〜50mLの粉末を加える。食べ物をさらに冷ます。バイアルをプラグで閉じます。
注:Powerfoodは、おそらく卵産卵を誘導することにより、多数のハエの生産のために特別に配合された特殊な食品混合物です。 Powerfoodは、非定型ダイエットと潜在的な混雑が発達に影響する可能性があるため、行動解析に使用されるオスのハエを生産するために使用されていません(ステップ2)。 - 11日目( 表1 )に、パワーフードバイアル中で約60-100のハエ(雄と雌の混合物)を含む5〜20野生型培養を開始する。これらはステップ4で標準化された前躯体17を製造するために使用される。各バイアルにろ紙を加えて、幼虫が蛹化できる領域を増やします。これは、飛行することができるハエの数を増加させる。
- 実験の全体を通してステップ1.1〜1.3を定期的に繰り返して、"標準化された前処理された雌の生産のための交配バイアルの確立"(ステップ4)。
2.男性試験科目のための文化の確立
- 0.5%(w / v)寒天、2.75%(w / v)酵母、5.2%(w / v)コーンフラワー、11%(w / v)糖、0.05% )メチルパラベン、および0.5%(v / v)プロピオン酸を、工程1.1および1.2に記載のように水中に溶解する。フライバイアルプラグで175 mLのプラスチックバイアルを閉じます。
- 10日目( 表1 )に、正常な食物を含む各175mLのバイアルに約30〜75匹の処女( 材料/機器の表 )を約10〜20匹の雄に置きます。浄化のために表面積を増やし、生産性を最大化するために濾紙を加える。
- 遺伝子型ごとに3〜6個の175mLバイアルを確立し、必要な数の被験雄を得る。
注:所望の遺伝子の生産性に応じて、より多くのバイアルが必要になる場合がありますotype。
3.ハウジングブロックの準備( 図2A )
- ハウジングブロックあたり約50 mLのパワーフードを電子レンジで溶かすか、または新鮮なものを準備する。
- multidispenserピペットを使用して、96ウェルの平底ブロックの各ウェルに500μLのパワーフードを加える。
- 食物を室温で凝固させる。
- ブロックをPCR接着フィルムで覆い、ニードルを使用してウェルあたり少なくとも4つの穴を開けて、ハエに新鮮な空気を供給します。
- それぞれの井戸を開けるようにするには、剃刀の刃を使って各列の間で接着フィルムを縦に切断します。ブロックの一端にフィルムをそのまま残します。
- ブロックは4℃で最大2日間保存できます。
注:使用前にブロックを室温に再平衡させてください。
4.標準化された前もって準備された雌の生産のための交配バイアルの確立
- -1日目に、2時間から5時間のBLOで前処理された雌の収集培養物から全ての成体野生型ハエを捨てる。
- これらのバイアルからアスピレーター( 図2B )を2〜3時間間隔で( 例えば、 30分、2.5時間、および5時間のALOで)採取し、少量の酵母を補充した新しいパワーフードバイアルに入れるペーストおよび濾紙。
- 混雑を避け、最適な交配環境を促進するために、各新しいバイアルに150-200以上のハエを移さないでください。少なくとも25%の男性を提供することによって、すべての女性の交尾を確保する。実験のサイズに合わせて、十分な雌が交配バイアルに存在することを確認する。
注意:これはプロトコールの重要なステップなので、新しく接種されたハエと、古いハエ、幼虫、または蛹は、新しい交配バイアルに移されないように注意してください。 - すべての女性が交配するのに十分な時間を与えるために、これらの「交配バイアル」を4日間インキュベートする。
5. Col男性試験科目の授業
- 2〜3時間のBLOで1日目( 表1 )にCO 2を使用して、オスのコレクションバイアルからすべての成虫のハエを除去する(ステップ2)。 次の数時間にはさらに多くのハエが蔓延します。
- 次の5-6時間にわたって、CO 2を使用して20-30分ごとに新しく閉鎖したハエを除去し、アスピレーター( 図2B )を用いて各雄をハウジングブロックの個々のウェルに入れる(ステップ3)。
- 接着剤PCRフィルムでウェルを再シールする。
注:これはプロトコルの重要なステップです。男性は頻繁に収集する必要があります。採集された雄は、腐敗の時代に近いハウジングブロック内で、淡い色素沈着を示し、半透明の腹部に胎便が存在することを証明しなければならない。
注:アスピレーターを穏やかに使用すると、ハエの移動が可能になります。しかし、不適切な使用は、ハエにストレスを与え、アッセイの変動を引き起こす(議論を参照)。 - 共同を目指す遺伝子型につき最大48匹の男性を摘出する。これは、ナイーブな条件と訓練された条件の両方の解析に必要な男性の最大数をわずかに超過し、後の転送ステップ中にいくらかの損失を許容する。
6.トレーニング
- CO 2を用いて交配バイアル(ステップ4.2)からハエを除去し、前もって雌から雄を分離する。
- アスピレーターを使用して、新しいハウジングブロックの1列の各ウェルに、麻酔をかけられた前部の女性を1つ追加します。
- アスピレーターを使用し、麻酔を使用せずに、ステップ5.2で設定した住宅ブロックから個々のナイーブな男性を前もっての女性を含む井戸に移す。オスをウェルに入れた後、直ちに接着フィルムで再シールする。男性が逃げるのを許さないでください。
注記:天然の「負のジオタキシス」挙動を利用して、アスピレーターからハウジングブロックに男性用飛行機を移します(「ディスカッション」を参照)。 - ステップを繰り返します。十分な男性 - 女性のペアが確立されるまで6.2-6.3。理想的には、遺伝子型ごとに24組、ハウジングブロックの2つの完全な列を確立する。ステップ5.2で設定した元の住宅ブロックに残っているナイーブな男性を残す。
- 訓練期間中、男性と女性のペアをそのままにしておきます( 表2 、 図1B )。
注:この時間中、男性は裁判所になり、前もって女性に拒否されます。学習とSTMについては、訓練期間は1時間であり、LTMについては、訓練期間は7~9時間である。 - アスピレーターを使用して訓練を終了し( 表2 、 図1B )、前立腺の雌から雄を静かに分離する;麻酔を使わないでください。分離された男性を新しい住宅ブロックに置きます。
- 吸入器を使用して、すべてのナイーブ男性を穏やかに麻酔することなく、ステップ5.2で設定したハウジングブロックから新しいハウジングブロックに移す。
注記:この手順は、STMおよびLEAではオプションですLTMを試験するためには、さらに24時間、ハエが収容されているため、LTMにとっては非常に重要です。 - STMおよびLTMについては、試験前に(ステップ7)、男性をそれぞれ1時間および〜24時間休息させる( 表2 、 図1B )。
- 学習のために、訓練を受けたナイーブな男性をすぐにテストします(ステップ7)。
7.テスト
- CO 2を使用して交配バイアル(ステップ4.2)からハエを収集し、前もって雌から雄を分離する。
- 雌が通常の食物を含むバイアル中で少なくとも1時間麻酔から回復させる。
- テストの開始前にすべての機器を準備するために、ビデオレコーダを事前にマウントしてください( 図2C )。
- ラーニング、STM、およびLTMの異なるタイムラインに従ってテストを開始します( 表2 、 図1B )。トレーニング直後にテストを実施する学習のために、STMの訓練の1時間後、LTMの訓練の24時間後に行った。
- アスピレーターを使用して、学習がテストされている場合には、個々の男性を休息中のハウジングブロックまたはトレーニングハウジングブロックから静かに移す(ステップ6.7、トレーニング済み、ステップ6.8、ナイーブ) ;建物計画についてはファイルS1を参照)。
注記:天然の「負のジオタキシス」行動の使用は、アスピレーターから求愛アリーナへのオスのハエを移すのに十分であるべきである(考察)。 - エントリーホールを次のアリーナにすばやく静かに移動し、18個のアリーナすべてに1人の男性が入るまで、ステップ7.5を繰り返します。
- アスピレーターを使用し、CO 2を使用せずに、1つの前派の女性(ステップ7.2で採取)を18個のアリーナの残りの半分に加える。
- 注意深く、ウェルの開口部を下にして、求愛チャンバーをカメラの下に置きます( 図2C )。
- 雄と前雌の間の直接の相互作用を可能にするために、アリーナの仕切りを取り除く。
- 直ちに行動を少なくとも10分間記録し始める。
注:2つのカメラの設定を使用する場合、効率を最大限に高めるために、2つの求愛プレートを並行して記録することは、時間枠を重ねて行うことができます。 - 手持ち式の掃除機を使用して求愛アリーナを空にし、再使用する前に求愛チャンバーを換気させます。
- すべての遺伝子型および条件( すなわち、ナイーブおよび訓練された)の試験が完了するまで、ステップ7.4-7.11を繰り返す。
8.ビデオデータの分析と統計
- テスト期間の最初の10分間における男性裁判所の各雄フライに対する時間のパーセンテージとして定義される求愛指数(CI)を計算する。
注:これは、ステレオタイプの求愛行動( 図1A )または求愛行動の自動化された定量化のためのコンピュータソフトウェアを歌う(討論)。
注記:十分な統計力を達成し、CIデータの一貫性を判断するために、3日間にわたって1条件あたり40〜60人の男性を分析することが推奨される。 - 純粋な男性(LI =(CI naive - CI 訓練された )/ CI naive )と比較して、訓練された男性の平均CIにおけるパーセント低下として定義される学習指数(LI)を計算する。テストの各日のLIを評価し、それを組み合わせたすべてのテスト日から計算した累積LIと比較する。
- "Genotype"と "CI"をヘッダとして別々の2列のタブデータファイルを作成します。
注:これらの見出しは大文字と小文字を区別します。各CIの遺伝子型の名前は、遺伝子型の説明とそれに続くアンダースコアと訓練条件( 例えば、遺伝子型Nおよび遺伝子型LTMなど、N =ナイーブおよびLTM =長期メモリ;例の補足ファイルS2を参照してください)。このアノテーションは不可欠です。アナンサー関数は、「Genotype」列の最初のアンダースコアの後にある文字に基づいて、訓練されたナイーブフライを識別します。 - 別の遺伝子型からのLI値間の差異の統計的有意性を判定するために、analearn Rスクリプト(補足ファイルS3)を用いてランダム化試験を行う。
- スクリプト(補足ファイルS3)をR18に送ります。これは "analearn"という関数を定義しています。
注:関数の定義は:analearn < - function(nboot = 10,000、naivelevel = 'N'、refmutation = NA、datname = NA、header = TRUE、seed = NA、writeoutput = TRUE)です。 - Rコマンドラインに "analearn()"と入力し、ポップアップウィンドウから分析するデータファイル(ステップ8.3で生成)を選択して、関数を開始します。
- 参照突然変異を選択します。対応する数字を入力してEnterキーを押すことによって、コントロール遺伝子型です。
注記:参照遺伝子型を選択した後、スクリプトは10,000ブートストラップ複製を実行するのに数秒かかります。 - 遺伝子型、学習条件( すなわち、学習、STM、またはLTM)、平均CIナイーブ、平均CI訓練、LI、実験条件と比較した対照のLI間の差異を含む出力表(表3) (LI dif)、LI difの95%信頼区間の下限(LL)および上限(UL)、および有意差がない確率を示すp値を含む。
注記:analearnは、データファイルがあるディレクトリに出力テキストファイルを保存します。ただし、出力テーブルはR-Studioコンソールにも表示されます。デフォルト名は、提供されるデータファイルの名前に基づいて構成されます。 - アナーン関数にはいくつかの議論がありますブートストラップのパラメータを調整するための機能の障害設定。
注: "nboot"はブートストラップの複製数を定義し、デフォルトで10,000に設定されています。この値は、0より大きい任意の整数に変更できます。表5は、関数のデフォルト設定を変更するために使用できるいくつかの引数を示しています。ただし、少ない数のブートストラップ複製で生成されたデータを使用することは推奨されません。
- スクリプト(補足ファイルS3)をR18に送ります。これは "analearn"という関数を定義しています。
結果
求愛条件付けアッセイは、ショウジョウバエの学習と記憶を測定するために使用することができます。これを実証するために、ここに示した結果は、Dhap-atのニューロン特異的ノックダウンを有するハエと比較して、対照ハエにおけるSTMおよびLTMを分析する。対照男性は、 Caenorhabditis elegans特異的遺伝子、推定ジンクフィンガータンパク質C02F5.12を標的とするRNA干渉ヘアピン配列を発現する19 。このコントロール株は、同じ遺伝的バックグラウンドにおけるノックダウンとコントロールとの間に等しい数の上流活性化配列(UAS)エレメントを保証し、RNAi系の非特異的影響を制御RNAiヘアピンが説明する。両方のSTM( 図3A 、 p = 1.2×10 -8)において、対照男性(遺伝子型: UAS-dcr2 / +; P {KK108109} VIE-260B / +; elav-Gal4 / + ) 4 、マン・ウィットンy U-検定)およびLTM( 図3B 、 p = 1.2×10 -4 、マンホイットニーU検定)。この結果は、これらのハエの学習と記憶のための通常の能力を反映しています。 Dhap-atのノックダウンハエ(遺伝子型: UAS-dcr2 / +; P {KK101437} VIE-260B / +; elav-Gal4 / + )は、STMのための訓練されたナイーブハエに対するCIの有意な減少を示す( 図3A 、 1.2×10 -4 、マンホイットニーU検定)。しかし、LTM訓練後のCIの有意な減少を示さない( 図3B 、 p = 0.33、マンホイットニーU検定)。 Mann-Whitney U検定を使用して、いくつかの条件( 図3Aおよび3B )についてのCIデータのノンパラメトリック分布によるナイーブおよび訓練されたハエの平均CIを比較した。 CIの分析によって観察された差異は、各遺伝子型についてのLIによって反映され、ナイーブで訓練されたハエに対するCIでのオン( 図3C )。 LTMのLIは、Dhap-atノックダウン・ハエ( p = 0.115、10,000回のブートストラップ反復、 図3C 、 表3 )において有意に低いが、 STMのノックダウン・ハエでは対照とDhap- 0.0034、10,000ブートストラップ複製、 図3C 、 表3 )。遺伝子型間のLIの比較のために、Kamyshev et al。によって最初に推奨された方法から適応されたランダム化試験20が、 7を使用した。 LIは母集団データから導出された単一の値( すなわち平均CI未経験者および平均CI経験者)であるため、実験的に導出された分布に依存する標準的な統計的方法は適用されない。無作為化テストは、無分散であり、ブートストラップ( すなわちランダムサンプル実際のデータから派生した仮説的データセットを生成するために使用される。 analearnスクリプト(ファイルS3)は、各遺伝子型について一連の仮想LIを生成し、対照と試験遺伝子型(LIdiff)との間の差異を計算する。このプロセスを10,000回繰り返し、得られた値を用いてLIdiffの95%信頼区間を決定する( 表3 )。このデータは、2つの遺伝子型のLIが異なる確率を示すp値を生成するために使用される。ここに示した結果は、Dhap-atがLTMではニューロンでは必要であるがSTMでは必要でないことを示している。
日々の変動性を制御するために、CIおよびLIを反復日間で比較する( 表4 )。 LIの変動は日々観察されるが、結果は一般的に再現性がある。 CIデータは、制御文字列によって大きく異なることに注意することが重要です使用されている環境条件とテストの環境条件。ここに示されているCIデータはこの対照遺伝子型の典型であるが、他の遺伝子型はより高いまたはより低い平均CIおよび分布を示すことがある。
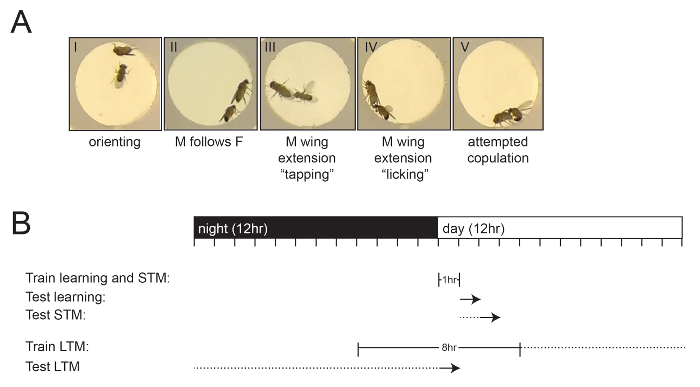
図1:求愛指数の決定と実験概要。 ( A )女性のフライに向けての定型的な男性の求愛行動を示す画像。方向(I)、(II)、翼の振動(伸展)およびタッピング(III)、舐め(IV)、および交接を試みる(V)の異なる段階の求愛行動が示される。 ( B )インキュベーターの光サイクルに関連する訓練および試験時間の模式的概要。トレーニング時間はバーで示され、STMおよびLTMの休止期間は破線で示され、試験開始点は矢印として示される。なお、LTMの試験時間は訓練後の翌日である。 この図の拡大版を見るには、ここをクリックしてください。
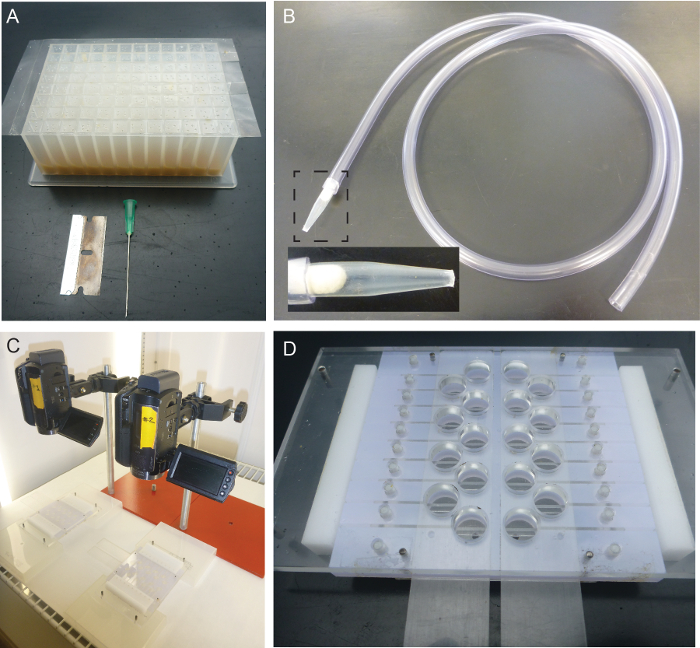
図2:Drosophila Courtship Conditioning Assayで使用した装置 。 ( A )ハウジングブロックは、1ウェル当たり500μLのパワーフードを有する平らな底部ブロックである。これは、直径0.8mmのシリンジ針を使用して作製されたウェル当たり少なくとも4つの穴を有するqPCR接着フィルムで封止される。個々の列は、開閉を可能にするためにかみそりの刃を使用してストリップに縦に切断される。 ( B )吸入器は、麻酔を使用しないでオスとメスのハエの穏やかな移動のために必要とされる。挿入図はアスピレーターの先端を示し、コットンと綿の部分で閉じられているep内のハエ( C )2つの求愛室を同時に記録するための2カメラシステムのセットアップ。 ( D )18のアリーナを持つ求愛室。スライディングエントリーホールは、アリーナにハエを配置するために使用される。白い仕切りは、男性と女性の間の相互作用を開始するために同時に開くことができます。 この図の拡大版を見るには、ここをクリックしてください。
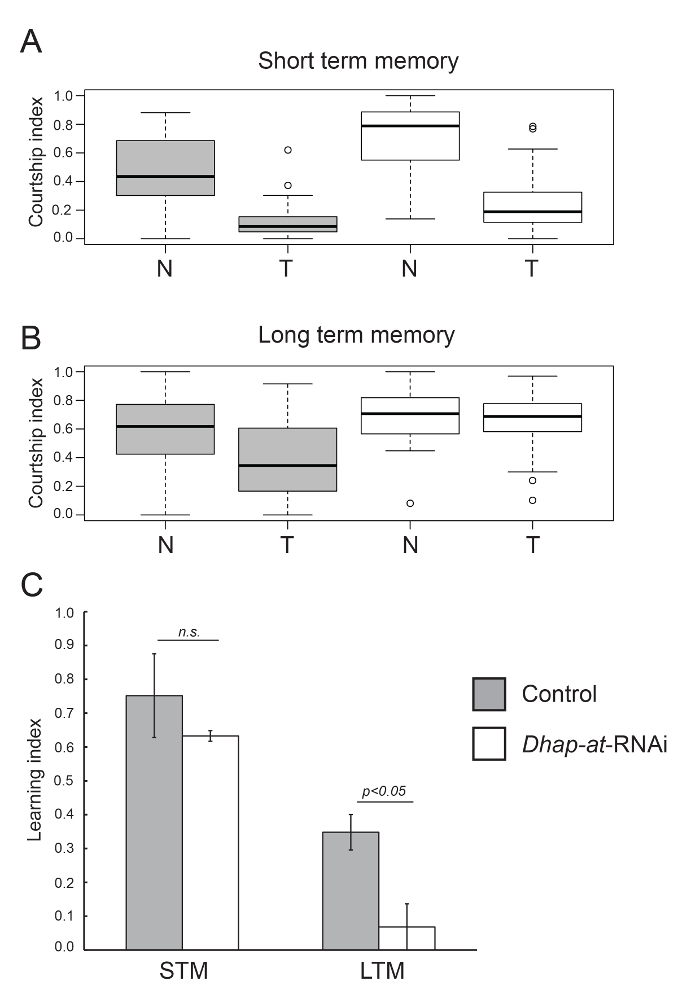
図3:ノックダウンフライにおけるコントロールおよびDhapにおけるSTMおよびLTMの分析。 ( AB )STM(A)およびLTM(B)について試験したノックダウン(N)および訓練(T)ハエの対照(灰色)およびDhap-atノックダウン(白)遺伝子型のCI値の分布を示すボックスプロット 。 ( C )コレレポSTMおよびLTMについて試験したノックダウン・ハエでのコントロールおよびDhap-atの LI値を示す。無作為化試験(10,000回のブートストラップ反復)を用いて対照とノックダウン遺伝子型との間のLIの差を比較した。エラーバーは、異なる試験日に計算されたLI値から導かれた平均の標準誤差を示す。遺伝子型は: w +、UAS-dcr2 / + ; P {KK108109} VIE-260B / + ;およびelav-Gal4 / + (対照) およびw +、UAS-dcr2 / + ; P {KK101437} VIE-260B / +;およびelav-Gal4 / + ( Dhap-at- RNAi)。 この図の拡大版を見るには、ここをクリックしてください。
| 一般 | 収集する | 列車 | テスト | |
| 11日 | 事前収集された女性コレクション文化を開始する(ステップ1.3) | |||
| 10日目 | 雄性試験被験者の収集のために培養を開始する(ステップ2.2) | |||
| 1日目 | 担当者。 1 | |||
| 2日目 | 担当者。 2 | |||
| 3日目 | 担当者。 3 | |||
| 4日目 | 担当者。 4 | 担当者。 1 | ||
| 5日目 | 担当者。 2 | 担当者。 1 | ||
| 6日目 | 担当者。 3 | 担当者。 2 | ||
| 7日目 | 担当者。 4 | 担当者。 3 | ||
| 8日目 | 担当者。 4 | |||
| 9日目 | ビデオデータの分析と統計(ステップ8) | |||
| rep = repeat | ||||
表1 : 個々の日の3つの複製に対するLTMのテストのタイムライン例
| 学習 | STM | LTM | |
| トレーニングの時間 | 1時間。 | 1時間。 | 8時間。 |
| 休憩時間 | 0時間。 | 1時間。 | 〜24時間。 |
| トレーニングを開始する | 0h。 ALO | 0時間。 ALO | 4時間。 BLO |
| トレーニングをやめる | 1時間。 ALO | 1時間。 ALO | 4時間。 ALO |
| テストを開始する | 1時間。 ALO | 2時間。 ALO | 0時間。 ALO(翌日) |
| ALO =ライト点灯後、BLO =ライト点灯前、STM =短期メモリ、LTM =長期メモリ | |||
表2 : 学習期間、トレーニング時間、および学習時間、STM、およびLTMのテスト時間
| 遺伝子型 | 学習 調子 | CI ナイーブ | CI 訓練された | LI | LI 差 | 下限 (95%信頼区間) | 上限 (95%信頼区間) | p-値 |
| コントロール | STM | 0.467 | 0.116 | 0.752 | NA | NA | NA | NA |
| Dhap-at-RNAi | STM | 0.699 | 0.257 | 0.633 | 0.119 | -0.030 | 0.265 | 0.116 |
| コントロール | LTM | 0.590 | 0.384 | 0.348 | NA | NA | NA | NA |
| Dhap-at-RNAi | LTM | 0.697 | 0.650 | 0.068 | 0.280 | 0.103 | 0.446 | 0.003 |
表3:Analearnスクリプトから生成された統計データ。
analearnスクリプトから生成された統計データ。遺伝子型、学習条件( すなわち、学習、STM、またはLTM)、平均CIナイーブ、平均CI訓練、LI、実験条件(LI dif)と比較したコントロールのLI間の差異を含むブートストラッピングRスクリプトの出力ファイルは、 、LI difの95%信頼区間の下限(LL)および上限(UL)、および有意差がない確率を示すp値が含まれる。
| コントロール | Dhap-at-RNAi | ||||||
| 平均的な未経験者 | 訓練された平均CI | LI | 平均的な未経験者 | 訓練された平均CI | LI | ||
| STM | 1日目 | 0.300 | 0.125 | 0.584 | 0.679 | 0.239 | 0.648 |
| 2日目 | 0.634 | 0.107 | 0.831 | 0.720 | 0.276 | 0.617 | |
| すべての日 | 0.467 | 0.116 | 0.752 | 0.699 | 0.257 | 0.633 | |
| LTM | 1日目 | 0.590 | 0.441 | 0.252 | 0.630 | 0.646 | -0.027 |
| 2日目 | 0.640 | 0.363 | 0.432 | 0.709 | 0.710 | -0.002 | |
| 3日目 | 0.547 | 0.349 | 0.363 | 0.738 | 0.598 | 0.190 | |
| すべての日 | 0.590 | 0.384 | 0.348 | 0.697 | 0.650 | 0.068 |
表4 : 別々の試験日に得られたCIおよびLI値。
| 「naivelevel」は、各遺伝子型の純粋な値を識別するテキストを決定します。デフォルトは "N"ですが、これは他の英数字のテキストに変更できます。 |
| 「refmutation」は、デフォルトで「NA」(該当なし)に設定されていますが、統計比較を実行するためにコントロールまたは遺伝子型の名前に変更できます。 これにより、コントロールの遺伝子型を自動的に選択するためのcript。 |
| "datname"はデータファイルの名前を参照し、デフォルトのファイル選択の代わりにこの引数で指定することができます。 |
| 「ヘッダ」は、データファイルに列見出しが含まれているかどうかを示すために使用できます。 デフォルトは "TRUE"ですが、この引数が "FALSE"に変更されたときにヘッダーのないファイルを使用できます。 |
| "seed"は、乱数ジェネレータを初期化します。これは、デフォルトで "NA"に設定され、スクリプトが使用されるたびに乱数を保証します。 設計上、ブートストラップ解析では、同じデータファイルを使用している場合でも、実行するたびにわずかに異なる結果が得られます。 シードがゼロより大きい任意の整数で指定されると、ランダムブートストラップサンプルの同じセットが得られる。 |
| "書き出す出力ファイルが生成されるかどうかを判断するために "put"を "TRUE"または "FALSE"に設定することができます。デフォルトは "TRUE"です。 |
表5:Bootstrappingのパラメータを調整する関数のデフォルト設定を変更できるAnalearn関数で使用される引数
補足ファイルS1:求愛室の建物計画。このファイルは.stp拡張子(CADファイル)を許可する任意のアプリケーションで開くことができます。 このファイルをダウンロードするにはここをクリックしてください。
補足ファイルS2 : Analearnスクリプトの入力ファイルの例S2.zip "target =" _ blank ">ここをクリックしてこのファイルをダウンロードしてください。
補足ファイルS3 : The Analearn.R Acript。ファイルはR-studio 18で開くことができます。 このファイルをダウンロードするにはここをクリックしてください。
ディスカッション
求愛条件付けアッセイは、ショウジョウバエの学習と記憶の分析のための古典的なパラダイムである。ここに提示されたプロトコルは、前に説明した一般的な方法論6,7,8,9に従うが、実際のガイドライン、特殊化された装置、ランダム化テストのためのデータ解析スクリプト9,12などの独自の側面を含む。このプロトコルを使用して、96ウェル平底ブロック( 図2A )を用いて多数のハエを並行して分析し、オスを集めて訓練することが可能である。ブロックはPCR接着フィルムでシールされているため、必要に応じてハエに簡単にアクセスできます。さらに、ここに記載されたユニークな求愛室は、ほぼ2次元の空間で18対の男性 - 女性対を同時に対にすることを可能にするビデオ分析に最適です。カスタム設計された求愛室は使いやすく、建築計画が用意されています( ファイルS1 、 図2D )。このプロトコルは、被験者を収集するために使用される培養物の確立からビデオデータの取得まで、約20日を要する( 表1 )。ビデオデータの分析には、追加の時間が必要です。私たちの経験では、STMアッセイは非常に堅牢です。 LTMアッセイも非常に堅牢ですが、混乱する環境変数に対してより敏感であり、したがって、習得がより困難になります。
動物の行動はかなり変化する可能性があります。したがって、この分散を小さくするために、プロトコルの重要なステップを注意して実行する必要があります。第1に、アスピレーター( 図2B )の穏やかな使用は、荒い取り扱いまたはあまりにも強く吹き飛ばすことによって課される可能性のあるストレスを軽減する。個人を移転するための提案された方法負のジオタキシスを使用することによってアスピレーターから飛行機を飛ばす。飛行機が上がる傾向があるので、アスピレーターの先端を上向きにすることができます。フライがチップに到達する直前に、フライを放すには穏やかな打撃で十分です。さらに、テストの前に男性を求愛室に入れるために、しばしば打撃が必要ではない。
もう1つの重要なステップは、男性のテスト対象の収集と生成です。すべての男性は非常に若く、社会的に未熟な時に収集されなければならない。これは、盛土のピーク期間中に頻繁に収集することによって達成することができる(ステップ5.2)。この厳しい時期に男性が徴収されないと、早期の社会的相互作用が起こり、結果として学習が貧弱になるか、CIの変動性が高くなる可能性があります。評価すべき男性試験被験者のもう一つの要因は、遺伝的背景である。異なる遺伝的背景は、異なるレベルのナイーブな求愛を示し、また一般的な活動または歩行能力においても異なる可能性がある。コンパートメントLIのスコアに影響を与えるかもしれないこれらの交絡因子を避けるために、遺伝的背景に関して注意を払うべきである。さらに、CIデータの配布を慎重に評価する必要があります。 CIデータは、遺伝子型または他の環境要因に依存して、パラメトリックおよびノンパラメトリックの両方であり得る。場合によっては、CIの分布が正規分布から劇的に歪んだ場合、LIの計算に平均値ではなく平均値CIを使用するほうがよい場合もあります。しかし、私たちの経験では、中央値または平均CIを使用してもデータの統計的解釈に違いはなく、平均CIの使用は文献の一般的なプラクティスです。
求職者のコンディショニングを成功させるためには、訓練期間中に前提の女性による男性の求愛の試みを積極的に拒絶することが重要である。このアッセイで使用される前もって飼育されたメスが効率的に交配されていることを確認することが重要である。交絡を許さない。この準備は、工程4で調製された交配用バイアルに確立され、ここで、オスとメスのハエを4日間一緒に収容する( 表1 )。その後、交配は、定期的に検査ビデオを検査し、訓練中に男性 - 女性のペアを観察することによってモニターすることができる。交配が起こる場合、前もって準備された女性の準備中に取ることができるいくつかの措置がある。まず、前もって飼育した雌を最適飼育条件下で飼育しなければならない。バイアルに酵母ペーストと折り畳まれた濾紙を補充して、潜在的な接合面を増加させることができる。ここに記載された条件下でハエをインキュベートすると、過去の頑強な前雌が産生されましたが、これは異なるラボや異なる遺伝的系統の使用によって異なる可能性があります。したがって、インキュベーション時間および条件を変化させることにより、前雌の発生を最適化することが必要な場合がある。
求愛行動の定量化はこのプロトコルのもう一つの重要なステップ。これは、特別なソフトウェアプログラム9を使用して手動または自動で行うことができます。自動化された定量化は高速で、原理的には不偏である。いくつかのプログラムが21,22,23に公開されている。しかし、それらは使用するのが簡単ではなく、しばしば特殊なビデオフォーマットと高度な計算技術が必要です。手作業による定量は簡単で正確ですが、労働集約的であり、個々のばらつきや偏見の影響を受けます。このプロトコルは、CIの自動化された定量化に潜在的に必要とされるビデオフォーマットの要件に対応していないことを強調することが重要です。手作業による定量化のために、求愛行動を正確に観察するのに十分な品質のビデオを生成する可能性のある単純なビデオ記録装置を使用する。自動化された定量化のためには、自動化された定量化が望まれる場合、ユーザはこれを完全に調査しなければならない。
アフィシティコンディショニングアッセイは、ハエの遺伝子操作に利用可能な広範なツールと組み合わせて、学習や記憶に関与する分子メカニズムやニューロンネットワークを解明するために使用できる堅牢な読み出しを提供します。
開示事項
著者は何も開示することはない。
謝辞
我々はショウジョウバエ株を提供するウィーンショウジョウバエ資源センターを認めます。さらに、ブルーミントンショウジョウバエストックセンター(NIH P40OD018537)から入手したストックをこの研究で使用した。この調査は、欧州連合(EU)のFP7大規模統合ネットワークGencodys(KK、HvB、AS)、NSERC Discovery(NSERCディスカバリー)、CIHRプロジェクトグラント(JMK)
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| P{KK101437}VIE-260B | VDRC | 101437 | Dhat-at-RNAi in 60100 background |
| P{KK108109}VIE-260B | - | - | 60100バックグラウンドのControl-RNAi(K. Kelemanからの贈り物) |
| w +、UAS-dcr2 / yhh;;elav-Gal4 (III) | - | - | 汎ニューロンドライバーライン |
| 植物組織培養 | 用容器 VWR | 960177 | 175 mLプラスチックバイアル |
| 折り畳まれたフィルター | Whatman | 10311643 | ハエが蛹になることができる面積を拡大するためのフィルターペーパー |
| 平底ブロック(96ウェル) | Qiagen | 19579 | ハウジングブロックに使用 |
| マイクロアンペア 透明粘着フィルム | 応用バイオシステム | 4306311 | PCR接着フィルム 平底ブロックの蓋として |
| かみそりの刃 | - | -どんな鋭利なものでも針 | |
| - | - | 直径0.8mm | |
| アスピレーター | - | - | 1mLのピペットチップをハサミで切って2個にします。ピペットチップの細い先端は、~80cmのフレキシブルホースにフライエントランスとして配置されています。ハエがホースに入るのを防ぐために、先端とホースの間に通常の綿または小さなメッシュの視線が配置されています。ピペットチップの残りの半分は、ホースの端のマウスピースとして使用できます。 |
| 求愛室 | - | - | ファイルS1は、指定されたCADソフトウェアで開くことができます |
| ビデオカメラ | ソニー | カメラ | 仕様: >4M ピクセル、フル HD. 手動定量化の場合、単純なビデオ録画デバイスであれば、求愛行動を正確に観察するのに十分な品質のビデオを生成できる可能性があります。自動定量化の場合、使用するソフトウェアによって要件が異なる可能性が高く、自動定量化が必要な場合は、これを徹底的に調査する必要があります。 |
| 名前 | 会社 | カタログ番号 | コメント |
| power food | |||
| 寒天 | シグマ | A7002 | |
| ブルッヘマン | - | ||
| 酵母抽出 | 物MPバイオメディカル | 0210330391 | |
| ペプトン | シグマ | P6838 | |
| ショ糖 | シグマ | S9378 | |
| グルコース | シグマ | G7021 | |
| MgSO4 | Sigma | M2643 | |
| CaCl2 | メルク | 1023780500 | |
| メチルパラベン(注意) | ΣH5501 | ||
| プロピオン酸(注意) | シグマ | P1386 | |
| 塩水 | - | ||
| 酵母ペースト | - | 酵母粒と水混合物1:1の比率 | |
| 名前 | Company | カタログ番号 | コメント |
| 通常の食品 | |||
| 寒天 | MPバイオメディカル215017890 | ||
| 酵母 | ブルッヘマン | コーン | |
| 粉 | デモーレン | - | |
| シュガー | デモーレン | - | |
| メチルパラベン(注意) | シグマ | H5501 | |
| プロピオン酸(注意) | シグマ | P1386 | |
| 脱塩水 | - |
参考文献
- Quinn, W. G., Harris, W. A., Benzer, S. Conditioned behavior in Drosophila melanogaster. Proc. Natl. Acad. Sci. USA. 71, 708-712 (1974).
- Livingstone, M. S., Sziber, P. P., Quinn, W. G. Loss of calcium/calmodulin responsiveness in adenylate cyclase of rutabaga, a Drosophila learning mutant. Cell. 37, 205-215 (1984).
- Quinn, W. G., Sziber, P. P., Booker, R. The Drosophila memory mutant amnesiac. Nature. 277, 212-214 (1979).
- Dudai, Y., Jan, Y. N., Byers, D., Quinn, W. G., Benzer, S. dunce, a mutant of Drosophila deficient in learning. Proc. Natl. Acad. Sci. USA. 73, 1684-1688 (1976).
- Dubnau, J., Tully, T. Gene discovery in Drosophila: new insights for learning and memory. Annu. Rev. Neurosci. 21, 407-444 (1998).
- Siegel, R. W., Hall, J. C. Conditioned responses in courtship behavior of normal and mutant Drosophila. Proc. Natl. Acad. Sci. USA. 76, 3430-3434 (1979).
- Kamyshev, N. G., Iliadi, K. G., Bragina, J. V. Drosophila conditioned courtship: two ways of testing memory. Learning & memory. 6, 1-20 (1999).
- McBride, S. M., et al. Mushroom body ablation impairs short-term memory and long-term memory of courtship conditioning in Drosophila melanogaster. Neuron. 24, 967-977 (1999).
- Keleman, K., Kruttner, S., Alenius, M., Dickson, B. J. Function of the Drosophila CPEB protein Orb2 in long-term courtship memory. Nature Neurosci. 10, 1587-1593 (2007).
- Hall, J. C. The mating of a fly. Science. 264, 1702-1714 (1994).
- Keleman, K., et al. Dopamine neurons modulate pheromone responses in Drosophila courtship learning. Nature. 489, 145-149 (2012).
- Kramer, J. M., et al. Epigenetic regulation of learning and memory by Drosophila EHMT/G9a. PLoS Biol. 9. 9, e1000569(2011).
- Ishimoto, H., Sakai, T., Kitamoto, T. Ecdysone signaling regulates the formation of long-term courtship memory in adult Drosophila melanogaster. Proc. Natl. Acad. Sci. USA. 106, 6381-6386 (2009).
- Kochinke, K., et al. Systematic Phenomics Analysis Deconvolutes Genes Mutated in Intellectual Disability into Biologically Coherent Modules. Am. J. Hum. Genet. 98, 149-164 (2016).
- Buchert, R., et al. A peroxisomal disorder of severe intellectual disability, epilepsy, and cataracts due to fatty acyl-CoA reductase 1 deficiency. Am. J. Hum. Genet. 95, 602-610 (2014).
- JoVE Science Education Database. Essentials of Biology 1: yeast, Drosophila and C. elegans. Drosophila Maintenance. JoVE. , Cambridge, MA. (2017).
- JoVE Science Education Database. Essentials of Biology 1: yeast, Drosophila and C. elegans. An Introduction to Drosophila melanogaster. JoVE. , Cambridge, MA. (2017).
- R Core Team. R: A Language and Environment for Statistical Computing. R Foundation for Statistical Computing. , Vienna (Austria). (2016).
- Stepien, B. K., et al. RNA-binding profiles of Drosophila CPEB proteins Orb and Orb2). Proc. Natl. Acad. Sci. USA. 113, E7030-E7038 (2016).
- Basu, D. Randomization Analysis of Experimental Data: The Fisher Randomization Test. J Am Stat Assoc. 75, 575-582 (1980).
- Dankert, H., Wang, L., Hoopfer, E. D., Anderson, D. J., Perona, P. Automated monitoring and analysis of social behavior in Drosophila. Nat Methods. 6, 297-303 (2009).
- Reza, M. A., et al. Automated analysis of courtship suppression learning and memory in Drosophila melanogaster. Fly. 7, 105-111 (2013).
- Schneider, J., Levine, J. D. Automated identification of social interaction criteria in Drosophila melanogaster. Biol. Lett. 10, 20140749(2014).
再版と許可
