ここでは、我々 は技術、炭素電極の電気化学的直轄分光学的に調査される蛋白質が固定化酸化還元タンパク質フィルムの赤外線電気について説明します。単一蛋白質のサンプルの赤外吸収スペクトルは、さまざまなソリューションの条件の下でされた電位の範囲で記録できます。
方法論記事
タンパク質フィルム赤外線電気化学 [NiFe] ヒドロゲナーゼによって H2酸化反応に関する研究の実証
* These authors contributed equally
この記事について
サマリー
要約
蛋白質の内でセンター化学酸化還元を正確に制御を提供する酸化還元タンパク質要求メソッドを理解すること。タンパク質フィルム電気化学、タンパク質が電極表面固定化電極を置き換えます生理的電子ドナーやアクセプタ、その技術は別の範囲の酸化還元反応に機能的な洞察力を提供しています。蛋白質。完全な化学の理解には、追加の構造とメカニズムの洞察力を加えることができる他の手法と組み合わせることに電気化学的コントロールが必要です。ここに示す手法、タンパク質フィルム赤外線電気化学、蛋白質膜の電気化学酸化還元タンパク質の赤外分光法によるサンプリングを組み合わせた。技術は、高表面積カーボン電極上に固定された酸化還元タンパク質をプローブするのに多重反射減衰全反射率ジオメトリを使用します。この電極のフローセルへの取り込みには、pH または溶質濃度測定中に変更するができます。これは特に強力な酸化還元酵素、急速な触媒の売り上げ高を維持および触媒機構の中間的な長命種の分光学的観測を許可する電極で制御できますに対処。大腸菌ヒドロゲナーゼ 1 (H2酸化) の売り上げ高と非回転条件の下で実験手法を示す.
概要
タンパク質の機能の研究の主な課題には、体内またはのいずれかを使用して、その生理学的役割を行うタンパク質の直接観察は蛋白質のサンプルを分離できるようにその場観察手法の開発が含まれます。同時に測定されるタンパク質の機能の中に両方反応、評価されることができるテクニックの併用の実験手続きおよび使用にプロセスをトリガーまたはコントロールの統合および化学の個々 のステップが必要です。酸化還元タンパク質の場合、これはしばしば正確に制御応用の可能性が、ない直接の化学物質については、化学的に固有に敏感な分光学的手法を提供する電気化学の手法を組み合わせることに相当します。タンパク質の機能に関連付けられている変更。1,2,3明滅現象は様々 な分光学的手法とレベルの電気化学的制御を含む結合の電気化学的および分光学的方法の範囲のための一般的な用語です。多くの蛋白質は人工、水溶性電子ドナーとアクセプターに電子を交換できるし、これは紫外可視、4、5との結合を含む電子伝達を仲介する小分子を使用しての研究で利用されてきた,6,7磁気円二色性8と赤外線5,9,10、11,12,13,14 (IR)分光学。場合の限られた数のそれは蛋白質と電極との間の直接的、拡散制御電子のやり取りを悪用すること証明しています。15,16
触媒反応の実施酸化還元酵素、現在ソリューション電気化学手法による明確な欠点。ソリューションにおける酸化還元メディエーターを介して拡散制御電子転送になるあるレートを制限します。酵素の速度論と機構については失われる、少なくとも実験方法から生じる拡散工芸品からようになりましたにくくなります。直接かつ直接的に電気化学的制御は従って酸化還元タンパク質および酵素の研究のための重要なツールです。タンパク質フィルム電気化学 (PFE) の手法では、電子には直接蛋白質の内で酸化還元補因子またはが転送されることもある電極は、電位のシリーズで偏波としてそのような方法で、電極を固定化した酸化還元タンパク質を採用しています。17,18,19 PFE は酸化還元酵素によって触媒の酸化または還元反応の研究の特定の値の界面電子移動が非常に高いレートで得られる、です。たとえば、 Allochromatium vinosumからのニッケル-鉄 ([NiFe]) ヒドロゲナーゼの触媒離職率 PFE ca 1,000-10,000 の− 1 H2酸化として測定した.20電極の電位は、'on' または 'off' に、触媒と酵素活性の触媒の現在のレポートを有効にするためのトリガーとして機能します。PFE したがって [FeFe] のディ-鉄の活性部位の反応などの可能性に密接に依存する複雑な酵素の反応を分析するための貴重な方法-CO と O2、21を潜在的な誘導やヒドロゲナーゼ、一酸化炭素デヒドロゲナーゼは22 、23その他複雑な酸化還元酵素の不活性化反応。24
分光学的手法を組み合わせて PFE によって与えられる直接の電気化学的制御にプリンシパルの障壁に起因 1 2 pmol cm-2 [NiFe] ヒドロゲナーゼA. vinosumからの順序の酸化還元酵素の低表面被覆20バルク金属電極上小分子吸着層の場表面科学研究を基準にしています。これは分光学的測定の感度のための課題を提示します。いくつかの分光電気化学的方法は、種類の異なる電極での酸化還元タンパク質を固定化した勉強の報告されている: 透明金属酸化物電極で紫外可視分光法25,26,27蛍光分光法による金電極;28,29表面増強赤外吸収 (セイラ) 分光金電極;30,31,32,33と表面は、主に銀電極のラマン分光学的手法を強化しました。34,35
ここでタンパク質フィルム赤外線電気化学 (PFIRE) と呼ばれる技術で、IR の分光学と PFE を結合する方法をについて説明します。36 PFIRE メソッドは、炭素表面への蛋白質の範囲の吸着性を利用して、減衰全反射率 IR (赤外 ATR) ジオメトリと組み合わせて高表面積炭素電極上に固定された酸化還元酵素を研究します。赤外分光法は、多くの低分子化合物、配位子と補因子の反応性、バインディング、抑制、酸化還元状態を評価するために使用することができます診断の結果として酸化還元酵素とタンパク質の研究に役立ちます。鉄硫黄の中心を NO37研究フラビン蛋白、38,39,40の小分子がヘム センター等へのバインディングの例などがあります。41 ATR IR ジオメトリ構造が最適化された 3 電極 (分光) 電気化学セル42したがって優れた電気化学的制御を提供しています。作用電極の近くに電極を配置することによって、耐溶剤性、潜在的なドリフトを最小限に抑えられます。高表面積カウンター電極を作用電極で酵素の高速回転による高触媒電流と互換性があるされます。分光電気化学セルによるソリューションの流れは、安易な基板, 阻害剤と pH の濃度制御をできます。36,43,44 PFIRE メソッドしたがって、持続的な酵素電極の間に記録されたその場でする IR スペクトルをことができます。36,44 PFIRE もする酸化還元酵素の非触媒プロセスから情報を抽出することは困難ことができます PFE と対照をなして触媒現在、43の不在で化学物質情報を提供することの可能です。45,46
バイメタルの活性部位で Fe に配位した組み込み CO および CN リガンドを含む [NiFe] ヒドロゲナーゼによって触媒 H2酸化に関する研究 PFIRE 法を説明してきました。36,43,44 [NiFe] ヒドロゲナーゼ、PFIRE による研究に特に適してしたがって。PFIRE メソッド定常回転時に存在している種について説明します、したがって実験制御なしヒドロゲナーゼの IR 分光に関する文献の富に加えて重要な追究を提供します上売り上げ高。47,48のダイアーと同僚に NiFe ヒドロゲナーゼ、49,50,51光トリガーを使用していずれか小さな負電位ステップ (を介して使用を適用するを研究する時分割 IR 手法を採用しています。ソリューションのメディエーターと 'ケージ' 電子源) または photolyse バインドされている水素。PFIRE メソッドは現時点では、これらの測定値に合わせて時間分解能を40それは明確に定義された電位の範囲でアクセス還元と酸化触媒プロセスの研究を許可する、大量輸送から無料を提供することはできませんが制限があります。
PFIRE メソッドは、セイラも ATR IR ジオメトリを使用し、電極表面に吸着した分子の IR 吸光度を強化するナノスケール粗金属電極を採用して酸化還元タンパク質の研究から区別されます。30セイラは特に吸着膜タンパク質を研究のための非常に貴重な技術または模倣膜内のアーキテクチャが32金属電極の必要性は、反応のため基質と阻害剤のスコープを制限できます。CN-CO、CO2 等のような小さい分子への電極支援のプロトン化と自己組織化単分子膜の脱離に非常に負の電位で金属表面上問題となります、1,52保護されていない酵素電極金属電極が報告されています。53,54セイラを基準にして PFIRE の不利な点はネイティブまたは模倣膜アーキテクチャで膜タンパク質を組み込むことの相対的な難しさです。ただし、競合する小分子活性化反応に炭素電極の相対的なケトンは、PFIRE 特に生物学的酸化還元に関連する低潜在的なドメインでの酵素電極を研究のための優秀な技術ヒドロゲナーゼによるプロトン還元などのプロセス。1,43
この資料の目的は、電極固定化酸化還元タンパク質、例として大腸菌由来 NiFe ヒドロゲナーゼ 1 (Hyd1) を研究するための手法として PFIRE メソッドを紹介します。サンプル準備、良い基板フローとデータ処理の要件の考慮事項を説明します。PFIRE は広く適用技術、勉強できる吸着炭素電極上にどちらか直接酸化還元のタンパク質 (特徴的な赤外線吸収特性) または電子を交換することができますように表面改質の使用に適して、電極。
プロトコル
1. 嫌気性、乾いたグローブ ボックスと一般の実験的要件の中赤外分光計の内部試料室を再作成します。
- 外部水銀カドミウム テルライド (MCT) 検出器と ATR アクセサリ装備商業 FTIR 分光計を使用します。乾燥した空気や窒素、分光器の本体を削除またはまたは避難の光学ベンチを持つ分光計を使用します。
- 嫌気性と同じ高さで、振動のない安定したテーブルの上に装置を置く (< 1 ppm O2)、ドライ (露点 <-75 ° C) グローブ ボックス。多重ビームを収容できる大きさである IR 透明な窓から、グローブ ボックスに分光器の赤外線ビームをそらします。
たとえば、KBr や NaCl などの吸湿性の窓材を使用される場合は特にメモ: グローブ ボックスと分光器の間のスペースはまたパージまたは避難、ことは重要です。 -
グローブ内部分光計の内部試料室をレプリケートします。
- 分光器の内部集光ミラーと同じ焦点距離が理想的な軸から楕円面鏡にグローブ ボックス内ビームを直接します。
注: それは高さとグローブ ボックスの内部調整する赤外線ビームの方向の両方を許可するためにこの集光ミラーの前に置かれた 2 つの追加の平面鏡があると便利これは分光器の初期配置で任意の不正確さを相殺します。 - 外部の MCT 検出器の配置、適切なとの完全な (短い焦点距離 ZnSe レンズ、短い焦点距離での軸外放物面鏡など)、グローブ ボックスの中の光を焦点内部試料寸法をレプリケートするよう配置されて分光器のコンパートメント。
- 集光ミラーと MCT 検出器との間およそ等距離に赤外線ビームのフォーカスを調整します。
- 分光器の内部集光ミラーと同じ焦点距離が理想的な軸から楕円面鏡にグローブ ボックス内ビームを直接します。
- 液体窒素で外部の MCT 検出器のデュワーを冷却します。
- グローブ ボックスの試料室に ATR アクセサリをマウントします。入力と出力の光学系と ATR アクセサリ MCT 検出器に最大のスループットを達成するために焦点を合わせます。必要に応じて、検出器信号の過飽和を防ぐために開口部または他の適した減衰 (ワイヤー グリッド) などを使用します。
注: のデータ紹介、すべての反射光学系、反射要素 (怒り) を使用取り外し可能な台形 Si 5 反射 ATR アクセサリ (クリスタル GmbH、寸法ca 5 × 8 × 1 mm3顔の角度 39.5 °)。怒りは、ポリエーテルエーテルケトン (PEEK) から加工、取り外し可能なベース プレートにマウントされます。 - 外部収納ポテンシオスタットへの接続を許可するように適切なフィードスルーと再現試料室を収容するためグローブ ボックスを使用 (ガス タイトな BNC 接続役にこの目的のため)、ガス アクセスと、MCT から信号を転送するケーブル検出器です。任意の導入のノイズや測定への干渉を避けるために検出器ケーブルのシールドを保持することが重要です。
- 場所蠕動性ポンプ、流量、グローブ ボックス内 60 mL/分を超えることができます。分光器の概略図で、ATR アクセサリ、蠕動ポンプと電気化学測定装置のセットアップは図 1に示すです。
- 図式的に示す図 2ATR にシール、アクセサリーなどの分光電気化学セルを構築します。セルには、作用電極 (カーボン棒)、ミニチュア参照電極の接続、高表面積カウンター電極 (Pt 線またはガーゼ) を含める必要があります。セルは、入口とセルを介してソリューションの急速な流れのための出口として、少なくとも 2 つのさらにポートを含める必要があります。
注: ミニチュア カロメル参照電極は、この目的のため最適です。36
2.大腸菌ヒドロゲナーゼ 1 カーボン ブラック粒子の調製
- 'ウェット' 嫌気グローブ ボックスのミックス高表面積の 20 mg カーボン ブラック粒子 (> 1,000 m3/g) 1 mL 超高純度水 (抵抗率 > 18 MΩ cm) 微量遠心チューブに。低出力超音波処理による粒子を分散 (< 100 W)、少なくとも 15 分間または分散が均一であり約 20 mg/mL のローディングとカーボン ブラック分散を与える 1 h 内沈降をしません。
-
〜 7 mg タンパク質/mL の濃度で大腸菌ヒドロゲナーゼ 1 (Hyd1、パブリッシュされたプロシージャ55にしたがって調製された約 50 μ L) の因数を取るし、(等電点に近い ph の低いイオン強さバッファーに交換例リン酸カリウム、pH 5.8、追加塩 15 mM)。最良の結果を達成するために可能な限り積極的にある酵素製剤を使用します。(50 kDa の作品は、Hyd1 の) 濃度と希釈、適切な分子量カットオフ遠心ろ過デバイスにバッファー交換を実行します。
- フィルター デバイスに、Hyd1 を追加します。
- 交換バッファーの約 450 μ L で希釈します。
- 穏やかなの遠心分離を使用して 50 μ L のボリュームを再び集中させるでしょう (< ~ 2700 × g) 不可逆的な沈殿物を防ぐために。
- (~ 5 サイクル) の内で通常バッファー交換が完了するまでは、2.2.2 と 2.2.3 手順を繰り返します。
- バッファー交換 Hyd1 の 50 μ 因数とカーボン ブラック分散 (2.1 の準備) 20 mg/mL の 5 μ L のボリュームをミックスします。(0 の ° C) の冷凍庫で一晩吸着酵素を許可する酵素粒子の混合物を格納します。粒子が分散したままを確認して時折混合物を振るする必要があります。
- 遠心機 (~ 2,700 × g) で連続堆積作用と再分散サイクルによって低いイオン強さバッファー (リン酸カリウム、15 ミリメートル、pH 5.8、追加塩) と Hyd1 変更の粒子を洗浄します。このプロセスに 3-5 回を繰り返す非吸着酵素を削除します。
注: 最初の洗浄の前に清が酵素の良い吸着を示す無色でする必要があります。 - 〜 5 μ L の最終巻に粒子を集中すると、~ 20 mg/mL の酵素修飾粒子の最終的なロードを与えます。
注: Hyd1 変更粒子場合格納できます 4 ° C で 2 週間のまま水和物;これは最高 〜 50 μ L の超高純度精製水で希釈した粒子を格納することで実現されます。
3. のE. 大腸菌ヒドロゲナーゼ 1 PFIRE 測定準備
- ように低出力超音波 (< 100 W)、H2の最初で Si 怒りをクリーンアップ4 (< 90 %w/w) 〜 15 分間放置、HNO3 (70%/w) まで 1 時間。このクリーニングの手順は、親水性の怒り表面につながるはずです。ピラニア溶液中の怒りを置くことがそれ以上のクリーニングが必要な場合 (H2O2の比率 1:3: H2SO4) 残りの有機物を酸化します。
注: 過酷な酸性洗浄方法はすべて IRE 材料の使用に適していない場合があります。ピラニア ソリューションは強い酸化表面きれいにすべき合理的に準備中にピラニア ソリューションとケアの利用をすべきであるし、H2O を追加プロセスの - 常に発熱性質のピラニア溶液の使用前に、腐食性の高い2ゆっくりとH2SO4準備、利用及び処分のため適切な安全手順を参照してください。 - 超高純度水のきれいな怒りをすすいで乾燥窒素ガスの流れの下で乾燥します。汚染を避けるためにクリーンなピンセットを使用してすべてのプリズム処理を実行します。
- 電気用シリコーン ・ シーラントの薄いストリップを使用して ATR アクセサリー ベース プレートに怒りをシールします。怒りの端にシールを制限に注意してください。完全に乾燥剤を許可します。
- ATR アクセサリー ベース プレートを分光器グローブ ボックスに転送し、ATR アクセサリにマウントします。急速に標準を使用して、4 cm-1解像度で 4000 1,000 cm-1間の参照 (背景) スペクトル測定は、分光器のモードと 1024 の平均インターフェロ (計測時間 3 〜 5 分) をスキャンします。実験の後半に吸光度スペクトルの計算を許可するようにこのスペクトルを入力として使用します。
注意: 小さな吸光度 Hyd1 アクティブ サイトの予想により、ノイズ比に高信号とスペクトルを収集する必要は。 - ATR アクセサリー ベース プレートを事前に用意された Hyd1 変更粒子分散 (セクション 2) が含まれている 'ウェット' グローブ ボックスに転送します。ドロップ キャスト、怒りの大きな顔の上に粒子の分散の 1 μ L 因数の表面を渡って均等に広がる。注: は、怒りを完全に乾燥してしまう粒子は認めません。
- サイズ ~0.1 mm IRE (ca. すなわち8.2 × 4.9 mm2) の表面の寸法より小さくして、燃料電池のガス拡散層材料として使用などのカーボン紙の一部をカットします。カーボン紙の表面積はドロップ キャスト Hyd1 変更粒子をカバーするのに十分な大きさにする必要がありますが、重複しないように大きいシリコーン シール剤を使って怒りをセキュリティで保護します。炭素紙は水に浸し、優しく粒子フィルムの上に置きます。カーボン紙は全粒子フィルム間で良好な電気的接続を提供します。
注: それはカーボン紙のいくつかの部分を事前に準備し、超高純度水 'ウェット' 嫌気グローブ ボックス内部にあらかじめ浸して保存に有益です。 - 怒りの分光電気化学セル (1.7 の説明および図 2に模式的に示すように) をマウント、ネジでベース プレートに固定します。〜 200 μ L の酵素水和を維持する実験的バッファーを追加します。広い pH 範囲でバッファリングできる混合バッファー システムは NiFe ヒドロゲナーゼの研究に役に立つ:56ナトリウム酢酸、2-[N'-morpholino] エタン-スルホン酸 (MES)、 N'-[2-ヒドロキシエチル] ピペラジン -N'-[2-エタン-スルホン酸] (HEPES)、 N'-トリス [ヒドロキシメチル] メチル-3-アミノ-プロパン-スルホン酸 (タップ) と 2-[N'-cyclohexylamino] エタン-スルホン酸 (CHES)、各コンポーネントは 15 mM の最終的な集中で、0.1 M を含む塩化ナトリウム ph 調整 pH 6 を使用する電解質のサポートとしては、水酸化ナトリウムと塩酸を集中しています。
注: 作業中の電極接続はべきである分光電気化学セルの上端 (~0.1 mm) カーボン紙 (図 2) に良い電子接続を確保するための面の下わずかに突出しています。 - 液入口と分光電気化学セルのコンセントをローラー ポンプ用チューブと実験的バッファーのバイアルを含むフロー システムに接続します。分光計を含む '乾燥' グローブ ボックス組立セルに転送します。
- ATR アクセサリに分光電気化学セルの組み立てをマウントします。作業、カウンターおよび参照電極をポテンシオスタットに接続します。ローラー ポンプ用チューブをポンプに接続します。
- 参照/背景として 3.4 で収集されたスペクトルを使用して、スペクトル範囲は 4,000 1,000 cm-14 cm-1解像度で平均 1024 インターフェロと吸光度スペクトルを記録します。この時点でスペクトルが重要な含める必要があります (> 100 mO.D) アミド II ~ 1,540 cm-1にバンドと Hyd1 のアクティブ サイト バンドはスペクトル領域 1,850 2,150 cm-1、酸化、非アクティブな状態 (図 3 で主に明らかにする必要があります。).
4.大腸菌ヒドロゲナーゼ 1 と分光電気化学セルでテストの活性化
- Hyd1 変更粒子フィルムに還元電位 (−0.8 V対SCE) を適用します。実験的バッファーと分光電気化学セルをゆっくりと H2とフロー バッファーを飽和させます。サンプルは、Hyd1 を完全に有効にするために一晩おきます。
注: それは重要、嫌気性の H2N2 等、およびすべての嫌気性ガス O2フィルターを介して渡す必要があります。 - 活性化した後、サンプルの吸光度スペクトルを記録します。ΝCOとvCNバンド アクティブ サイトの減少、「アクティブ」状態の分布が表示されます。これは 3.10 (図 4) に記録されたスペクトルを基準の差スペクトルを使用して最も容易に観察されます。
- 分光電気化学セルの電気的接続をテストします。これを行うには、N2ガス実験的バッファーを飽和させます。(0 V対SCE) を酸化・ Hyd1 変更粒子フィルムに ( ca 30 分の期間) の (−0.8 V対SCE) 電位を還元のシーケンスを適用し、それぞれの吸光度スペクトルを記録します。Hyd1 は急速に酸化して縮小した、する必要がありますになるし、サンプルの 100% が適用される可能性に応答粒子フィルムがよく接続されている場合。
- 実験的バッファーの適切な流量を設定します。これを行うには、サンプルでは、減少の潜在性 (−0.8 V対SCE) に適用し、H2実験的バッファーを飽和します。-0.707 間サイクリックボルタモ グラムの一連の記録 - 0.039 V対SCE 10 mV/秒のスキャン レートで徐々 に増加 H2の流量-バラメーター触媒の波形に似ている平面回転までの間飽和バッファーディスク電極55と最大電流は関係なく流量 (図 5)。
注: H2水の溶解度限界は 293 K と 1 つのバーで ~0.8 ミリメートルです。 - サンプル PFIRE 測定の準備として、ソリューションの条件 (pH、温度、H2濃度など) の範囲の下で、電位の範囲でスペクトルを収集します。Hyd1 H2酸化反応などの触媒プロセスを勉強して場合は特に分光学的、電気化学的データを関連付けることができることが重要である電気化学測定装置ソフトウェアを使用してすべての電気化学的データを記録します。
5. 分光データ処理
- アクティブ サイトが 0 V と −0.8 V対実験の終わりに SCE にスペクトルを記録することによって測定の過程で恒久的に変更されていないことを確認します。これらは 4.3 に記録されたスペクトルと同一にする必要があり、(図 6) 測定時に活性部位の損失する必要がありますられなかった。
- 適切な形式の装置ソフトウェアから絶対吸光度スペクトルをエクスポート (.csv、ASCII、'matlab' Jcamp等) 起源や Matlab などのソフトウェアを使用して処理します。
-
ベースラインは、図 7に示すプロセスを使用して、データを修正します。
- 小さな識別するために各吸光度スペクトルの二次導関数は範囲 1,800 2,150 cm-1(< 1 mO.D。) 活性部位は、大きくカーブした水を背景にバンド。
- 元の吸光度スペクトルのベースライン マーカー ポイントを配置し、'スナップ' 実験スペクトル ポイントを設定します。
- 補間スプライン関数または多項式関数を使用して点を基準に適合します。このベースライン関数は実験データからを減算します。
結果
図 1は、PFIRE 測定用分光器、グローブ ボックス、ATR アクセサリ、電気化学測定装置、ガスの流れシステムの実験整理の概略図を示します。図 2は、代表分光電気化学セルの図面を示しています。
図 3に示す実験的バッファー (pH 6.0 3.7 で説明されている混合バッファー システム) と、ドロップ キャスト Hyd1 変更粒子の吸光度スペクトル分光電気化学セルを流れます。Hyd1 の表面被覆率は ~ 235 mO.D のアミド II バンド強度を図 3に示す例では特に高い。最低限の「バルク」水によって証明されるよう O H ストレッチ地域 (3,600 ~ 3,000 cm-1) の大きさ 〜 1,640 cm-1、アミド畳み込みバンド基準にして私 Hyd1 のバンドと水 H O 曲げ。C H ストレッチ地域 (カリフォルニア州 2900 cm-1) の蛋白質のための追加のバンドを見ることができます。2,100 cm-1を中心としたブロード バンドは、H2O の分子液体の水における水素結合ネットワークのための制限された回転は、低いエネルギー libration バンドのセットと H O 曲げ振動の組み合わせバンドです。アクティブ サイトの酸化、非アクティブ、Ni B 状態のνCOバンドは明らかに 1,943 cm-1、基線補正がなくても、 νCN機能は 2,050 2,100 cm-1 の間はっきりと見える.高 Hyd1 カバレッジ多くのカーボン ブラック フィルム57の多孔構造が酵素によってブロックされた、PFIRE 測定中に「バルク」水濃度を低くため。
図 3にスペクトルは Hyd1 映画を含む酸化、非アクティブな状態で Hyd1、アクティベーションの前に、ことを示します。活性化 (縮小)マイナス(酸化) 違いの準備としてスペクトルを示す図 4に示すように活性化が −0.8 V 対 H2雰囲気下で SCE が減少の形成につながる触媒活性状態で一晩します。Hyd1。ΝCO領域を使用して、Hyd1 の差スペクトルを最も明確に解釈できます。アクティブ サイトの各一意の状態は 1 つだけ CO バンド 2 つの CN バンドと比較して、従ってνCN地域は本質的により複雑であり、多くの重複するバンド。図 4の差スペクトルは、活性化は酸化、非アクティブな Ni B および Ni - si ('アクティブ' 最も酸化した状態) として準備 Hyd1 映画にあった少量の損失 (否定的な吸収バンド) につながることを示しています。これらは Hyd1; の 'アクティブ' の状態に置き換えられますNi C、Ni R と Ni l. 注 2 νCOバンドによって証明されるように、Ni R と Ni L の州の両方の 2 つの形態が図 4にこれらの種の観察。複数の Ni R と Ni L 状態の観測は、他の NiFe ヒドロゲナーゼと一致しています。48,58,59
PFIRE メソッドのキーの確認は、サイクリックボルタモが平面の回転ディスク電極に記録されるそれらに類似した触媒ウェーブシェイプ分光電気化学的フロー セル表示中 Hyd1 の記録です。55実習ではこれは基板 (H2) 及び製品 (H+) 分光電気化学セルに固定された Hyd1 への大量輸送は効率的に PFIRE 測定時に使用流量を意味します。触媒の波形に及ぼす流量の影響はに示す図 5連続電位分光電気化学セルによるソリューションの流量が増加すると (1 つの棒) H2雰囲気下で記録を表わす。すべてのケースで、過電圧 Hyd1 H2酸化は同一 (赤影付きの四角形)、酸化の不活性化の程度 (現在の酸化及び還元中間ヒステリシス スイープca 0 V 以上の電位で対SCE)、現在最大の H2酸化がソリューションの流量に依存します。52 mL/分 (光灰色ボルタモ グラム) 触媒の波形はさらに敏感でない上記流量に流量が増加します。
図 6下酸化不活性化嫌気性と初期活性化と 0 V対SCE (Ar 雰囲気で、4.3 で説明したよう) の下で嫌気性再酸化後に Ni B 状態のνCO バンドの相対的強度を比較し(5.1 に従って) 連続実験 V 0対SCE 48 時間後に Ar 雰囲気。測定中はアクティブ サイト バンド強度の損失は認められなかったとされた電位に応答するすべての Hyd1 のサンプル。
図 7は、この作品を通して使用されるベースライン補正手順を示します。アクティブ サイト地域 (図 7、) で Hyd1 サンプルの絶対スペクトルには、水のための重要な曲率が含まれています。実際には、溶媒として水を使用する要件は、生命科学における赤外分光法のほとんどの適用のための問題です。サヴィツキー ゴレイ スムージング 9 ポイント ウィンドウ上で起源のソフトウェアを使用して計算絶対スペクトル (図 7b) の二次導関数は、湾曲した背景 Hyd1 アクティブ サイトのシャープなバンドを識別するために使用できます。2 番目の微分スペクトルを用いた近似的ピーク位置の同定は、アクティブ サイト バンド (図 7で円) 無料の絶対スペクトル領域に配置されるベースラインのアンカー ポイントをことができます。3 次スプライン関数は、Hyd1 活性部位 (図 7起因ピークのみを含むベースライン補正スペクトルを与えるための絶対スペクトルから減算して、ベースライン関数を作成するこれらのアンカー ポイントを装着です。c)。
図 8は、非回転 (Ar 雰囲気中) と電位の範囲で売り上げ高 (H2大気) 条件の下で Hyd1、PFIRE 測定の結果を示します。36現在時間の痕跡 (図 8、) レポート各触媒の現在の可能性を適用し、非回転条件 (Ar 雰囲気中) の下でゼロの現在に近いのまま。図 8bで部分的な分光電気化学的酸化還元滴定は、したがって、各潜在的な触媒の転換の留守中に期待の状態の分布を示すアクティブ サイトの平衡酸化還元挙動に報告します。図 8cのスペクトル (H2大気) の下で回転の条件下で記録された、したがって、アクティブ サイト状態 Hyd1 H2酸化触媒の間に現在の定常状態分布を表します。触媒 H2酸化電流図 8、(H2) −0.199 V、−0.074 V対彼女; 時間の関数として定数に残るという事実によって定常状態が達成されていることを確認しました。+0.356 V 時の電流で単調減衰対Hyd1 のよく知られているの嫌気的酸化不活性化のためです。55活性部位の状態の分布はすべての電位で Ar と H の2の下で明確に異なる Hyd1 が触媒を実行します (図 8b−0.199、−0.074、+0.356 V でスペクトル対彼女)。Ar と H2の下で記録されたスペクトルが −0.594 V対彼女、事実上同じし、これは実験の一貫性の重要なテストを表しますHyd1 は ph 6.0 (図 8、 Ar と H2の下での電流がゼロに近い)、重要な速度で H+を減らさないし、−0.594 V でスペクトルが同じにする見込め。
図 9に示します嫌気的酸化不活性化現在時間トレースに記載されている灰色の時間間隔中に記録されたスペクトルの Hyd1を介して36対 +0.356 で H2酸化 Ni-Ni SI からの B の形成図 9に。−0.074 V Hyd1 酸化不活性化が行われない、活性部位の状態の分布全体の潜在的なステップを通して一定している残る。これは図 9b私、−0.074 潜在的なステップ、および後で記録された図 9biiの冒頭に絶対ベースライン補正スペクトルを報告するスペクトルによって示されて潜在的な段階の時間し、図 9b私の相対的な差スペクトルとして報告されます。図 9biiiのスペクトルとbiv 図 9 b私、相対差スペクトルとしても報告されているし、中に Ni b Ni SI の漸進的変換の可能性を示し不活化、+0.356 V の図 9で示されている現在の単調減少と一貫性のあります。
PH の範囲で記録されたスペクトルは、触媒の Hyd1 中にステップ サイクル プロトン移動に洞察力を与えます。43図 10 pH 3.0 で pH 9.0、分光電気化学セルのソリューション フローを使用して実験のバッファーを交換する同じ Hyd1 フィルムに記録 PFIRE スペクトルを示しています。Ni C と Ni L 状態の相対濃度はこれらの 2 つのスペクトルで明らかに異なっています。非回転の条件下で適用される可能性を変えることによって NiC と Ni L の電位依存性の pH 値 (図 10のb) の範囲に急速に決定することができ、両方の状態は広い pH 範囲で心臓に見られる状態します。(図 10bのピーク吸光度がわかりやすくするため、Hyd1 の滴定は、イダルゴらによって報告されている完全酸化還元 Ni C および Ni L の状態だけを示すことに注意してください)36 Ni C および Ni L の濃度の pH 滴定を抽出できます、Ni C および Ni L の濃度がそれぞれの ph (図 10のc) 最大電位でピーク吸光度を撮影します。この方法で、EPR のデータと組み合わせて、Ni C と Ni L 状態の pH 平衡が確認されました。43
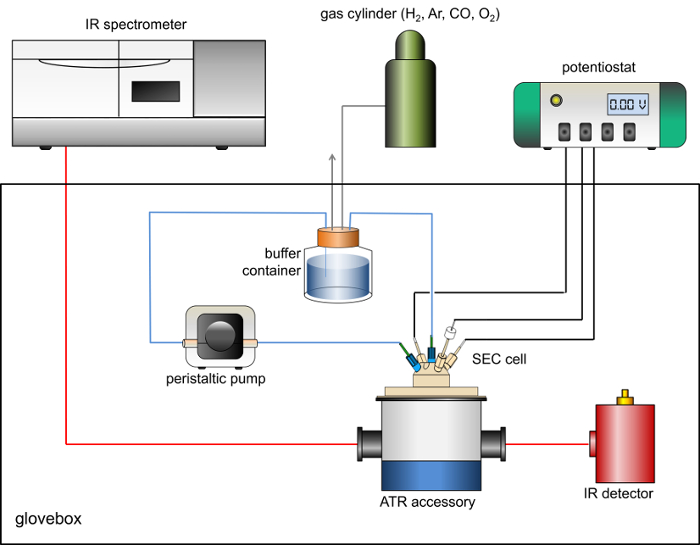
図 1:IR 分光計、嫌気グローブ ボックス、atr、MCT 検出器の配置の模式図ガス フロー システム、ポテンショスタット PFIRE 測定に使用します。この図の拡大版を表示するのにはここをクリックしてください。
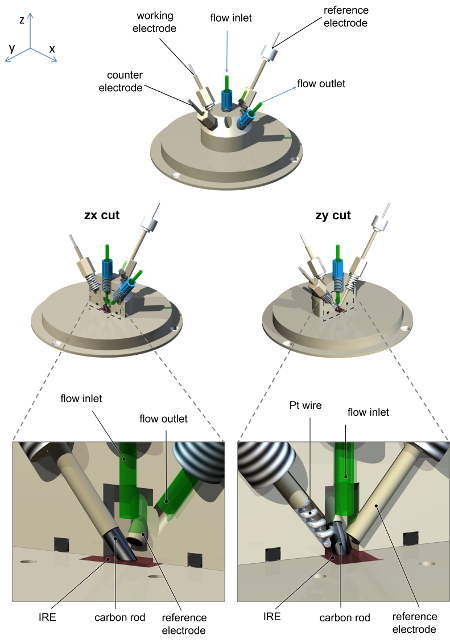
図 2:入口/出口接続電極およびソリューションの配置を示す PFIRE 測定用分光電気化学セルの概略図。セルとベース プレートは、炭素棒電極接続、Pt ワイヤ カウンター電極、カロメル参照電極と液入口と出口のためのネジ穴と、ポリエーテルエーテルケトン (PEEK) から加工されています。カロメル参照電極構造が以前として報告されます。36この図の拡大版を表示するのにはここをクリックしてください。
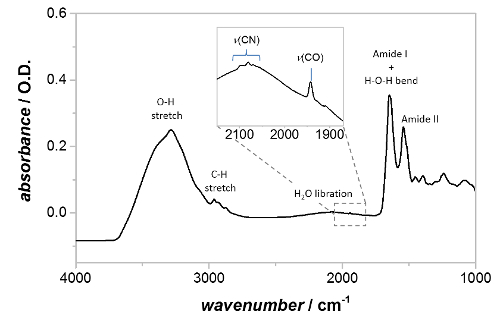
図 3: Hyd1 変更カーボン ブラック粒子、怒りの上に堆積され、バッファーに退避の吸光度スペクトル。C H 伸縮振動と溶媒の水のための追加機能と一緒に、アミドの私のバンド、アミド II バンド、および Hyd1 活性部位領域の位置が表示されます。差し込みラベルvCOとvCNのバンドと活性部位領域の拡大で表示されます。粒子 ' としての準備」にはには、酸化、非アクティブな Ni B 状態で主に Hyd1 が含まれています。この図の拡大版を表示するのにはここをクリックしてください。
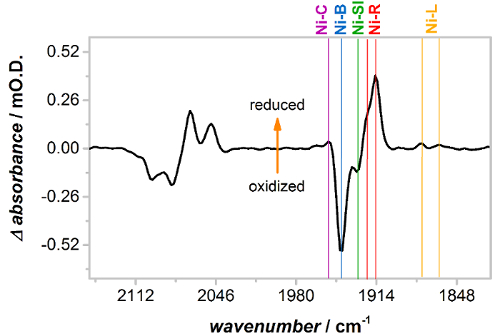
図 4: Hyd1 −0.8 V対SCE 削減マイナス酸化差スペクトルとして提示 H2雰囲気下でのアクティブ化。低電位活性化酸化、非アクティブな Ni B (Ni SI の小さな濃度) に変換しますより縮小、アクティブ状態、Ni C Ni R と Ni L. メモ Ni L と Ni R の 2 つの異なるサブ状態を Hyd1 にはこの図の拡大版を表示するのにはここをクリックしてください。
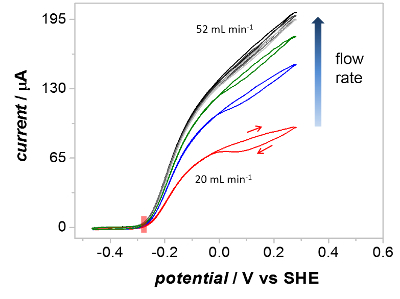
図 5: 分光電気化学セル触媒サイクリックボルタモ グラムの波形に及ぼすソリューション フロー速度を記録した。H2の流量を増やすことで記録された電位-示されるバッファーを飽和。(赤) 20 mL/分の流量で、ボルタモ グラムは前方スキャン 0 V対彼女上重要な不活性化を示しています。52 mL/分以上の流量で不活性化の程度は非常に低いと電流がすべてポテンシャルにおける流量の独立しました。その他のパラメーター: 1 H2、10 mV/秒のスキャン レート バー。この図の拡大版を表示するのにはここをクリックしてください。
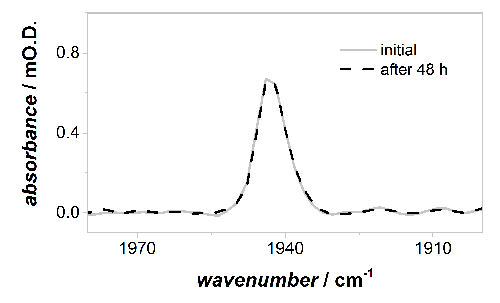
図 6: ベースライン修正 0 V対SCE で酸化、非アクティブの Ni B 状態のアクティブ サイトνCO 地域に IR スペクトル。48 時間連続の PFIRE 測定の中には活性部位の強度の測定可能な損失、カーボン ブラック粒子のため Hyd1 は確実に吸着します。この図の拡大版を表示するのにはここをクリックしてください。
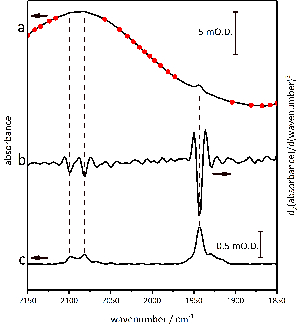
図 7:データ処理に使用されるベースライン補正手順の詳細します。ベースラインのアンカー ポイントは、 νCOとνCNのピーク第 2 デリバティブ分析 (b) から特定を避けるために世話 (、)、アクティブ サイト地域における絶対吸光度スペクトル上に配置されます。結果として得られるベースライン修正されたスペクトルは、(c) に表示されます。この図の拡大版を表示するのにはここをクリックしてください。
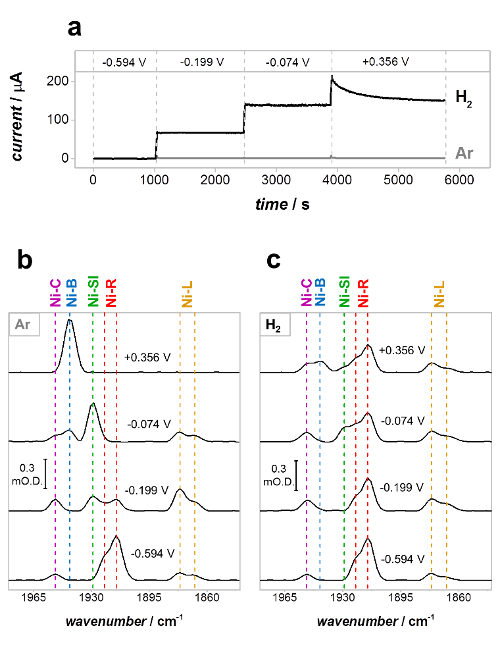
図 8:非 (Ar) 売り上げ高と売り上げ高 (H2) 条件の下で Hyd1 の PFIRE 測定。Ar 飽和 (グレー) と H2の分光電気化学セルに Hyd1 の (、) 現在時間の痕跡-飽和 (黒) バッファー;(b)、(c) PFIRE スペクトルνCO [Ar (b) と (c) H2可能性のある地域を示します。電位 V対の引用符で囲まれた彼女。イダルゴらの許可を得て再現35この図の拡大版を表示するのにはここをクリックしてください。
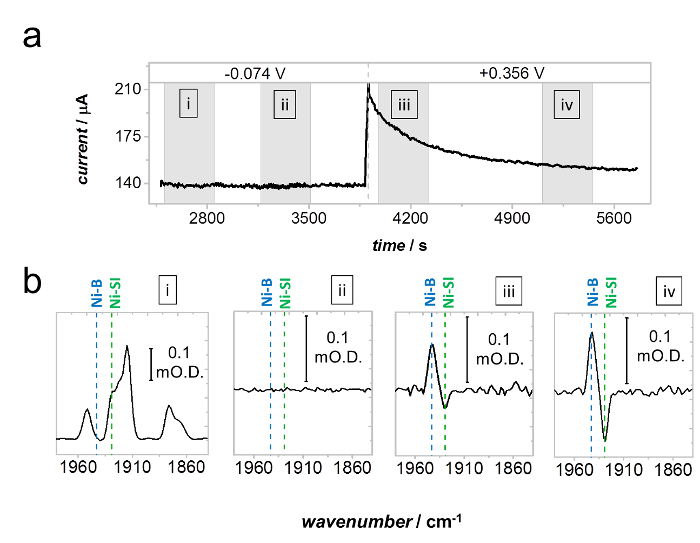
図 9:Ni-Ni SI からの B の形成を介してHyd1 の嫌気性不活化します。(、)、+0.356 V、−0.074 V と遅い嫌気性不活化 (現在の単調減少) で現在安定した触媒を示す H2雰囲気下で現在時間トレース対彼女。(b) スペクトルがでマークされている灰色の影の領域の中に記録された (、)。スペクトル b私は −0.074 V の潜在的なステップの先頭に記録されたベースライン補正スペクトルです。スペクトル bii−0.074 V ステップの間に後で記録は b は私の相対的な差スペクトルとして報告され、−0.074 V の電位の安定性と一貫性のあるアクティブ サイトの状態の分布の変化が発生しないことを示します。Iv b は私の相対的な差スペクトルとしても報告されているし、+0.356 V で嫌気性の不活性化過程における Ni b Ni SI の漸進的な変換を示すスペクトル biiiと b対彼女。イダルゴらの許可を得て再現35この図の拡大版を表示するのにはここをクリックしてください。
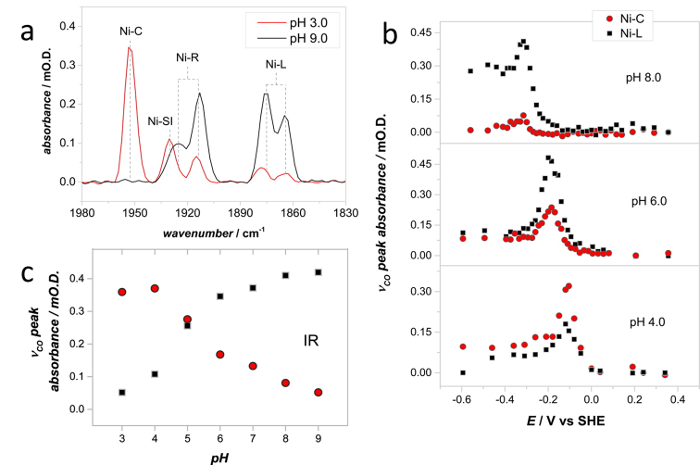
図 10: プロトン移動に洞察力を与える pH の範囲で記録されたスペクトルで、Hyd1 の触媒サイクル中に手順します。Hyd1、 νCO領域を示す (、) IR スペクトルは pH 3.0 (-54 mV対彼女) と pH 9.0 (-334 mV対彼女) に記録されます。(b) 分光電気化学の滴定は Ni C, Ni-L の濃度がソリューション pH 値の範囲での最大値ではポテンシャルを決定するを行った。わかりやすくするため、Hyd1 を参照してくださいイダルゴらの完全分光電気化学滴定の Ni C, Ni-L の濃度のみが表示されます。Ni C と一連の (b) に示すような実験から決定された Ni-l の相対濃度の36 (c) pH 依存性。20 ° C で記録されたスペクトルMurphyらからの許可と適応42この図の拡大版を表示するのにはここをクリックしてください。
ディスカッション
PFIRE は、電極固定化酸化還元タンパク質に対処するために広く適用 IR 分光法です。特に、酸化還元酵素の触媒反応は、高速回転条件下で検出できます。PFIRE メソッドは、直接構造情報を提供しないし、炭素電極で IR の分光学にカップル PFE の技術によって提供される直接の電気化学的制御の時にビルドします。PFIRE アプローチはこうして単独で電気化学から入手可能な情報に化学の洞察力を追加し、非常勉強に適している小分子結合と活性化に関与する酸化還元タンパク質および酵素の。さらに、PFIRE は触媒回転率の依存性がない場合はタンパク質構造変化について情報を提供できます。このような非回転電子転送イベントが大成功.と PFE のフーリエ変換の AC ボルタンメトリーへの拡張が使用されていますが、PFE の '標準' アプリケーションを使用して検出することは困難多い45,46
PFIRE メソッドは、原則、PFE を使用して学ぶことができます任意の酸化還元タンパク質の研究に最適です。したがって、PFE とタンパク質吸着は PFIRE 実験が成功のための重要なステップです。このプロトコルではケーススタディとして大腸菌Hyd1 を用いた PFIRE 法の応用について述べる。36,43ただし、また行った PFIRE テクニックr. eutropha、44から細胞質規制ヒドロゲナーゼとフラビンモノヌクレオチド カーボン ブラックに吸着.40これらの場合は、未変更の高表面積カーボン ブラック (このプロトコルで記述されている)、単純な物理的な吸着は高ければ高い信号対雑音比とレコード良質 IR スペクトルにタンパク質の表面被覆を提供します。吸着のような高いレベルを達成ことはできませんの場合は、電極表面にタンパク質のキャラクタリゼーションを許可するようにたとえば、炭素粒子の表面を変更する必要があります。60,61,62 PFIRE 測定のためグローブ ボックスの使用では嫌気処理必要がありますサンプルを勉強するときのみ必須です。しかし非常に定数の練習と低 (< 80 ° C の露点) にグローブ ボックスの雰囲気によって提供される水蒸気のレベルは非常に小さい結果の抽出を許可する高い信号対雑音を与えます。44ある多くの場合嫌気的環境では、グローブ ボックス、によって提供されるようまたが望ましい (PFIRE 技術に不可欠な) 電気化学測定作用電極で O2削減のため現在を避けるために。
バルク水、実験的バッファーおよびサンプルの吸着を炭素粒子による IR カラムベッド実験スペクトルに大きく貢献するすべてとのバンドが重なる可能性があります、特にへの関心、アミド、II と III の地域、スペクトル。63アミド地域には、フラビンや多くの酸化・還元反応の製品と同様、ニコチンアミド補因子基板など有機の種からの情報も含まれています。NiFe ヒドロゲナーゼの場合アクティブ サイトのνCOとνCNバンド スペクトルの比較的明確な地域の秋、だから PFIRE 技術は、これらの酵素の研究にも最適です。しかし、他のケースは固定された蛋白質のための変更を分離する同位体ラベリング手法と相まって差スペクトルを必要ことがあります。同様のアプローチは、変更を特定する、たとえば、プロトン、構造およびミカエリス-メンテン型錯体の赤外分光法を用いた研究に使用されています。64,65,66 PFIRE したがって、ヒドロゲナーゼの研究に限定されていません, しかし、任意の酸化還元タンパク質を含む (またはその基板、製品や阻害剤を含む) に適用することができます診断赤外活性振動のグループ一酸化炭素 dehydrogeanses、67 nitrogenases、68,14フラビン蛋白、たとえば、40とギ酸脱。
関連技術、セイラは、バイオミメティック環境における膜準蛋白質の研究に非常によく適しています。32セイラは IR の分光学も ATR IR 構成を使用し、ATR プリズム (IRE) の表面 (数 nm) 内で近くにある分子の IR 吸光度を増幅させる表面増強効果を利用の適応です。セイラは絶妙な吸着タンパク質や膜のアーキテクチャ内で発生する、溶媒から競合する信号から比較的自由スペクトルの変化に敏感なため、ソリューションに存在する基質・阻害剤。これは、ここで説明する PFIRE 手法とは対照的やや怒りの表面の上の大きく浸透深さに依存している (〜 1 μ m)、PFIRE が基板により敏感であることを意味、阻害剤の製品やソリューションの提示します。「バルク」溶媒にこの感度向上ができます。基板または製品は、赤外線で直接観察できる、PFIRE スペクトルの長寿命活性種と電極間に関連付けられている製品の形成両方定常動力学をレポートします。69基板と製品の定常状態濃度を観察する能力は一酸化炭素デヒドロゲナーゼ (これは CO に CO2、強い赤外線吸収の可逆的な酸化を触媒する) などの酵素のため特に貴重になりますかギ酸脱水素酵素 (CO2にギ酸の可逆的な酸化を触媒する)。
現時点では、PFIRE は、'集中' のデータ収集と ATR IR ジオメトリの怒りの表面に酵素に使用される巨視的な炭素電極による酵素電極の定常状態速度論的研究に限定されます。この点で NiFe ヒドロゲナーゼの PFIRE 研究、49,50人のサブ売り上げ高反応速度論を研究する過渡吸収の光トリガー IR の分光学を使用してダイアーと同僚の仕事を補足。作業は進行中40分光電気化学セルを小型化して、電極の使用とミリ秒台の時間分解能を達成する必要があります。これは 100-500 の-1、 caまでの回転周波数と酵素のサブ売り上げ高速度論の研究を有効になります、還元と酸化過程の研究が有効になります。
全体的にみて、PFIRE、定常状態において酸化還元酵素の触媒反応の化学的特性を可能にする分光学的手法です。PFIRE のアプローチは、使用高表面積電極を提供する堅牢なタンパク質吸着 ATR IR ジオメトリにより、安易なソリューション exchange と同じ酵素サンプルに実施される複数の化学と電気化学滴定をことができます。酵素機能の中にこのような構造情報の in situ収集する能力は、広い生物電気化学コミュニティのための非常に貴重なツールです。
開示事項
著者は競争の経済的利害関係を宣言しません。
謝辞
K.A.V. と P.A.A. の仕事は、欧州研究評議会 (EnergyBioCatalysis-ERC-2010-ポンド-258600)、工学・物理科学研究協議会 IB 触媒賞 EP/N013514/1 バイオ ・生物科学研究に支えられ評議会 (BB/L009722/1 と BB/N006321/1)。相対湿度は、Ministerio デ サイエンス y Tecnologìa デ コスタリカ大学とリンカーンの大学、オックスフォードによって支えられました。著者は、デザインとこの作業で使用する分光電気化学セルの製造支援のためチャーリー ・ ジョーンズ氏、チャーリー ・ エバンス、機械のワーク ショップ (化学部門) のスタッフを認めます。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 分光器 | Agilent | 680-IR | 外部MCT検出器付き |
| ATRアクセサリー | パイク・テクノロジー | GladiATR | 5反射Si IRE |
| グローブボックス | ・グローブボックス・テクノロジー・リミテッド | N/A | 嫌気性サンプルの取り扱いと測定のためのカスタム設計の「ウェット」および「ドライ」ボックス |
| KBrウィンドウ | Crystran | カスタム | グローブボックスとFTIR分光器の外部ビームとの結合を可能にするため |
| 追加の光学系 | Agilent | N/A | PM-IRRASアクセサリーのコンポーネント |
| Silicon IRE | Crystal GmbH | カスタム | 台形:8.4 mm x 5 mm(大面)、厚さ1 mm、面角約39度 |
| ポテンショスタット | メトローム | オートラボ PGSTAT 128N | |
| Nova 10.1 | メトローム | ポテンショスタットを制御するためのソフトウェア | |
| ペリスタルティックポンプ | ウィリアムソン マニュファクチャリング カンパニー リミテッド | QL-1000-024-300 | |
| Pt ワイヤー | Surepure Chemetals | 3272 | 99.95% 純プラチナ ワイヤー、0.014インチ |
| 直径 カーボンロッド | WH スミス | 30729209 | 0.7 mm HB ペンシル リード |
| カーボン ブラック | キャボット コーポレーション | ブラック パール 2000 | |
| 超音波浴 | Ultrawave | U100 | 35 W |
| 遠心フィルター | メルク ミリポア | UFC5050BK | アミコン ウルトラ、50 KDa MW カットオフ |
| マイクロ遠心機 | エッペンドルフ | 5452000018 | ミニスピン |
| NaCl | Sigma | 71376 | |
| H2SO4 | フィッシャー | S/9240/PB17 | |
| HNO3 | フィッシャー | N/2300/PB17 | |
| シリコーンシーラント | カウ コーニング 東レ(株) | SE 4486 | |
| カーボンペーパー | 東レ | TGP-H-030 | |
| H2 ガス | BOC | ||
| N2 ガス | BOC | ||
| OriginPro 2015 | OriginLab | データ分析/グラフ作成ソフトウェア | |
| Resolutions Pro 4.0 | FTIR分光計を制御するためのソフトウェア |
参考文献
- Ash, P. A., Vincent, K. A. Spectroscopic analysis of immobilised redox enzymes under direct electrochemical control. Chem. Commun. 48 (10), 1400-1409 (2012).
- Sezer, M., Millo, D., Weidinger, I. M., Zebger, I., Hildebrandt, P. Analyzing the catalytic processes of immobilized redox enzymes by vibrational spectroscopies. IUBMB Life. 64 (6), 455-464 (2012).
- Melin, F., Hellwig, P. Recent advances in the electrochemistry and spectroelectrochemistry of membrane proteins. Biol. Chem. 394 (5), 593-609 (2013).
- Dong, S., Niu, J., Cotton, T. M. Ultraviolet/visible spectroelectrochemistry of redox proteins. Methods Enzymol. 246, 701-732 (1995).
- Hellwig, P., et al. Electrochemical and Ultraviolet/Visible/Infrared Spectroscopic Analysis of Heme a and a3 Redox Reactions in the Cytochrome c Oxidase from Paracoccus denitrificans Separation of Heme a and a3 Contributions and Assignment of Vibrational Modes. Biochemistry. 38 (6), 1685-1694 (1999).
- Wu, S., et al. Redox chemistry of the Schizosaccharomyces pombe ferredoxin electron-transfer domain and influence of Cys to Ser substitutions. J. Inorg. Biochem. 105 (6), 806-811 (2011).
- Whitehouse, C. J. C., et al. A Highly Active Single-Mutation Variant of P450BM3 (CYP102A1). ChemBioChem. 10 (10), 1654-1656 (2009).
- Marritt, S. J., van Wonderen, J. H., Cheesman, M. R., Butt, J. N. Magnetic circular dichroism of hemoproteins with in situ control of electrochemical potential: "MOTTLE". Anal. Biochem. 359 (1), 79-83 (2006).
- Moss, D., Nabedryk, E., Breton, J., Mäntele, W. Redox-linked conformational changes in proteins detected by a combination of infrared spectroscopy and protein electrochemistry. Eur. J. Biochem. 187 (3), 565-572 (1990).
- Iwaki, M., et al. Direct Observation of Redox-Linked Histidine Protonation Changes in the Iron-Sulfur Protein of the Cytochrome bc1 Complex by ATR-FTIR Spectroscopy. Biochemistry. 44 (11), 4230-4237 (2005).
- Marshall, D., et al. ATR-FTIR Redox Difference Spectroscopy of Yarrowia lipolytica and Bovine Complex I. Biochemistry. 45 (17), 5458-5467 (2006).
- Lacey, A. L. D., Gutiérrez-Sánchez, C., Fernández, V. M., Pacheco, I., Pereira, I. A. C. FTIR spectroelectrochemical characterization of the Ni-Fe-Se hydrogenase from Desulfovibrio vulgaris Hildenborough. J. Biol. Inorg. Chem. 13 (8), 1315-1320 (2008).
- Millo, D., et al. Spectroelectrochemical Study of the [NiFe] Hydrogenase from Desulfovibrio vulgaris Miyazaki F in Solution and Immobilized on Biocompatible Gold Surfaces. J. Phys. Chem. B. 113 (46), 15344-15351 (2009).
- Paengnakorn, P., et al. Infrared spectroscopy of the nitrogenase MoFe protein under electrochemical control: potential-triggered CO binding. Chem. Sci. 8 (2), 1500-1505 (2017).
- Male, L., et al. Protein voltammetry and spectroscopy: integrating approaches. Theor. Chem. Acc. 119 (1-3), 107-111 (2008).
- Healy, A. J., Ash, P. A., Lenz, O., Vincent, K. A. Attenuated total reflectance infrared spectroelectrochemistry at a carbon particle electrode; unmediated redox control of a [NiFe]-hydrogenase solution. Phys. Chem. Chem. Phys. 15 (19), 7055-7059 (2013).
- Léger, C., Bertrand, P. Direct Electrochemistry of Redox Enzymes as a Tool for Mechanistic Studies. Chem. Rev. 108 (7), 2379-2438 (2008).
- Armstrong, F. A., Hirst, J. Reversibility and efficiency in electrocatalytic energy conversion and lessons from enzymes. Proc. Natl. Acad. Sci. U.S.A. 108 (34), 14049-14054 (2011).
- Gates, A. J., et al. The relationship between redox enzyme activity and electrochemical potential-cellular and mechanistic implications from protein film electrochemistry. Phys. Chem. Chem. Phys. 13 (17), 7720-7731 (2011).
- Pershad, H. R., et al. Catalytic Electron Transport in Chromatium vinosum [NiFe]-Hydrogenase: Application of Voltammetry in Detecting Redox-Active Centers and Establishing That Hydrogen Oxidation Is Very Fast Even at Potentials Close to the Reversible H+/H2 Value. Biochemistry. 38 (28), 8992-8999 (1999).
- Goldet, G., et al. Electrochemical Kinetic Investigations of the Reactions of [FeFe]-Hydrogenases with Carbon Monoxide and Oxygen: Comparing the Importance of Gas Tunnels and Active-Site Electronic/Redox Effects. J. Am. Chem. Soc. 131 (41), 14979-14989 (2009).
- Vincent, K. A., Parkin, A., Armstrong, F. A. Investigating and Exploiting the Electrocatalytic Properties of Hydrogenases. Chem. Rev. 107 (10), 4366-4413 (2007).
- Parkin, A., Seravalli, J., Vincent, K. A., Ragsdale, S. W., Armstrong, F. A. Rapid and Efficient Electrocatalytic CO2/CO Interconversions by Carboxydothermus hydrogenoformans CO Dehydrogenase I on an Electrode. J. Am. Chem. Soc. 129 (34), 10328-10329 (2007).
- van Wonderen, J. H., Burlat, B., Richardson, D. J., Cheesman, M. R., Butt, J. N. The Nitric Oxide Reductase Activity of Cytochrome c Nitrite Reductase from Escherichia coli. J. Biol. Chem. 283 (15), 9587-9594 (2008).
- Schaming, D., et al. Spectroelectrochemical Characterization of Small Hemoproteins Adsorbed within Nanostructured Mesoporous ITO Electrodes. Langmuir. 28 (39), 14065-14072 (2012).
- Kemp, G. L., et al. Opportunities for mesoporous nanocrystalline SnO2 electrodes in kinetic and catalytic analyses of redox proteins. Biochem. Soc. Trans. 37 (2), 368-372 (2009).
- Renault, C., et al. Unraveling the Mechanism of Catalytic Reduction of O2 by Microperoxidase-11 Adsorbed within a Transparent 3D-Nanoporous ITO Film. J. Am. Chem. Soc. 134 (15), 6834-6845 (2012).
- Krzemiński, Ł, et al. Spectroelectrochemical Investigation of Intramolecular and Interfacial Electron-Transfer Rates Reveals Differences Between Nitrite Reductase at Rest and During Turnover. J. Am. Chem. Soc. 133 (38), 15085-15093 (2011).
- Akkilic, N., Kamran, M., Stan, R., Sanghamitra, N. J. M. Voltage-controlled fluorescence switching of a single redox protein. Biosens. Bioelectron. 67, 747-751 (2015).
- Ataka, K., Heberle, J. Electrochemically Induced Surface-Enhanced Infrared Difference Absorption (SEIDA) Spectroscopy of a Protein Monolayer. J. Am. Chem. Soc. 125 (17), 4986-4987 (2003).
- Millo, D., Hildebrandt, P., Pandelia, M. -E., Lubitz, W., Zebger, I. SEIRA Spectroscopy of the Electrochemical Activation of an Immobilized [NiFe] Hydrogenase under Turnover and Non-Turnover Conditions. Angew. Chem. Int. Ed. 50 (11), 2632-2634 (2011).
- Ataka, K., Stripp, S. T., Heberle, J. Surface-enhanced infrared absorption spectroscopy (SEIRAS) to probe monolayers of membrane proteins. Biochim. Biophys. Acta, Biomembr. 1828 (10), 2283-2293 (2013).
- Kozuch, J., et al. Voltage-dependent structural changes of the membrane-bound anion channel hVDAC1 probed by SEIRA and electrochemical impedance spectroscopy. Phys. Chem. Chem. Phys. 16 (20), 9546-9555 (2014).
- Silveira, C. M., et al. SERR Spectroelectrochemical Study of Cytochrome cd1 Nitrite Reductase Co-Immobilized with Physiological Redox Partner Cytochrome c552 on Biocompatible Metal Electrodes. PLoS One. 10 (6), 0129940(2015).
- Todorovic, S., Hildebrandt, P., Martins, L. Surface enhanced resonance Raman detection of a catalytic intermediate of DyP-type peroxidase. Phys. Chem. Chem. Phys. 17 (18), 11954-11957 (2015).
- Hidalgo, R., Ash, P. A., Healy, A. J., Vincent, K. A. Infrared Spectroscopy During Electrocatalytic Turnover Reveals the Ni-L Active Site State During H2 Oxidation by a NiFe Hydrogenase. Angew. Chem. Int. Ed. 54 (24), 7110-7113 (2015).
- Grabarczyk, D. B., Ash, P. A., Vincent, K. A. Infrared Spectroscopy Provides Insight into the Role of Dioxygen in the Nitrosylation Pathway of a [2Fe2S] Cluster Iron-Sulfur Protein. J. Am. Chem. Soc. 136 (32), 11236-11239 (2014).
- Kriegel, S., Uchida, T., Osawa, M., Friedrich, T., Hellwig, P. Biomimetic Environment to Study E. coli Complex I through Surface-Enhanced IR Absorption Spectroscopy. Biochemistry. 53 (40), 6340-6347 (2014).
- El Khoury, Y., Van Wilderen, L. J. G. W., Bredenbeck, J. Ultrafast 2D-IR spectroelectrochemistry of flavin mononucleotide. J. Chem. Phys. 142 (21), 212416(2015).
- Ash, P. A., et al. Synchrotron-Based Infrared Microanalysis of Biological Redox Processes under Electrochemical Control. Anal. Chem. 88 (13), 6666-6671 (2016).
- Nakamoto, K. Infrared and Raman Spectra of Inorganic and Coordination Compounds. Part B. , John Wiley & Sons, inc. (2009).
- Bard, A., Faulkner, L. R. Electrochemical Methods: Fundamentals and Applications. , John Wiley & Sons, Inc. (2001).
- Murphy, B. J., et al. Discovery of Dark pH-Dependent H+ Migration in a [NiFe]-Hydrogenase and Its Mechanistic Relevance: Mobilizing the Hydrido Ligand of the Ni-C Intermediate. J. Am. Chem. Soc. 137 (26), 8484-8489 (2015).
- Ash, P. A., et al. Electrochemical and Infrared Spectroscopic Studies Provide Insight into Reactions of the NiFe Regulatory Hydrogenase from Ralstonia eutropha with O2 and CO. J. Phys. Chem. B. 119 (43), 13807-13815 (2015).
- Lee, C. -Y., et al. Theoretical and experimental investigation of surface-confined two-center metalloproteins by large-amplitude Fourier transformed ac voltammetry. J. Electroanal. Chem. 656 (1-2), 293-303 (2011).
- Adamson, H., et al. Electrochemical evidence that pyranopterin redox chemistry controls the catalysis of YedY, a mononuclear Mo enzyme. Proc. Natl. Acad. Sci. U.S.A. 112 (47), 14506-14511 (2015).
- De Lacey, A. L., Fernández, V. M., Rousset, M., Cammack, R. Activation and Inactivation of Hydrogenase Function and the Catalytic Cycle: Spectroelectrochemical Studies. Chem. Rev. 107 (10), 4304-4330 (2007).
- Lubitz, W., Ogata, H., Rüdiger, O., Reijerse, E. Hydrogenases. Chem Rev. 114 (8), 4081-4148 (2014).
- Greene, B. L., Wu, C. -H., McTernan, P. M., Adams, M. W. W., Dyer, R. B. Proton-Coupled Electron Transfer Dynamics in the Catalytic Mechanism of a [NiFe]-Hydrogenase. J. Am. Chem. Soc. 137 (13), 4558-4566 (2015).
- Greene, B. L., Wu, C. -H., Vansuch, G. E., Adams, M. W. W., Dyer, R. B. Proton Inventory and Dynamics in the Nia-S to Nia-C Transition of a [NiFe] Hydrogenase. Biochemistry. 55 (12), 1813-1825 (2016).
- Greene, B. L., Vansuch, G. E., Wu, C. -H., Adams, M. W. W., Dyer, R. B. Glutamate Gated Proton-Coupled Electron Transfer Activity of a [NiFe]-Hydrogenase. J. Am. Chem. Soc. 138 (39), 13013-13021 (2016).
- Sezer, M., et al. Role of the HoxZ Subunit in the Electron Transfer Pathway of the Membrane-Bound [NiFe]-Hydrogenase from Ralstonia eutropha Immobilized on Electrodes. J. Phys. Chem. B. 115 (34), 10368-10374 (2011).
- Heering, H. A., Wiertz, F. G. M., Dekker, C., de Vries, S. Direct Immobilization of Native Yeast Iso-1 Cytochrome c on Bare Gold: Fast Electron Relay to Redox Enzymes and Zeptomole Protein-Film Voltammetry. J. Am. Chem. Soc. 126 (35), 11103-11112 (2004).
- dos Santos, L., Climent, V., Blanford, C. F., Armstrong, F. A. Mechanistic studies of the "blue" Cu enzyme, bilirubin oxidase, as a highly efficient electrocatalyst for the oxygen reduction reaction. Phys. Chem. Chem. Phys. 12 (42), 13962-13974 (2010).
- Lukey, M. J., et al. How Escherichia coli Is Equipped to Oxidize Hydrogen under Different Redox Conditions. J. Biol. Chem. 285 (6), 3928-3938 (2010).
- Jones, A. K., et al. Enzyme Electrokinetics: Electrochemical Studies of the Anaerobic Interconversions between Active and Inactive States of Allochromatium vinosum [NiFe]-hydrogenase. J. Am. Chem. Soc. 125 (28), 8505-8514 (2003).
- Quinson, J., et al. Comparison of carbon materials as electrodes for enzyme electrocatalysis: hydrogenase as a case study. Faraday Trans. 172 (0), 473-496 (2014).
- Shafaat, H. S., Rüdiger, O., Ogata, H., Lubitz, W. [NiFe] hydrogenases: A common active site for hydrogen metabolism under diverse conditions. Biochim. Biophys. Acta, Bioenerg. 1827 (8-9), 986-1002 (2013).
- Ash, P. A., Hidalgo, R., Vincent, K. A. Proton transfer in the catalytic cycle of NiFe hydrogenases: insight from vibrational spectroscopy. ACS Catalysis. , (2017).
- Krishnan, S., Armstrong, F. A. Order-of-magnitude enhancement of an enzymatic hydrogen-air fuel cell based on pyrenyl carbon nanostructures. Chem. Sci. 3 (4), 1015-1023 (2012).
- Baffert, C., et al. Covalent Attachment of FeFe Hydrogenases to Carbon Electrodes for Direct Electron Transfer. Anal. Chem. 84 (18), 7999-8005 (2012).
- Rüdiger, O., et al. Enzymatic Anodes for Hydrogen Fuel Cells based on Covalent Attachment of Ni-Fe Hydrogenases and Direct Electron Transfer to SAM-Modified Gold Electrodes. Electroanal. 22 (7-8), 776-783 (2010).
- Barth, A., Zscherp, C. What vibrations tell about proteins. Q. Rev. Biophys. 35 (4), 369-430 (2002).
- Jiang, X., et al. Resolving voltage-dependent structural changes of a membrane photoreceptor by surface-enhanced IR difference spectroscopy. Proc. Natl. Acad. Sci. U.S.A. 105 (34), 12113-12117 (2008).
- Kottke, T., Lòrenz-Fonfrìa, V. A., Heberle, J. The Grateful Infrared: Sequential Protein Structural Changes Resolved by Infrared Difference Spectroscopy. J. Phys. Chem. B. 121 (2), 335-350 (2017).
- Callender, R., Dyer, R. B. The Dynamical Nature of Enzymatic Catalysis. Acc. Chem. Res. 48 (2), 407-413 (2015).
- Ciaccafava, A., et al. When the inhibitor tells more than the substrate: the cyanide-bound state of a carbon monoxide dehydrogenase. Chem. Sci. 7 (5), 3162-3171 (2016).
- George, S. J., Ashby, G. A., Wharton, C. W., Thorneley, R. N. F. Time-Resolved Binding of Carbon Monoxide to Nitrogenase Monitored by Stopped-Flow Infrared Spectroscopy. J. Am. Chem. Soc. 119 (27), 6450-6451 (1997).
- McPherson, I. J., Ash, P. A., Jacobs, R. M. J., Vincent, K. A. Formate adsorption on Pt nanoparticles during formic acid electro-oxidation: insights from in situ infrared spectroscopy. Chem Commun. 52 (85), 12665-12668 (2016).
再版と許可
