概日時間の関数としてのザリガニ光受容体の脱感作と感度回復の研究のためのプロトコルが提示される。
このコンテンツを表示するには、JoVEへの購読が必要です。 または、無料トライアルをお申し込みください。
この記事について
サマリー
要約
ザリガニ光受容体の脱感作と回収を研究する方法を提示する。不連続な単一電極交換電圧クランプ構成を用いて、単離されたアイズトークにおける光受容体細胞の細胞内電気記録を行った。まず、カミソリの刃で、網膜へのアクセスを得るために、後角膜に開口部を作りました。その後、開口部を通してガラス電極を挿入し、負電位の記録により報告された細胞を貫通した。膜電位は、光受容体の休止電位でクランプされ、電流を活性化するために光パルスを適用した。最後に、2つのライトフラッシュプロトコルを用いて、現在の脱感作と回復を測定しました。最初のライトフラッシュトリガは、ラグ期間の後、転起イオン電流、ピーク振幅に達した後、脱感作状態に向かって減衰します。2番目のフラッシュは、様々な時間間隔で適用され、光活性化導電率の状態を評価する。光誘発電流を特徴付けるために、1)遅延(ライトフラッシュ配信と電流が最大値の10%を達成するまでの経過時間)の3つのパラメータを測定しました。2)ピーク電流;3)脱感作時間定数(現在の減衰相の指数時間定数)。すべてのパラメータは、最初のパルスの影響を受けます。
脱感作からの回復を定量化するために、比p2/p1はパルス間の時間と比較して採用された。p1は第1の光パルスによって呼び起こされるピーク電流であり、p2は第2パルスによって呼び起こされるピーク電流である。これらのデータは、指数関数の合計に適合しました。最後に、これらの測定は概日時間の関数として行った。
概要
視覚刺激として知覚されるためには、眼に到達する光を電気信号に形質転換する必要があります。したがって、すべての視覚生物において、光は形質転換イオン電流を引き起こし、光受容体細胞の膜電位、いわゆる受容体電位の変化を引き起こす。このため、眼の光感度は、主に光活性化導電率の状態に依存し、活性化または脱感作することができます。
ザリガニの光受容体では、光はゆっくりとした一過性のイオン電流1を引き起こす。照明時に、転移電流は、最大に達する前に遅れまたは遅延の後に発生します。その後、それは減衰し、伝達チャネルが脱感作状態に陥り、それらはさらなる光刺激に応答しない2。すなわち、光は、視覚を担う形質転換電流を活性化することに加えて、感光体細胞の感受性の一過性の減少も誘導する。脱感作は、適切な刺激への過度の暴露に対する一般的な保護メカニズムを表し得る。転帰伝導が脱感作から回復するにつれて、光に対する眼の感受性が回復する。
細胞内記録は、興奮性細胞3、4、5、6、7、8の電気活動を測定するのに有用な技術である。パッチクランプ技術9の出現により細胞内記録の頻度は低くなっていますが、細胞が単離しにくい場合や、パッチクランプギガシールの形成を困難にする幾何学的形状(すなわち、パッチ電極と膜間のシールまたは接合が109オームの電気抵抗を伴う)を提示する場合には、依然として便利なアプローチです。後者の例は、精子細胞10および本明細書で研究された光受容体細胞である。私たちの経験では、プロカンバルス・クラーキイ光受容体は単一培養中に分離し、維持することは困難です。さらに、ギガシール形成を達成しにくくする細い棒です。細胞内記録では、鋭い電極が周囲の組織によって所定の所定の場所に保持される細胞に進入される。電極はアンプの高速スイッチング回路によって切り刻まれるため、電圧パルス間で電流をサンプリングします。このモードは、不連続単電極電圧クランプ(dSEVCモード)11として知られている。電極の高抵抗(小さな開口部)は、細胞とピペット溶液との拡散交換を妨げ、細胞内ミリュー3の妨害を最小限に抑える。この技術の潜在的な欠点は、電極挿入が非選択的リーク電流を生成する可能性が高いということです。したがって、リーク電流の大きさが意図した測定値に干渉する可能性のある細胞からの記録を避けるように注意する必要があります4、12。
本明細書では、単離されたザリガニの目話を用いて、電圧クランプ条件下で光受容体細胞の細胞内電気記録を行うことにより、光活性化イオン伝導率の脱感作と回収を評価する。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
プロトコル
注:実験はメキシコの動物保護法に準拠しています。
1. 実験的なセットアップ
- 一般的な接続
- アナログ/デジタルコンバータを使用してアンプを適切なコンピュータに接続し、オシロスコープを使用して実験を監視します(図1)。
- 変換したA/Dにフォト刺激装置を接続します。
- レコーディングチャンバー
- 防振テーブルの上に記録室を置き、ファラデーケージの中に置きます。
メモ:これにより、録音に影響を与える可能性のある機械的振動や電気ノイズを防ぐことができます。私たちのファラデーケージは、暗い金網で作られました。自家製、2mL、アクリル記録室を使用しています(図2)。 - 準備を生き続けるためにお風呂の溶液を準備13: 205 mM NaCl;5 mM KCl;2 mM MgSO4;13 mM CaCl2;5 mM ヘペスナオ、 pH 7.3.
注:実験手順は電気記録による損傷を検出するのに十分短いため、溶液はデキストロースまたは95%O2、5%CO2混合物による任意のバブリングを含みません(完全性についてはステップ4.2.3を参照)。
- 防振テーブルの上に記録室を置き、ファラデーケージの中に置きます。
- 電極
- 参照電極として塩化物被覆銀線電極を使用する
注:電極反応を可能にするために塩化銀コーティングが必要です: AgCl(s) + e−↔ Ags + Cl-. - その表面をきれいにするために、銀線(厚さ~1mm、長さ~10cm)を細かいグレードのエメリーペーパーでサンド。
- 銀線を蒸留水ですすいでください。
- きれいな銀線を4~6%次亜塩素酸ナトリウム溶液(NaClO)に浸し、暗く見えるまで(約20分)。
- 電解液(2.7M KCl)を充填した薄いガラスピペットを細胞内電極として使用してください。
- ガラスキャピラリーチューブ(内径≥1mm)をマイクロピペットプーラーで引っ張り、小さな開口部(0.01-0.1μm)14の薄い先端を得る。
- 引っ張ったキャピラリーガラスに2.7 M KCl溶液を充填します。まず毛細血管(ピペット先端を2.7 M KCl溶液に浸す)で満たし、ピペットの半分を細かい注射針で満たします。必要に応じて、電極ピペットをタップして気泡を除去します。
- 電極をホルダーに接続します。ホルダーをアンプのヘッドステージにアンプで接続します。安定した3Dマイクロマニピュレータで電極ホルダーヘッドステージを配置します。浴水がその先端を覆うまで電極を下ろします。
注: 電極は垂直方向でなければなりません
- 参照電極として塩化物被覆銀線電極を使用する
- アンプのブリッジモード(アンプのモードセクションで、ブリッジボタンを押す)を選択し、電極抵抗を測定します。抵抗が約50 MΩ11であることを確認してください。
注:この電極サイズは、セルへの損傷が限られている良質の電気記録を可能にします。 - オフセット電流をNULLにし、アンプのセクション電圧クランプの保持位置ボタンと、アンプのマイクロ電極1セクションのキャパシタンス中和ボタンを使用して容量性トランジェントを補正します。
- スーパーフュージョンシステム
- 浴液(ステップ1.2.2)を適切なレセプタクル(250 mL血清ボトル)に注ぎ、灌漑チューブセット(内径3.2mm)に接続し、記録室を接続します。重力駆動超拡散システムを使用します。流量を~0.5 mL/sに調整します。
- チャンバーを吸引装置に接続します。記録室の総体積が変化しないように溶液吸引システムを調節する。吸引のための真空ポンプを使用しなさい。
メモ:記録室の一定の容積は実験全体を通して迷走容量を一定に保つために重要である。
2. 生物材料
注:不明瞭なセックスのインターモルト段階で大人のザリガニP.クラーキイ(長さ7〜10センチ)を使用してください。
- 概日時間
- 実験の1ヶ月前に、12-h光/12-h暗いサイクル15(白色光、2.4 kW/m2)の下で100匹のザリガニを維持します。
注:ザリガニの集団を同期させるのに十分な時間は1ヶ月です。 - 無作為に選択された5匹の動物のエレクトロレチノグラムの振幅を評価することによってザリガニ集団の概日時間を決定する15.
注:0h概日時間(CT0)は、主観的な一日の始まり、すなわち、生物が通常活動している時間を示す16、17、18、19 (図3)。ザリガニは夜行性の動物なので、12時間光/12時間の暗いサイクルの下で、暗い段階で活性である。
- 実験の1ヶ月前に、12-h光/12-h暗いサイクル15(白色光、2.4 kW/m2)の下で100匹のザリガニを維持します。
- アイストーク分離手順
- 所望の概日時間に、0〜4°Cの水道水に浸漬して、選択したザリガニを15分間麻酔する。
- 細かいはさみで、目の話をベースから取り外します。
- カミソリの刃を使って網膜にアクセスし、後角膜に開口部(~1mm2)を作ります。
- アイストークを記録室の中央(シリコーンで覆われた穴)に置き、チャンバーの上部にある網膜へのアクセス開口部を開きます。
- 20分間、一定の暗闇の下で目を保ちます。
注:20分は、感光体細胞が完全に暗くなるのに十分な時間である。
3. 光受容体インパリング
- マイクロ電極とアイズトークの縦軸を平行に置き、マイクロ電極が網膜へのアクセスを中心とするようにします。立体顕微鏡(10X)を使用して、デバイスを正しい構成に配置します。
- 増幅器のブリッジモード11を選択して、基準電極と記録電極の電圧差を監視する。
- 電極を浴槽に下ろし、その後網膜の上に置きます。
- 顕微鏡を離し、アイズトークの縦軸に平行なフォト刺激ランプを配置します。
注:ランプとスーパーフュージョンチャンバー間の距離は約15cmです。 - 突然の電圧降下が検出されるまで、マイクロ電極をゆっくりと下げます。
メモ:−50mV付近の電圧降下は、健康な光受容体セルのインパルスを示します。 - 光受容体の受容体電位を記録するために、テストライトフラッシュ(白色光、7.2 kW/m 2、10°S持続時間)を提供します。
注:光受容体の受容体電位は、10~15mVの振幅と300ミリ秒の持続時間の脱分極電位です(図4)。
4. 電気録音
- 光受容体細胞が完全に暗い状態に適応していることを確認します(ステップ2.3を参照)。
- 2 分ごとにテストライトフラッシュを提供します。
注:2分は、感光体の電気応答の基礎となる電流の総回収を可能にするために必要な時間です。 - 静止膜電位、ならびに受容体電位の振幅および持続時間を監視する。受容体は、膜電位、振幅、および受容体電位の持続時間が変化しないままになると、完全に適応していると仮定します。アイズトークは以前、20分間一定の暗闇の下に保たれ(ステップ2.3)、約5分で適応を完了しました。
- 光誘発電流を記録する前に、細胞を刺激するのを2分停止します。
- 2 分ごとにテストライトフラッシュを提供します。
- 現在の録画
- データ集録ソフトウェア(アナログ出力チャンネル部の波形)で「保持振幅」を選択して、セルの測定された休止膜電位値で電圧をクランプします。
- アンプのdSEVCモードを選択します。アンプのモードセクションで、SEVCボタンを選択し、レバーをDiscont SEVC位置に切り替えます。
- スイッチングレートを500〜1,000Hzに設定し(増幅器のレート調整ボタンを使用して)、電極11の速度によって決定される。
- ライトフラッシュを提供し、誘発されたイオン流入を観察します。
メモ:これは光誘発電流または伝達電流です(図5)。 - アンプのブリッジモードに戻り、ライトフラッシュを送信して受容体電位を記録します(セクション3を参照)。光受容体細胞が完全に暗い状態に適応していることを確認してください。受容体電位特性(振幅と持続時間)を測定し、最初の測定値と比較します。インパルス光受容体細胞が同じ特性を持つ場合、健康な細胞であると仮定します。
注:眼語アブレーション後、生物学的製剤は、次の2時間の間に実行可能である。
- 2つのパルスプロトコル:2つのライトフラッシュプロトコルを使用して脱感作からの回復を測定します。
メモ:2つのライトフラッシュプロトコルは、電圧ゲートチャネル20の不活性化からのリカバリを測定するために使用される標準的な2パルス電圧プロトコルに似ています。第1の光フラッシュは、感光セルの感度に一時的な変化を引き起こし、第2のフラッシュは、光活性化導電率の状態を評価する。- 一対の光パルスを提供します。目的の時間間隔(300 ミリ秒から 2 分)の後に 2 番目のフラッシュを適用します。
- データ集録ソフトウェアで10KHzサンプリングで電流をデジタル化し、ライン解析用のデータを保存する 11.
注: ソフトウェアの構成値を含む表は、補足資料として含まれています。
5. データ分析
- 光誘発電流の動態
- 3つの電流パラメータを測定する:活性化遅延L、電流がその最大振幅の10%に達するまでのライトフラッシュ配信からの経過時間(図5)。ピークまたは最大電流振幅 Ip;脱感作時間定数 T. 現在の減衰相を次のように当てはめることによって脱感作時間定数(ƒ)を測定します。

ここで、A = -I(t=0) は正の定数です (図 5)。
- 3つの電流パラメータを測定する:活性化遅延L、電流がその最大振幅の10%に達するまでのライトフラッシュ配信からの経過時間(図5)。ピークまたは最大電流振幅 Ip;脱感作時間定数 T. 現在の減衰相を次のように当てはめることによって脱感作時間定数(ƒ)を測定します。
- 脱感作と回復
注: 脱感作からの回復は比率 p2/p1として評価され、p1は制御電流の関連パラメータ (L、Ip、または T のいずれか)、p2は 2 番目のテスト電流の対応するパラメータです。- パルス間の時間の関数として p2/p1 (L、Ip、または T のいずれか) をプロットします。
- パラメータに応じて、各プロットのポイントを次のようにフィットします。
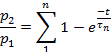
または、次の値を行います。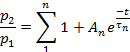
- 適切な統計検定を使用して、実験データに適合するために必要な指数項の数を決定します。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
結果
まず、ザリガニ光受容体細胞の代表的な受容体電位が得られる(図4)。その後、光伝達電流をトリガするためにテストライトフラッシュを適用しました(図5)。カチオン伝達電流1は、ラグの後に活性化し、最大に達し、その後ゆっくりと吸収脱感作状態に落ち、そこからゆっくりと回復する。
光誘発電流の長遅延L(数十ミリ秒)は、Gタンパク質経路を含む光によって引き起こされる生化学的事象に依存すると考えるのが妥当である。ピーク電流の振幅は、開いていけるチャネルの割合と、現在の活性化と不活性化の相対速度に依存します。後者は減衰時間定数Tによって評価される。
一方、L回収は...
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
ディスカッション
ザリガニは、非自然条件下で生き残る能力のために優れたモデルであることが証明されています。インビボおよびインビトロ電気生理学的分析への容易なアクセスがある。また、甲殻類は、比較時間生物学21の分野における神経生物学的研究に有利な群である。
本論文では、ザリガニ光受容体細胞の光活性化伝達電流の脱感作と回収に関する研究を、細胞内記録技術を用いて示す。しかし、光受容体細胞にアクセスできる限り、同じ技術を他の無脊椎動物の視覚系に適応させることができると考えています。
許容可能な実験結果を得るには、すべての機器を接地して電気ノイズを除去し、十分に微細な先端を有する電極を構築し、光受容体セルは、2パルスプロトコルが始まる前に完全に暗い適応である。
膜の損傷などの細胞内記録の限界にもかかわらず、さらに進み、ザリガニ(または他の動物)光受容体電気信号の基礎となる生物物理学的メカニズムに関する詳細な情報を得る...
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
開示事項
開示するものは何もない。
謝辞
この作業は、DGAPA-UNAM IN224616-RN224616 補助金によってサポートされました。著者たちは、この原稿の英語版を編集するために、UNAMのナカルト・デ・メディチーナのディビシオン・デ・インベスティガシオンの科学論文翻訳部門長のジョセフィーナ・ボラド夫人に感謝したいと考えています。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| アクソクランプ2A | Axon Instruments Inc | Amplifier | |
| Digidata 1200 Interface | Axon Instruments Inc | Digitizer | |
| Oscilloscope TDS430A | Tektronix | Analogic Oscilloscope | |
| Photostimulator PS33 Plus | Grass | Lamp | |
| Puller PC-100 | Narishige | Micropipette | |
| Puller P-97 | Sutter Instruments | マイクロピペットプーラー | |
| ガラスキャピラリーチューブ Kimax-51 | Kimble Products | 34502 | 0.8, 1.10, 100 mm |
| HS-2 Headstage | Axon Instruments Inc | Headstage | |
| Micromanipulator MX-4 | Narishige | Mechanical Micromanipulator | |
| Stereoscopic Microscope | Zeiss | Microscope | |
| pClamp | AxonInstruments Inc | digidata 1200インターフェース用データ収集ソフトウェア | |
| Clampfit | Axon Instruments, Inc | にリンクされた解析ソフトウェア | |
| データ分析・グラフ作成ソフト | |||
| 塩化ナトリウム | シグマ | S7653 | >99.5%) |
| 塩化カリウム | シグマ | P-9333 | 99% |
| 以上 硫酸マグネシウム | Σ M7506 | 99.5% | |
| 以上 塩化カルシウム | Σ C5080 | 99.0% | |
| 以上 ヘプ | スシグマ | H7523 | >99.5% |
| 水酸化ナトリウム | シグマ | S8045 | 98.00% |
| 次亜塩素酸ナトリウム溶液 | シグマ | 425044 | 利用可能な塩素、10-15% |
参考文献
- Barriga-Montoya, C., Gómez-Lagunas, F., Fuentes-Pardo, B. Effect of pigment dispersing hormone on the electrical activity of crayfish visual photoreceptors during the 24-h cycle. Comp. Biochem. Physiol. A Comp. Physiol. 157 (4), 338-345 (2010).
- Barriga-Montoya, C., de la O-Martínez, A., Fuentes-Pardo, B., Gómez-Lagunas, F. Desensitization and recovery of crayfish photoreceptors. Dependency on circadian time, and pigment-dispersing hormone. Comp. Biochem. Physiol. A Comp. Physiol. 203, 297-303 (2017).
- Wickenden, A. D. Overview of electrophysiological techniques. Curr. protoc. pharmacol. 11, 1-17 (2014).
- Brette, R., Destexhe, A. Intracellular recording. Handbook of Neural Activity Measurement. , 44-91 (2012).
- Cummins, D., Goldsmith, T. H. Cellular identification of the violet receptor in the crayfish eye. J. Comp. Physiol. 142 (2), 199-202 (1981).
- Eguchi, E. Rhabdom structure and receptor potentials in single crayfish retinular cells. J. Cell and Comp. Physiol. 66, 411-430 (1965).
- Nosaki, H. Electrophysiological study of color encoding in the compound eye of crayfish, Procambarus clarkii. Z. vergl. Physiologie. 64 (3), 318-323 (1969).
- Miller, C. S., Glantz, R. M. Visual adaptation modulates a potassium conductance in retinular cells of the crayfish. Vis Neurosci. 17 (3), 353-368 (2000).
- Hamill, O. P., Marty, A., Neher, E., Sakmann, B., Sigworth, F. J. Improved patch-clamp techniques for high-resolution current recording from cells and cell-free membrane patches. Pflugers Arch. 391 (2), 85-100 (1981).
- Lishko, P., Clapham, D. E., Navarro, B., Kirichok, Y. Sperm patch-clamp. Methods Enzymol. 525, 59-79 (2013).
- Finkel, A. Axoclamp-2A microelectrode clamp theory and operation. Axon Instruments, Inc. , (1990).
- Single-channel recording. Sakmann, B. , Springer Science & Business Media. (2013).
- Van Harreveld, A. A physiological solution for freshwater crustacea. Proc. Soc. Exp. Biol. Med. 34 (4), 428-432 (1936).
- Oesterle, A. pipette cookbook. , Sutter Instruments. Novato, CA. 97(2008).
- Fuentes-Pardo, B., Ramos-Carvajal, J. The phase response curve of electroretinographic circadian rhythm of crayfish. Comp. Biochem. Physiol. A Comp. Physiol. 74 (3), 711-714 (1983).
- Pace-Schott, E. F., Hobson, J. A. The neurobiology of sleep: genetics, cellular physiology and subcortical networks. Nat. Rev. Neurosci. 3 (8), 591-605 (2002).
- Pittendrigh, C. S. On the mechanism of the entrainment of a circadian rhythm by light cycles. Circadian Clocks. Aschoff, J. , North Holland, Amsterdam. 277-297 (1965).
- Pittendrigh, C. S. Circadian systems: entrainment. Handbook Behavioral Neurobiology Biological Rhythms. Aschoff, J. , Plenum, New York. 94-124 (1981).
- Vitaterna, M. H., Takahashi, J. S., Turek, F. W. Overview of circadian rhythms. Alcohol Res. Health. 25 (2), 85-93 (2001).
- Hille, B. Ion channels of excitable membranes. 507, Sinauer. Sunderland, MA. (2001).
- Dircksen, H., Strauss, J. Circadian clocks in crustaceans: identified neuronal and cellular systems. Front Biosci. 15, 1040-1074 (2010).
- Terakita, A., Hariyama, T., Tsukahara, Y., Katsukura, Y., Tashiro, H. Interaction of GTP-binding protein Gq with photoactivated rhodopsin in the photoreceptor membranes of crayfish. FEBS Lett. 330, 197-200 (1993).
- Terakita, A., Takahama, H., Hariyama, T., Suzuki, T., Tsukahara, Y. Light regulated localization of the beta-subunit of Gq-type G-protein in the crayfish photoreceptors. J Comp Physiol A. 183 (4), 411-417 (1998).
- Terakita, A., Takahama, H., Tamotsu, S., Suzuki, T., Hariyama, T., Tsukahara, Y. Light-modulated subcellular localization of the alpha-subunit of GTP-binding protein Gq in crayfish photoreceptors. Vis Neurosci. 13 (3), 539-547 (1996).
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
再版と許可
